
Цитоплазма и органоиды (эукариоты, лизосома, клеточный центр)
- микрофиламенты (≈ 7 нм) из белка актина — сеть под плазмалеммой, основа микроворсинок; вместе с миозином обеспечивают амёбоидное движение, движение цитоплазмы, фагоцитоз, перетяжку животной клетки при делении, в мышечных клетках — сокращение;
- промежуточные филаменты (≈ 10 нм) из разных фибриллярных белков (кератины эпителия, ламины ядерной оболочки) придают клетке прочность на растяжение;
- микротрубочки (≈ 25 нм) — полые цилиндры из белка тубулина; быстро собираются и разбираются, служат «рельсами» для перемещения пузырьков и органоидов, образуют веретено деления, центриоли, реснички и жгутики.
| Органоид | Строение | Функции |
|---|---|---|
| Лизосома | Одномембранный пузырёк с гидролитическими ферментами (pH ≈ 5) | Внутриклеточное пищеварение, автолиз (исчезновение хвоста головастика), разрушение отработавших органоидов |
Взаимосвязь одномембранных органоидов: белок синтезируется на гранулярной ЭПС → в пузырьках переносится в аппарат Гольджи → модифицируется и упаковывается → выводится экзоцитозом или остаётся в лизосоме. Мембраны этих органоидов и плазмалемма постоянно обмениваются пузырьками (единая мембранная система).
Гранулярная (шероховатая) эндоплазматическая сеть — система уплощённых цистерн, переходящая в наружную мембрану ядерной оболочки; рибосомы сидят на её наружной, обращённой в цитоплазму стороне. Здесь синтезируются растворимые белки на экспорт (ферменты, гормоны, антитела) и белки лизосом.
Синтез клеточных мембран. Новые мембраны не возникают на пустом месте, а растут из существующих: фосфолипиды и холестерин синтезируются ферментами мембран ЭПС и сразу встраиваются в них, мембранные белки встраиваются в мембрану гранулярной ЭПС по ходу синтеза. Затем участки мембраны в составе пузырьков переходят в аппарат Гольджи, оттуда — в лизосомы, вакуоли и плазмалемму, поэтому все мембраны этой системы связаны происхождением.
Аппарат Гольджи (описан К. Гольджи в 1898 г.) — стопки из 3–10 уплощённых цистерн; у растений такие стопки рассеяны по клетке. Секреторная функция: здесь к белкам присоединяются углеводы (образуются гликопротеины и гликолипиды), вещества сортируются по «адресам» — на выведение, в лизосомы, в плазмалемму — и упаковываются в секреторные пузырьки, которые выводят содержимое экзоцитозом.
Лизосомы (открыты К. де Дювом в 1955 г.) содержат несколько десятков гидролитических ферментов, расщепляющих белки, нуклеиновые кислоты, липиды и углеводы; кислую среду внутри создаёт протонный насос мембраны. Ферменты синтезируются на гранулярной ЭПС и сортируются в аппарате Гольджи, от которого отпочковываются первичные лизосомы. При слиянии с фагосомой или пиноцитозным пузырьком возникает вторичная лизосома (пищеварительная вакуоль): полезные продукты переходят в цитозоль, непереваренные остатки выводятся экзоцитозом. Автофагия — переваривание собственных изношенных органоидов, автолиз — самопереваривание клетки при её гибели или в развитии. В цитозоле (pH около 7) ферменты лизосом почти не работают — это страховка от самопереваривания.
Транспорт веществ в клетке. Мелкие молекулы перемещаются диффузией и с током цитоплазмы, белки и липиды «на экспорт» — в мембранных пузырьках, которые отшнуровываются от одного органоида и сливаются с другим. Пузырьки, митохондрии, хромосомы при делении движутся вдоль микротрубочек с помощью моторных белков, расходующих АТФ: кинезин везёт груз к периферии клетки, динеин — к её центру (так в отростке нейрона пузырьки доставляются к синапсу). Между ядром и цитоплазмой вещества переходят через ядерные поры.
Вакуоли растительных клеток. Кроме тургора и запаса веществ, вакуоль изолирует ненужные и вредные продукты обмена, расщепляет вещества (в ней есть гидролитические ферменты, как в лизосомах) и позволяет клетке расти растяжением — за счёт воды, почти без затрат вещества на новую цитоплазму.
Все пластиды развиваются из общих предшественников — пропластид клеток образовательной ткани, — поэтому возможно их взаимопревращение в зависимости от условий: лейкопласты на свету становятся хлоропластами (зеленеет клубень картофеля), хлоропласты при созревании плодов и осенью теряют хлорофилл и становятся хромопластами; хромопласты — как правило, конечная стадия.
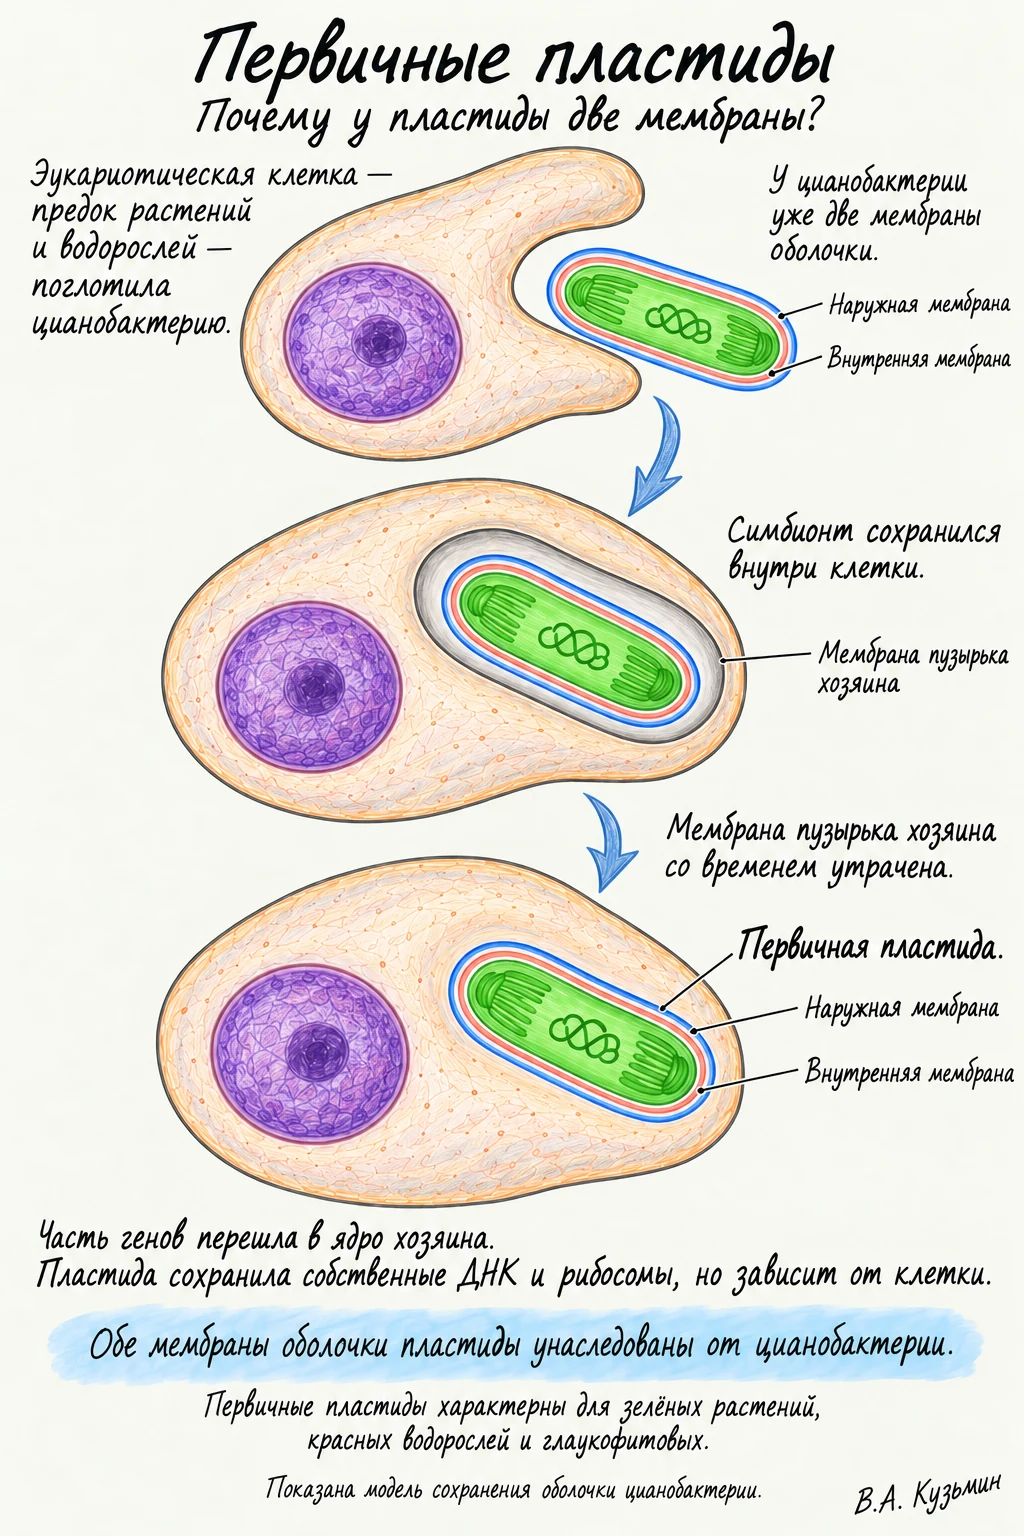
Первичные, вторичные и сложные пластиды фотосинтезирующих эукариот различаются происхождением. Первичные возникли, когда древняя эукариотическая клетка поглотила цианобактерию (первичный эндосимбиоз); они окружены двумя мембранами — у высших растений, зелёных и красных водорослей, глаукофитов (у глаукофитов между мембранами сохранился слой муреина — след стенки бактерии-предка). Вторичные возникли, когда эукариот поглотил одноклеточную водоросль с первичной пластидой (вторичный эндосимбиоз); они окружены тремя или четырьмя мембранами (лишние — от мембраны поглощённой водоросли и от пузырька клетки-хозяина), а у криптофитовых и хлорарахниевых водорослей между мембранами сохранился остаток ядра водоросли-симбионта — нуклеоморф.
Рибосомы — самые многочисленные органоиды (в эукариотической клетке — до нескольких миллионов) диаметром 20–30 нм. У эукариот рибосомы 80S (субъединицы 60S и 40S), у прокариот, в митохондриях и пластидах — 70S (50S и 30S); S — единица скорости оседания при центрифугировании, поэтому значения субъединиц не складываются. Субъединицы образуются в ядрышке, через ядерные поры выходят в цитоплазму и объединяются только на иРНК в начале трансляции, а после её окончания расходятся. Свободные рибосомы синтезируют белки для самой клетки, прикреплённые к ЭПС — белки на экспорт, для мембран и лизосом.
Клеточный центр (центросома) животной клетки лежит около ядра и состоит из двух центриолей, расположенных перпендикулярно друг другу, и окружающего их белкового вещества, от которого растут микротрубочки. Центриоль — полый цилиндр диаметром около 0,2 мкм, стенка которого образована девятью триплетами микротрубочек (9×3 + 0). Перед делением (в S-периоде) рядом с каждой центриолью строится дочерняя, пары расходятся к полюсам и организуют веретено деления. У высших растений и большинства грибов центриолей нет, и веретено собирается без них (у грибов его организуют особые тельца в ядерной оболочке).
Ядерная оболочка состоит из двух мембран с узким пространством между ними; наружная мембрана переходит в мембраны ЭПС и несёт рибосомы, внутренняя выстлана белковой сетью — ядерной ламиной, к которой прикреплены хромосомы. Оболочку пронизывают тысячи ядерных пор — сложных белковых комплексов, избирательно пропускающих вещества: из ядра выходят иРНК, тРНК и субъединицы рибосом, в ядро входят нуклеотиды, гистоны, ферменты синтеза ДНК и РНК. Кариоплазма (ядерный сок) — внутренняя среда ядра: раствор белков, нуклеотидов, ионов, в котором лежат хроматин и ядрышки.
Хроматин — комплекс ДНК с белками. Гистоны почти одинаковы у самых разных эукариот (например, у гороха и коровы); присоединение к ним химических групп разрыхляет или уплотняет хроматин и тем самым открывает или закрывает гены для считывания.
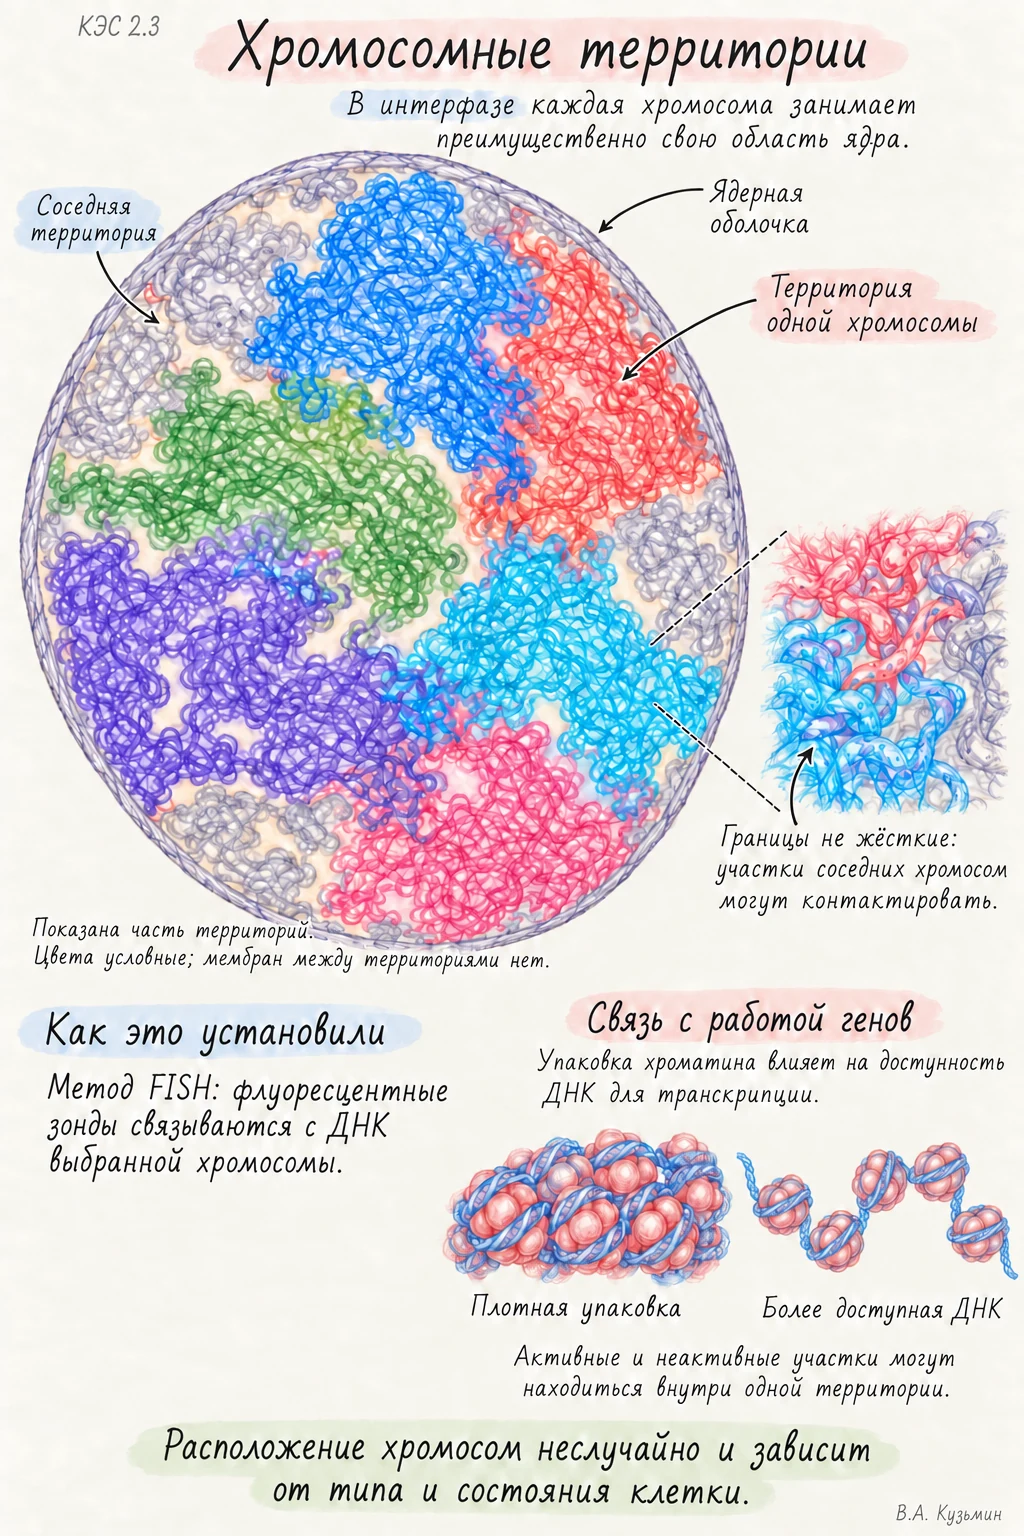
Ядерный белковый матрикс — внутриядерный каркас из негистоновых белков, связанный с ламиной; к нему прикреплены петли хроматина. Считается, что он упорядочивает укладку хроматина и служит опорой для ферментов репликации и транскрипции; его строение ещё изучается. Хромосомы в интерфазном ядре не перепутаны беспорядочно: каждая занимает свою область — хромосомную территорию. Неактивный гетерохроматин чаще прилегает к ядерной оболочке и к ядрышку, активные гены обычно обращены внутрь ядра, а участки разных хромосом с генами рРНК сходятся вместе, образуя ядрышко; от положения участка в ядре зависит, будут ли работать его гены.
| Группа органоидов | Какие входят | Общее свойство |
|---|---|---|
| Двумембранные | Митохондрии, пластиды, ядро | Имеют собственную ДНК (кроме ядра — там основная ДНК клетки) и способны к делению |
| Одномембранные | ЭПС, аппарат Гольджи, лизосомы, вакуоли, пероксисомы | Образуют единую систему мембран, обмениваются пузырьками |
| Немембранные | Рибосомы, клеточный центр, микротрубочки и микрофиламенты, реснички и жгутики | Построены из белков и нуклеиновых кислот без мембран |
- микротрубочки (≈ 25 нм) — полые цилиндры из белка тубулина; быстро собираются и разбираются, служат «рельсами» для перемещения пузырьков и органоидов, образуют веретено деления, центриоли, реснички и жгутики.
| Органоид | Строение | Функции |
|---|---|---|
| Рибосома | Немембранная: большая и малая субъединицы из рРНК и белков; субъединицы образуются в ядрышке, окончательно рибосома собирается в цитоплазме — на иРНК в начале трансляции | Синтез белка (трансляция); полисома — несколько рибосом на одной иРНК |
| Клеточный центр | Две центриоли (цилиндры из 9 триплетов микротрубочек), расположенные перпендикулярно друг другу; есть у животных и многих водорослей, у высших растений и большинства грибов нет (есть у хитридиевых) | Организует веретено деления, основание жгутиков и ресничек |
Ядро: двойная оболочка с порами, кариоплазма, ядрышко (сборка субъединиц рибосом), хроматин — ДНК с белками-гистонами; при делении спирализуется в хромосомы. Функции: хранение наследственной информации, управление синтезом белка, деление.
Ядерная оболочка состоит из двух мембран с узким пространством между ними; наружная мембрана переходит в мембраны ЭПС и несёт рибосомы, внутренняя выстлана белковой сетью — ядерной ламиной, к которой прикреплены хромосомы. Ядрышко — плотное тельце без мембраны, которое образуется на участках нескольких хромосом с генами рРНК (ядрышковых организаторах); здесь синтезируется рРНК и собираются субъединицы рибосом. В клетках, активно синтезирующих белок, ядрышки крупные; в профазе деления ядрышко исчезает, в телофазе образуется вновь.
Ядро в клетке обычно одно; у инфузорий их два разных (большое и малое), многоядерны волокна поперечнополосатых мышц и гифы многих грибов. Эритроциты млекопитающих и членики ситовидных трубок растений утрачивают ядро при созревании и больше не делятся.
| Группа органоидов | Какие входят | Общее свойство |
|---|---|---|
| Двумембранные | Митохондрии, пластиды, ядро | Имеют собственную ДНК (кроме ядра — там основная ДНК клетки) и способны к делению |
| Немембранные | Рибосомы, клеточный центр, микротрубочки и микрофиламенты, реснички и жгутики | Построены из белков и нуклеиновых кислот без мембран |
Хроматин — комплекс ДНК с белками. Основные белки хроматина — гистоны: небольшие белки, богатые положительно заряженными аминокислотами (лизином, аргинином), поэтому они прочно связываются с отрицательно заряженной ДНК. Восемь молекул гистонов образуют «катушку», на которую намотан участок ДНК около 150 пар нуклеотидов, — нуклеосому; нить нуклеосом похожа на бусы и укорачивает ДНК примерно в 7 раз, а дальнейшая укладка — в тысячи раз. Гистоны почти одинаковы у самых разных эукариот (например, у гороха и коровы); присоединение к ним химических групп разрыхляет или уплотняет хроматин и тем самым открывает или закрывает гены для считывания. Кроме гистонов, в хроматине есть негистоновые белки — ферменты и регуляторы.
Закрепите теорию: 9 терминов и 5 заданий с проверкой и подсказками, урок зачитывается от 70 %.
Пройти урок arrow_forward