
Цитоплазма и органоиды (эндоплазматическая сеть, митохондрия, гладкая ЭПС)
| Органоид | Строение | Функции |
|---|---|---|
| Митохондрия | Две мембраны, внутренняя образует кристы; матрикс с кольцевой ДНК и 70S-рибосомами (полуавтономна) | Кислородный этап дыхания, синтез АТФ («энергетическая станция») |
| Гранулярная ЭПС | Мембранные канальцы с рибосомами | Синтез белков на экспорт и мембранных белков, сборка мембран |
| Гладкая ЭПС | Канальцы без рибосом | Синтез липидов, стероидов и углеводов, обезвреживание ядов (печень), депо Ca²⁺ в мышцах |
Взаимосвязь одномембранных органоидов: белок синтезируется на гранулярной ЭПС → в пузырьках переносится в аппарат Гольджи → модифицируется и упаковывается → выводится экзоцитозом или остаётся в лизосоме. Мембраны этих органоидов и плазмалемма постоянно обмениваются пузырьками (единая мембранная система).
Гранулярная (шероховатая) эндоплазматическая сеть — система уплощённых цистерн, переходящая в наружную мембрану ядерной оболочки; рибосомы сидят на её наружной, обращённой в цитоплазму стороне. Здесь синтезируются растворимые белки на экспорт (ферменты, гормоны, антитела) и белки лизосом. Синтез любого белка начинается на свободной рибосоме; если начало цепи — сигнальный пептид (короткий гидрофобный «адрес»), его узнаёт особая частица, и рибосома причаливает к мембране ЭПС. Растущая цепь по ходу синтеза проходит через белковый канал в полость ЭПС, сигнальный пептид отрезается, а белок сворачивается и получает первые углеводные цепочки; дальше он в пузырьках идёт к аппарату Гольджи (мембранные белки остаются встроенными в мембрану). Белки для цитозоля, ядра, митохондрий и пластид синтезируются на свободных рибосомах.
Синтез клеточных мембран. Новые мембраны не возникают на пустом месте, а растут из существующих: фосфолипиды и холестерин синтезируются ферментами мембран ЭПС и сразу встраиваются в них, мембранные белки встраиваются в мембрану гранулярной ЭПС по ходу синтеза. Затем участки мембраны в составе пузырьков переходят в аппарат Гольджи, оттуда — в лизосомы, вакуоли и плазмалемму, поэтому все мембраны этой системы связаны происхождением.
Гладкая (агранулярная) ЭПС — сеть ветвящихся трубочек без рибосом. Какая ЭПС преобладает в клетке, зависит от синтезируемых веществ: гранулярная развита в клетках, выделяющих белки (например, в клетках поджелудочной железы), гладкая — в клетках коры надпочечников и половых желёз (синтез стероидных гормонов), в клетках печени (обезвреживание ядов; при длительном приёме лекарств гладкая ЭПС разрастается) и в мышечных волокнах (запас Ca²⁺, выброс которого запускает сокращение).
Аппарат Гольджи (описан К. Гольджи в 1898 г.) — стопки из 3–10 уплощённых цистерн; у растений такие стопки рассеяны по клетке. Пузырьки с веществами из ЭПС поступают на одну сторону стопки, вещества переходят от цистерны к цистерне и на противоположной стороне отшнуровываются в новых пузырьках.
Лизосомы (открыты К. де Дювом в 1955 г.) содержат несколько десятков гидролитических ферментов, расщепляющих белки, нуклеиновые кислоты, липиды и углеводы; кислую среду внутри создаёт протонный насос мембраны. Ферменты синтезируются на гранулярной ЭПС и сортируются в аппарате Гольджи, от которого отпочковываются первичные лизосомы.
Транспорт веществ в клетке. Мелкие молекулы перемещаются диффузией и с током цитоплазмы, белки и липиды «на экспорт» — в мембранных пузырьках, которые отшнуровываются от одного органоида и сливаются с другим. Пузырьки, митохондрии, хромосомы при делении движутся вдоль микротрубочек с помощью моторных белков, расходующих АТФ: кинезин везёт груз к периферии клетки, динеин — к её центру (так в отростке нейрона пузырьки доставляются к синапсу). Между ядром и цитоплазмой вещества переходят через ядерные поры.
Митохондрий (длина 1–10 мкм) в клетке от нескольких до тысяч; особенно много их в клетках сердечной мышцы и печени. Наружная мембрана гладкая и хорошо проницаема, на внутренней (на кристах) лежат ферменты дыхательной цепи и АТФ-синтаза, в матриксе — ферменты цикла Кребса. Кроме синтеза основной массы АТФ, митохондрии участвуют в синтезе некоторых веществ и выработке тепла (в буром жире). Новые митохондрии возникают только делением существующих; у человека они наследуются по материнской линии — с цитоплазмой яйцеклетки.
Хлоропласты высших растений окружены двумя мембранами; стопки тилакоидов (граны) соединены между собой тилакоидами стромы. В мембранах тилакоидов лежат хлорофиллы a и b, каротиноиды, переносчики электронов и АТФ-синтаза, в строме — ферменты цикла Кальвина и зёрна крахмала. В клетке листа 20–100 хлоропластов, они перемещаются, занимая положение в зависимости от освещения. Митохондрии и пластиды называют полуавтономными: у них своя ДНК, рибосомы и деление, но собственная ДНК кодирует лишь небольшую часть их белков — остальные закодированы в ядре, синтезируются в цитоплазме и доставляются внутрь, поэтому вне клетки эти органоиды существовать не могут.
Рибосомы — самые многочисленные органоиды (в эукариотической клетке — до нескольких миллионов) диаметром 20–30 нм. У эукариот рибосомы 80S (субъединицы 60S и 40S), у прокариот, в митохондриях и пластидах — 70S (50S и 30S); S — единица скорости оседания при центрифугировании, поэтому значения субъединиц не складываются. Субъединицы образуются в ядрышке, через ядерные поры выходят в цитоплазму и объединяются только на иРНК в начале трансляции, а после её окончания расходятся. Свободные рибосомы синтезируют белки для самой клетки, прикреплённые к ЭПС — белки на экспорт, для мембран и лизосом.
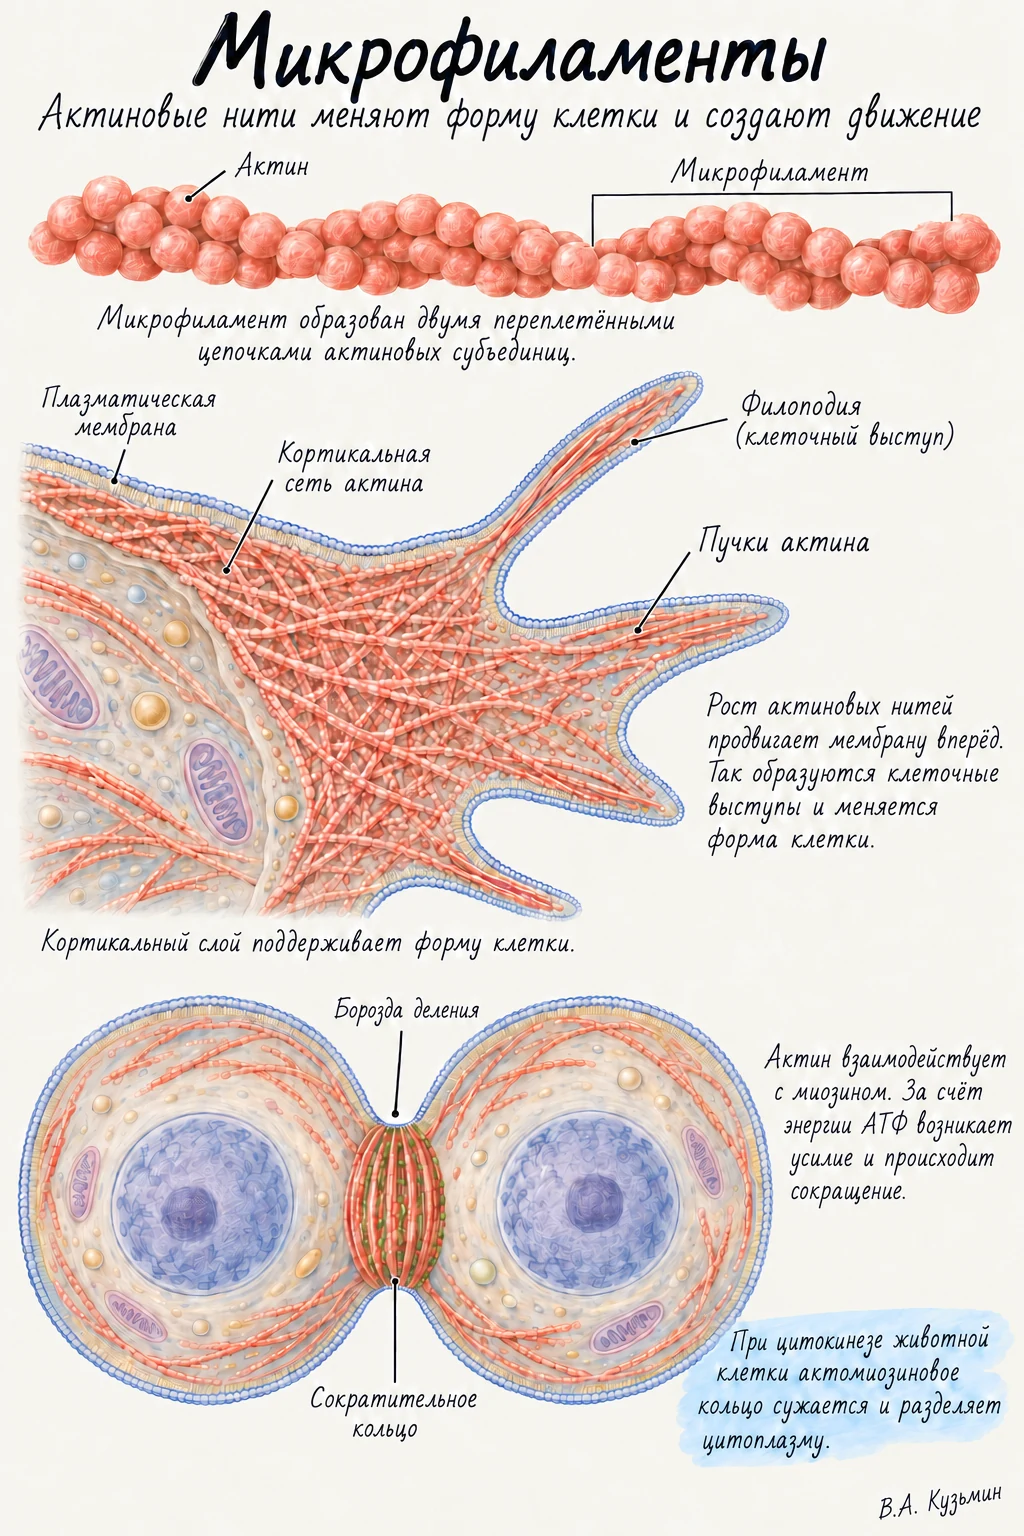
Микрофиламенты и мышечные клетки. В мышечных волокнах нити актина вместе с более толстыми нитями из белка миозина образуют упорядоченные пучки — миофибриллы. При сокращении головки миозина, расщепляя АТФ, «шагают» по актиновым нитям и втягивают их между миозиновыми: нити скользят друг относительно друга, и волокно укорачивается. Сигнал к сокращению — выход ионов Ca²⁺ из гладкой ЭПС мышечного волокна, поэтому в мышечных клетках хорошо развиты гладкая ЭПС и митохондрии.
Ядерная оболочка состоит из двух мембран с узким пространством между ними; наружная мембрана переходит в мембраны ЭПС и несёт рибосомы, внутренняя выстлана белковой сетью — ядерной ламиной, к которой прикреплены хромосомы.
| Группа органоидов | Какие входят | Общее свойство |
|---|---|---|
| Двумембранные | Митохондрии, пластиды, ядро | Имеют собственную ДНК (кроме ядра — там основная ДНК клетки) и способны к делению |
| Одномембранные | ЭПС, аппарат Гольджи, лизосомы, вакуоли, пероксисомы | Образуют единую систему мембран, обмениваются пузырьками |
| Немембранные | Рибосомы, клеточный центр, микротрубочки и микрофиламенты, реснички и жгутики | Построены из белков и нуклеиновых кислот без мембран |
Движение цитоплазмы (циклоз) хорошо видно в клетках листа элодеи, в корневых волосках, в клетках харовых водорослей: цитоплазма с хлоропластами течёт вдоль стенки вокруг центральной вакуоли. Его создают моторные белки миозины, скользящие по нитям актина с затратой АТФ, поэтому при повышении температуры (до определённого предела) и на свету циклоз ускоряется, а при недостатке кислорода замедляется. Движение цитоплазмы разносит вещества и органоиды по крупной клетке, у амёбы образует ложноножки.
| Органоид | Строение | Функции |
|---|---|---|
| Митохондрия | Две мембраны, внутренняя образует кристы; матрикс с кольцевой ДНК и 70S-рибосомами (полуавтономна) | Кислородный этап дыхания, синтез АТФ («энергетическая станция») |
| Аппарат Гольджи | Стопка плоских цистерн и пузырьки | Накопление, модификация (гликозилирование) и упаковка веществ, образование лизосом, секреция; у растений синтезирует полисахариды матрикса клеточной стенки (пектины, гемицеллюлозы) |
| Вакуоль | Одномембранная, с клеточным соком (у растений — крупная центральная) | Тургор, запас веществ, пигменты, продукты обмена; сократительные вакуоли простейших — осморегуляция |
Аппарат Гольджи (описан К. Гольджи в 1898 г.) — стопки из 3–10 уплощённых цистерн; у растений такие стопки рассеяны по клетке. Поэтому аппарат Гольджи особенно развит в клетках желёз (поджелудочной, слюнных, бокаловидных клетках кишечника, выделяющих слизь).
Лизосомы (открыты К. де Дювом в 1955 г.) содержат несколько десятков гидролитических ферментов, расщепляющих белки, нуклеиновые кислоты, липиды и углеводы; кислую среду внутри создаёт протонный насос мембраны. При слиянии с фагосомой или пиноцитозным пузырьком возникает вторичная лизосома (пищеварительная вакуоль): полезные продукты переходят в цитозоль, непереваренные остатки выводятся экзоцитозом.
Вакуоли растительных клеток. В молодой клетке много мелких вакуолей; при росте они сливаются в одну центральную, которая может занимать до 70–90 % объёма клетки, а цитоплазма оттесняется к стенке. Мембрана вакуоли — тонопласт. Клеточный сок — водный раствор сахаров, органических кислот (яблочной, лимонной, щавелевой), солей, аминокислот и белков, пигментов (антоцианы окрашивают лепестки, плоды, корнеплоды свёклы в красные, синие и фиолетовые тона, причём цвет зависит от кислотности сока), алкалоидов и дубильных веществ, защищающих от поедания, и конечных продуктов обмена (кристаллы оксалата кальция). Кроме тургора и запаса веществ, вакуоль изолирует ненужные и вредные продукты обмена, расщепляет вещества (в ней есть гидролитические ферменты, как в лизосомах) и позволяет клетке расти растяжением — за счёт воды, почти без затрат вещества на новую цитоплазму.
Тургор — напряжённое состояние клеточной стенки, создаваемое давлением содержимого клетки: концентрация веществ в клеточном соке выше, чем снаружи, вода осмотически входит в вакуоль и прижимает протопласт к стенке, а стенка сопротивляется растяжению. Тургор придаёт упругость травянистым стеблям и листьям, обеспечивает открывание устьиц и рост клеток; при потере воды тургор падает и растение вянет.
| Группа органоидов | Какие входят | Общее свойство |
|---|---|---|
| Одномембранные | ЭПС, аппарат Гольджи, лизосомы, вакуоли, пероксисомы | Образуют единую систему мембран, обмениваются пузырьками |
| Органоид | Строение | Функции |
|---|---|---|
| Хлоропласт | Две мембраны; тилакоиды с хлорофиллом, собранные в граны; строма с кольцевой ДНК и 70S-рибосомами | Фотосинтез: световая фаза на тилакоидах, темновая — в строме |
| Хромопласты / лейкопласты | Пластиды с каротиноидами / бесцветные | Окраска плодов и лепестков / запас крахмала (клубень); пластиды взаимопревращаются (лейкопласт → хлоропласт на свету) |
| Пластиды высших растений | Содержимое и окраска | Где встречаются и зачем |
|---|---|---|
| Хлоропласты | Хлорофиллы и каротиноиды — зелёные; тилакоиды и граны | Клетки листа и молодого стебля — фотосинтез |
| Хромопласты | Каротиноиды — жёлтые, оранжевые, красные (каротин, ксантофиллы, ликопин); хлорофилла и гран нет | Лепестки, зрелые плоды (томат, шиповник, рябина), корнеплод моркови, осенние листья — привлекают опылителей и распространителей семян |
| Лейкопласты | Бесцветные, без пигментов | Запасающие органы: амилопласты накапливают крахмал (клубень картофеля, семена), протеинопласты — белки, элайопласты — масла |
Все пластиды развиваются из общих предшественников — пропластид клеток образовательной ткани, — поэтому возможно их взаимопревращение в зависимости от условий: лейкопласты на свету становятся хлоропластами (зеленеет клубень картофеля), хлоропласты при созревании плодов и осенью теряют хлорофилл и становятся хромопластами; хромопласты — как правило, конечная стадия.
Закрепите теорию: 9 терминов и 6 заданий с проверкой и подсказками, урок зачитывается от 70 %.
Пройти урок arrow_forward