
Каждый четвёртый оборот главного фермента фотосинтеза заканчивается браком. Рубиско, который должен присоединять к сахару углекислый газ, вместо него присоединяет кислород, и растение получает ядовитый двухуглеродный обломок, который приходится спасать длинным и дорогим путём через три органеллы, теряя по дороге углерод, азот и энергию. Этот побочный процесс называют фотодыханием. В жаркий день он отнимает у пшеницы и риса треть урожая, и ради борьбы с ним эволюция десятки раз независимо изобретала C₄-фотосинтез, CAM-путь и пиреноиды. И всё же растения, лишённые фотодыхания, гибнут на обычном воздухе: ошибка оказалась встроена в систему так глубоко, что стала её частью.
В статье — чем фотодыхание отличается от дыхания, почему рубиско путает CO₂ с O₂ и когда путает чаще, как устроен путь спасения углерода и во что он обходится, какие решения нашли C₄-, CAM-растения и водоросли, почему фотодыхание считают не только ошибкой, но и защитой, что из этого спрашивают на ЕГЭ и олимпиадах, а в конце — интересные факты, 12 заданий с разбором и литература.
- Что такое фотодыхание и чем оно не является
- Рубиско: фермент с двумя реакциями
- Путь спасения углерода
- Цена ошибки
- Когда ошибка становится частой
- Как растения обходят фотодыхание
- Защитная роль: зачем оставили ошибку
- Можно ли отключить фотодыхание
- Как отвечать на экзамене
- Интересные факты
- Задания с разбором
- Литература
Что такое фотодыхание и чем оно не является
Слово «фотодыхание» обманывает. Клеточное дыхание — это окисление органических веществ в митохондриях ради АТФ; оно идёт во всех живых клетках растения, в листьях и корнях, днём и ночью. Фотодыхание — совсем другой процесс. Оно идёт только на свету, только в фотосинтезирующих клетках и не даёт энергии, а тратит её. Общее у них лишь внешнее: оба поглощают кислород и выделяют углекислый газ. Поэтому когда в 1920 году Отто Варбург заметил, что кислород подавляет фотосинтез хлореллы, а в 1950-х физиологи увидели всплеск выделения CO₂ листом в первые секунды после выключения света, они назвали явление «дыханием на свету» и лишь потом разобрались, что к митохондриальному дыханию оно почти не имеет отношения.
| Признак | Клеточное дыхание | Фотодыхание |
|---|---|---|
| Где идёт | Цитоплазма и митохондрии любой живой клетки | Хлоропласты, пероксисомы и митохондрии клеток листа |
| Когда идёт | Постоянно, днём и ночью | Только на свету, когда работает рубиско |
| С чего начинается | С расщепления глюкозы (гликолиз) | С присоединения O₂ к рибулозобисфосфату ферментом рубиско |
| Газообмен | Поглощает O₂, выделяет CO₂ | Поглощает O₂, выделяет CO₂ |
| Энергия | Запасается: около 30 АТФ на глюкозу | Тратится: АТФ и НАДФН расходуются на спасение углерода |
| Смысл | Снабжение клетки энергией | Утилизация ядовитого побочного продукта; потеря части фиксированного углерода |
| У кого | У всех аэробных организмов | У всех организмов с рубиско, заметно — у C₃-растений |
Фотодыхание называют также C₂-циклом, или гликолатным путём, по двухуглеродному веществу, с которого всё начинается. Его открыли окончательно лишь в 1971 году, когда Джордж Боуз, Уильям Огрен и Ричард Хейгман показали, что один и тот же фермент — рубиско — умеет присоединять к своему субстрату и CO₂, и O₂. До этого искали отдельный «фермент фотодыхания», а его не существовало.
Рубиско: фермент с двумя реакциями
Рибулозобисфосфат-карбоксилаза/оксигеназа, рубиско, катализирует первую реакцию цикла Кальвина: присоединяет CO₂ к пятиуглеродному сахару рибулозо-1,5-бисфосфату (РуБФ). Неустойчивое шестиуглеродное соединение тут же распадается на две молекулы 3-фосфоглицериновой кислоты (3-ФГК), и эти трёхуглеродные молекулы дают циклу имя — C₃-путь. Так углерод из воздуха впервые попадает в органическое вещество, и так начинается вся пищевая цепь суши. Но у активного центра рубиско есть врождённый порок: он плохо различает CO₂ и O₂. Обе молекулы маленькие, неполярные, без водородных связей, и обе способны атаковать один и тот же активированный промежуточный продукт. Если к РуБФ присоединяется кислород, получается одна молекула 3-ФГК и одна молекула 2-фосфогликолата — двухуглеродного обломка, бесполезного для цикла Кальвина и к тому же ядовитого: он блокирует ферменты самого цикла.
Какая реакция победит, решает соотношение газов и свойства фермента. Рубиско предпочитает CO₂ примерно в 80–100 раз сильнее, чем O₂, но в воздухе кислорода в 500 с лишним раз больше: 21 % против 0,04 %. В растворённом виде внутри клетки перевес меньше, потому что CO₂ растворяется в воде лучше, однако при 25 °C на три-четыре карбоксилирования всё равно приходится одно оксигенирование. С ростом температуры положение ухудшается по двум причинам. Растворимость CO₂ падает быстрее, чем растворимость O₂, и фермент становится менее разборчивым. При 35 °C ошибка случается уже в каждой второй-третьей реакции.
Почему эволюция не исправила фермент. Рубиско возник более трёх миллиардов лет назад у бактерий, когда в атмосфере почти не было кислорода, а углекислого газа было в сотни раз больше. Отличать O₂ от CO₂ было незачем. Когда цианобактерии наполнили атмосферу кислородом, менять активный центр оказалось слишком трудно: у рубиско точность и скорость связаны обратной зависимостью, и варианты, которые реже ошибаются, работают ещё медленнее, чем нынешний, делающий всего 3–10 оборотов в секунду. Растения ответили количеством: рубиско составляет до половины растворимого белка листа и считается самым распространённым белком на Земле.
Путь спасения углерода
Выбросить 2-фосфогликолат растение не может: в нём два атома углерода, добытых с таким трудом, и к тому же он токсичен. Поэтому клетка пускает его по обходному пути, в котором участвуют три органеллы. На электронных снимках листа пероксисомы лежат вплотную к хлоропластам и митохондриям — именно для того, чтобы метаболиты этого пути передавались из рук в руки.
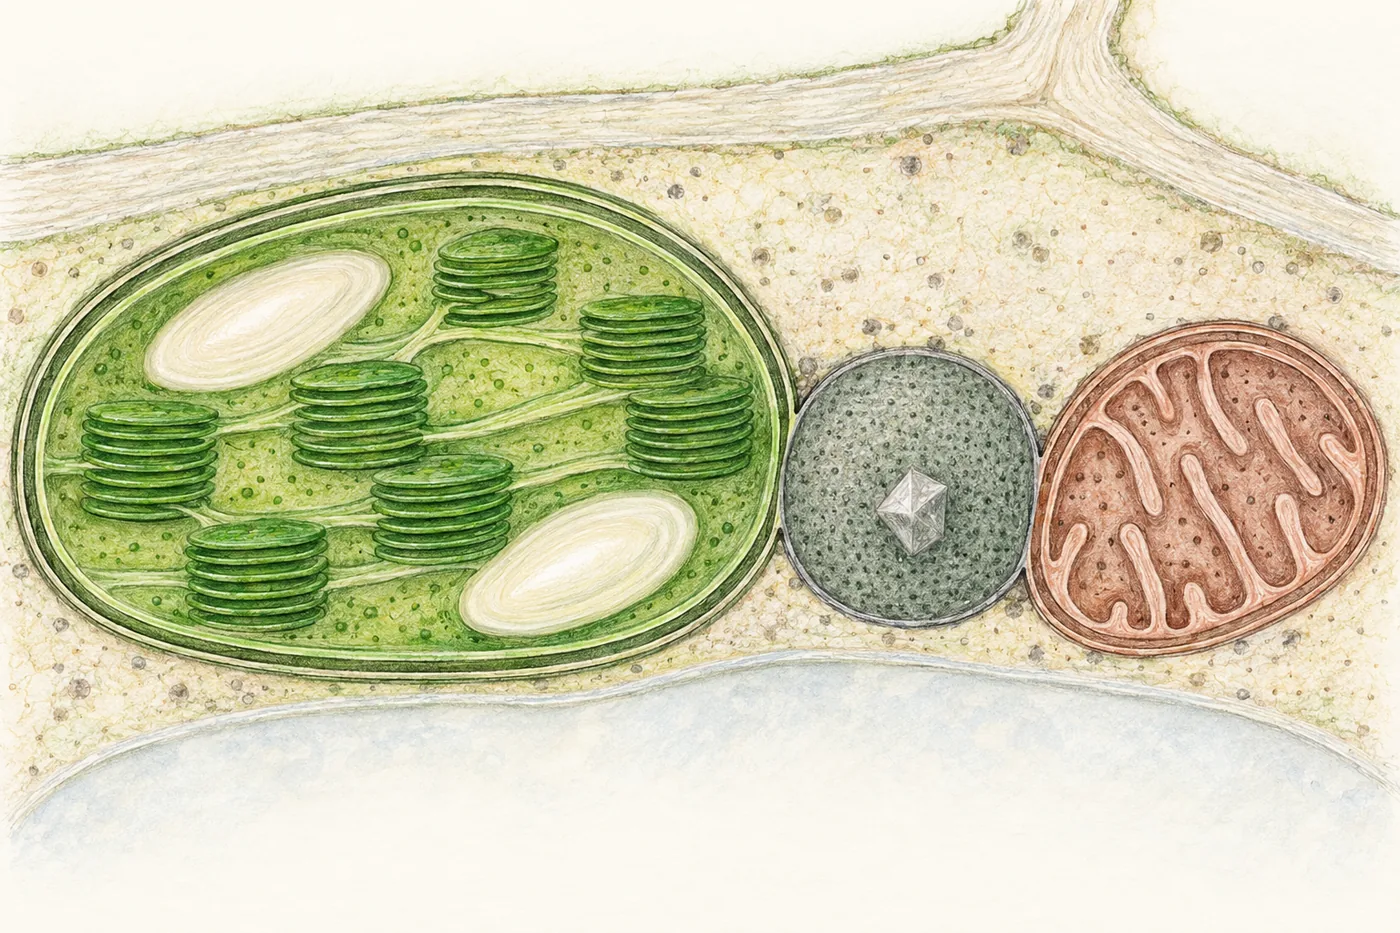
- Хлоропласт. От 2-фосфогликолата отщепляется фосфат, и получается гликолат (C₂). Он выходит из хлоропласта.
- Пероксисома. Гликолат окисляется кислородом до глиоксилата — это вторая молекула O₂, поглощённая на одно оксигенирование. Побочный продукт реакции — пероксид водорода, сильный окислитель; пероксисома потому и названа так, что её каталаза немедленно разлагает H₂O₂ на воду и кислород.
- Пероксисома. Глиоксилат получает аминогруппу от глутамата или серина и становится аминокислотой глицином (C₂).
- Митохондрия. Главное событие. Две молекулы глицина превращаются в одну молекулу серина (C₃). Из четырёх атомов углерода три сохраняются, а один теряется в виде CO₂ — это и есть «дыхание» в слове «фотодыхание». Одновременно выделяется аммиак NH₃.
- Пероксисома. Серин отдаёт аминогруппу и через гидроксипируват восстанавливается до глицерата (C₃).
- Хлоропласт. Глицерат фосфорилируется с затратой АТФ и становится 3-ФГК — тем самым веществом, которое получилось бы сразу, если бы рубиско не ошибся. Оно входит в цикл Кальвина.
- Хлоропласт, ещё раз. Аммиак, выделившийся в митохондрии, нельзя потерять и нельзя оставить: он ядовит. Его заново связывают в глутамин с затратой АТФ и восстановленного ферредоксина. Поток азота через фотодыхание в разы больше, чем первичное усвоение нитрата корнями, поэтому у мутантов с нарушенным связыванием аммиака лист отравляется собственным фотодыханием.
Баланс. На два оксигенирования образуются две молекулы 2-фосфогликолата, то есть четыре атома углерода, которые уже были в органике. Обратно в цикл Кальвина возвращаются три атома в составе одной 3-ФГК, а один уходит в виде CO₂. Таким образом, четверть углерода, попавшего в фотодыхание, теряется безвозвратно, а остальное спасается ценой АТФ, НАДФН и восстановленного ферредоксина. На каждое оксигенирование расходуются две молекулы O₂: одна в хлоропласте, одна в пероксисоме.
Цена ошибки
Считать потери можно по-разному, и в заданиях встречаются оба способа. Если считать от углерода, вошедшего в фотодыхание, теряется четверть. Если считать от всей фиксации, то при соотношении реакций 4 : 1 на четыре присоединённых CO₂ приходится половина потерянной молекулы, то есть около 12 % валовой фиксации; при 2 : 1 в жару — уже 25 %. К этому добавляется энергия: на каждое оксигенирование тратится в сумме около 3,5 молекулы АТФ и две молекулы восстановителей, включая возврат аммиака. В итоге у C₃-растений умеренного климата фотодыхание снижает чистую продуктивность на 20–30 %, а в жарком и сухом климате — на 40–50 %. По оценке 2016 года, для пшеницы и соевых бобов в США это недобор урожая в десятки процентов, сопоставимый с потерями от вредителей и болезней вместе взятых.
| Что теряется | Сколько | Где |
|---|---|---|
| Углерод | 1 CO₂ на два оксигенирования; 20–50 % чистой фиксации в зависимости от температуры | Митохондрия, при превращении глицина в серин |
| Кислород | 2 O₂ на оксигенирование | Хлоропласт (рубиско) и пероксисома (гликолатоксидаза) |
| АТФ | Около 3,5 на оксигенирование, с учётом возврата аммиака и регенерации РуБФ | Хлоропласт |
| Восстановители | Около 2 (НАДФН, ферредоксин) | Хлоропласт; НАДН в пероксисоме и митохондрии частично возвращается |
| Азот | 1 NH₃ на два оксигенирования — не теряется, но требует АТФ на повторное связывание | Митохондрия → хлоропласт |
Когда ошибка становится частой
Фотодыхание сильнее всего бьёт по растению именно тогда, когда света больше всего, то есть когда фотосинтез мог бы быть самым быстрым. В жаркий сухой полдень растение закрывает устьица, чтобы не терять воду. Поступление CO₂ в лист прекращается, а цикл Кальвина продолжает его расходовать, и концентрация углекислого газа внутри листа падает. Световая фаза при этом работает на полную мощность: фотолиз воды выделяет кислород, и его концентрация в межклетниках растёт. Соотношение газов у активного центра рубиско меняется в пользу кислорода, и к этому добавляется сама температура, снижающая избирательность фермента и растворимость CO₂. Три фактора — жара, засуха и яркий свет — действуют в одну сторону. Поэтому у C₃-растений оптимум фотосинтеза лежит около 20–25 °C, а выше него чистая фиксация падает, хотя световая фаза могла бы работать быстрее.
Не путайте причины. Устьица закрываются не из-за фотодыхания, а ради экономии воды; фотодыхание — следствие их закрытия. Кислород, который «мешает» рубиско, — это не кислород атмосферы, проникший снаружи, а прежде всего кислород, выделенный самим листом при фотолизе воды. В задачах на фотодыхание надо называть цепочку: закрытые устьица → мало CO₂ и много O₂ в листе → рубиско чаще присоединяет O₂ → потери углерода и энергии.
Как растения обходят фотодыхание
Раз сам фермент исправить не удалось, эволюция нашла обходной путь: создать вокруг рубиско высокую концентрацию CO₂, при которой кислород проигрывает конкуренцию. Такие приспособления называют механизмами концентрирования углерода, и возникали они многократно и независимо.
| Признак | C₃-растения | C₄-растения | CAM-растения |
|---|---|---|---|
| Первый акцептор CO₂ | РуБФ (рубиско) | ФЕП (ФЕП-карбоксилаза), затем РуБФ | ФЕП ночью, РуБФ днём |
| Первый продукт | 3-ФГК (C₃) | Щавелевоуксусная кислота → малат (C₄) | Малат, запасаемый в вакуоли |
| Разделение реакций | Нет | В пространстве: мезофилл и клетки обкладки проводящих пучков | Во времени: ночь и день в одной клетке |
| Фотодыхание | Заметное, растёт с температурой | Почти подавлено | Подавлено днём при закрытых устьицах |
| Цена | Нет дополнительных затрат | Около 2 лишних АТФ на каждый CO₂ | Лишние АТФ и ограниченная скорость роста |
| Оптимум температуры | 20–25 °C | 30–40 °C | Жаркие засушливые условия |
| Расход воды на единицу CO₂ | Высокий | В два раза ниже | В десять раз ниже |
| Примеры | Пшеница, рис, горох, картофель, деревья | Кукуруза, сорго, сахарный тростник, просо, амарант | Кактусы, толстянковые, агавы, ананас |
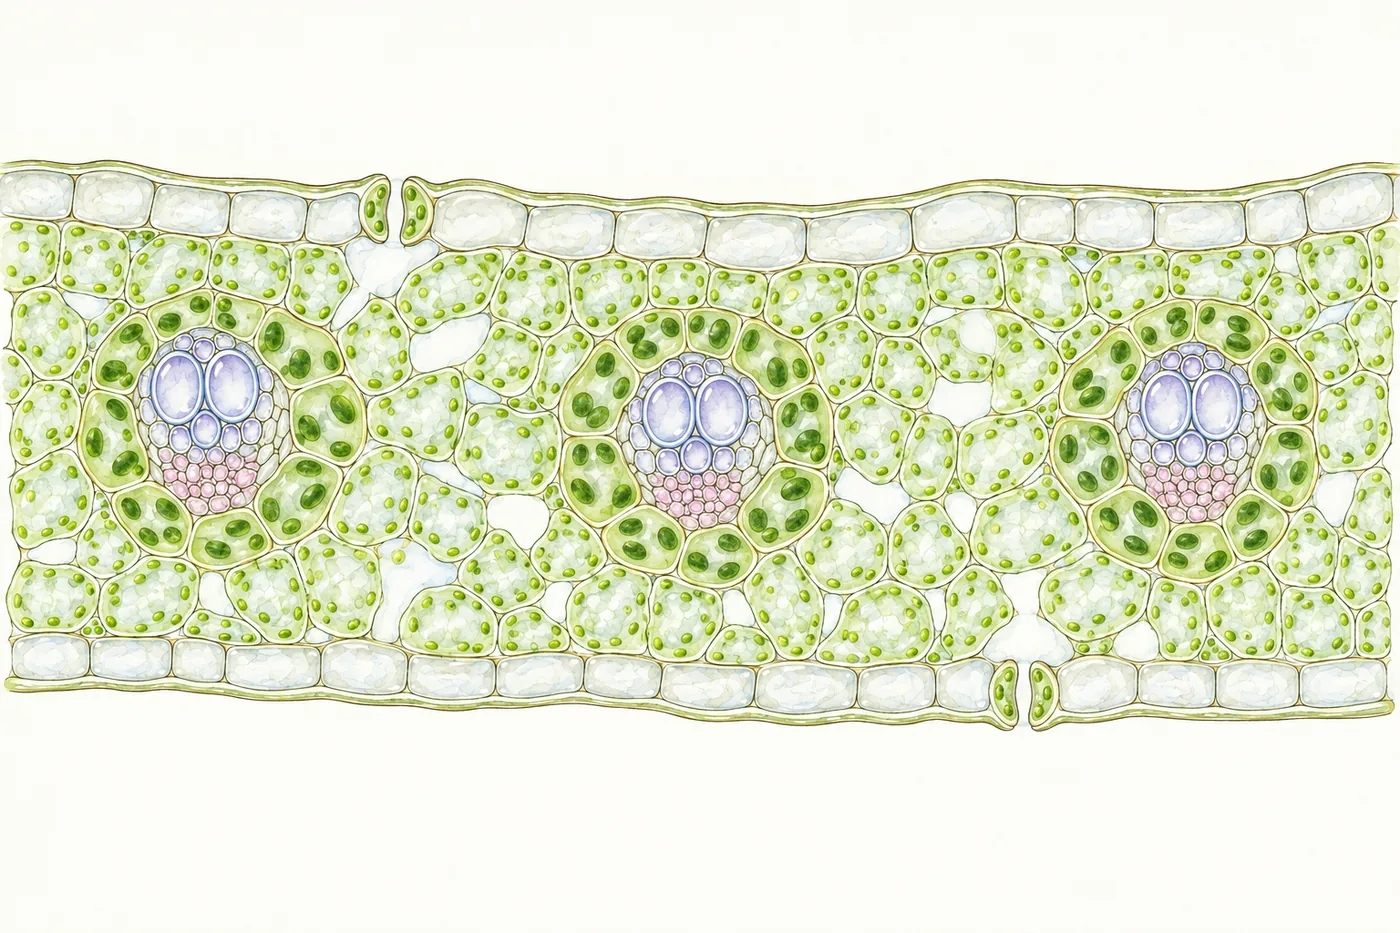
C₄-путь. В клетках мезофилла углекислый газ (в виде гидрокарбоната) присоединяет ФЕП-карбоксилаза — фермент, который не реагирует с кислородом вовсе. Образуется четырёхуглеродная кислота, которая переносится в клетки обкладки проводящих пучков, лежащие венцом вокруг жилки, и там распадается, высвобождая CO₂ прямо у рубиско. Концентрация CO₂ в клетках обкладки в десять раз выше атмосферной, и оксигенирование почти не идёт. За такой насос растение платит двумя дополнительными молекулами АТФ на каждый CO₂, поэтому в прохладном климате C₄-растения проигрывают C₃, а в жарком выигрывают. C₄-путь возник в эволюции независимо более 60 раз, в основном среди злаков; эти растения составляют лишь около 3 % видов, но дают четверть первичной продукции суши и значительную долю урожая человечества.
CAM-путь. Та же ФЕП-карбоксилаза, но разделение не в пространстве, а во времени: устьица открыты ночью, CO₂ запасается в вакуоли в виде яблочной кислоты, а днём при закрытых устьицах кислота отдаёт CO₂ рубиско. Это самый экономный по воде способ фотосинтеза, и о нём подробно рассказано в статье «CAM-фотосинтез: стратегия выживания в засушливых условиях».
Пиреноид и карбоксисома. Водоросли и цианобактерии концентрируют CO₂ иначе: они активно закачивают в клетку гидрокарбонат и собирают почти весь рубиско в плотное тельце — пиреноид в хлоропласте водорослей или белковую карбоксисому у цианобактерий. Внутри него карбоангидраза превращает гидрокарбонат в CO₂, и концентрация углекислого газа у фермента становится в сотни раз выше, чем в воде. Так большинство водорослей обходится практически без фотодыхания; об этом устройстве — статья «Пиреноид: как водоросли изобрели турбонаддув фотосинтеза».
Почему ФЕП-карбоксилаза не ошибается. Её субстрат — не CO₂, а ион гидрокарбоната HCO₃⁻, заряженная частица, на которую кислород совсем не похож. Поэтому у фермента нет оксигеназной активности, и он эффективно ловит углекислый газ даже при его низкой концентрации в листе. Но сделать из C₄-кислоты сахар он не может: для этого всё равно нужен рубиско, и C₄-путь лишь подаёт ему CO₂ в концентрированном виде.
Защитная роль: зачем оставили ошибку
Если фотодыхание так расточительно, почему у C₃-растений, то есть у 85 % видов, оно сохраняется? Ответ дали мутанты. В 1979 году Крис Сомервилл и Уильям Огрен получили растения арабидопсиса с выключенными ферментами фотодыхательного пути. При высоком содержании CO₂, когда рубиско почти не ошибается, мутанты росли нормально, а на обычном воздухе желтели и погибали: 2-фосфогликолат и промежуточные продукты накапливались, отравляли цикл Кальвина, а спасённый углерод не возвращался. Значит, пока рубиско ошибается, путь утилизации жизненно необходим. Фотодыхание — не адаптация, а вынужденная плата за несовершенство фермента, но плата, которую растение научилось использовать.
Главная польза — защита от избытка света. В засуху при закрытых устьицах световая фаза производит АТФ и НАДФН, которые некуда девать: без CO₂ цикл Кальвина стоит. Переполненная электронами электрон-транспортная цепь начинает передавать их на кислород, образуются активные формы кислорода, они разрушают белки фотосистем и хлорофилл — это фотоингибирование. Фотодыхание работает как предохранительный клапан: оно потребляет АТФ, НАДФН и ферредоксин, поддерживает оборот цикла Кальвина и регенерацию РуБФ, то есть даёт электронам законный выход. Растения с подавленным фотодыханием при засухе получают больше повреждений, чем обычные. Кроме того, через фотодыхательный путь идёт синтез глицина и серина для белков, а пероксид водорода, образующийся в пероксисоме, служит сигналом, запускающим защитные реакции клетки.
Эволюционный взгляд. Ферменты фотодыхания есть уже у цианобактерий, и их выключение губит эти бактерии на воздухе так же, как арабидопсис. Значит, гликолатный путь старше растений и возник вместе с кислородной атмосферой как система обезвреживания неизбежной ошибки. Растения унаследовали его от предков хлоропластов и дополнили митохондриальным звеном. Это хороший пример того, как «ошибка» и «защита» в биологии не исключают друг друга: признак, возникший как вынужденный ремонт, закрепляется, потому что приносит дополнительную пользу.
Можно ли отключить фотодыхание
Сельское хозяйство кормится в основном C₃-культурами, и потери на фотодыхание — одна из самых заманчивых мишеней для селекции. Три направления дали результаты. Первое — улучшить сам рубиско: у красных водорослей найдены варианты фермента с большей избирательностью, и их пытаются перенести в растения. Второе — встроить в C₃-культуры механизмы концентрирования углерода: международный проект переделки риса в C₄-растение идёт с 2008 года, а в 2020-х в хлоропласты наземных растений начали собирать искусственные пиреноиды. Третье — сократить обходной путь. В 2019 году группа Дональда Орта создала табак, у которого гликолат окисляется прямо в хлоропласте по короткому синтетическому пути, а старый путь через пероксисомы перекрыт; в полевых опытах такие растения дали на 40 % больше биомассы. Фотодыхание при этом не исчезает: оксигенирование продолжается, но его последствия обходятся дешевле. Полностью отключить ошибку нельзя, пока рубиско остаётся рубиско.
Как отвечать на экзамене
В кодификаторе ЕГЭ слова «фотодыхание» нет: от школьника требуют световую и темновую фазы, фотолиз воды, цикл Кальвина, роль АТФ и НАДФ·H, а также сравнение фотосинтеза и дыхания. Однако фотодыхание — любимая тема олимпиад и задач повышенной сложности, а C₄-растения и кукуруза в жару встречаются в развёрнутых ответах. Конспекты тренажёра: уроки «Световая и темновая фазы фотосинтеза, фотолиз воды» и «Фотосинтез и хемосинтез: хлорофилл, НАДФ»; задания — в теме 2.4 тренажёра ЕГЭ по биологии; для девятиклассников — урок ОГЭ «Лист: фотосинтез, дыхание, транспорт». Школьный конспект фотосинтеза целиком — в статье «Фотосинтез: для подготовки к ЕГЭ», а о самом ферменте — «Рубиско: самый важный фермент на планете».
Школьные формулировки. Темновая фаза идёт в строме хлоропласта: CO₂ присоединяется к рибулозобисфосфату (фермент рубиско), образуются трёхуглеродные соединения, из которых с затратой АТФ и НАДФ·H световой фазы синтезируется глюкоза; цикл Кальвина не требует света напрямую, но зависит от продуктов световой фазы. Кислород фотосинтеза образуется при фотолизе воды, а не из CO₂. Растения дышат всегда, и днём и ночью; днём фотосинтез перекрывает дыхание, поэтому лист поглощает CO₂. Если в задании упомянуто фотодыхание, пишите: на свету рубиско присоединяет к рибулозобисфосфату кислород вместо углекислого газа, часть фиксированного углерода теряется в виде CO₂, энергия тратится; усиливается в жару при закрытых устьицах; у C₄-растений подавлено, потому что CO₂ концентрируется в клетках обкладки.
Частые ошибки. Фотодыхание называют «дыханием растений на свету» — это особый процесс, начинающийся с рубиско, а не митохондриальное дыхание. Пишут, что растения дышат только ночью — дышат круглосуточно. Утверждают, что фотодыхание даёт АТФ — оно его тратит. Приписывают сильное фотодыхание C₄-растениям — у них оно подавлено, страдают C₃. Говорят, что рубиско «выбирает» кислород, когда его много в атмосфере, — атмосферный состав постоянен, меняется соотношение газов внутри листа при закрытых устьицах. Называют ФЕП-карбоксилазу заменой рубиско — она лишь предварительно ловит CO₂, а сахар всё равно строит рубиско.
Интересные факты
- Рубиско — самый массовый белок планеты: по оценке 2019 года, его на Земле около 700 миллионов тонн, примерно 100 кг на каждого человека. Столько нужно, потому что фермент медленный: один активный центр совершает всего 3–10 оборотов в секунду, тогда как многие ферменты — тысячи.
- Глобально через фотодыхание возвращается в атмосферу около четверти углерода, фиксированного C₃-растениями, — поток, сравнимый с выбросами всей промышленности, только в обратную сторону.
- C₄-злаки заняли саванны и степи лишь 5–8 миллионов лет назад, когда содержание CO₂ в атмосфере упало, а климат стал суше. Эволюция травоядных с высокими коронками зубов, а по одной из гипотез и наших предков, вышедших в открытые ландшафты, связана с этой переменой.
- Рис — C₃-растение, а сорняк ежовник на рисовых полях — C₄; в жару он растёт быстрее риса. Поэтому проект «C₄-рис» ставит целью пересадить рису обмен его собственного сорняка.
- Пероксисомы листа называют также глиоксисомами в прорастающих семенах: там тот же тип органелл превращает запасные жиры в сахара. Органелла одна, работы разные.
- Первые ферменты фотодыхания найдены у цианобактерий, и их выключение убивает бактерии на воздухе. Значит, «ошибка рубиско» и её ремонт старше растений примерно на два миллиарда лет.
- У некоторых C₃-растений в жару листья складываются или поворачиваются ребром к солнцу — не ради экономии воды, а чтобы уменьшить перегрев и фотодыхание. Подсолнечник, напротив, следит за солнцем, пока ему хватает воды.
Задания с разбором
Задание 1. Множественный выбор
Выберите три верных утверждения о фотодыхании.
- Происходит в митохондриях в темноте.
- Начинается с присоединения кислорода к рибулозобисфосфату.
- Приводит к потере части фиксированного углерода в виде CO₂.
- Снабжает клетку АТФ.
- Усиливается в жару при закрытых устьицах.
- Выражено у C₄-растений сильнее, чем у C₃.
Разбор
Верно 2, 3, 5. Неверно 1 — фотодыхание идёт на свету и начинается в хлоропласте; 4 — оно тратит АТФ; 6 — у C₄-растений оно подавлено.
Ответ: 235.
Задание 2. Установите соответствие
Установите соответствие между характеристикой и процессом: 1) клеточное дыхание; 2) фотодыхание.
А) идёт и в темноте, и на свету; Б) первую реакцию катализирует рубиско; В) энергия запасается в АТФ; Г) потребляет АТФ и НАДФН; Д) происходит во всех живых клетках растения, включая корни; Е) затрагивает хлоропласты, пероксисомы и митохондрии.
Разбор
А, В, Д — клеточное дыхание (1). Б, Г, Е — фотодыхание (2).
Ответ: 121212.
Задание 3. Установите соответствие
Установите соответствие между признаком и типом фотосинтеза: 1) C₃; 2) C₄; 3) CAM.
А) CO₂ фиксируется ФЕП-карбоксилазой ночью и запасается в виде яблочной кислоты; Б) рубиско работает в клетках обкладки проводящих пучков; В) кукуруза, сорго, сахарный тростник; Г) пшеница, рис, горох; Д) устьица открыты ночью и закрыты днём; Е) наибольшие потери на фотодыхание в жару.
Разбор
А, Д — CAM (3). Б, В — C₄ (2). Г, Е — C₃ (1).
Ответ: 322313.
Задание 4. Установите последовательность
Установите последовательность превращений в фотодыхательном пути.
- окисление гликолата до глиоксилата в пероксисоме
- присоединение O₂ к рибулозобисфосфату
- образование серина из двух молекул глицина с выделением CO₂
- отщепление фосфата от 2-фосфогликолата
- превращение глицерата в 3-ФГК с затратой АТФ
- превращение глиоксилата в глицин
Разбор
Оксигенирование (2) → гликолат (4) → глиоксилат (1) → глицин (6) → серин и CO₂ (3) → глицерат и 3-ФГК (5).
Ответ: 241635.
Задание 5. Расчёт
В листе за некоторое время произошло 100 реакций оксигенирования. Сколько атомов углерода попало в фотодыхательный путь, сколько из них вернулось в цикл Кальвина в составе 3-ФГК и сколько потеряно в виде CO₂? Сколько молекул O₂ при этом поглощено и сколько молекул аммиака выделилось?
Разбор
Каждое оксигенирование даёт одну молекулу 2-фосфогликолата с двумя атомами углерода: 100 реакций — 200 атомов. Две молекулы гликолата (через глицин) дают один серин: 50 молекул серина, 150 атомов углерода возвращаются, 50 теряются в виде 50 CO₂. Кислорода поглощено 200 молекул (100 рубиско и 100 гликолатоксидазой), аммиака выделилось 50 молекул — по одной на каждую пару глицинов.
Ответ: 200 атомов; 150 вернулись; 50 потеряны; 200 O₂; 50 NH₃.
Задание 6. Работа с рисунком
Рассмотрите схему фотодыхательного пути. В какой органелле выделяется CO₂? Где образуется пероксид водорода и какой фермент его обезвреживает? Какая доля углерода, вошедшего в путь, теряется? Почему аммиак должен вернуться в хлоропласт?
Разбор
CO₂ выделяется в митохондрии при превращении двух молекул глицина в серин. Пероксид водорода образуется в пероксисоме при окислении гликолата и разлагается каталазой. Из четырёх атомов углерода двух молекул гликолата теряется один — четверть. Аммиак ядовит и содержит азот, которого растению не хватает; в хлоропласте он заново связывается в глутамин с затратой АТФ и восстановленного ферредоксина.
Задание 7. Расчёт
При 25 °C на четыре реакции карбоксилирования приходится одно оксигенирование, при 35 °C — на две. Какая доля валовой фиксации углерода теряется из-за фотодыхания в каждом случае? Считайте, что на два оксигенирования теряется одна молекула CO₂.
Разбор
При 25 °C: на 4 фиксированных CO₂ одно оксигенирование, то есть потеря 0,5 CO₂; 0,5 / 4 = 12,5 %. При 35 °C: на 2 фиксированных CO₂ — тоже 0,5 CO₂ потери; 0,5 / 2 = 25 %. С ростом температуры доля потерь удваивается, не считая затрат энергии на спасение остального углерода.
Ответ: 12,5 % и 25 %.
Задание 8. Найдите ошибки в тексте
Найдите три ошибки в приведённом тексте, укажите номера предложений и исправьте их.
(1) Фотодыхание — процесс поглощения кислорода и выделения углекислого газа растением на свету. (2) Оно начинается с того, что рубиско присоединяет к рибулозобисфосфату молекулу кислорода вместо углекислого газа. (3) Фотодыхание особенно интенсивно у C₄-растений, таких как кукуруза. (4) В ходе фотодыхания растение запасает энергию в виде АТФ. (5) Фотодыхание усиливается в жаркую сухую погоду, когда устьица закрыты. (6) У водорослей фотодыхание подавлено благодаря пиреноиду, который концентрирует CO₂ около рубиско. (7) Клеточное дыхание у растений происходит только ночью, когда нет фотосинтеза.
Разбор
3 — фотодыхание интенсивно у C₃-растений (пшеница, рис), а у C₄-растений подавлено. 4 — фотодыхание не запасает, а тратит АТФ. 7 — клеточное дыхание идёт круглосуточно, днём оно лишь маскируется более интенсивным фотосинтезом.
Ответ: ошибки в предложениях 3, 4, 7.
Задание 9. Развёрнутый ответ
В жаркое сухое лето урожайность пшеницы падает сильнее, чем урожайность кукурузы, выращиваемой рядом. Объясните это с точки зрения физиологии фотосинтеза. Почему в прохладном климате преимущество кукурузы исчезает?
Разбор
1) В жару растения закрывают устьица, концентрация CO₂ в листе падает, а O₂ накапливается; высокая температура снижает избирательность рубиско. 2) У пшеницы, C₃-растения, рубиско всё чаще присоединяет O₂ — усиливается фотодыхание, теряется часть фиксированного углерода и энергия, продуктивность падает на 30–50 %. 3) Кукуруза — C₄-растение: ФЕП-карбоксилаза мезофилла, не реагирующая с O₂, связывает CO₂ в четырёхуглеродные кислоты, которые переносятся в клетки обкладки проводящих пучков и там отдают CO₂ рубиско; концентрация CO₂ около фермента высока, фотодыхание подавлено. 4) C₄-путь требует дополнительных затрат АТФ на каждый CO₂; в прохладном климате, где фотодыхание у C₃-растений невелико, эти затраты не окупаются, и преимущество кукурузы исчезает.
Задание 10. Развёрнутый ответ
Рубиско называют самым важным и одновременно самым несовершенным ферментом планеты. Объясните, в чём его несовершенство, почему оно возникло и как растения его компенсируют.
Разбор
1) Рубиско плохо различает CO₂ и O₂: обе молекулы малы, неполярны и реагируют с одним и тем же промежуточным соединением; присоединение O₂ запускает фотодыхание с потерей углерода и энергии. 2) Фермент медленный — несколько оборотов в секунду; варианты с большей избирательностью работают ещё медленнее. 3) Он возник более трёх миллиардов лет назад в атмосфере почти без кислорода, где ошибка была редкой; после накопления O₂ активный центр перестроить не удалось. 4) Компенсация: огромное количество фермента (до половины белка листа), фотодыхательный путь, спасающий три четверти углерода, и механизмы концентрирования CO₂ — C₄-фотосинтез, CAM, пиреноиды и карбоксисомы.
Задание 11. Развёрнутый ответ
Мутанты арабидопсиса с неработающим ферментом, превращающим глицин в серин, нормально растут в атмосфере с 1 % CO₂, но погибают на обычном воздухе. Объясните эти наблюдения. Что они доказывают?
Разбор
1) На обычном воздухе рубиско регулярно присоединяет O₂, и образуется 2-фосфогликолат, который должен пройти фотодыхательный путь. 2) У мутанта путь прерван: накапливаются глицин и предшествующие соединения, 2-фосфогликолат отравляет ферменты цикла Кальвина, углерод не возвращается в цикл, цикл истощается, и растение гибнет. 3) При 1 % CO₂ конкуренция с кислородом почти исключена, оксигенирования нет, путь не нужен, и мутант растёт нормально. 4) Это доказывает, что фотодыхательный путь необходим для жизни на воздухе и что его единственная причина — оксигеназная реакция рубиско.
Задание 12. Развёрнутый ответ
Объясните, каким образом фотодыхание защищает растение при засухе на ярком свету. Приведите не менее трёх положений.
Разбор
1) При закрытых устьицах CO₂ не поступает, цикл Кальвина останавливается, а световая фаза продолжает производить АТФ и НАДФН, которым нет потребителя. 2) Переполненная электронами цепь переносчиков передаёт электроны на O₂, образуются активные формы кислорода, повреждающие фотосистемы и хлорофилл (фотоингибирование). 3) Фотодыхание потребляет АТФ, НАДФН и ферредоксин, поддерживает оборот цикла Кальвина и регенерацию рибулозобисфосфата, то есть даёт энергии безопасный выход. 4) Пероксид водорода, образующийся в пероксисоме, служит сигналом, запускающим защитные системы клетки; растения с подавленным фотодыханием при засухе повреждаются сильнее.
Литература
- Хелдт Г.-В. Биохимия растений. М.: БИНОМ. Лаборатория знаний, 2011.
- Физиология растений / под ред. И. П. Ермакова. М.: Академия, 2005.
- Taiz L., Zeiger E., Møller I. M., Murphy A. Plant Physiology and Development. 6th ed. Sunderland: Sinauer, 2015.
- Bowes G., Ogren W. L., Hageman R. H. Phosphoglycolate production catalyzed by ribulose diphosphate carboxylase // Biochemical and Biophysical Research Communications. 1971. Vol. 45. P. 716–722.
- Somerville C. R., Ogren W. L. A phosphoglycolate phosphatase-deficient mutant of Arabidopsis // Nature. 1979. Vol. 280. P. 833–836.
- Ogren W. L. Photorespiration: pathways, regulation, and modification // Annual Review of Plant Physiology. 1984. Vol. 35. P. 415–442.
- Bauwe H., Hagemann M., Fernie A. R. Photorespiration: players, partners and origin // Trends in Plant Science. 2010. Vol. 15. P. 330–336.
- Eisenhut M. et al. The photorespiratory glycolate metabolism is essential for cyanobacteria and might have been conveyed endosymbiontically to plants // Proceedings of the National Academy of Sciences. 2008. Vol. 105. P. 17199–17204.
- Sage R. F., Christin P.-A., Edwards E. J. The C4 plant lineages of planet Earth // Journal of Experimental Botany. 2011. Vol. 62. P. 3155–3169.
- Walker B. J., VanLoocke A., Bernacchi C. J., Ort D. R. The costs of photorespiration to food production now and in the future // Annual Review of Plant Biology. 2016. Vol. 67. P. 107–129.
- South P. F., Cavanagh A. P., Liu H. W., Ort D. R. Synthetic glycolate metabolism pathways stimulate crop growth and productivity in the field // Science. 2019. Vol. 363. P. eaat9077.
- Bar-On Y. M., Milo R. The global mass and average rate of rubisco // Proceedings of the National Academy of Sciences. 2019. Vol. 116. P. 4738–4743.
- Moroney J. V., Ynalvez R. A. Proposed carbon dioxide concentrating mechanism in Chlamydomonas reinhardtii // Eukaryotic Cell. 2007. Vol. 6. P. 1251–1259.
Обсуждение
Загружаем обсуждение…