
В 1910–1930-х годах австрийский иммунолог Карл Ландштейнер, первооткрыватель групп крови, присоединял к белкам искусственные молекулы, синтезированные химиками и никогда не встречавшиеся в природе, и вводил их кроликам. Кролики вырабатывали антитела, которые отличали одну такую молекулу от другой, почти неотличимой. Откуда организм «знает», какое антитело понадобится против вещества, созданного в лаборатории неделю назад? Этот вопрос полвека оставался главной загадкой иммунологии. Ответ на него — теория клонально-селективного иммунитета.
С 2027 года эта теория впервые входит в проверяемое содержание ЕГЭ по биологии: в кодификаторе-2026 пункт «Теория клонально-селективного иммунитета (П. Эрлих, Ф. М. Бернет, С. Тонегава)» был набран курсивом, то есть не проверялся, а в кодификаторе-2027 курсив снят. В статье — в чём суть теории, как к ней пришли через спор «инструкции» и «отбора», опыты, которые её подтвердили, генетический механизм разнообразия антител, толерантность к своему, что объясняет теория, маркеры ЕГЭ, интересные факты и тринадцать заданий с разбором. Общая картина иммунитета — в статье «Иммунитет и иммунная система человека: полный разбор для ЕГЭ».
- Суть теории в пяти положениях
- Главный вопрос: инструкция или отбор
- Пауль Эрлих и боковые цепи
- Почему победил «шаблон» и почему он проиграл
- Толерантность: телята Оуэна и мыши Медавара
- Ерне и Бернет: антиген выбирает
- Как проверяли теорию
- Загадка разнообразия и ответ Тонегавы
- Отбор продолжается: созревание лимфоцитов и антител
- Что объясняет теория
- Как это спрашивают на ЕГЭ
- Интересные факты
- Задания с разбором
Суть теории в пяти положениях
Теория клонально-селективного иммунитета (теория клональной селекции, клонально-селекционная теория): в организме ещё до встречи с антигеном существует огромное множество клонов лимфоцитов, каждый со своим рецептором; антиген не создаёт антитело, а выбирает (селекция) лимфоцит с подходящим рецептором, и тот размножается, давая клон одинаковых клеток.
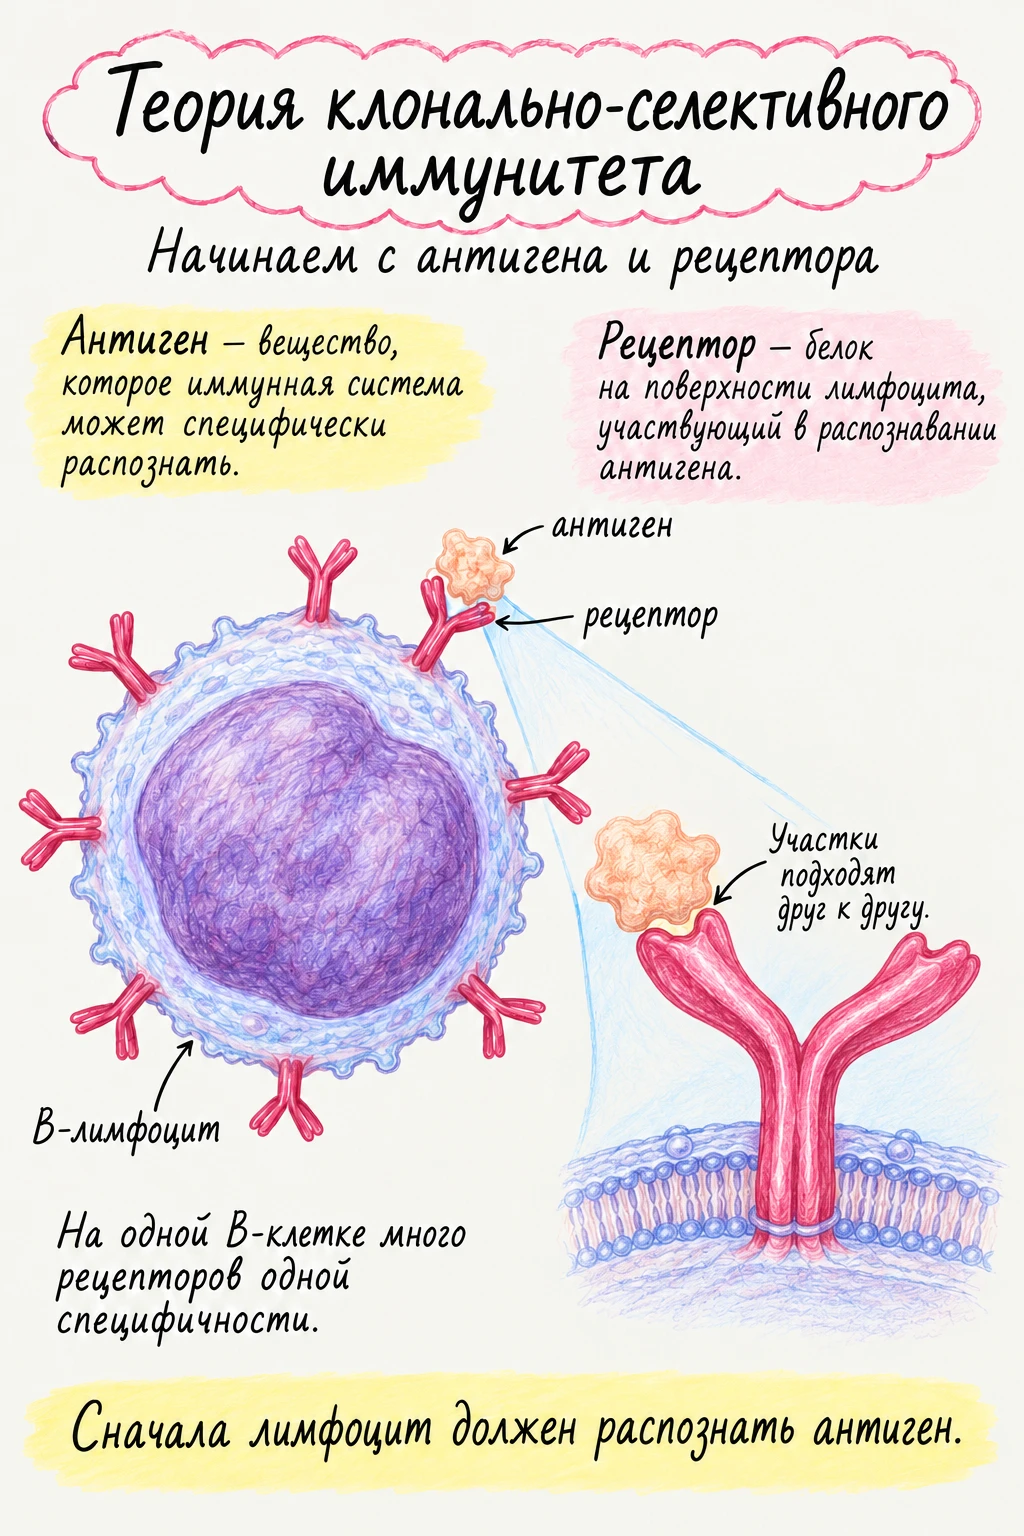
- Одна клетка — одна специфичность. Все рецепторы одного лимфоцита одинаковы и узнают один антиген.
- Разнообразие возникает заранее и случайно. Рецепторы разных лимфоцитов различаются, и этот набор складывается до встречи с антигенами, независимо от них.
- Антиген выбирает. Антиген связывается только с лимфоцитами, рецептор которых ему подходит, и активирует только их.
- Выбранный лимфоцит даёт клон. Он многократно делится (клональная экспансия); потомки сохраняют ту же специфичность и становятся эффекторными клетками (плазматическими клетками, выделяющими антитела, или T-киллерами) и клетками памяти.
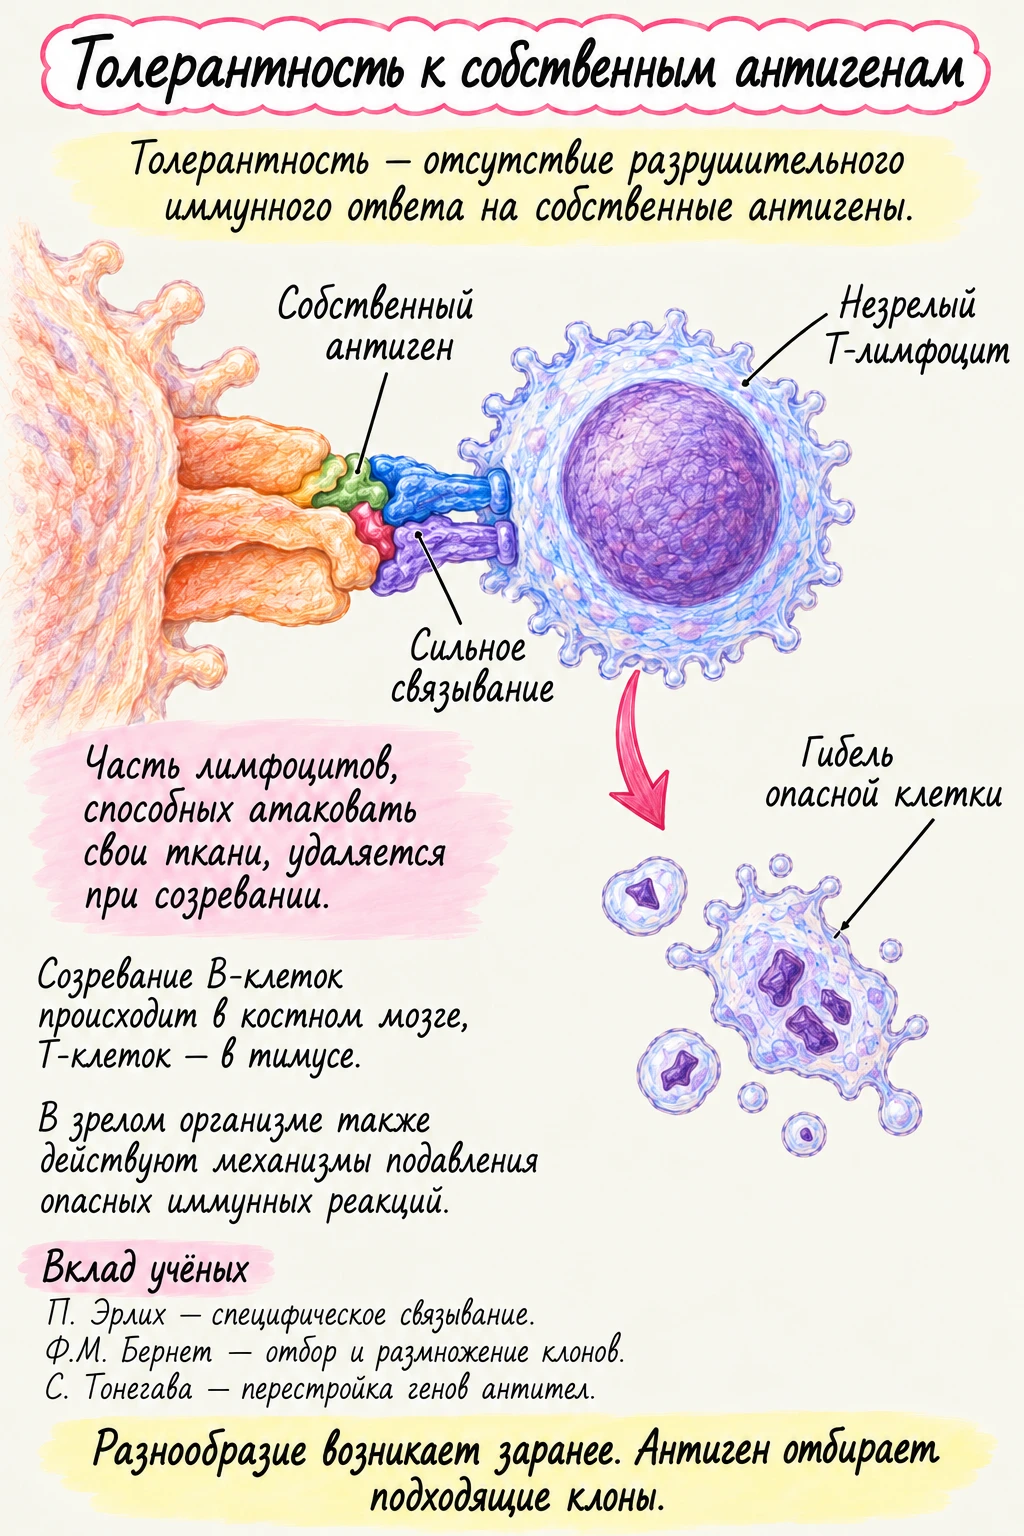
- Клоны против своего удаляются. Лимфоциты, рецепторы которых связывают собственные молекулы организма, при созревании погибают (Бернет называл их «запретными клонами»). Так возникает толерантность к своему.
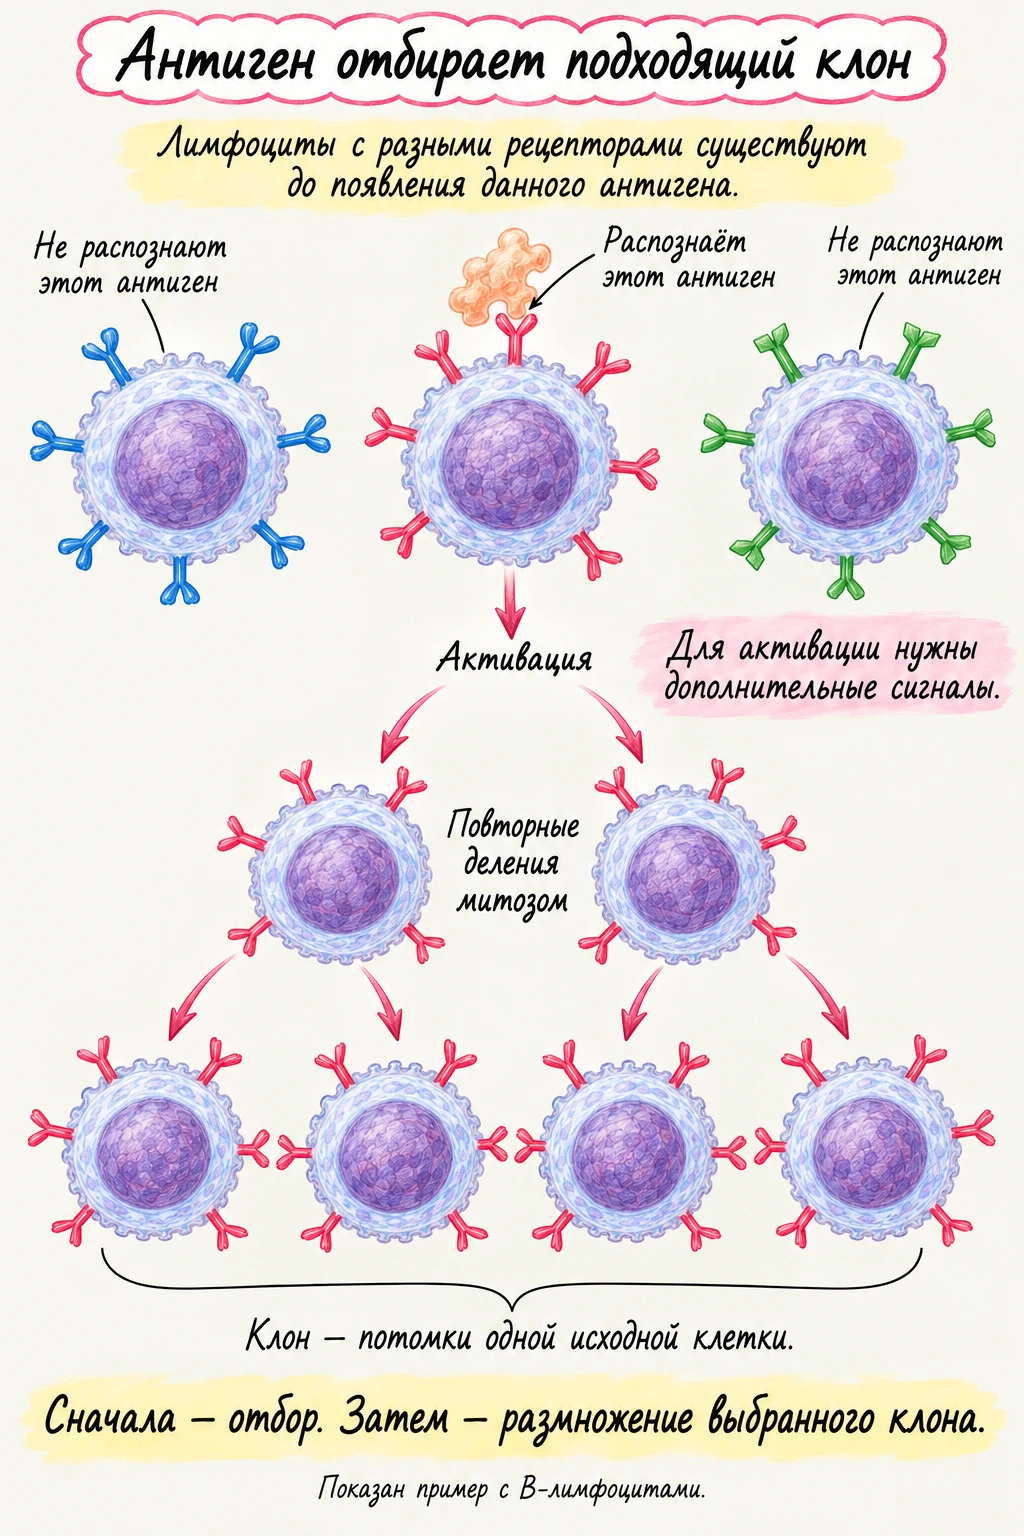
Бернет сам подчёркивал, что его теория — дарвиновская: внутри организма идёт естественный отбор клеток. Изменчивость — случайное разнообразие рецепторов, отбор — связывание с антигеном, «выживание наиболее приспособленных» — размножение выбранного клона.
Главный вопрос: инструкция или отбор
Все теории образования антител, предложенные за сто лет, делятся на две группы. По инструктивным теориям антиген служит шаблоном, «инструкцией»: молекула будущего антитела укладывается вокруг антигена и запоминает его форму, как гипс запоминает форму руки. По селективным теориям в организме заранее есть готовые варианты, и антиген лишь выбирает подходящий.
| Вопрос | Инструктивная теория | Селективная теория |
|---|---|---|
| Откуда специфичность антитела | Антиген придаёт форму молекуле антитела | Специфичность записана заранее, антиген её выбирает |
| Аналогия в эволюции | Ламарк: признак возникает под действием среды | Дарвин: случайная изменчивость и отбор |
| Иммунная память | Объяснить трудно: антиген давно разрушен, а антитела продолжают вырабатываться | Выбранный клон остался увеличенным |
| Толерантность к своему | Объяснить трудно | Клоны против своего удалены |
| Чем закончилось | Опровергнута к 1960-м годам | Подтверждена и стала основой иммунологии |
Пауль Эрлих и боковые цепи
Первым селективную идею высказал немецкий врач и химик Пауль Эрлих. В 1897 году, разрабатывая способ измерять силу противодифтерийной сыворотки, а затем в лекции перед Лондонским королевским обществом в 1900 году он изложил теорию боковых цепей. По Эрлиху, у клеток есть на поверхности химические группы — «боковые цепи», которые в норме захватывают питательные вещества. Токсин случайно подходит к одной из них и связывается с ней, как ключ с замком. Клетка, потеряв заблокированную цепь, восполняет её с избытком, и лишние цепи отрываются и уходят в кровь. Эти свободные боковые цепи и есть антитоксины, то есть антитела.
В этой схеме уже есть главное: рецептор существует до встречи с антигеном, а антиген лишь выбирает его и усиливает его выработку. Эрлих рисовал свои рецепторы в виде зубчатых выростов разной формы, и эти рисунки до сих пор воспроизводят в учебниках. Он же ввёл в науку само понятие рецептора. В 1901 году Эрлих сформулировал и принцип horror autotoxicus — «страх самоотравления»: организм не вырабатывает антител против собственных тканей. Через полвека этот принцип стал пятым положением теории Бернета.
Ошибались в теории Эрлиха две вещи. Он считал, что одна клетка несёт много разных боковых цепей, а не одну специфичность, и что их естественная роль — питание. За работы по иммунитету Эрлих разделил с Мечниковым Нобелевскую премию 1908 года.
Почему победил «шаблон» и почему он проиграл
Опыты Ландштейнера с искусственными молекулами, казалось, похоронили идею Эрлиха: не может же клетка заранее иметь рецептор к веществу, которое только что придумал химик. В 1930 году Фридрих Брайнль и Феликс Гауровиц в Праге предложили, что антиген служит шаблоном, по которому собирается антитело. В 1940 году самый авторитетный химик своего времени Лайнус Полинг уточнил: все антитела состоят из одинаковых цепей, а различаются тем, как цепь сворачивается вокруг антигена. Инструктивная теория господствовала двадцать лет.
К 1950-м годам у неё накопились неразрешимые трудности.
- Плазматические клетки продолжают выделять антитела, когда антигена в организме давно нет.
- Повторная встреча с антигеном даёт ответ быстрее и сильнее первой, хотя шаблон тот же.
- С годами антитела связывают антиген всё прочнее, будто их кто-то улучшает.
- Организм не отвечает на свои белки, хотя они ничем не хуже чужих как шаблоны.
Окончательный удар нанесла биохимия белка. В 1961 году Кристиан Анфинсен показал, что развёрнутый фермент рибонуклеаза сам сворачивается обратно в прежнюю форму: пространственная структура белка определяется последовательностью аминокислот (Нобелевская премия по химии 1972 года). Значит, форма активного центра антитела записана в его аминокислотной последовательности, а она — в генах, и никакой антиген переделать её не может.
Толерантность: телята Оуэна и мыши Медавара
Ключ к пятому положению теории нашёлся у коров. В 1945 году американский генетик Рэй Оуэн изучал группы крови телят-двойняшек. У разнояйцевых близнецов крупного рогатого скота плаценты срастаются, и кровь зародышей смешивается. Оуэн обнаружил, что у таких телят всю жизнь циркулируют эритроциты двух типов — свои и брата, то есть они химеры, и что организм не вырабатывает антител против чужих эритроцитов.
Бернет и Фрэнк Феннер в 1949 году объяснили это так: организм учится отличать своё в зародышевом периоде; всё, что присутствует в нём до созревания иммунной системы, считается своим. Отсюда предсказание: если ввести зародышу чужие клетки, он и взрослым не будет на них отвечать.
Предсказание проверил британский зоолог Питер Медавар, который во время Второй мировой войны занимался пересадкой кожи обожжённым лётчикам и знал, как неизбежно отторгается чужая кожа. В 1953 году Медавар с Рупертом Биллингемом и Лесли Брентом ввёл зародышам мышей одной линии клетки мышей другой линии. Повзрослев, такие мыши приживляли кожу от мышей «донорской» линии, а кожу от любой третьей линии отторгали. Это приобретённая иммунологическая толерантность — специфическая невосприимчивость к определённому антигену. За её открытие Бернет и Медавар разделили Нобелевскую премию 1960 года.
Ерне и Бернет: антиген выбирает
В 1955 году датский иммунолог Нильс Ерне вернулся к селекции. По его теории естественного отбора антител, в крови заранее есть понемногу антител всех специфичностей; антиген связывает подходящие, комплекс захватывают клетки и начинают выпускать копии именно этого антитела. Ерне вспоминал, что идея пришла ему в голову по дороге домой, на копенгагенском мосту Книппельсбро.
Слабым местом оставалось то, как клетка «копирует» чужое антитело. Австралийский вирусолог Фрэнк Макфарлейн Бернет в 1957 году перенёс отбор с молекул на клетки. Его статья в скромном «Австралийском научном журнале» занимала три страницы и называлась «Видоизменение теории Ерне с использованием понятия клональной селекции». В 1959 году Бернет развил теорию в книге «Клонально-селекционная теория приобретённого иммунитета», а Джошуа Ледерберг в том же году чётко сформулировал её положения в журнале Science.
Почему Нобелевская премия Бернета — не за клональную селекцию. В 1960 году теория ещё не была доказана, и премию Бернету дали за открытие приобретённой толерантности. Но именно толерантность теория клональной селекции объясняла лучше всего: в зародыше клоны, встретившие антиген, не размножаются, а гибнут.
Как проверяли теорию
Одна клетка — одно антитело (1958)
Молодой австралиец Густав Нассал и приехавший в лабораторию Бернета Джошуа Ледерберг иммунизировали крыс сразу двумя штаммами сальмонелл с разными белками жгутиков. Затем они помещали по одной плазматической клетке из лимфатического узла в микроскопическую каплю и добавляли бактерии обоих штаммов. Антитела, выделенные клеткой, обездвиживают бактерии, и под микроскопом это видно. Каждая клетка обездвиживала бактерии только одного штамма, хотя организм вырабатывал антитела к обоим. Так подтвердилось первое положение теории.
«Самоубийство» по антигену (1969)
Гордон Ада и Памела Бирт обработали клетки селезёнки мыши антигеном, меченным сильно радиоактивным йодом. Клетки, связавшие такой антиген, погибали от облучения. Затем эти клетки пересадили облучённым мышам, лишённым собственных лимфоцитов. Мыши не могли ответить на этот антиген, но нормально отвечали на другие. Значит, к каждому антигену заранее существуют свои клетки, и если их уничтожить, никакие другие их не заменят: антиген не «учит» любую клетку, а находит готовую.
Моноклональные антитела (1975)
Георг Кёлер и Цезарь Мильштейн слили B-лимфоцит иммунизированной мыши с опухолевой клеткой миеломы. Получилась гибридома — клетка, которая бесконечно делится, как опухоль, и выделяет антитела одной специфичности, как плазматическая клетка. Её потомки — клон, и все они выделяют одно и то же антитело — моноклональное. Это прямое следствие клональной теории, ставшее одним из главных инструментов медицины: на моноклональных антителах основаны экспресс-тесты на беременность и инфекции и многие лекарства от опухолей и аутоиммунных болезней. Кёлер, Мильштейн и Ерне получили Нобелевскую премию 1984 года. Метод не запатентовали, и это ускорило его распространение по всему миру.
Загадка разнообразия и ответ Тонегавы
Теория клональной селекции требует огромного разнообразия рецепторов: возможных антигенов бесчисленное множество. Возможное разнообразие антител оценивают более чем в сто миллиардов вариантов, а белок-кодирующих генов у человека около 20 000. Каждое антитело состоит из двух белков — тяжёлой и лёгкой цепи; если бы на каждую цепь приходился свой готовый ген, никакого генома не хватило бы.
В 1965 году Уильям Драйер и Клод Беннетт смело предположили, что одна цепь антитела кодируется двумя отдельными генами — для вариабельной (V) и константной (C) части, которые как-то соединяются. Это противоречило правилу «один ген — один полипептид», и гипотезу встретили скептически.
Проверил её японский молекулярный биолог Судзуми Тонегава, работавший в Базельском институте иммунологии (которым, к слову, руководил Ерне). В 1976 году он и Нобумити Хозуми сравнили ДНК зародышей мыши и ДНК миеломы — опухоли из плазматических клеток, выделяющей одно антитело. ДНК разрезали ферментом рестрикции, который режет её всегда в одних и тех же местах, и искали фрагменты, связывающие меченую РНК лёгкой цепи. В ДНК зародыша участки V и C оказались в разных фрагментах, а в ДНК опухоли — в одном, более коротком. Значит, при созревании B-лимфоцита ДНК перестраивается: участки сближаются, а промежуток между ними вырезается.
Дальнейшие работы лабораторий Тонегавы, Филипа Ледера и Лероя Худа показали, что ген вариабельной части собирается из нескольких сегментов: у лёгкой цепи — из V и J, у тяжёлой — из V, D и J. У человека около 40 работающих сегментов V, 23 сегмента D и 6 сегментов J тяжёлой цепи, а для лёгких цепей — 40 V и 5 J (каппа) или 30 V и 4 J (лямбда). Каждый B-лимфоцит случайно выбирает по одному сегменту каждого типа.
| Источник разнообразия | Как работает | Сколько даёт |
|---|---|---|
| Сочетание сегментов тяжёлой цепи | 40 V × 23 D × 6 J | 5520 вариантов |
| Сочетание сегментов лёгкой цепи | 40 × 5 (каппа) + 30 × 4 (лямбда) | 320 вариантов |
| Сочетание тяжёлой и лёгкой цепи | Любая тяжёлая с любой лёгкой | 5520 × 320 ≈ 1,8 миллиона |
| Неточные стыки | При соединении сегментов теряются и добавляются нуклеотиды (их вставляет фермент концевая дезоксинуклеотидилтрансфераза) | Умножает число вариантов во много тысяч раз — до сотен миллиардов и больше |
| Соматические гипермутации | После встречи с антигеном в генах V активированного B-лимфоцита возникают точечные мутации | Улучшает уже выбранные антитела |
Итог поразителен: примерно 150 сегментов генома (69 для тяжёлой цепи, 45 для каппа- и 34 для лямбда-цепи) кодируют миллионы сочетаний, а с неточными стыками — сотни миллиардов. За открытие генетического механизма разнообразия антител Тонегава в 1987 году получил Нобелевскую премию один, без соавторов.
Исключение из школьного правила. На уроках генетики говорят, что все соматические клетки организма содержат одинаковую ДНК. Зрелые лимфоциты — исключение: в каждом B- и T-лимфоците участки генов рецептора необратимо вырезаны, и у разных лимфоцитов вырезаны разные участки. Ген рецептора в зрелом лимфоците короче, чем тот же участок хромосомы в клетке кожи или печени того же человека.
Тем же способом собираются рецепторы T-лимфоцитов. Перестройку выполняют белки-ферменты RAG1 и RAG2 (открыты в 1989–1990 годах в лаборатории Дэвида Балтимора). Их происхождение оказалось неожиданным: это одомашненный «прыгающий ген» — транспозон, который около 500 миллионов лет назад внедрился в геном предка челюстноротых позвоночных. Похожий транспозон и сегодня живёт в геноме ланцетника.
Отбор продолжается: созревание лимфоцитов и антител
Отбор в тимусе
Случайная сборка рецепторов неизбежно даёт и бесполезные, и опасные варианты. Поэтому T-лимфоциты в тимусе проходят двойной экзамен. Положительный отбор оставляет только клетки, способные узнать белки главного комплекса гистосовместимости своего организма: иначе лимфоцит не сможет «прочитать» антигены на чужих клетках. Отрицательный отбор уничтожает клетки, слишком сильно реагирующие на собственные белки. Экзамен не сдают 95–98 % клеток. Чтобы в тимусе можно было проверить лимфоциты на реакцию к белкам других органов, например к инсулину поджелудочной железы, клетки тимуса под управлением гена AIRE вырабатывают понемногу тысячи «чужих» для них белков. При мутации этого гена запретные клоны выживают, и развивается тяжёлое аутоиммунное поражение многих эндокринных желёз.
Регуляторные T-лимфоциты
Отбор в тимусе не идеален, и часть самореактивных клеток выходит в кровь. Их сдерживают регуляторные T-лимфоциты, которые в 1995 году описал японский иммунолог Симон Сакагути. Мэри Бранкоу и Фред Рамсделл в 2001 году нашли ген FOXP3, без которого регуляторные клетки не образуются: у мышей и у людей с его мутацией развивается смертельное аутоиммунное заболевание. Все трое получили Нобелевскую премию 2025 года за открытия, касающиеся периферической иммунной толерантности.
Созревание антител
Клональная селекция повторяется и после первого отбора. В лимфатических узлах активированные B-лимфоциты делятся, а в генах их вариабельных участков возникают точечные мутации. Клетки с рецептором, связывающим антиген прочнее, получают сигнал к выживанию, остальные гибнут. Через несколько недель антитела связывают антиген в десятки и сотни раз прочнее, чем в начале ответа. Это то самое загадочное «улучшение» антител, которое не могла объяснить инструктивная теория, — дарвиновская эволюция в масштабе одного лимфатического узла.
Что объясняет теория
| Свойство иммунитета | Объяснение по клональной теории |
|---|---|
| Специфичность | На антиген отвечает только клон с подходящим рецептором; антитела к кори не защищают от краснухи |
| Ответ на любые, даже искусственные антигены | Набор рецепторов случаен и так велик, что для почти любого антигена найдётся хотя бы один подходящий лимфоцит |
| Задержка первичного ответа | Подходящих лимфоцитов вначале мало, клону нужно несколько суток, чтобы размножиться |
| Иммунная память и вторичный ответ | После ответа клон остаётся увеличенным, его клетки памяти живут годами |
| Действие вакцин | Вакцина заранее размножает нужный клон и создаёт клетки памяти |
| Толерантность к своему | Клоны против собственных молекул удаляются при созревании |
| Аутоиммунные болезни | Запретный клон уцелел или вышел из-под контроля регуляторных T-лимфоцитов |
| Опухоли лимфоцитов | Миелома — потомство одной плазматической клетки, поэтому выделяет антитела одной специфичности |
Как это спрашивают на ЕГЭ
| Учёный | Что запомнить |
|---|---|
| Пауль Эрлих | Теория боковых цепей (1897–1900): рецепторы существуют до встречи с антигеном, антитела — их избыток, выброшенный в кровь; гуморальная теория иммунитета; Нобелевская премия 1908 года вместе с Мечниковым |
| Фрэнк Макфарлейн Бернет | Теория клональной селекции (1957): один лимфоцит — одна специфичность, разнообразие до встречи с антигеном, антиген выбирает клон, запретные клоны удаляются; Нобелевская премия 1960 года (с Медаваром) за открытие приобретённой иммунологической толерантности |
| Судзуми Тонегава | Генетический механизм разнообразия антител (1976): гены антител состоят из сегментов, которые соединяются в случайном сочетании при созревании B-лимфоцита; Нобелевская премия 1987 года |
Ловушки. 1) «Антиген служит шаблоном для антитела» — это опровергнутая инструктивная теория. 2) «Лимфоцит вырабатывает антитела к разным антигенам» — одна клетка, одна специфичность. 3) «Разнообразие антител возникает в ответ на антиген» — оно возникает заранее и случайно, антиген лишь выбирает. 4) «Перестройка генов антител происходит в половых клетках и наследуется» — она происходит в соматических клетках, в каждом лимфоците заново, и не наследуется. 5) Бернет получил Нобелевскую премию не за клональную селекцию, а за открытие приобретённой толерантности. 6) Мечников — фагоцитарная теория, в «тройку» клонально-селективной теории не входит.
В ответах части 2 теория помогает объяснить, почему прививка защищает только от одного возбудителя, почему первый ответ медленный, а второй быстрый, почему после пересадки органов назначают иммунодепрессанты и откуда берутся аутоиммунные болезни. Задания по теме — в тренажёре, тема 5.2, урок о клетках и памяти — «Антигены, антитела, лейкоциты, лимфоциты, фагоцитоз и иммунная память».
Интересные факты
- Эрлих сформулировал теорию боковых цепей, когда искал способ измерять силу противодифтерийной сыворотки. Единицы активности сывороток, которые он ввёл, применялись десятилетиями. Позже, в поисках «волшебной пули», которая находит и убивает только возбудителя, он создал сальварсан — первое синтетическое лекарство против сифилиса, «препарат 606», и тем самым основал химиотерапию.
- Тонегава после Нобелевской премии сменил науку: он перешёл к нейробиологии и изучает, как мозг хранит память. Так он прошёл путь от иммунной памяти к памяти в обычном смысле слова.
- В 2002 году Конрад Хохедлингер и Рудольф Йениш клонировали мышей из ядер зрелых B-лимфоцитов. Все B-лимфоциты таких мышей несли перестроенные гены донорской клетки и вырабатывали антитела одной специфичности: получились «моноклональные мыши».
- Ледерберг, соавтор опыта «одна клетка — одно антитело», приехал к Бернету в Мельбурн генетиком бактерий, чтобы разобраться в иммунологии, а осенью 1958 года, через несколько месяцев после выхода их статьи, получил Нобелевскую премию — за открытия в генетике бактерий.
- У миног и миксин нет антител, но их лимфоциты тоже собирают рецепторы из кусочков генов, только другим способом. Клональная селекция оказалась таким удачным решением, что эволюция пришла к нему дважды.
- Набор рецепторов лимфоцитов у однояйцевых близнецов разный: перестройка генов случайна, и одинаковый геном не даёт одинакового «репертуара». Это редкий пример того, как случайность при развитии делает генетически одинаковых людей разными.
- Бернет предсказал толерантность раньше, чем её доказали, и пытался проверить предсказание сам на куриных зародышах, но убедительного результата не получил. Решающий опыт поставил Медавар — и премию они разделили.
Задания с разбором
Задание 1. Установите соответствие (линия 14)
Установите соответствие между положением и учёным, которому оно принадлежит: 1) П. Эрлих; 2) Ф. М. Бернет; 3) С. Тонегава.
А) клетки имеют рецепторы — «боковые цепи», с которыми связывается токсин; Б) гены антител в B-лимфоците перестраиваются; В) каждый лимфоцит несёт рецепторы одной специфичности; Г) антитела — избыток рецепторов, выброшенный клеткой в кровь; Д) лимфоциты, реагирующие на собственные молекулы, удаляются при созревании; Е) разнообразие антител возникает при соединении случайно выбранных сегментов ДНК.
Разбор
Боковые цепи и антитела как их избыток — Эрлих (А, Г — 1). Одна специфичность лимфоцита и удаление запретных клонов — Бернет (В, Д — 2). Перестройка генов и сегменты ДНК — Тонегава (Б, Е — 3).
Ответ: 132123.
Задание 2. Множественный выбор (линия 15)
Выберите три положения теории клональной селекции.
- Лимфоциты с разными рецепторами возникают до встречи с антигеном.
- Антиген служит шаблоном, вокруг которого складывается молекула антитела.
- Антиген активирует только лимфоциты с подходящим рецептором.
- Каждый лимфоцит вырабатывает антитела к многим антигенам.
- Клоны лимфоцитов, реагирующие на собственные молекулы, удаляются при созревании.
- Клетки памяти образуются из фагоцитов.
Разбор
Верно 1, 3, 5. Утверждение 2 — инструктивная теория, опровергнутая; 4 — противоречит принципу «одна клетка — одна специфичность»; 6 — клетки памяти образуются из лимфоцитов выбранного клона.
Ответ: 135.
Задание 3. Установите последовательность (линия 16)
Установите последовательность событий в жизни B-лимфоцита согласно теории клональной селекции.
- плазматические клетки выделяют антитела
- в красном костном мозге B-лимфоцит собирает ген рецептора из случайно выбранных сегментов
- антиген связывается с рецептором B-лимфоцита
- B-лимфоцит многократно делится
- B-лимфоцит, не связавший собственные молекулы, выходит из костного мозга
- часть потомков превращается в плазматические клетки
Разбор
Рецептор собирается заранее (2), лимфоцит проходит проверку на реакцию к своему и выходит из костного мозга (5), антиген выбирает его (3), начинается клональная экспансия (4), потомки становятся плазматическими клетками (6) и выделяют антитела (1).
Ответ: 253461.
Задание 4. Установите последовательность (линия 16)
Установите последовательность процессов, приводящих к синтезу тяжёлой цепи антитела.
- транскрипция перестроенного гена
- соединение сегментов D и J в ДНК
- синтез полипептида на рибосомах
- соединение сегмента V с участком DJ
- сплайсинг: соединение участка VDJ с участком C в иРНК
Разбор
Сначала в ДНК соединяются D и J (2), затем V с DJ (4); перестроенный ген транскрибируется (1), при созревании иРНК вариабельная часть соединяется с константной (5), по иРНК синтезируется белок (3).
Ответ: 24153.
Задание 5. Множественный выбор (линия 15)
Выберите три верных утверждения о генах антител.
- В зрелом B-лимфоците участок хромосомы с генами тяжёлой цепи короче, чем в клетке кожи того же человека.
- Перестройка генов антител происходит в яйцеклетке и сперматозоиде.
- У однояйцевых близнецов наборы рецепторов лимфоцитов одинаковы.
- Перестройка генов антител происходит до встречи с антигеном.
- Разнообразие антител возникает при оплодотворении.
- Моноклональные антитела выделяют клетки одного клона.
Разбор
Верно 1, 4, 6. Неверно 2 и 5 — перестройка идёт в соматических клетках, в каждом созревающем лимфоците, и не наследуется; 3 — перестройка случайна, поэтому даже у однояйцевых близнецов наборы рецепторов разные.
Ответ: 146.
Задание 6. Расчёт
Ген вариабельной части тяжёлой цепи антитела собирается из одного сегмента V (у человека их около 40), одного сегмента D (23) и одного сегмента J (6). Лёгкая цепь собирается либо из одного из 40 сегментов V и одного из 5 сегментов J (каппа-цепь), либо из одного из 30 V и одного из 4 J (лямбда-цепь). Сколько различных тяжёлых и сколько лёгких цепей можно получить? Сколько различных антител даёт их сочетание без учёта неточных стыков? Сколько всего сегментов для этого нужно?
Разбор
Тяжёлых цепей: 40 × 23 × 6 = 5520. Лёгких: 40 × 5 + 30 × 4 = 200 + 120 = 320. Каждая тяжёлая цепь может сочетаться с любой лёгкой: 5520 × 320 = 1 766 400, около 1,8 миллиона антител. Сегментов: 40 + 23 + 6 = 69 для тяжёлой цепи, 40 + 5 = 45 для каппа-цепи, 30 + 4 = 34 для лямбда-цепи, всего 148. Около полутора сотен сегментов дают почти два миллиона сочетаний, а неточные стыки умножают это число ещё во много тысяч раз.
Ответ: 5520 тяжёлых цепей, 320 лёгких, 1 766 400 сочетаний, 148 сегментов.
Задание 7. Анализ данных (линия 21)
Крысу иммунизировали одновременно двумя штаммами бактерий А и Б с разными белками жгутиков. Из её лимфатического узла выделили 100 отдельных плазматических клеток и каждую поместили в каплю с бактериями обоих штаммов. Результаты (данные условные, по образцу опыта Нассала и Ледерберга) приведены в таблице.
| Результат | Число клеток |
|---|---|
| Обездвижены только бактерии А | 41 |
| Обездвижены только бактерии Б | 37 |
| Обездвижены бактерии обоих штаммов | 0 |
| Бактерии не обездвижены | 22 |
Выберите все утверждения, которые можно сформулировать на основании анализа данных.
- Каждая клетка выделяла антитела только к одному из двух штаммов.
- Антитела к штаммам А и Б выделяли примерно одинаковые доли клеток.
- Плазматические клетки образуются из B-лимфоцитов.
- Часть клеток не выделяла антител ни к одному из двух штаммов.
- Антиген служит шаблоном для антитела.
Разбор
Из таблицы следуют 1 (ни одна клетка не обездвижила оба штамма), 2 (41 и 37 клеток) и 4 (22 клетки). Утверждение 3 верно, но в опыте не проверялось. Утверждение 5 неверно, и данные ему противоречат: если бы любая клетка лепила антитело по шаблону, встречались бы клетки с антителами к обоим антигенам.
Ответ: 124.
Задание 8. Эксперимент (линия 22)
Исследователь повторил опыт Медавара. Мышатам линии CBA в первые сутки после рождения он ввёл клетки селезёнки мышей линии A, а мышатам контрольной группы той же линии CBA — такой же объём солевого раствора без клеток. Через восемь недель всем мышам пересадили участок кожи от мышей линии A и отметили, через сколько суток пересаженная кожа отторгается. Какая переменная задаётся экспериментатором (независимая), а какая изменяется в зависимости от неё (зависимая)? Почему контрольным мышатам вводили солевой раствор, а не оставляли их без укола? Какую нулевую гипотезу проверял исследователь?
Разбор
Элементы ответа:
1) Независимая переменная — введение новорождённым мышатам клеток линии A (вводили или нет); зависимая — время до отторжения пересаженной кожи (приживление или отторжение кожи).
2) Укол раствором без клеток исключает влияние самой процедуры (повреждения, стресса, введения жидкости): группы различаются только тем, есть ли в растворе клетки линии A.
3) Нулевая гипотеза: введение новорождённым клеток чужой линии не влияет на отторжение кожи этой линии во взрослом возрасте.
Задание 9. Прогноз (линия 23)
В условиях задания 8 у мышей опытной группы кожа линии A прижилась, у контрольных отторглась примерно за 10 суток. Как объяснить этот результат с позиций теории клональной селекции? Что произойдёт, если опытным мышам пересадить кожу от мышей третьей линии B? Что произойдёт, если клетки линии A ввести не новорождённым, а взрослым мышам CBA, и через месяц пересадить им кожу линии A? Ответы поясните.
Разбор
Элементы ответа:
1) У новорождённых мышей иммунная система ещё созревает; клоны лимфоцитов, встретившие антигены линии A в этот период, были удалены (или подавлены), как клоны против своего, — возникла приобретённая толерантность к антигенам линии A.
2) Кожа линии B отторгнется: толерантность специфична, клоны против антигенов линии B не удалялись.
3) У взрослых мышей введение клеток линии A вызовет обычный иммунный ответ с клетками памяти (как вакцинация); кожа линии A отторгнется даже быстрее, чем в контроле, — по типу вторичного ответа.
Задание 10. «Самоубийство» по антигену (линия 23)
Клетки селезёнки мыши обработали белком жгутиков сальмонеллы, меченным сильно радиоактивным изотопом, и пересадили облучённой мыши, лишённой собственных лимфоцитов. Затем мышь иммунизировали этим же белком и белком жгутиков другого штамма. Предскажите результат. Объясните, почему этот опыт подтверждает селективную теорию и опровергает инструктивную.
Разбор
Элементы ответа:
1) Антител к меченому белку не образуется (или почти не образуется), а антитела к белку другого штамма образуются нормально.
2) Меченый антиген связался только с лимфоцитами, имевшими подходящий рецептор, и они погибли от облучения; остальные клоны уцелели.
3) Значит, к каждому антигену заранее существуют свои клетки, и другие клетки не могут их заменить. По инструктивной теории любая клетка могла бы выработать антитело по шаблону, и ответ на меченый антиген сохранился бы.
Задание 11. Грипп и корь (линия 25)
Объясните с позиций теории клонально-селективного иммунитета, почему прививку от гриппа рекомендуют делать каждый год, а прививка от кори защищает много лет. Почему прививка от гриппа не защищает от простуды, вызванной другими вирусами?
Разбор
Элементы ответа:
1) Вакцина размножает клоны лимфоцитов, рецепторы которых подходят к антигенам вакцинного штамма, и создаёт клетки памяти этих клонов.
2) Белки оболочки вируса гриппа быстро меняются из-за мутаций (антигенный дрейф), и через год клетки памяти уже плохо узнают новый вариант; антигены вируса кори почти не меняются, поэтому клетки памяти узнают его десятилетиями.
3) Антигены других вирусов не связываются с рецепторами клонов, размноженных вакциной: иммунитет специфичен.
Задание 12. Ген AIRE (линия 25)
В клетках тимуса работает ген AIRE, благодаря которому они вырабатывают в небольших количествах белки других органов, например инсулин и белки щитовидной железы. У людей с мутацией этого гена с детства развиваются аутоиммунные поражения нескольких эндокринных желёз. Объясните, зачем тимусу белки других органов и почему без них развиваются аутоиммунные болезни.
Разбор
Элементы ответа:
1) В тимусе созревающие T-лимфоциты проходят отрицательный отбор: клетки, связывающие собственные белки, уничтожаются.
2) Чтобы удалить клоны против белков других органов, эти белки должны присутствовать в тимусе; ген AIRE обеспечивает их синтез.
3) При мутации гена клоны против белков эндокринных желёз (запретные клоны) не удаляются, выходят в кровь и атакуют клетки желёз.
Задание 13. Моноклональная мышь (линия 26)
Ядро зрелого B-лимфоцита мыши пересадили в яйцеклетку без ядра и вырастили из неё клонированную мышь. Какие антитела будут у такой мыши? Сможет ли она защититься от большинства инфекций? Как изменились бы результаты, если бы ядро взяли из клетки кожи? Ответ поясните.
Разбор
Элементы ответа:
1) В зрелом B-лимфоците гены антител уже перестроены и часть сегментов вырезана; эту ДНК получат все клетки клонированной мыши.
2) Все её B-лимфоциты будут нести один и тот же перестроенный ген и вырабатывать антитела одной специфичности (такие мыши были получены в 2002 году).
3) Против большинства антигенов у неё не найдётся подходящего клона, поэтому гуморальный иммунитет против большинства инфекций будет недостаточен.
4) В клетке кожи гены антител не перестроены, все сегменты сохранились, поэтому у мыши, клонированной из ядра клетки кожи, лимфоциты соберут обычное разнообразие рецепторов.
Литература
- Ярилин А. А. Иммунология: учебник. М.: ГЭОТАР-Медиа, 2010.
- Murphy K., Weaver C., Berg L. Janeway's Immunobiology. 10th ed. New York: W. W. Norton, 2022.
- Silverstein A. M. A History of Immunology. 2nd ed. London: Academic Press, 2009.
- Ehrlich P. On immunity with special reference to cell life (Croonian Lecture) // Proceedings of the Royal Society of London. 1900. Vol. 66. P. 424–448.
- Owen R. D. Immunogenetic consequences of vascular anastomoses between bovine twins // Science. 1945. Vol. 102. P. 400–401.
- Billingham R. E., Brent L., Medawar P. B. «Actively acquired tolerance» of foreign cells // Nature. 1953. Vol. 172. P. 603–606.
- Jerne N. K. The natural-selection theory of antibody formation // PNAS. 1955. Vol. 41. P. 849–857.
- Burnet F. M. A modification of Jerne's theory of antibody production using the concept of clonal selection // Australian Journal of Science. 1957. Vol. 20. P. 67–69.
- Nossal G. J. V., Lederberg J. Antibody production by single cells // Nature. 1958. Vol. 181. P. 1419–1420.
- Ada G. L., Byrt P. Specific inactivation of antigen-reactive cells with ¹²⁵I-labelled antigen // Nature. 1969. Vol. 222. P. 1291–1292.
- Köhler G., Milstein C. Continuous cultures of fused cells secreting antibody of predefined specificity // Nature. 1975. Vol. 256. P. 495–497.
- Hozumi N., Tonegawa S. Evidence for somatic rearrangement of immunoglobulin genes coding for variable and constant regions // PNAS. 1976. Vol. 73. P. 3628–3632.
- Tonegawa S. Somatic generation of antibody diversity // Nature. 1983. Vol. 302. P. 575–581.
- Hochedlinger K., Jaenisch R. Monoclonal mice generated by nuclear transfer from mature B and T donor cells // Nature. 2002. Vol. 415. P. 1035–1038.
- Kapitonov V. V., Jurka J. RAG1 core and V(D)J recombination signal sequences were derived from Transib transposons // PLoS Biology. 2005. Vol. 3. e181.
Обсуждение
Загружаем обсуждение…