
Возьмём двух прудовиков с одинаковым генотипом Dd. У одного раковина закручена вправо, у другого — влево. Ещё удивительнее третья улитка: её раковина левая, а всё её потомство — правозакрученное. Кажется, что законы Менделя здесь не действуют. На самом деле они действуют, но с одной поправкой: направление закрученности раковины определяется не собственным генотипом улитки, а генотипом её матери. Это явление называют материнским эффектом.
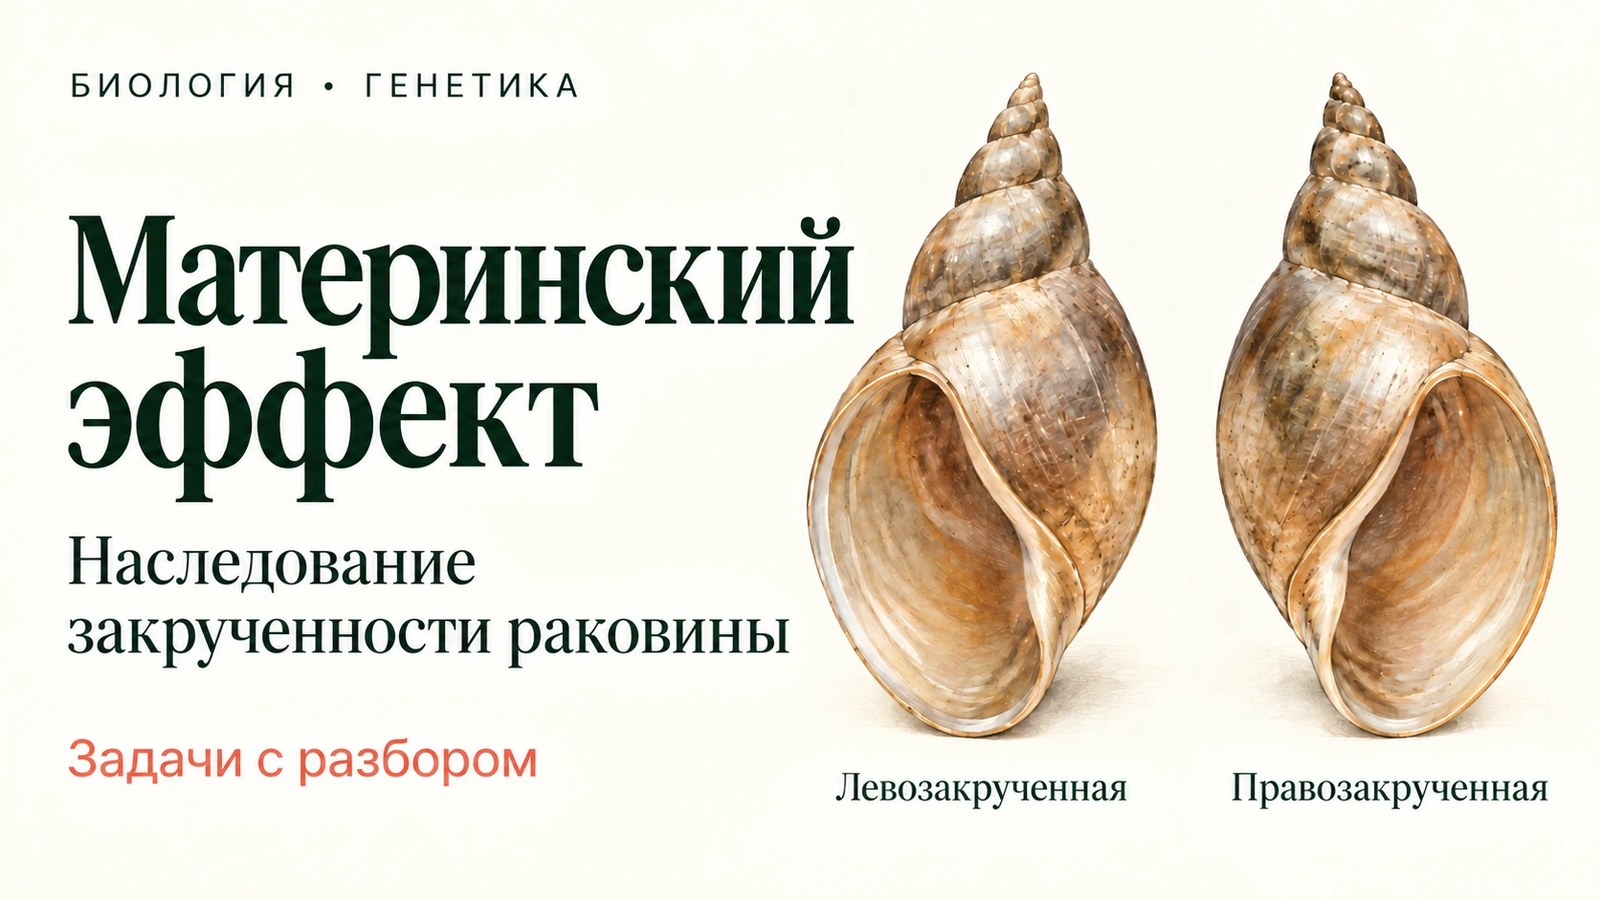
На обложке — две раковины прудовика: слева левозакрученная, справа правозакрученная. В статье разобраны классические опыты с прудовиками и их объяснение, механизм явления — от яйцеклетки до раковины, ген, который управляет закрученностью, другие примеры материнского эффекта и его отличия от цитоплазматической наследственности, сцепленного с полом наследования и геномного импринтинга. В конце — алгоритм решения задач, типичные ошибки и 11 задач с подробным разбором.
Кому пригодится. Материнский эффект не входит в обязательную школьную программу, но встречается в олимпиадах по биологии и в вузовских курсах генетики. Задачи на него хорошо проверяют главное умение генетика — различать генотип и фенотип, поэтому полезны и тем, кто готовится к ЕГЭ.
Правые и левые раковины
Хиральность (от древнегреческого χείρ — рука) — свойство объекта не совмещаться со своим зеркальным отражением, как не совмещаются правая и левая ладони. Хиральны многие молекулы живого: белки построены почти исключительно из L‑аминокислот, а нуклеиновые кислоты содержат D‑сахара. У брюхоногих моллюсков хиральность видна невооружённым глазом — это направление, в котором закручена раковина.
Чтобы определить направление, раковину держат вершиной вверх и устьем к себе. Если устье оказывается справа от оси раковины, она правозакрученная, или декстральная (от латинского dexter — правый). Если слева — левозакрученная, или синистральная (от sinister — левый). Если смотреть на раковину со стороны вершины, обороты правой раковины идут от вершины по часовой стрелке, а левой — против часовой стрелки.
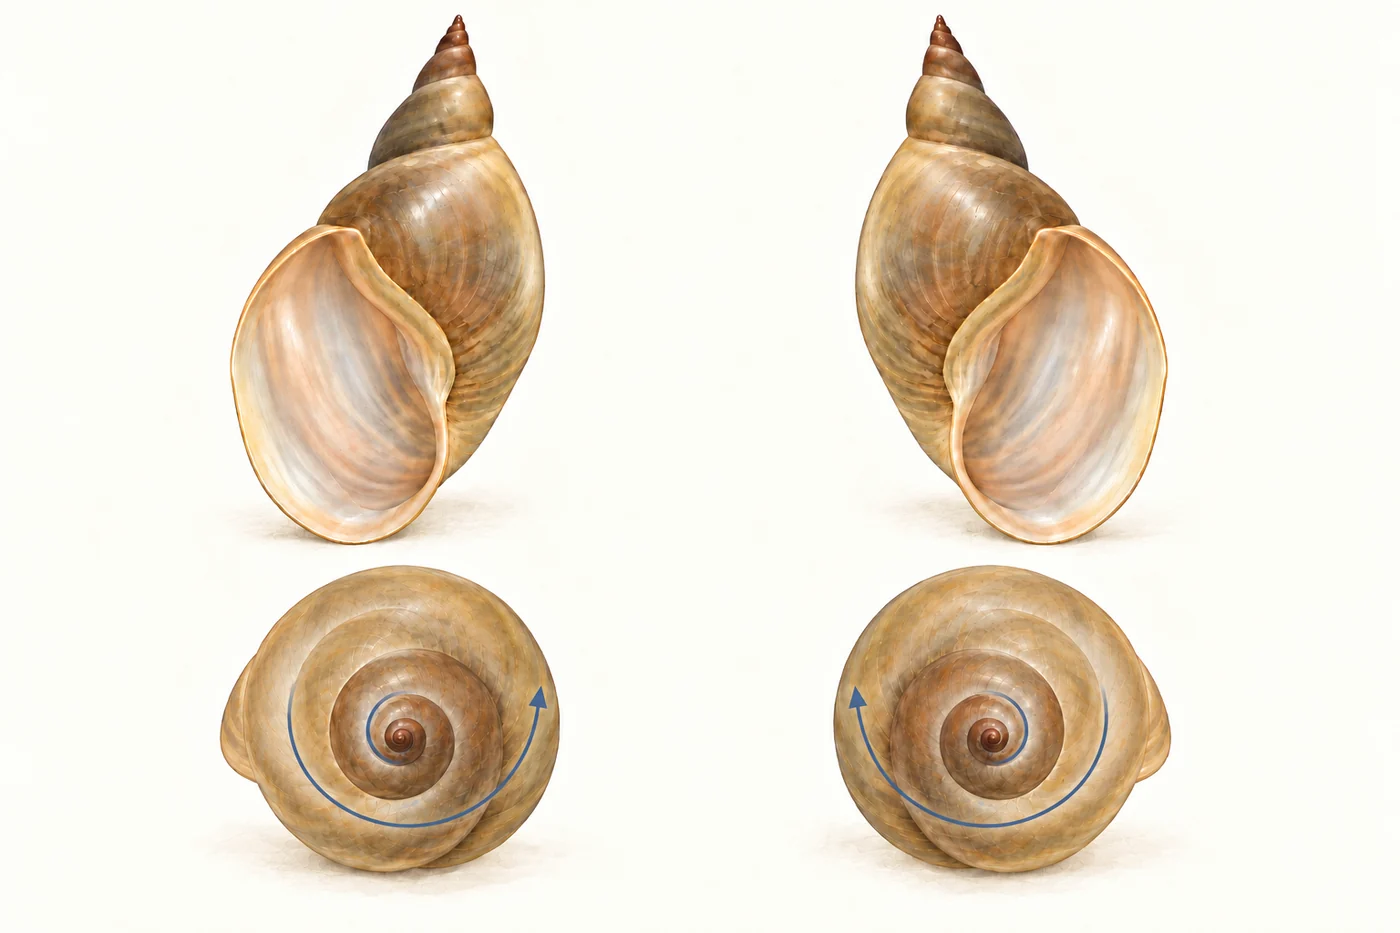
Правозакрученных видов среди брюхоногих подавляющее большинство — по распространённым оценкам, больше 90 %. Есть и целиком левые виды и роды. Например, физа пузырчатая (Physa fontinalis), обычная в наших водоёмах, — левозакрученная, хотя живёт рядом с правыми прудовиками. Асимметрична не только раковина, но и всё тело: у правой улитки мантийная полость, анальное и половое отверстия смещены на правую сторону, у левой — на левую. Поэтому левая особь в популяции правых — не просто улитка с иной раковиной, а зеркальная копия своих сородичей.
Опыты, которые поставили генетиков в тупик
В начале 1920-х годов английские исследователи Артур Бойкотт и Сирил Дайвер скрещивали правых и левых особей пресноводного прудовика Lymnaea peregra. Этот моллюск оказался удобным объектом. Он гермафродит: одна и та же особь производит и яйцеклетки, и сперматозоиды. Прудовик может оплодотворяться перекрёстно, а если держать его в одиночку, — самооплодотворяться. Яйца он откладывает кладками — студенистыми лентами из десятков яиц, и всё потомство одной кладки — дети одной матери. Матерью у гермафродитов считают ту особь, которая отложила яйца.
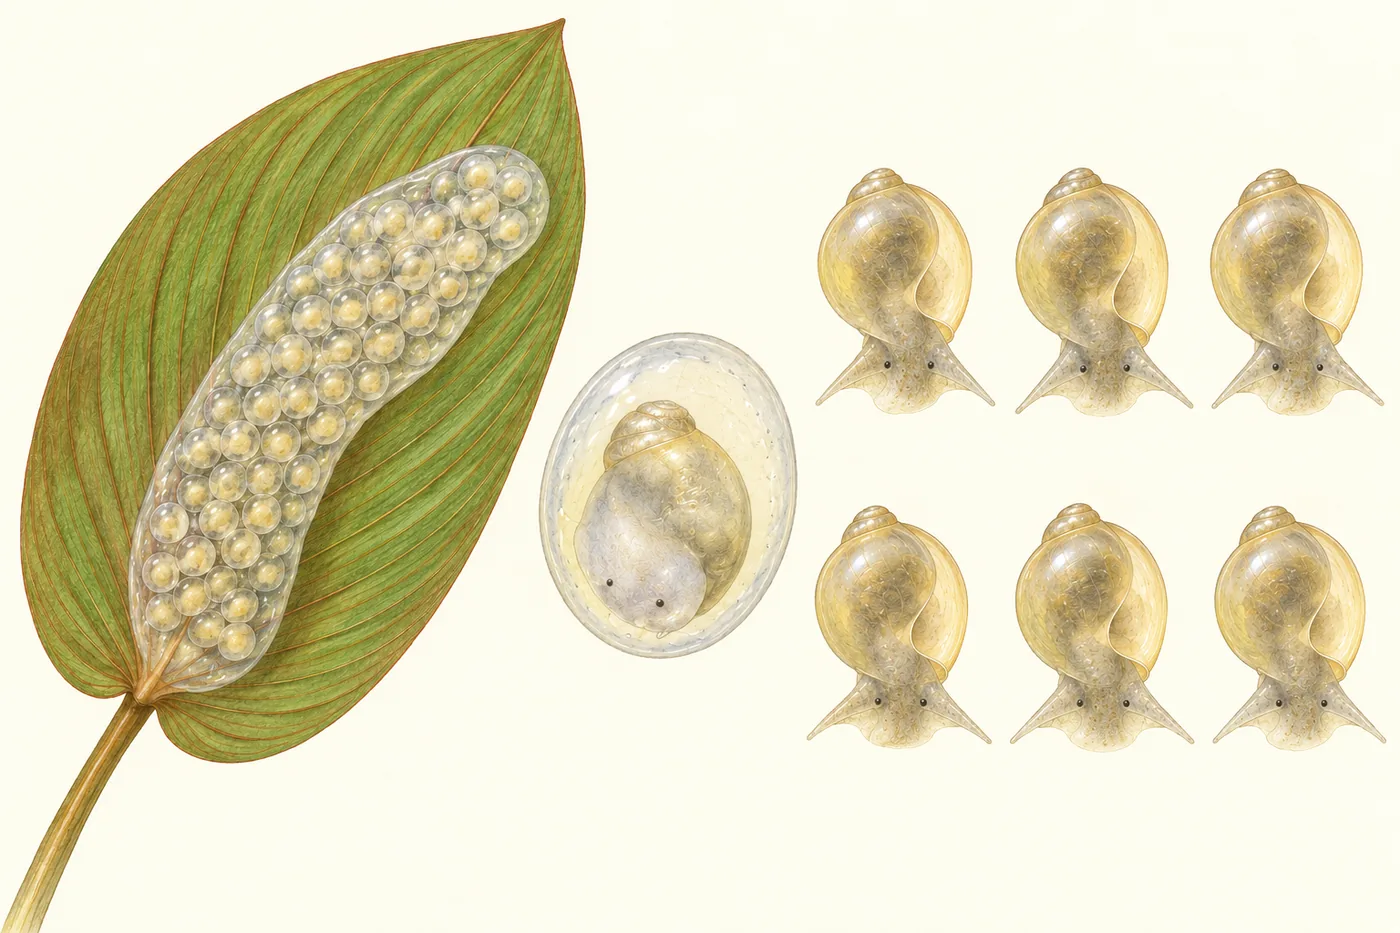
Обозначим аллель правозакрученности D, аллель левозакрученности — d; как выяснилось, D доминирует. Проследим два реципрокных, то есть взаимных, скрещивания: в первом правая особь — мать, во втором — отец. Особей F1 и следующих поколений размножают самооплодотворением, поэтому для каждой улитки известно, кто её мать.
Скрещивание 1: мать правозакрученная
| Поколение | Генотипы | Фенотип | Что определило фенотип |
|---|---|---|---|
| P | ♀ DD × ♂ dd | мать правая, отец левый | исходные чистые линии |
| F1 | все Dd | все правые | генотип матери DD |
| F2 (самооплодотворение F1) | 1 DD : 2 Dd : 1 dd | все правые, включая dd | генотип матери Dd: в нём есть D |
| F3 (каждая особь F2 размножается отдельно) | потомство особей DD, Dd и dd | семьи от DD и Dd правые, от dd — левые: 3 : 1 | генотип матери — особи F2 |
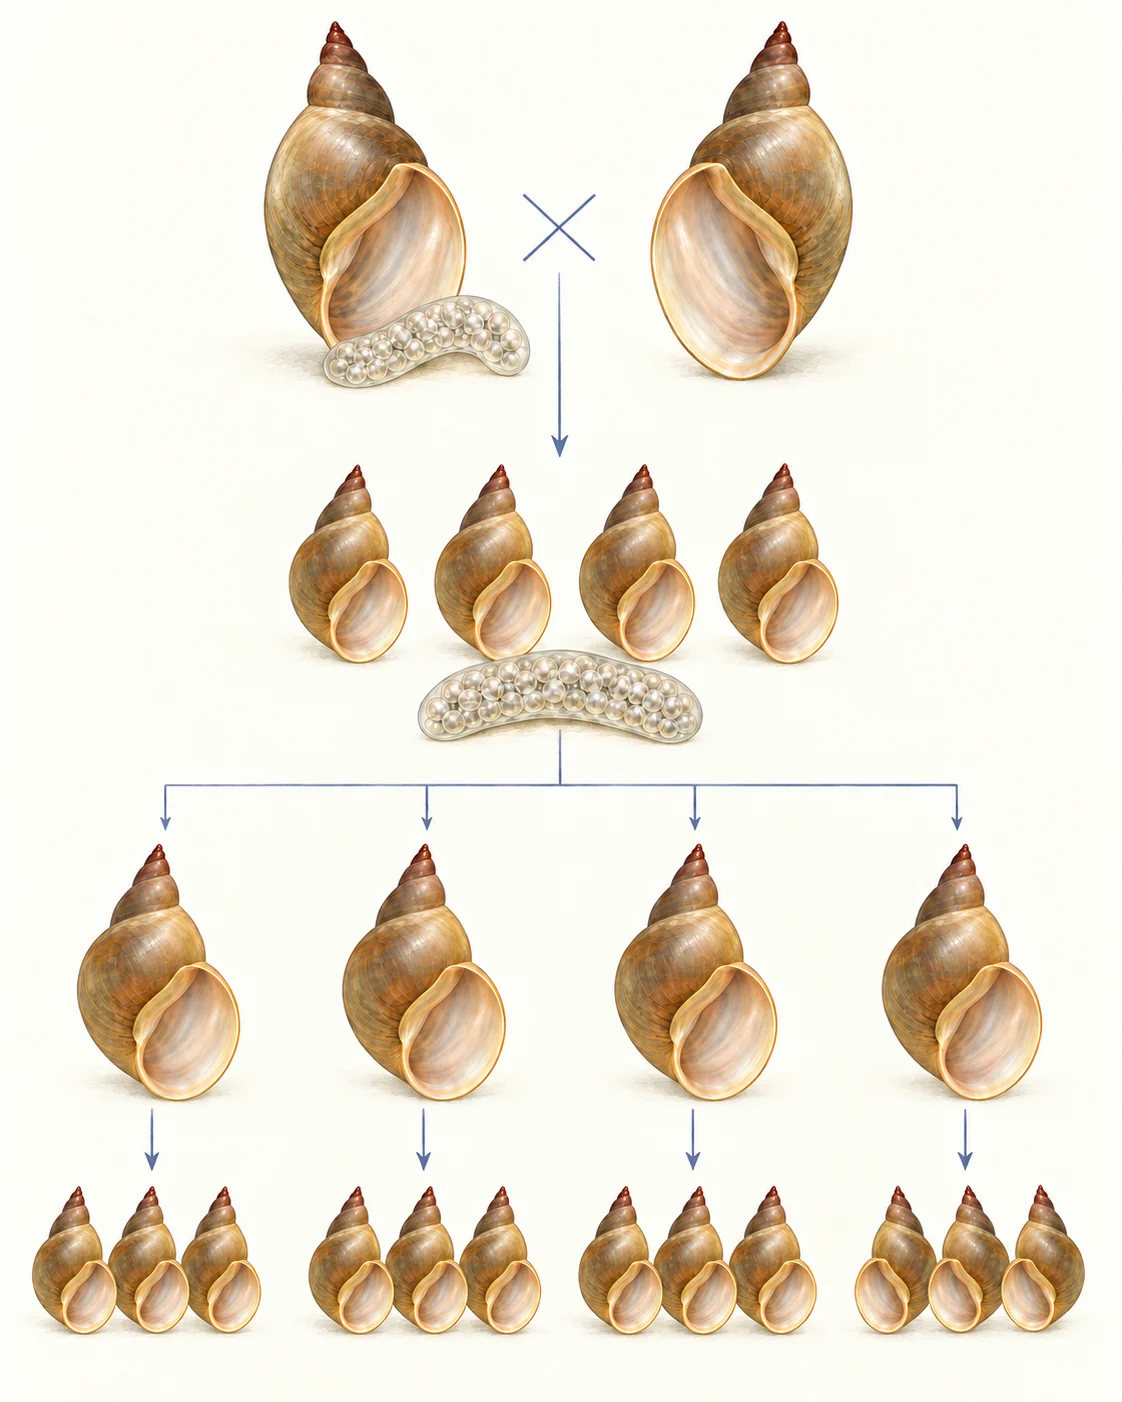
Первое поколение ничем не удивляет: все потомки правые, как и при обычном доминировании. Странности начинаются во втором. Генотипы F2 расщепляются, как положено, в отношении 1 : 2 : 1, и четверть особей — гомозиготы dd. Но левых улиток в F2 нет: правые все, в том числе гомозиготы dd. Левые улитки снова появляются только в третьем поколении: всё потомство особей F2 с генотипом dd левое, хотя сами эти матери правые.
Скрещивание 2: мать левозакрученная
| Поколение | Генотипы | Фенотип | Что определило фенотип |
|---|---|---|---|
| P | ♀ dd × ♂ DD | мать левая, отец правый | исходные чистые линии |
| F1 | все Dd | все левые | генотип матери dd |
| F2 (самооплодотворение F1) | 1 DD : 2 Dd : 1 dd | все правые | генотип матери Dd |
| F3 (каждая особь F2 размножается отдельно) | потомство особей DD, Dd и dd | семьи от DD и Dd правые, от dd — левые: 3 : 1 | генотип матери — особи F2 |
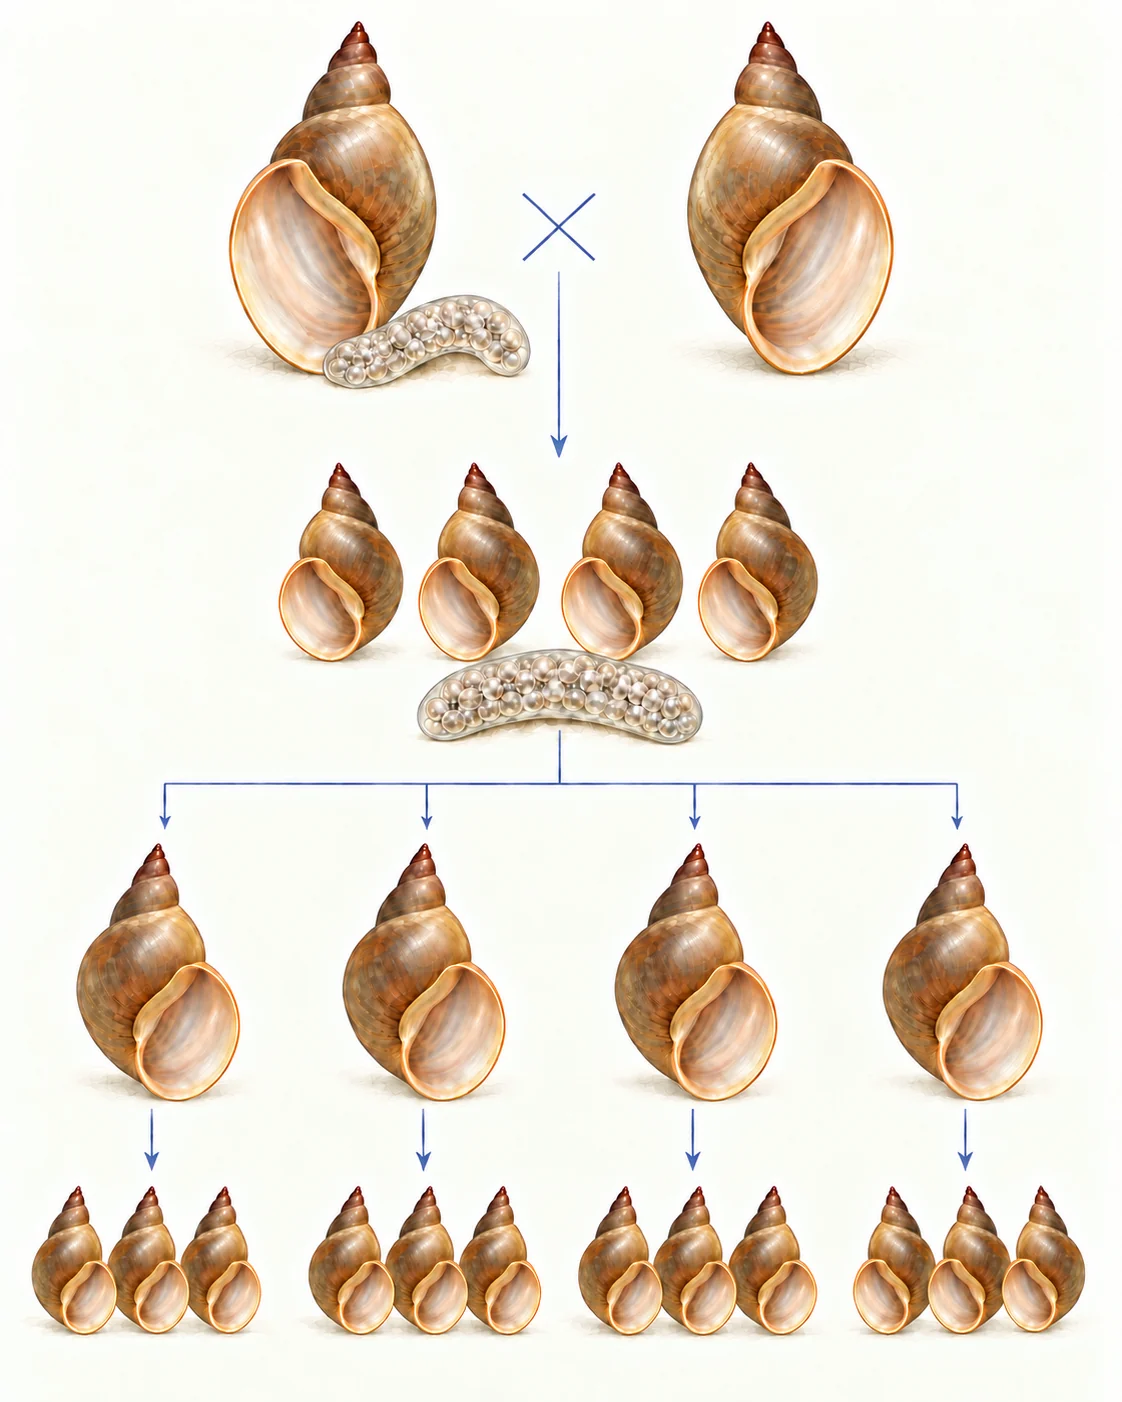
Генотип F1 в обоих скрещиваниях одинаковый — Dd, а фенотипы противоположные. Значит, собственный генотип улитки направление закрученности не определяет. Ещё нагляднее второе поколение: левые улитки F1 при самооплодотворении дают только правое потомство. Аллель D, полученный от правого отца, не проявился у самих особей F1, но определил фенотип всех их детей.
Начиная с F2, результаты двух скрещиваний полностью совпадают. Привычное отношение 3 : 1 появляется в F3, то есть с опозданием на одно поколение, и не внутри семей, а между семьями: три четверти особей F2 дают только правое потомство, одна четверть — только левое.
Объяснение в короткой заметке. Данные Бойкотта и Дайвера в 1923 году объяснил американский генетик Альфред Стёртевант — тот самый, что за десять лет до этого, ещё студентом, построил первую генетическую карту хромосомы дрозофилы. В короткой заметке в журнале Science он предположил, что закрученность раковины определяется генотипом матери, а не генотипом самой улитки, и показал, что при таком допущении все результаты укладываются в обычную менделевскую схему.
Правило материнского эффекта
Материнский эффект (предетерминация цитоплазмы) — тип наследования, при котором фенотип потомка определяется генотипом его матери, а не его собственным генотипом. Сам признак при этом контролируется ядерным геном, и аллели этого гена передаются потомству по обычным законам Менделя.
Из этого правила следуют все особенности, которые удивляли первых исследователей.
- Реципрокные скрещивания различаются уже в F1, хотя генотип гибридов одинаков. Пол потомков роли не играет: в отличие от сцепленного с полом наследования, все потомки одной матери одинаковы.
- Внутри одной семьи расщепления нет. Все потомки одной матери получают от неё одни и те же вещества и имеют одинаковый фенотип, хотя генотипы у них разные.
- Расщепление по фенотипу запаздывает на одно поколение. Отношение фенотипов в любом поколении повторяет отношение генотипов матерей в предыдущем: если три четверти матерей несут аллель D, то три четверти потомства будут правыми.
- Фенотип особи не говорит о её генотипе. Левая улитка может быть гетерозиготой Dd, правая — гомозиготой dd. Собственная раковина улитки сообщает только одно: был ли аллель D у её матери.
- Генотип отца не влияет на фенотип детей, но влияет на фенотип внуков. Отцовский аллель входит в генотип потомков и проявляется, когда они сами откладывают яйца.
Три вопроса к каждой улитке
- Какая у неё раковина? Ответ ищите в генотипе её матери: есть ли в нём D.
- Какой у неё генотип? Ответ ищите в её потомстве: правое потомство — у неё есть D, левое — она dd.
- О чём говорит её собственная раковина? Только о генотипе её матери.
Не «по материнской линии». Материнский эффект — не цитоплазматическая наследственность. Аллель отца участвует в наследовании наравне с аллелем матери: во втором скрещивании правый отец передал аллель D, и через поколение всё потомство стало правым. Гены митохондрий и пластид от отца, как правило, вообще не передаются, и признаки, которые они определяют, никогда не возвращаются к отцовскому варианту.
Как это работает: от яйцеклетки к раковине
Направление закрученности решается задолго до появления раковины — в первые часы развития, во время дробления зиготы.
Запасы матери в яйцеклетке. Пока ооцит созревает в организме матери, он запасает всё, что понадобится зародышу на первых делениях: белки, рибосомы, матричные РНК. Какие мРНК и белки окажутся в яйцеклетке, зависит от генов матери. На первых делениях дробления зародыш живёт в основном за счёт этих запасов, а его собственные гены начинают активно работать позже.
Спиральное дробление. У моллюсков, кольчатых червей и некоторых других беспозвоночных дробление спиральное. После второго деления зародыш состоит из четырёх крупных клеток — бластомеров. При третьем делении от каждого из них к анимальному полюсу отделяется маленькая клетка — микромер, и четвёрка микромеров оказывается повёрнутой относительно четвёрки крупных клеток — макромеров. Если смотреть на зародыш со стороны анимального полюса, у будущих правых улиток микромеры смещены по часовой стрелке, у будущих левых — против часовой стрелки. Направление смещения задают наклон веретён деления и форма самих делящихся клеток.
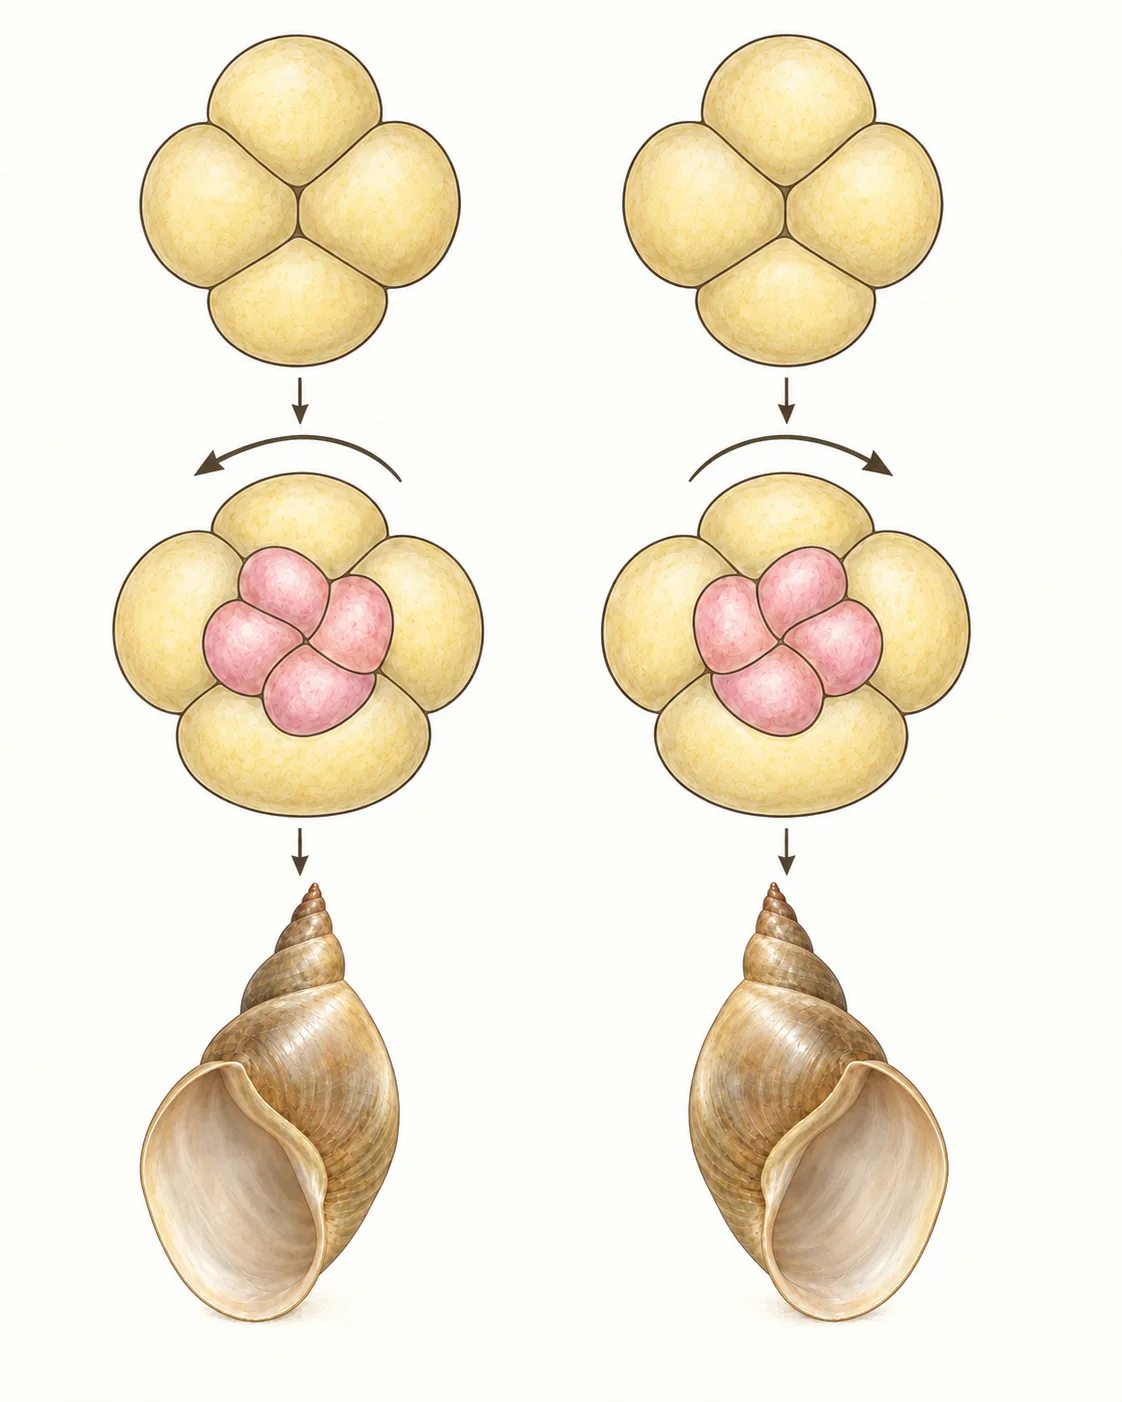
Решение необратимо. Расположение клеток на стадии восьми бластомеров определяет, где у будущего организма будут левая и правая стороны. Позже на одной стороне зародыша включаются гены, которые задают асимметрию органов, — например, ген сигнального белка Nodal: у правых улиток он работает справа, у левых — слева. В итоге закручиваются тело и раковина.
Опыт с перевёрнутыми зародышами. В 2009 году японские исследователи под руководством Рэйко Куроды проверили это напрямую. Во время третьего деления они тонкими стеклянными палочками поворачивали микромеры в противоположную сторону. Из зародышей, которые по генотипу матери должны были стать правыми, вырастали левые улитки, и наоборот; менялась и сторона, на которой работал ген nodal. Значит, закрученность определяется именно расположением клеток на стадии восьми бластомеров, а гены матери нужны, чтобы задать это расположение.
Почему собственные гены зародыша опаздывают. Гетерозиготный зародыш Dd от матери dd несёт работающий аллель D, но этот аллель включается уже после третьего деления, когда расположение клеток выбрано. Изменить его зародыш не может, и из него вырастает левая улитка. Зато, став взрослой, она сама снабдит свои яйцеклетки продуктом аллеля D — и всё её потомство будет правым.
Ген закрученности — формин
Почти сто лет ген оставался неизвестным. Его нашли у большого прудовика (Lymnaea stagnalis), у которого закрученность наследуется так же: правизна доминирует и определяется генотипом матери. В 2016 году две группы — Энгуса Дэвисона в Великобритании и Рэйко Куроды в Японии — показали, что у левых линий испорчен один из генов формина (японская группа назвала его Lsdia1). Формин запускает сборку нитей актина — одного из главных компонентов цитоскелета. У левых улиток в этом гене произошёл сдвиг рамки считывания, и работающий белок не образуется. Матричная РНК гена уже есть в яйцеклетке до первого деления, то есть она материнская.
Окончательное доказательство получили в 2019 году Масанори Абэ и Рэйко Курода, впервые применив у моллюска редактирование генома системой CRISPR/Cas9. Они выключили обе копии гена у зародышей правой линии. Сами отредактированные улитки выросли правыми: они развились из яйцеклеток правой матери, в которых формин уже был запасён. А всё их потомство оказалось левым, и левизна сохранялась в следующих поколениях. Так одна мутация в материнском гене переключила закрученность тела.
Как формин поворачивает клетки. Нити актина образуют под мембраной клетки подвижный каркас. Во время третьего деления у правых зародышей этот каркас закручивает бластомеры по часовой стрелке и наклоняет веретёна деления. У левых зародышей такого закручивания нет, и бластомеры в итоге располагаются зеркально. Формины участвуют в установлении лево‑правой асимметрии и у позвоночных: опыты на шпорцевой лягушке показали, что их подавление на ранних стадиях нарушает расположение внутренних органов.
Рецессивность — следствие потери функции. Аллель d не производит работающего белка. Матери Dd хватает одной работающей копии гена, чтобы запасти в яйцеклетках достаточно формина, поэтому её потомство такое же, как у матери DD. Так устроены многие рецессивные мутации: одной нормальной копии гена достаточно.
Закрученность и эволюция
Правые и левые улитки спариваются с трудом: половые отверстия у них находятся на разных сторонах тела. У прудовиков, которые спариваются, забираясь на раковину партнёра, скрещивание правых и левых особей возможно, хотя и идёт хуже, — поэтому и удались опыты Бойкотта и Дайвера. А наземные улитки, которые спариваются, повернувшись друг к другу, при разной закрученности почти не могут спариться.
У таких улиток мутация в одном гене закрученности сразу создаёт репродуктивную изоляцию. Японские исследователи показали, что левые виды наземных улиток рода Euhadra произошли от правых, — это один из немногих известных случаев видообразования, запущенного изменением одного гена. Материнский эффект облегчает такой переход: левые улитки появляются сразу целой кладкой и могут спариваться друг с другом (задача 11).
У левых улиток бывает и неожиданное преимущество. В Юго-Восточной Азии и на юге Японии живут змеи рода Pareas, которые питаются улитками: змея вытаскивает моллюска из раковины асимметричными челюстями, и на правой стороне нижней челюсти у неё больше зубов. Такие челюсти приспособлены к правым раковинам, и левые улитки чаще переживают нападение. В районах, где живут эти змеи, левых видов улиток заметно больше.
Материнский эффект у других организмов
Прудовик — самый наглядный, но не единственный пример. Гены материнского эффекта есть у всех животных, потому что начало развития везде идёт за счёт запасов яйцеклетки.
- Дрозофила: ген bicoid. Мать откладывает мРНК этого гена у переднего конца яйца. После оплодотворения на ней синтезируется белок, который расходится по зародышу, образуя градиент концентрации, и определяет, где будут голова и грудь. У самки, гомозиготной по мутации bicoid, все зародыши независимо от генотипа отца развиваются без головы и груди, с вторым задним концом на месте переднего, и гибнут. Отсюда название гена — «двухвостый». Сама такая самка совершенно нормальна: она развилась из яйца гетерозиготной матери. Гены, управляющие ранним развитием дрозофилы, изучали Кристиана Нюслайн-Фольхард и Эрик Вишаус; в 1995 году вместе с Эдвардом Льюисом они получили Нобелевскую премию.
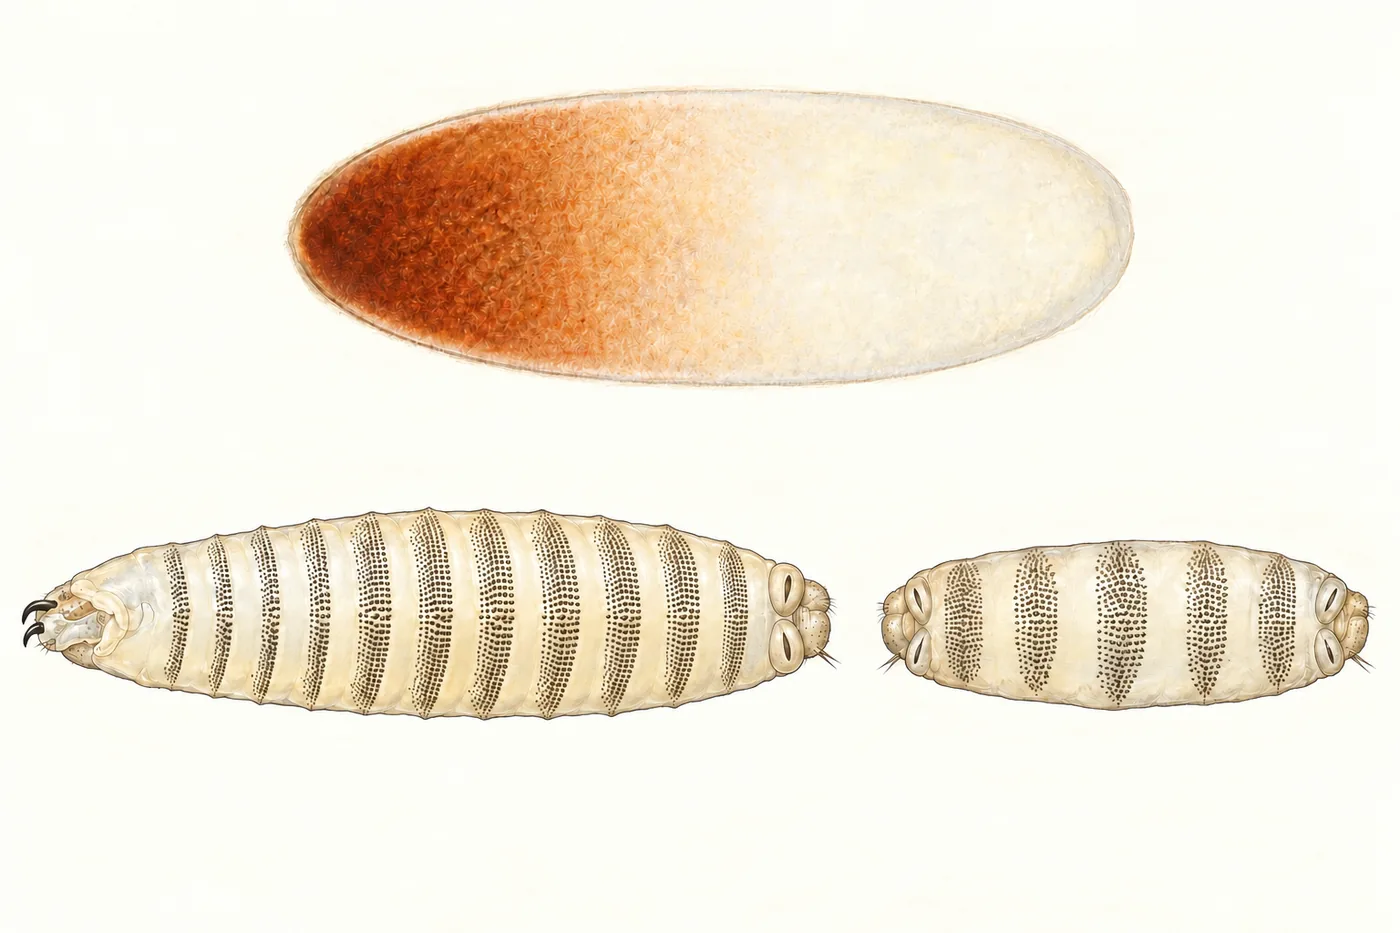
- Дрозофила: «бабушка без внуков». У самок, гомозиготных по некоторым мутациям гена tudor, потомство развивается и выглядит нормально, но в зародышах не образуются полярные клетки — предшественники половых клеток. Дети такой самки бесплодны, и внуков у неё нет. Ген назвали в честь английской династии Тюдоров, у которой были трудности с наследниками.
- Мельничная огнёвка: временный материнский эффект. У этой бабочки ген A нужен для образования кинуренина — предшественника тёмного пигмента глаз и покровов. Гусеницы aa, вылупившиеся из яиц гетерозиготной матери Aa, сначала окрашены: им хватает материнских запасов. По мере роста запасы расходуются, окраска бледнеет, а взрослые бабочки имеют красные глаза без тёмного пигмента, как и положено при генотипе aa. В отличие от прудовика, материнский вклад здесь не запускает необратимого решения, а просто постепенно расходуется (задача 9).
- Млекопитающие и человек. У самок мышей без гена Mater (Nlrp5) яйцеклетки оплодотворяются, но зародыши останавливаются на стадии двух клеток. У женщин с двумя мутантными копиями гена NLRP7 беременность раз за разом заканчивается пузырным заносом — разрастанием ворсин хориона без нормального развития зародыша, причём с разными партнёрами.
- Растения: окраска семенной кожуры. Кожура семени развивается из покровов семязачатка, то есть из тканей материнского растения. Поэтому её окраска определяется генотипом растения-матери, а не генотипом зародыша внутри семени. Это не материнский эффект в строгом смысле: признак принадлежит тканям самой матери. Но задачи на такие признаки решаются по тому же правилу и с тем же запаздыванием на поколение (задача 7).
Материнский эффект нужно отличать и от негенетического материнского влияния. Размер яйца, запас желтка, здоровье матери и условия, в которых она жила, тоже сказываются на потомстве, но не связаны с определённым геном и не дают менделевских отношений.
Как не перепутать с другими типами наследования
Различия в реципрокных скрещиваниях дают четыре механизма наследования. Отличить их можно по тому, что определяет фенотип потомка и что происходит в следующих поколениях; для сравнения в таблицу добавлено и обычное аутосомное наследование.
| Тип наследования | Что определяет фенотип потомка | Реципрокные скрещивания, F₁ | Следующие поколения | Пример |
|---|---|---|---|---|
| Материнский эффект | генотип матери по ядерному гену | различаются; все потомки одной матери одинаковы, пол не важен | в F2 оба скрещивания дают одно и то же; расщепление 3 : 1 по семьям в F3 | закрученность раковины прудовика, ген bicoid дрозофилы |
| Цитоплазматическая наследственность | гены митохондрий или пластид, которые передаются с цитоплазмой яйцеклетки | различаются: потомство похоже на мать | признак передаётся по материнской линии во всех поколениях, расщепления нет | пестролистность ночной красавицы (опыты К. Корренса), цитоплазматическая мужская стерильность кукурузы, наследственная атрофия зрительного нерва Лебера |
| Сцепленное с полом наследование | собственный генотип по генам X‑хромосомы | могут различаться, и различие связано с полом: при крис‑кросс наследовании сыновья похожи на мать, дочери — на отца | расщепление в F2 у самцов и самок разное | окраска глаз дрозофилы, гемофилия |
| Геномный импринтинг | собственный генотип, но работает аллель только одного из родителей | различаются: важно, от отца или от матери получен аллель | в каждом поколении решает происхождение аллеля | ген Igf2 у мыши (работает отцовский аллель), синдромы Прадера — Вилли и Ангельмана |
| Обычное аутосомное наследование | собственный генотип | не различаются | расщепление 3 : 1 в F2 | окраска семядолей гороха |
Решающий довод в пользу материнского эффекта — поведение второго поколения. При цитоплазматической наследственности левые особи F1 из второго скрещивания давали бы только левое потомство, и так продолжалось бы всегда. При материнском эффекте они дают правое потомство, а в F3 начинается расщепление: значит, признак определяет ядерный ген.
Как решать задачи на материнский эффект
Как распознать материнский эффект в условии. Если тип наследования не назван, ищите три признака. Реципрокные скрещивания дают разное F1, но без различий между полами. Все потомки одной матери одинаковы. Расщепление по фенотипу появляется на поколение позже, чем по генотипу, и идёт по семьям. Последний признак отличает материнский эффект от цитоплазматической наследственности, при которой расщепления нет вовсе.
Алгоритм
- Для каждой особи записывайте две вещи: генотип и фенотип. Не выводите фенотип из генотипа самой особи.
- Генотипы потомков находите обычным способом — по гаметам и решётке Пеннета: ядерный ген наследуется по Менделю.
- Фенотип всех потомков одной матери определяйте по её генотипу. Есть хотя бы один доминантный аллель (DD или Dd) — все потомки с доминантным фенотипом; dd — все с рецессивным.
- В обратных задачах двигайтесь по поколениям в обе стороны: фенотип особи — это сведения о её матери, фенотип её потомства — о ней самой.
- Отношение фенотипов в поколении считайте как отношение генотипов матерей в предыдущем. Если матери — 1 DD : 2 Dd : 1 dd, семьи будут 3 правые : 1 левая.
- Генотип отца нужен только для генотипов потомков: на их фенотип он не влияет.
Типичные ошибки
- Писать в F2 расщепление 3 : 1 по фенотипу. В F2 все особи одинаковы, расщепление по фенотипу появится только в F3.
- Определять генотип по фенотипу самой особи: «левая — значит dd». Левая улитка может быть Dd, правая — dd.
- Делать вывод о доминировании по F1 одного скрещивания. Во втором скрещивании F1 левые, но левизна не доминирует: решает генотип матери dd.
- Объяснять результаты цитоплазматической наследственностью, хотя левые особи F1 дают правое потомство, а в F3 есть расщепление.
- Считать, что отец влияет на фенотип детей. Он влияет на генотип детей и через него — на фенотип внуков.
- Искать расщепление внутри одной кладки. Потомство одной матери всегда однородно; отношение 3 : 1 — это отношение семей или особей при одинаковой численности семей.
Задачи с разбором
Задачи расположены по возрастанию сложности. Во всех задачах о прудовике D — доминантный аллель правозакрученности, d — аллель левозакрученности, и закрученность определяется генотипом матери. Сначала попробуйте решить задачу сами, затем откройте разбор.
Задача 1. Прямое и обратное скрещивание
Левозакрученную улитку из чистой левой линии скрестили с улиткой из чистой правой линии; яйца отложила левая улитка. Особи F1 размножались самооплодотворением. Затем 200 особей F2 вырастили поодиночке, и каждая дала потомство путём самооплодотворения.
- Определите генотипы и фенотипы F1.
- Сколько особей F2 теоретически будут левозакрученными и сколько среди F2 гомозигот dd?
- Сколько семей F3 будут состоять из левозакрученных улиток?
- Изменится ли результат, если яйца отложит правая улитка?
Разбор
Генотипы родителей. В чистой левой линии все улитки левые в ряду поколений. Каждая из них левая — значит, её мать dd; каждая даёт левое потомство — значит, она сама dd. В чистой правой линии все улитки DD.
1. ♀ dd × ♂ DD: все потомки Dd. Мать имеет генотип dd, поэтому всё F1 левозакрученное.
2. Самооплодотворение Dd: генотипы F2 — 1 DD : 2 Dd : 1 dd, из 200 особей — 50 DD, 100 Dd и 50 dd. Мать всех особей F2 — улитка F1 с генотипом Dd, поэтому все 200 особей правые. Левых в F2 нет, гомозигот dd — 50, и они правозакрученные.
3. Каждая особь F2 — мать своей семьи. Семьи от 50 особей DD и 100 особей Dd правые, семьи от 50 особей dd левые: 150 : 50, то есть 3 : 1.
4. Изменится только F1: при матери DD оно будет правым. Начиная с F2, всё совпадает, потому что матери F2 в обоих случаях имеют генотип Dd.
Ответ: F1 — Dd, все левые; в F2 левых нет, гомозигот dd — 50; в F3 левых семей 50 из 200; в обратном скрещивании меняется только фенотип F1.
Задача 2. Левая улитка с правым потомством
Левозакрученная улитка, выращенная в одиночку, при самооплодотворении дала только правозакрученное потомство.
- Определите генотип этой улитки и генотип её матери.
- Каковы генотипы и фенотипы её потомков?
- Какое потомство даст при самооплодотворении каждый из её потомков?
Разбор
1. Улитка левая — значит, её мать имела генотип dd и передала ей аллель d. Потомство улитки правое — значит, у неё самой есть аллель D, полученный от отца. Генотип улитки Dd, её матери — dd.
2. Самооплодотворение Dd: 1 DD : 2 Dd : 1 dd. Мать всех потомков — наша улитка с генотипом Dd, поэтому все потомки правые.
3. Потомки DD и Dd дадут правое потомство, потомки dd — левое. Правых семей будет три четверти, левых — одна четверть.
Ответ: улитка Dd, её мать dd; потомство — 1 DD : 2 Dd : 1 dd, все правые; в следующем поколении 3/4 семей правые, 1/4 левые.
Задача 3. Правая улитка с левым потомством
Правозакрученная улитка при самооплодотворении дала только левозакрученное потомство.
- Определите генотип улитки.
- Что можно сказать о генотипах её матери и отца?
- Улитку спарили с правой улиткой из чистой линии DD. Каким будет потомство, если яйца отложит наша улитка? А если яйца отложит партнёр?
Разбор
1. Всё потомство левое — значит, генотип улитки как матери dd.
2. Улитка правая — значит, у её матери был аллель D. Но сама улитка dd, то есть мать передала ей d. Генотип матери — Dd. Отец тоже передал d, поэтому его генотип Dd или dd, но не DD. О фенотипе отца ничего сказать нельзя: он зависит от генотипа его собственной матери.
3. Если яйца откладывает наша улитка, все потомки получают генотип Dd, но все они левые, потому что мать dd. Если яйца откладывает партнёр DD, потомки тоже Dd, но правые. Сама наша улитка никогда не даст правого потомства, какого бы партнёра ей ни подобрали.
Ответ: улитка dd; мать Dd; отец Dd или dd с любым фенотипом; потомство Dd левое, если мать — наша улитка, и правое, если мать — партнёр.
Задача 4. Две левые улитки и правое потомство
В природе нашли двух левозакрученных улиток одного вида и спарили их. Обе отложили яйца, и всё потомство обеих оказалось правозакрученным.
- Объясните результат, исходя из гипотезы материнского эффекта. Определите генотипы родителей и их матерей.
- Какая доля потомков будет откладывать яйца, из которых выйдут левые улитки?
- Появятся ли левые улитки среди внуков, если потомки будут спариваться друг с другом случайным образом? Какой будет их доля?
Разбор
1. Каждая из найденных улиток левая — значит, мать каждой имела генотип dd и передала ей d. Каждая улитка как мать дала правое потомство — значит, у каждой есть D. Обе улитки — Dd, их матери — dd.
2. Dd × Dd: потомки 1 DD : 2 Dd : 1 dd, все правые, потому что обе матери Dd. Левое потомство дадут потомки dd — одна четверть.
3. Фенотип внуков определяется генотипом их матерей, а генотип отцов значения не имеет. Матери dd составляют четверть потомков, поэтому при одинаковой плодовитости левыми будут около четверти внуков, причём целыми кладками.
Ответ: родители Dd, их матери dd; левое потомство будет у 1/4 потомков; левые внуки появятся, около 1/4.
Похожая история случилась в 2016 году с садовой улиткой из Лондона по прозвищу Джереми, у которой была левая раковина. Через газеты для неё нашли левозакрученных партнёров, но всё их потомство оказалось правым. Правда, у садовых улиток наследственная природа левизны не доказана: она может быть и случайным нарушением развития.
Задача 5. Закрученность и окраска
Предположим, что у прудовика есть ещё один ген, определяющий окраску тела и наследующийся по обычным законам Менделя: тёмная окраска (B) доминирует над светлой (b). Гены закрученности и окраски находятся в разных хромосомах. Правозакрученная тёмная улитка при самооплодотворении дала потомство: все потомки левозакрученные, три четверти из них тёмные, одна четверть — светлые.
- Определите генотип улитки и генотип её матери по гену закрученности.
- Каковы генотипы потомков?
- Какое потомство даст при самооплодотворении светлый потомок? Тёмный?
Разбор
1. Потомство левое — значит, улитка по гену закрученности dd. Сама она правая — значит, у её матери был D; мать передала ей d, поэтому генотип матери Dd. По окраске потомство расщепилось 3 : 1 — значит, улитка гетерозиготна, Bb. Генотип улитки — ddBb.
2. Самооплодотворение ddBb: все потомки dd; по окраске 1 BB : 2 Bb : 1 bb. Генотипы: 1 ddBB : 2 ddBb : 1 ddbb.
3. Светлый потомок ddbb даст только левых светлых улиток. Среди тёмных потомков треть имеет генотип ddBB и даст только левых тёмных, две трети — ddBb и дадут левых улиток, тёмных и светлых в отношении 3 : 1.
Вывод. Ген окраски проявляется в том же поколении, в котором произошло расщепление, а ген закрученности — с опозданием на поколение. Поэтому в одной кладке может быть расщепление по окраске, но никогда — по закрученности.
Ответ: улитка ddBb, её мать Dd; потомки 1 ddBB : 2 ddBb : 1 ddbb; светлый даст только левых светлых, тёмный — только левых тёмных (ddBB) или левых тёмных и светлых в отношении 3 : 1 (ddBb).
Задача 6. Определите тип наследования
У гермафродитного животного, способного к самооплодотворению, изучали три признака, у каждого — два варианта, А и Б. Для каждого признака провели реципрокные скрещивания чистых линий; гибриды F1 и все следующие поколения размножали самооплодотворением, а потомство каждой особи учитывали отдельно. Определите тип наследования каждого признака и обоснуйте ответ.
| Признак | ♀ А × ♂ Б: F₁ | ♀ Б × ♂ А: F₁ | F₂ | F₃ |
|---|---|---|---|---|
| Признак 1 | все А | все Б | в каждом скрещивании как F1 | как F2, расщепления нет |
| Признак 2 | все А | все Б | в обоих скрещиваниях все А | 3/4 семей — все А, 1/4 семей — все Б |
| Признак 3 | все А | все А | 3/4 особей — А, 1/4 — Б | особи Б дают только Б; из особей А треть дают только А, две трети — А и Б в отношении 3 : 1 |
Разбор
Признак 1 — цитоплазматическая наследственность. Потомство в каждом скрещивании повторяет исходную мать, и это сохраняется во всех поколениях без расщепления. Ядерные гены в F2 и F3 обязательно дали бы расщепление; значит, признак определяют гены, которые передаются только с цитоплазмой яйцеклетки, — гены митохондрий.
Признак 2 — материнский эффект. F1 различаются в реципрокных скрещиваниях, но уже в F2 оба скрещивания дают одинаковый результат: значит, решает не цитоплазма исходной матери, а генотип матерей F1, одинаковый в обоих скрещиваниях (гетерозиготы). Расщепление 3 : 1 появляется в F3 между семьями, а внутри семей его нет. Доминирует вариант А: гетерозиготные матери дают потомство А.
Признак 3 — обычное аутосомное наследование с полным доминированием А. F1 одинаковы в обоих направлениях, расщепление 3 : 1 происходит уже в F2 среди особей, а в F3 треть особей с признаком А оказываются гомозиготами, две трети — гетерозиготами.
Задача 7. Горох Менделя: кожура и семядоли
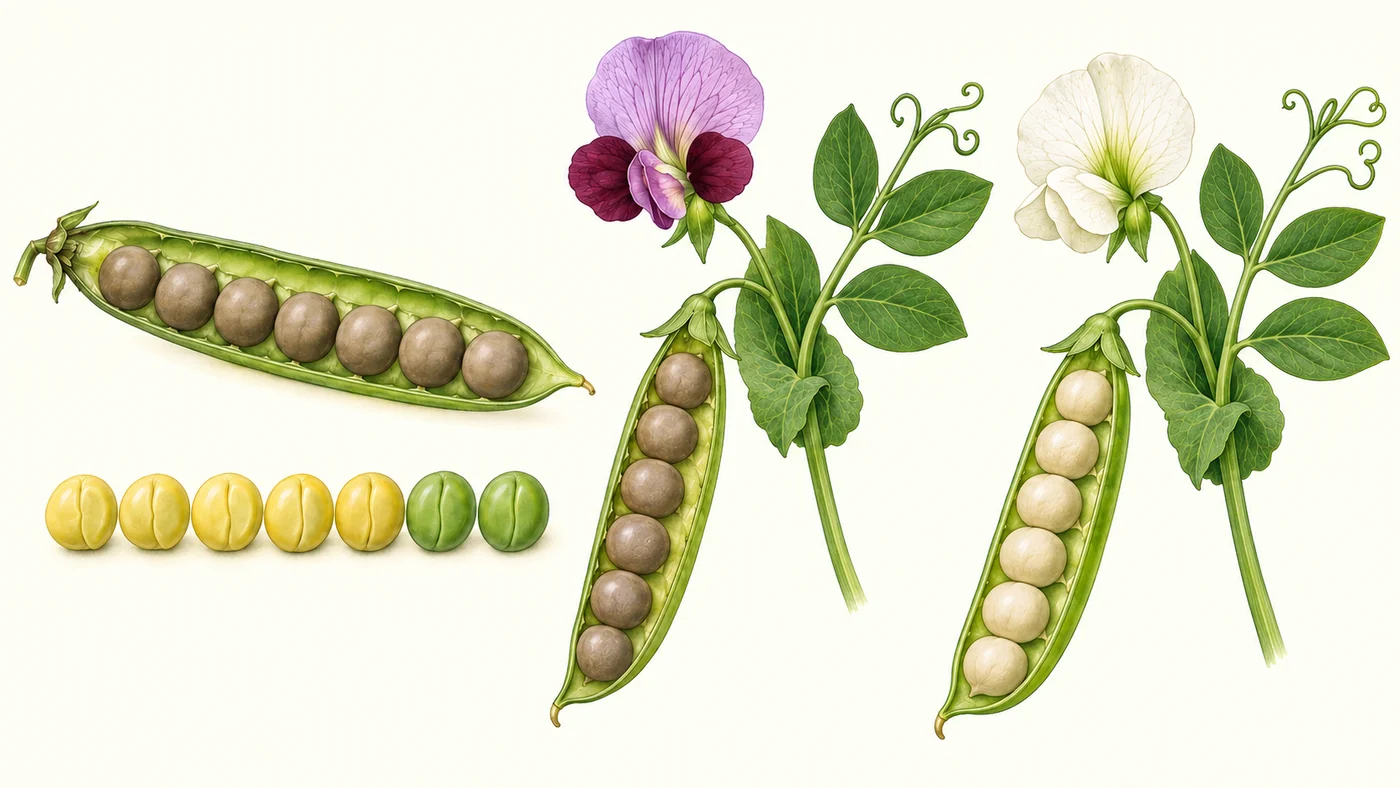
У гороха окраску кожуры семян определяет ген A: растения AA и Aa образуют семена с серой кожурой (и имеют пурпурные цветки), растения aa — семена с белой кожурой. Окраску семядолей определяет другой ген: жёлтая (Y) доминирует над зелёной (y). Мендель заметил, что расщепление по окраске семядолей видно уже в семенах, созревших на растениях F1: в одном бобе лежат жёлтые и зелёные горошины. Расщепление же по окраске кожуры видно только у семян, созревших на растениях F2, причём на каждом растении F2 у всех семян кожура одинаковая.
- Объясните это различие.
- Растение aa yy опылили пыльцой растения AA YY. Какими будут кожура и семядоли семян, которые созреют на растении aa yy?
- Какие цветки будут у растений, выросших из этих семян, и какую кожуру будут иметь семена на них?
Разбор
1. Семядоли — часть зародыша, а зародыш развивается из зиготы, поэтому окраска семядолей определяется генотипом самого зародыша. В бобах растения F1 (Yy) зародыши имеют генотипы 1 YY : 2 Yy : 1 yy, и уже здесь видно отношение 3 жёлтых : 1 зелёная. Кожура же развивается из покровов семязачатка — ткани материнского растения, поэтому её окраска определяется генотипом растения, на котором созрело семя. Все растения F1 — Aa, и все семена на них с серой кожурой, хотя зародыши внутри имеют генотипы AA, Aa и aa. Расщепление по кожуре проявится, когда из этих семян вырастут растения F2: растения aa (четверть) образуют семена с белой кожурой, остальные — с серой. Поэтому на одном растении F2 все семена одинаковы — это то же запаздывание на поколение, что и при материнском эффекте.
2. Кожура определяется генотипом растения aa, на котором созрели семена, — она белая. Зародыши имеют генотип Aa Yy, поэтому семядоли жёлтые.
3. Растения из этих семян имеют генотип Aa: цветки у них пурпурные, и все семена на них будут с серой кожурой.
Ответ: окраска семядолей — признак зародыша, окраска кожуры — признак материнского растения; на растении aa yy созреют семена с белой кожурой и жёлтыми семядолями; выросшие из них растения будут с пурпурными цветками и семенами с серой кожурой.
Задача 8. Ген bicoid у дрозофилы
Рецессивная мутация bicoid (bcd) расположена в аутосоме и проявляется по типу материнского эффекта: зародыши, развивающиеся из яиц самки bcd/bcd, гибнут при любом генотипе отца, а у гетерозиготной самки все зародыши развиваются нормально.
- Скрестили гетерозиготных мух bcd/+. Какая доля потомков выживет и каковы их генотипы?
- Какая доля самок F1 не даст жизнеспособного потомства ни с каким самцом?
- Плодовит ли самец bcd/bcd? Каким будет потомство самца bcd/bcd и самки +/+?
- Как поддерживать мутацию в лаборатории, если гомозиготные самки потомства не оставляют?
Разбор
1. Мать bcd/+ имеет нормальный аллель и запасает в яйцах мРНК bicoid, поэтому выживают все потомки: 1/4 +/+, 1/2 bcd/+, 1/4 bcd/bcd. Гомозиготы bcd/bcd выглядят совершенно нормальными.
2. Четверть самок F1 имеет генотип bcd/bcd. Сами они нормальны, но все их зародыши погибнут, с каким бы самцом их ни скрестили.
3. Самец bcd/bcd нормален и плодовит: его генотип не влияет на развитие зародышей. С самкой +/+ всё потомство (bcd/+) развивается нормально.
4. Мутацию передают через гетерозиготных самок и самцов любого генотипа. Например, ♀ bcd/+ × ♂ bcd/bcd даёт потомство 1/2 bcd/+ : 1/2 bcd/bcd, и все потомки выживают. На практике, чтобы различать генотипы, мутацию держат над балансерной хромосомой с видимым доминантным маркером.
Ответ: выживают все потомки (1/4 +/+, 1/2 bcd/+, 1/4 bcd/bcd); потомства не оставит 1/4 самок; самец bcd/bcd плодовит, его потомство нормально; мутацию поддерживают через гетерозиготных самок.
Задача 9. Мельничная огнёвка
У мельничной огнёвки ген A нужен для образования кинуренина — предшественника тёмного пигмента глаз и покровов; у гомозигот aa тёмный пигмент не образуется, и глаза у них красные. При скрещивании ♀ Aa × ♂ aa все гусеницы были тёмными, но у половины из них по мере роста окраска бледнела, а вышедшие из них бабочки имели красные глаза. В обратном скрещивании ♀ aa × ♂ Aa половина гусениц была светлой с самого начала, а другая половина оставалась тёмной всё время.
- Объясните результаты обоих скрещиваний.
- Каким будет соотношение бабочек с тёмными и красными глазами в каждом скрещивании?
- Чем этот случай отличается от закрученности раковины прудовика?
Разбор
1. В первом скрещивании мать Aa снабжает все яйца кинуренином или веществами, необходимыми для его образования. Гусеницы aa поначалу используют материнский запас и окрашиваются. Сами они кинуренин не образуют, и по мере роста запас расходуется, а окраска бледнеет. Гусеницы Aa образуют кинуренин сами и остаются тёмными. Во втором скрещивании мать aa ничего не запасает, поэтому гусеницы aa светлые с самого начала, а гусеницы Aa тёмные благодаря собственному гену.
2. В обоих скрещиваниях потомки — 1/2 Aa и 1/2 aa, поэтому у бабочек 1 с тёмными глазами : 1 с красными. Скрещивания различаются только окраской молодых гусениц.
3. Здесь материнский эффект временный: материнский запас расходуется, и в конце концов проявляется собственный генотип. У прудовика материнский вклад действует только на третьем делении дробления, но запускает необратимое решение, которое определяет строение тела на всю жизнь.
Ответ: гусеницы aa от матери Aa окрашены за счёт материнского запаса кинуренина, который расходуется по мере роста; у бабочек в обоих скрещиваниях отношение 1 : 1; эффект временный, а у прудовика — необратимый.
Задача 10. Отредактированный ген и перевёрнутый зародыш
- У зародышей из правой линии большого прудовика (DD) на стадии одной клетки выключили обе копии гена формина; получились улитки, которых условно можно обозначить dd. Какой будет закрученность у них самих? Какое потомство они дадут при самооплодотворении? Каким будет потомство, если такую улитку использовать как отца, а мать взять из правой линии DD?
- В другом опыте у зародыша из правой линии во время третьего деления повернули микромеры против часовой стрелки, и выросла левозакрученная улитка. Какое потомство она даст при самооплодотворении?
- Что доказывает каждый из опытов?
Разбор
1. Отредактированные улитки будут правыми: они развивались из яйцеклеток матери DD, в которых формин уже был запасён, а их собственный генотип до третьего деления значения не имеет. При самооплодотворении все потомки получат генотип dd от матери dd и будут левыми, как и все следующие поколения. Если же отредактированная улитка — отец, а мать DD, потомки будут Dd и правыми; их собственное потомство при самооплодотворении тоже будет правым, а расщепление 3 : 1 по семьям появится ещё через поколение.
2. Потомство будет правым. Опыт изменил расположение клеток, то есть фенотип, но не генотип: улитка осталась DD и снабдит свои яйцеклетки формином.
3. Первый опыт доказывает, что ген формина и есть ген материнского эффекта: его продукт должен быть в яйцеклетке, а его отсутствие рецессивно и проявляется только в потомстве. Второй опыт доказывает, что закрученность определяется расположением клеток на стадии восьми бластомеров и сама по себе не наследуется: передаётся генотип, а не изменённый фенотип.
Задача 11. Как в природе появляются левые улитки
В популяции правозакрученных улиток (все DD) у одной особи в половой клетке возникла рецессивная мутация d. Улитки размножаются в основном перекрёстно, но могут и самооплодотворяться.
- В каком поколении, самое раннее, появятся первые левозакрученные особи, если считать первым поколением гетерозиготу, развившуюся из мутантной гаметы? Каковы генотип и фенотип матери первых левых улиток?
- Почему левые улитки появятся сразу целой кладкой, а не поодиночке?
- Левые и правые улитки спариваются хуже, чем улитки одинаковой закрученности. Почему материнский эффект облегчает судьбу новой мутации?
- На кого на самом деле действует отбор против левых улиток?
Разбор
1. Гетерозигота Dd из первого поколения правая: её мать DD. Если она самооплодотворится, четверть её потомков (второе поколение) будут dd, но и они правые, потому что их мать Dd. Только потомство улитки dd — третье поколение — будет левым. Мать первых левых улиток — dd, сама правая. При одном перекрёстном оплодотворении путь длиннее: гетерозиготы сначала должны встретиться друг с другом, и левые улитки появятся не раньше четвёртого поколения.
2. Закрученность всех потомков одной матери одинакова. Мать dd даёт левой всю кладку — десятки братьев и сестёр одного возраста в одном месте. Если бы закрученность определялась собственным генотипом, левыми оказывалась бы лишь четверть потомков гетерозиготных родителей, рассеянная среди правых.
3. Левые улитки из одной кладки могут спариваться друг с другом и не страдают от того, что правые партнёры им не подходят. Кроме того, сами матери dd правые и спариваются с правыми особями без затруднений.
4. Отбор действует на фенотип, то есть на левых улиток, но левизна зависит от генотипа матери. Поэтому отбор против аллеля d идёт с опозданием на поколение: уменьшается число потомков у матерей dd, хотя сами левые улитки могут быть и Dd, и dd — это зависит от отца. Из-за этого частота аллеля d под действием отбора меняется медленнее, чем при обычном наследовании.
Коротко
- При материнском эффекте фенотип потомка определяется генотипом матери; ген ядерный, и его аллели наследуются по Менделю.
- У прудовика аллель правозакрученности D доминирует: мать DD или Dd даёт правое потомство, мать dd — левое.
- Реципрокные скрещивания различаются в F1; в F2 все особи одинаковы; отношение 3 : 1 появляется в F3 и только между семьями.
- Фенотип особи сообщает о генотипе её матери, фенотип её потомства — о её собственном генотипе.
- Причина — материнские мРНК и белки яйцеклетки, которые задают направление спирального дробления на стадии восьми бластомеров; ген закрученности кодирует формин.
- От цитоплазматической наследственности материнский эффект отличается тем, что аллель отца проявляется через поколение и в F3 происходит расщепление.
Литература
- Boycott A. E., Diver C. On the inheritance of sinistrality in Limnaea peregra // Proceedings of the Royal Society B. 1923. Vol. 95. P. 207–213.
- Sturtevant A. H. Inheritance of direction of coiling in Limnaea // Science. 1923. Vol. 58, № 1501. P. 269–270.
- Kuroda R., Endo B., Abe M., Shimizu M. Chiral blastomere arrangement dictates zygotic left–right asymmetry pathway in snails // Nature. 2009. Vol. 462. P. 790–794.
- Davison A. et al. Formin is associated with left-right asymmetry in the pond snail and the frog // Current Biology. 2016. Vol. 26, № 5. P. 654–660.
- Abe M., Kuroda R. The development of CRISPR for a mollusc establishes the formin Lsdia1 as the long-sought gene for snail dextral/sinistral coiling // Development. 2019. Vol. 146, № 9. dev175976.
- Ueshima R., Asami T. Single-gene speciation by left–right reversal // Nature. 2003. Vol. 425. P. 679.
- Hoso M. et al. A speciation gene for left–right reversal in snails results in anti-predator adaptation // Nature Communications. 2010. Vol. 1. Art. 133.
- Gilbert S. F. Developmental Biology. 9th ed. Sunderland: Sinauer Associates, 2010.
- Griffiths A. J. F., Wessler S. R., Carroll S. B., Doebley J. Introduction to Genetic Analysis. 10th ed. New York: W. H. Freeman, 2012.
- Инге-Вечтомов С. Г. Генетика с основами селекции. СПб.: Н-Л, 2010.
Обсуждение
Загружаем обсуждение…