
В 1913 г. в лаборатории Томаса Моргана нашли самку дрозофилы с необычными глазами: вместо крупного овального глаза у неё была узкая вертикальная полоска. Мутацию назвали Bar («полоска»). Она вела себя странно: иногда у потомков полоска становилась ещё уже, а иногда глаз возвращался к нормальному. Разгадка пришла через двадцать с лишним лет, когда научились рассматривать гигантские хромосомы слюнных желёз мухи: у мух Bar небольшой участок X-хромосомы был удвоен. Мутацию вызвало не изменение гена, а изменение строения хромосомы. Так генетики познакомились с хромосомными мутациями — перестройками, которые меняют число и порядок генов в хромосоме.
Это восьмая статья серии «Изменчивость: генотип, среда и мутации» (предыдущая — «Генные мутации: замены, вставки, выпадения и их последствия»). В ней разобраны все виды хромосомных мутаций — делеции, дупликации, инверсии, транслокации, — их поведение в мейозе, болезни человека, вызванные перестройками, филадельфийская хромосома и рак, роль дупликаций и инверсий в эволюции, происхождение второй хромосомы человека и методы изучения перестроек.
- 1. Что такое хромосомные мутации
- 2. Как открывали хромосомные перестройки
- 3. Масштаб: от нуклеотида до хромосомы
- 4. Виды хромосомных мутаций
- 5. Делеции
- 6. Взаимные делеции и дупликации: один механизм — две болезни
- 7. Дупликации и эффект Bar
- 8. Семейство глобинов: история дупликаций
- 9. Инверсии
- 10. Инверсии в природе: турухтаны и малярийные комары
- 11. Транслокации
- 12. Филадельфийская хромосома: перестройка, вызывающая рак
- 13. Хромотрипсис: катастрофа в одной клетке
- 14. Эффект положения
- 15. Кольцевые хромосомы и изохромосомы
- 16. Хромосома 2 человека: перестройка, сделавшая нас людьми
- 17. Как часто встречаются хромосомные нарушения
- 18. Хромосомы как «дозиметр» облучения
- 19. Перестройки у домашних и диких животных
- 20. Делеции Y-хромосомы и мужское бесплодие
- 21. Хромосомные мутации и эволюция
- 22. Перестройки в мейозе: почему носители часто бесплодны
- 23. Хромосомные перестройки у растений
- 24. Вариации числа копий у каждого человека
- 25. Перестройки как инструмент генетика
- 26. Как определить вид мутации по схеме
- 27. Как перестройки меняют расщепления по Менделю
- 28. Как обнаруживают хромосомные мутации
- 29. Причины хромосомных мутаций
- 30. Итог: что важно знать
- 31. Частые ошибки
- 32. Интересные факты
- 33. Частые вопросы
- 34. ЕГЭ
- 35. Для олимпиад
- 36. Задания с разбором
- Литература
1. Что такое хромосомные мутации
Хромосомные мутации (хромосомные перестройки, аберрации) — изменения строения хромосом: утрата, удвоение, поворот участка хромосомы или перенос участка на другую хромосому.
В отличие от генных мутаций, хромосомные затрагивают не отдельные нуклеотиды, а участки хромосом, часто содержащие десятки и сотни генов. Крупные перестройки видны в световой микроскоп на препаратах хромосом, особенно при специальной окраске, выявляющей поперечные полосы. Мелкие обнаруживают молекулярными методами.
Хромосомные мутации делят на две группы.
- Внутрихромосомные — изменения в пределах одной хромосомы: делеции, дупликации, инверсии.
- Межхромосомные — обмен участками между негомологичными хромосомами или перенос участка: транслокации.
Причина всех хромосомных мутаций одна — разрывы хромосом и неправильное воссоединение концов. Разрывы ДНК возникают под действием ионизирующего излучения, некоторых химических веществ, вирусов, а также самопроизвольно — при ошибках репликации и рекомбинации. Если разорванные концы соединятся правильно, перестройки не будет; если неправильно — возникает перестройка. Другая важная причина — неравный кроссинговер: если гомологичные хромосомы в мейозе конъюгируют со смещением (это легко случается в участках с повторами), обмен даёт одну хромосому с удвоенным участком и другую — с утраченным.
2. Как открывали хромосомные перестройки
История хромосомных мутаций — пример того, как генетика и цитология шли навстречу друг другу.
- 1917 г. Калвин Бриджес по результатам скрещиваний дрозофил делает вывод, что в одной из линий утрачен участок X-хромосомы, — так описана первая делеция («нехватка»).
- 1919–1921 гг. Бриджес находит дупликацию, а Стёртевант, сравнивая генетические карты двух видов дрозофилы, обнаруживает, что порядок генов в одном участке у них обратный, — первая инверсия.
- 1923 г. Бриджес описывает транслокацию: участок одной хромосомы оказался в другой, и гены, которые наследовались независимо, стали сцепленными.
- 1930-е гг. Барбара Мак-Клинток на кукурузе видит кольцевые хромосомы и перестройки прямо в микроскоп; Теофилус Пейнтер предлагает использовать гигантские хромосомы слюнных желёз дрозофилы, где видны даже мелкие перестройки.
- 1959–1963 гг. Открыты первые хромосомные болезни человека: трисомия 21, синдромы Тёрнера и Клайнфельтера, синдром «кошачьего крика».
- 1968–1970 гг. Шведский цитолог Торбьёрн Касперсон предлагает окраску хромосом флуоресцентными красителями, выявляющую поперечные полосы. Теперь каждую хромосому человека можно отличить, а перестройки — увидеть точно.
- XXI век. Молекулярные методы выявляют перестройки размером в тысячи пар нуклеотидов; оказывается, у каждого человека есть свои мелкие делеции и дупликации.
3. Масштаб: от нуклеотида до хромосомы
Чтобы почувствовать разницу между генными и хромосомными мутациями, полезно представить себе масштаб.
| Объект | Примерный размер, пар нуклеотидов | Как обнаружить изменение |
|---|---|---|
| один нуклеотид | 1 | чтение ДНК |
| кодон | 3 | чтение ДНК |
| средний ген человека (с интронами) | десятки тысяч | чтение ДНК, молекулярные методы |
| самая мелкая видимая полоса на хромосоме | 3–5 миллионов | микроскоп при дифференциальной окраске |
| хромосома человека | от 45 до 250 миллионов | микроскоп |
| гаплоидный геном человека | около 3,1 миллиарда | кариотип, чтение генома |
Значит, видимая в микроскоп делеция всего одной полосы может унести десятки генов. Именно поэтому крупные хромосомные мутации почти всегда тяжелее одиночных генных мутаций, а самые мелкие перестройки находят уже не в микроскоп, а молекулярными методами.
4. Виды хромосомных мутаций
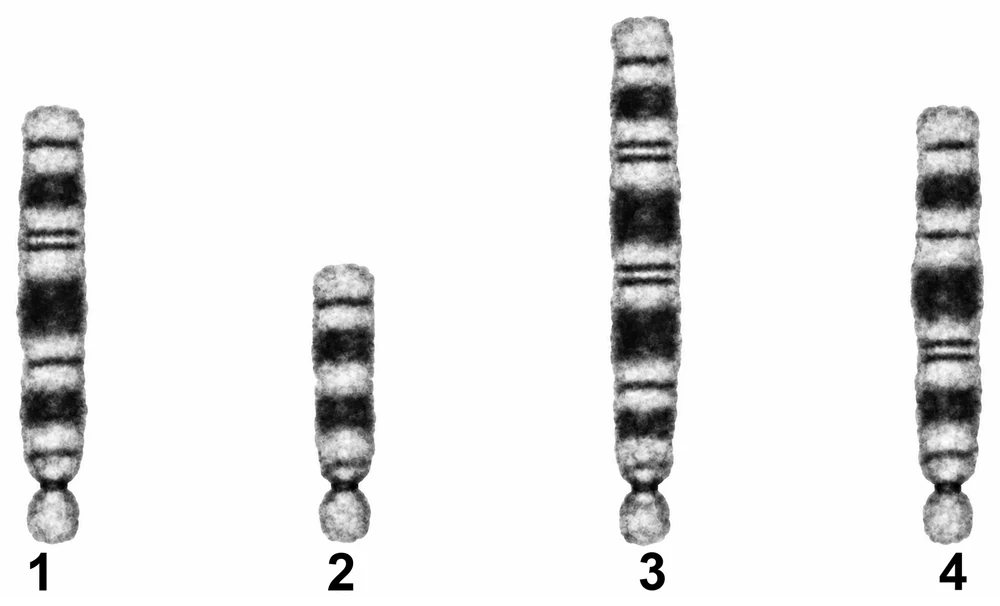
На рисунке хромосома 1 — исходная (норма). У хромосомы 2 выпал участок из двух соседних полос — это делеция, хромосома укоротилась. У хромосомы 3 тот же участок повторён дважды подряд — дупликация, хромосома удлинилась. Хромосома 4 той же длины, что и исходная, но участок из трёх полос повёрнут на 180° — инверсия, порядок полос (а значит, и генов) в нём обратный.
| Вид | Что происходит | Схема (гены A B C D E F) | Изменение числа генов |
|---|---|---|---|
| делеция (нехватка) | утрата участка хромосомы | A B | уменьшается |
| дупликация (удвоение) | повторение участка хромосомы | A B C D E F → A B C D C D E F | увеличивается |
| инверсия | поворот участка на 180° | A B C D E F → A B E D C F | не меняется, меняется порядок |
| транслокация | перенос участка на негомологичную хромосому или взаимный обмен участками | A B C D E F и M N O P → A B C P и M N O D E F | в сумме не меняется (при сбалансированной транслокации) |
| робертсоновская транслокация (слияние центромер) | две акроцентрические хромосомы сливаются в одну | две палочковидные → одна V-образная | почти не меняется; число хромосом уменьшается на одну |
Иногда выделяют ещё кольцевые хромосомы (оба конца хромосомы утрачены, и концы срослись в кольцо), изохромосомы (хромосома с двумя одинаковыми плечами, возникшая при неправильном делении центромеры) и транспозиции (перенос участка в другое место той же хромосомы). Все они — результат разрывов и неправильного воссоединения.
5. Делеции
Делеция — утрата участка хромосомы. Различают концевые делеции (утрачен концевой участок) и внутренние (участок выпал из середины, концы срослись). Последствия делеции зависят от её размера и от того, какие гены утрачены.
- В гомозиготе крупные делеции почти всегда летальны: утрачены обе копии многих генов, в том числе жизненно важных.
- В гетерозиготе организм имеет лишь одну копию генов утраченного участка. Для многих генов этого недостаточно (гаплонедостаточность), и развиваются нарушения, тем тяжелее, чем крупнее делеция.
- Делеция может «раскрыть» рецессивные аллели: если в нормальной гомологичной хромосоме напротив утраченного участка лежит рецессивный аллель, он проявится, хотя у организма лишь одна его копия. Это явление называют псевдодоминированием. Генетики использовали его для картирования генов: если рецессивный признак проявляется у гетерозиготы по делеции, значит, ген лежит в утраченном участке.
У человека делеции вызывают ряд синдромов.
- Синдром «кошачьего крика» — делеция части короткого плеча 5-й хромосомы (кариотип 46,XX,del(5p) или 46,XY,del(5p)). Описан французским генетиком Жеромом Леженом с коллегами в 1963 г. Новорождённые издают высокий плач, похожий на мяуканье, из-за недоразвития гортани; характерны малая масса тела, маленькая голова, задержка развития. Частота около 1 на 20–50 тысяч новорождённых.
- Синдром Вольфа — Хиршхорна — делеция короткого плеча 4-й хромосомы.
- Синдромы Прадера — Вилли и Ангельмана — делеция одного и того же участка 15-й хромосомы, полученной от отца или от матери (пример импринтинга, разобранный в статье серии о механизмах модификаций).
- Синдром Ди Джорджи — мелкая делеция в 22-й хромосоме (около 3 миллионов пар нуклеотидов), не видная в обычный микроскоп; вызывает пороки сердца, нарушения иммунитета и развития нёба. Одна из самых частых микроделеций — примерно 1 на 4000 новорождённых.
Делеции бывают и полезными для исследователя: набор мух с перекрывающимися делециями позволяет быстро найти, в каком участке хромосомы лежит ген. А делеции в генах, например в гене дистрофина или в гене CCR5, — промежуточный случай между генными и хромосомными мутациями: если выпал участок внутри гена, говорят о генной мутации, если целый участок хромосомы с многими генами — о хромосомной.
6. Взаимные делеции и дупликации: один механизм — две болезни
Неравный кроссинговер даёт одновременно две хромосомы: с дупликацией и с делецией одного и того же участка. У человека это хорошо видно на примере участка 17-й хромосомы, где лежит ген белка миелиновой оболочки нервов PMP22. Этот участок окружён одинаковыми повторами, и в мейозе хромосомы иногда конъюгируют со смещением.
- Если ребёнок получает хромосому с дупликацией участка (три копии гена вместо двух), развивается наследственная нейропатия Шарко — Мари — Тута типа 1A: избыток белка нарушает строение миелина, постепенно слабеют мышцы стоп и кистей.
- Если ребёнок получает хромосому с делецией того же участка (одна копия вместо двух), развивается другая болезнь — наследственная нейропатия со склонностью к параличам от сдавления: нервы становятся чувствительными к давлению.
Это наглядно показывает, что для многих генов важна именно доза: и избыток, и недостаток продукта гена вредны, причём по-разному. Похожая пара есть и на 7-й хромосоме: делеция участка 7q11.23 вызывает синдром Вильямса (характерное лицо, пороки сосудов, очень общительный характер и любовь к музыке), а дупликация того же участка — нарушения развития речи и тревожность.
7. Дупликации и эффект Bar
Дупликация — повторение участка хромосомы. Повтор может идти подряд в той же ориентации (тандемная дупликация), в обратной ориентации или в другом месте хромосомы. Дупликации обычно переносятся легче делеций: лишняя копия генов вредит меньше, чем недостающая. Но и они могут менять признаки, потому что для некоторых генов важно количество продукта — «доза» гена.
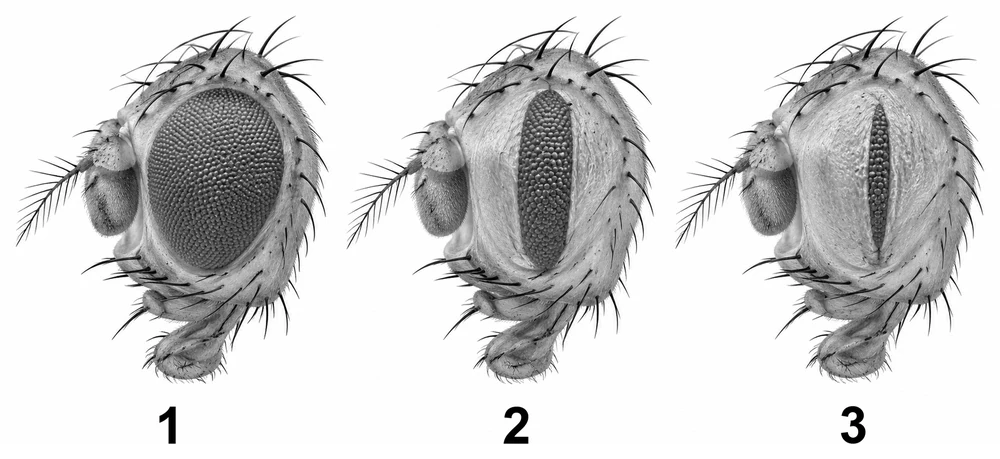
Самый известный пример — мутация Bar у дрозофилы. На рисунке голова 1 — самка дикого типа с крупным глазом из сотен фасеток, голова 2 — самка, гомозиготная по Bar, голова 3 — самка с «двойным Bar», у которой в каждой X-хромосоме участок 16A повторён трижды. В 1936 г. Калвин Бриджес, изучая гигантские хромосомы слюнных желёз, увидел, что у мух Bar небольшой участок X-хромосомы удвоен [1]. Чем больше копий участка (у мух 1, 2 и 3 в клетке их 2, 4 и 6), тем меньше фасеток в глазу: признак зависит от дозы генов этого участка.
Ещё раньше, в 1925 г., Альфред Стёртевант объяснил, почему Bar иногда «превращается» в нормальный глаз или в двойной Bar [2]. У гомозиготной самки XBXB две хромосомы, каждая с удвоенным участком, могут в мейозе конъюгировать со смещением: первая копия участка одной хромосомы ложится напротив второй копии другой. Кроссинговер в таком положении (неравный кроссинговер) даёт одну хромосому с тремя копиями участка (двойной Bar) и другую — с одной копией (норма). Это был один из первых случаев, когда изменение признака удалось связать с изменением строения хромосомы.
Дупликации очень важны для эволюции. Если ген удвоился, одна копия продолжает выполнять старую функцию, а другая может накапливать мутации и со временем приобрести новую. Японско-американский генетик Сусуму Оно в 1970 г. назвал этот путь главным источником новых генов [3]. Так из одного древнего гена глобина возникли гены миоглобина и разных цепей гемоглобина, так появились семейства генов обонятельных рецепторов, иммуноглобулинов, генов развития Hox. Дупликации генов у человека бывают и полезными: у народов, исторически питавшихся богатой крахмалом пищей, в среднем больше копий гена слюнной амилазы [4].
8. Семейство глобинов: история дупликаций
Гены гемоглобина — классический пример того, как дупликации создают семейства генов. У человека гены β-подобных глобинов лежат на 11-й хромосоме цепочкой: ε (эмбриональный), два γ (плодных), δ и β (взрослых). Гены α-подобных глобинов — на 16-й хромосоме: ζ (эмбриональный) и два α. Все они произошли от одного древнего гена в результате серии дупликаций, после которых копии накапливали разные мутации.
Результат — набор гемоглобинов, приспособленных к разным этапам жизни. Эмбриональные гемоглобины работают в первые недели развития, плодный гемоглобин F (две α- и две γ-цепи) сильнее связывает кислород и забирает его из крови матери через плаценту, взрослый гемоглобин A (две α- и две β-цепи) лучше отдаёт кислород тканям. После рождения работа γ-генов постепенно выключается, а β-гена — включается.
Это знание используют в медицине: если у больного серповидноклеточной анемией или β-талассемией снова «включить» плодный γ-ген, его гемоглобин заменит дефектный. Именно так работает первое одобренное лечение на основе редактирования генома, о котором рассказано в статье серии о генных мутациях. А у части людей γ-гены от природы не выключаются после рождения — у таких носителей мутаций β-гена болезнь протекает легче.
Дупликации иногда бывают и вредными: в участках с повторяющимися генами чаще происходит неравный кроссинговер. Так, у некоторых людей с α-талассемией одна из двух копий гена α-глобина утрачена именно в результате неравного кроссинговера между похожими генами.
9. Инверсии
Инверсия — поворот участка хромосомы на 180°. Хромосома разрывается в двух местах, средний участок разворачивается и встраивается обратно. Число генов не меняется, меняется их порядок. Различают парацентрические инверсии (повёрнутый участок не включает центромеру, лежит в одном плече) и перицентрические (участок включает центромеру, и могут меняться длины плеч и форма хромосомы).
У особи, гомозиготной по инверсии, мейоз идёт нормально: обе хромосомы одинаковы. Фенотипически инверсия часто никак не проявляется, если разрывы не повредили важные гены. Но у гетерозиготы по инверсии возникают особенности.
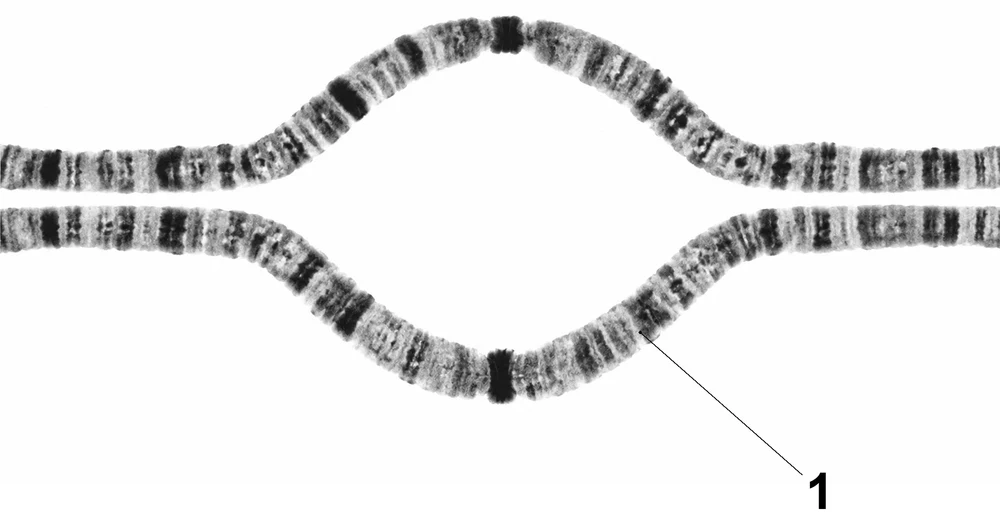
На рисунке политенные хромосомы из слюнной железы личинки дрозофилы, гетерозиготной по инверсии. В таких клетках гомологичные хромосомы тесно соединены по всей длине, и тёмные диски одного гомолога лежат напротив таких же дисков другого. В районе 1 гомологи расходятся и образуют петлю: чтобы одноимённые диски совпали, нормальный участок одного гомолога и повёрнутый участок другого должны изогнуться навстречу друг другу. Длины обеих хромосом одинаковы, а порядок дисков в петле у одного из гомологов обратный. Такая инверсионная петля — главный признак инверсии на препаратах. Сам метод изучения перестроек на политенных хромосомах предложил американский цитолог Теофилус Пейнтер в 1933 г. [5].
Если в мейозе у гетерозиготы произойдёт кроссинговер внутри инверсионной петли, образуются хромосомы с нарушенным набором генов: при перицентрической инверсии — с дупликациями и делециями, при парацентрической — хромосома с двумя центромерами и хромосома без центромеры. Такие хромосомы не дают жизнеспособных гамет или зигот. В результате в потомстве гетерозигот почти не бывает рекомбинантов по генам инвертированного участка: инверсия как бы «подавляет кроссинговер». Именно поэтому Мёллер использовал инверсии в линии ClB, чтобы X-хромосома передавалась целой.
Подавление кроссинговера делает инверсии важными для эволюции. Если в инвертированном участке оказалось удачное сочетание аллелей нескольких генов, инверсия сохраняет его в целости, не давая кроссинговеру «перетасовать». Такие блоки генов называют супергенами. Феодосий Добржанский в 1930–1940-е гг. обнаружил, что у дрозофилы Drosophila pseudoobscura в природе широко распространены разные варианты порядка генов в третьей хромосоме, и их частоты закономерно меняются по сезонам и по высоте над уровнем моря [6]. Это было одно из первых доказательств действия естественного отбора на хромосомные перестройки в природе. Добржанский выращивал смешанные популяции мух в лабораторных ящиках и видел, как частоты разных вариантов хромосомы за несколько месяцев устанавливаются на определённом равновесном уровне, зависящем от температуры, — точно так же, как в природе.
У человека тоже есть распространённые инверсии. Например, перицентрическая инверсия 9-й хромосомы встречается примерно у 1–3 % людей и обычно ничем не проявляется. Носители некоторых других инверсий здоровы, но у них повышен риск выкидышей и рождения детей с несбалансированным набором генов.
10. Инверсии в природе: турухтаны и малярийные комары
Самый яркий пример инверсии-«супергена» обнаружен у кулика-турухтана. У этой птицы три формы самцов: «независимые» самцы с тёмным воротником, которые занимают участки на току и дерутся; «спутники» с белым воротником, не занимающие участков и держащиеся рядом с хозяевами; и редкие «фэдеры» — самцы, внешне похожие на самок, которые незаметно спариваются с ними. В 2016 г. выяснилось, что формы различаются инверсией участка 11-й хромосомы длиной около 4,5 миллиона пар нуклеотидов, возникшей около 3,8 миллиона лет назад. Инверсия, подавляя кроссинговер, сохраняет вместе десятки генов, определяющих и окраску, и размеры, и поведение. В гомозиготе инверсия летальна, поэтому все «спутники» и «фэдеры» — гетерозиготы.
У малярийного комара Anopheles gambiae известна инверсия во 2-й хромосоме, частота которой закономерно растёт в засушливых районах Африки: в инвертированном участке лежат гены, повышающие устойчивость к высыханию. Носители инверсии лучше выживают в сухой сезон. Это важно для борьбы с малярией: от того, какие варианты хромосом распространены в популяции, зависит, где и когда комары кусают людей.
11. Транслокации
Транслокация — перенос участка хромосомы на негомологичную хромосому. Чаще всего это реципрокная (взаимная) транслокация: две негомологичные хромосомы обмениваются участками.
Если при транслокации не утрачен и не удвоен ни один ген, её называют сбалансированной. Носитель сбалансированной транслокации обычно здоров: все гены у него есть в двух копиях, просто часть из них лежит «не в той» хромосоме. Но при образовании гамет у такого человека хромосомы могут разойтись так, что гамета получит лишний участок одной хромосомы и не получит участка другой. Тогда у ребёнка будет несбалансированный набор — частичная трисомия по одному участку и частичная моносомия по другому, что обычно вызывает тяжёлые пороки или гибель зародыша. Поэтому носительство сбалансированной транслокации — частая причина повторных выкидышей.
Робертсоновская транслокация — слияние двух акроцентрических хромосом (у которых центромера расположена почти на конце) в одну. У человека акроцентрическими являются хромосомы 13, 14, 15, 21 и 22. Короткие плечи этих хромосом содержат в основном повторяющиеся гены рибосомной РНК, которые есть и в других хромосомах, поэтому их утрата при слиянии не вредит. Носитель робертсоновской транслокации здоров, но у него 45 хромосом. Около 1 человека из 1000 — носитель такой транслокации, чаще всего между 13-й и 14-й хромосомами.
Робертсоновская транслокация с участием 21-й хромосомы может стать причиной транслокационной формы синдрома Дауна. Если у родителя-носителя 21-я хромосома слита, например, с 14-й, ребёнок может получить от него слитую хромосому 14/21 и одновременно обычную 21-ю, а от другого родителя — ещё одну 21-ю. У ребёнка 46 хромосом, но генетический материал 21-й хромосомы в трёх дозах — развивается синдром Дауна. Такая форма составляет около 3–4 % случаев синдрома, и, в отличие от обычной трисомии, может повторяться в семье. Подробнее о синдроме Дауна — в статье серии о геномных мутациях.
12. Филадельфийская хромосома: перестройка, вызывающая рак
В 1960 г. американские исследователи Питер Ноуэлл и Дэвид Хангерфорд из Филадельфии заметили, что в клетках крови больных хроническим миелолейкозом одна из мелких хромосом заметно короче обычной. Её назвали филадельфийской хромосомой. Это была первая хромосомная перестройка, связанная с определённым видом рака. В 1973 г. американский цитогенетик Джанет Роули, применив новые методы окраски хромосом, показала, что это не просто укорочение, а взаимная транслокация между 9-й и 22-й хромосомами [7].
При этой транслокации ген ABL с 9-й хромосомы переносится на 22-ю и сливается с геном BCR. Образуется гибридный ген BCR-ABL, кодирующий фермент тирозинкиназу, который постоянно активен и непрерывно подаёт клетке сигнал делиться. Клетки-предшественники лейкоцитов размножаются бесконтрольно — развивается лейкоз.
Знание механизма позволило создать лекарство, блокирующее именно этот фермент, — иматиниб. Его клинические испытания в 2001 г. показали поразительный результат: у подавляющего большинства больных состав крови нормализовался [8]. Хронический миелолейкоз из смертельной болезни превратился в болезнь, с которой можно жить десятилетиями. Это один из первых примеров «таргетной» (направленной) терапии рака, основанной на знании конкретной мутации.
Филадельфийская хромосома — соматическая мутация: она возникает в одной клетке костного мозга взрослого человека и не передаётся детям. Многие другие опухоли крови и мягких тканей тоже вызываются транслокациями, которые соединяют гены в новые сочетания или ставят ген, стимулирующий деление, под контроль сильного чужого регулятора. Так, при лимфоме Беркитта ген MYC переносится в район генов иммуноглобулинов, очень активных в лимфоцитах, и начинает работать с огромной силой.
13. Хромотрипсис: катастрофа в одной клетке
В 2011 г. исследователи, читавшие геномы опухолей, обнаружили неожиданное явление: в некоторых раковых клетках одна хромосома (или её часть) как будто разбита на десятки и сотни осколков, которые затем беспорядочно сшиты обратно, — часть кусков потеряна, часть перевёрнута, порядок перепутан. Явление назвали хромотрипсисом (от греч. «раздробление хромосомы»). Оно происходит за одно событие, а не постепенно: чаще всего, когда хромосома при делении отстаёт и попадает в отдельное маленькое ядрышко (микроядро), где её ДНК копируется с ошибками и разрушается. Хромотрипсис найден примерно в каждой четвёртой опухоли, а изредка — и у людей с врождёнными нарушениями развития. Это пример того, как одно событие может создать множество перестроек сразу.
14. Эффект положения
Хромосомная перестройка может изменить признак, даже если не утрачен ни один ген: достаточно переместить ген в другое окружение. Это явление называют эффектом положения. Его открыл в 1925 г. Стёртевант на примере Bar: мухи с одной хромосомой с тремя копиями участка и другой с одной копией (всего 4 копии) имели более узкие глаза, чем мухи с двумя хромосомами по две копии (тоже 4 копии) [2]. Число генов одинаково, а признак разный — значит, важно и их расположение.
Другой вид эффекта положения — мозаичный: если ген в результате инверсии или транслокации оказывается рядом с плотно упакованным гетерохроматином, он может выключаться в части клеток. У дрозофилы инверсия, переносящая ген красной окраски глаз к гетерохроматину, даёт мух с пёстрыми глазами из красных и белых фасеток. Это явление связывает хромосомные мутации с эпигенетикой: ген не изменён, но в части клеток он упаковывается в гетерохроматин и молчит.
15. Кольцевые хромосомы и изохромосомы
Если хромосома разорвана у обоих концов, а оставшиеся «липкие» концы соединяются друг с другом, образуется кольцевая хромосома. Концевые участки при этом утрачены, а в митозе кольца часто расходятся неправильно, поэтому в клетках организма с кольцевой хромосомой нередко встречаются клетки с разным её числом. Кольцевые хромосомы известны у кукурузы, где их впервые увидела Мак-Клинток, и у человека, где они вызывают разные синдромы в зависимости от того, какая хромосома замкнулась в кольцо и сколько материала утрачено.
Изохромосома — хромосома, у которой оба плеча одинаковы. Она возникает, когда центромера делится не вдоль, как обычно, а поперёк: одна дочерняя хромосома получает два длинных плеча, другая — два коротких. У части женщин с синдромом Тёрнера вместо второй X-хромосомы есть изохромосома из двух длинных плеч X: генов длинного плеча у них в избытке, а генов короткого — недостаток.
16. Хромосома 2 человека: перестройка, сделавшая нас людьми
У человека 46 хромосом, а у шимпанзе, гориллы и орангутана — 48. Куда делась пара хромосом? Ответ: две хромосомы предков человека слились в одну — нынешнюю 2-ю хромосому. Это видно по строению хромосом: рисунок полос 2-й хромосомы человека почти точно соответствует двум хромосомам шимпанзе, лежащим «конец к концу».
В 1991 г. американские генетики нашли молекулярное доказательство слияния [9]. В середине длинного плеча 2-й хромосомы человека есть участок, где теломерные повторы ТТАГГГ, которые в норме бывают только на концах хромосом, расположены «голова к голове» — как будто два конца хромосом сшиты. Кроме того, во 2-й хромосоме нашли остатки второй, неработающей центромеры. Это след слияния двух древних хромосом, произошедшего у предков человека после отделения от линии шимпанзе.
Такие слияния — частый способ изменения числа хромосом в эволюции. Из-за слияний и разделений хромосом у близких видов число хромосом может сильно различаться: у разных видов мунтжаков (мелких оленей) диплоидное число — от 6 до 46. У домовых мышей на острове Мадейра и в Альпах известны «хромосомные расы» с 22–40 хромосомами вместо обычных 40 — результат робертсоновских слияний, распространившихся в изолированных популяциях.
17. Как часто встречаются хромосомные нарушения
Хромосомные нарушения (вместе с геномными мутациями) удивительно часты в самом начале развития человека. Примерно половина самопроизвольных выкидышей в первые месяцы беременности связана с нарушениями числа или строения хромосом у зародыша. Среди новорождённых хромосомные нарушения встречаются примерно у одного ребёнка из 150–200; из них около трети — сбалансированные перестройки, никак не проявляющиеся, остальные — несбалансированные изменения и изменения числа хромосом.
Часть перестроек ребёнок наследует от родителя-носителя, часть возникает заново в гаметах. Частота новых сбалансированных и несбалансированных перестроек растёт с возрастом отца меньше, чем частота генных мутаций, а нарушения числа хромосом — с возрастом матери. Подробнее о геномных мутациях — в следующей статье серии.
18. Хромосомы как «дозиметр» облучения
Ионизирующее излучение — главный внешний фактор, вызывающий разрывы хромосом. Число разрывов, а значит, и перестроек, растёт с дозой облучения. На этом основан метод биологической дозиметрии: у человека, подвергшегося облучению, берут кровь, выращивают лимфоциты и подсчитывают долю клеток с дицентрическими хромосомами (с двумя центромерами), которые почти не возникают спонтанно. По заранее построенной калибровочной кривой определяют полученную дозу. Метод использовали после аварий на Чернобыльской АЭС и других радиационных инцидентов.
Лимфоциты с нестабильными перестройками (дицентриками, кольцами) со временем погибают, а сбалансированные транслокации сохраняются годами. Поэтому для оценки облучения, полученного давно, подсчитывают транслокации, окрашивая хромосомы методом FISH. Такие исследования у переживших атомные бомбардировки Хиросимы и Нагасаки и у ликвидаторов аварий стали важным источником знаний о действии радиации на человека.
19. Перестройки у домашних и диких животных
У крупного рогатого скота известна робертсоновская транслокация между 1-й и 29-й хромосомами. Её носители внешне здоровы, но у них снижена плодовитость: часть зародышей с несбалансированным набором погибает. Поэтому быков-производителей во многих странах проверяют на эту транслокацию, прежде чем использовать для искусственного осеменения: один бык-носитель может распространить её среди тысяч потомков.
В природе хромосомные расы хорошо изучены у обыкновенной бурозубки — мелкой насекомоядной, широко распространённой в России и Европе. У разных популяций этого вида разные сочетания робертсоновских слияний, и число хромосом колеблется от 20 до 33. Описано больше 70 хромосомных рас; там, где ареалы рас соприкасаются, образуются гибридные зоны, в которых у гибридов нарушен мейоз. Такие системы помогают понять, как хромосомные перестройки могут вести к обособлению популяций.
20. Делеции Y-хромосомы и мужское бесплодие
Y-хромосома человека несёт гены, необходимые для образования сперматозоидов. Они лежат в нескольких участках длинного плеча, богатых повторами, где легко происходит рекомбинация между повторами внутри самой хромосомы. Такая рекомбинация вызывает делеции этих участков. Мужчины с такими делециями внешне здоровы, но у них нет сперматозоидов или их очень мало. Делеции Y-хромосомы — одна из частых генетических причин мужского бесплодия, и при обследовании бесплодных пар их ищут специально. Сыновья, зачатые с помощью вспомогательных репродуктивных технологий от отца с такой делецией, унаследуют её вместе с Y-хромосомой.
21. Хромосомные мутации и эволюция
Перестройки хромосом играют в эволюции несколько ролей.
- Источник новых генов. Дупликации дают «запасные» копии генов, которые могут приобрести новые функции. Около 5 % генома человека — недавние сегментные дупликации.
- Сохранение удачных сочетаний генов. Инверсии подавляют кроссинговер и закрепляют блоки генов-«супергенов». У бабочек-геликонид и некоторых птиц инверсии содержат гены окраски и поведения, определяющие разные формы внутри вида.
- Репродуктивная изоляция. Гибриды между формами, различающимися крупными перестройками, часто имеют сниженную плодовитость: в мейозе у них образуются несбалансированные гаметы. Это способствует обособлению популяций и образованию новых видов.
- Изменение регуляции генов. Перенос гена в новое окружение может изменить, когда и где он работает.
Сравнение хромосом разных видов позволяет восстанавливать их родство. Порядок генов в хромосомах человека и шимпанзе очень сходен, отличаясь несколькими инверсиями и слиянием хромосомы 2; у человека и мыши блоки генов в хромосомах те же, но перетасованы десятками перестроек, накопившихся за 80–90 миллионов лет.
22. Перестройки в мейозе: почему носители часто бесплодны
Поведение перестроенных хромосом в мейозе объясняет многие их последствия. Гомологичные хромосомы в профазе I стремятся соединиться так, чтобы одинаковые участки лежали друг против друга. Если в одной хромосоме есть перестройка, а в другой нет, конъюгация принимает необычные формы.
- Делеция или дупликация в гетерозиготе — в нормальной хромосоме напротив утраченного участка (или в перестроенной напротив лишнего участка) образуется одиночная петля: участку не с чем соединиться.
- Инверсия в гетерозиготе — инверсионная петля, в которой участки одного гомолога лежат против соответствующих участков другого.
- Реципрокная транслокация в гетерозиготе — четыре хромосомы (две нормальные и две перестроенные) соединяются в крестообразную фигуру. При расхождении такого «креста» часть гамет получает полный набор генов, а часть — несбалансированный, с лишними и недостающими участками.
Поэтому гетерозиготы по перестройкам часто имеют сниженную плодовитость: значительная часть их гамет или зигот нежизнеспособна. У растений это проявляется в высокой доле стерильной пыльцы, у животных и человека — в уменьшении размера помёта или в выкидышах.
Интересно, что этим свойством пользуются для борьбы с вредителями. Если выпустить в природу насекомых — носителей транслокаций, их скрещивание с дикими особями даст много нежизнеспособного потомства, и численность вредителя снизится. Похожий метод с облучёнными бесплодными самцами помог полностью уничтожить мясную муху-паразита скота в Северной Америке.
23. Хромосомные перестройки у растений
Именно перестройки объяснили загадку, с которой начиналась мутационная теория. Энотера Ламарка, на которой де Фриз увидел «мутации», оказалась растением с необычными хромосомами: в результате многочисленных реципрокных транслокаций почти все её хромосомы в мейозе соединяются не попарно, а в одно большое кольцо. Американский генетик Ральф Клеланд в 1920–1930-е гг. показал, что гаметы энотеры получают целые наборы хромосом, а редкие нарушения в кольце дают внезапно появляющиеся новые формы, которые де Фриз принял за мутации. Гигантская форма gigas была тетраплоидом, то есть геномным мутантом.
В селекции перестройки используют для переноса генов от диких родичей. Самый успешный пример — транслокация 1BL/1RS: короткое плечо 1-й хромосомы ржи заменило соответствующее плечо 1-й хромосомы пшеницы. В нём лежат гены устойчивости к ржавчине и мучнистой росе, а также гены, повышающие урожайность. Пшеницы с этой транслокацией — в том числе сорта П. П. Лукьяненко Аврора и Кавказ, а затем многие сорта международных селекционных центров — засевали десятки миллионов гектаров по всему миру.
У растений перестройки часто переносятся легче, чем у животных, и встречаются в природе чаще. Пыльца гетерозигот по транслокациям частично стерильна, и по доле стерильной пыльцы ботаники иногда впервые узнают о перестройке у растения.
24. Вариации числа копий у каждого человека
Долгое время считали, что дупликации и делеции — редкие события, ведущие к болезням. Но чтение геномов показало, что у каждого человека есть десятки участков, где число копий отличается от «стандарта»: где-то у него три копии участка, где-то одна. Такие различия называют вариациями числа копий (CNV). Большинство из них безвредны, некоторые влияют на признаки.
- Ген слюнной амилазы у разных людей представлен от 2 до 15 и более копиями. У народов, традиционно питавшихся крахмалистой пищей (земледельцев, собирателей клубней), копий в среднем больше, и слюна активнее расщепляет крахмал [4].
- Число копий гена, участвующего в иммунном ответе на ВИЧ, влияет на восприимчивость к вирусу.
- Крупные редкие CNV, возникающие заново, — одна из частых причин нарушений развития и аутизма у детей.
Вариации числа копий — пример того, как хромосомные мутации небольшого масштаба вносят вклад в обычную изменчивость людей, а не только вызывают болезни.
25. Перестройки как инструмент генетика
Генетики научились использовать хромосомные перестройки в своих целях. Самый важный инструмент дрозофилистов — хромосомы-балансеры. Это хромосомы с несколькими перекрывающимися инверсиями, которые полностью подавляют кроссинговер с нормальным гомологом, и с доминантной видимой мутацией-меткой (например, загнутыми крыльями), летальной в гомозиготе. Если рецессивную летальную мутацию держать в гетерозиготе с балансером, она сохраняется в линии бесконечно: гомозиготы по балансеру и гомозиготы по летали гибнут, выживают только гетерозиготы, а кроссинговер не разрушает их генотип. Благодаря балансерам в коллекциях хранятся десятки тысяч линий дрозофил с летальными мутациями.
Ещё один приём — использование транслокаций для получения мух с лишними или недостающими участками хромосом: так изучают, как доза определённых генов влияет на признак. А у растений линии с известными транслокациями используют для определения того, в какой хромосоме лежит ген: если ген наследуется сцепленно с точкой транслокации, его хромосома установлена.
26. Как определить вид мутации по схеме
В заданиях ЕГЭ вид хромосомной мутации обычно определяют по схеме порядка генов или по рисунку хромосом. Удобно задавать себе три вопроса.
- Изменилось ли число хромосом? Если да — это геномная мутация (или робертсоновская транслокация, если две хромосомы слились в одну).
- Изменилось ли число генов (длина хромосомы)? Стало меньше — делеция; стало больше, и участок повторён — дупликация.
- Если число генов то же, изменился ли их порядок или хромосома? Порядок в части хромосомы обратный — инверсия; участок оказался на другой (негомологичной) хромосоме — транслокация.
Примеры: ABCDEFG → ABCFG (делеция DE); ABCDEFG → ABCDEDEFG (дупликация DE); ABCDEFG → ABEDCFG (инверсия CDE); ABCDEFG и MNOPQ → ABCPQ и MNODEFG (реципрокная транслокация). Если в задаче изменился один нуклеотид или кодон — это уже не хромосомная, а генная мутация.
27. Как перестройки меняют расщепления по Менделю
Хромосомные перестройки влияют и на результаты скрещиваний, поэтому генетики часто узнают о них именно по «неправильным» расщеплениям.
- Полустерильность. Гетерозиготы по реципрокной транслокации образуют около половины нежизнеспособных гамет: у растений половина пыльцы стерильна, у животных уменьшен размер помёта.
- Ложное сцепление. У гетерозигот по транслокации гены, лежащие в двух разных хромосомах вблизи точек разрыва, наследуются так, как будто они сцеплены: жизнеспособны в основном гаметы с родительскими сочетаниями хромосом.
- Подавление рекомбинации. У гетерозигот по инверсии гены инвертированного участка почти не дают рекомбинантов; генетическая карта этого участка «сжимается».
- Псевдодоминирование. У гетерозигот по делеции рецессивные аллели нормального гомолога в утраченном участке проявляются.
- Отклонения от 3 : 1 и 1 : 1 могут быть вызваны гибелью гомозигот по делеции или по перестройке.
Поэтому, если в опыте наблюдается странное расщепление, низкая плодовитость или необычное сцепление, одно из первых подозрений генетика — хромосомная перестройка. Проверить подозрение можно, рассмотрев хромосомы гибридов под микроскопом: петли, кресты и кольца в мейозе прямо указывают на вид перестройки.
28. Как обнаруживают хромосомные мутации
- Дифференциальная окраска хромосом. С 1970-х гг. хромосомы окрашивают так, что на них проявляются поперечные полосы (например, G-окраска красителем Гимза после обработки ферментом). У каждой хромосомы свой узор полос, и по нему видны делеции, дупликации, инверсии и транслокации размером от нескольких миллионов пар нуклеотидов.
- Флуоресцентная гибридизация (FISH). Короткий участок ДНК, меченный светящимся красителем, связывается с комплементарным участком хромосомы. Если метка оказалась на «чужой» хромосоме — транслокация; если её нет на одной из хромосом пары — делеция.
- Хромосомный микроматричный анализ выявляет мелкие делеции и дупликации по всему геному, невидимые в микроскоп.
- Секвенирование генома находит точные места разрывов.
- Политенные хромосомы двукрылых насекомых — классический объект: на них видны даже мелкие перестройки, а петли выдают инверсии и делеции.
В медицине исследование кариотипа назначают при пороках развития у ребёнка, повторных выкидышах, бесплодии, некоторых видах лейкозов. В биологии хромосомные перестройки используют как метки для изучения родства видов и популяций.
29. Причины хромосомных мутаций
Хромосомные перестройки возникают, когда в ДНК образуются двунитевые разрывы и концы соединяются неправильно. Причины разрывов:
- ионизирующее излучение (рентгеновское, гамма-излучение) — главный внешний фактор; число перестроек в клетках крови пропорционально дозе облучения, поэтому их подсчёт используют для оценки полученной дозы у пострадавших от аварий;
- химические мутагены, вызывающие разрывы (некоторые противоопухолевые препараты, алкилирующие вещества);
- вирусы, встраивающиеся в хромосомы;
- ошибки репликации и рекомбинации, особенно в участках с повторами, где возможен неравный кроссинговер;
- укорочение теломер в стареющих клетках: незащищённые концы хромосом склеиваются друг с другом.
Организм защищается от перестроек: ферменты репарации соединяют разорванные концы, а клетки с повреждёнными хромосомами останавливают деление или погибают. Сбой этой защиты (например, при мутациях гена TP53) приводит к накоплению перестроек в опухолях.
30. Итог: что важно знать
- Хромосомные мутации — изменения строения хромосом. Причина — разрывы хромосом и неправильное воссоединение концов, а также неравный кроссинговер.
- Виды: делеция (утрата участка), дупликация (удвоение), инверсия (поворот участка на 180°), транслокация (перенос участка на негомологичную хромосому, в том числе реципрокная и робертсоновская).
- Делеции уменьшают число генов, дупликации увеличивают, инверсии и сбалансированные транслокации меняют порядок и расположение генов.
- Крупные перестройки видны в микроскоп при дифференциальной окраске; мелкие выявляют молекулярными методами.
- Синдром «кошачьего крика» — делеция короткого плеча 5-й хромосомы; хронический миелолейкоз — транслокация 9 и 22 (филадельфийская хромосома); транслокационный синдром Дауна — робертсоновская транслокация с участием 21-й хромосомы.
- Мутация Bar у дрозофилы — дупликация; число фасеток зависит от числа копий участка (эффект дозы и эффект положения).
- У гетерозигот по перестройкам в мейозе образуются петли и кресты, часть гамет несбалансирована — плодовитость снижена; инверсии подавляют кроссинговер.
- Роль в эволюции: дупликации — источник новых генов, инверсии — супергены, перестройки — изоляция и видообразование; хромосома 2 человека — результат слияния двух хромосом предков.
31. Частые ошибки
- «Хромосомная мутация — изменение числа хромосом». Изменение числа хромосом — геномная мутация; хромосомная — изменение строения хромосом.
- «При инверсии меняется число генов». Число генов не меняется; меняется порядок генов в повёрнутом участке.
- «Транслокация — обмен участками между гомологичными хромосомами». Обмен между гомологами — кроссинговер; транслокация — перенос участка на негомологичную хромосому.
- «Носитель сбалансированной транслокации болен». Обычно здоров: все гены у него есть. Но у него повышен риск рождения ребёнка с несбалансированным набором и выкидышей.
- «Все случаи синдрома Дауна — геномная мутация». Около 3–4 % случаев — транслокационная форма (хромосомная мутация родителя-носителя), при которой у ребёнка 46 хромосом.
- «Делеция и выпадение нуклеотида — одно и то же». Выпадение одного или нескольких нуклеотидов внутри гена — генная мутация; делеция участка хромосомы с многими генами — хромосомная.
- «Дупликации всегда вредны». Многие безвредны, а в эволюции дупликации — главный источник новых генов.
- «Филадельфийская хромосома передаётся по наследству». Это соматическая мутация клетки костного мозга; детям не передаётся.
- «Перестройки не влияют на признаки, если гены не утрачены». Эффект положения показывает, что перенос гена в другое окружение может изменить его работу.
- «Инверсия всегда проявляется в фенотипе». Часто не проявляется, если разрывы не повредили гены; её выдают лишь особенности мейоза и плодовитости гетерозигот.
- «Неравный кроссинговер — то же, что обычный». При неравном кроссинговере гомологи выровнены со смещением, и обмен даёт дупликацию и делецию; при обычном — хромосомы обмениваются равными участками.
32. Интересные факты
- Самую первую хромосомную перестройку у дрозофилы обнаружили не в микроскоп, а по результатам скрещиваний: в 1917 г. Бриджес заметил, что у одной линии рецессивный признак проявляется у гетерозигот, и объяснил это утратой участка хромосомы — делецией.
- Синдром «кошачьего крика» описал Жером Лежен — тот же генетик, который в 1959 г. открыл, что синдром Дауна вызван лишней 21-й хромосомой.
- Гибридный ген BCR-ABL при хроническом миелолейкозе стал первым примером мишени, для которой создали специальное лекарство; иматиниб называют «волшебной пулей» онкологии.
- У индийского мунтжака самый маленький диплоидный набор среди млекопитающих: 6 хромосом у самки и 7 у самца. Его близкий родственник, китайский мунтжак, имеет 46 хромосом; гибриды между ними, хоть и бесплодные, получены в неволе.
- Гены ольфакторных рецепторов, позволяющие различать запахи, — самое большое семейство генов человека (около 400 работающих генов и столько же «испорченных»); все они возникли путём многократных дупликаций одного предкового гена.
- По числу хромосомных перестроек (дицентрических хромосом) в лимфоцитах крови оценивают дозу облучения у людей, пострадавших при радиационных авариях, — это «биологический дозиметр».
- Политенные хромосомы слюнных желёз личинок дрозофилы в сотни раз толще обычных: в них около тысячи копий ДНК, уложенных параллельно, поэтому на них видны около 5000 дисков.
- У дрозофилы иногда встречаются гинандроморфы — мухи, у которых одна половина тела женская, а другая мужская. Они возникают, если в одном из первых делений зиготы XX одна X-хромосома теряется: потомки этой клетки (X0) развиваются как самцовые ткани.
- У самцов-турухтанов три формы, и все различия между ними — окраска воротника, размеры, поведение на току — определяются одной инверсией, хранящей вместе около сотни генов.
- Энотера, на которой де Фриз построил мутационную теорию, оказалась «чемпионом» транслокаций: у некоторых её видов все 14 хромосом в мейозе соединяются в одно кольцо.
- Синдром Вильямса, вызванный делецией около 26 генов 7-й хромосомы, сопровождается необычно доброжелательным и общительным поведением: дети с этим синдромом легко заговаривают с незнакомыми людьми.
- У обыкновенной бурозубки описано больше 70 хромосомных рас, многие из них — на территории России; некоторые расы названы по местам, где их нашли, например «новосибирская» или «московская».
- Джанет Роули, установившая, что филадельфийская хромосома — транслокация, сделала открытие на собственном кухонном столе: она раскладывала фотографии хромосом, окрашенных новым флуоресцентным методом, и сравнивала узоры полос вручную.
- Хромосомы птиц меняются в эволюции гораздо медленнее, чем хромосомы млекопитающих: у курицы и у страуса, разошедшихся больше 100 миллионов лет назад, порядок генов во многих хромосомах почти одинаков.
33. Частые вопросы
Чем хромосомная мутация отличается от генной и геномной?
Генная — изменение нуклеотидов внутри гена; хромосомная — изменение строения хромосомы (участки с многими генами утрачены, удвоены, повёрнуты или перенесены); геномная — изменение числа хромосом.
Почему делеции обычно тяжелее дупликаций?
При делеции у организма остаётся только одна копия генов утраченного участка, и для многих генов этого недостаточно; кроме того, проявляются рецессивные аллели нормального гомолога. При дупликации все гены есть, лишь некоторые — в избытке, что переносится легче.
Почему у гетерозигот по инверсии почти нет рекомбинантов?
Кроссинговер внутри инверсионной петли даёт хромосомы с делециями и дупликациями (или с двумя центромерами и без центромеры); такие гаметы или зиготы нежизнеспособны. Выживают в основном потомки, получившие нерекомбинантные хромосомы.
Как здоровые родители могут иметь ребёнка с хромосомной болезнью?
Перестройка может возникнуть заново в гамете одного из родителей (как обычно бывает при синдроме «кошачьего крика»), либо один из родителей — носитель сбалансированной транслокации или инверсии и передаёт ребёнку несбалансированный набор.
Почему у человека 46 хромосом, а у шимпанзе 48?
Две хромосомы предков человека слились в одну — 2-ю хромосому. Об этом говорят теломерные повторы в её середине и остатки второй центромеры.
Что такое неравный кроссинговер?
Кроссинговер между неправильно выровненными гомологичными хромосомами — обычно в участках с повторами. В результате одна хромосома получает удвоенный участок (дупликация), а другая теряет его (делеция).
Видны ли хромосомные мутации в микроскоп?
Крупные — да, особенно при дифференциальной окраске хромосом или на политенных хромосомах. Мелкие (микроделеции, микродупликации) выявляют молекулярными методами.
Что такое хромосома-балансер?
Хромосома дрозофилы с несколькими инверсиями, подавляющими кроссинговер, и с доминантной видимой мутацией-меткой, летальной в гомозиготе. Она позволяет сохранять в линии летальные мутации гомологичной хромосомы в гетерозиготе.
Почему и дупликация, и делеция одного участка 17-й хромосомы вызывают болезни нервов?
В участке лежит ген белка миелина PMP22, и для нормы нужны ровно две копии. Три копии (дупликация) и одна копия (делеция) нарушают строение миелиновой оболочки по-разному, вызывая две разные нейропатии.
Как де Фриз ошибся с энотерой?
Он принял за новые мутации редкие перекомбинации в необычной системе хромосом энотеры, где из-за многочисленных транслокаций хромосомы в мейозе соединяются в кольцо, а гаметы получают целые блоки хромосом. Часть «мутантов» оказалась полиплоидами.
Почему хромосомные нарушения так часто встречаются у выкидышей?
Зародыши с несбалансированным набором генов (из-за перестроек или изменения числа хромосом) обычно развиваются неправильно и гибнут на ранних стадиях. Выкидыш в таких случаях — естественный «отбор» против тяжёлых хромосомных нарушений.
Как по хромосомам определить дозу облучения?
Подсчитать в лимфоцитах крови долю клеток с перестройками, особенно с дицентрическими хромосомами, которые почти не встречаются без облучения, и сравнить с калибровочной кривой «доза — число перестроек».
Почему у плода свой гемоглобин?
Гемоглобин F (с γ-цепями) прочнее связывает кислород, чем гемоглобин A матери, и поэтому забирает кислород из её крови через плаценту. Гены γ-цепей возникли в результате дупликации предкового глобинового гена.
Что такое ложное сцепление?
Сцепленное наследование генов, лежащих в разных хромосомах, у гетерозигот по реципрокной транслокации: поскольку жизнеспособны в основном гаметы с родительскими наборами хромосом, гены вблизи точек разрыва передаются вместе, будто лежат в одной хромосоме.
34. ЕГЭ
Тема входит в элемент 3.4 кодификатора [10]: «Мутационная изменчивость. Виды мутаций: генные, хромосомные, геномные…». В части 1 встречаются задания на определение вида мутации по описанию или схеме хромосомы, на соотнесение синдромов с видами мутаций, на выбор характеристик хромосомных мутаций. В части 2 — анализ рисунков с хромосомами (делеция, дупликация, инверсия), объяснение последствий перестроек для потомства, вопросы о транслокационной форме синдрома Дауна, о роли дупликаций в эволюции.
Что обязательно знать к экзамену
- Определение и виды хромосомных мутаций; схемы делеции, дупликации, инверсии, транслокации.
- Изменение числа и порядка генов при каждом виде.
- Примеры: синдром «кошачьего крика», Bar у дрозофилы, филадельфийская хромосома.
- Отличие хромосомных мутаций от генных и геномных.
Разбор заданий части 1
Задание. Последовательность генов в хромосоме ABCDEFG изменилась на ABEDCFG. Какая мутация произошла? Ответ: инверсия.
Задание. Установите соответствие: А) ABCDEFG → ABCDCDEFG; Б) ABCDEFG → ABEFG; В) ABCDEFG → ABFEDCG; Г) часть хромосомы перенесена на негомологичную хромосому. 1) делеция; 2) дупликация; 3) инверсия; 4) транслокация. Ответ: А2, Б1, В3, Г4.
Разбор задания части 2
Задание. На рисунке четыре хромосомы с поперечными полосами: 1 — исходная, 2 — короче исходной, в ней нет двух соседних полос, 3 — длиннее исходной, эти полосы повторены дважды, 4 — той же длины, но порядок трёх полос обратный. Определите виды мутаций. Как изменилось число генов в каждом случае? Какая из хромосом может привести к проявлению рецессивных аллелей гомологичной хромосомы и почему?
Ответ. 1) Хромосома 2 — делеция (утрата участка), число генов уменьшилось. 2) Хромосома 3 — дупликация (удвоение участка), число генов увеличилось. 3) Хромосома 4 — инверсия (поворот участка на 180°), число генов не изменилось, изменился порядок. 4) Хромосома 2: при делеции напротив утраченного участка в гомологичной хромосоме остаётся одна копия генов, и рецессивные аллели проявляются (псевдодоминирование).
Задание. У самки дрозофилы с полосковидными глазами (XBXB) иногда появляются потомки с нормальными глазами и с очень узкими глазами («двойной Bar»). Объясните, как это происходит. Ответ. 1) Мутация Bar — дупликация участка X-хромосомы. 2) В мейозе гомологичные хромосомы с удвоенным участком могут конъюгировать со смещением. 3) Неравный кроссинговер даёт одну хромосому с тремя копиями участка (двойной Bar, глаза уже) и другую — с одной копией (нормальные глаза). 4) Число фасеток уменьшается с увеличением числа копий участка.
Задание. Почему дупликацию генов считают одним из путей появления новых функций в эволюции? Приведите пример. Ответ. 1) После дупликации в геноме две копии гена: одна сохраняет прежнюю функцию. 2) Вторая копия может накапливать мутации без вреда для организма. 3) Со временем она может приобрести новую функцию. 4) Пример: гены разных цепей гемоглобина (эмбриональных, плодных, взрослых) и миоглобина произошли путём дупликаций одного предкового гена.
Задание. У здоровых родителей родился второй ребёнок с синдромом Дауна, у ребёнка 46 хромосом. Как это объяснить? Ответ. 1) Это транслокационная форма синдрома Дауна: у ребёнка две обычные 21-е хромосомы и третья — слитая с другой акроцентрической хромосомой (робертсоновская транслокация). 2) Один из родителей — носитель сбалансированной робертсоновской транслокации (45 хромосом), сам здоров. 3) При образовании гамет он может передать ребёнку слитую хромосому вместе с обычной 21-й, что даёт тройную дозу 21-й хромосомы. 4) Поэтому в такой семье риск повторения выше, чем при обычной трисомии.
35. Для олимпиад
Картирование генов с помощью делеций
Если у мухи-гетерозиготы по делеции рецессивный признак проявляется (псевдодоминирование), ген лежит в утраченном участке. Пусть есть три перекрывающиеся делеции: Df1 утратила районы 1–4, Df2 — районы 3–6, Df3 — районы 5–8. Рецессивная мутация m проявляется в сочетании с Df1 и Df2, но не с Df3. Ген лежит в районах, общих для Df1 и Df2 и отсутствующих в Df3: это районы 3–4. Метод позволяет быстро сузить положение гена до небольшого участка хромосомы.
Кроссинговер в инверсионной петле
Пусть хромосома с генами A B C D • E F (• — центромера) гетерозиготна по парацентрической инверсии A D C B • E F. Кроссинговер между генами B и C внутри петли даёт две рекомбинантные хроматиды: одну с двумя центромерами (дицентрическую), которая в анафазе разрывается, и одну без центромеры (ацентрическую), которая теряется. Гаметы с такими хроматидами нежизнеспособны. При перицентрической инверсии (центромера внутри повёрнутого участка) кроссинговер в петле даёт хроматиды с одной центромерой, но с дупликацией одних концевых участков и делецией других. В обоих случаях рекомбинанты практически не выживают.
Расхождение хромосом у носителя реципрокной транслокации
У гетерозиготы по транслокации между хромосомами 1 и 2 в мейозе образуется квадривалент из четырёх хромосом: 1, 2, 12 (хромосома 1 с участком 2) и 21. При альтернативном расхождении к одному полюсу идут обе нормальные хромосомы (1 и 2), к другому — обе перестроенные (12 и 21): обе гаметы сбалансированы. При смежном расхождении к полюсу идут 1 и 21 или 2 и 12: гаметы несут дупликацию одного участка и делецию другого. Если оба варианта равновероятны, около половины гамет несбалансированы, что объясняет снижение плодовитости носителей.
Эффект дозы и эффект положения у Bar
Число фасеток у самок дрозофилы при 25 °C в опытах Стёртеванта: дикий тип (+/+) — около 780, B/+ — около 360, B/B — около 70, BB/+ (одна хромосома с тремя копиями участка, другая — с одной) — около 45. В B/B и BB/+ одинаковое число копий участка (по четыре), но фасеток меньше у BB/+: важно не только число копий, но и то, что три копии находятся в одной хромосоме, — это и есть эффект положения.
Сцепление генов после транслокации
До транслокации гены A (хромосома 1) и D (хромосома 2) наследовались независимо: дигетерозигота давала четыре типа гамет поровну. У гомозиготы по транслокации, перенёсшей участок с геном D на хромосому 1 рядом с геном A, гены оказываются в одной хромосоме и наследуются сцепленно: в анализирующем скрещивании преобладают два родительских класса, а рекомбинантов — столько, какова частота кроссинговера между ними. Именно так Бриджес в 1923 г. впервые обнаружил транслокацию — по появлению сцепления между генами, лежавшими раньше в разных группах сцепления.
Сколько хромосом у гибрида, если родители различаются слиянием
У домовой мыши стандартный набор 2n = 40 (все хромосомы акроцентрические). В популяции, где произошло 9 робертсоновских слияний, 2n = 40 − 9 = 31? Нет: каждое слияние уменьшает диплоидный набор на две хромосомы у гомозиготы (сливаются по две хромосомы в каждом из двух гомологичных наборов) — 2n = 40 − 18 = 22. У гибрида такой мыши со стандартной гаплоидный набор от одного родителя 20 хромосом, от другого 11, итого 31; в мейозе у него образуются девять тривалентов (одна слитая хромосома + две свободные), что снижает плодовитость.
Робертсоновская транслокация и риск для потомства
Носитель робертсоновской транслокации 14/21 образует гаметы шести типов, но жизнеспособны лишь часть зигот. Теоретически при нормальном втором родителе возможны дети: с нормальным кариотипом, сбалансированные носители (как родитель), с транслокационной трисомией 21 (синдром Дауна), а также зиготы с моносомией 21, моносомией и трисомией 14, которые обычно гибнут до рождения. Наблюдаемый риск синдрома Дауна у ребёнка составляет около 10–15 % для матерей-носительниц и 1–2 % для отцов-носителей — заметно меньше теоретической трети, потому что несбалансированные гаметы и зиготы часто отсеиваются.
36. Задания с разбором
Задание 1
Выберите три вида хромосомных мутаций: 1) делеция; 2) полиплоидия; 3) инверсия; 4) замена нуклеотида; 5) транслокация; 6) трисомия.
Ответ
1, 3, 5.
Задание 2
Последовательность генов в хромосоме изменилась с ABCDEF на ABCCDEF. Какая мутация произошла? Как изменилось число генов?
Ответ
Дупликация (удвоение гена C); число генов увеличилось.
Задание 3
Как называется мутация, при которой участок хромосомы поворачивается на 180°? Меняется ли при этом число генов?
Ответ
Инверсия; число генов не меняется, меняется их порядок.
Задание 4
Установите соответствие: А) синдром «кошачьего крика»; Б) хронический миелолейкоз; В) мутация Bar у дрозофилы; Г) происхождение 2-й хромосомы человека. 1) делеция; 2) реципрокная транслокация; 3) дупликация; 4) слияние хромосом.
Ответ
А1, Б2, В3, Г4.
Задание 5
Найдите ошибки и исправьте. 1) Хромосомные мутации — изменения строения хромосом. 2) При делеции число генов увеличивается. 3) Транслокация — перенос участка на гомологичную хромосому. 4) Крупные хромосомные мутации видны в световой микроскоп. 5) Инверсии подавляют кроссинговер у гетерозигот.
Ответ
Ошибки в 2 и 3. 2) При делеции число генов уменьшается. 3) Транслокация — перенос участка на негомологичную хромосому.
Задание 6
Почему при делеции в одной хромосоме может проявиться рецессивный признак?
Ответ
Напротив утраченного участка в гомологичной хромосоме остаётся единственная копия гена; если это рецессивный аллель, доминантного аллеля, подавляющего его, нет, и признак проявляется (псевдодоминирование).
Задание 7
Почему дупликации считают важным источником новых генов в эволюции?
Ответ
После удвоения одна копия гена продолжает выполнять прежнюю функцию, а другая может накапливать мутации без вреда для организма и со временем приобрести новую функцию; так возникли семейства генов глобинов, обонятельных рецепторов и др.
Задание 8
Как на препаратах политенных хромосом обнаруживают инверсию у гетерозиготы?
Ответ
Гомологи тесно соединены диск к диску; в районе инверсии они образуют петлю, так как одноимённые диски могут совпасть, только если участки изогнутся навстречу друг другу; длина хромосом не меняется.
Задание 9
Почему носитель сбалансированной транслокации обычно здоров, но имеет повышенный риск выкидышей?
Ответ
У него есть все гены в нужном числе копий, только часть их расположена в других хромосомах. В мейозе же часть гамет получает несбалансированный набор (с лишними и недостающими участками); зиготы из таких гамет часто гибнут.
Задание 10
Как была получена филадельфийская хромосома и к какому виду мутаций по типу клеток она относится?
Ответ
В результате реципрокной транслокации между 9-й и 22-й хромосомами в клетке костного мозга; это соматическая мутация, детям не передаётся.
Задание 11
Сколько хромосом у здорового носителя робертсоновской транслокации 14/21? Почему он здоров?
Ответ
45. Слились длинные плечи 14-й и 21-й хромосом; утрачены лишь короткие плечи, содержащие повторяющиеся гены рибосомной РНК, которые есть и в других хромосомах.
Задание 12
Какие факторы вызывают хромосомные мутации?
Ответ
Ионизирующее излучение, химические мутагены, вызывающие разрывы ДНК, вирусы, ошибки репликации и рекомбинации (неравный кроссинговер), укорочение теломер.
Задание 13
Как объяснить, что у человека 46 хромосом, а у шимпанзе 48? Какие доказательства этого есть?
Ответ
Две хромосомы предков человека слились в одну — 2-ю. Доказательства: рисунок полос 2-й хромосомы совпадает с двумя хромосомами шимпанзе; в её середине теломерные повторы, обращённые друг к другу; остатки второй центромеры.
Задание 14
Чем объясняется уменьшение числа фасеток в глазу у мух Bar?
Ответ
Дупликацией участка 16A X-хромосомы: чем больше копий участка, тем меньше фасеток (эффект дозы генов); важно и расположение копий (эффект положения).
Задание 15
Как может возникнуть одновременно дупликация в одной хромосоме и делеция в другой?
Ответ
При неравном кроссинговере: гомологи конъюгируют со смещением, и обмен участками разной длины даёт одну хромосому с лишним участком и другую — без него.
Задание 16
Почему гибриды между формами, различающимися несколькими крупными перестройками, часто бесплодны?
Ответ
В мейозе у гетерозигот по перестройкам нарушается конъюгация и расхождение хромосом, образуется много несбалансированных гамет с недостающими и лишними участками; поэтому плодовитость резко снижается. Это способствует репродуктивной изоляции.
Задание 17
Сравните инверсию и транслокацию по двум признакам.
Ответ
Инверсия — изменение в пределах одной хромосомы (поворот участка), транслокация — перенос участка на негомологичную хромосому. При инверсии меняется порядок генов в хромосоме, при транслокации — расположение генов в разных хромосомах (группы сцепления).
Задание 18
Для чего в медицине исследуют кариотип родителей, у которых было несколько выкидышей?
Ответ
Чтобы выявить носительство сбалансированных транслокаций или инверсий, при которых образуются несбалансированные гаметы и зародыши часто гибнут; это помогает оценить риск и спланировать пренатальную диагностику.
Задание 19 (олимпиадное)
Рецессивная мутация m проявляется у мух с делециями Df1 (районы 10–15) и Df2 (районы 13–18), но не с Df3 (районы 14–20). В каком районе лежит ген?
Ответ
Ген в районах, общих для Df1 и Df2 (13–15), но не входящих в Df3 (14–20): район 13.
Задание 20 (олимпиадное)
Самки B/B имеют около 70 фасеток, самки BB/+ (три копии в одной хромосоме и одна в другой) — около 45. Число копий участка одинаково. Как называется явление и что оно доказывает?
Ответ
Эффект положения: признак зависит не только от числа копий генов, но и от их расположения в хромосомах.
Литература
- Bridges C. B. The Bar “gene” a duplication // Science. 1936. Vol. 83. P. 210–211. DOI: 10.1126/science.83.2148.210.
- Sturtevant A. H. The effects of unequal crossing over at the Bar locus in Drosophila // Genetics. 1925. Vol. 10. P. 117–147. DOI: 10.1093/genetics/10.2.117.
- Ohno S. Evolution by gene duplication. Berlin; New York: Springer-Verlag, 1970.
- Perry G. H., Dominy N. J., Claw K. G. et al. Diet and the evolution of human amylase gene copy number variation // Nature Genetics. 2007. Vol. 39. P. 1256–1260. DOI: 10.1038/ng2123.
- Painter T. S. A new method for the study of chromosome rearrangements and the plotting of chromosome maps // Science. 1933. Vol. 78. P. 585–586. DOI: 10.1126/science.78.2034.585.
- Dobzhansky Th. Genetics of natural populations. XIV. A response of certain gene arrangements in the third chromosome of Drosophila pseudoobscura to natural selection // Genetics. 1947. Vol. 32. P. 142–160. DOI: 10.1093/genetics/32.2.142.
- Rowley J. D. A new consistent chromosomal abnormality in chronic myelogenous leukaemia identified by quinacrine fluorescence and Giemsa staining // Nature. 1973. Vol. 243. P. 290–293. DOI: 10.1038/243290a0.
- Druker B. J., Talpaz M., Resta D. J. et al. Efficacy and safety of a specific inhibitor of the BCR-ABL tyrosine kinase in chronic myeloid leukemia // The New England Journal of Medicine. 2001. Vol. 344. P. 1031–1037. DOI: 10.1056/NEJM200104053441401.
- IJdo J. W., Baldini A., Ward D. C. et al. Origin of human chromosome 2: an ancestral telomere-telomere fusion // Proceedings of the National Academy of Sciences of the USA. 1991. Vol. 88. P. 9051–9055. DOI: 10.1073/pnas.88.20.9051.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…