
В 1915 году вышла книга со скромным названием «Механизм менделевской наследственности». Её написали Т. Морган и трое его учеников, Стёртевант, Мёллер и Бриджес, и в ней впервые было последовательно изложено учение, которое называют хромосомной теорией наследственности [1]. Его главная мысль проста: гены — это участки хромосом, расположенные в них друг за другом, как бусины на нитке. Из этой мысли вытекает всё остальное — законы Менделя, сцепление генов, кроссинговер, генетические карты. Хромосомная теория стала фундаментом классической генетики, а через восемьдесят лет привела к прочтению генома человека, где у каждого гена есть точный «адрес» на хромосоме.
Это десятая статья серии о генетике (предыдущие — «Цитологические основы дигибридного скрещивания» и «Сцепленное наследование: работы Моргана»). В ней — как сложилась хромосомная теория и на каких доказательствах она стоит, все её положения, генетические карты и как их строят, двойной кроссинговер и интерференция, цитологические и физические карты, границы теории и задачи на построение карт.
- 1. Морган: от скептика к создателю теории
- 2. Путь к теории: от параллелизма к доказательствам
- 3. Положения хромосомной теории наследственности
- 4. Хромосомное определение пола — часть теории
- 5. Генетические карты
- 6. Двойной кроссинговер и интерференция
- 7. Перестройки хромосом и эффект положения
- 8. Как генетики используют подавление кроссинговера
- 9. Цитологические карты: гены, которые можно увидеть
- 10. Кариотип и группы сцепления
- 11. Кариотип и эволюция: история хромосомы 2
- 12. Хромосомная теория у растений: кукуруза
- 13. От генетических карт к геному человека
- 14. Делим ли ген? От бусин к нуклеотидам
- 15. Хромосомная теория в России
- 16. Как строят карты у человека
- 17. Где применяют генетические карты
- 18. Значение хромосомной теории и её границы
- 19. Как решать задачи на генетические карты
- 20. Разборы типовых задач
- 21. Итог: что важно знать
- 22. Частые ошибки
- 23. Интересные факты
- 24. Частые вопросы
- 25. ЕГЭ
- 26. Для олимпиад
- 27. Задания с разбором
- Литература
1. Морган: от скептика к создателю теории
Есть ирония в том, что хромосомную теорию создал человек, который поначалу в неё не верил. В 1909 году Морган публично сомневался и в законах Менделя, и в хромосомной гипотезе. Ему, эмбриологу, казалось, что представление о «частицах наследственности» слишком упрощает развитие организма, а доминирование и расщепление — слишком искусственные понятия. Он считал, что признак, возможно, определяется не отдельной частицей, а состоянием всей клетки.
Морган взялся за дрозофилу не для того, чтобы подтвердить Менделя, а чтобы увидеть, как возникают новые формы, — он интересовался теорией мутаций Х. де Фриза. Но когда в 1910 году появился белоглазый самец и наследование белоглазости в точности совпало с распределением X-хромосом, Морган изменил мнение. Он был прежде всего экспериментатором и следовал за фактами. За пять лет он и его ученики собрали столько данных, что хромосомная теория перестала быть гипотезой.
Этот поворот — хороший урок научного метода. Морган не защищал своё прежнее мнение, а проверял его опытом. А его скептицизм сделал работу только строже: прежде чем принять теорию, он требовал прямых доказательств, и именно поэтому в лаборатории появились опыты, которые убедили всех остальных.
2. Путь к теории: от параллелизма к доказательствам
К 1900 году, когда переоткрыли законы Менделя, цитологи уже хорошо знали поведение хромосом в митозе, мейозе и при оплодотворении. Сравнить одно с другим было естественно, и в 1902–1903 годах это сделали У. Сеттон и Т. Бовери [2], [3]. Они обратили внимание на поразительное сходство.
| Свойство | Хромосомы | Менделевские факторы (гены) |
|---|---|---|
| парность | в диплоидной клетке — пары гомологов | признак определяется парой аллелей |
| происхождение пары | один гомолог от матери, другой от отца | один аллель от матери, другой от отца |
| расхождение при образовании гамет | гомологи расходятся в разные клетки | аллели пары попадают в разные гаметы |
| независимость | разные пары гомологов расходятся независимо | гены разных пар наследуются независимо |
| восстановление пары | при оплодотворении восстанавливается диплоидный набор | зигота получает по аллелю от каждой гаметы |
| постоянство | хромосомы сохраняют индивидуальность | гены передаются без изменений |
Параллелизм был убедительным, но оставался лишь сходством. Чтобы превратить гипотезу в теорию, нужны были прямые доказательства: конкретный ген должен был оказаться связан с конкретной хромосомой. Их получили в 1910–1930-х годах.
| Год | Доказательство | Что показало |
|---|---|---|
| 1910 | Морган: белоглазость дрозофилы наследуется вместе с X-хромосомой | первый ген, связанный с определённой хромосомой |
| 1911–1915 | Морган и ученики: гены дрозофилы образуют 4 группы сцепления | число групп сцепления равно числу пар хромосом |
| 1913 | Стёртевант: первая генетическая карта | гены расположены в хромосоме линейно |
| 1913 | Каротерс: независимое расхождение пар хромосом у кузнечика | цитологическая основа третьего закона Менделя |
| 1916 | Бриджес: нерасхождение X-хромосом | генетические исключения точно совпадают с хромосомными |
| 1931 | Крейтон и Мак-Клинток, Штерн: генетический и цитологический кроссинговер совпадают | кроссинговер — физический обмен участками хромосом |
| 1933–1935 | Пейнтер, Бриджес: карты политенных хромосом | гены можно «увидеть» в определённых дисках хромосом |
Доказательство Бриджеса особенно элегантно [4]. Он скрещивал белоглазых самок дрозофилы с красноглазыми самцами. По законам наследования, сцепленного с полом, все дочери должны быть красноглазыми, все сыновья — белоглазыми. Но примерно одна муха из двух тысяч была «исключением»: белоглазая дочь или красноглазый сын. Бриджес предположил, что у матери-«исключительницы» X-хромосомы не разошлись в мейозе, и предсказал, какие хромосомы должны быть у исключительных мух: у белоглазых дочерей — две X-хромосомы матери и Y-хромосома отца (XXY), у красноглазых сыновей — одна X-хромосома отца и ни одной половой хромосомы от матери (XO). Под микроскопом он нашёл именно эти наборы. Совпадение необычного наследования с необычными хромосомами не оставляло сомнений: ген окраски глаз находится в X-хромосоме.
3. Положения хромосомной теории наследственности
Хромосомная теория объединила данные генетики (результаты скрещиваний) и цитологии (поведение хромосом). Её основные положения в той форме, в которой их требует школьная программа, таковы.
- Гены расположены в хромосомах. Хромосомы — материальные носители наследственности.
- Гены в хромосоме расположены линейно, в определённой последовательности; каждый ген занимает определённое место — локус.
- Аллельные гены находятся в одинаковых локусах гомологичных хромосом.
- Гены одной хромосомы образуют группу сцепления и наследуются преимущественно совместно; число групп сцепления равно гаплоидному числу хромосом.
- Сцепление генов нарушается кроссинговером — обменом участками гомологичных хромосом в профазе I мейоза.
- Частота кроссинговера пропорциональна расстоянию между генами; 1 % кроссинговера принят за единицу расстояния — морганиду.
- Каждый вид имеет характерный набор хромосом — кариотип, постоянный по числу, размеру и форме хромосом.
| Положение | На чём основано |
|---|---|
| гены в хромосомах | параллелизм поведения генов и хромосом; сцепление с полом; нерасхождение (Бриджес) |
| линейное расположение, локус | расстояния между тремя генами складываются; генетические карты |
| аллели в одинаковых локусах гомологов | расщепление при расхождении гомологов в анафазе I |
| группы сцепления, их число = n | у дрозофилы 4 группы, у кукурузы 10, у гороха 7 |
| кроссинговер нарушает сцепление | кроссоверные классы в потомстве; хиазмы; опыт Крейтон и Мак-Клинток |
| частота кроссинговера ∼ расстоянию | согласованность частот при построении карт |
| постоянство кариотипа | одинаковые наборы хромосом у особей одного вида при кариотипировании |
Хромосомная теория наследственности — учение о том, что гены расположены в хромосомах в линейном порядке, а закономерности наследования признаков определяются поведением хромосом при мейозе и оплодотворении. Основные положения сформулированы Т. Морганом и его школой в 1910–1915 годах.
Иногда в число положений включают и закон независимого наследования (гены разных групп сцепления наследуются независимо), и указание на то, что кроссинговер — источник комбинативной изменчивости. По сути, хромосомная теория не заменяет законы Менделя, а объясняет их и уточняет границы их применимости: законы расщепления и единообразия выполняются для всех ядерных генов, а закон независимого наследования — только для генов разных групп сцепления.
Как положения теории формулируют в заданиях
| Формулировка в задании | Верна ли | Почему |
|---|---|---|
| «гены расположены в хромосомах в линейном порядке» | да | основное положение теории |
| «число групп сцепления равно диплоидному набору хромосом» | нет | гаплоидному |
| «гены одной хромосомы наследуются независимо» | нет | наследуются сцепленно |
| «частота кроссинговера пропорциональна расстоянию между генами» | да | основа генетических карт |
| «аллельные гены лежат в разных парах хромосом» | нет | в одинаковых локусах гомологов одной пары |
| «кроссинговер нарушает сцепление генов» | да | создаёт новые сочетания аллелей |
| «каждый вид характеризуется определённым кариотипом» | да | постоянство набора хромосом |
4. Хромосомное определение пола — часть теории
Одним из первых успехов хромосомной теории стало объяснение того, как определяется пол. В 1905 году американские цитологи Нетти Стивенс и Эдмунд Уилсон независимо обнаружили у насекомых, что самцы и самки различаются по хромосомам. У мучного хрущака Стивенс нашла у самцов пару неравных хромосом — крупную и мелкую (позже их назвали X и Y), а у самок — две одинаковые крупные. Уилсон описал у некоторых клопов самцов с одной непарной хромосомой (X0). Так стало понятно, что пол — это тоже «признак», определяемый хромосомами, и что отношение 1 : 1 полов в потомстве — результат расщепления, как в анализирующем скрещивании: гетерогаметный пол даёт гаметы двух типов поровну, гомогаметный — одного.
| Тип определения пола | Самки | Самцы | Примеры |
|---|---|---|---|
| XY | XX | XY | млекопитающие, дрозофила, многие растения |
| ZW | ZW | ZZ | птицы, бабочки, некоторые рептилии |
| X0 | XX | X0 | некоторые прямокрылые и клопы |
Именно хромосомное определение пола позволило Моргану в 1910 году связать ген белоглазости с X-хромосомой: признак распределялся между полами так же, как X-хромосомы. Подробно о генетике пола — в серии статей, начиная со статьи «Генетика пола».
5. Генетические карты
Генетическая карта — схема взаимного расположения генов одной группы сцепления с указанием расстояний между ними в морганидах. Идея карт пришла в голову студенту Моргана Альфреду Стёртеванту в конце 1911 года. Морган говорил, что частота кроссинговера, вероятно, отражает расстояние между генами. Стёртевант понял, что если это так, то частоты для трёх генов должны быть связаны: расстояние между крайними генами должно равняться сумме расстояний от каждого из них до среднего. Он взял данные о шести генах X-хромосомы дрозофилы и проверил — и всё сошлось [5].
Принцип построения карты трёх генов таков. В анализирующих скрещиваниях определяют частоты кроссинговера для всех трёх пар. Наибольшая частота соответствует паре крайних генов. Третий ген лежит между ними, и сумма расстояний от него до крайних генов приблизительно равна расстоянию между крайними.
| Шаг | Действие | Пример для генов A, B, C |
|---|---|---|
| 1 | определить частоты кроссинговера для всех пар генов | A–B = 12 %, A–C = 5 %, B–C = 7 % |
| 2 | найти наибольшую частоту — это пара крайних генов | A–B = 12 %: крайние A и B |
| 3 | поместить третий ген между крайними | C между A и B |
| 4 | проверить: сумма двух меньших расстояний равна наибольшему | 5 + 7 = 12 — верно |
| 5 | нанести гены на линию в масштабе | A —5— C —7— B |
| Ген | A | C | B | ||
|---|---|---|---|---|---|
| положение на карте, сМ | 0 | → 5 → | 5 | → 7 → | 12 |
Если появляется четвёртый ген, его расстояния до уже нанесённых генов определяют его место однозначно. Пусть ген D даёт с A частоту 15 %, с C — 10 %, с B — 3 %. Тогда D лежит за геном B: A —5— C —7— B —3— D (5 + 7 + 3 = 15, 7 + 3 = 10). Так, ген за геном, строят карту всей группы сцепления. Начало отсчёта (нулевую точку) выбирают у одного из крайних генов.
Карта Стёртеванта была скромной: шесть генов на одной хромосоме. Сегодня генетические карты дрозофилы содержат тысячи генов, а карты человека — миллионы ДНК-меток, расположенных через каждые несколько тысяч пар нуклеотидов. Но принцип остался тем же: порядок и расстояния определяют по частоте рекомбинации.
Главное условие карты — линейность. То, что расстояния складываются (A–C + C–B = A–B), возможно только если гены лежат на линии. Если бы гены были расположены, например, на плоскости или в виде клубка, такой простой связи не было бы. Поэтому сама возможность построить карту доказывает линейное расположение генов в хромосоме.
6. Двойной кроссинговер и интерференция
Расстояния на карте складываются точно только для близких генов. Для далёких генов наблюдаемая частота кроссинговера между крайними оказывается меньше суммы расстояний через промежуточные гены. Причина — двойной кроссинговер.
Представим три гена A, B, C, расположенные в хромосоме в таком порядке, и тригетерозиготу ABC//abc. Если между A и B прошёл один обмен, а между B и C — другой, то на хроматиде получится сочетание AbC: крайние гены A и C снова в исходном сочетании, а средний ген «перевернулся». Если следить только за генами A и C, такой двойной обмен не будет заметен — он выглядит как отсутствие обмена. Поэтому прямое измерение частоты кроссинговера между далёкими генами занижает расстояние.
| Число обменов между A и C | Сочетание A и C на хроматиде | Заметно ли по A и C |
|---|---|---|
| 0 | AC (исходное) | — |
| 1 | Ac или aC (новое) | да |
| 2 | AC (исходное) | нет |
| 3 | Ac или aC (новое) | да |
Как обнаружить двойные кроссоверы? Нужен третий ген между двумя изучаемыми. В трёхточечном анализирующем скрещивании (ABC//abc × abc//abc) получается восемь классов потомков: два некроссоверных (самых многочисленных), четыре с одиночными обменами и два с двойными обменами (самых малочисленных). У двойных кроссоверов «переставлен» средний ген — так и определяют, какой ген лежит посередине.
| Класс потомства (пример, всего 1000) | Происхождение | Число |
|---|---|---|
| ABC, abc | некроссоверные | 370 + 380 |
| Abc, aBC | одиночный обмен между A и B | 45 + 47 |
| ABc, abC | одиночный обмен между B и C | 73 + 77 |
| AbC, aBc | двойной обмен | 4 + 4 |
По этим данным расстояние A–B = (45 + 47 + 4 + 4) / 1000 = 10 %, B–C = (73 + 77 + 4 + 4) / 1000 = 15,8 %. Двойные кроссоверы учитывают в обоих интервалах, потому что в каждом из них был обмен. Прямая частота рекомбинации между A и C, если считать только по крайним генам, — (45 + 47 + 73 + 77) / 1000 = 24,2 %, тогда как сумма расстояний 10 + 15,8 = 25,8. Разница — удвоенная доля двойных кроссоверов (2 × 0,8 % = 1,6 %).
Если бы обмены в двух интервалах происходили независимо, двойных кроссоверов было бы 0,10 × 0,158 ≈ 1,6 %, то есть около 16 из 1000. Наблюдается 8 — вдвое меньше. Явление, при котором один кроссинговер снижает вероятность другого поблизости, назвал интерференцией Г. Мёллер в 1916 году [6]. Её меру называют коэффициентом совпадения: отношение наблюдаемого числа двойных кроссоверов к ожидаемому (здесь 8/16 = 0,5). На коротких расстояниях интерференция почти полная, и двойных обменов практически нет.
Почему расстояния на карте бывают больше 50. Частота рекомбинации, измеренная напрямую, не превышает 50 %. Но карту строят суммированием коротких расстояний между соседними генами, в которых двойные обмены редки. Поэтому длина карты целой хромосомы может составлять 100–300 сантиморганид: это сумма, а не прямое измерение.
Английский генетик Дж. Холдейн в 1919 году вывел формулу (картирующую функцию), позволяющую пересчитать наблюдаемую частоту рекомбинации в «истинное» расстояние с учётом многократных обменов. Для коротких расстояний формула даёт почти то же, что и простая частота, а для больших — заметно большие значения. Картирующие функции — тема для олимпиад; на ЕГЭ расстояние равно частоте кроссинговера.
7. Перестройки хромосом и эффект положения
Если гены лежат в хромосоме как бусины на нитке, то изменения самой «нитки» должны менять наследование. Это предсказание тоже подтвердилось. Генетики описали четыре основных типа хромосомных перестроек, и каждая проявилась в скрещиваниях именно так, как требовала теория.
| Перестройка | Что происходит с хромосомой | Генетическое следствие |
|---|---|---|
| делеция (нехватка) | утрачен участок | рецессивные аллели в гомологе проявляются («псевдодоминирование»); гомозиготы по крупной делеции гибнут |
| дупликация | участок повторён | изменение «дозы» генов; материал для эволюции новых генов |
| инверсия | участок перевёрнут на 180° | порядок генов на карте меняется на обратный; в гетерозиготе подавлены кроссоверные гаметы |
| транслокация | участок перенесён в негомологичную хромосому | гены разных групп сцепления становятся сцепленными; снижается плодовитость гетерозигот |
Особенно поучительна история гена Bar дрозофилы, вызывающего узкие полосковидные глаза. В 1925 году Стёртевант показал, что у мух этой линии иногда появляются потомки с ещё более узкими глазами или, наоборот, с нормальными, и что это результат неравного кроссинговера: одна хромосома получает две копии участка, другая теряет его [7]. Позже на политенных хромосомах увидели, что участок Bar — это удвоенная группа дисков. Стёртевант обнаружил и ещё одну удивительную вещь: мухи с тремя копиями участка в одной хромосоме и одной в другой имели более узкие глаза, чем мухи с двумя копиями в каждой хромосоме, хотя общее число копий одинаково. Проявление гена зависело от его положения — это назвали эффектом положения. Так хромосомная теория из простой «схемы бусин» превратилась в учение о том, что расположение генов само по себе важно для их работы.
8. Как генетики используют подавление кроссинговера
Знание того, как работает кроссинговер, позволило генетикам создать удобные инструменты. Самый известный — хромосомы-балансеры дрозофилы. Это специально отобранные хромосомы с несколькими инверсиями, которые подавляют появление кроссоверных потомков, и с доминантным маркерным геном (например, изменяющим форму крыльев), а также с рецессивной летальной мутацией.
Зачем это нужно? Допустим, генетик получил новую рецессивную летальную мутацию: гомозиготы по ней гибнут, и сохранить её можно только в гетерозиготе. Если держать её в обычной линии, кроссинговер и отбор быстро её «потеряют». Если же скрестить носителей с мухами, несущими балансер, мутантная хромосома будет передаваться в паре с балансером без рекомбинации. Гомозиготы по балансеру гибнут из-за его собственной летальной мутации, гомозиготы по новой мутации — из-за неё, и выживают только гетерозиготы, которых легко узнать по доминантному маркеру. Линия сохраняется веками без всякого отбора. Без хромосомной теории придумать такую систему было бы невозможно.
9. Цитологические карты: гены, которые можно увидеть
Генетическая карта показывает порядок генов и расстояния в морганидах, но не говорит, где именно ген лежит в хромосоме, которую видно в микроскоп. Связать два вида карт помогли гигантские политенные хромосомы из слюнных желёз личинок дрозофилы. В этих клетках ДНК многократно удваивается без деления, и сотни копий каждой хромосомы лежат рядом, как волокна в канате. Хромосомы становятся в сотни раз толще обычных, и на них видны поперечные тёмные полосы — диски.
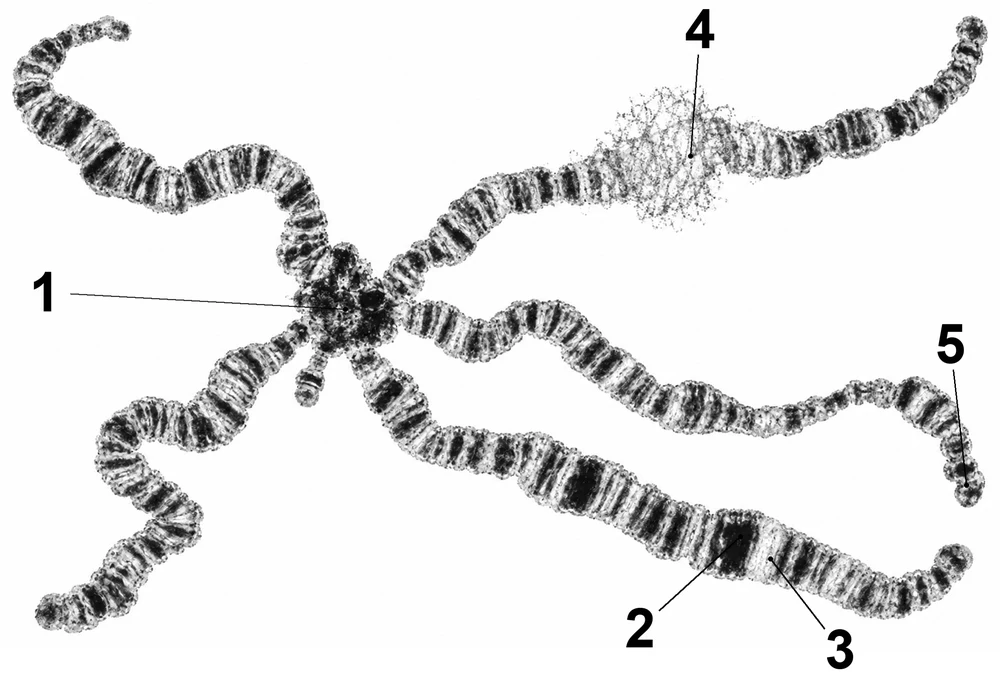
В 1933 году американец Т. Пейнтер предложил использовать политенные хромосомы для изучения перестроек и построения хромосомных карт [8], а К. Бриджес в 1935 году опубликовал подробнейшие карты дисков [9]. Рисунок дисков постоянен: каждый участок хромосомы можно узнать «в лицо». Если у мухи нет участка хромосомы (делеция), на политенной хромосоме не хватает определённых дисков, а у мухи проявляется рецессивный признак, если вторая хромосома несёт рецессивный аллель гена этого участка. Так ген «привязывают» к конкретным дискам.
На политенных хромосомах видны и вздутия — пуфы. Немецкие цитологи В. Беерман и У. Клевер в 1950–1960-х годах показали, что пуфы — это участки, где хромосома «распущена» и с её ДНК идёт активная транскрипция. Рисунок пуфов меняется в ходе развития личинки: под действием гормона линьки одни пуфы появляются, другие исчезают. Это было одно из первых прямых наблюдений того, что гены «включаются» и «выключаются» в определённое время, — мост между хромосомной теорией и молекулярной генетикой.
Как читать рисунок политенной хромосомы в заданиях? Найдите хромоцентр — общее место, где сходятся центромерные участки всех хромосом; от него расходятся плечи хромосом. На каждом плече — чередующиеся тёмные диски и светлые промежутки; вздутие с рыхлой структурой — пуф. Каждая «нить» на рисунке — не одна молекула ДНК, а пучок из сотен копий, причём гомологичные хромосомы в этих клетках тесно соединены и выглядят как одна.
Сравнение генетических и цитологических карт дало важный результат. Порядок генов на обеих картах совпадает — это ещё одно доказательство линейного расположения генов. Но расстояния не совпадают: в одних участках хромосомы одна морганида соответствует большому отрезку, в других — маленькому. Это потому, что частота кроссинговера неодинакова вдоль хромосомы: около центромер обмены редки, в других местах часты. Генетическая карта — это карта вероятности обменов, а не линейка.
| Вид карты | Что показывает | Единица расстояния | Как строят |
|---|---|---|---|
| генетическая (сцепления) | порядок генов и частоту рекомбинации между ними | морганида (сантиморганида) | анализирующие скрещивания, родословные |
| цитологическая | положение генов относительно видимых участков хромосом (дисков, полос) | номер диска или полосы | делеции, перестройки, гибридизация ДНК на хромосомах |
| физическая | точное положение генов в последовательности ДНК | пары нуклеотидов | секвенирование генома |
10. Кариотип и группы сцепления
Одно из положений хромосомной теории — постоянство кариотипа. У каждого вида характерный набор хромосом, одинаковый у всех нормальных особей: определённое число, форма и размер. У дрозофилы 2n = 8: две пары крупных V-образных хромосом (вторая и третья), пара палочковидных (половые X-хромосомы у самки или X и Y у самца) и пара крошечных точечных (четвёртая).
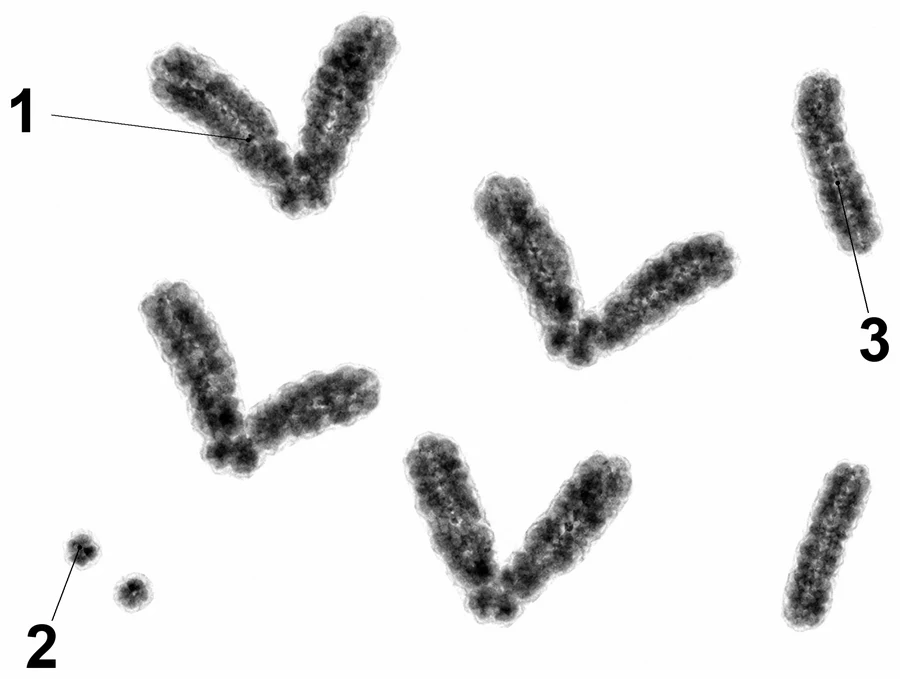
Группы сцепления точно отражают этот кариотип. У дрозофилы четыре группы: две крупные (гены второй и третьей хромосом), одна средняя (гены X-хромосомы) и одна совсем маленькая — несколько десятков генов четвёртой хромосомы. Размер группы сцепления соответствует размеру хромосомы — это ещё одно подтверждение того, что гены лежат в хромосомах.
У человека 23 группы сцепления (у мужчин 24, если считать X и Y отдельно). Хромосомы человека пронумерованы от 1 до 22 примерно по убыванию размера, и число генов в них в целом тоже убывает: в хромосоме 1 — около двух тысяч генов, кодирующих белки, в хромосоме 21 — около двухсот, в Y-хромосоме — несколько десятков. Именно поэтому трисомия по маленькой хромосоме 21 совместима с жизнью, а по крупным хромосомам — нет.
11. Кариотип и эволюция: история хромосомы 2
Постоянство кариотипа — свойство вида, но в ходе эволюции кариотипы меняются, и хромосомная теория позволяет проследить эти изменения. Самый известный пример — хромосома 2 человека. У шимпанзе, горилл и орангутанов 24 пары хромосом, у человека — 23. Сравнение рисунка полос на хромосомах, а затем и последовательностей ДНК показало, что хромосома 2 человека возникла в результате слияния двух хромосом предка, которые у шимпанзе остались отдельными.
Следы слияния видны прямо в ДНК. Концы хромосом (теломеры) состоят из многократных повторов короткой последовательности; в середине хромосомы 2 человека найден участок, где такие повторы стоят «голова к голове», — бывшие концы двух хромосом. Кроме того, в хромосоме 2 есть остатки второй, «выключенной» центромеры. Гены, которые у шимпанзе лежат в двух разных группах сцепления, у человека сцеплены в одной. Так эволюция меняет число групп сцепления — и хромосомная теория это объясняет.
12. Хромосомная теория у растений: кукуруза
Второй, после дрозофилы, классический объект хромосомной теории — кукуруза. У неё 10 пар хромосом, и в 1920-х годах американские генетики во главе с Р. Эмерсоном распределили сотни генов кукурузы по 10 группам сцепления. Оставалось понять, какая группа соответствует какой хромосоме. Молодая Барбара Мак-Клинток в 1929 году научилась различать все 10 хромосом кукурузы под микроскопом по длине, положению центромеры и характерным утолщениям. Затем с помощью растений с лишней хромосомой (трисомиков) и с перестройками хромосом она и её коллеги «привязали» каждую группу сцепления к своей хромосоме.
Растения, у которых какая-то хромосома утроена, дают необычные расщепления именно по генам этой хромосомы: в потомстве трисомика AAa по гену A отношение отличается от 3 : 1, а по генам других хромосом остаётся менделевским. Так по поведению признака можно узнать, в какой хромосоме лежит ген. Эти работы, а также опыт Крейтон и Мак-Клинток 1931 года сделали кукурузу полноправным «соавтором» хромосомной теории. Позже Мак-Клинток открыла на кукурузе мобильные элементы генома и в 1983 году получила за это Нобелевскую премию.
13. От генетических карт к геному человека
Долгое время генетические карты человека почти не удавалось строить: у людей мало детей, браки не планируют, а видимых «менделевских» признаков немного. Всё изменилось в 1980-х годах, когда генетики научились использовать в качестве «генов-меток» участки ДНК, различающиеся у разных людей. Таких меток в геноме сотни тысяч, и каждую можно определить простым анализом. Сцепление болезни с метками в больших семьях позволяло найти участок хромосомы, где лежит ген болезни.
Затем пришло время физических карт — прочтения самой последовательности ДНК. В 2001 году международный консорциум опубликовал первый вариант последовательности генома человека [10]. Теперь у каждого гена есть точный «адрес»: номер хромосомы и положение в парах нуклеотидов. Генетическая карта человека, построенная по рекомбинации в тысячах семей, позволила сопоставить морганиды с нуклеотидами: в среднем одна сантиморганида соответствует примерно миллиону пар нуклеотидов, но в разных участках генома это соотношение меняется в десятки раз, а у женщин рекомбинация происходит чаще, чем у мужчин [11].
| Объект | Генетическая карта, сМ (примерно) | Размер генома |
|---|---|---|
| дрозофила (самки) | около 300 | около 140 млн пар нуклеотидов |
| кукуруза | около 1500–2000 | около 2,3 млрд пар нуклеотидов |
| человек (в среднем для полов) | около 3500 | около 3,1 млрд пар нуклеотидов |
Так линия, начатая Сеттоном и Морганом, привела к полному описанию генома. Хромосомная теория, которая в 1915 году была смелым обобщением опытов на мухах, оказалась буквально верной: гены — это участки молекулы ДНК, которая и составляет основу хромосомы, и лежат они в ней друг за другом.
14. Делим ли ген? От бусин к нуклеотидам
В классической хромосомной теории ген был неделимой единицей: единицей функции (определяет признак), единицей мутации (изменяется целиком) и единицей рекомбинации (кроссинговер происходит между генами, но не внутри). Советский генетик А. С. Серебровский и его ученики ещё в 1929–1930 годах, изучая аллели одного гена дрозофилы, предположили, что ген делим и состоит из более мелких частей. Окончательно это доказал американский генетик Сеймур Бензер в 1955 году на бактериофаге T4 [12].
Бензер скрещивал (точнее, заражал одну бактерию одновременно двумя мутантами) сотни мутантов фага по одному участку генома и обнаружил, что рекомбинация может происходить и внутри гена — между мутациями, разделёнными всего несколькими нуклеотидами. Ему удалось построить карту внутреннего строения гена, и она тоже оказалась линейной. Минимальное расстояние рекомбинации совпало с расстоянием между соседними нуклеотидами. Так хромосомная теория «спустилась» с уровня хромосом на уровень молекулы ДНК: линейная последовательность генов в хромосоме продолжается линейной последовательностью нуклеотидов в гене.
| Уровень | Что расположено линейно | Кто показал |
|---|---|---|
| хромосома | гены | Стёртевант, 1913 |
| политенная хромосома | диски, к которым привязаны гены | Пейнтер, Бриджес, 1933–1935 |
| ген | точки мутаций и рекомбинации | Бензер, 1955 |
| молекула ДНК | нуклеотиды | Уотсон и Крик, 1953; секвенирование генома |
15. Хромосомная теория в России
В 1920-е годы советская генетика была одной из сильнейших в мире, и хромосомная теория быстро стала её основой. Н. К. Кольцов в 1927 году высказал идею, что хромосома — это гигантская молекула, которая удваивается по принципу матрицы, — за четверть века до открытия структуры ДНК. С. С. Четвериков в 1926 году заложил основы популяционной генетики, показав, что природные популяции дрозофилы насыщены скрытыми рецессивными мутациями. Н. В. Тимофеев-Ресовский изучал проявление генов и действие излучений на мутации. Н. И. Вавилов, работавший с хромосомной теорией в селекции, сформулировал закон гомологических рядов наследственной изменчивости и собрал крупнейшую в мире коллекцию семян культурных растений.
Трагедия началась в 1930-х годах, когда Т. Д. Лысенко, отвергавший гены и хромосомную теорию как «идеализм», получил поддержку руководства страны. Вавилов был арестован в 1940 году и умер в саратовской тюрьме в 1943 году. В августе 1948 года на сессии ВАСХНИЛ генетика была официально запрещена, тысячи учёных лишились работы, преподавание хромосомной теории прекратилось. Только в 1960-е годы генетика была восстановлена в правах. Эта история — грозное напоминание о том, что происходит, когда научные вопросы решаются не опытом, а идеологией.
16. Как строят карты у человека
У человека скрещиваний не поставишь, и карты строят по родословным. Для каждой семьи вычисляют, насколько вероятнее наблюдаемое наследование двух признаков при определённом расстоянии между генами, чем при их независимом наследовании. Логарифм этого отношения называют лод-баллом (от английского logarithm of odds). Американский генетик Н. Мортон в 1955 году предложил считать сцепление доказанным, если лод-балл превышает 3: это значит, что гипотеза сцепления в тысячу раз вероятнее гипотезы независимости. Лод-баллы разных семей складываются, поэтому сцепление можно доказать, объединив данные многих небольших семей.
Так в 1983 году ген болезни Хантингтона «привязали» к короткому плечу хромосомы 4 — по сцеплению с ДНК-меткой в большой семье из Венесуэлы, где болезнь передавалась много поколений. Сам ген нашли только через десять лет, но место на карте указывало, где искать. Этот путь — от сцепления к участку хромосомы и от участка к гену — прошли для сотен наследственных болезней.
17. Где применяют генетические карты
| Область | Как используют карты | Пример |
|---|---|---|
| медицинская генетика | поиск генов болезней по сцеплению с ДНК-метками; прогноз носительства в семьях | гены муковисцидоза (хромосома 7), болезни Хантингтона (хромосома 4) |
| селекция растений | отбор растений по ДНК-меткам, сцепленным с генами устойчивости или качества | гены устойчивости пшеницы к ржавчине, риса к засухе |
| животноводство | геномная оценка производителей, отбор по меткам | гены рогатости и рецессивных болезней крупного рогатого скота |
| эволюционная биология | сравнение порядка генов у разных видов; поиск следов отбора | слияние хромосом у предков человека; супергены бабочек |
| криминалистика и генеалогия | определение родства по сцепленным участкам ДНК | оценка степени родства по длине общих участков хромосом |
Последняя строка — пример того, как старая идея Моргана работает в новом виде. Родственники наследуют общие участки хромосом от общих предков; с каждым поколением кроссинговер «режет» эти участки на всё более короткие куски. По числу и длине общих участков ДНК двух людей можно оценить, через сколько поколений у них общий предок. Это и есть сцепление, измеренное на уровне целого генома.
18. Значение хромосомной теории и её границы
Хромосомная теория объяснила сразу многое.
- Законы Менделя — через поведение хромосом в мейозе и при оплодотворении.
- Сцепление генов и его нарушение — через расположение генов в одной хромосоме и кроссинговер.
- Наследование, сцепленное с полом, — через гены половых хромосом.
- Хромосомные болезни — через нарушения числа и строения хромосом.
- Комбинативную изменчивость — через независимое расхождение хромосом, кроссинговер и случайное слияние гамет.
Теория дала и практический инструмент — генетические карты, без которых не было бы ни поиска генов болезней, ни маркер-опосредованной селекции, ни современной геномики.
Но у теории есть границы. Она описывает ядерные гены. Часть генов находится в ДНК митохондрий и пластид, и эти гены не входят ни в одну группу сцепления ядерных хромосом. Они передаются через цитоплазму яйцеклетки, обычно только от матери, и не подчиняются законам Менделя: результаты реципрокных скрещиваний различаются, а расщепления 3 : 1 нет. Первые примеры такой цитоплазматической наследственности описали в 1909 году К. Корренс и Э. Баур у пестролистных растений (пестролистность ночной красавицы и пеларгонии). Кроме того, хромосомная теория не объясняет, как ген определяет признак — это вопрос молекулярной генетики, о которой рассказано в серии статей о реализации наследственной информации.
Гены вне ядра
Митохондриальная ДНК человека — кольцевая молекула длиной 16 569 пар нуклеотидов, в ней 37 генов: 13 кодируют белки дыхательной цепи, остальные — рибосомные и транспортные РНК. В каждой клетке сотни и тысячи копий этой ДНК. При оплодотворении митохондрии сперматозоида обычно разрушаются, и ребёнок получает митохондрии только от матери. Поэтому митохондриальные болезни (например, наследственная оптическая нейропатия Лебера, приводящая к потере зрения) передаются от матери всем детям, но больные мужчины не передают их своим детям.
Ещё одна особенность — гетероплазмия: в клетке могут одновременно присутствовать нормальные и мутантные копии митохондриальной ДНК в разном соотношении. При делении клеток доли распределяются случайно, поэтому тяжесть болезни у разных детей одной матери может сильно различаться. Ничего похожего на менделевское расщепление здесь нет.
У растений по материнской линии обычно передаются и пластиды. Корренс в 1909 году изучал пестролистную форму ночной красавицы, у которой на одном растении есть зелёные, белые и пёстрые ветви. Семена с зелёных ветвей давали зелёные растения, с белых — белые (они вскоре погибали, не имея хлорофилла), с пёстрых — зелёные, белые и пёстрые в разных соотношениях, причём пыльца с любой ветви на результат не влияла. Признак определялся пластидами яйцеклетки, а не генами ядра.
Хромосомная теория и законы Менделя. Законы Менделя — частный случай хромосомной теории для генов, лежащих в разных хромосомах. Закон Моргана — её случай для генов одной хромосомы. Вместе они описывают наследование всех ядерных генов при половом размножении.
19. Как решать задачи на генетические карты
Задачи на карты бывают трёх видов: определить порядок генов по расстояниям; найти неизвестное расстояние по карте; построить карту по результатам скрещиваний.
- Если даны расстояния для всех пар генов: найдите наибольшее — это пара крайних генов; остальные гены размещайте между ними так, чтобы расстояния складывались.
- Если даны результаты анализирующего скрещивания: для каждой пары генов найдите долю кроссоверных потомков (сумма двух малочисленных классов по этой паре), затем действуйте как в п. 1.
- Если дана карта: расстояние между любыми двумя генами — разность их координат; доли гамет считайте по частоте кроссинговера.
- При трёх сцепленных генах в одном скрещивании: найдите самые малочисленные классы — двойные кроссоверы; ген, «переставленный» в них относительно некроссоверных классов, — средний.
Частая ошибка. Порядок генов выбирают по алфавиту или по порядку в условии. Порядок определяется только расстояниями: ген, расстояния от которого до двух других в сумме дают наибольшее расстояние, лежит посередине.
20. Разборы типовых задач
Задача 1. Порядок трёх генов
Частоты кроссинговера: A–B = 8 %, B–C = 20 %, A–C = 12 %. Определите порядок генов и постройте карту.
Решение. Наибольшая частота B–C = 20 %: B и C крайние. A между ними: 8 + 12 = 20. Порядок B —8— A —12— C.
Задача 2. Четвёртый ген
На карте гены расположены так: A (0), B (6), C (15). Ген D даёт кроссинговер с A 21 %, с C 6 %. Где лежит D? Какова частота кроссинговера B–D?
Решение. 15 + 6 = 21 — D лежит за C, в точке 21. B–D = 21 − 6 = 15 %.
Задача 3. Доли гамет по карте
Гены A и B находятся на расстоянии 14 морганид. Какие гаметы и в каких долях образует дигетерозигота Ab//aB?
Решение. Некроссоверные Ab и aB — по (100 − 14)/2 = 43 %; кроссоверные AB и ab — по 7 %.
Задача 4. Карта по результатам скрещиваний
В трёх анализирующих скрещиваниях дигетерозигот дрозофилы получено: по генам y и w — 1,5 % кроссоверных; по w и m — 33 %; по y и m — 34,5 %. Расположите гены.
Решение. Наибольшее y–m = 34,5 %: y и m крайние; w между ними: 1,5 + 33 = 34,5. Порядок y —1,5— w —33— m. (Это близко к данным, по которым Стёртевант строил первую карту X-хромосомы.)
Задача 5. Трёхточечное скрещивание
В анализирующем скрещивании тригетерозиготы получены классы (из 1000): ABC 410, abc 400, ABc 40, abC 45, Abc 50, aBC 45, AbC 5, aBc 5. Определите порядок генов и расстояния.
Решение. Некроссоверные — ABC и abc; двойные кроссоверы (самые малочисленные) — AbC и aBc: в них «переставлен» ген B, значит, B — средний. A–B: классы с обменом между A и B — Abc, aBC и двойные: (50 + 45 + 5 + 5) / 1000 = 10,5 %. B–C: ABc, abC и двойные: (40 + 45 + 5 + 5) / 1000 = 9,5 %. Карта: A —10,5— B —9,5— C.
Задача 6. Двойной кроссинговер и интерференция
Гены A, B, C: A–B = 10 сМ, B–C = 20 сМ. Сколько двойных кроссоверов ожидается среди 2000 потомков трёхточечного анализирующего скрещивания при отсутствии интерференции? Если наблюдено 20, каков коэффициент совпадения?
Решение. Ожидается 0,10 × 0,20 × 2000 = 40. Коэффициент совпадения 20 / 40 = 0,5; интерференция 1 − 0,5 = 0,5.
Задача 7. Связь с кариотипом
У организма 2n = 16. Сколько у него групп сцепления? Может ли генетик обнаружить у этого вида 9 групп сцепления, если генов известно много?
Решение. Групп сцепления 8. Девятой быть не может (если не считать особо половые хромосомы у гетерогаметного пола): число групп сцепления равно гаплоидному числу хромосом, и новые гены лишь «заполняют» уже известные группы.
Задача 8. Карта из пяти генов
Даны расстояния: A–B 7, A–C 2, B–C 5, C–D 9, B–D 4, A–E 14, D–E 3. Постройте карту.
Решение. A–C 2, C–B 5 (2 + 5 = 7 = A–B): A —2— C —5— B. B–D 4, C–D 9 = 5 + 4: D за B: … B —4— D. D–E 3, A–E 14 = 2 + 5 + 4 + 3: E за D. Карта: A —2— C —5— B —4— D —3— E (координаты 0, 2, 7, 11, 14).
Задача 9. Положение по анализирующему скрещиванию и карте
Гены A и B на карте — в точках 3 и 18. Сколько особей с генотипом Ab//ab ожидается среди 400 потомков анализирующего скрещивания самки AB//ab?
Решение. Расстояние 15 сМ; кроссоверная гамета Ab — 7,5 %; 400 × 0,075 = 30 особей.
Задача 10. Группы сцепления и кариотип
У вида 2n = 12. Генетики изучили 50 генов и нашли только 5 групп сцепления. Как это объяснить?
Решение. Групп должно быть 6 (по числу пар хромосом). Шестая ещё не найдена: среди изученных генов нет ни одного из шестой хромосомы (например, она маленькая и бедна генами). С изучением новых генов шестая группа появится, но больше шести групп не будет.
Задача 11. Какие положения иллюстрирует опыт
Морган и его ученики обнаружили, что все известные к 1915 году гены дрозофилы (около 85) распределились ровно по четырём группам, причём одна группа очень мала. Какие положения хромосомной теории подтверждает это наблюдение?
Решение. 1) Гены одной хромосомы образуют группу сцепления. 2) Число групп сцепления равно гаплоидному числу хромосом (n = 4). 3) Гены находятся в хромосомах: малая группа соответствует маленькой четвёртой хромосоме.
Задача 12. Расстояние больше 50
На карте ген A находится в точке 0, ген Z — в точке 66. Какую частоту кроссоверных гамет можно ожидать для пары A–Z в прямом опыте? Почему расстояние на карте больше?
Решение. Близко к 50 % (но не больше): между далёкими генами много двойных и многократных обменов. Расстояние 66 сМ получено сложением коротких расстояний между промежуточными генами, где двойные обмены редки.
Задача 13. Митохондриальный признак
У женщины митохондриальная болезнь, её муж здоров. Какова вероятность болезни у их детей? А если болен муж, а жена здорова?
Решение. Митохондрии передаются через яйцеклетку, поэтому в первом случае мутантную митохондриальную ДНК получат все дети (тяжесть может различаться из-за гетероплазмии). Во втором случае дети её не получат: митохондрии сперматозоида в зиготе не сохраняются. Законы Менделя и хромосомная теория к такому признаку не применимы.
Задача 14. Сравнение карт двух видов
У вида 1 гены расположены в порядке A–B–C–D–E, у близкого вида 2 — A–D–C–B–E. Какая перестройка хромосомы могла произойти в эволюции?
Решение. Участок B–C–D перевёрнут (D–C–B) — инверсия. Положение крайних генов A и E не изменилось.
Задача 15. Псевдодоминирование
Самку дрозофилы, несущую в одной хромосоме рецессивный аллель белых глаз, а в другой — нормальный, скрестили с самцом. У части дочерей неожиданно проявились белые глаза, хотя отец был красноглазым. Как объяснить это с позиций хромосомной теории, если у отца в X-хромосоме обнаружена нехватка участка?
Решение. Отцовская X-хромосома с нехваткой лишена участка с геном окраски глаз. Дочь, получившая от матери X-хромосому с рецессивным аллелем, а от отца X-хромосому с нехваткой, имеет только одну копию гена — рецессивную, и признак проявляется. Это псевдодоминирование, по нему гены привязывают к участкам хромосом.
21. Итог: что важно знать
- Хромосомная теория наследственности сформулирована Т. Морганом и его школой (1910–1915) на основе параллелизма Сеттона — Бовери и опытов на дрозофиле.
- Её положения: гены в хромосомах; гены расположены линейно, каждый в своём локусе; аллели — в одинаковых локусах гомологов; гены одной хромосомы — группа сцепления, число групп равно n; сцепление нарушается кроссинговером; частота кроссинговера пропорциональна расстоянию; кариотип вида постоянен.
- Доказательства: сцепление с полом (Морган, 1910), группы сцепления (4 у дрозофилы), карты (Стёртевант, 1913), нерасхождение (Бриджес, 1916), совпадение генетического и цитологического кроссинговера (1931), политенные хромосомы.
- Генетическая карта — порядок генов группы сцепления и расстояния в морганидах; строится по частотам кроссинговера; наибольшее расстояние — между крайними генами.
- Двойной кроссинговер занижает прямое измерение расстояния между далёкими генами; интерференция снижает число двойных обменов.
- Порядок генов на генетических и цитологических картах совпадает, расстояния — нет.
- Теория описывает ядерные гены; гены митохондрий и пластид наследуются по материнской линии и не входят в группы сцепления.
22. Частые ошибки
- «Хромосомную теорию создал Мендель». Мендель не знал о хромосомах; теорию создали Т. Морган и его ученики на основе идей Сеттона и Бовери.
- «Число групп сцепления равно числу генов в хромосоме». Оно равно гаплоидному числу хромосом.
- «Порядок генов можно определить по алфавиту или по порядку в условии». Только по расстояниям: крайние гены — пара с наибольшим расстоянием.
- «Расстояние на карте всегда равно частоте кроссинговера, измеренной напрямую». Для далёких генов прямое измерение занижено из-за двойных обменов; карту строят суммированием коротких расстояний.
- «На генетической карте расстояния пропорциональны длине ДНК». Нет: частота кроссинговера неодинакова вдоль хромосомы; порядок совпадает с физической картой, расстояния — нет.
- «Длина генетической карты хромосомы не может быть больше 50 сМ». Может: 50 % — предел прямо измеренной частоты для пары генов, а длина карты — сумма расстояний.
- «Гены митохондрий входят в одну из групп сцепления». Митохондриальная ДНК — отдельная, наследуется через цитоплазму яйцеклетки.
- «Кариотип у разных особей одного вида разный». У нормальных особей вида кариотип постоянен; различия — у мужского и женского пола по половым хромосомам и при хромосомных нарушениях.
- «Политенные хромосомы есть во всех клетках дрозофилы». Только в некоторых тканях личинки, прежде всего в слюнных железах.
- «Двойной кроссинговер всегда меняет сочетание крайних генов». Наоборот: двойной обмен возвращает исходное сочетание крайних генов и меняет положение среднего.
- «Ген — неделимая частица». Это представление классической генетики; ген — участок ДНК, внутри которого возможны и мутации, и рекомбинация (Бензер, 1955).
- «Кариотип вида никогда не меняется». В пределах вида у нормальных особей он постоянен, но в эволюции кариотипы меняются — например, слиянием хромосом, как у предков человека.
- «Генетическая карта показывает, как выглядит хромосома». Генетическая карта — схема порядка генов и вероятности обменов; как выглядит хромосома, показывает цитологическая карта.
23. Интересные факты
- Книга «Механизм менделевской наследственности» (1915) долгое время была главным учебником генетики во всём мире.
- Первую карту Стёртевант построил по шести генам X-хромосомы дрозофилы; три из этих генов — жёлтое тело, белые глаза и миниатюрные крылья — до сих пор используют в учебных задачах.
- Политенная хромосома слюнной железы дрозофилы примерно в сто раз длиннее и во много раз толще обычной метафазной хромосомы; на ней различают около пяти тысяч дисков.
- Карты Бриджеса 1935 года были настолько точными, что генетики пользуются его нумерацией дисков до сих пор.
- Гены, нанесённые на генетическую карту по частоте кроссинговера, и гены, найденные в прочитанной последовательности ДНК, оказались в одном и том же порядке — блестящее подтверждение идеи Стёртеванта, сделанной за 90 лет до прочтения генома.
- Цитоплазматическую наследственность у пестролистных растений открыли в 1909 году — одновременно с тем, как Морган начал работать с дрозофилой.
- У человека самая «длинная» по генетической карте хромосома — первая, около 270–290 сантиморганид.
- Нетти Стивенс, открывшая в 1905 году роль X- и Y-хромосом в определении пола, была одной из первых женщин-генетиков в США; она изучала мучного хрущака.
- Балансерные хромосомы позволяют лабораториям поддерживать линии дрозофилы с летальными мутациями десятилетиями без всякого отбора.
- Генетическую привязку гена болезни Хантингтона к хромосоме 4 в 1983 году сделали по родословной огромной семьи из окрестностей озера Маракайбо в Венесуэле.
- Порядок генов на X-хромосоме у человека и других плацентарных млекопитающих во многом сходен — X-хромосома одна из самых «консервативных» в эволюции.
- Кольцов предсказал матричное удвоение «наследственных молекул» в 1927 году, за 26 лет до модели ДНК Уотсона и Крика.
- Бриджес нашёл первые «исключения» при нерасхождении X-хромосом примерно у одной мухи из двух тысяч — и не отбросил их как случайность, а сделал из них доказательство теории.
- Слово «локус» по-латыни означает просто «место»; генетики пользуются им с 1910-х годов.
- Морган получил Нобелевскую премию в 1933 году, но на церемонию в Стокгольм не поехал, сославшись на занятость, и прочитал Нобелевскую лекцию лишь через год.
24. Частые вопросы
Кто создал хромосомную теорию наследственности?
Идею о том, что гены находятся в хромосомах, высказали У. Сеттон и Т. Бовери в 1902–1903 годах. Теорию разработали и доказали Т. Морган и его ученики — А. Стёртевант, К. Бриджес, Г. Мёллер — в 1910–1915 годах на дрозофиле.
Почему число групп сцепления равно гаплоидному, а не диплоидному числу хромосом?
Гомологичные хромосомы несут одни и те же гены (возможно, в разных аллелях). Поэтому пара гомологов — одна группа сцепления, и групп столько, сколько пар хромосом, то есть n.
Как доказать, что гены расположены линейно?
Расстояния между генами складываются: если A–B = 5, B–C = 7, то A–C ≈ 12. Это возможно только при линейном расположении. Кроме того, порядок генов на генетической карте совпадает с порядком на цитологической карте политенных хромосом и в прочитанной последовательности ДНК.
Что такое генетическая карта?
Схема расположения генов одной группы сцепления с расстояниями в морганидах, определёнными по частоте кроссинговера. Генетические карты построены для дрозофилы, кукурузы, мыши, человека и многих других видов.
Почему расстояния на генетической и цитологической картах не совпадают?
Частота кроссинговера неодинакова вдоль хромосомы: около центромер и в некоторых других участках обмены редки, в «горячих точках» — часты. Генетическая карта отражает вероятность обменов, а не физическую длину, поэтому порядок генов совпадает, а расстояния нет.
Что такое интерференция?
Подавление одного кроссинговера другим, происходящим поблизости. Из-за интерференции двойных кроссоверов меньше, чем ожидалось бы при независимых обменах. Меру интерференции выражают коэффициентом совпадения — отношением наблюдаемого числа двойных кроссоверов к ожидаемому.
Как найти средний ген в трёхточечном скрещивании?
Найти самые малочисленные классы — двойные кроссоверы — и сравнить их с некроссоверными (самыми многочисленными). Ген, аллель которого в двойных кроссоверах «переставлен» по сравнению с некроссоверными, лежит посередине.
Какие гены не подчиняются хромосомной теории?
Гены митохондрий и пластид. Они находятся в собственной ДНК этих органоидов, передаются через цитоплазму яйцеклетки (обычно только от матери) и не входят в группы сцепления ядерных хромосом.
Что такое эффект положения?
Зависимость проявления гена от его положения в хромосоме. Впервые его описал Стёртевант в 1925 году на гене Bar дрозофилы: одинаковое число копий участка давало разный признак в зависимости от того, лежали копии в одной хромосоме или в разных.
Почему у человека 23 пары хромосом, а у шимпанзе 24?
Хромосома 2 человека возникла слиянием двух хромосом общего предка, которые у шимпанзе остались отдельными. В её середине сохранились следы бывших концов и второй центромеры.
Делим ли ген?
Да. С. Бензер в 1955 году показал на бактериофаге, что рекомбинация происходит и внутри гена, а мутации и обмены можно картировать с точностью до соседних нуклеотидов. Ген — участок ДНК из многих нуклеотидов, расположенных линейно.
Что такое пуфы политенных хромосом?
Вздутия на политенных хромосомах, где хромосома распущена и с ДНК активно идёт транскрипция. Рисунок пуфов меняется в развитии — это видимое «включение» и «выключение» генов.
Как группу сцепления связали с конкретной хромосомой у кукурузы?
С помощью растений с хромосомными аномалиями — трисомиков и перестроек: необычное расщепление по генам одной группы сцепления совпадало с аномалией определённой, различимой под микроскопом хромосомы.
Почему митохондриальные болезни передаются только от матери?
Митохондрии ребёнок получает с цитоплазмой яйцеклетки; митохондрии сперматозоида после оплодотворения разрушаются. Поэтому больная мать передаёт мутантную митохондриальную ДНК всем детям, а больной отец — никому.
Чем хромосомная теория отличается от законов Менделя?
Законы Менделя описывают, как наследуются признаки, не указывая, где находятся гены. Хромосомная теория объясняет законы поведением хромосом, добавляет закон сцепления генов одной хромосомы и даёт способ строить карты расположения генов.
Что такое псевдодоминирование?
Проявление рецессивного признака у особи, у которой в одной хромосоме рецессивный аллель, а в гомологичной на этом месте нехватка (делеция). Рецессивный аллель «не прикрыт» доминантным, и признак проявляется, как будто он доминантный.
Как кроссинговер помогает определять родство?
Близкие родственники имеют длинные общие участки хромосом, полученные от общего предка; с каждым поколением кроссинговер дробит их на более короткие. По длине и числу общих участков ДНК оценивают степень родства.
Почему опыты Бриджеса считают решающим доказательством теории?
Бриджес предсказал по генетическим «исключениям», какой набор хромосом должен быть у исключительных мух (XXY у белоглазых дочерей, X0 у красноглазых сыновей), и нашёл его под микроскопом. Совпадение предсказания с наблюдением связало конкретный ген с конкретной хромосомой без всяких допущений.
Что такое трёхточечное скрещивание?
Анализирующее скрещивание тригетерозиготы по трём сцепленным генам. В потомстве восемь классов: некроссоверные, одиночные кроссоверы в каждом из двух интервалов и двойные кроссоверы. По нему за одно скрещивание определяют порядок генов, оба расстояния и интерференцию.
Сколько генов у человека и сколько в среднем на хромосому?
Около 20 тысяч генов, кодирующих белки, — в среднем почти по тысяче на хромосому, но распределены они очень неравномерно: в хромосоме 1 около двух тысяч, в хромосоме 21 — около двухсот, в Y-хромосоме — несколько десятков.
Можно ли по генетической карте узнать, сколько нуклеотидов между генами?
Только приблизительно. У человека в среднем 1 сантиморганида соответствует примерно миллиону пар нуклеотидов, но в «горячих точках» рекомбинации — гораздо меньшему отрезку, а около центромер — гораздо большему. Точное расстояние в нуклеотидах даёт только физическая карта — прочитанная последовательность ДНК.
Зачем нужны генетические карты сегодня, если геном прочитан?
По генетической карте находят, какие участки генома передаются вместе с болезнью или хозяйственно ценным признаком, — это первый шаг к поиску гена. Карты используют в селекции (отбор по ДНК-меткам), в медицинской генетике (прогноз носительства) и при изучении эволюции.
25. ЕГЭ
Тема входит в элемент 3.3 кодификатора [13]: «Хромосомная теория наследственности». В части 1 встречаются задания на выбор положений хромосомной теории, на число групп сцепления, на порядок генов по расстояниям, на соответствие учёных и открытий (Сеттон, Морган, Стёртевант). В части 2 — вопросы о положениях теории и их доказательствах, по рисункам (политенные хромосомы, кариотип дрозофилы) и задачи на сцепление, где нужно рассчитать расстояние в морганидах.
Что обязательно знать к экзамену
- Все положения хромосомной теории и доказательства каждого.
- Что такое группа сцепления, локус, морганида, генетическая карта.
- Как определить порядок трёх генов по расстояниям.
- Роль Т. Моргана, его школы и объекта — дрозофилы.
- Значение теории и её границы (цитоплазматическая наследственность).
Разбор задания части 1
Задание. Выберите три положения хромосомной теории наследственности: 1) гены расположены в хромосомах линейно; 2) гены разных хромосом образуют одну группу сцепления; 3) сцепление нарушается кроссинговером; 4) число групп сцепления равно диплоидному числу хромосом; 5) аллельные гены находятся в одинаковых локусах гомологичных хромосом; 6) все гены наследуются независимо. Ответ: 135.
Задание. Расстояния: A–B = 3 сМ, B–C = 9 сМ, A–C = 12 сМ. Какой ген лежит посередине? Ответ: B (3 + 9 = 12).
Разбор задачи части 2
Задача. Какие факты доказывают, что гены расположены в хромосомах? Приведите не менее трёх.
Ответ. 1) Число групп сцепления равно гаплоидному числу хромосом (у дрозофилы 4), а размер групп соответствует размеру хромосом. 2) Наследование признаков, сцепленных с полом, совпадает с распределением X-хромосом; нарушения расхождения X-хромосом (опыты Бриджеса) сопровождаются нарушениями наследования признаков. 3) Новые сочетания сцепленных генов при кроссинговере совпадают с обменом видимыми участками хромосом (опыт Крейтон и Мак-Клинток). 4) Порядок генов на генетической карте совпадает с порядком на цитологической карте политенных хромосом.
Как формулировать ответ. Положения теории формулируйте полными предложениями, с ключевыми терминами: «гены расположены в хромосомах в линейном порядке», «каждый ген занимает определённый локус», «число групп сцепления равно гаплоидному набору хромосом». Не сокращайте до «гены в хромосомах» — эксперты могут не засчитать неполную формулировку.
Связь с другими темами
Сцепление и кроссинговер — в статье «Сцепленное наследование»; поведение хромосом в мейозе — в статьях «Цитологические основы дигибридного скрещивания» и «Мейоз»; кариотип — в статье «Кариотип»; наследование, сцепленное с полом, — в статье «Наследование, сцепленное с полом»; история — в статье «История генетики».
26. Для олимпиад
Картирующая функция Холдейна
По Холдейну, если обмены распределены случайно (без интерференции), наблюдаемая частота рекомбинации r связана с расстоянием d (в морганах) формулой r = (1 − e−2d)/2. Какой будет r при d = 0,1 и d = 1 моргана? Ответ: при d = 0,1 r = (1 − e−0,2)/2 ≈ 0,091 (почти 10 %); при d = 1 r = (1 − e−2)/2 ≈ 0,432 (43 %, а не 100 %). Для коротких расстояний r ≈ d, для больших r стремится к 0,5.
Восемь классов и порядок генов
В трёхточечном скрещивании самые многочисленные классы — AbC и aBc, самые малочисленные — ABC и abc. Какой ген средний и каково положение аллелей у тригетерозиготы? Ответ: некроссоверные AbC и aBc показывают хромосомы тригетерозиготы: AbC//aBc. Двойные кроссоверы ABC и abc отличаются от некроссоверных аллелем гена B — B средний.
Делеционное картирование
Самку дрозофилы, гетерозиготную по рецессивным мутациям генов p, q, r (все в одной хромосоме, нормальные аллели в другом гомологе), скрестили с самцами, имеющими делецию (нехватку) участка этой хромосомы. У части дочерей, получивших делецию, проявились признаки p и q, но не r. Что это значит? Ответ: делеция охватывает гены p и q, но не r: у дочерей на месте p и q в одной хромосоме нехватка, в другой — рецессивные аллели, и рецессивные признаки проявляются. Так гены привязывают к участкам хромосом.
Трисомик и расщепление
У растения-трисомика AAa (три копии хромосомы с геном A) при самоопылении гаметы с одной копией хромосомы образуются так: A — 1/3, a — 1/6; гаметы с двумя копиями AA — 1/6, Aa — 1/3 (если все гаметы жизнеспособны и оплодотворяют одинаково). Какова доля потомков с рецессивным фенотипом? Ответ: рецессивный фенотип только при сочетании двух гамет a: (1/6)2 = 1/36 — намного меньше 1/4. По таким необычным расщеплениям Мак-Клинток и её коллеги определяли, в какой хромосоме лежит ген.
Карта по родословной
В семье с доминантной болезнью отец — гетерозигота по болезни и по ДНК-метке (варианты M1 и M2), и известно, что аллель болезни у него в одной хромосоме с M1. Из 12 детей 10 «неперекомбинированных» (больные с M1 или здоровые с M2), 2 — рекомбинантные. Оцените расстояние и объясните, почему такой оценки мало для доказательства сцепления. Ответ: 2/12 ≈ 17 сМ. Но 12 детей — малая выборка: такой результат возможен и случайно при независимом наследовании (там ожидается 6 рекомбинантов, а 2 и меньше выпадает с вероятностью около 2 %). Для доказательства сцепления объединяют данные многих семей, пока лод-балл не превысит 3.
Число групп сцепления и кариотип
У вида 2n = 24, самцы XY, самки XX. Сколько групп сцепления у самок и у самцов? Ответ: у самок 12, у самцов 13 (X и Y — разные группы).
27. Задания с разбором
Задание 1
Выберите три верных ответа. Положения хромосомной теории: 1) гены расположены в хромосомах линейно; 2) каждый ген занимает определённый локус; 3) число групп сцепления равно диплоидному числу хромосом; 4) гены одной хромосомы наследуются сцепленно; 5) кроссинговер происходит в митозе; 6) все гены наследуются независимо.
Ответ
1, 2, 4.
Задание 2
Расстояния: K–L = 17 сМ, L–M = 5 сМ, K–M = 12 сМ. Определите порядок генов.
Ответ
K —12— M —5— L (12 + 5 = 17).
Задание 3
Сколько групп сцепления у организма с 2n = 18?
Ответ
9.
Задание 4
Установите соответствие между учёными и их вкладом. Учёные: А) У. Сеттон; Б) Т. Морган; В) А. Стёртевант; Г) К. Бриджес; Д) Г. Мёллер. Вклад: 1) первая генетическая карта; 2) параллелизм поведения хромосом и генов; 3) доказательство хромосомной теории нерасхождением; 4) открытие сцепления генов и связи гена с X-хромосомой; 5) открытие интерференции и мутагенного действия рентгеновских лучей.
Ответ
А2, Б4, В1, Г3, Д5.
Задание 5
На карте гены расположены: A (0), B (8), C (20). Каково расстояние B–C? Какую долю кроссоверных гамет даст дигетерозигота по генам A и C?
Ответ
B–C = 12 сМ. A–C = 20 сМ, кроссоверных гамет около 20 % (двойные обмены на таком расстоянии редки).
Задание 6
Почему возможность построить генетическую карту доказывает линейное расположение генов?
Ответ
Расстояния между тремя генами складываются (A–C = A–B + B–C), что возможно только при расположении генов на одной линии.
Задание 7
Найдите ошибки в тексте и исправьте их. 1) Хромосомную теорию сформулировал Г. Мендель. 2) Гены в хромосоме расположены линейно. 3) Число групп сцепления равно числу пар хромосом. 4) Частота кроссинговера обратно пропорциональна расстоянию между генами. 5) Гены митохондрий входят в группы сцепления ядерных хромосом.
Ответ
Ошибки в 1, 4, 5. 1) Теорию сформулировали Т. Морган и его ученики. 4) Частота прямо пропорциональна расстоянию. 5) Гены митохондрий не входят в группы сцепления ядерных хромосом.
Задание 8
Что такое локус?
Ответ
Место гена в хромосоме; аллели одного гена занимают одинаковые локусы гомологичных хромосом.
Задание 9
Ген X даёт кроссинговер с A 4 %, с B 4 %, а расстояние A–B = 8 сМ. Где лежит X?
Ответ
Посередине между A и B: A —4— X —4— B.
Задание 10
Выберите три верных ответа. Доказательства расположения генов в хромосомах: 1) число групп сцепления равно n; 2) нерасхождение X-хромосом и исключительное наследование признаков (Бриджес); 3) расщепление 3 : 1 у гороха; 4) совпадение генетического и цитологического кроссинговера; 5) существование доминантных и рецессивных аллелей; 6) чистота гамет.
Ответ
1, 2, 4.
Задание 11
Почему прямая частота рекомбинации между далёкими генами меньше суммы расстояний через промежуточные гены?
Ответ
Между далёкими генами возможны двойные (и большего чётного числа) обмены, которые восстанавливают исходное сочетание крайних генов и не учитываются при прямом подсчёте.
Задание 12
Как называются гигантские хромосомы слюнных желёз дрозофилы и чем они полезны для генетики?
Ответ
Политенные. На них видны тысячи дисков, рисунок которых постоянен; по нехваткам и перестройкам дисков гены привязывают к конкретным участкам хромосом и строят цитологические карты.
Задание 13
Установите последовательность событий в истории хромосомной теории: 1) опыты Бриджеса с нерасхождением; 2) гипотеза Сеттона — Бовери; 3) открытие сцепления белоглазости с X-хромосомой; 4) первая генетическая карта Стёртеванта; 5) переоткрытие законов Менделя.
Ответ
52341.
Задание 14
Какие гаметы и в каких долях даст дигетерозигота AB//ab, если гены на карте находятся в точках 10 и 26?
Ответ
Расстояние 16 сМ: AB и ab — по 42 %, Ab и aB — по 8 %.
Задание 15
Почему пестролистность ночной красавицы не подчиняется законам Менделя?
Ответ
Признак определяется генами пластид, которые передаются через цитоплазму яйцеклетки (по материнской линии); такие гены не находятся в ядерных хромосомах, и расщепления по Менделю нет.
Задание 16
Сколько групп сцепления у мужчины? Почему на одну больше, чем у женщины?
Ответ
24: X- и Y-хромосомы несут в основном разные гены и образуют две разные группы сцепления, а у женщины две X-хромосомы — одна группа.
Задание 17
Выберите три верных ответа. Генетическая карта: 1) показывает порядок генов в группе сцепления; 2) строится по частоте кроссинговера; 3) показывает расстояния в парах нуклеотидов; 4) использует единицу морганиду; 5) одинакова для всех видов; 6) строится по фенотипу одной особи.
Ответ
1, 2, 4.
Задание 18
В трёхточечном скрещивании двойные кроссоверы — ABc и abC, некроссоверные — ABC и abc. Какой ген средний?
Ответ
C: именно он «переставлен» в двойных кроссоверах — значит, на самом деле порядок A–C–B (или B–C–A).
Задание 19 (олимпиадное)
Гены A–B = 10 сМ, B–C = 10 сМ (порядок A–B–C), интерференции нет. Какова ожидаемая прямая частота рекомбинантов по крайним генам A и C?
Ответ
Рекомбинанты по A и C — с одним обменом в одном из интервалов: 0,1 × 0,9 + 0,9 × 0,1 = 0,18, то есть 18 %, а не 20 % (двойные обмены 1 % не видны по крайним генам).
Задание 20 (олимпиадное)
В анализирующем скрещивании тригетерозиготы из 1000 потомков 6 оказались двойными кроссоверами, а расстояния A–B и B–C — 12 и 10 сМ. Найдите коэффициент совпадения и интерференцию.
Ответ
Ожидается 0,12 × 0,10 × 1000 = 12 двойных кроссоверов. Коэффициент совпадения 6/12 = 0,5; интерференция 1 − 0,5 = 0,5.
Литература
- Morgan T. H., Sturtevant A. H., Muller H. J., Bridges C. B. The mechanism of Mendelian heredity. New York: Henry Holt and Company, 1915. 262 p.
- Sutton W. S. The chromosomes in heredity // Biological Bulletin. 1903. Vol. 4. P. 231–250.
- Crow E. W., Crow J. F. 100 years ago: Walter Sutton and the chromosome theory of heredity // Genetics. 2002. Vol. 160. P. 1–4.
- Bridges C. B. Non-disjunction as proof of the chromosome theory of heredity // Genetics. 1916. Vol. 1. P. 1–52.
- Sturtevant A. H. The linear arrangement of six sex-linked factors in Drosophila, as shown by their mode of association // Journal of Experimental Zoology. 1913. Vol. 14. P. 43–59.
- Muller H. J. The mechanism of crossing-over // The American Naturalist. 1916. Vol. 50. P. 193–221.
- Sturtevant A. H. The effects of unequal crossing over at the Bar locus in Drosophila // Genetics. 1925. Vol. 10. P. 117–147.
- Painter T. S. A new method for the study of chromosome rearrangements and the plotting of chromosome maps // Science. 1933. Vol. 78. P. 585–586.
- Bridges C. B. Salivary chromosome maps // Journal of Heredity. 1935. Vol. 26. P. 60–64.
- International Human Genome Sequencing Consortium. Initial sequencing and analysis of the human genome // Nature. 2001. Vol. 409. P. 860–921.
- Kong A., Gudbjartsson D. F., Sainz J. et al. A high-resolution recombination map of the human genome // Nature Genetics. 2002. Vol. 31. P. 241–247.
- Benzer S. Fine structure of a genetic region in bacteriophage // Proceedings of the National Academy of Sciences of the USA. 1955. Vol. 41. P. 344–354.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…