
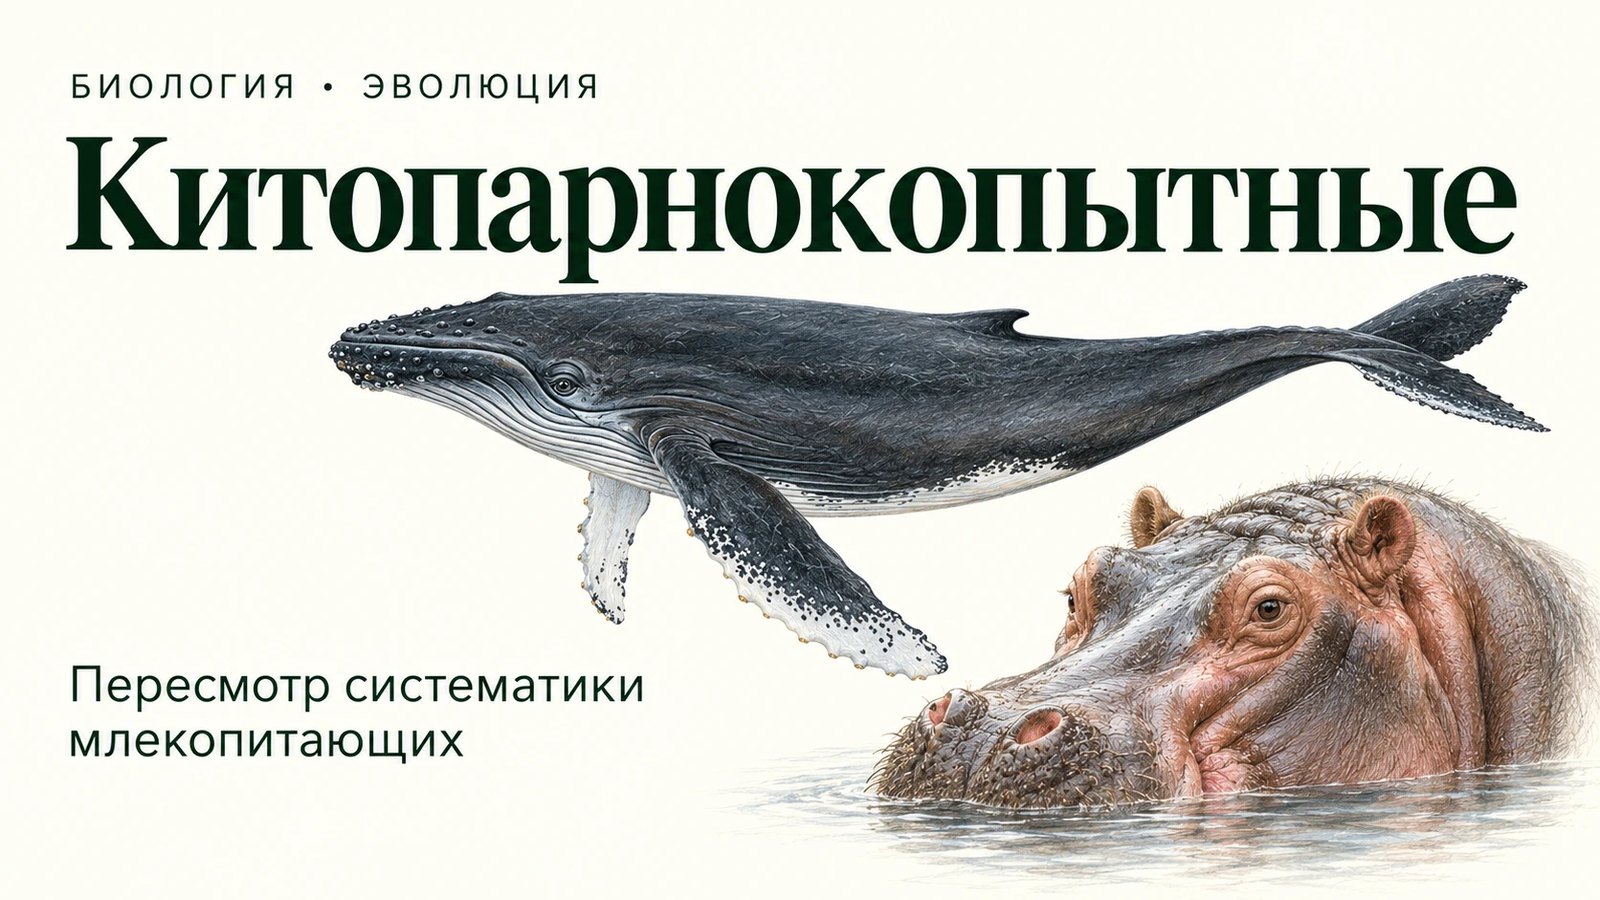
Ближайший живой родственник синего кита — бегемот. Это не метафора и не курьёз, а результат тридцати лет работы генетиков и палеонтологов, который перевернул систему млекопитающих: киты оказались не отдельной ветвью, а группой внутри парнокопытных, специализированной к жизни в воде так глубоко, что от копытного в них не осталось почти ничего снаружи. Внутри же осталось многое: двойной блок в голеностопе у ископаемых предков, многокамерный желудок, одинаковые «прыгающие» вставки в ДНК и общий предок с бегемотами, живший около 50 млн лет назад.
В статье — как систематика строилась по строению и почему киты и парнокопытные долго считались далёкими друг от друга, какие молекулярные данные 1990-х указали на бегемотов, что такое монофилетическая и парафилетическая группы, как ископаемые пакицет, амбулоцет, родоцет и индохиус подтвердили предсказание генетиков, как выглядит современная система китопарнокопытных, что из этого спрашивают на ЕГЭ и ОГЭ, а в конце — интересные факты, 12 заданий с разбором и литература.
- Система по строению: почему киты стояли отдельно
- Молекулярные данные: киты и бегемоты
- Монофилия, парафилия и имя для новой группы
- Спор с палеонтологами и проверяемое предсказание
- Ископаемые: от индохиуса до базилозавра
- Современная система китопарнокопытных
- Бегемоты: сестринская группа, а не предки
- Что ещё помнит тело кита
- Как отвечать на экзамене
- Интересные факты
- Задания с разбором
- Литература
Система по строению: почему киты стояли отдельно
Систематика XX века опиралась на морфологию, и опиралась не на любые сходства, а на синапоморфии — общие производные признаки, которые группа унаследовала от своего предка и которых нет ни у кого другого. Внешнее сходство само по себе ничего не доказывает: дельфин похож на акулу, но это конвергенция. Нужны признаки, которые трудно приобрести дважды.
У парнокопытных такая синапоморфия — строение таранной кости (астрагала) в голеностопном суставе. У большинства млекопитающих эта кость имеет блоковидную суставную поверхность только сверху, где к ней прилегает голень, а снизу — гладкую головку. У парнокопытных, от свиньи до жирафа, блок двойной: второй желобчатый сустав расположен снизу, к костям стопы. Такой «двойной блок» превращает голеностоп в шарнир, который гнётся только вперёд-назад и не вывихивается вбок, — незаменимое свойство для бегущего животного. Вторая черта парнокопытных — ось конечности, проходящая между третьим и четвёртым пальцами, отсюда чётное число опорных пальцев.

У китообразных своя синапоморфия, спрятанная в черепе. Их среднее ухо заключено в костную капсулу — слуховую буллу — с необычайно толстой и плотной внутренней стенкой, которую называют инволюкрум. На суше звук приходит через барабанную перепонку, а в воде череп вибрирует весь, и толстая булла акустически изолирует ухо от остального черепа, позволяя различать направление звука под водой. Инволюкрум есть у всех китов, живых и ископаемых, и ни у одного другого млекопитающего — так считалось до 2007 года.
Две синапоморфии не пересекались. У китов нет задних конечностей, а значит, и таранной кости; у парнокопытных нет «китового уха». Сравнивать было нечего, и китов относили к особому отряду, предков которого искали среди вымерших хищников палеоцена — мезонихий, чьи треугольные зубы напоминали зубы древнейших китов. Эту гипотезу выдвинул Ли Ван Вален в 1966 году, и она продержалась тридцать лет.
Словарь. Синапоморфия — общий производный признак, унаследованный от ближайшего общего предка группы. Сестринские группы — две ветви, отходящие от одного узла древа; ни одна не является предком другой. Монофилетическая группа (клада) — общий предок и все его потомки. Парафилетическая группа — общий предок и лишь часть потомков. Кладограмма — схема родства, в которой важен только порядок ветвления, а не длина ветвей. О чтении кладограмм в новых заданиях ЕГЭ — статья «Молекулярные часы и кладограммы».
Молекулярные данные: киты и бегемоты
В 1990-х годах систематика получила источник данных, не зависящий от приспособлений к среде: последовательности ДНК. Вода меняет тело, но не переписывает гены белков молока или митохондрий, и сравнение таких генов у разных отрядов дало неожиданный результат. В 1994–1996 годах Джон Гейтси с коллегами, сравнив гены казеинов молока, показал, что киты не просто родственны парнокопытным, а стоят внутри них, рядом с бегемотами. Митохондриальные гены (Клодин Монжелар и соавторы, 1997) подтвердили картину, и те же авторы предложили для объединённой группы имя Cetartiodactyla — китопарнокопытные.
Самое убедительное свидетельство дали не замены нуклеотидов, а вставки SINE — коротких мобильных элементов, которые копируют себя и встраиваются в геном в случайных местах. Вероятность того, что один и тот же элемент независимо вставится в одну и ту же точку генома у двух разных видов, ничтожна, а обратно такие вставки практически не вырезаются. Поэтому общая вставка в одном и том же участке — почти безошибочный знак общего предка, у которого она возникла. В 1997 году группа Норихиро Окады нашла вставки, общие для китов, бегемотов и жвачных, а в 1999 году Масато Никайдо с соавторами описал несколько вставок, которые есть только у китов и бегемотов и отсутствуют у свиней, верблюдов и жвачных.
Логика чтения такой схемы проста. Вставка, общая для всех, кроме верблюда, возникла у общего предка свиней, жвачных, бегемотов и китов уже после того, как отделилась ветвь мозоленогих. Вставка, общая для коровы, бегемота и кита, — у предка жвачных и ветви бегемот + кит. Вставка только у бегемота и кита — у их общего предка. Это и есть молекулярная синапоморфия: признак, который невозможно приобрести конвергентно.
Почему мобильные элементы надёжнее замен. Замена нуклеотида может произойти дважды независимо, может вернуться назад, а при сравнении далёких видов «насыщается» — многократные замены в одном положении стирают следы. Вставка в тысячи нуклеотидов в конкретной точке генома — событие уникальное, направленное (из состояния «нет» в состояние «есть») и почти необратимое. Для построения древа достаточно нескольких таких событий на узел, и они не требуют молекулярных часов. Теми же методами позже проверяли родство приматов, грызунов и птиц.
Монофилия, парафилия и имя для новой группы
Если киты произошли изнутри парнокопытных, традиционный отряд Парнокопытные становится парафилетическим: он включает общего предка, но исключает часть его потомков — китов. Современная систематика требует, чтобы названные группы были монофилетическими и отражали реальную историю ветвления. Поэтому либо китов нужно включить в парнокопытных, либо назвать объединённую группу по-новому. Так появилось название Cetartiodactyla; многие зоологи сегодня просто расширяют старое имя Artiodactyla и включают в него китов, а Cetacea понижают до подотряда или инфраотряда. Ветвь бегемоты + киты получила имя Whippomorpha (от английских whale и hippo), ветвь жвачные + Whippomorpha — Cetruminantia.
Школьная и экзаменационная систематика этот пересмотр пока не отражает: в учебниках отряды Китообразные и Парнокопытные остаются отдельными, и в заданиях так и следует отвечать. Противоречия здесь нет: отряд в школьной системе — удобная группа с общими признаками, а клада в научной — группа общего происхождения.
Спор с палеонтологами и проверяемое предсказание
Молекулярная гипотеза столкнулась с палеонтологической: по ископаемым зубам предками китов считались мезонихии, а бегемоты в палеонтологической летописи появляются только 16 млн лет назад, тогда как киты — 50. Разрешить спор могло только одно: найти у древнейших китов те самые кости, по которым опознают парнокопытных. Гипотеза генетиков давала проверяемое предсказание: если киты вышли из парнокопытных, их наземные предки обязаны были иметь таранную кость с двойным блоком. Если же киты произошли от мезонихий, блок должен быть одинарным. Нужны были скелеты с голеностопом, а не только черепа.
Ископаемые: от индохиуса до базилозавра
Все ранние киты найдены на территории древнего океана Тетис: в Пакистане, Индии, позже в Египте. Эоцен, 55–34 млн лет назад, был временем тёплого климата и мелких тропических морей, куда и уходили предки китов.
Пакицет
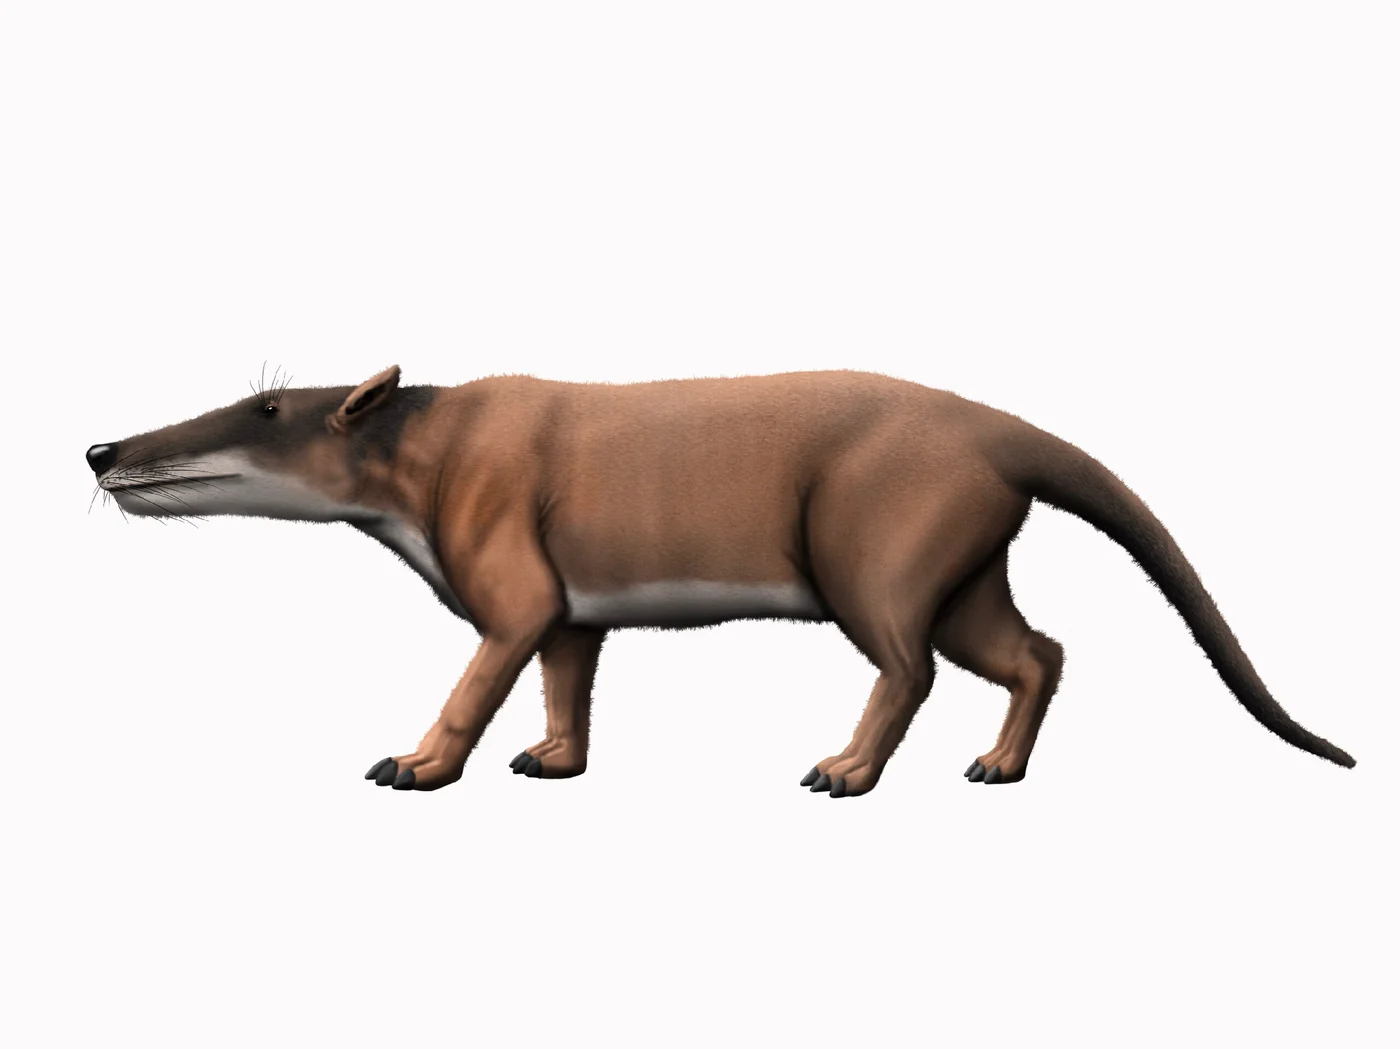
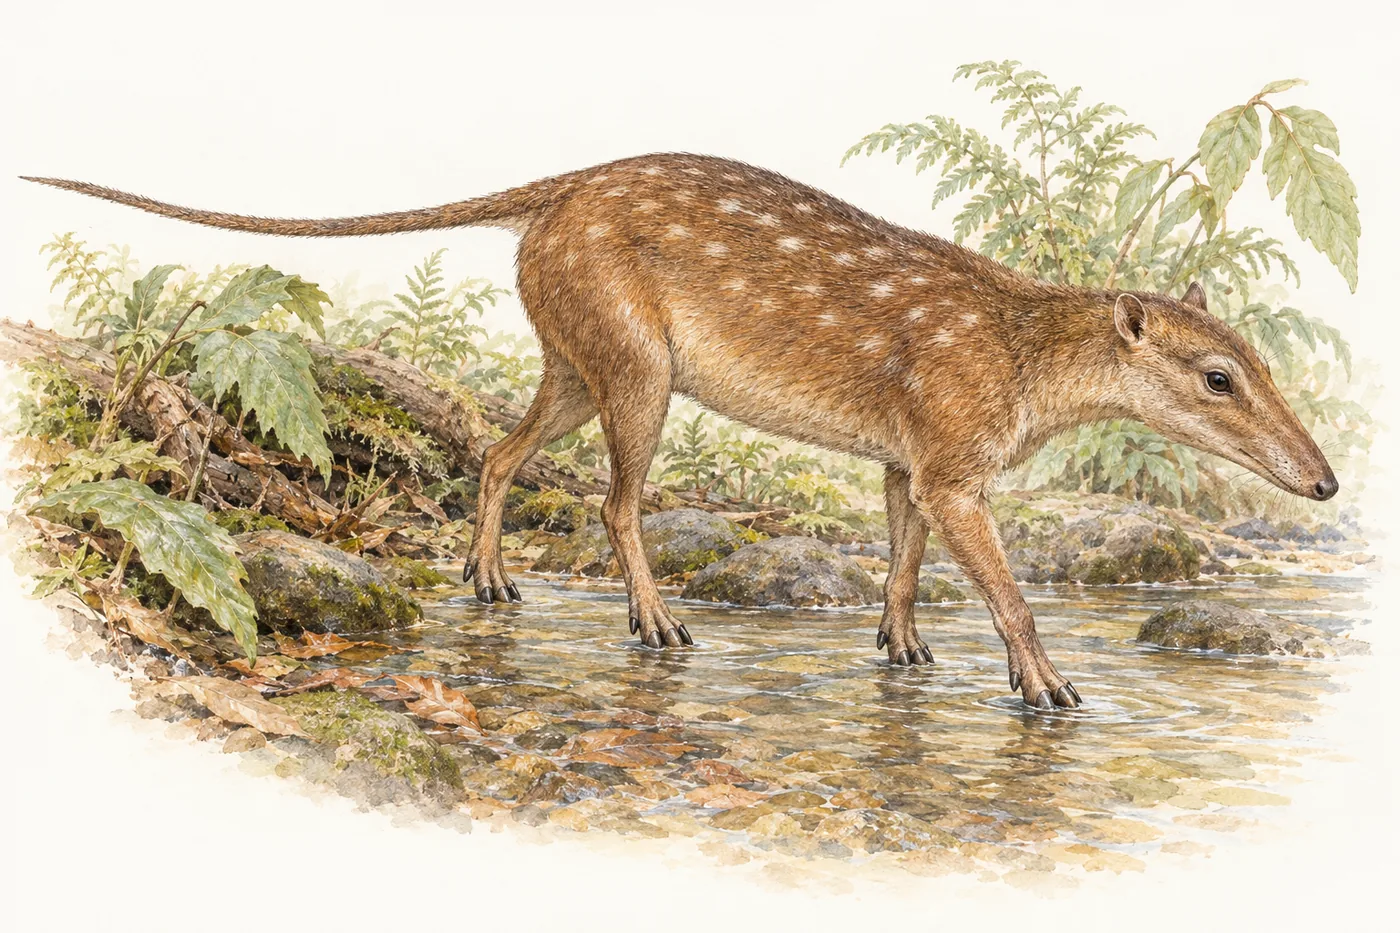
Pakicetus жил около 50 млн лет назад на территории нынешнего Пакистана. Череп нашли в 1981 году, а в 2001 году группа Ханса Тевиссена описала скелеты пакицета и его родича ихтиолеста. Это было четвероногое животное размером от лисы до волка, с длинными тонкими ногами и длинным хвостом, явно бегавшее по суше. Китом его делает череп: толстая слуховая булла с инволюкрумом и глаза, сдвинутые на верх головы, как у животного, которое смотрит из воды. А в голеностопе пакицета оказалась таранная кость с двойным блоком — ответ на предсказание генетиков пришёл в том же году сразу от двух экспедиций. Пакицеты жили по берегам рек и мелководий и, судя по изотопам кислорода в зубах, пили пресную воду.
Амбулоцет
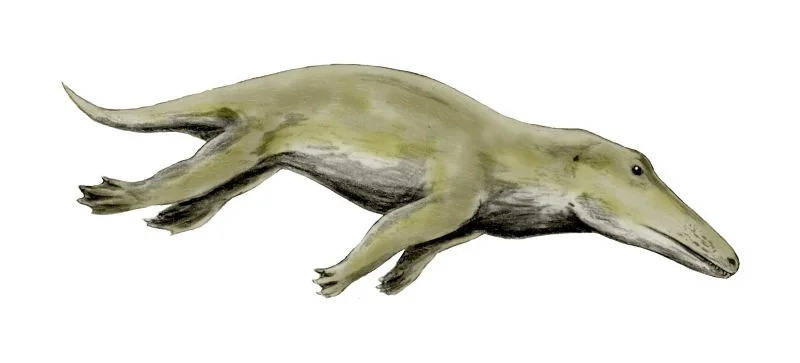
Ambulocetus natans, «плавающий ходячий кит», описан Тевиссеном в 1994 году; возраст около 48–49 млн лет. Животное длиной около трёх метров с мощными короткими ногами и огромными ступнями, которые работали как ласты. Позвоночник гибкий; плавал амбулоцет, изгибая тело в вертикальной плоскости, как выдра и современные киты, а на суше, вероятно, передвигался тяжело. Крокодилья форма головы, глаза наверху черепа и изотопный состав костей, указывающий на солоноватые воды дельт, рисуют засадного хищника устьев рек. Ушные кости уже улавливали звук через нижнюю челюсть — так слышат современные зубатые киты.
Родоцет, артиоцет и майацет
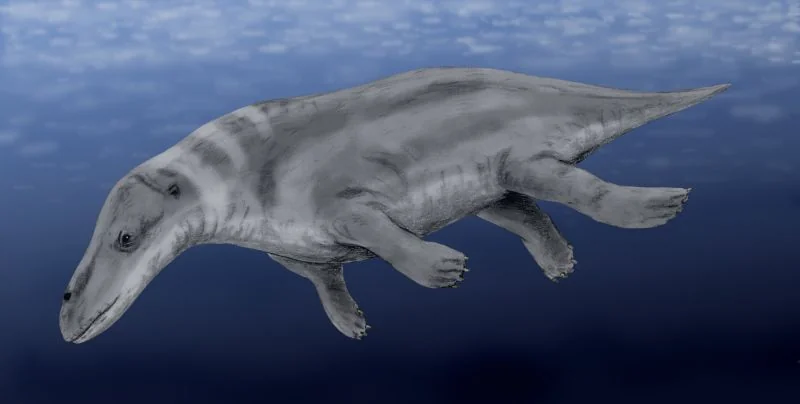
Протоцетиды — следующая ступень, около 47 млн лет назад. В 2001 году Филип Гингерич с коллегами описал в журнале «Science» скелеты Rodhocetus balochistanensis и нового рода Artiocetus с полностью сохранившимися кистями и стопами. У обоих — таранная кость с двойным блоком парнокопытных, а на пальцах, по-видимому, были маленькие копытца. При этом задние ноги укорочены, стопы удлинены и, скорее всего, несли перепонку, ноздри сдвинуты назад по морде, хвост мощный: это животное уже большую часть времени проводило в море. В 2009 году та же группа описала Maiacetus — самку с плодом внутри. Плод лежал головой к выходу, как у наземных млекопитающих, а не хвостом, как у китов: майацеты ещё рожали на суше.
Индохиус: ближайший родственник китов среди парнокопытных
В 2007 году Тевиссен описал из эоцена Кашмира (около 48 млн лет назад) Indohyus — представителя семейства раоеллид, мелких парнокопытных размером с кошку, похожих на оленька. У индохиуса обнаружился инволюкрум — тот самый признак, который считался исключительно китовым. Кости его конечностей необычно толстые и плотные, как у бегемота и у современных животных, которые ходят по дну, а изотопный состав зубов говорит о жизни в воде и о растительной пище. Индохиус — не предок китов, а их ближайшая сестринская группа среди парнокопытных: он показал, что уход в воду начался раньше перехода к хищничеству, и объяснил, откуда у китов «китовое ухо».
Дорудон и базилозавр
К 40 млн лет назад киты стали полностью морскими. Dorudon длиной около пяти метров и Basilosaurus длиной до 18 метров (его назвали «царственным ящером», приняв в 1834 году за морскую рептилию) уже имели горизонтальный хвостовой плавник, ласты вместо передних ног и ноздри, сдвинутые к середине морды. Задние ноги у них ещё были: в 1990 году Гингерич нашёл у базилозавра полные, но крошечные задние конечности длиной около 60 см при длине тела 16 метров — с бедром, голенью и пальцами, не способные нести вес и не связанные с позвоночником. Около 34 млн лет назад, на рубеже эоцена и олигоцена, линия китов разделилась на усатых и зубатых; у первых появился китовый ус, у вторых — эхолокация.
| Форма | Возраст, млн лет | Среда | Конечности | Ухо и ноздри | Что доказывает |
|---|---|---|---|---|---|
| Индохиус | 48 | Берег, мелководье; растительноядный | Четыре ноги, плотные кости | Инволюкрум есть; ноздри на конце морды | Признак «китового уха» возник у парнокопытных до китов |
| Пакицет | 50–48 | Суша и пресные водоёмы; хищник | Четыре ноги, двойной блок | Инволюкрум; глаза наверху головы | Древнейший кит был наземным парнокопытным |
| Амбулоцет | 49–48 | Устья рек, солоноватые воды | Короткие ноги, ластовидные ступни | Слух через нижнюю челюсть | Переход к плаванию изгибами тела |
| Родоцет, майацет | 47 | Море; роды на суше | Ластовидные ноги с двойным блоком, копытца | Ноздри сдвинуты назад | Двойной блок сохранился у морских китов |
| Дорудон, базилозавр | 40–35 | Открытое море | Передние — ласты; задние крошечные, без связи с позвоночником | Ноздри на середине морды | Редукция задних ног в полностью водной форме |
| Современные киты | 34–0 | Море, некоторые — реки | Ласты; от таза остались рудименты | Дыхало на темени; эхолокация у зубатых | Усатые и зубатые — две ветви одного ствола |
Современная система китопарнокопытных
Сегодня молекулярные и морфологические данные согласованы, и древо китопарнокопытных выглядит так.
- Непарнокопытные — лошади, носороги, тапиры
- Cetartiodactyla — китопарнокопытные, или парнокопытные в современном объёме, включая китов
- Мозоленогие — верблюды, ламы
- Свинообразные — свиньи, пекари
- Жвачные — олени, быки
- Мозоленогие (верблюды, ламы, викуньи) — сестринская группа всем остальным. У них нет копыт в строгом смысле: пальцы опираются на мозолистые подушки.
- Свинообразные (свиньи, пекари).
- Жвачные — самая многочисленная ветвь: оленьки, олени, жирафы, вилороги, полорогие (быки, антилопы, козы, бараны). Многокамерный желудок и жвачка.
- Whippomorpha — бегемотовые и китообразные. Общий предок жил, по молекулярным оценкам, 53–55 млн лет назад.
Положение свиней и мозоленогих в разных работах слегка различается, но узел «бегемоты + киты» и узел «жвачные + (бегемоты + киты)» устойчивы во всех современных анализах. Внутри китообразных около 90 видов: усатые киты (синий, финвал, горбач, гренландский, серый) и зубатые (дельфины, косатка, кашалот, белуха, нарвал, клюворылы, речные дельфины).
Бегемоты: сестринская группа, а не предки
Частая ошибка — сказать, что киты «произошли от бегемотов». Бегемоты и киты — две сестринские ветви одного ствола. Их общий предок был, вероятно, небольшим полуводным парнокопытным вроде индохиуса; ветвь китов ушла в море, а ветвь бегемотов долго оставалась на суше и у воды: современные бегемотовые появляются в летописи около 16 млн лет назад и происходят от антракотериев — вымершего семейства полуводных парнокопытных, известного с позднего эоцена. Два современных вида, обыкновенный и карликовый бегемоты, — последние представители когда-то разнообразной группы.
Общие черты бегемотов и китов отчасти унаследованы от полуводного предка, отчасти приобретены независимо. К наследству относят почти голую кожу с толстым подкожным жиром, отсутствие сальных желёз, рождение и выкармливание детёнышей в воде (бегемотиха кормит под водой), общение звуками под водой, многокамерный желудок и расположение семенников внутри тела. А вот высоко посаженные глаза и ноздри бегемота — конвергенция: у китов ноздри ушли на темя своим путём, уже после расхождения ветвей.
Что ещё помнит тело кита
История с таранной костью — лишь самое наглядное из доказательств. Тело кита хранит наземное прошлое на всех уровнях, и именно эти факты спрашивают в заданиях о доказательствах эволюции.
| Группа доказательств | Что наблюдаем у китов |
|---|---|
| Палеонтологические | Переходные формы пакицет, амбулоцет, родоцет, базилозавр: последовательная редукция задних ног, смещение ноздрей, перестройка уха |
| Сравнительно-анатомические | Ласт кита гомологичен руке человека и передней ноге бегемота: плечевая, лучевая и локтевая кости, запястье, пять пальцев (у некоторых китов с добавочными фалангами). Рудименты тазовых костей, не связанные с позвоночником. Атавизм — редкие дельфины с зачатками задних конечностей. Многокамерный желудок, как у жвачных. Хвостовой плавник и обтекаемое тело — аналогичные органы, конвергенция с рыбами и ихтиозаврами |
| Эмбриологические | У зародышей китов закладываются и затем рассасываются почки задних конечностей; есть волосы (у взрослых остаются лишь щетинки на морде); у зародышей усатых китов закладываются зубы; ноздри в ходе развития переезжают с конца морды на темя |
| Молекулярно-генетические | Гены белков молока и митохондрий ближе к бегемотам, чем к любым другим млекопитающим; общие вставки SINE с бегемотами и жвачными; гены обоняния у китов превращены в псевдогены |
| Физиологические | Лёгочное дыхание, постоянная температура тела, четырёхкамерное сердце, живорождение, молочные железы: всё, что отличает млекопитающих, у китов сохранено, несмотря на водную жизнь |

Как ласт стал ластом. Передняя нога, превращаясь в ласт, не потеряла ни одной кости: кит гребёт теми же плечом, предплечьем и кистью, что и наземные млекопитающие, только пальцы одеты единой кожной лопастью, а локтевой сустав неподвижен. Задняя нога пошла другим путём: у зародышей дельфинов почки задних конечностей закладываются на четвёртой неделе и исчезают к шестой, потому что перестаёт работать ген-регулятор развития конечности. Поэтому у взрослого кита от задних ног остаются только отдельные кости таза, а изредка рождаются особи, у которых зачатки доросли до наружных плавников, — атавизм, напоминающий о четвероногих предках.


Как отвечать на экзамене
В кодификаторе ЕГЭ эта история живёт в двух местах: в теме о классификации животных (класс Млекопитающие, отряды и их признаки) и в теме о доказательствах эволюции (палеонтологические, сравнительно-анатомические, эмбриологические, молекулярные) и путях эволюции (дивергенция, конвергенция, идиоадаптация). С 2027 года к ним добавились задания на чтение кладограмм в линиях 11 и 27, и древо китопарнокопытных — удобный пример для тренировки. Конспекты тренажёра: уроки «Гомологичные и аналогичные органы, переходные формы», «Палеонтологические, биогеографические, эмбриологические и анатомические доказательства», «Рудименты, атавизмы и молекулярные доказательства» и «Принципы классификации»; задания — в теме 6.3 тренажёра ЕГЭ по биологии. Для девятиклассников — урок «Млекопитающие» тренажёра ОГЭ.
Что писать в школьной системе. Кит, дельфин, кашалот — класс Млекопитающие, отряд Китообразные; подотряды усатые (китовый ус, фильтрация планктона, синий кит, гренландский кит) и зубатые (однородные зубы, эхолокация, дельфины, кашалот, косатка). Признаки отряда: обтекаемое тело, передние конечности — ласты, задних нет, хвостовой плавник горизонтальный, волосяной покров почти отсутствует, толстый слой подкожного жира, ноздри (дыхало) на темени, дышат лёгкими, живородящие, выкармливают молоком, теплокровные. Бегемот, свинья, корова, олень, верблюд — отряд Парнокопытные (мозоленогих в ряде учебников выделяют в отдельный отряд). Отвечая на вопрос о родстве, можно добавить: по современным данным китообразные произошли от древних парнокопытных и ближе всего к бегемотам.
Частые ошибки. Кита называют рыбой или пишут, что он дышит жабрами. Хвостовой плавник кита «вертикальный, как у рыб» — он горизонтальный и работает вверх-вниз. Ласт кита и плавник акулы называют гомологичными — это аналогичные органы, а гомологичен ласту крыло летучей мыши и рука человека. Бегемота называют предком кита — он сестринская группа. Пакицета называют «полукитом-полурыбой» — это наземное млекопитающее. Тазовые кости кита называют атавизмом — это рудимент (есть у всех особей); атавизм — зачатки задних конечностей у отдельных дельфинов. Переходные формы относят к сравнительно-анатомическим доказательствам — они палеонтологические.
Интересные факты
- Бегемот не умеет плавать в обычном смысле: он слишком тяжёл и ходит или бежит по дну, отталкиваясь ногами, как космонавт в невесомости. Под водой он может провести около пяти минут, а спящий бегемот всплывает за воздухом, не просыпаясь.
- «Кровавый пот» бегемота — не кровь и не пот: кожные железы выделяют красноватую и оранжевую кислоты, которые поглощают ультрафиолет и подавляют бактерии. Это солнцезащитный крем и антисептик в одном растворе.
- Первые кости базилозавра в 1830-х годах продавали как останки морского змея, а один предприимчивый собиратель составил из позвонков нескольких особей 35-метрового «гидрархоса» и возил его по Европе, пока Ричард Оуэн не доказал, что это млекопитающее.
- У дельфина-афалины, пойманного у берегов Японии в 2006 году, на месте задних конечностей были две небольшие лопасти — зачатки задних ног, доросшие до наружных плавников. Такие случаи известны и у горбачей.
- Синий кит длиной до 30 м и массой около 150 т — самое крупное животное за всю историю Земли, тяжелее любого динозавра. Его сердце величиной с небольшой автомобиль, а детёныш за день прибавляет до 90 кг на молоке жирностью 35–50 %.
- Кашалот ныряет на два километра и задерживает дыхание больше часа: кислород запасается в мышцах, богатых миоглобином, а не в лёгких, которые при погружении спадаются.
- Майацет — единственный ископаемый кит, найденный вместе с плодом. По положению плода головой вперёд палеонтологи узнали, что 47 млн лет назад киты ещё рожали на суше: современные киты рождаются хвостом вперёд, чтобы не захлебнуться.
Задания с разбором
Задание 1. Множественный выбор
Выберите три признака, которые доказывают принадлежность китообразных к классу Млекопитающие.
- Дышат жабрами, извлекая кислород из воды.
- Выкармливают детёнышей молоком.
- Хвостовой плавник расположен горизонтально и движется вверх-вниз.
- Тело покрыто костной чешуёй.
- Имеют постоянную температуру тела и четырёхкамерное сердце.
- Размножаются, откладывая икру в воду.
Разбор
Верно 2, 3, 5. Киты дышат лёгкими (1), кожа голая (4), они живородящие (6). Горизонтальный хвостовой плавник — результат изгибов позвоночника в вертикальной плоскости, как при беге наземных млекопитающих; у рыб хвост вертикальный.
Ответ: 235.
Задание 2. Установите соответствие
Установите соответствие между фактом и группой доказательств эволюции: 1) палеонтологические; 2) сравнительно-анатомические; 3) молекулярно-генетические.
А) скелеты пакицета и амбулоцета с задними конечностями; Б) рудиментарные тазовые кости у современных китов; В) одинаковые вставки мобильных элементов в ДНК китов и бегемотов; Г) ласт кита и рука человека построены из одинаковых костей; Д) таранная кость с двойным блоком у родоцета; Е) сходство генов белков молока у китов и бегемотов.
Разбор
Ископаемые и их кости — палеонтологические (А, Д — 1). Рудименты и гомологичные органы живых животных — сравнительно-анатомические (Б, Г — 2). ДНК и гены — молекулярно-генетические (В, Е — 3).
Ответ: 123213.
Задание 3. Установите соответствие
Установите соответствие между признаком и отрядом млекопитающих: 1) Китообразные; 2) Парнокопытные.
А) передние конечности превращены в ласты; Б) ось конечности проходит между третьим и четвёртым пальцами, пальцы одеты копытами; В) ноздри смещены на темя; Г) у многих представителей четырёхкамерный желудок и жвачка; Д) задних конечностей нет, от таза сохранились рудименты; Е) волосяной покров развит, есть потовые железы.
Разбор
А, В, Д — китообразные; Б, Г, Е — парнокопытные. Заметьте, что многокамерный желудок есть и у китов, но жвачки у них нет.
Ответ: 121212.
Задание 4. Установите последовательность
Расположите формы в порядке их появления в палеонтологической летописи, начиная с самой древней.
- дорудон — полностью водный кит с крошечными задними ногами
- пакицет — наземное четвероногое с «китовым ухом»
- амбулоцет — полуводный хищник с ластовидными ступнями
- родоцет — морской кит с двойным блоком в голеностопе
- современные усатые киты
Разбор
Пакицет (около 50 млн лет) → амбулоцет (49–48) → родоцет (47) → дорудон (40–35) → современные усатые киты (после разделения с зубатыми 34 млн лет назад).
Ответ: 23415.
Задание 5. Работа с кладограммой
Рассмотрите кладограмму в разделе «Современная система китопарнокопытных». Какая группа является сестринской для китообразных? Какие группы входят в кладу Artiofabula? Является ли монофилетической группа «парнокопытные без китообразных» (мозоленогие, свинообразные, жвачные, бегемотовые)? Какая из перечисленных групп дальше всех от китообразных?
Разбор
Сестринская группа китообразных — бегемотовые: они отходят от одного узла (клада Whippomorpha). Клада Artiofabula объединяет свинообразных, жвачных, бегемотовых и китообразных — всех китопарнокопытных, кроме мозоленогих. Группа «парнокопытные без китов» включает общего предка всех китопарнокопытных и не всех его потомков, поэтому она парафилетическая, а не монофилетическая. Дальше всех от китообразных среди китопарнокопытных — мозоленогие, а из всех групп на схеме — непарнокопытные, которые лежат вне клады Cetartiodactyla.
Задание 6. Работа с рисунком
По схеме вставок SINE в разделе о молекулярных данных определите: у каких животных есть вставка в участке Б и о чём это говорит; какие два животных на схеме — ближайшие родственники; почему вставки в участке А нет у верблюда — он её утратил или она у его предков не возникала?
Разбор
Вставка Б есть у коровы, бегемота и кита: она возникла у их общего предка после отделения ветви свиней, значит, жвачные ближе к бегемотам и китам, чем свиньи. Ближайшие родственники — бегемот и кит: только у них есть вставка В. Вставка А возникла у общего предка всех групп, кроме мозоленогих, уже после того, как ветвь верблюдов отделилась; вставки мобильных элементов практически не удаляются из генома бесследно, поэтому её отсутствие означает, что у предков верблюда она никогда не возникала.
Задание 7. Установите соответствие
Установите соответствие между парой органов и их типом: 1) гомологичные; 2) аналогичные.
А) ласт кита и крыло летучей мыши; Б) хвостовой плавник кита и хвостовой плавник акулы; В) ласт кита и ласт ихтиозавра; Г) ласт кита и передняя нога бегемота; Д) обтекаемое тело дельфина и тунца; Е) кости кисти в ласте кита и в руке человека.
Разбор
Гомологичны органы общего происхождения, построенные по одному плану: передние конечности всех наземных позвоночных (А, Г, Е — 1). Аналогичны органы сходной функции, но разного происхождения: хвост кита образован позвонками и кожной лопастью, у акулы — иначе; ласт ихтиозавра — конечность рептилии, независимо ставшая ластом; форма тела — результат конвергенции (Б, В, Д — 2). Ласт кита и ласт ихтиозавра как передние конечности позвоночных гомологичны в глубоком смысле, но как ласты — аналогичны: превращение в ласт у них произошло независимо, и в заданиях эту пару относят к конвергенции.
Ответ: 122121.
Задание 8. Найдите ошибки в тексте
Найдите три ошибки в приведённом тексте, укажите номера предложений и исправьте их.
(1) Китообразные — отряд млекопитающих, полностью перешедших к жизни в воде. (2) Киты дышат жабрами, поэтому могут подолгу находиться под водой. (3) Предки китов были наземными парнокопытными, что подтверждают ископаемые пакицеты и амбулоцеты. (4) Ближайшие современные родственники китов — тюлени. (5) У зародышей китов закладываются зачатки задних конечностей, которые затем исчезают. (6) Хвостовой плавник кита расположен вертикально, как у рыб. (7) Усатые киты питаются планктоном, отцеживая его китовым усом.
Разбор
2 — киты дышат лёгкими, а долго не всплывают благодаря запасу кислорода в мышцах (миоглобин) и замедлению сердцебиения. 4 — ближайшие родственники китов — бегемоты; тюлени относятся к хищным. 6 — хвостовой плавник китов горизонтальный.
Ответ: ошибки в предложениях 2, 4, 6.
Задание 9. Развёрнутый ответ
Какие доказательства указывают на происхождение китообразных от наземных млекопитающих? Приведите не менее четырёх групп доказательств с примерами.
Разбор
1) Палеонтологические: переходные формы пакицет, амбулоцет, родоцет, базилозавр показывают постепенную редукцию задних ног и смещение ноздрей на темя. 2) Сравнительно-анатомические: ласт кита гомологичен конечности наземных млекопитающих (те же кости), рудименты тазовых костей, атавизмы — зачатки задних конечностей у отдельных дельфинов. 3) Эмбриологические: у зародышей закладываются задние конечности, волосы, а у усатых китов — зубы, которые затем исчезают. 4) Молекулярно-генетические: гены китов ближе всего к генам бегемотов, общие вставки мобильных элементов с парнокопытными. 5) Физиологические: лёгочное дыхание, теплокровность, живорождение, выкармливание молоком — признаки наземных млекопитающих, сохранившиеся в воде.
Задание 10. Развёрнутый ответ
Почему с точки зрения современной систематики отряд Парнокопытные в традиционном объёме, то есть без китообразных, не считают естественной группой? Что предложено взамен и почему в школьных заданиях отряды по-прежнему разделяют?
Разбор
1) Естественной (монофилетической) считается группа, включающая общего предка и всех его потомков. 2) Молекулярные данные и ископаемые показали, что китообразные произошли от древних парнокопытных и ближе к бегемотам, чем бегемоты к свиньям или верблюдам, то есть киты — потомки общего предка парнокопытных. 3) Отряд без китов включает предка, но не всех потомков, поэтому он парафилетический. 4) Предложена объединённая клада Китопарнокопытные (Cetartiodactyla) либо расширенный отряд Парнокопытные, включающий китов. 5) Школьная система основана на общих признаках строения и образа жизни, в ней отряды — удобные группы с чёткими признаками; при ответе на экзамене следует использовать её, при необходимости указав современные данные о родстве.
Задание 11. Развёрнутый ответ
У дельфина-афалины, пойманного у берегов Японии, обнаружена пара небольших дополнительных плавников на месте задних конечностей. Как называется это явление, о чём оно свидетельствует и чем отличается от рудимента? Объясните, почему у большинства китов задние конечности не развиваются.
Разбор
1) Это атавизм — проявление у отдельной особи признака далёких предков. 2) Он свидетельствует о том, что предки китов были четвероногими наземными животными и что гены развития задних конечностей в геноме китов сохранились. 3) Рудимент — недоразвитый орган, имеющийся у всех особей вида (тазовые кости китов); атавизм встречается у единичных особей. 4) У зародышей китов зачатки задних конечностей закладываются, но затем прекращается работа генов-регуляторов их роста, и зачатки рассасываются; при нарушении этой регуляции зачаток продолжает развиваться, и возникает атавизм.
Задание 12. Развёрнутый ответ
Можно ли утверждать, что киты произошли от бегемотов? Ответ обоснуйте, используя данные палеонтологии и молекулярной биологии. Какие водные черты бегемотов и китов унаследованы от общего предка, а какие возникли независимо?
Разбор
1) Нет: киты и бегемоты — сестринские группы, потомки общего предка, ни одна из них не произошла от другой. 2) Палеонтология: древнейшие киты известны с возраста около 50 млн лет, а бегемотовые появляются лишь около 16 млн лет назад, происходя от антракотериев; молекулярные часы датируют расхождение ветвей 53–55 млн лет назад. 3) Молекулярные данные (гены и общие вставки мобильных элементов) показывают лишь, что бегемоты — ближайшие живые родственники китов, а не их предки. 4) От полуводного предка, вероятно, унаследованы почти голая кожа с подкожным жиром, рождение и кормление детёнышей в воде, общение под водой, многокамерный желудок. Независимо возникли высоко посаженные глаза и ноздри бегемота и дыхало на темени у китов: эти признаки развились после расхождения ветвей (конвергенция).
Литература
- Кэрролл Р. Палеонтология и эволюция позвоночных: в 3 т. М.: Мир, 1992–1993.
- Дзержинский Ф. Я., Васильев Б. Д., Малахов В. В. Зоология позвоночных. М.: Академия, 2013.
- Thewissen J. G. M. The Walking Whales: From Land to Water in Eight Million Years. Berkeley: University of California Press, 2014.
- Thewissen J. G. M., Cooper L. N., George J. C., Bajpai S. From land to water: the origin of whales, dolphins, and porpoises // Evolution: Education and Outreach. 2009. Vol. 2. P. 272–288.
- Gatesy J., Hayashi C., Cronin M. A., Arctander P. Evidence from milk casein genes that cetaceans are close relatives of hippopotamid artiodactyls // Molecular Biology and Evolution. 1996. Vol. 13. P. 954–963.
- Montgelard C., Catzeflis F. M., Douzery E. Phylogenetic relationships of artiodactyls and cetaceans as deduced from the comparison of cytochrome b and 12S rRNA mitochondrial sequences // Molecular Biology and Evolution. 1997. Vol. 14. P. 550–559.
- Shimamura M. et al. Molecular evidence from retroposons that whales form a clade within even-toed ungulates // Nature. 1997. Vol. 388. P. 666–670.
- Nikaido M., Rooney A. P., Okada N. Phylogenetic relationships among cetartiodactyls based on insertions of short and long interspersed elements: hippopotamuses are the closest extant relatives of whales // Proceedings of the National Academy of Sciences. 1999. Vol. 96. P. 10261–10266.
- Gingerich P. D., Smith B. H., Simons E. L. Hind limbs of Eocene Basilosaurus: evidence of feet in whales // Science. 1990. Vol. 249. P. 154–157.
- Thewissen J. G. M., Hussain S. T., Arif M. Fossil evidence for the origin of aquatic locomotion in archaeocete whales // Science. 1994. Vol. 263. P. 210–212.
- Gingerich P. D., Haq M., Zalmout I. S., Khan I. H., Malkani M. S. Origin of whales from early artiodactyls: hands and feet of Eocene Protocetidae from Pakistan // Science. 2001. Vol. 293. P. 2239–2242.
- Thewissen J. G. M., Williams E. M., Roe L. J., Hussain S. T. Skeletons of terrestrial cetaceans and the relationship of whales to artiodactyls // Nature. 2001. Vol. 413. P. 277–281.
- Boisserie J.-R., Lihoreau F., Brunet M. The position of Hippopotamidae within Cetartiodactyla // Proceedings of the National Academy of Sciences. 2005. Vol. 102. P. 1537–1541.
- Thewissen J. G. M., Cohn M. J., Stevens L. S., Bajpai S., Heyning J., Horton W. E. Developmental basis for hind-limb loss in dolphins and origin of the cetacean bodyplan // Proceedings of the National Academy of Sciences. 2006. Vol. 103. P. 8414–8418.
- Thewissen J. G. M., Cooper L. N., Clementz M. T., Bajpai S., Tiwari B. N. Whales originated from aquatic artiodactyls in the Eocene epoch of India // Nature. 2007. Vol. 450. P. 1190–1194.
- Gingerich P. D., ul-Haq M., von Koenigswald W., Sanders W. J., Smith B. H., Zalmout I. S. New protocetid whale from the middle Eocene of Pakistan: birth on land, precocial development, and sexual dimorphism // PLoS ONE. 2009. Vol. 4. P. e4366.
- Spaulding M., O’Leary M. A., Gatesy J. Relationships of Cetacea (Artiodactyla) among mammals: increased taxon sampling alters interpretations of key fossils and character evolution // PLoS ONE. 2009. Vol. 4. P. e7062.
- Gatesy J., Geisler J. H., Chang J., Buell C., Berta A., Meredith R. W. A phylogenetic blueprint for a modern whale // Molecular Phylogenetics and Evolution. 2013. Vol. 66. P. 479–506.
Обсуждение
Загружаем обсуждение…