
Вы съели бутерброд, и через час мышцы ног поднимают вас по лестнице, сердце бьётся, а мозг решает задачу. Всё это работа, и на неё нужна энергия. Энергия была запасена в химических связях глюкозы и других веществ пищи. Чтобы клетка могла ею воспользоваться, вещества нужно окислить — «сжечь», но не в пламени, а маленькими шагами, при температуре тела и без единой искры. Этот процесс называется клеточным дыханием.
В статье по порядку и с нуля: что такое клеточное дыхание и чем оно отличается от вдоха и выдоха; что такое АТФ и зачем клетке «энергетическая валюта»; как глюкоза шаг за шагом превращается в углекислый газ и воду — гликолиз, окисление пировиноградной кислоты, цикл Кребса, дыхательная цепь и АТФ-синтаза; сколько АТФ даёт одна молекула глюкозы по школьному и по современному счёту; что происходит без кислорода (брожение); как дыхание греет тело и почему цианид смертелен. Все химические превращения показаны структурными формулами. В конце — формулировки для ЕГЭ, материал для олимпиад и 15 заданий с разбором.
- Что такое клеточное дыхание
- АТФ — энергетическая валюта клетки
- Переносчики водорода: НАД и ФАД
- Три этапа энергетического обмена
- Митохондрия — где идёт кислородный этап
- Гликолиз
- Судьба пировиноградной кислоты
- Цикл Кребса
- Дыхательная цепь
- АТФ-синтаза и хемиосмос
- Сколько АТФ даёт одна молекула глюкозы
- Если кислорода нет: брожение
- Не только глюкоза: жиры и белки
- Как клетка регулирует дыхание
- Дыхание, которое греет
- Яды дыхания
- История изучения
- Удивительные факты
- Что пока не решено
- Что писать на ЕГЭ
- Для олимпиад
- Задания с разбором
Что такое клеточное дыхание
Определение. Клеточное дыхание — окисление органических веществ в клетке, при котором выделяющаяся энергия запасается в молекулах АТФ. При аэробном (кислородном) дыхании вещества окисляются до углекислого газа и воды, а конечным акцептором (приёмником) электронов служит кислород.
Суммарно для глюкозы:
C6H12O6 + 6O2 → 6CO2 + 6H2O + энергия (2800–2900 кДж на моль глюкозы)
Точно такое же уравнение описывает горение глюкозы, и выделяется при горении столько же энергии. Разница в том, как она выделяется. При горении вся энергия сразу превращается в тепло и свет. В клетке окисление разбито примерно на тридцать реакций, каждую из которых ведёт свой фермент. Энергия высвобождается небольшими порциями, и значительная часть её не рассеивается, а запасается: из АДФ и фосфорной кислоты синтезируется АТФ. Остальное выделяется в виде тепла — именно этим теплом поддерживается температура нашего тела.
Не путайте клеточное дыхание с дыханием в бытовом смысле — вдохом и выдохом. Лёгкие, жабры и трахеи только доставляют клеткам кислород и уносят углекислый газ (это газообмен). Само дыхание происходит в каждой клетке. Дышат все аэробные организмы: животные, грибы, большинство бактерий и растения — причём растения дышат и днём, и ночью, а не только в темноте; днём их дыхание просто незаметно на фоне фотосинтеза.
Клеточное дыхание — часть энергетического обмена (катаболизма, диссимиляции): совокупности реакций расщепления, дающих клетке энергию. Противоположный процесс — пластический обмен (анаболизм, ассимиляция), реакции синтеза, которые эту энергию тратят. Фотосинтез и дыхание связаны в один круговорот: при фотосинтезе из CO2 и воды за счёт энергии света образуются глюкоза и кислород, при дыхании глюкоза и кислород снова превращаются в CO2 и воду (подробно — в статье о фотосинтезе).
АТФ — энергетическая валюта клетки
Глюкоза — хороший склад энергии, но платить ею неудобно: энергии в одной молекуле глюкозы слишком много для одной реакции, и выделяется она только после длинной цепи превращений. Клетке нужна «мелкая монета», которую одинаково принимают все её «машины»: мышечные белки, насосы мембран, ферменты синтеза. Такой монетой служит аденозинтрифосфат (АТФ).
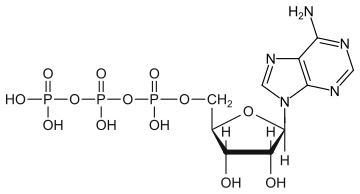
Молекула АТФ состоит из трёх частей: азотистого основания аденина, пятиуглеродного сахара рибозы и цепочки из трёх остатков фосфорной кислоты. Аденин и рибоза вместе называются аденозином; АТФ — нуклеотид, близкий родственник нуклеотидов РНК.
Связи между остатками фосфорной кислоты называют макроэргическими (богатыми энергией). Когда концевой остаток отщепляется (гидролиз), выделяется много энергии:
АТФ + H2O → АДФ + H3PO4 + 40 кДж
Число 40 кДж на моль приводится в школьных учебниках; в стандартных условиях биохимики дают 30,5 кДж/моль, а в живой клетке, где АТФ много, а АДФ и фосфата мало, выделяется около 50 кДж/моль. Энергия «сидит» не в самой связи, а в том, что продукты гидролиза устойчивее АТФ: четыре отрицательных заряда цепочки фосфатов отталкиваются, а АДФ и фосфат-ион лучше удерживают свои электроны и сильнее взаимодействуют с водой.
Отщепив ещё один остаток, получают АМФ (аденозинмонофосфат). Обратная реакция — фосфорилирование АДФ — требует энергии, и её как раз даёт дыхание.
Запас АТФ в клетке крошечный: в организме взрослого человека одновременно около 250 г АТФ, и работающая мышца израсходовала бы его за несколько секунд. Поэтому АТФ постоянно расходуется и снова синтезируется: за сутки через этот цикл проходят десятки килограммов АТФ — масса, сравнимая с массой собственного тела. АТФ — не склад, а оборотные деньги. Склады — гликоген, жир и, в мышцах, креатинфосфат, который за доли секунды отдаёт фосфат обратно на АДФ.
Переносчики водорода: НАД и ФАД
Окисление в химии — это отдача электронов. Органические вещества при окислении чаще всего теряют атомы водорода (протон и электрон вместе), поэтому окисление в клетке выглядит как отнятие водорода, или дегидрирование. Ферменты, которые это делают, называются дегидрогеназами. Но атомы водорода не отдаются сразу кислороду: их принимают молекулы-переносчики.
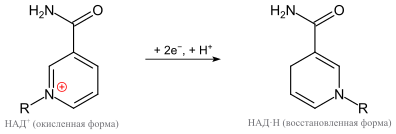
Главный переносчик — НАД⁺ (никотинамидадениндинуклеотид). Его рабочая часть — кольцо никотинамида, производного витамина PP (никотиновой кислоты). Окисленная форма НАД⁺ принимает от вещества два электрона и один протон (вместе они составляют гидрид-ион H⁻), второй протон уходит в раствор. Получается восстановленная форма НАД·Н. В школьных пособиях её иногда записывают как НАД·Н2, подразумевая, что переносится пара атомов водорода; биохимики пишут НАД·Н + H⁺.
Второй переносчик — ФАД (флавинадениндинуклеотид), производное витамина B2 (рибофлавина). Он принимает два атома водорода и превращается в ФАД·Н2. ФАД обычно прочно связан со своим ферментом.
Удобно представлять НАД⁺ и ФАД как пустые тележки: в ходе гликолиза и цикла Кребса тележки нагружаются водородом, а на внутренней мембране митохондрии разгружаются — отдают электроны дыхательной цепи и снова уходят за грузом. Сама энергия АТФ появляется в основном при разгрузке тележек. Поэтому, разбирая каждый этап, важно считать не только АТФ, но и НАД·Н с ФАД·Н2.
Три этапа энергетического обмена
В школьном курсе энергетический обмен делят на три этапа.
В школьном курсе этапы 3–5 объединяют в кислородный (аэробный) этап. По школьному счёту он даёт 36 АТФ, а вместе с гликолизом — 38; по современным измерениям выход меньше, около 30–32 АТФ.
| Этап | Где идёт | Что происходит | Сколько АТФ на глюкозу |
|---|---|---|---|
| Подготовительный | пищеварительный тракт, лизосомы | полимеры расщепляются до мономеров | 0 (энергия рассеивается как тепло) |
| Бескислородный (гликолиз) | цитоплазма | глюкоза → 2 молекулы пировиноградной кислоты | 2 |
| Кислородный (аэробный) | митохондрии | пировиноградная кислота → CO2 и H2O | 36 по школьному счёту (около 28 по современному) |
Подготовительный этап клеточным дыханием в строгом смысле не считают: при нём ничего не окисляется, идёт гидролиз — расщепление крупных молекул с участием воды. Крахмал и гликоген превращаются в глюкозу, белки — в аминокислоты, жиры — в глицерин и жирные кислоты, нуклеиновые кислоты — в нуклеотиды. У многоклеточных животных этот этап идёт в пищеварительном тракте, внутри клеток — в лизосомах.
Митохондрия — где идёт кислородный этап
Гликолиз идёт в цитоплазме, а всё остальное — в митохондриях. Это органоиды длиной 1–10 мкм; в клетке печени их около тысячи и больше, в сердечной мышце они занимают до трети объёма клетки.
- Наружная мембрана гладкая и пропускает небольшие молекулы через белковые поры.
- Внутренняя мембрана образует складки — кристы. Она почти непроницаема для ионов, в том числе для протонов, и в ней сидят белки дыхательной цепи и АТФ-синтаза. Чем больше крист, тем больше площадь «энергостанции»: у клеток летательных мышц насекомых и сердца кристы густые, у малоактивных клеток — редкие.
- Между мембранами — узкое межмембранное пространство; туда дыхательная цепь откачивает протоны.
- Внутри — матрикс: гелеобразное содержимое с ферментами цикла Кребса, собственной кольцевой ДНК и рибосомами бактериального типа.
Своя ДНК и свои рибосомы — следы происхождения: митохондрии потомки бактерий, поселившихся в клетке-хозяине около двух миллиардов лет назад (подробно — в статье о симбиогенезе). Митохондрии размножаются делением и передаются потомкам в основном с цитоплазмой яйцеклетки, то есть по материнской линии.
Не во всех клетках есть митохондрии. Эритроциты млекопитающих теряют их при созревании и получают энергию только гликолизом — поэтому эритроцит не расходует кислород, который сам же и переносит.
Гликолиз
Гликолиз (от греч. «сладкий» и «растворение») — расщепление глюкозы до двух молекул пировиноградной кислоты. Он идёт в цитоплазме, не требует кислорода и есть почти у всех живых организмов — от бактерий до человека. Это, по-видимому, один из самых древних путей обмена: он возник, когда кислорода в атмосфере ещё не было.
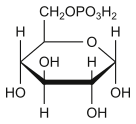
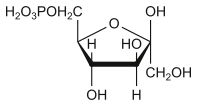
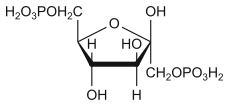
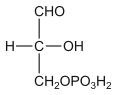
Гликолиз состоит из десяти реакций, и каждую ведёт свой фермент. Их удобно разделить на две половины. На схемах ниже справа от каждой стрелки — номер реакции, фермент и то, что при этой реакции тратится или образуется. Сахара нарисованы в проекциях Хеуорса: кольцо как бы лежит перпендикулярно странице, жирная сторона — ближняя к нам, а группы атомов расположены над кольцом и под ним. Трёхуглеродные вещества записаны вертикально: углеродная цепь сверху вниз, заместители — слева и справа.
Первая половина: вложение энергии
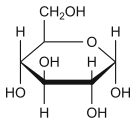 глюкоза
АТФ → АДФ: к глюкозе присоединяется остаток фосфорной кислоты
 глюкозо-6-фосфат
глюкоза перестраивается во фруктозу
 фруктозо-6-фосфат
АТФ → АДФ: второй остаток фосфорной кислоты
 фруктозо-1,6-бисфосфат
молекула раскалывается на две трёхуглеродные
 дигидроксиацетонфосфат
 глицеральдегид-3-фосфат
5. Изомераза превращает дигидроксиацетонфосфат в глицеральдегид-3-фосфат, поэтому дальше идут две одинаковые молекулы глицеральдегид-3-фосфата.
Сначала клетка не получает энергию, а тратит её. Глюкоза получает остаток фосфорной кислоты от АТФ и превращается в глюкозо-6-фосфат (фермент гексокиназа). Заряженный фосфат не даёт молекуле выйти через мембрану — глюкоза «заперта» в клетке. Затем глюкозо-6-фосфат перестраивается во фруктозо-6-фосфат, и вторая молекула АТФ присоединяет ещё один фосфат: образуется фруктозо-1,6-бисфосфат (фермент фосфофруктокиназа; это главная регулируемая реакция гликолиза, о ней ниже). Молекула с двумя фосфатами на концах неустойчива и раскалывается пополам на две трёхуглеродные молекулы: дигидроксиацетонфосфат и глицеральдегид-3-фосфат. Первая из них тут же превращается во вторую, так что дальше идут две одинаковые молекулы глицеральдегид-3-фосфата.
Итог первой половины: на одну глюкозу потрачено 2 АТФ, получено 2 молекулы трёхуглеродного сахара с фосфатом.
Вторая половина: получение энергии
глицеральдегид-3-фосфатНАД⁺ → НАД·Н; присоединяется H₃PO₄ (без затраты АТФ)
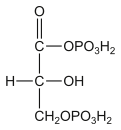 1,3-бисфосфоглицерат
АДФ → АТФ
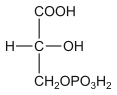 3-фосфоглицерат
остаток фосфорной кислоты переходит ко второму атому углерода
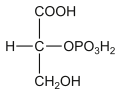 2-фосфоглицерат
отщепляется H₂O
 фосфоенолпируват
АДФ → АТФ
 пировиноградная кислота
Шаги 6–10 проходят обе молекулы глицеральдегид-3-фосфата: на одну глюкозу — 4 АТФ и 2 НАД·Н.
Теперь каждая из двух трёхуглеродных молекул проходит пять реакций.
- Глицеральдегид-3-фосфат окисляется: альдегидная группа становится карбоксильной, водород уходит на НАД⁺, а энергия окисления не теряется, а используется, чтобы присоединить ещё один фосфат — из раствора, без затраты АТФ. Получается 1,3-бисфосфоглицерат. Это единственная окислительная реакция гликолиза.
- Фосфат с первого атома углерода переносится на АДФ: образуется АТФ.
- Оставшийся фосфат перемещается с третьего атома углерода на второй.
- Отщепляется вода, и получается фосфоенолпируват — вещество с очень «напряжённым» фосфатом.
- Этот фосфат переходит на АДФ: ещё одна АТФ, а из остатка образуется пировиноградная кислота.
Такой способ синтеза АТФ, когда фосфат прямо переходит с богатого энергией вещества на АДФ, называют субстратным фосфорилированием. Он не требует мембран и кислорода.
Посчитаем итог. Во второй половине каждая из двух молекул даёт 2 АТФ, всего 4 АТФ; в первой половине 2 АТФ потрачено. Чистый выход — 2 АТФ, а также 2 НАД·Н и 2 молекулы пировиноградной кислоты:
C6H12O6 + 2НАД⁺ + 2АДФ + 2H3PO4 → 2C3H4O3 + 2НАД·Н + 2H⁺ + 2АТФ + 2H2O
Пировиноградную кислоту в клетке правильнее называть пируватом: при нейтральной среде клетки кислоты почти полностью отдают протон и существуют в виде анионов. По той же причине биохимики говорят «цитрат», «малат», «лактат». На рисунках статьи кислоты и фосфаты для простоты показаны неионизированными, как в школьных учебниках.
Школьные числа. В задачах ЕГЭ встречаются такие данные: при гликолизе одной молекулы (точнее, моля) глюкозы выделяется 200 кДж; из них 80 кДж (40 %) запасается в двух молекулах АТФ, а 120 кДж рассеивается в виде тепла. На кислородном этапе выделяется около 2600 кДж, из них около 1440 кДж (55 %) запасается в 36 АТФ.
Судьба пировиноградной кислоты
После гликолиза дорога разветвляется. Если кислорода достаточно и в клетке есть митохондрии, пировиноградная кислота переходит в митохондрию и окисляется до конца. Если кислорода нет, клетка превращает её в молочную кислоту или спирт — это брожение, о нём ниже.
В митохондрии пировиноградная кислота попадает к огромному ферментному комплексу — пируватдегидрогеназе (в нём десятки белковых цепей и пять коферментов). Там происходит окислительное декарбоксилирование: от молекулы отщепляется CO2, двухуглеродный остаток окисляется, его водород уходит на НАД⁺, а сам остаток присоединяется к коферменту А (КоА, HSCoA). Получается ацетил-КоА.
пировиноградная кислотаНАД⁺ → НАД·Н; отщепляется CO₂; присоединяется кофермент А (HSCoA)
 ацетил-КоА
Эта реакция необратима, и именно здесь из организма выходит первая «порция» углерода: два из шести атомов углерода глюкозы (по одному из каждой молекулы пировиноградной кислоты) превращаются в CO2. Итог на одну глюкозу: 2 ацетил-КоА, 2 CO2 и 2 НАД·Н.
Одному из коферментов пируватдегидрогеназы нужен витамин B1 (тиамин). При его недостатке пируват не окисляется и накапливается; сильнее всего страдают нервная система и сердце, которые живут почти только окислением глюкозы. Так развивается болезнь бери-бери, известная у народов, питавшихся почти одним шлифованным рисом.
Цикл Кребса
Ацетил-КоА поступает в цикл трикарбоновых кислот (цикл лимонной кислоты), открытый Хансом Кребсом в 1937 году. Цикл идёт в матриксе митохондрии. Его называют циклом, потому что вещество, с которого он начинается, в конце восстанавливается и снова вступает в реакцию.
Последняя стрелка возвращает к лимонной кислоте: щавелевоуксусная кислота присоединяет ацетил-КоА, и цикл повторяется.
А теперь те же реакции со структурными формулами. Справа от каждой стрелки — номер реакции, фермент и то, что при ней тратится или образуется.
ацетил-КоА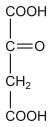 щавелевоуксусная кислота
+ H₂O; освобождается HSCoA
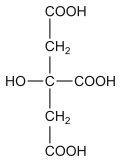 лимонная кислота
группа OH переходит к соседнему атому углерода
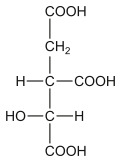 изолимонная кислота
НАД⁺ → НАД·Н; отщепляется CO₂
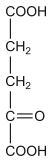 α-кетоглутаровая кислота
НАД⁺ → НАД·Н; отщепляется CO₂; присоединяется HSCoA
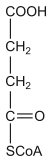 сукцинил-КоА
ГДФ → ГТФ (затем АДФ → АТФ); освобождается HSCoA
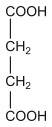 янтарная кислота
ФАД → ФАД·Н₂
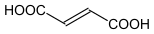 фумаровая кислота
+ H₂O
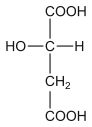 яблочная кислота
НАД⁺ → НАД·Н
щавелевоуксусная кислотаЩавелевоуксусная кислота снова присоединяет ацетил-КоА — круг замкнулся.
Проследим за атомами углерода.
- Двухуглеродный ацетильный остаток присоединяется к четырёхуглеродной щавелевоуксусной кислоте. Получается шестиуглеродная лимонная кислота, а кофермент А освобождается.
- Лимонная кислота перестраивается в изолимонную: гидроксильная группа переходит на соседний атом углерода.
- Изолимонная кислота окисляется (водород — на НАД⁺) и теряет CO2: получается пятиуглеродная α-кетоглутаровая кислота.
- Она снова окисляется и теряет CO2 (так же, как пировиноградная кислота у пируватдегидрогеназы): получается четырёхуглеродный сукцинил-КоА.
- Энергия связи с коферментом А идёт на синтез ГТФ (у растений и многих тканей сразу АТФ); ГТФ отдаёт фосфат на АДФ. Получается янтарная кислота.
- Янтарная кислота окисляется до фумаровой; водород принимает ФАД.
- Фумаровая кислота присоединяет воду и превращается в яблочную.
- Яблочная кислота окисляется (водород — на НАД⁺), и снова получается щавелевоуксусная кислота. Круг замкнулся.
Итог одного оборота: 2 атома углерода вошли с ацетилом и 2 атома ушли в виде CO2; образовались 3 НАД·Н, 1 ФАД·Н2 и 1 АТФ (через ГТФ). На одну глюкозу цикл совершает два оборота: 4 CO2, 6 НАД·Н, 2 ФАД·Н2, 2 АТФ.
Обратите внимание: в цикле Кребса нет ни одной реакции с кислородом O2. Кислород в молекулах CO2 происходит из воды и из самих органических кислот. И всё же без кислорода цикл останавливается: весь НАД⁺ превращается в НАД·Н, «пустые тележки» заканчиваются, и дегидрогеназам некуда сбрасывать водород. Разгружает тележки только дыхательная цепь, а ей нужен кислород.
Весь углерод глюкозы — шесть атомов — к концу цикла уходит в CO2: два при окислении пировиноградной кислоты и четыре в цикле. Этот углекислый газ мы и выдыхаем. А вот энергия глюкозы к этому моменту почти вся перешла в «тележки» НАД·Н и ФАД·Н2: АТФ получено всего 4 (2 в гликолизе и 2 в цикле).
Цикл Кребса — не только «печка» для глюкозы. В него впадают продукты распада жирных кислот и многих аминокислот, а из его веществ клетка строит аминокислоты, гем, жирные кислоты. Поэтому его называют перекрёстком обмена веществ.
Дыхательная цепь
Самая важная по выходу энергии часть дыхания идёт на внутренней мембране митохондрии. Здесь НАД·Н и ФАД·Н2 передают электроны дыхательной цепи (цепи переноса электронов) — последовательности белковых комплексов и небольших молекул-переносчиков, которые передают электроны друг другу, как вёдра по цепочке. В конце цепи электроны принимает кислород, присоединяет протоны из матрикса и превращается в воду:
O2 + 4e⁻ + 4H⁺ → 2H2O
На пару электронов от НАД·Н перекачивается 10 протонов, от ФАД·Н₂ — 6. Поэтому НАД·Н «стоит» больше АТФ, чем ФАД·Н₂.
Зачем такая длинная цепь, если можно сразу отдать электроны кислороду? При прямой реакции водорода с кислородом вся энергия выделилась бы взрывом тепла (так горит гремучая смесь). В цепи электроны переходят с одного переносчика на другой, всё ближе к кислороду, который притягивает их сильнее всех, и на каждом шаге отдают часть энергии. Эту энергию три комплекса (I, III и IV) используют для одного дела: перекачивают протоны H⁺ из матрикса в межмембранное пространство.
В переносе участвуют атомы железа (в гемах цитохромов и железосерных кластерах) и меди: они принимают и отдают электрон, меняя заряд Fe³⁺ ⇄ Fe²⁺, Cu²⁺ ⇄ Cu⁺. Поэтому цепь и не работает без железа и меди в пище.
Кислород — конечный акцептор электронов. Именно для этого мы и дышим: почти весь вдыхаемый кислород, который расходуется клетками, превращается в воду в комплексе IV. Эту воду называют метаболической: у некоторых пустынных животных (например, кенгуровых крыс) её хватает, чтобы почти никогда не пить.
АТФ-синтаза и хемиосмос
Долгое время не понимали, как перенос электронов связан с синтезом АТФ. Искали богатое энергией промежуточное вещество, как в гликолизе, но не нашли. В 1961 году английский биохимик Питер Митчелл предложил хемиосмотическую теорию: связующим звеном служит не вещество, а разность концентраций протонов по обе стороны мембраны.
Работая, дыхательная цепь накачивает протоны в межмембранное пространство. Там их становится больше, чем в матриксе, а наружная сторона внутренней мембраны заряжается положительно. Протоны «хотят» вернуться обратно — их тянет и разница концентраций, и электрическое поле. Это похоже на воду за плотиной: высота воды — запас энергии. Но через внутреннюю мембрану протонам путь закрыт, кроме одного входа — канала фермента АТФ-синтазы.
АТФ-синтаза — молекулярная турбина. Её мембранная часть (Fo) — кольцо из белковых субъединиц, которое поворачивается на шаг, пропуская каждый протон. Кольцо вращает ось, а ось проворачивается внутри неподвижной головки (F1), выступающей в матрикс. В головке три активных центра; ось, поворачиваясь, по очереди меняет их форму: один захватывает АДФ и фосфат, второй соединяет их в АТФ, третий выпускает готовую АТФ. За один оборот получаются 3 молекулы АТФ, а оборотов — больше ста в секунду.
Синтез АТФ за счёт энергии, выделяемой при окислении в дыхательной цепи, называется окислительным фосфорилированием. Его открыл в 1930 году советский биохимик Владимир Энгельгардт. Тот же механизм — протонный градиент и АТФ-синтаза — работает в хлоропластах при фотосинтезе и в мембранах бактерий. Это один из самых общих механизмов жизни.
Доказательство Митчелла. Теорию долго не принимали, пока её не подтвердили опытами. В 1966 году Андре Ягендорф показал, что хлоропласты синтезируют АТФ в темноте, если их сначала выдержать в кислой среде (pH 4), а затем быстро перенести в щелочную (pH 8): одной только разницы концентраций протонов хватает для синтеза. А в 1974 году Э. Рэкер и У. Стокениус собрали искусственные пузырьки, в мембрану которых встроили АТФ-синтазу из митохондрий быка и бактериородопсин — светочувствительный протонный насос галобактерий. На свету пузырьки синтезировали АТФ: дыхательная цепь для этого не нужна, нужен только поток протонов.
Сколько АТФ даёт одна молекула глюкозы
Соберём всё вместе. На каждую глюкозу образуется 10 НАД·Н (2 в гликолизе, 2 при окислении пировиноградной кислоты, 6 в цикле Кребса) и 2 ФАД·Н2, а по 4 АТФ получено субстратным фосфорилированием.
Школьный счёт. Считают, что каждый НАД·Н даёт в дыхательной цепи 3 АТФ, а ФАД·Н2 — 2 АТФ. Тогда кислородный этап даёт 8 · 3 + 2 · 2 + 2 = 30 АТФ из митохондриальных переносчиков и цикла, плюс 6 АТФ из двух НАД·Н гликолиза — всего 36 АТФ, а с гликолизом — 38 АТФ. Уравнение полного окисления глюкозы в школьной записи:
C6H12O6 + 6O2 + 38АДФ + 38H3PO4 → 6CO2 + 44H2O + 38АТФ
Воды справа 44: 6 молекул образуются при окислении глюкозы и 38 — при синтезе 38 молекул АТФ (каждая АТФ образуется из АДФ и фосфорной кислоты с отщеплением воды).
Современный счёт. Измерения показали, что выход меньше. АТФ-синтазе млекопитающих нужно около 8 протонов на 3 АТФ, а ещё примерно 1 протон тратится на ввоз в митохондрию фосфата и обмен АДФ на АТФ, — всего около 3,7 протона на АТФ. НАД·Н прокачивает 10 протонов, то есть даёт около 2,5 АТФ; ФАД·Н2 — 6 протонов, около 1,5 АТФ. Кроме того, НАД·Н гликолиза образуется в цитоплазме и сам в митохондрию не проходит: его водород переносят челночные системы, и в одних тканях он «превращается» в митохондриальный НАД·Н (2,5 АТФ), а в других — в ФАД·Н2 (1,5 АТФ).
| Источник | Сколько на глюкозу | Школьный счёт, АТФ | Современный счёт, АТФ |
|---|---|---|---|
| Гликолиз: субстратное фосфорилирование | 2 АТФ (чистый выход) | 2 | 2 |
| Гликолиз: НАД·Н | 2 | 6 | 3–5 |
| Окисление пировиноградной кислоты: НАД·Н | 2 | 6 | 5 |
| Цикл Кребса: АТФ (ГТФ) | 2 | 2 | 2 |
| Цикл Кребса: НАД·Н | 6 | 18 | 15 |
| Цикл Кребса: ФАД·Н2 | 2 | 4 | 3 |
| Всего | 38 | 30–32 |
На экзамене пишите 38 АТФ (2 в гликолизе и 36 на кислородном этапе) — так требует школьная программа. Но полезно знать, что это округлённая теоретическая модель.
Каков коэффициент полезного действия дыхания? При окислении моля глюкозы выделяется около 2870 кДж. В 32 АТФ при энергии около 50 кДж на моль АТФ в клетке запасается около 1600 кДж, то есть около 55 %. Остальное идёт в тепло. Для сравнения: автомобильный двигатель превращает в работу около трети энергии топлива.
Если кислорода нет: брожение
Без кислорода дыхательная цепь останавливается, НАД·Н не разгружается, и весь НАД⁺ клетки оказывается занят. Но гликолизу нужен НАД⁺ на стадии окисления глицеральдегид-3-фосфата: без него остановится и гликолиз, а с ним — единственный источник АТФ. Выход — отдать водород с НАД·Н самой пировиноградной кислоте (или продукту её распада). Это и есть брожение: бескислородное расщепление, при котором конечным акцептором водорода служит органическое вещество, а АТФ образуется только в гликолизе — 2 молекулы на глюкозу.
Молочнокислое брожение
пировиноградная кислотаНАД·Н + H⁺ → НАД⁺
 молочная кислота
Спиртовое брожение
пировиноградная кислотаотщепляется CO₂
 уксусный альдегид
НАД·Н + H⁺ → НАД⁺
 этиловый спирт
Молочнокислое брожение. Пировиноградная кислота восстанавливается до молочной (фермент лактатдегидрогеназа):
C6H12O6 + 2АДФ + 2H3PO4 → 2C3H6O3 + 2АТФ + 2H2O
Так получают энергию молочнокислые бактерии (благодаря им скисает молоко и получаются кефир, йогурт, квашеная капуста), а также наши мышцы при тяжёлой работе, когда кровь не успевает доставить кислород, и эритроциты, у которых нет митохондрий. Молочная кислота из мышц с кровью уходит в печень, и там из неё снова синтезируется глюкоза (это требует энергии; поэтому после нагрузки мы ещё некоторое время дышим чаще — «отдаём кислородный долг»). Боль в мышцах на следующий день после тренировки вызывает не молочная кислота — её уже нет, — а микроповреждения мышечных волокон и воспаление.
Спиртовое брожение. У дрожжей пировиноградная кислота сначала теряет CO2 и превращается в уксусный альдегид, а уже он принимает водород от НАД·Н и становится этиловым спиртом:
C6H12O6 + 2АДФ + 2H3PO4 → 2C2H5OH + 2CO2 + 2АТФ + 2H2O
Углекислый газ поднимает тесто, а спирт при выпечке испаряется. Спиртовое брожение идёт и в клетках растений, корни которых залиты водой.
Брожение в 19 раз менее выгодно, чем дыхание (2 АТФ вместо 38): почти вся энергия глюкозы остаётся в молочной кислоте или спирте. Именно поэтому спирт горит, а молочная кислота служит топливом для сердца и печени. Луи Пастер заметил, что дрожжи на воздухе тратят сахара гораздо меньше, чем без воздуха: получая кислород, они переходят на выгодное дыхание и сокращают гликолиз. Это явление назвали эффектом Пастера.
Брожение и анаэробное дыхание — не одно и то же. Многие бактерии и археи без кислорода не бродят, а дышат: у них есть дыхательная цепь, но конечным акцептором электронов служит не O2, а нитрат (его восстанавливают до азота денитрифицирующие бактерии), сульфат (сульфатредуцирующие бактерии, отсюда запах сероводорода в болотном иле), ионы железа Fe³⁺ или даже CO2. Это анаэробное дыхание; оно даёт больше АТФ, чем брожение, но меньше, чем кислородное.
Не только глюкоза: жиры и белки
Клетки сжигают не только глюкозу. Все главные виды топлива сходятся к ацетил-КоА и циклу Кребса.
- Жиры расщепляются на глицерин и жирные кислоты. Глицерин превращается в одно из промежуточных веществ гликолиза. Жирные кислоты в митохондриях укорачиваются по два атома углерода (этот путь называется β-окислением), и каждый двухуглеродный фрагмент становится ацетил-КоА. Окисление пальмитиновой кислоты (16 атомов углерода) даёт 106 АТФ по современному счёту. Жир — самое энергоёмкое топливо: около 39 кДж на грамм против 17 кДж у углеводов и белков. Кроме того, жир запасается без воды, а гликоген связывает в 2–3 раза больше воды, чем весит сам.
- Белки расщепляются до аминокислот. От аминокислоты отщепляется аминогруппа (из неё образуется аммиак, а у человека затем мочевина), а углеродный скелет вливается в цикл Кребса или превращается в пировиноградную кислоту. Белки сжигаются в основном при голодании или избытке белка в пище.
Какое вещество сжигает организм, можно узнать по дыханию. Отношение объёма выделенного CO2 к объёму поглощённого O2 называют дыхательным коэффициентом. Для глюкозы он равен 6 : 6 = 1, для жиров — около 0,7 (в жирах мало кислорода, и на окисление уходит больше O2), для белков — около 0,8. У человека натощак коэффициент около 0,8, а после сладкого завтрака приближается к 1.
Как клетка регулирует дыхание
Дыхание работает по принципу «сколько потратили, столько и сделаем». Ключевые ферменты чувствуют, сколько в клетке АТФ, АДФ и АМФ.
- Фосфофруктокиназа — фермент, который присоединяет второй фосфат к фруктозе в гликолизе, — подавляется избытком АТФ и лимонной кислоты и ускоряется АМФ. Когда АТФ много, гликолиз замедляется; когда клетка тратит энергию и накапливается АМФ, ускоряется.
- Дыхательный контроль: если АДФ кончилась, АТФ-синтаза останавливается, протоны перестают возвращаться в матрикс, градиент растёт до предела, и дыхательная цепь сама замедляется — ей становится трудно качать протоны против высокого градиента. Покоящаяся мышца поэтому почти не тратит кислород, а работающая — в десятки раз больше.
- Пируватдегидрогеназа выключается, когда энергии много, и это сохраняет глюкозу, особенно для мозга.
Дыхание, которое греет
Иногда клетке нужно не АТФ, а тепло. Тогда протонам открывают «обходной путь» мимо АТФ-синтазы. В буром жире новорождённых детей, зимоспящих животных и мелких грызунов во внутренней мембране митохондрий есть белок термогенин (UCP1). Он пропускает протоны обратно в матрикс, и энергия градиента сразу превращается в тепло. Такое отключение синтеза АТФ от дыхания называют разобщением. Бурый цвет этому жиру придают многочисленные митохондрии с их цитохромами. Просыпающийся сурок разогревается от 5 до 37 °C в основном за счёт бурого жира.
У растений есть свой «обогреватель» — альтернативная оксидаза: фермент, который отдаёт электроны кислороду в обход комплексов III и IV и почти не качает протоны. Соцветия ароидных — сауроматума, аронника, «вонючего» капустника симплокарпуса — разогреваются так на 10–30 °C выше воздуха (симплокарпус цветёт ранней весной, протаивая снег); тепло разносит запах, который приманивает опылителей-мух. Включает обогрев салициловая кислота (см. статью о раздражимости и фитогормонах).
Яды дыхания
Раз дыхательная цепь — главный источник АТФ, её блокада смертельна за минуты. Многие известные яды действуют именно так.
- Цианиды (синильная кислота, цианистый калий) и сероводород связываются с железом комплекса IV — цитохромоксидазы. Электроны не могут перейти на кислород, вся цепь останавливается, и клетки гибнут от недостатка АТФ, хотя кислорода в крови достаточно: кровь отравленного цианидом остаётся ярко-алой. Синильная кислота образуется при расщеплении амигдалина, содержащегося в семенах горького миндаля, абрикосов и вишни.
- Угарный газ CO тоже связывается с цитохромоксидазой, но главное его действие — прочное соединение с гемоглобином, который перестаёт переносить кислород.
- Ротенон из корней тропических бобовых блокирует комплекс I; индейцы Южной Америки им глушили рыбу.
- Олигомицин (антибиотик стрептомицетов) закрывает протонный канал АТФ-синтазы.
- 2,4-динитрофенол — разобщитель: он переносит протоны через мембрану в обход АТФ-синтазы, как термогенин. В 1930-е годы его продавали в США как средство для похудения: жир «сгорал», но вместе с энергией выделялось столько тепла, что люди умирали от перегрева. Препарат запретили в 1938 году.
История изучения
- 1783А. Лавуазье и П. Лаплас: животное в калориметре выделяет столько тепла, сколько дало бы горение угля с тем же количеством CO₂, — дыхание есть медленное горение
- 1861Л. Пастер: дрожжи живут и без кислорода, сбраживая сахар; на воздухе они тратят сахара меньше (эффект Пастера)
- 1897Э. Бухнер: сок разрушенных дрожжей сбраживает сахар без живых клеток — брожение ведут ферменты
- 1912В. И. Палладин: при дыхании от вещества отнимается водород, а кислород воздуха лишь принимает его в конце
- 1925Д. Кейлин находит в клетках цитохромы — переносчики электронов
- 1929К. Ломан выделяет из мышц АТФ
- 1930В. А. Энгельгардт (Казань): дыхание сопряжено с синтезом АТФ — окислительное фосфорилирование
- 1937Х. Кребс описывает цикл лимонной кислоты (Нобелевская премия 1953 года)
- 1930-еГ. Эмбден, О. Мейергоф, Я. Парнас и другие собирают все реакции гликолиза
- 1939В. А. Белицер и Е. Т. Цыбакова: на каждый поглощённый атом кислорода образуется не меньше двух молекул АТФ
- 1949Ю. Кеннеди и А. Ленинджер: цикл Кребса и окислительное фосфорилирование идут в митохондриях
- 1961П. Митчелл: хемиосмотическая теория — АТФ синтезируется за счёт тока протонов через мембрану (Нобелевская премия 1978 года)
- 1994Дж. Уокер расшифровывает строение АТФ-синтазы
- 1997Х. Ноджи, М. Ёсида и К. Киносита видят под микроскопом, как вращается ротор АТФ-синтазы; П. Бойер и Дж. Уокер — Нобелевская премия
- физиология и брожение
- биохимия
- мембраны и молекулы
В истории дыхания отличились и отечественные учёные. Владимир Иванович Палладин в 1912 году предложил считать дыхание отнятием водорода от органических веществ. Владимир Александрович Энгельгардт, работая в Казани с эритроцитами голубей (у птиц эритроциты с ядром и митохондриями), обнаружил, что синтез АТФ сопряжён с потреблением кислорода. Владимир Александрович Белицер и Евгения Цыбакова в 1939 году измерили, сколько АТФ образуется на каждый поглощённый атом кислорода, и показали, что синтез идёт при переносе электронов в цепи. Владимир Петрович Скулачёв в 1960–1970-е годы одним из первых экспериментально подтвердил хемиосмотическую теорию, измерив электрический потенциал на мембране митохондрий с помощью проникающих ионов, и изучил разобщение дыхания как способ получать тепло.
Удивительные факты
- За сутки человек синтезирует и расходует АТФ массой порядка собственного тела, хотя в любой момент её в организме лишь около 250 г.
- Ротор АТФ-синтазы вращается со скоростью больше 100 оборотов в секунду. В 1997 году японские исследователи приклеили к оси фермента светящуюся нить актина и увидели вращение в микроскоп.
- Протонный градиент на внутренней мембране — около 0,2 В на слое толщиной 5 нм. Это напряжённость поля около 40 миллионов вольт на метр — в десять раз больше, чем нужно для искрового пробоя воздуха.
- Кислород, который мы вдыхаем, превращается в воду, а не в углекислый газ. Атомы кислорода в выдыхаемом CO2 происходят из глюкозы и воды.
- Колибри в полёте расходует столько энергии на грамм тела, что митохондрии занимают около трети объёма её летательных мышц, а ночью птица впадает в оцепенение, чтобы не умереть от голода до утра.
- Кенгуровые крысы пустынь Северной Америки могут всю жизнь не пить: им хватает метаболической воды, образующейся при дыхании, и воды из семян.
- Паразитическое многоклеточное животное Henneguya salminicola (родственник медуз, паразит лососей) потеряло митохондриальный геном и, по-видимому, вообще не дышит кислородом — это первый известный такой случай среди животных (2020).
- Опухолевые клетки часто сбраживают глюкозу до молочной кислоты даже при достатке кислорода (эффект Варбурга). На этом основана позитронно-эмиссионная томография: меченая глюкоза накапливается в опухолях, жадно поглощающих сахар.
Что пока не решено
- Сколько точно протонов нужно на одну АТФ. Число субъединиц в кольце АТФ-синтазы у разных организмов от 8 до 17, и «цена» АТФ различается. Точные отношения P/O в живой клетке, а не в выделенных митохондриях, до сих пор обсуждают.
- Как устроены суперкомплексы. Комплексы I, III и IV в мембране часто собираются в крупные «респирасомы». Ускоряют ли они перенос электронов или только защищают от утечки электронов и образования активных форм кислорода, пока спорят.
- Зачем опухолям эффект Варбурга. Брожение при наличии кислорода невыгодно по выходу АТФ. Возможно, быстрый гликолиз даёт опухолевым клеткам строительный материал для деления; единого объяснения пока нет.
- Как возникла дыхательная цепь. Её части похожи на белки фотосинтеза и бактериального анаэробного дыхания. Что было первым — фотосинтез, дыхание или протонные насосы древних архей, — вопрос открытый.
- Митохондрии и старение. В дыхательной цепи часть электронов «утекает» на кислород раньше времени, образуя супероксид. Насколько эти активные формы кислорода причастны к старению, а насколько служат сигналами для клетки, спорят до сих пор.
Что писать на ЕГЭ
- Энергетический обмен (диссимиляция) — совокупность реакций расщепления органических веществ, сопровождающихся выделением энергии и синтезом АТФ.
- Три этапа: подготовительный (пищеварительный тракт, лизосомы; энергия рассеивается в виде тепла), бескислородный — гликолиз (цитоплазма; 2 АТФ), кислородный (митохондрии; 36 АТФ). Всего при полном окислении молекулы глюкозы — 38 АТФ.
- Гликолиз: глюкоза расщепляется до двух молекул пировиноградной кислоты (ПВК); образуются 2 АТФ и 2 НАД·Н; кислород не нужен.
- Кислородный этап: окисление ПВК до CO2 и H2O; цикл Кребса идёт в матриксе митохондрий, окислительное фосфорилирование — на внутренней мембране (кристах).
- Конечный акцептор электронов при аэробном дыхании — кислород; он восстанавливается до воды.
- При недостатке кислорода в мышцах ПВК восстанавливается до молочной кислоты (молочнокислое брожение), у дрожжей — до этилового спирта и CO2 (спиртовое брожение); образуется только 2 АТФ на глюкозу.
- Расчётные задачи: на каждую молекулу глюкозы — 2 молекулы ПВК, 2 АТФ при гликолизе, 36 АТФ на кислородном этапе, 6 CO2, 6 O2; при брожении — 2 молекулы молочной кислоты и 2 АТФ.
- Энергия гидролиза АТФ (в школьных задачах) — 40 кДж/моль; при гликолизе выделяется 200 кДж/моль глюкозы, из них 40 % запасается в АТФ.
Ловушки. 1) Гликолиз идёт в цитоплазме, а не в митохондриях. 2) На подготовительном этапе АТФ не образуется. 3) В цикле Кребса кислород не участвует напрямую, но без него цикл останавливается. 4) Больше всего АТФ образуется в дыхательной цепи на внутренней мембране, а не в цикле Кребса. 5) Растения дышат круглосуточно. 6) Вдыхаемый кислород превращается в воду, а не в CO2. 7) Брожение — не дыхание: при брожении нет дыхательной цепи, акцептор водорода — органическое вещество. 8) Эритроциты млекопитающих получают энергию только гликолизом — у них нет митохондрий. 9) Молочная кислота при брожении образуется из ПВК, а не прямо из глюкозы.
Расчётные задачи с подробными решениями — в статье «Энергетический обмен: гликолиз, цикл Кребса и подсчёт АТФ для ЕГЭ», тренировка — тема 2.4 в тренажёре ЕГЭ по биологии.
Для олимпиад
Энергия переноса электронов
Способность вещества отдавать электроны выражают стандартным окислительно-восстановительным потенциалом E′°: чем он ниже, тем охотнее вещество отдаёт электроны. Для пары НАД⁺/НАД·Н E′° = −0,32 В, для O2/H2O +0,82 В. Энергия переноса n электронов: ΔG°′ = −nFΔE′°, где F = 96,5 кДж/(В·моль). Для пары электронов от НАД·Н к кислороду ΔG°′ = −2 · 96,5 · 1,14 ≈ −220 кДж/моль. Этого хватило бы на синтез четырёх АТФ при 50 кДж на АТФ, а получается около 2,5: КПД этого участка около 57 %. ФАД·Н2 (у сукцинатдегидрогеназы E′° около 0) входит в цепь «ниже» комплекса I и поэтому даёт меньше АТФ.
Протонодвижущая сила
Градиент протонов складывается из двух частей: электрического потенциала на мембране Δψ (около 150–180 мВ, матрикс заряжен отрицательно) и разности pH (матрикс щелочнее примерно на 0,5–1 единицу). Их объединяет протонодвижущая сила Δp = Δψ − 59 · ΔpH (мВ, при 25 °C) — около 200 мВ. Перенос одного протона в матрикс высвобождает F·Δp ≈ 96,5 · 0,2 ≈ 19 кДж/моль, и для синтеза АТФ с ΔG около 50 кДж/моль нужно не меньше трёх протонов — что и наблюдается (8 протонов на 3 АТФ у АТФ-синтазы млекопитающих плюс около 1 на транспорт).
Ингибиторы и разобщители в опыте
Классический опыт — измерение потребления кислорода выделенными митохондриями. Добавление АДФ резко ускоряет дыхание (дыхательный контроль). Олигомицин останавливает и синтез АТФ, и дыхание: градиент не расходуется, цепь «упирается». Если затем добавить разобщитель (динитрофенол), дыхание возобновляется и становится максимальным, но АТФ не образуется. Цианид останавливает дыхание при любых добавках. По таким опытам определяют, на какое звено действует неизвестное вещество.
Почему кислород в CO2 не из воздуха. В опытах с меченым кислородом 18O2 метка появляется в воде, а не в углекислом газе. Полная запись дыхания учитывает воду, которая присоединяется в цикле Кребса: C6H12O6 + 6O2 + 6H2O → 6CO2 + 12H2O. 12 атомов кислорода из шести молекул O2 оказываются в 12 молекулах воды.
Задания с разбором
Задания 1–9 — в формате ЕГЭ (с элементами ответа для заданий с развёрнутым ответом), 10–15 — олимпиадные.
Задание 1
Выберите три верных утверждения о гликолизе.
- идёт в цитоплазме клетки
- требует присутствия кислорода
- глюкоза расщепляется до двух молекул пировиноградной кислоты
- образуется 36 молекул АТФ
- водород переносится на НАД⁺
- идёт на кристах митохондрий
Разбор
Ответ: 135. Гликолиз бескислородный (2 — неверно), даёт 2 АТФ, а не 36 (4), идёт в цитоплазме, а не в митохондриях (6).
Задание 2
Установите соответствие между процессами и этапами энергетического обмена: к каждой позиции первого столбца подберите позицию из второго.
ПРОЦЕССЫ: А) расщепление глюкозы до пировиноградной кислоты; Б) образование 36 молекул АТФ; В) работа АТФ-синтазы на кристах; Г) образование 2 молекул АТФ на одну глюкозу; Д) выделение CO2 в цикле Кребса; Е) идёт в цитоплазме.
ЭТАПЫ: 1) бескислородный; 2) кислородный.
Разбор
Ответ: 122121. Гликолиз (бескислородный этап) идёт в цитоплазме и даёт 2 АТФ; CO2, цикл Кребса, АТФ-синтаза и 36 АТФ — кислородный этап в митохондриях.
Задание 3
Установите последовательность превращений углеродного скелета глюкозы при аэробном дыхании.
- образование ацетил-КоА
- расщепление фруктозо-1,6-бисфосфата на две трёхуглеродные молекулы
- образование лимонной кислоты
- фосфорилирование глюкозы
- образование пировиноградной кислоты
Разбор
Ответ: 42513. Глюкоза фосфорилируется → фруктозо-1,6-бисфосфат раскалывается → получается пировиноградная кислота → она превращается в ацетил-КоА → ацетил присоединяется к щавелевоуксусной кислоте, образуя лимонную.
Задание 4
В диссимиляцию вступило 15 молекул глюкозы. Определите, сколько молекул АТФ образуется после гликолиза, после кислородного этапа и всего. Сколько молекул кислорода потребуется и сколько молекул CO2 выделится при полном окислении? Ответ поясните.
Разбор
Элементы ответа: 1) при гликолизе каждая молекула глюкозы даёт 2 АТФ: 15 · 2 = 30 АТФ; 2) на кислородном этапе — 36 АТФ на глюкозу: 15 · 36 = 540 АТФ; 3) всего 30 + 540 = 570 АТФ (15 · 38); 4) на полное окисление одной глюкозы нужно 6 O2 и выделяется 6 CO2: 15 · 6 = 90 молекул O2 и 90 молекул CO2.
Задание 5
При интенсивной работе в мышце образовалось 26 молекул молочной кислоты. Сколько молекул глюкозы подверглось расщеплению и сколько молекул АТФ при этом синтезировано? Сколько АТФ образовалось бы, если бы эта глюкоза окислилась полностью? Ответ поясните.
Разбор
Элементы ответа: 1) из одной молекулы глюкозы при молочнокислом брожении образуются 2 молекулы молочной кислоты, значит, расщепилось 26 : 2 = 13 молекул глюкозы; 2) при брожении на глюкозу образуется 2 АТФ: 13 · 2 = 26 АТФ; 3) при полном окислении — 38 АТФ на глюкозу: 13 · 38 = 494 АТФ, в 19 раз больше.
Задание 6
Найдите три ошибки в приведённом тексте. Укажите номера предложений, в которых они сделаны, исправьте их.
(1) Энергетический обмен включает три этапа. (2) На подготовительном этапе полимеры расщепляются до мономеров, а выделившаяся энергия запасается в АТФ. (3) Гликолиз происходит в митохондриях. (4) При гликолизе глюкоза расщепляется до пировиноградной кислоты и образуется 2 молекулы АТФ. (5) На кислородном этапе пировиноградная кислота окисляется до углекислого газа и воды. (6) Конечным акцептором электронов в дыхательной цепи служит углекислый газ.
Разбор
Элементы ответа: 1) в предложении 2: на подготовительном этапе энергия рассеивается в виде тепла, АТФ не образуется; 2) в предложении 3: гликолиз идёт в цитоплазме; 3) в предложении 6: конечный акцептор электронов — кислород, который восстанавливается до воды.
Задание 7
Почему при интенсивной физической нагрузке в мышцах накапливается молочная кислота, а после нагрузки человек ещё некоторое время дышит учащённо? Ответ поясните.
Разбор
Элементы ответа: 1) при интенсивной работе кислород не успевает поступать в мышцы, и кислородный этап не обеспечивает потребность в АТФ; 2) АТФ образуется при гликолизе, а чтобы гликолиз продолжался, НАД⁺ восстанавливается за счёт превращения пировиноградной кислоты в молочную (молочнокислое брожение); 3) после нагрузки кислород расходуется на окисление молочной кислоты и синтез из неё глюкозы в печени, восстановление запасов АТФ и креатинфосфата («кислородный долг»), поэтому дыхание остаётся учащённым.
Задание 8
Цианиды блокируют фермент цитохромоксидазу — последний комплекс дыхательной цепи. Почему отравление цианидами быстро приводит к гибели, хотя кровь насыщена кислородом? Какие органы страдают первыми?
Разбор
Элементы ответа: 1) цитохромоксидаза передаёт электроны на кислород; при её блокаде вся дыхательная цепь останавливается, протоны не перекачиваются; 2) АТФ-синтаза перестаёт синтезировать АТФ, а гликолиз даёт слишком мало АТФ; 3) кислород из крови не используется клетками (кровь остаётся алой), клетки гибнут от недостатка энергии; 4) первыми страдают органы с наибольшей потребностью в энергии и малыми запасами — головной мозг и сердце.
Задание 9
Исследователь поместил одинаковое количество дрожжей в два сосуда с одинаковым раствором глюкозы при 30 °C. Через первый сосуд пропускали воздух, второй закрыли без доступа воздуха. Через 3 часа во втором сосуде глюкозы израсходовалось в несколько раз больше, чем в первом. 1) Какой параметр задавал экспериментатор (независимая переменная), а какой менялся в зависимости от него (зависимая)? 2) Объясните результат. 3) Какое вещество, кроме CO2, обнаружится во втором сосуде?
Разбор
Элементы ответа: 1) независимая переменная — доступ кислорода (воздуха), зависимая — количество израсходованной глюкозы; 2) без кислорода дрожжи переходят на спиртовое брожение, которое даёт 2 АТФ на глюкозу против 38 при дыхании, поэтому для той же потребности в энергии им нужно расщепить гораздо больше глюкозы (эффект Пастера); 3) этиловый спирт.
Задание 10
Рассчитайте выход АТФ при полном окислении глюкозы по современным данным: НАД·Н даёт 2,5 АТФ, ФАД·Н2 — 1,5 АТФ. Рассмотрите два случая: 1) водород двух НАД·Н гликолиза попадает в митохондрию в составе НАД·Н (малат-аспартатный челнок, сердце и печень); 2) он попадает в митохондрию в составе ФАД·Н2 (глицерофосфатный челнок, скелетные мышцы, мозг).
Разбор
Субстратное фосфорилирование: 2 АТФ в гликолизе + 2 в цикле Кребса = 4. Митохондриальные переносчики: 8 НАД·Н · 2,5 = 20; 2 ФАД·Н2 · 1,5 = 3. 1) 2 НАД·Н гликолиза · 2,5 = 5; всего 4 + 20 + 3 + 5 = 32 АТФ. 2) 2 · 1,5 = 3; всего 4 + 20 + 3 + 3 = 30 АТФ.
Задание 11
Окисление пальмитиновой кислоты идёт по уравнению C16H32O2 + 23O2 → 16CO2 + 16H2O. 1) Найдите дыхательный коэффициент для пальмитиновой кислоты и для глюкозы. 2) У человека дыхательный коэффициент 0,85. Считая, что он сжигает только глюкозу и пальмитиновую кислоту, определите, какая доля поглощённого кислорода расходуется на окисление глюкозы.
Разбор
1) Для пальмитиновой кислоты 16 : 23 ≈ 0,70, для глюкозы 6 : 6 = 1. 2) Пусть доля кислорода, идущего на глюкозу, равна x; тогда на каждый объём O2 выделяется x · 1 + (1 − x) · 0,696 объёма CO2. Из x + 0,696(1 − x) = 0,85 получаем x = (0,85 − 0,696) / (1 − 0,696) ≈ 0,51: около половины кислорода идёт на окисление глюкозы.
Задание 12
Стандартные потенциалы: НАД⁺/НАД·Н −0,32 В, O2/H2O +0,82 В, F = 96,5 кДж/(В·моль). 1) Рассчитайте изменение энергии Гиббса при переносе пары электронов от НАД·Н к кислороду. 2) Сколько АТФ можно было бы синтезировать, если синтез одной АТФ в клетке требует 50 кДж/моль? 3) Каков КПД, если реально образуется 2,5 АТФ?
Разбор
1) ΔE = 0,82 − (−0,32) = 1,14 В; ΔG = −2 · 96,5 · 1,14 ≈ −220 кДж/моль. 2) 220 / 50 = 4,4, то есть не больше четырёх АТФ. 3) 2,5 · 50 = 125 кДж; 125 / 220 ≈ 57 %.
Задание 13
Кольцо мембранной части АТФ-синтазы у млекопитающих состоит из 8 субъединиц, у дрожжей — из 10; за полный оборот через кольцо проходит столько протонов, сколько в нём субъединиц, и синтезируется 3 АТФ. Ещё 1 протон на каждую АТФ тратится на транспорт АДФ и фосфата в матрикс. 1) Сколько протонов «стоит» одна АТФ у млекопитающих и у дрожжей? 2) Сколько АТФ даёт один НАД·Н (10 протонов) в каждом случае?
Разбор
1) Млекопитающие: 8 / 3 + 1 ≈ 3,67 протона; дрожжи: 10 / 3 + 1 ≈ 4,33. 2) 10 / 3,67 ≈ 2,7 АТФ и 10 / 4,33 ≈ 2,3 АТФ. Меньшее кольцо — «дешевле» АТФ: животные получают с той же пары электронов больше энергии.
Задание 14
В клетках бурого жира протонный градиент почти целиком рассеивается термогенином, и окислительное фосфорилирование не идёт. 1) Сколько АТФ получит такая клетка при полном окислении одной молекулы глюкозы? 2) Во сколько раз больше глюкозы ей придётся окислить, чтобы получить столько же АТФ, сколько обычная клетка (32 АТФ по современному счёту)? 3) Зачем это нужно организму?
Разбор
1) Остаётся только субстратное фосфорилирование: 2 АТФ в гликолизе и 2 в цикле Кребса — 4 АТФ. 2) 32 / 4 = в 8 раз. 3) Цель бурого жира — не АТФ, а тепло: почти вся энергия окисления выделяется в виде тепла, которое согревает новорождённых и пробуждающихся от спячки животных.
Задание 15
Мышь дышала воздухом, в котором кислород был помечен тяжёлым изотопом 18O. 1) В каком веществе, образующемся при клеточном дыхании, окажется метка? 2) Сколько атомов меченого кислорода окажется в продуктах при полном окислении одной молекулы глюкозы? 3) Откуда берутся атомы кислорода в выдыхаемом CO2?
Разбор
1) В воде: кислород O2 восстанавливается до H2O в комплексе IV дыхательной цепи. 2) На одну глюкозу расходуется 6 O2, то есть 12 атомов меченого кислорода; они окажутся в 12 молекулах воды. 3) Из глюкозы и воды: в цикле Кребса к промежуточным веществам присоединяется вода, и при декарбоксилировании CO2 уносит кислород органических кислот. Позже метка может попасть и в CO2 — через меченую воду, вступающую в реакции.
Литература
- Каменский А. А., Криксунов Е. А., Пасечник В. В. Биология. Общая биология. 10–11 классы. М.: Дрофа, любое издание.
- Ленинджер А. Основы биохимии. Т. 2. М.: Мир, 1985.
- Нельсон Д., Кокс М. Основы биохимии Ленинджера. Т. 2. Биоэнергетика и метаболизм. М.: БИНОМ. Лаборатория знаний, 2014.
- Николс Д. Биоэнергетика. Введение в хемиосмотическую теорию. М.: Мир, 1985.
- Скулачёв В. П., Богачёв А. В., Каспаринский Ф. О. Мембранная биоэнергетика. М.: Изд-во Московского университета, 2010.
- Krebs H. A., Johnson W. A. The role of citric acid in intermediate metabolism in animal tissues // Enzymologia. 1937. Vol. 4. P. 148–156.
- Kennedy E. P., Lehninger A. L. Oxidation of fatty acids and tricarboxylic acid cycle intermediates by isolated rat liver mitochondria // J. Biol. Chem. 1949. Vol. 179. P. 957–972.
- Mitchell P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism // Nature. 1961. Vol. 191. P. 144–148.
- Jagendorf A. T., Uribe E. ATP formation caused by acid-base transition of spinach chloroplasts // PNAS. 1966. Vol. 55. P. 170–177.
- Racker E., Stoeckenius W. Reconstitution of purple membrane vesicles catalyzing light-driven proton uptake and adenosine triphosphate formation // J. Biol. Chem. 1974. Vol. 249. P. 662–663.
- Abrahams J. P., Leslie A. G. W., Lutter R., Walker J. E. Structure at 2.8 Å resolution of F1-ATPase from bovine heart mitochondria // Nature. 1994. Vol. 370. P. 621–628.
- Noji H., Yasuda R., Yoshida M., Kinosita K. Direct observation of the rotation of F1-ATPase // Nature. 1997. Vol. 386. P. 299–302.
- Hinkle P. C. P/O ratios of mitochondrial oxidative phosphorylation // Biochim. Biophys. Acta. 2005. Vol. 1706. P. 1–11.
- Watt I. N. et al. Bioenergetic cost of making an adenosine triphosphate molecule in animal mitochondria // PNAS. 2010. Vol. 107. P. 16823–16827.
- Yahalomi D. et al. A cnidarian parasite of salmon (Myxozoa: Henneguya) lacks a mitochondrial genome // PNAS. 2020. Vol. 117. P. 5358–5363.
Обсуждение
Загружаем обсуждение…