
Лишайник, который полтора века считали одним видом и встречали от Мексики до Аргентины, оказался не меньше чем ста двадцатью шестью видами. «Опёнок медовый» Северной Америки — десятью биологическими видами, которые не скрещиваются друг с другом. Возбудитель лёгочного аспергиллёза, выделенный у больного, иногда оказывается не аспергиллом дымящим, а его двойником, почти нечувствительным к лекарствам, — и разница решает судьбу человека. У грибов вид — одно из самых трудных понятий биологии: у них мало признаков строения, многие никогда не скрещиваются, а большинство вообще никто не видел — они известны лишь по обрывкам ДНК из почвы. Описано около 155 тысяч видов грибов, а существует, по современным оценкам, от двух до четырёх миллионов.
Ниже — как менялось понимание вида у грибов, чем различаются морфологическая, биологическая и филогенетическая концепции, как работают ДНК-штрихкоды и сравнение геномов, откуда берутся криптические виды и почему они важны для медицины и сельского хозяйства, по каким правилам дают грибам научные названия и почему эти названия меняются. В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О месте грибов на древе жизни — в статье «Грибы среди эукариот», о совместимости и скрещивании — в статье «Половой процесс у грибов».
- Как менялось понимание вида
- Зачем знать вид точно
- Три концепции вида
- Вид по строению: возможности и пределы
- Биологический вид: скрещивания в пробирке
- Как у грибов возникают виды
- Филогенетический вид и согласие генов
- ДНК-штрихкоды: ITS и другие
- Геномы и границы видов
- Как определяют гриб сегодня
- Криптические виды
- Двойники в медицине
- Паразиты растений и насекомых
- Шляпочные грибы и лишайники
- Вид у лишайников
- Ниже вида: формы и расы
- Научные названия: правила
- Один гриб — одно название
- Почему названия меняются
- Тёмные таксоны: грибы, известные только по ДНК
- Сколько видов грибов на Земле
- Частые вопросы
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как менялось понимание вида
Карл Линней, построивший систему растений и животных, о грибах писал с раздражением: порядок грибов, по его словам, «до сих пор хаос — позор науки». В «Видах растений» (1753) он перечислил всего около 90 видов грибов в десяти родах. Порядок навели его последователи. Христиан Персон в «Методическом обзоре грибов» (1801) и шведский миколог Элиас Фрис в трёхтомной «Систематике грибов» (1821–1832) описали тысячи видов по форме плодовых тел, гименофору, цвету спорового порошка. Их труды так важны, что названия, принятые Персоном и Фрисом, до сих пор «санкционированы» правилами номенклатуры и имеют преимущество перед более ранними [1].
- 1753К. Линней вводит двойные названия видов; грибы для него — «хаос»
- 1821Э. Фрис, «Систематика грибов»: принятые им названия до сих пор имеют преимущество
- 1861Братья Тюлан: у одного гриба — несколько разных стадий, а значит, и названий
- 1979Дж. Андерсон и Р. Ульрих: «опёнок медовый» Северной Америки — несколько биологических видов
- 1990Т. Уайт, Т. Брунс и Дж. Тейлор: праймеры для ITS — основа будущих штрихкодов
- 2000Дж. Тейлор с соавторами: вид — по согласию родословных нескольких генов
- 2004Открыт MycoBank — реестр названий грибов
- 2011Мельбурнский кодекс: «один гриб — одно название», описание можно давать по-английски
- 2012ITS официально признан универсальным штрихкодом грибов
- 2014Р. Люкинг: лишайник, считавшийся одним видом, — не меньше 126 видов
- 2017Д. Хоксворт и Р. Люкинг: в мире 2,2–3,8 млн видов грибов
- 2024Конгресс в Маастрихте обсуждает названия для грибов, известных только по ДНК
- названия и правила
- морфология
- виды и их число
- молекулярные методы
Первый удар по простому пониманию вида нанесли в 1861 году братья Луи-Рене и Шарль Тюлан. Они показали, что один гриб может образовывать совершенно непохожие стадии — бесполые конидии, склероции, плодовые тела с сумками, — и что микологи давно описывают эти стадии как разные виды и даже роды. Так возникла двойная номенклатура, просуществовавшая полтора века. В XX веке появились культуры и скрещивания: генетики нейроспоры и шляпочных грибов научились проверять, дают ли два штамма плодовитое потомство. В 1979 году Джеймс Андерсон и Роберт Ульрих скрестили сотни изолятов «опёнка медового» из Северной Америки и выделили несколько биологических видов, не способных скрещиваться между собой [2].
Настоящую революцию совершила ДНК. В 1990 году Томас Уайт, Томас Брунс, Стивен Ли и Джон Тейлор опубликовали праймеры для участка рибосомных генов ITS, и за тридцать лет в базах данных накопились миллионы его последовательностей [3]. В 2000 году Тейлор с соавторами предложил распознавать виды по согласию родословных нескольких генов [4], в 2012 году ITS признали официальным штрихкодом грибов [5], а в 2011 году Международный ботанический конгресс в Мельбурне отменил двойную номенклатуру и разрешил описывать новые виды по-английски. Сегодня вид гриба определяют сразу несколькими способами, а число известных видов растёт на две-три тысячи в год [6].
Зачем знать вид точно
Может показаться, что спор о видах — дело самих систематиков. Но от точного определения вида зависят очень практические решения. Врач выбирает лекарство в зависимости от того, какой гриб выделен из крови больного: близкие виды кандиды и аспергилла различаются по устойчивости к противогрибковым препаратам в десятки раз. Карантинная служба запрещает ввоз зерна или саженцев, если на них найден определённый вид — например, возбудитель рака картофеля или пирикуляриоза пшеницы, — и должна быть уверена, что речь именно о нём. Грибник, путающий виды, рискует жизнью. Производитель пищевых культур должен доказать, что его штамм относится к безопасному виду, а не к близкому, выделяющему токсины.
Вид — это и единица охраны природы. В Красный список Международного союза охраны природы долго почти не входили грибы; к 2020-м годам их там уже сотни, и оценивать угрозу можно только для чётко очерченного вида. Если «вид», считавшийся широко распространённым, на деле состоит из десятков узкоареальных видов, каждый из них может оказаться редким. Так случилось с лишайником корой: многие из его 126 видов живут лишь в нескольких горных долинах Анд, где парамо быстро распахивают [7].
Три концепции вида
Биологи предложили больше двадцати определений вида, но для грибов важны три. Морфологическая концепция объединяет в вид особи с одинаковым строением, отличным от строения других групп. Биологическая, сформулированная Эрнстом Майром для животных, считает видом группу популяций, особи которых скрещиваются между собой и дают плодовитое потомство, но изолированы от других таких групп. Филогенетическая определяет вид как наименьшую группу, обособленную на родословном древе, — линию с собственной историей.
- Критерийустойчивые отличия в строении спор, плодовых тел, колоний
- Плюсработает с гербарным образцом, в поле и в микроскопе
- Минусу грибов мало признаков; не видит криптических видов
- Критерийособи скрещиваются и дают плодовитое потомство
- Плюсотражает реальную границу обмена генами
- Минуснеприменим к бесполым и некультивируемым грибам
- Критерийгруппа, обособленная на родословных нескольких генов
- Плюсгодится для любых грибов, даже известных только по ДНК
- Минусграница зависит от метода и числа образцов
Эти концепции не противоречат, а дополняют друг друга. Они отражают разные стадии одного процесса: когда популяции разделяются, первой обычно накапливается генетическая обособленность, затем появляется неспособность скрещиваться, а заметные различия в строении возникают позже всего — если вообще возникают. Поэтому филогенетическая концепция распознаёт самое большое число видов, биологическая — меньше, морфологическая — меньше всех [4]. Для грибов это особенно важно: они могут быть генетически изолированы миллионы лет и при этом выглядеть одинаково. Современные микологи описывают вид интегративно [8]: собирают молекулярные данные, строение, экологию, географию, а если можно — результаты скрещиваний, и проводят границу там, где разные линии доказательств согласуются.
Вид по строению: возможности и пределы
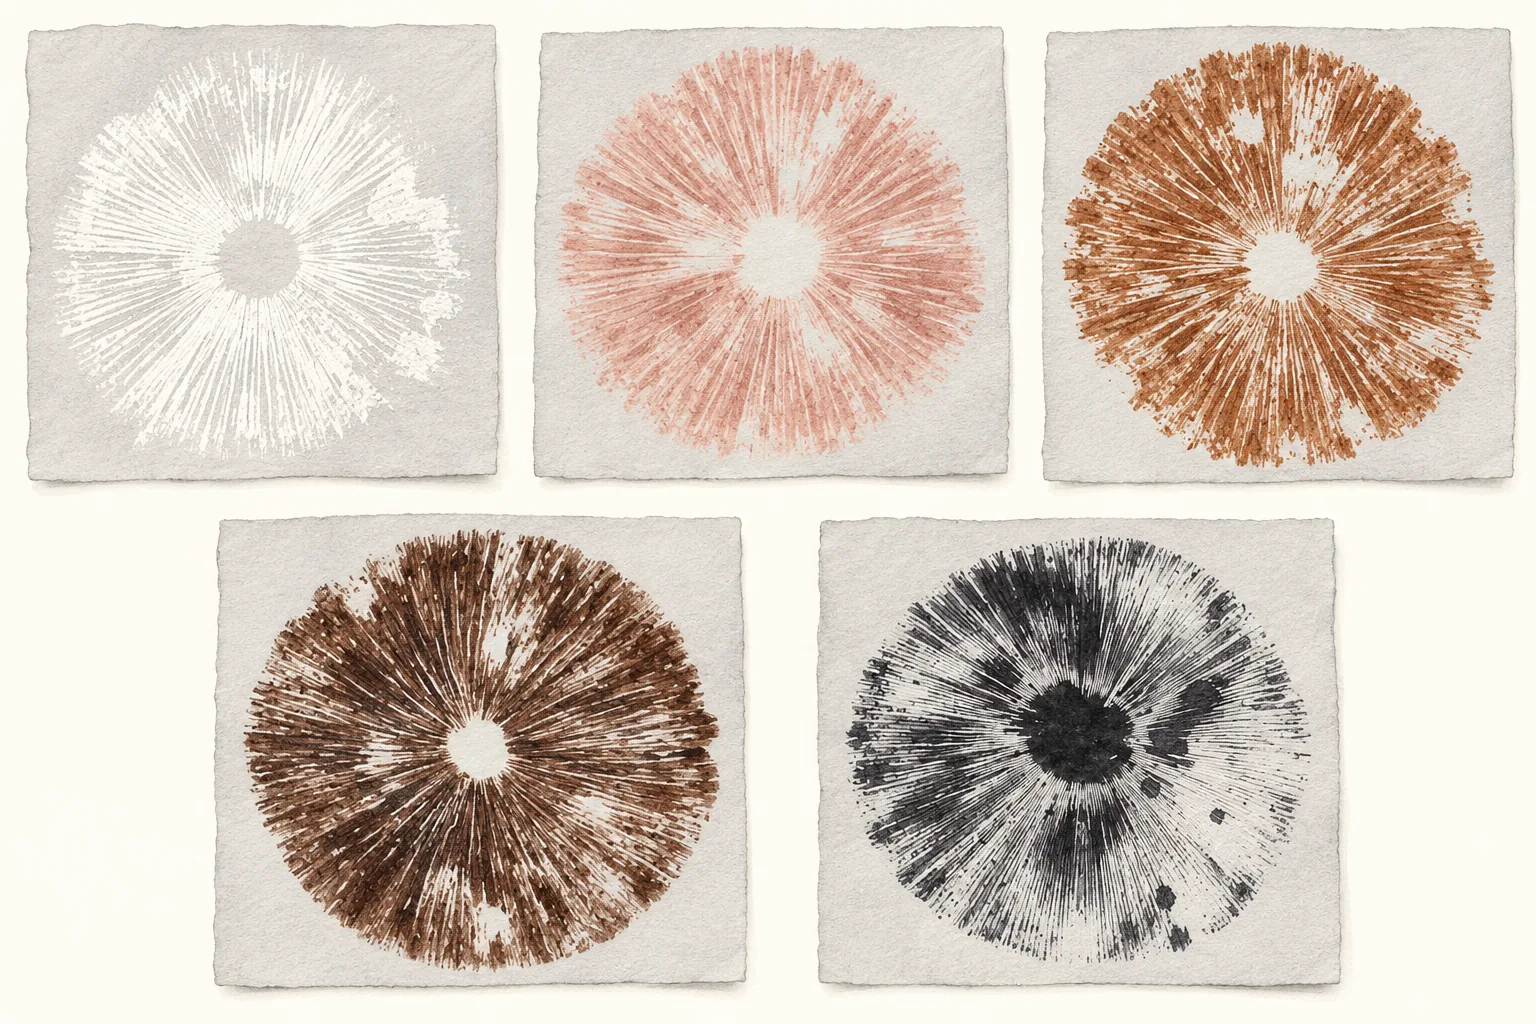
Двести лет вид гриба определяли по строению, и до сих пор полевой определитель начинается с признаков, видимых глазом: формы и цвета шляпки, типа гименофора, кольца и вольвы на ножке, запаха, изменения цвета мякоти на срезе. Важнейший признак — цвет спорового порошка: положив шляпку на бумагу на несколько часов, получают отпечаток белый, розовый, ржаво-бурый, пурпурно-коричневый или чёрный. Под микроскопом смотрят размер и орнамент спор, форму базидий и сумок, особые клетки — цистиды, строение кожицы шляпки. Химики-лихенологи с XIX века капают на слоевище лишайника раствор щёлочи, гипохлорита, парафенилендиамина и по окраске различают виды с разными лишайниковыми кислотами.
Пределы морфологии у грибов видны сразу. У плесени или дрожжей признаков строения очень мало: несколько форм конидиеносцев и спор, размеры клеток. Многие признаки зависят от условий: плодовое тело на солнце светлее, в сырости больше, на бедном субстрате меньше. Похожие формы возникают независимо в разных ветвях — дождевики, например, произошли от пластинчатых грибов несколько раз. Поэтому морфологический вид у грибов часто оказывается слишком широким: под одним названием объединены линии, разошедшиеся миллионы лет назад. Тем не менее морфология не исчезла. Когда молекулярные данные указывают на новый вид, систематик обычно возвращается к образцам и находит отличия, которые раньше считал изменчивостью: другой размер спор, иной хозяин, особый запах.
Биологический вид: скрещивания в пробирке
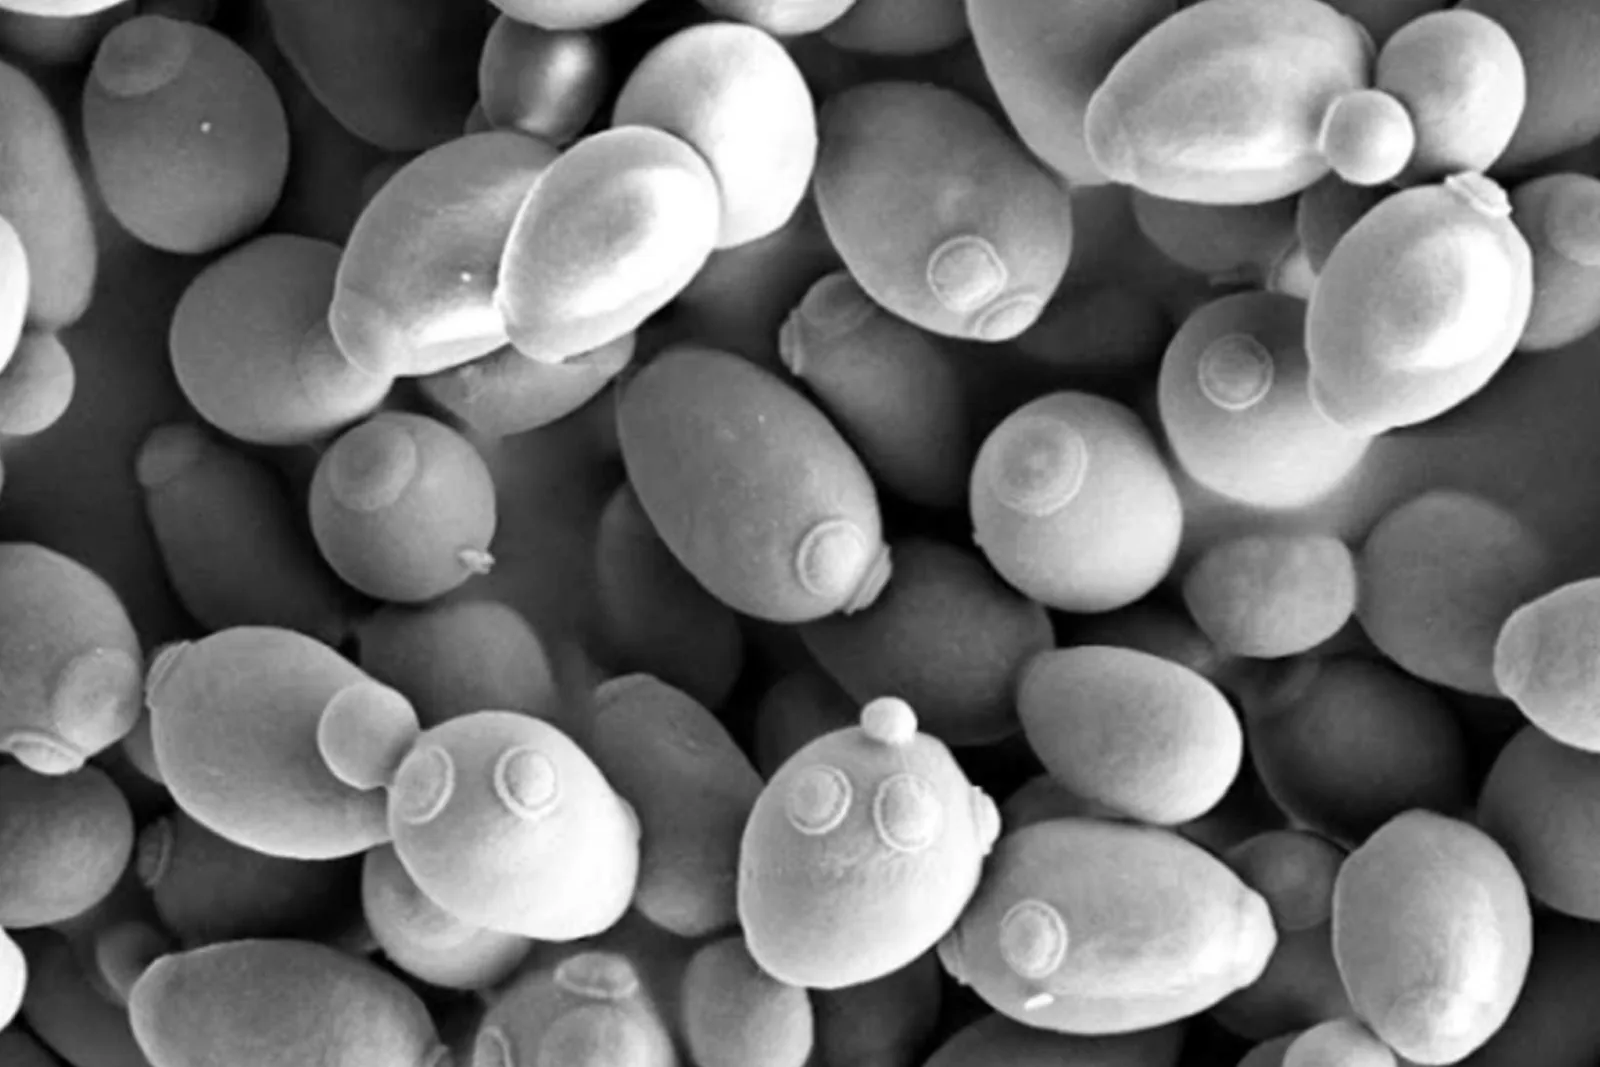
У многих грибов скрещивание можно проверить прямо в чашке Петри — это одно из преимуществ микологии перед зоологией. Два гаплоидных штамма разных типов спаривания сажают рядом; если они принадлежат к одному биологическому виду, образуется дикарион, плодовые тела или сумки с жизнеспособными спорами. У нейроспоры таким образом выделили несколько видов, внешне неотличимых, но не дающих плодовитого потомства. Особенно наглядна история опёнков. В 1978 году финский миколог Кари Корхонен, скрещивая гаплоидные культуры из одиночных спор, разделил европейский «опёнок медовый» на пять биологических видов, а в 1979 году Андерсон и Ульрих нашли в Северной Америке десять таких групп [2]. Сегодня это опёнок медовый в узком смысле, опёнок тёмный, опёнок луковиценогий, опёнок северный и другие; они различаются хозяевами и опасностью: одни губят живые хвойные леса, другие живут почти только на мёртвой древесине.
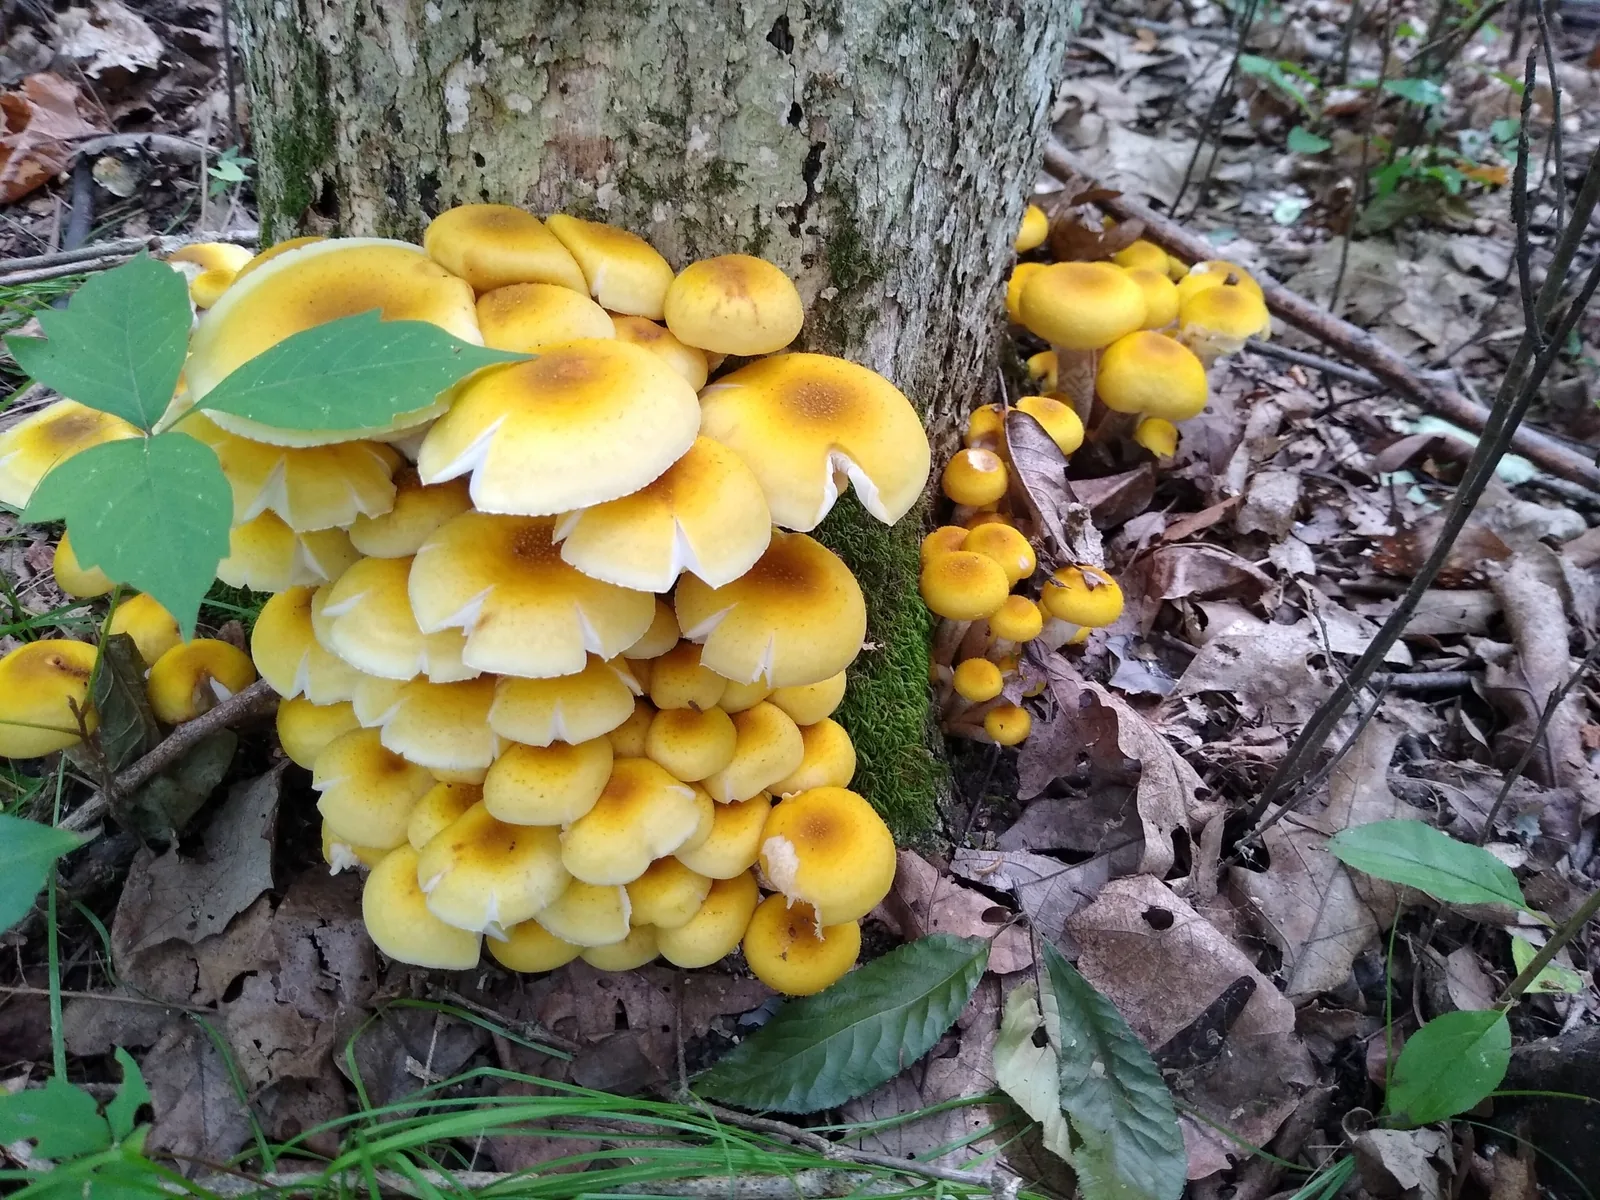
Пекарские дрожжи и их дикие родственники дали другой классический пример. Российский генетик Геннадий Наумов в 1980–1990-х годах скрещивал дрожжи группы Saccharomyces sensu stricto и обнаружил, что гибриды разных видов прекрасно растут, но при мейозе дают лишь около 1 % жизнеспособных спор. Причина оказалась неожиданной: хромосомы двух видов отличаются по последовательности примерно на 10–15 %, и система репарации ошибочного спаривания нуклеотидов мешает им конъюгировать и обмениваться участками. Если эту систему выключить, плодовитость гибрида вырастает в несколько раз [9]. Значит, барьер между видами дрожжей — не особые «гены несовместимости», а накопившиеся различия последовательностей.
У биологической концепции есть, однако, тяжёлые ограничения. Около пятой части описанных аскомицетов известно только в бесполой стадии: проверить их скрещиваемость невозможно. Многие грибы гомоталличны и скрещиваются сами с собой. Большинство видов не растёт в культуре, а у тех, что растут, получить плодовые тела в лаборатории удаётся редко. Наконец, способность скрещиваться в пробирке не означает, что виды скрещиваются в природе: они могут жить на разных хозяевах, в разных районах или в разное время года. Поэтому биологический вид у грибов — скорее проверка, чем рабочий инструмент.
Как у грибов возникают виды
Новые виды грибов возникают теми же путями, что и у других организмов, но с особенностями. Самый обычный путь — географический: популяции, разделённые океаном или горами, накапливают различия, пока не утратят способность скрещиваться. Споры летают далеко, но, как показали молекулярные работы, гораздо реже, чем думали: у сморчков, например, почти каждый вид живёт только на одном континенте.
Второй путь особенно важен для паразитов и симбионтов — смена хозяина. Если гриб перешёл на новое растение и спаривается прямо на нём, то отбор на приспособленность к хозяину автоматически создаёт и изоляцию: встречаются и скрещиваются только те особи, что живут на одном виде растения. Так, по-видимому, разошлись многие виды ржавчинных и головнёвых грибов, мучнистых рос, а у офиокордицепсов, превращающих муравьёв в «зомби», почти у каждого вида муравьёв — свой вид гриба [10].
Третий путь — гибридизация. Лагерные дрожжи, которыми с XV века варят светлое пиво в Баварии, — гибрид пекарских дрожжей и дикого вида, который нашли лишь в 2011 году в лесах Патагонии на галлах южных буков и назвали Saccharomyces eubayanus [11]. Гибридное происхождение доказано и у возбудителя пятнистости злаков Zymoseptoria pseudotritici, и у многих эндофитов злаков из рода эпихлоя. Гибридные виды доставляют систематикам немало хлопот: их гены относятся к двум ветвям сразу.
Филогенетический вид и согласие генов
Если строить родословное дерево по одному гену, легко ошибиться. Внутри одного вида гены постоянно перемешиваются при половом размножении, и деревья разных генов у особей одного вида не совпадают: по одному гену штамм A ближе к B, по другому — к C. Между видами, давно переставшими обмениваться генами, картина обратная: на деревьях всех генов виды образуют одни и те же обособленные ветви. На этом наблюдении Джон Тейлор и его соавторы в 2000 году построили метод распознавания филогенетических видов по согласию генных родословных (GCPSR) [4].
Метод проверили на нейроспоре — грибе, у которого виды заранее известны по скрещиваниям. Джереми Деттман, Дэвид Джейкобсон и Тейлор прочитали несколько генов у множества штаммов и обнаружили, что границы филогенетических видов совпадают с границами биологических, а иногда выявляют и дополнительные виды внутри биологических [12]. Метод стал стандартом: именно так возбудитель фузариоза колоса Fusarium graminearum оказался сначала девятью, а затем не меньше чем шестнадцатью видами [13], а гистоплазма, опёнок, сморчок, лисичка — комплексами видов.
Для оценки границ сегодня используют и формальные статистические методы — модели коалесценции, которые сравнивают, как быстро сливаются линии генов внутри вида и между видами. Они позволяют разграничивать виды даже по одному гену, но склонны «дробить» популяции с ограниченным обменом генами на мнимые виды. Поэтому результат программы для систематика — гипотеза, которую нужно подтвердить морфологией, экологией или скрещиваниями.
ДНК-штрихкоды: ITS и другие
Штрихкод — короткий стандартный участок ДНК, по которому можно узнать вид, как товар в магазине. У животных это ген субъединицы I цитохромоксидазы, у растений — пластидные гены. Для грибов в 2012 году международный консорциум из почти ста микологов сравнил шесть кандидатов и выбрал ITS — внутренние транскрибируемые спейсеры, участки между генами рибосомных РНК 18S, 5,8S и 28S [5]. Их достоинства: в геноме сотни копий, поэтому ITS легко прочитать даже из засохшего гербарного образца или комка почвы; участок длиной около 600 пар нуклеотидов достаточно изменчив, чтобы различать большинство видов; праймеры подходят почти ко всем грибам.
- Что этоспейсеры между генами рРНК, около 600 пар нуклеотидов
- Плюсмного копий, легко читать, огромные базы
- Порогоколо 99,6 % сходства у плесеней, 98,4 % у дрожжей
- ГеныTEF1α, β-тубулин, кальмодулин, RPB2
- Где нужныаспергиллы, пенициллы, фузарии, триходерма
- Плюсразличают виды с одинаковым ITS
- Что сравниваютцелые геномы десятков штаммов
- Что виднообмен генами, гибриды, границы популяций
- Примергистоплазма: один вид → не меньше пяти
Сравнив ITS тысяч эталонных штаммов, исследователи Вестердейкского института в Утрехте оценили, при каком сходстве последовательностей два штамма вероятнее всего принадлежат к одному виду: около 98,4 % для дрожжей и около 99,6 % для мицелиальных грибов [14, 15]. Но это лишь статистика. В родах аспергилл, пеницилл, фузарий, триходерма многие виды имеют одинаковый или почти одинаковый ITS, и для них используют вторичные штрихкоды — гены фактора элонгации трансляции TEF1α, β-тубулина, кальмодулина, второй субъединицы РНК-полимеразы II [16]. У других групп, наоборот, копии ITS в одном геноме различаются между собой.
Ещё одна проблема — ошибки в базах. Уже в 2006 году Хенрик Нильссон с соавторами подсчитал, что около пятой части последовательностей ITS грибов в международной базе GenBank подписаны неверным или неполным названием: кто-то определил гриб по внешнему виду ошибочно, и его ошибка размножилась, когда другие стали сравнивать с ним свои образцы [17]. Поэтому важнейшую роль играют курируемые базы. База UNITE объединяет последовательности в «гипотезы видов» с собственным цифровым идентификатором, к которым можно отнести даже образец без названия [18]. А последовательность, полученная от типового образца вида, ценится особо: только она надёжно связывает название с ДНК.
Геномы и границы видов
Удешевление чтения геномов позволило сравнивать не несколько генов, а миллионы позиций одновременно. Популяционная геномика показывает, есть ли между группами обмен генами, были ли гибридизации, где и когда линии разошлись [19]. В 2017 году Даниэль Матуте с соавторами прочитали геномы 30 изолятов гистоплазмы — возбудителя гистоплазмоза — из разных частей мира и обнаружили, что это не один вид, а не меньше пяти генетически изолированных линий, редко скрещивающихся между собой. Четыре из них получили названия: Histoplasma capsulatum в узком смысле (Панама), H. mississippiense и H. ohiense (США) и H. suramericanum (Южная Америка) [20].
У дрожжей уже предлагают описывать новые виды по полным геномам, сравнивая средний процент идентичности нуклеотидов, как это принято у бактерий [21]. Геномы показывают и то, чего не видно по отдельным генам: участки, перешедшие от одного вида к другому при редкой гибридизации (интрогрессию), целые хромосомы, отличающиеся у патогенных и непатогенных штаммов. Граница вида от этого не становится проще — скорее наоборот: оказывается, что виды грибов часто «подтекают», обмениваясь генами ещё долго после расхождения.
Как определяют гриб сегодня
В клинической лаборатории XXI века гриб редко определяют по виду колонии. Выросшую культуру помещают в масс-спектрометр MALDI-TOF: лазер выбивает из клеток белки, прежде всего рибосомные, и прибор за минуты записывает их «отпечаток» — набор пиков масс. Программа сравнивает его с базой эталонных спектров и называет вид. Метод быстрый и дешёвый, но знает только те виды, что есть в базе: если двойника туда не внесли, прибор уверенно назовёт ближайший известный вид. Поэтому трудные случаи — криптические виды аспергиллов, фузариев, редкие дрожжи — решают чтением ДНК: ITS, β-тубулина, кальмодулина.
В экологии всё чаще определяют не отдельные грибы, а целые сообщества. Из грамма почвы, кусочка корня или воздушного фильтра выделяют всю ДНК, размножают участок ITS и прочитывают сотни тысяч копий. Этот подход — метабаркодинг — показал, что в одном грамме лесной почвы бывают сотни видов грибов, большинство из которых никогда не образует видимых плодовых тел. Но у метода есть ловушки: ошибки прочтения создают мнимые «виды», а число копий ITS у разных грибов различается в десятки раз, и обилие последовательностей не равно обилию грибов. Поэтому последовательности объединяют в операционные таксономические единицы или «гипотезы видов» по порогу сходства, и результат всегда приблизителен.
Появились и карманные секвенаторы на основе нанопор размером с флешку. С ними микологи читают ДНК грибов прямо в экспедиции — в тропическом лесу или на станции в Антарктиде — и в тот же день знают, нашли ли они новый вид. Параллельно растёт гражданская наука: любители выкладывают фотографии и последовательности ДНК своих находок в открытые базы, и многие новые виды последних лет найдены именно так. Например, проекты по чтению ДНК грибных находок любителей в Северной Америке за несколько лет выявили сотни видов, которых не было ни в одном определителе.
Криптические виды
Криптическими (скрытыми) называют виды, которые невозможно или очень трудно различить по строению, но которые обособлены генетически и, как правило, не скрещиваются. Если после молекулярного разделения у видов всё же находят морфологические отличия — другой размер спор, окраску, хозяина, — их называют псевдокриптическими: различия были, просто их не замечали. У грибов криптических видов особенно много по трём причинам: признаков строения мало; сходные формы возникают независимо; многие линии разошлись давно, но живут в одинаковых условиях, и отбор не менял их облик [22].
- Аспергилл дымящийотделён A. lentulus, устойчивый к лекарствам
- Криптококкдва вида — или семь
- Гистоплазма, споротриксвиды с разной географией и тяжестью болезни
- Фузарий злаковне меньше 16 видов вместо одного
- Пирикуляриялинии риса и пшеницы
- Офиокордицепссвой вид почти у каждого вида муравьёв
- Опёнокнесколько видов в «опёнке осеннем»
- Сморчкиболее 40 видов вместо нескольких
- Лишайник коране меньше 126 видов вместо одного
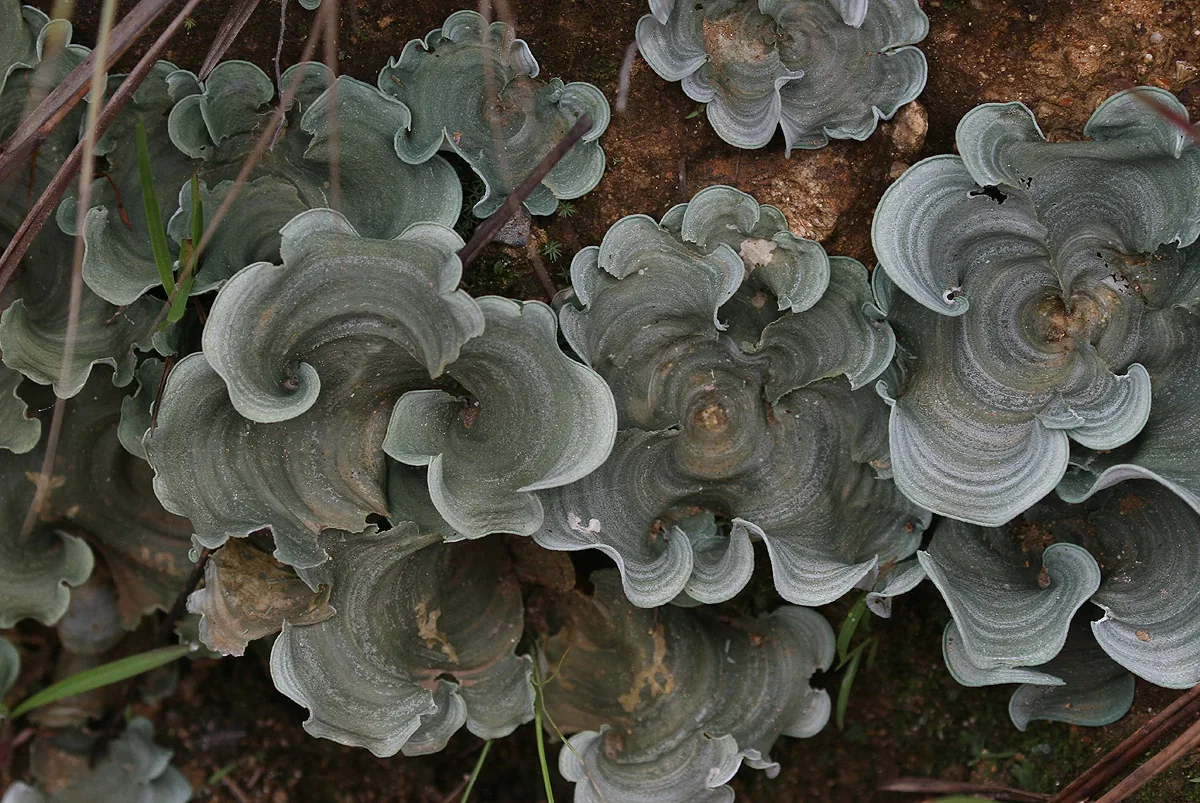
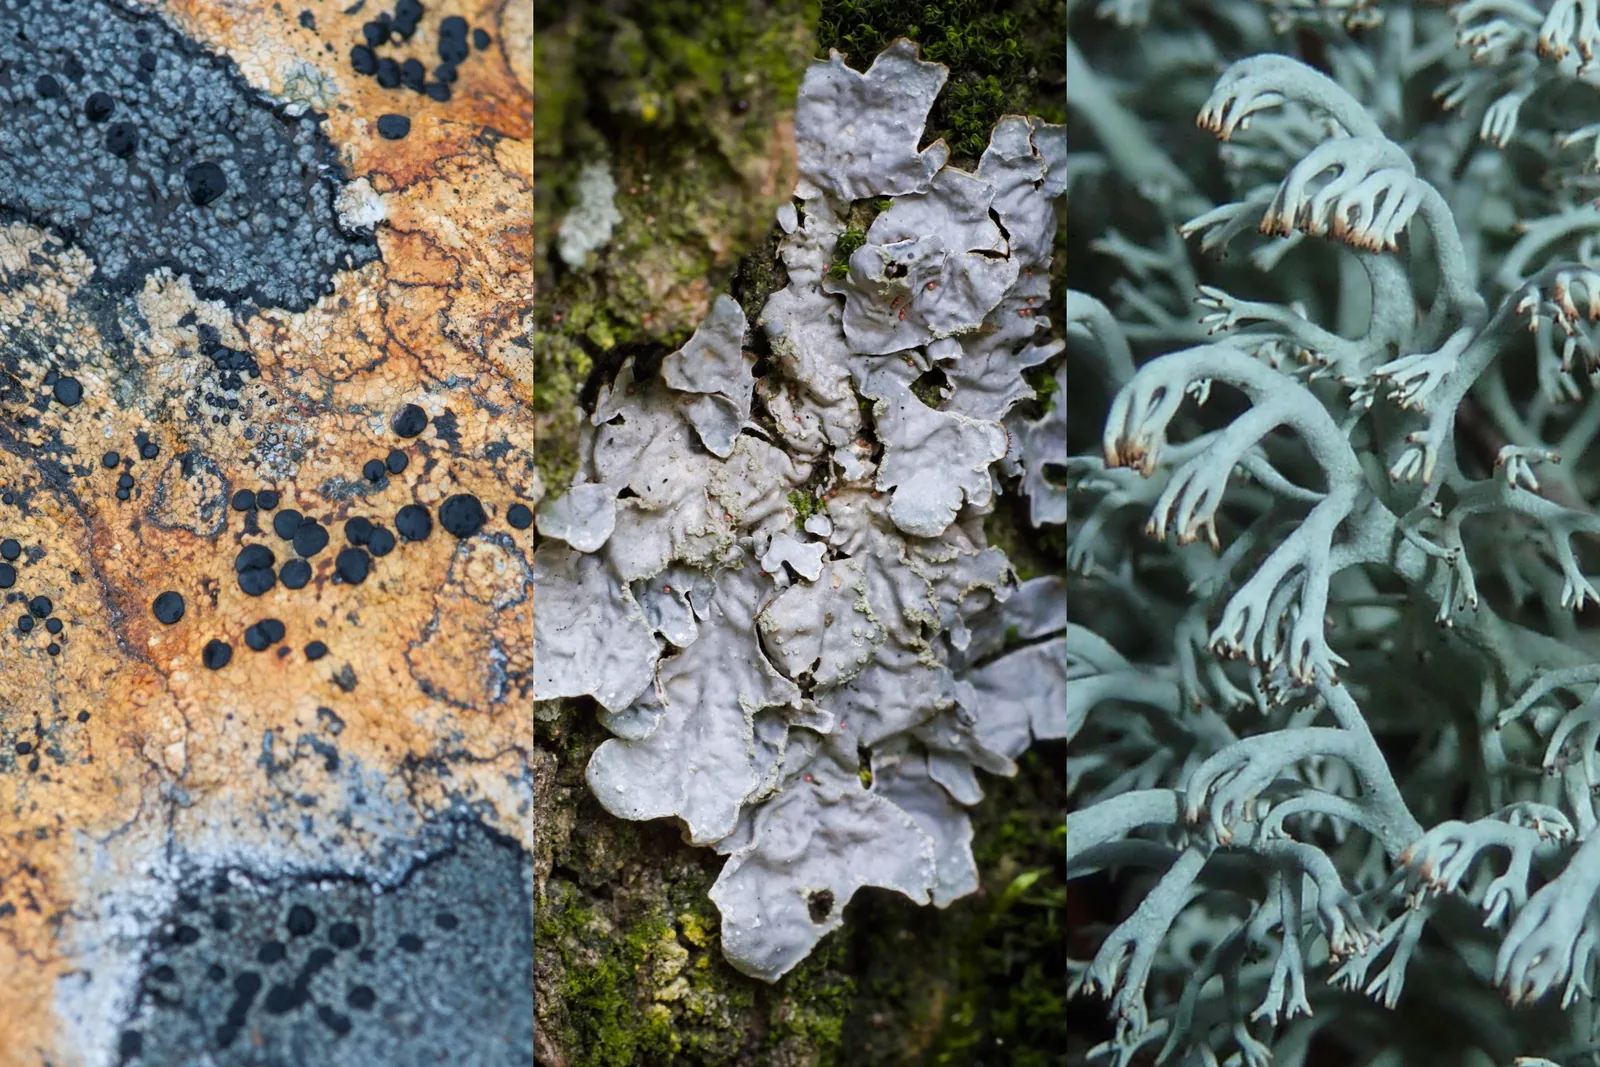
Самый впечатляющий пример — лишайник, известный как Dictyonema glabratum, или кора павлинья. Это редкий случай лишайника, гриб которого — не аскомицет, а базидиомицет из семейства гигрофоровых, родственник шляпочных гигроцибе. Его серо-голубые слоевища с концентрическими зонами растут на почве, мхах и коре деревьев в горах тропической Америки. В 2013 году анализ ДНК разделил его на 16 видов, а в 2014 году Роберт Люкинг с соавторами, прочитав ITS 356 образцов, насчитал не меньше 126 видов в двух родах — коре и корелле. Модель по накоплению новых видов с ростом выборки предсказала, что их больше 400 [7]. Интересно, что многие из этих видов, присмотревшись, удалось различить и по внешнему виду — они оказались псевдокриптическими.
Двойники в медицине
Для врача криптический вид — не академическая тонкость. В 2005 году Шахана Баладжи с соавторами описали Aspergillus lentulus — двойника аспергилла дымящего, выделенного у больных после пересадки костного мозга. По виду колонии он почти не отличается от обычного возбудителя аспергиллёза, разве что медленнее образует споры, но значительно менее чувствителен к амфотерицину B, вориконазолу и каспофунгину [23]. С тех пор в секции аспергилла дымящего описали ещё ряд видов, и многие из них устойчивее «главного». Правильное определение вида стало частью выбора лечения.
Криптококк — возбудитель менингита у людей с ослабленным иммунитетом — до недавнего времени делили на два вида: Cryptococcus neoformans, живущий в помёте голубей, и C. gattii, связанный с эвкалиптами и другими деревьями. С 1999 года на острове Ванкувер в Канаде началась вспышка, вызванная C. gattii, поражавшего и людей со здоровым иммунитетом, и животных. В 2015 году Ферри Хаген с соавторами предложили разделить эти два вида на семь, по генетическим линиям [24]. Предложение вызвало спор: группа Квон-Чунг возразила, что для клинициста удобнее говорить о «комплексе видов», пока линии не различаются надёжно по признакам, важным для лечения [25]. Спор до сих пор не решён окончательно, и в литературе используют оба подхода.
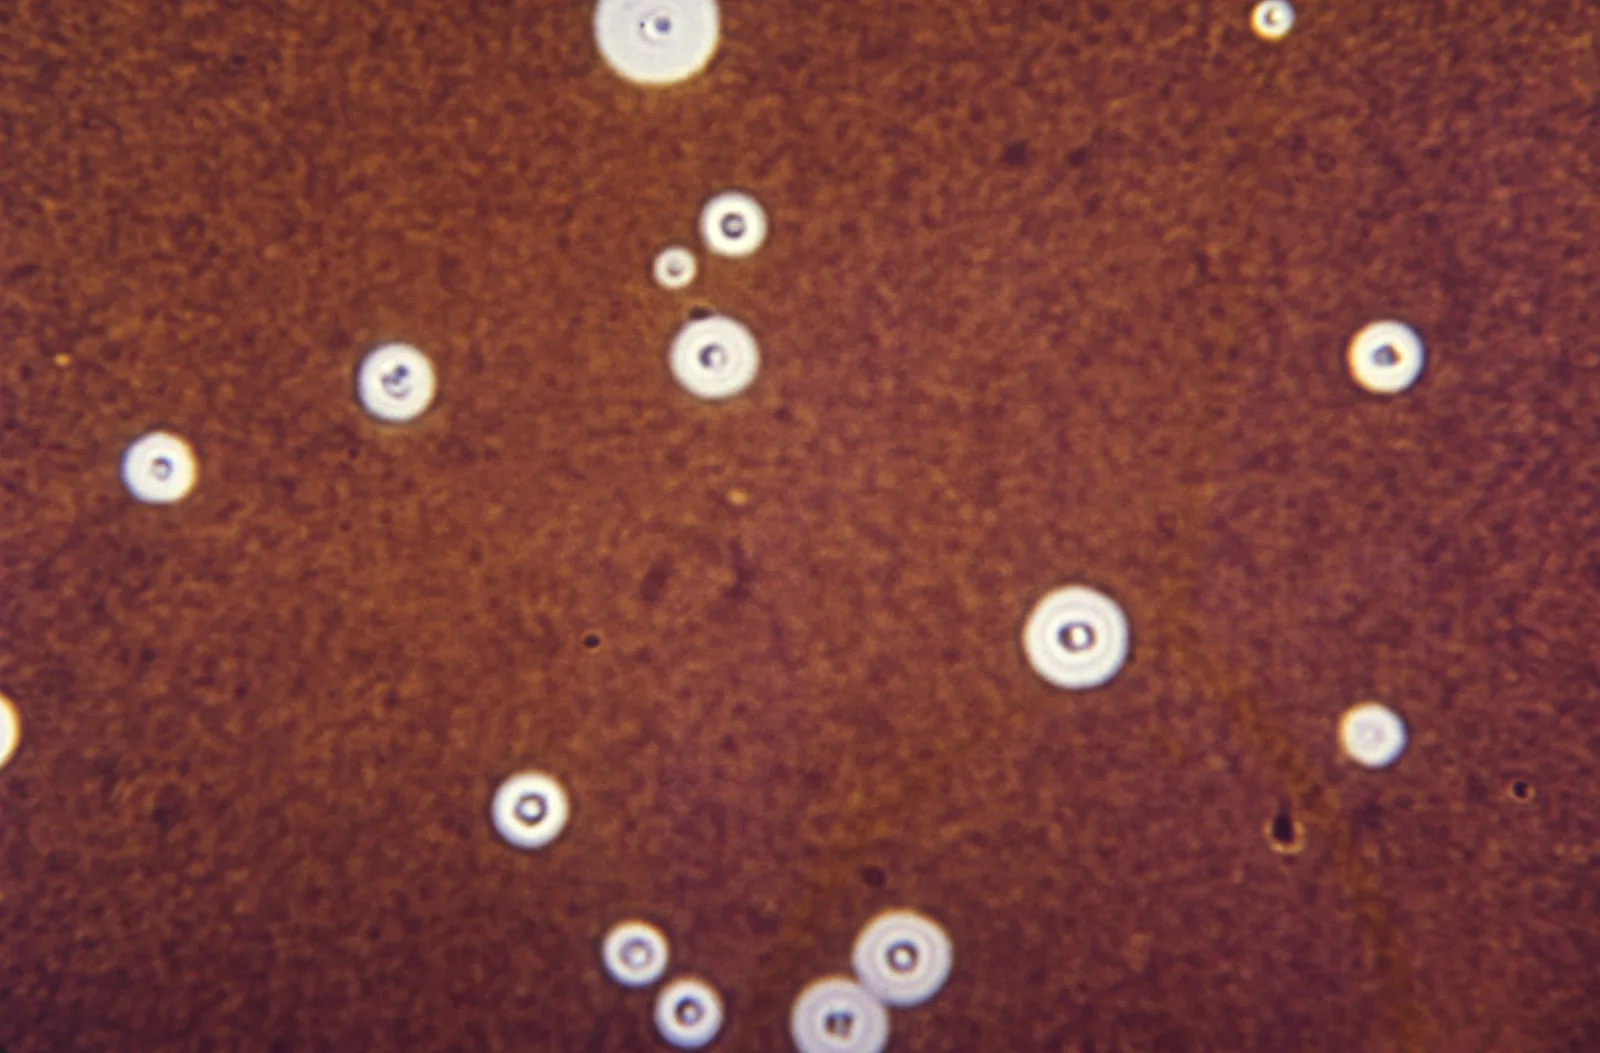
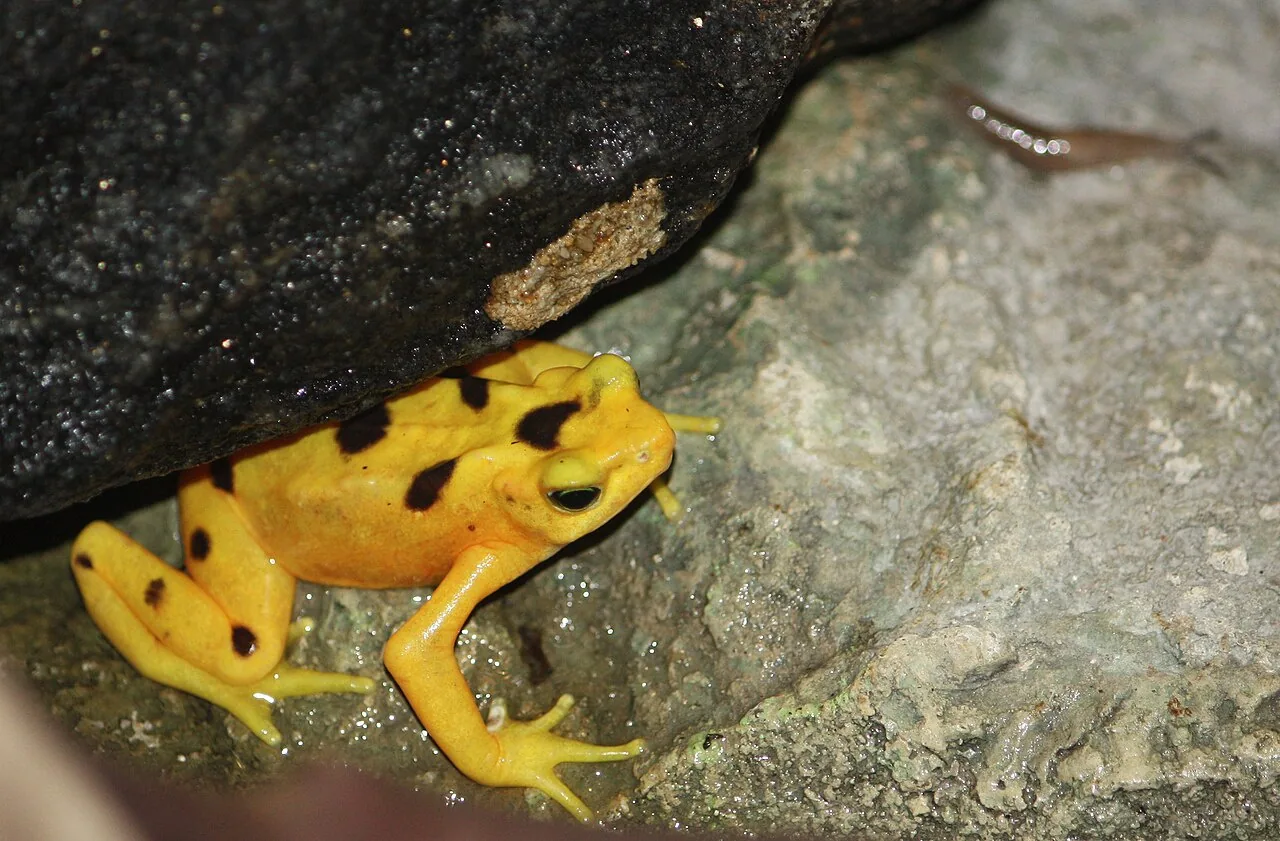
Похожие истории случились со многими патогенами. Возбудитель кокцидиоидомикоза разделили на Coccidioides immitis из Калифорнии и C. posadasii из остальных районов Америки [26]. От Candida parapsilosis отделили C. orthopsilosis и C. metapsilosis, различающихся по частоте и тяжести инфекций [27]. В бразильском комплексе споротрикса оказался вид Sporothrix brasiliensis, который передаётся людям от кошек и вызвал в Рио-де-Жанейро крупнейшую в мире эпидемию споротрихоза [28]. Возбудитель пневмоцистной пневмонии человека отделили от паразита крыс и назвали Pneumocystis jirovecii — в честь чешского паразитолога Отто Йировеца. В 2013 году у саламандр Европы нашли новый хитридиевый гриб Batrachochytrium salamandrivorans, близкий к возбудителю хитридиомикоза лягушек, но поражающий в основном хвостатых амфибий [29].
Паразиты растений и насекомых
Фузариоз колоса — одна из главных болезней пшеницы и ячменя, насыщающая зерно микотоксинами. Его возбудителя долго называли одним именем Fusarium graminearum. Начиная с 2000 года Керри О'Доннелл и его коллеги по Министерству сельского хозяйства США, применив метод согласия генов, выделили в нём сначала девять, а позже не меньше 16 видов, различающихся географией и набором токсинов: одни производят дезоксиниваленол, другие — ниваленол, более ядовитый для животных [13]. Для карантина и прогноза загрязнения зерна это существенная разница.
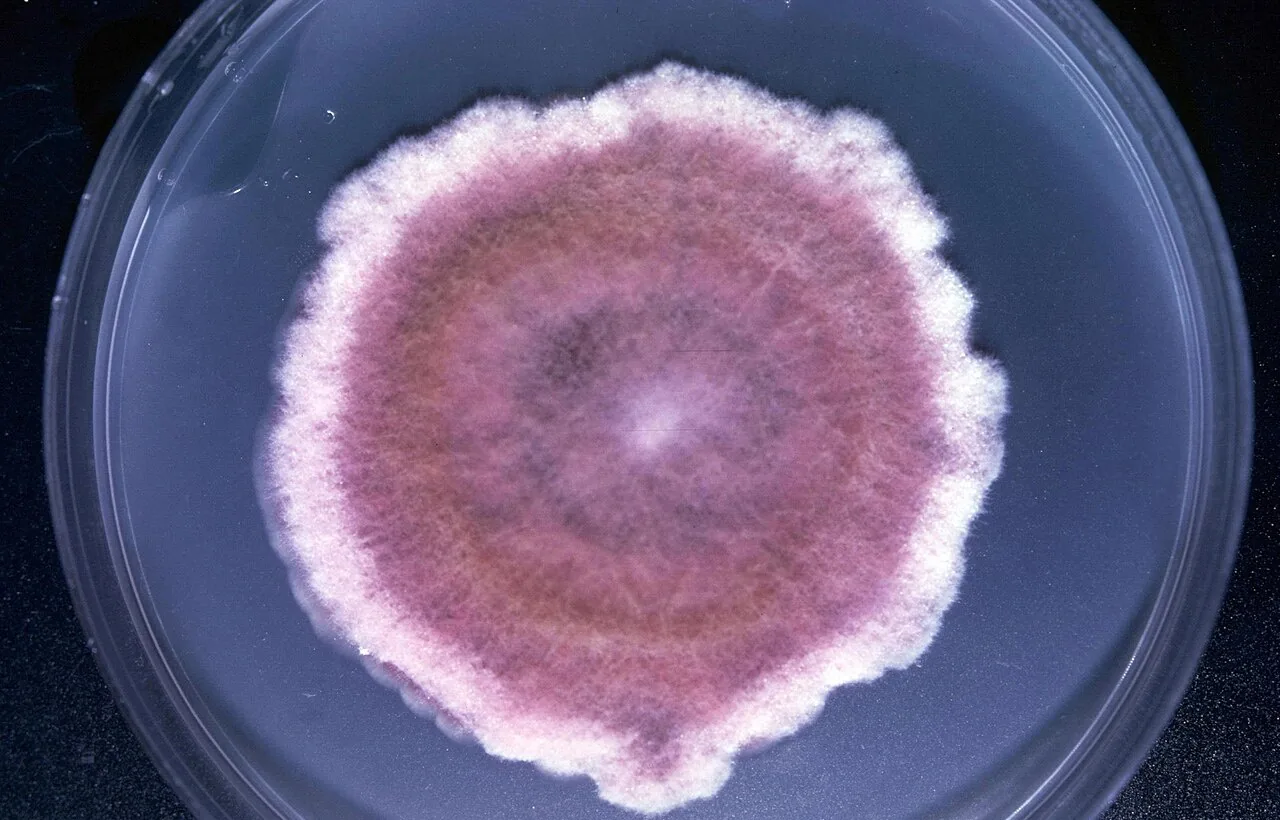
Пирикулярия (Pyricularia oryzae) — возбудитель пирикуляриоза риса — существует в виде нескольких линий, специализированных на разных злаках. Линия, поражающая пшеницу, впервые появилась в Бразилии в 1985 году, а в 2016 году неожиданно вспыхнула в Бангладеш, за 15 тысяч километров: геномы показали, что её завезли с южноамериканским зерном [30]. Является ли пшеничная линия отдельным видом — предмет спора, но от ответа зависят правила карантина.
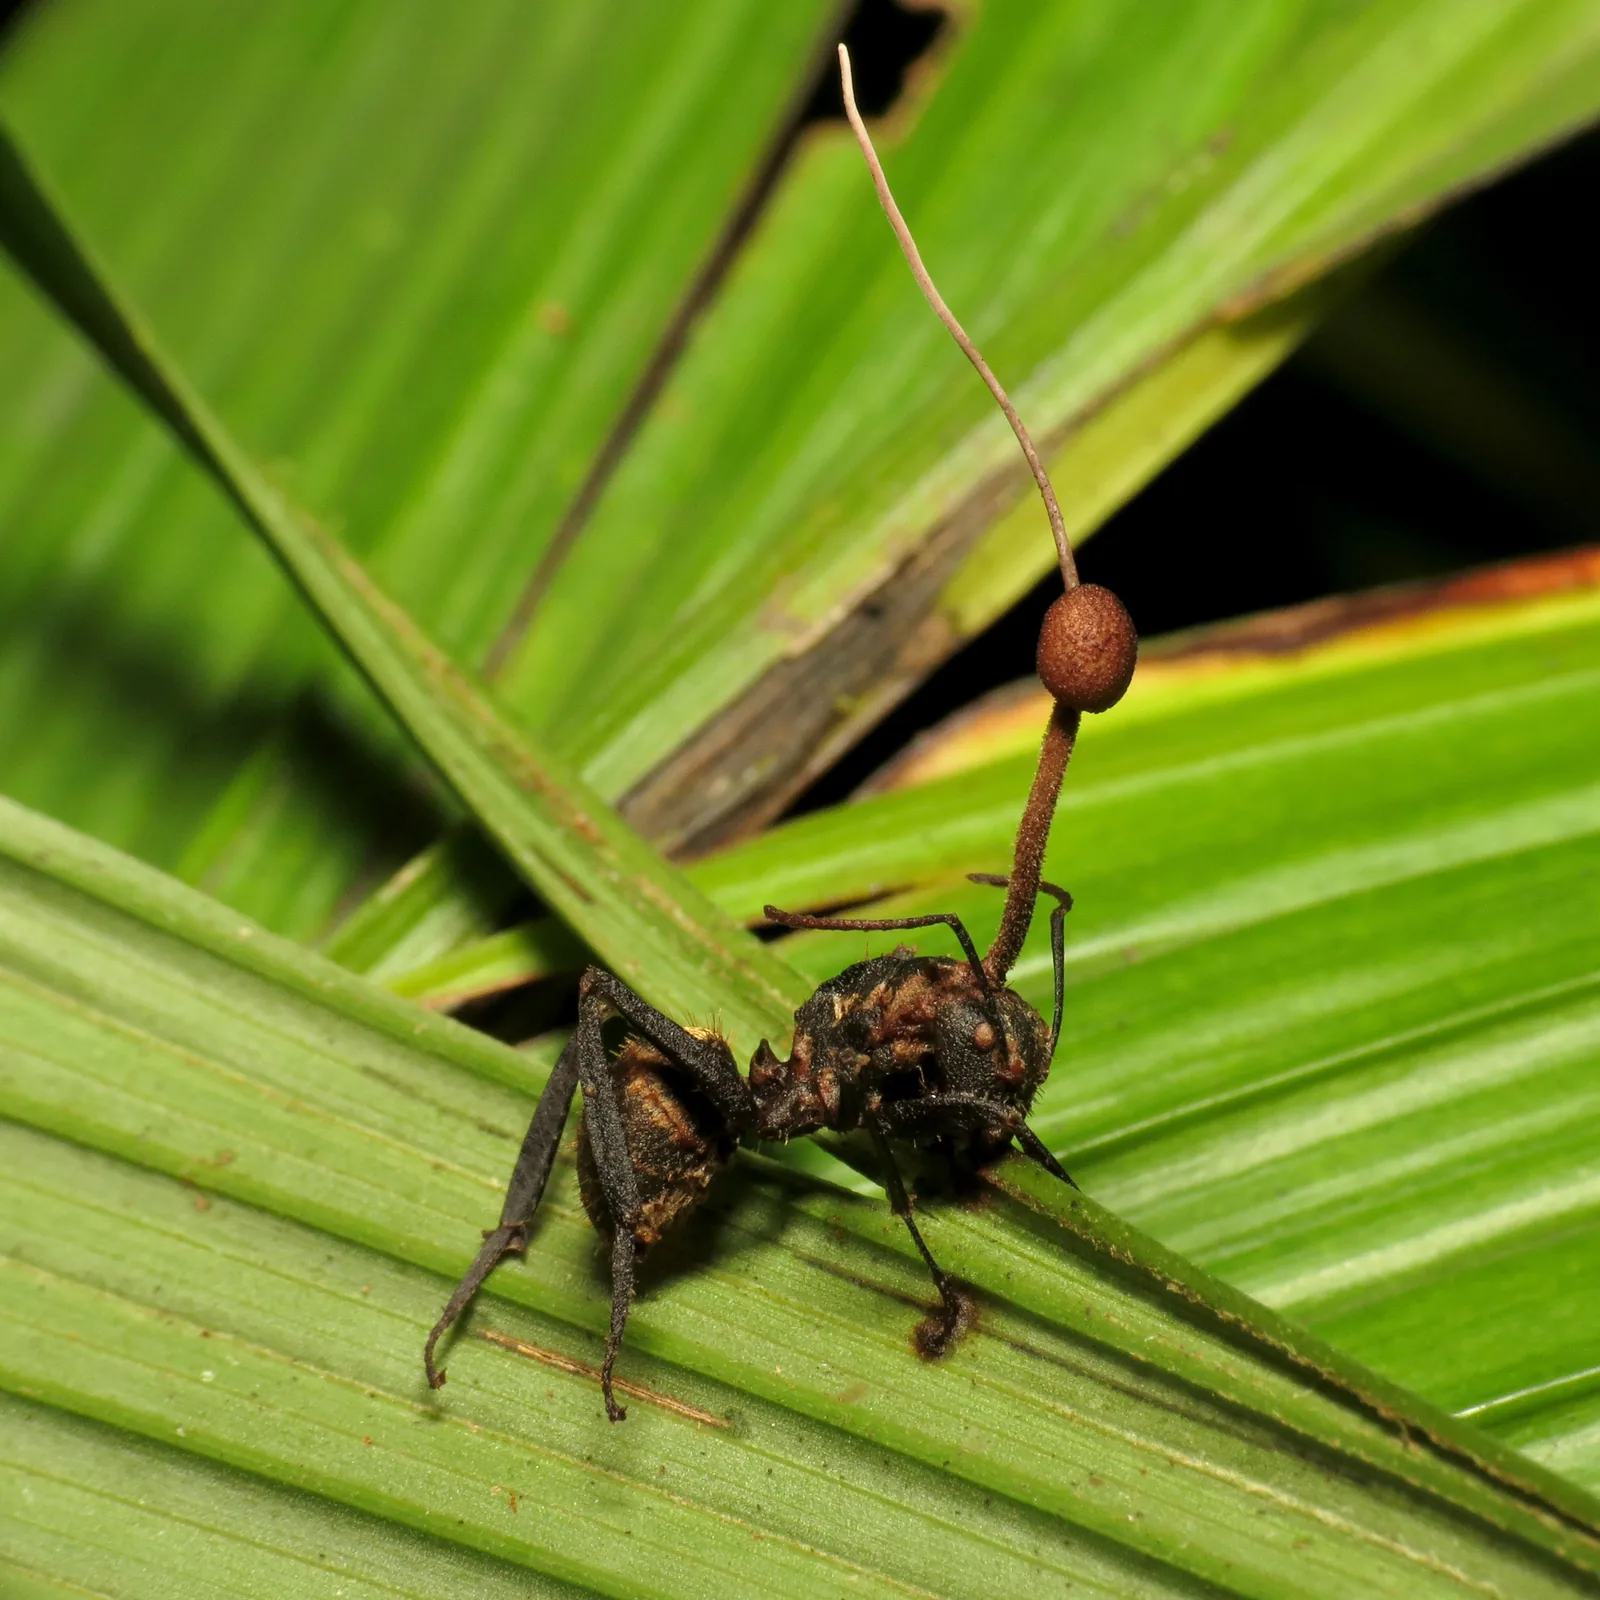
Энтомопатогенные офиокордицепсы, превращающие муравьёв-древоточцев в «зомби», долго числились одним видом Ophiocordyceps unilateralis. Работы Жуана Араужо и Дэвида Хьюза показали, что почти у каждого вида муравьёв свой вид гриба: только в 2018 году они описали 15 новых видов с четырёх континентов [10]. Это и есть видообразование через специализацию на хозяине.
Шляпочные грибы и лишайники
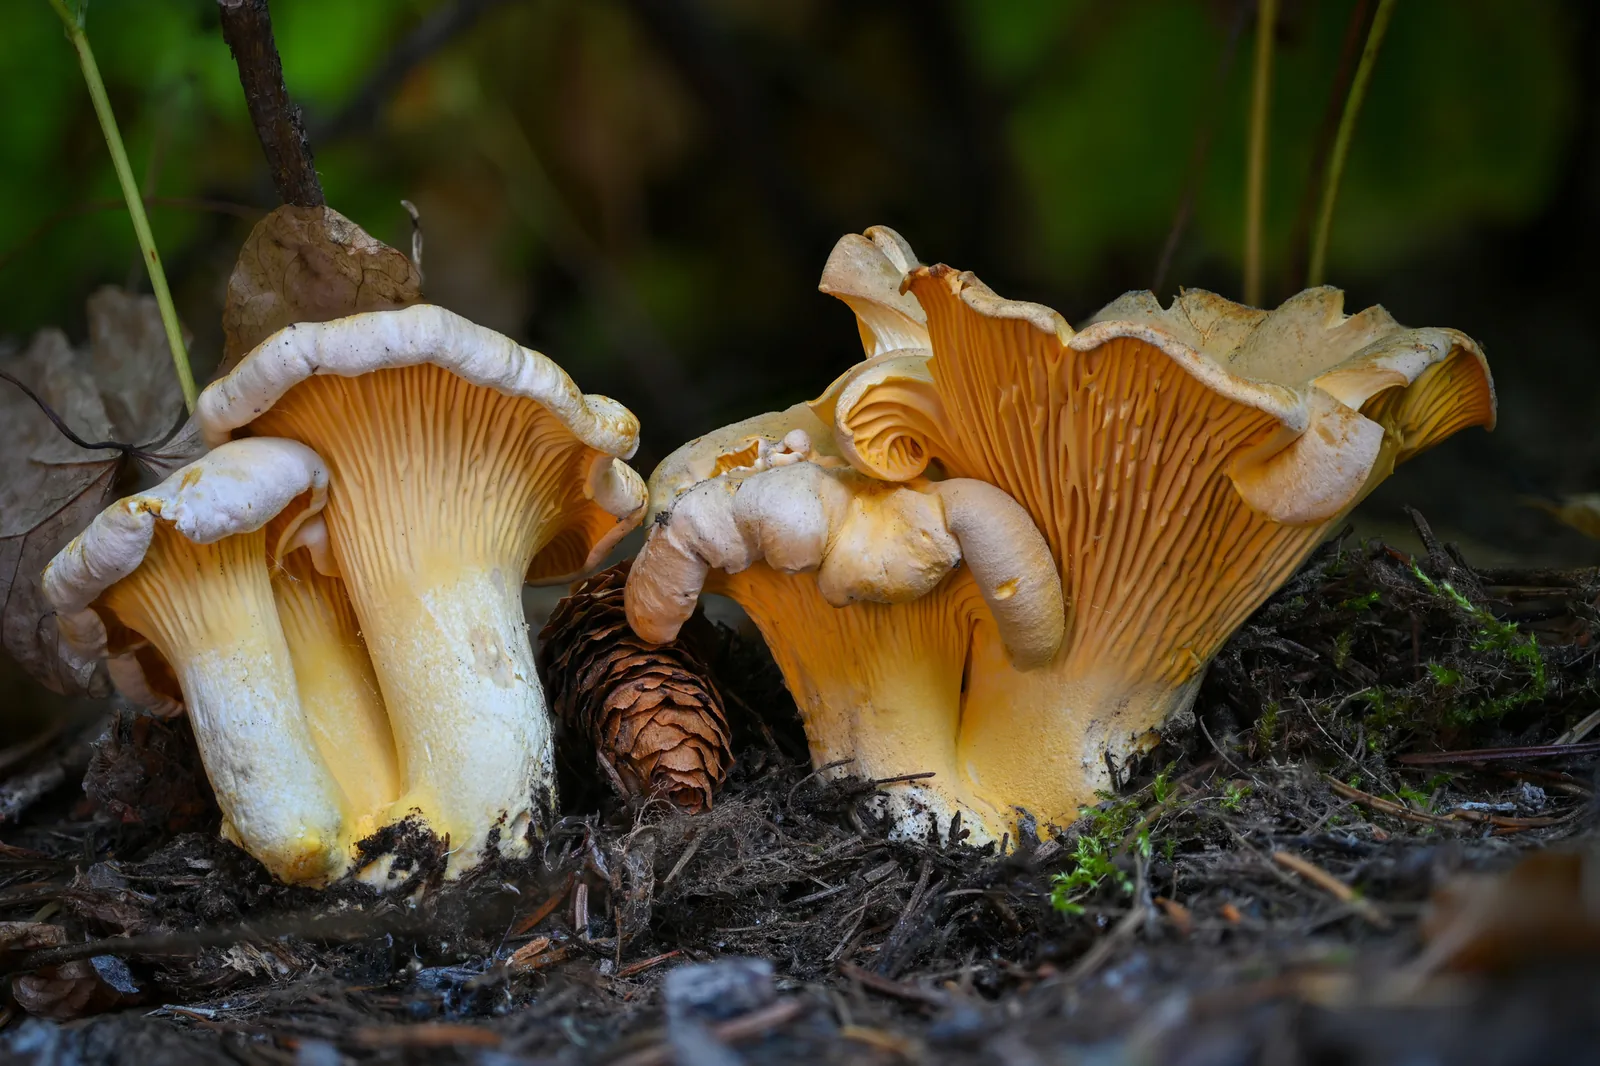
Привычные съедобные грибы тоже оказались комплексами видов. «Лисичка обыкновенная» (Cantharellus cibarius) в узком смысле живёт в Европе, а североамериканские «лисички» почти все — другие виды, некоторые описаны лишь в 2000-х годах. Белый гриб (Boletus edulis) в широком смысле включает несколько близких видов в Евразии и Северной Америке. Мухомор красный, по данным Йожефа Гемля, состоит из нескольких филогенетических линий с разными ареалами [31]. Сморчки, которых в европейских определителях было несколько видов, в 2011 году разделили на 41 филогенетический вид, почти каждый из которых живёт лишь на одном континенте; сегодня их известно ещё больше [32].
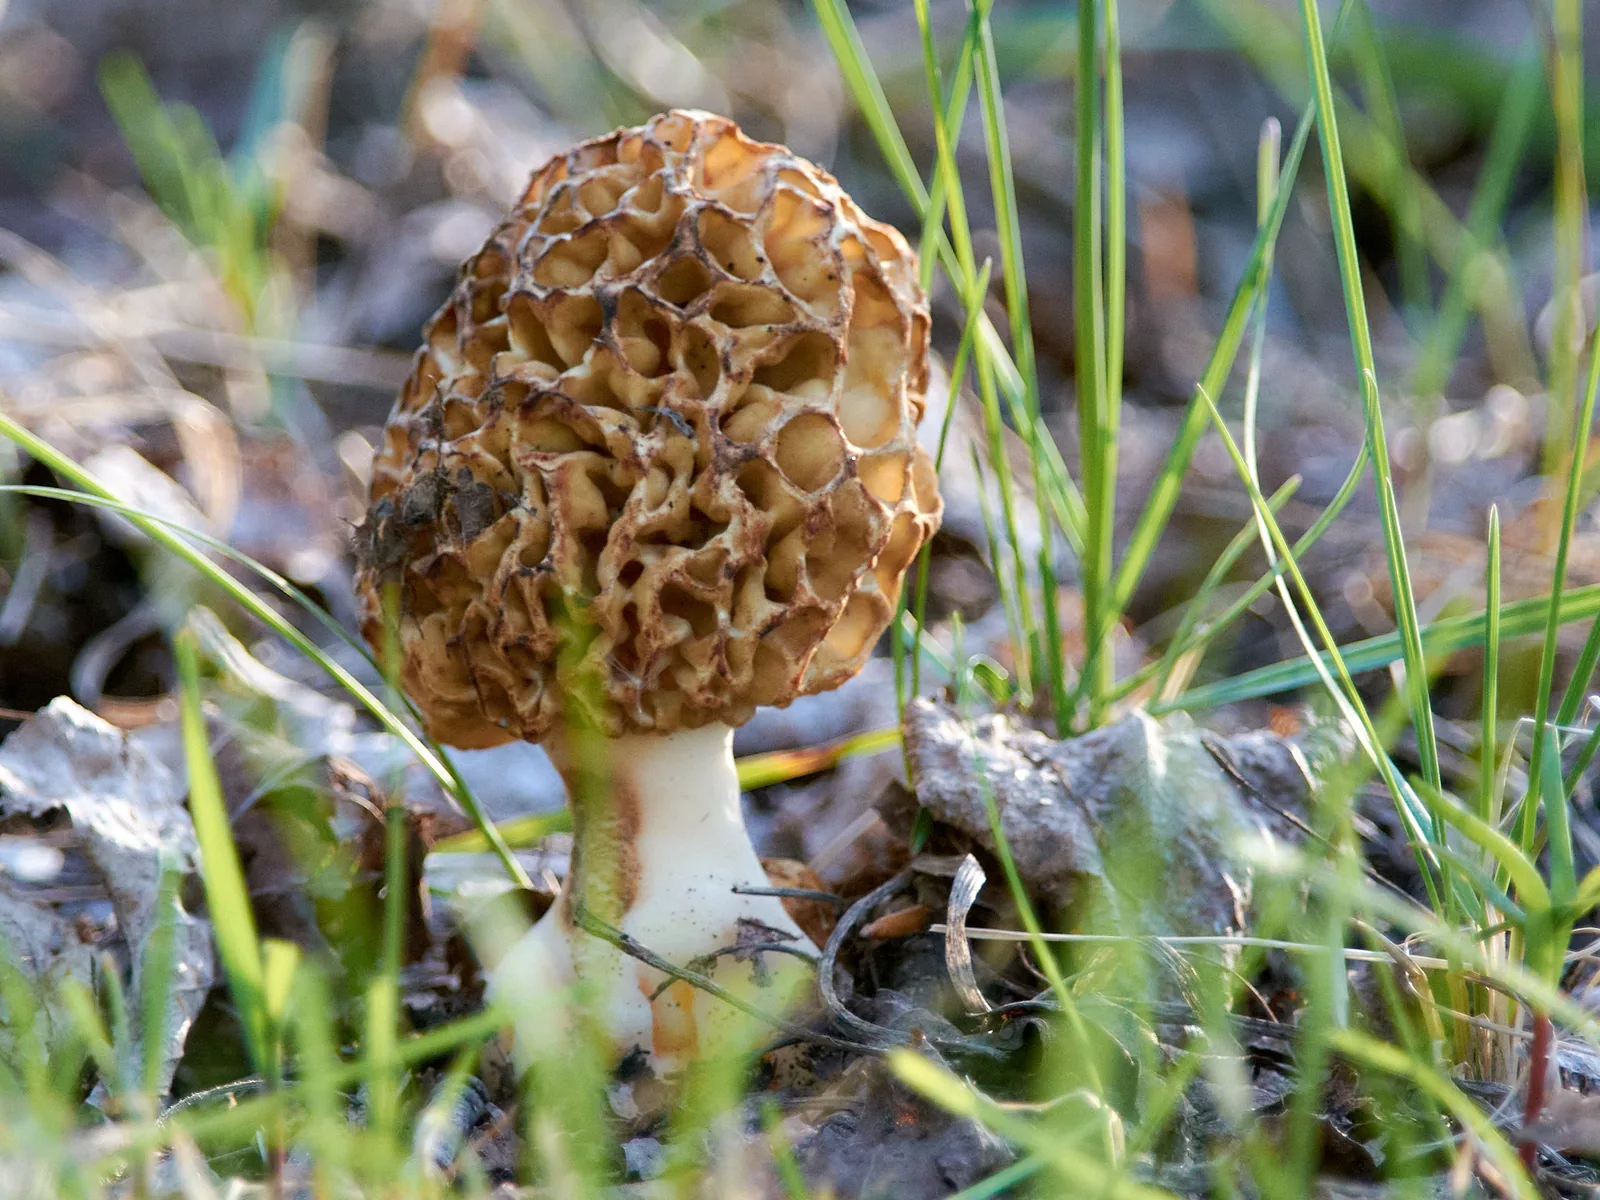
Отсюда практический вывод: название из европейского определителя нельзя механически переносить на грибы другого континента, а опыт съедобности — с одного вида комплекса на другой. И наоборот, вид, считавшийся обычным, может распасться на несколько редких, каждый из которых нуждается в охране. Лишайники дают ещё больше примеров: в пармелиях, кладониях, бородачах, умбиликариях найдены десятки криптических видов, часто с разной химией лишайниковых кислот.
Вид у лишайников
Лишайник — не организм, а сообщество: гриб-микобионт, одна или несколько водорослей или цианобактерий и множество бактерий и других грибов. Как определить его «вид»? По правилам номенклатуры название лишайника — это название его гриба. Водоросль имеет своё название и может меняться: один и тот же гриб в разных местах сожительствует с разными штаммами и даже видами водорослей, а один вид водоросли — с десятками видов грибов. Поэтому виды лишайников — это, строго говоря, виды лихенизированных грибов, и криптические виды среди них ищут теми же методами, что и у других грибов.
В 2016 году Тоби Шприбилле с соавторами обнаружил в лишайниках неожиданного «третьего участника». Два североамериканских лишайника-бородача, Bryoria fremontii и B. tortuosa, давно считали разными видами: первый бурый и съедобный — его ели индейцы, второй жёлтый от ядовитой вульпиновой кислоты. При этом по ДНК их грибы не различались. Оказалось, что в коре жёлтого бородача гораздо больше клеток дрожжевого базидиомицета из рода цифобазидиум, и, возможно, именно эти дрожжи и отвечают за синтез кислоты. Затем родственные дрожжи нашли в лишайниках десятков родов на шести континентах [33]. Значит, видимые различия между «видами» лишайников иногда определяются не геном гриба, а составом всего сообщества, — и это заставляет пересмотреть само понятие вида у симбиотических организмов.
Есть и обратная ситуация — «фотоморфы». Один и тот же гриб с зелёной водорослью образует листоватое слоевище, а с цианобактерией — кустистое, совершенно на него не похожее. Такие пары у лобарии и стикты долго описывали как разные виды и даже роды, пока не нашли «химерные» слоевища, где обе формы растут из одного куска гриба. По правилам номенклатуры у обеих форм одно название — по грибу.
Ниже вида: формы и расы
Внутри вида паразитические грибы делят на группы по хозяину и вирулентности. Специальная форма (forma specialis, f. sp.) — группа штаммов, поражающих определённое растение. У Fusarium oxysporum их больше сотни: f. sp. lycopersici вызывает увядание томатов, f. sp. cubense — панамскую болезнь бананов. Её «тропическая раса 4», распространившаяся с 1990-х годов из Юго-Восточной Азии, угрожает сорту кавендиш — почти всем экспортным бананам мира. Специальные формы — не таксоны в строгом смысле, их названия не регулируются Кодексом номенклатуры; многие из них даже не родственны между собой, а получили способность поражать одного хозяина независимо.
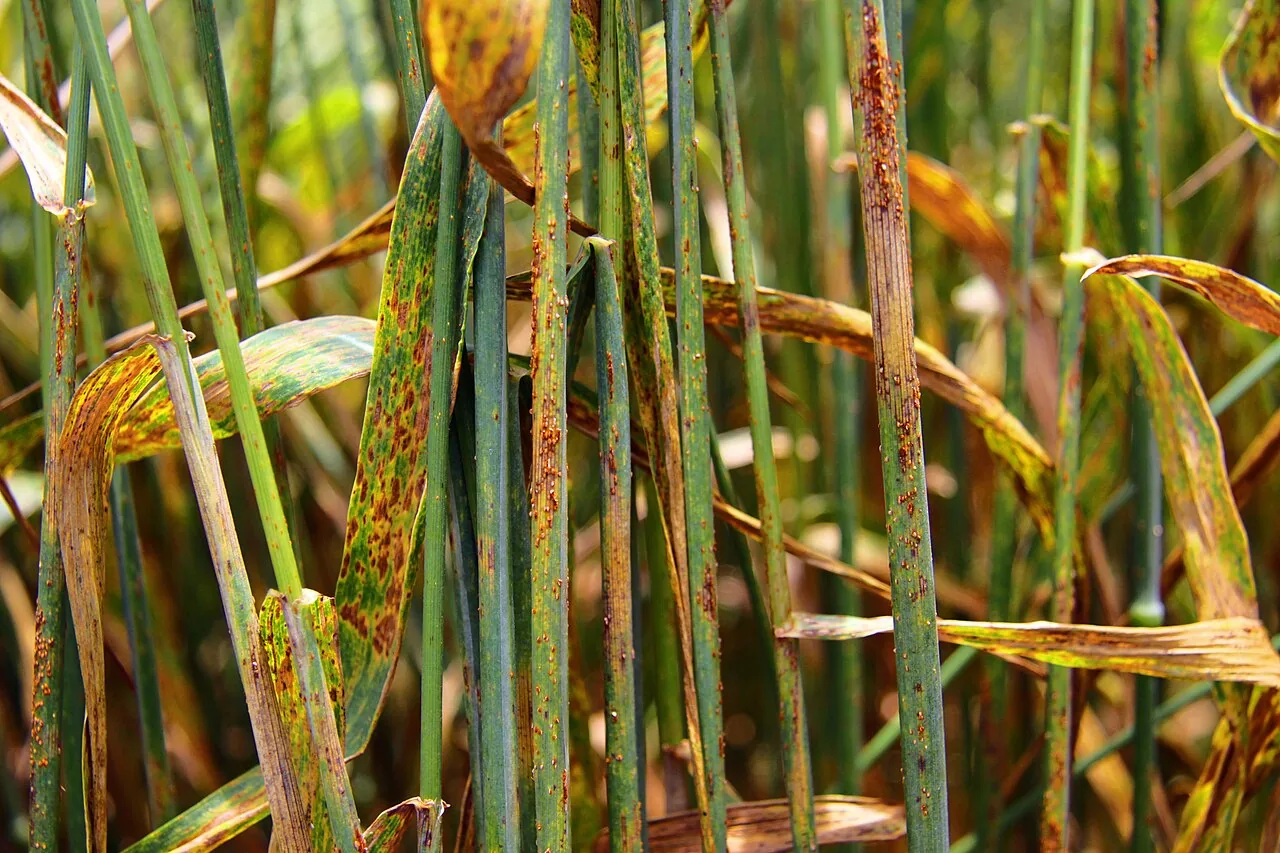
Физиологические расы различаются набором генов вирулентности против сортов одного растения. Раса Ug99 стеблевой ржавчины пшеницы, найденная в Уганде в 1999 году, преодолевает ген устойчивости Sr31, на который десятилетиями полагались селекционеры, и распространилась по Африке и Ближнему Востоку. Раса — не вид: она может появиться за несколько лет одной мутацией или гибридизацией, а вид формируется тысячелетиями.
Научные названия: правила
Научное название вида гриба, как у растений и животных, двойное: род с заглавной буквы и видовой эпитет со строчной, оба курсивом — Amanita phalloides. За ним в специальной литературе ставят авторов: Amanita phalloides (Vaill. ex Fr.) Link означает, что вид первым упомянул Себастьен Вайян, действительно обнародовал Элиас Фрис (в другом роде — отсюда скобки), а в род мухомор перенёс Генрих Линк. Правила названий грибов записаны в Международном кодексе номенклатуры водорослей, грибов и растений, который пересматривается каждые шесть лет на ботанических конгрессах; с 2018 года положения, касающиеся только грибов, собраны в особую главу F и решаются на микологических конгрессах [34].
Каждое название привязано к типу — конкретному образцу, хранящемуся в фунгарии (гербарии грибов), или к культуре, хранящейся в метаболически неактивном состоянии, например замороженной. Голотип — образец, указанный автором при описании. Если он утрачен, выбирают лектотип или неотип. Если тип — старый засохший гриб, по которому невозможно ни прочитать ДНК, ни рассмотреть нужные признаки, назначают эпитип — свежий образец, однозначно толкующий тип. Именно поэтому коллекции грибов, где хранятся типовые образцы, — бесценный научный архив: любой спор о том, к какому виду относится название, решается сравнением с типом.
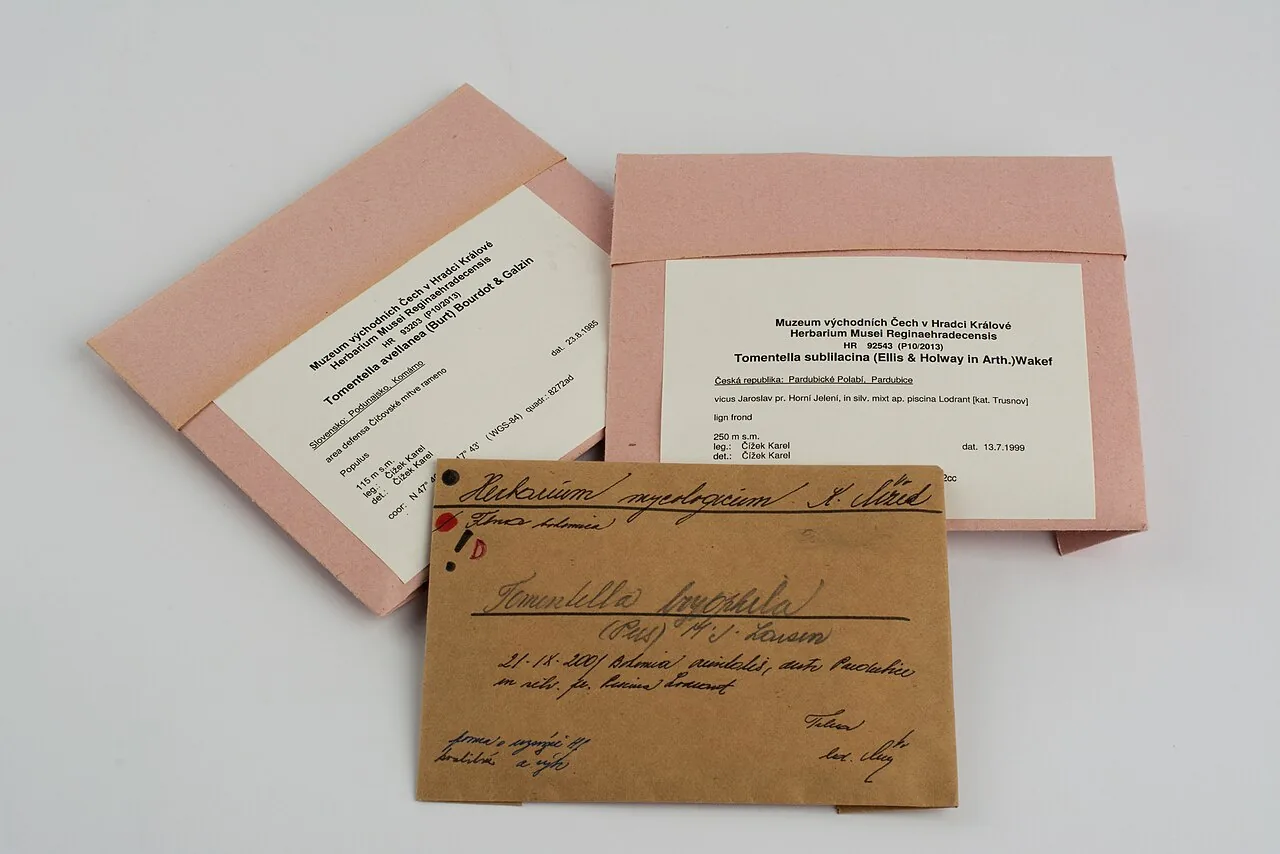
С 2012 года описание нового вида может быть на латыни или на английском, а публикация — электронной. С 2013 года каждое новое название гриба нужно заранее зарегистрировать в одном из признанных хранилищ — MycoBank (создан в 2004 году в Утрехте), Index Fungorum (Королевские ботанические сады Кью) или Fungal Names (Институт микробиологии Академии наук Китая) — и указать полученный номер в публикации [35, 36]. Без этого название не считается действительным. Русские названия грибов («подберёзовик», «волнушка») правилами не регулируются: один вид может иметь несколько народных названий, а одно название — относиться к разным видам. Для точности учёные и врачи пользуются только латинскими.
Один гриб — одно название
После открытия плеоморфизма у многих аскомицетов и части базидиомицетов оказалось по два, а то и по три названия: одно для половой стадии (телеоморфы), другие — для бесполых (анаморф). Кодекс официально разрешал это в статье 59. Пеницилл, дающий плодовые тела, назывался эупенициллием, аспергилл — эмерицеллой или эвроцием, фузарий — гибберелла, триходерма — гипокреей, пирикулярия — магнапорте. Генетики, врачи и фитопатологи часто называли один и тот же гриб по-разному, а сравнение по ДНК уже позволяло связать стадии без всяких плодовых тел.
В апреле 2011 года микологи приняли «Амстердамскую декларацию» с призывом отказаться от двойных названий [36], а в июле того же года Ботанический конгресс в Мельбурне отменил статью 59: с 1 января 2013 года у гриба может быть только одно правильное название. Какое из двух сохранить, решали по приоритету и по удобству: чаще оставляли более известное, даже если оно младше. Так сохранили названия аспергилл, пеницилл, триходерма, ботритис, а пирикулярия победила магнапорте, хотя генетики привыкли ко второму.
| Бесполая стадия (анаморфа) | Половая стадия (телеоморфа) | Принятое название |
|---|---|---|
| Penicillium | Eupenicillium, Talaromyces (часть) | Penicillium, Talaromyces |
| Aspergillus | Emericella, Eurotium, Neosartorya | Aspergillus |
| Trichoderma | Hypocrea | Trichoderma |
| Botrytis | Botryotinia | Botrytis |
| Pyricularia | Magnaporthe | Pyricularia |
| Fusarium | Gibberella, Nectria (часть) | Fusarium, Neocosmospora — спор продолжается |
| Tolypocladium | Elaphocordyceps | Tolypocladium |
Не обошлось без споров. Сохранять ли широкий род аспергилл, если внутри него оказались ветви, которые некоторые систематики хотели выделить в отдельные роды? Победила стабильность: аспергилл остался широким родом, иначе врачам пришлось бы переименовать возбудителей самых известных инфекций. По фузарию спор продолжается: одна группа исследователей выделяет из него род неокосмоспора, куда попадают многие патогены человека, другая настаивает на широком роде.
Почему названия меняются
Изменения названий раздражают врачей, фитопатологов и грибников, но у них есть причины. Первая — новые данные о родстве. Навозник белый остался в роде навозник (Coprinus), а навозник серый и мерцающий, оказавшиеся ближе к другим ветвям, перенесли в роды копринопсис и копринеллус. Возбудитель кандидоза Candida auris, ставший опасной больничной инфекцией, в 2024 году перенесли в новый род Candidozyma: род кандида давно объединял неродственные дрожжи, которых объединяла лишь утрата полового процесса. Микроспоридию пчёл Nosema ceranae перенесли в род вайриморфа.
Вторая причина — правило приоритета: если выясняется, что вид уже был описан раньше под другим названием, правильным становится старое. Третья — ошибки определения: промышленный штамм, давший миру пенициллин, восемьдесят лет называли Penicillium chrysogenum, пока в 2011 году не выяснилось, что это P. rubens [37]. Чтобы не потеряться, специалисты пользуются базами, где для каждого названия указаны синонимы и текущее принятое название. В медицинской микологии смягчают переход: в отчётах лаборатории некоторое время пишут оба названия, новое и прежнее.
Тёмные таксоны: грибы, известные только по ДНК
Когда начали массово читать ДНК из почвы, воды и воздуха, выяснилось, что большая часть последовательностей грибов не совпадает ни с одним описанным видом. Их называют «тёмными таксонами». В 2011 году Анна Рослинг с соавторами описала по последовательностям из почвы целый класс аскомицетов — археоризомицеты, живущие на корнях растений по всему миру; лишь потом удалось вырастить в культуре один вид, Archaeorhizomyces finlayi, и сделать его типом [38]. В том же году Мередит Джонс показала, что последовательности «криптомикот» из озёр и почвы принадлежат огромной группе родственников розеллы — одноклеточных паразитов у самого основания древа грибов [39].
Описать такой вид по правилам Кодекса нельзя: тип должен быть образцом или культурой, а не последовательностью. Часть микологов предлагает разрешить последовательности ДНК в качестве типов, иначе большинство грибов Земли никогда не получит названий [40]; другие опасаются потока названий для ошибочных или химерных последовательностей. Вопрос обсуждали на микологических конгрессах 2018 и 2024 годов, а пока для таких групп пользуются неформальными обозначениями и «гипотезами видов» базы UNITE. Бактериологи в 2022 году пошли дальше и приняли отдельный кодекс, допускающий геном как тип.
Сколько видов грибов на Земле
В 1991 году Дэвид Хоксворт оценил число видов грибов в 1,5 миллиона, исходя из того, что на каждый вид растения в Британии приходится около шести видов грибов. В 2011 году Мередит Блэквелл, опираясь на первые данные массового чтения ДНК из почвы, допустила, что их может быть 5,1 миллиона. В 2017 году Хоксворт и Люкинг, сопоставив разные способы расчёта, дали оценку 2,2–3,8 миллиона видов [41]. Описано около 155 тысяч, то есть не больше 5–7 %, и каждый год добавляется около двух-двух с половиной тысяч новых видов [6].
При таком темпе описание всех грибов заняло бы больше тысячи лет. Положение осложняется тем, что микологов-систематиков мало, а многие виды могут исчезнуть раньше, чем их опишут, — особенно в тропических лесах и горах, которые быстро вырубают и распахивают. Молекулярные методы — единственный способ хотя бы учесть это разнообразие, и потому вопрос о названиях для грибов, известных только по ДНК, становится вопросом о том, сможет ли наука вообще говорить о большинстве грибов Земли.
Частые вопросы
Если два гриба нельзя различить, зачем считать их разными видами? Потому что они разные в том, что важно: в устойчивости к лекарствам, токсинах, хозяевах, ареале. Сходство облика лишь говорит о том, что отбор не менял их внешность, — не о том, что они обмениваются генами.
Можно ли определить вид гриба по фотографии? Для многих крупных и характерных видов — да, опытный миколог определит бледную поганку или мухомор красный. Но для большинства мелких грибов, плесеней и комплексов видов нужны микроскоп, культура или ДНК. Приложения, определяющие гриб по фото, нередко ошибаются, и есть ли гриб по их «определению» нельзя.
Почему вид гриба в разных книгах называется по-разному? Из-за синонимов: старые и новые названия, переносы в другие роды, бывшие двойные названия стадий. Правильное название на сегодня указывают базы Index Fungorum и MycoBank, а также Species Fungorum.
Можно ли назвать новый гриб в свою честь? Нет: по традиции автор не называет вид в свою честь. Но назвать вид в честь другого человека, места, хозяина или признака может любой, кто правильно опубликует описание. Встречаются и шутливые названия: гриб Spongiforma squarepantsii назван в честь Губки Боба — за губчатое плодовое тело.
Дрожжи из пивоварни и хлебные дрожжи — один вид? Пекарские и элевые пивные дрожжи — Saccharomyces cerevisiae, одомашненный многократно. А лагерные дрожжи — гибрид S. cerevisiae и S. eubayanus, который называют S. pastorianus; это пример гибридного «вида», не вписывающегося в простые определения.
Что нужно знать к ЕГЭ
- вид — совокупность особей, сходных по строению, способных скрещиваться и давать плодовитое потомство, занимающих определённый ареал и экологическую нишу; критерии вида: морфологический, физиологический, биохимический, генетический, экологический, географический;
- ни один критерий в отдельности не достаточен: существуют виды-двойники, сходные по строению, но не скрещивающиеся (у грибов — криптические виды);
- генетический (кариотипический) и молекулярный критерии — различия в хромосомах и последовательностях ДНК;
- научное название вида двойное (бинарная номенклатура Линнея): род + видовой эпитет, на латыни, например Amanita phalloides — бледная поганка;
- систематические категории грибов: вид — род — семейство — порядок — класс — отдел — царство;
- к грибам относятся шляпочные грибы, плесени (мукор, пеницилл, аспергилл), дрожжи, паразиты растений (головня, ржавчина, спорынья), лишайники — симбиоз гриба с водорослью или цианобактерией.
Ловушки. «Если особи похожи, они одного вида» — нет, бывают двойники. «Если особи скрещиваются, они точно одного вида» — не всегда: межвидовые гибриды бывают, но они обычно бесплодны. «Лисичка, белый гриб — каждый строго один вид по всему миру» — нет, это комплексы видов. «Русское название гриба — научное» — нет, научное только латинское. «Дрожжи и плесени — не грибы» — грибы. «Лишайник — гриб» — нет, симбиотическая ассоциация; называют же его по грибу.
Для олимпиад
Порядок появления признаков вида. После разделения популяций сначала накапливаются различия в последовательностях (вид распознаётся филогенетически), затем — постзиготическая и презиготическая изоляция (биологический вид), позже всего — морфологические отличия. Поэтому число видов, распознаваемых разными концепциями: филогенетическая ≥ биологическая ≥ морфологическая.
Неполная сортировка линий. У недавно разошедшихся видов деревья отдельных генов могут не совпадать с деревом видов: аллели, существовавшие у предка, случайно сохраняются у потомков. Для гаплоидной популяции численностью N вероятность, что две копии гена не слились в общего предка за t поколений, приблизительно равна e−t/N. Взаимная монофилия по большинству генов наступает через несколько N поколений, поэтому для больших популяций грибов это сотни тысяч и миллионы лет.
Механизм гибридной стерильности у дрожжей. Гибридная стерильность сахаромицетов объясняется работой системы репарации ошибочного спаривания: она препятствует рекомбинации между неидентичными хромосомами, без кроссинговера хромосомы расходятся случайно, и споры получают неполный набор. Мутанты по генам репарации (msh2, pms1) повышают плодовитость гибридов.
Номенклатура. Различайте: тип (якорь названия) и типичный образец; голотип, лектотип, неотип, эпитип; приоритет и сохранение названий; синоним и базионим (исходное название, на котором основана новая комбинация); санкционированные названия Персона и Фриса; правило «один гриб — одно название» с 2013 года; регистрация названий.
Задания с разбором
Задание 1
Назовите три концепции вида, применяемые к грибам, и для каждой укажите главный критерий, одно достоинство и одно ограничение.
Разбор
Морфологическая: устойчивые отличия в строении; работает с любым образцом, в том числе гербарным; у грибов мало признаков, она не видит криптических видов. Биологическая: способность скрещиваться и давать плодовитое потомство; отражает реальный барьер обмена генами; неприменима к бесполым, гомоталличным и некультивируемым грибам. Филогенетическая: обособленность на родословных нескольких генов; применима к любым грибам, даже известным только по ДНК; граница зависит от выборки и метода, возможно «дробление» популяций.
Задание 2
Почему биологическую концепцию вида невозможно применить к большинству видов пеницилла и аспергилла? Каким способом определяют вид у таких грибов?
Разбор
Многие виды известны только в бесполой стадии: половой процесс не наблюдался или происходит редко, проверить скрещиваемость нельзя; часть видов гомоталлична. Вид определяют филогенетически — по согласию родословных нескольких генов (β-тубулин, кальмодулин, RPB2, ITS), с учётом морфологии колоний, спор, физиологии (рост при разных температурах) и состава вторичных метаболитов.
Задание 3
По гену 1 штаммы из Европы и Азии образуют две обособленные ветви. По генам 2 и 3 штаммы перемешаны: европейские и азиатские штаммы чередуются на дереве. Можно ли считать европейскую и азиатскую группы разными видами по методу GCPSR? Как объяснить результат гена 1?
Разбор
Нет: по методу согласия генных родословных группа должна быть обособлена на большинстве деревьев и не противоречить остальным; здесь два гена из трёх группу не поддерживают. Обособленность по гену 1 может объясняться отбором на этом гене (например, приспособлением к местному климату или хозяину), случайной сортировкой аллелей или недавним началом расхождения при продолжающемся обмене генами. Нужны дополнительные гены или геномы.
Задание 4
ITS двух изолятов длиной 600 пар нуклеотидов различаются в трёх позициях. Каков процент сходства? Как его следует толковать, если изоляты — плесени (порог около 99,6 %) и если дрожжи (порог около 98,4 %)? Почему порог нельзя считать окончательным доказательством?
Разбор
Сходство: (600 − 3) / 600 = 0,995 = 99,5 %. Для плесеней это ниже порога 99,6 % — изоляты, вероятно, относятся к разным видам; для дрожжей выше 98,4 % — вероятно, к одному. Порог — статистическая оценка: в одних родах разные виды имеют одинаковый ITS (аспергиллы, фузарии), в других копии ITS различаются даже внутри генома. Окончательный вывод требует вторичных штрихкодов, сравнения с типовыми штаммами, морфологии и экологии.
Задание 5
Что такое криптические и псевдокриптические виды? В 2014 году лишайник, считавшийся одним видом, разделили не меньше чем на 126 видов, а модель предсказала около 450. Какую долю предсказанного числа составляли найденные виды? Почему у грибов так много криптических видов?
Разбор
Криптические — генетически обособленные виды, неразличимые по строению; псевдокриптические — различимые, если знать, на что смотреть (отличия обнаружили после молекулярного разделения). Доля: 126 / 450 = 0,28 — около 28 %. Причины: у грибов мало морфологических признаков, они пластичны и зависят от условий; сходные формы возникают конвергентно; линии могут долго расходиться в одинаковых условиях без изменения облика.
Задание 6
Почему врачу важно отличить Aspergillus lentulus от A. fumigatus, хотя колонии почти одинаковы? Какими методами это делают?
Разбор
A. lentulus значительно менее чувствителен к амфотерицину B, вориконазолу и каспофунгину; лечение, стандартное для аспергилла дымящего, может не подействовать. Различают по последовательностям β-тубулина и кальмодулина (ITS почти одинаков), масс-спектрометрией белков (MALDI-TOF) с правильной базой, по росту при 48–50 °C (аспергилл дымящий растёт, двойник — нет) и по определению чувствительности к препаратам.
Задание 7
Лагерные дрожжи — гибрид двух видов сахаромицетов. Где и когда был найден второй родитель? Какие трудности создают гибридные виды для систематики?
Разбор
Второй родитель, Saccharomyces eubayanus, найден в 2011 году в Патагонии на галлах южных буков; первый — S. cerevisiae. Гибрид несёт два генома, и по разным генам он оказывается на разных ветвях дерева; он не вписывается ни в биологическую концепцию (почти бесплоден в мейозе, размножается почкованием), ни в простую филогенетическую. Его называют S. pastorianus, понимая, что это гибридная линия, а не обычный вид.
Задание 8
Расшифруйте запись Amanita phalloides (Vaill. ex Fr.) Link. Что пишется с заглавной буквы, что курсивом, что означают скобки?
Разбор
Amanita — род (с заглавной буквы), phalloides — видовой эпитет (со строчной), оба курсивом. Vaill. ex Fr. — вид упоминал Вайян, а действительно обнародовал Фрис («ex» — «из», то есть Фрис использовал название Вайяна). Скобки означают, что Фрис описал вид в другом роде, а Линк перенёс его в род Amanita; Link — автор новой комбинации.
Задание 9
Что такое типовой образец? Зачем при старом голотипе назначают эпитип? Почему хранить культуру как тип можно только в метаболически неактивном состоянии?
Разбор
Тип — образец, к которому навсегда привязано название; при сомнениях, к какому виду относится название, сравнивают с типом. Эпитип назначают, если голотип не позволяет определить вид однозначно: старый образец разрушен, из него нельзя выделить ДНК или в нём не видно нужных признаков. Живая растущая культура меняется: накапливает мутации, теряет способность к спороношению или к синтезу веществ, может быть загрязнена; тип же должен оставаться неизменным, поэтому культуру хранят замороженной или лиофилизированной.
Задание 10
Почему у многих грибов было два названия? Какое решение приняли в 2011 году и по какому принципу выбирали одно из названий? Приведите два примера.
Разбор
Половая и бесполая стадии (телеоморфа и анаморфа) выглядят совершенно по-разному и часто встречаются отдельно, поэтому их описывали как разные виды и роды; Кодекс (статья 59) разрешал два названия. Мельбурнский конгресс в 2011 году отменил статью 59, с 2013 года у гриба одно название. Выбирали по приоритету и удобству, сохраняя чаще более известное: Trichoderma вместо Hypocrea, Aspergillus вместо Emericella и Eurotium, Pyricularia вместо Magnaporthe, Botrytis вместо Botryotinia.
Задание 11
Назовите три причины, по которым меняются научные названия грибов, и приведите по примеру.
Разбор
Новые данные о родстве: Candida auris → Candidozyma auris (2024), навозник серый перенесён в род копринопсис. Приоритет: если вид раньше описан под другим названием, правильно старое. Ошибка определения: промышленный продуцент пенициллина — Penicillium rubens, а не P. chrysogenum (2011). Отмена двойной номенклатуры: Magnaporthe oryzae → Pyricularia oryzae. Отделение вида: возбудитель пневмонии человека — Pneumocystis jirovecii, а не крысиный P. carinii.
Задание 12
Что такое «тёмные таксоны»? Почему их нельзя описать по действующим правилам? Как удалось описать класс археоризомицеты?
Разбор
Тёмные таксоны — группы грибов, известные только по последовательностям ДНК из окружающей среды, без образцов и культур. По Кодексу тип названия — образец или культура, а не последовательность, поэтому их нельзя формально назвать. Археоризомицеты впервые обнаружили по последовательностям из почвы и корней; затем вырастили культуру Archaeorhizomyces finlayi, которая стала типом, и описали класс (Рослинг и соавторы, 2011).
Задание 13
Описано около 155 тысяч видов грибов, всего их, по средней оценке, около 2,5 миллиона. Сколько лет понадобится, чтобы описать все виды при темпе 2000 видов в год? Какой процент видов уже описан? Предложите два способа ускорить работу.
Разбор
Осталось 2 500 000 − 155 000 = 2 345 000 видов; 2 345 000 / 2000 ≈ 1172 года — больше тысячи лет. Описано 155 000 / 2 500 000 = 6,2 %. Ускорить: массовое чтение ДНК образцов фунгариев и почвы с автоматическим разграничением «гипотез видов»; разрешить описание по последовательностям или геномам; подготовка большего числа систематиков; описание видов сериями в монографиях; использование типов-культур и эпитипов с ДНК.
Задание 14
Чем специальная форма и физиологическая раса отличаются от вида? Приведите примеры у фузария и стеблевой ржавчины.
Разбор
Специальная форма (f. sp.) — группа штаммов вида, поражающих определённое растение-хозяина; это неформальная категория, её названия не регулируются Кодексом, а сами формы могут быть неродственными. Fusarium oxysporum f. sp. cubense поражает бананы (тропическая раса 4 угрожает сорту кавендиш), f. sp. lycopersici — томаты. Физиологическая раса различается набором генов вирулентности против сортов одного хозяина: раса Ug99 стеблевой ржавчины преодолевает ген устойчивости Sr31. Расы и формы могут возникать быстро, без репродуктивной изоляции, а вид — обособленная линия.
Задание 15 (олимпиадное)
Гибрид двух видов дрожжей даёт лишь 1 % жизнеспособных спор. Допустим, гибрид имеет 16 пар хромосом, и спора жизнеспособна, только если каждая пара разошлась правильно; пары расходятся независимо с одинаковой вероятностью p. Найдите p. Мутация в гене репарации ошибочного спаривания повысила выход жизнеспособных спор до 10 %. Какова теперь p? Объясните, почему репарация снижает плодовитость гибрида.
Разбор
p16 = 0,01, p = 0,011/16 ≈ 0,750. При 10 %: p = 0,11/16 ≈ 0,866. Для правильного расхождения гомологичные хромосомы должны конъюгировать и обменяться участками (кроссинговер удерживает их вместе до анафазы I). Хромосомы разных видов различаются на 10–15 % нуклеотидов; система репарации распознаёт ошибочно спаренные основания в гетеродуплексе и отменяет рекомбинацию. Без кроссинговера пары расходятся случайно. Выключение репарации позволяет рекомбинацию между «похожими, но не одинаковыми» хромосомами, и доля правильно разошедшихся пар растёт.
Задание 16 (олимпиадное)
Вероятность того, что две копии гена в гаплоидной популяции численностью N не слились в общего предка за t поколений, приблизительно равна e−t/N. Две популяции гриба разделились t поколений назад; N = 105. Найдите вероятность, что две копии гена из одной популяции ещё «помнят» время до разделения (не слились), при t = 105 и t = 3·105. Почему у недавно разошедшихся видов деревья разных генов не совпадают и почему метод GCPSR требует несколько генов?
Разбор
При t = 105: e−1 ≈ 0,37. При t = 3·105: e−3 ≈ 0,05. Пока значительная доля линий не слилась внутри каждой популяции, аллели предка остаются в обеих популяциях, и дерево отдельного гена может группировать особи разных видов вместе (неполная сортировка линий). Для разных генов это происходит случайно и по-разному, поэтому один ген может дать ложную картину; согласие нескольких генов указывает на реальную границу, а у больших популяций грибов на полную сортировку уходят сотни тысяч поколений.
Литература
- Ainsworth G. C. Introduction to the History of Mycology. Cambridge: Cambridge University Press, 1976.
- Anderson J. B., Ullrich R. C. Biological species of Armillaria mellea in North America // Mycologia. 1979. Vol. 71. P. 402–414.
- White T. J., Bruns T., Lee S., Taylor J. Amplification and direct sequencing of fungal ribosomal RNA genes for phylogenetics // PCR Protocols: A Guide to Methods and Applications / ed. M. A. Innis et al. San Diego: Academic Press, 1990. P. 315–322.
- Taylor J. W., Jacobson D. J., Kroken S. et al. Phylogenetic species recognition and species concepts in fungi // Fungal Genetics and Biology. 2000. Vol. 31. P. 21–32.
- Schoch C. L., Seifert K. A., Huhndorf S. et al. Nuclear ribosomal internal transcribed spacer (ITS) region as a universal DNA barcode marker for Fungi // Proceedings of the National Academy of Sciences USA. 2012. Vol. 109. P. 6241–6246.
- Antonelli A., Fry C., Smith R. J. et al. State of the World’s Plants and Fungi 2023. Kew: Royal Botanic Gardens, 2023.
- Lücking R., Dal-Forno M., Sikaroodi M. et al. A single macrolichen constitutes hundreds of unrecognized species // Proceedings of the National Academy of Sciences USA. 2014. Vol. 111. P. 11091–11096.
- Белякова Г. А., Дьяков Ю. Т., Тарасов К. Л. Ботаника. Т. 1. Водоросли и грибы. М.: Академия, 2006.
- Hunter N., Chambers S. R., Louis E. J., Borts R. H. The mismatch repair system contributes to meiotic sterility in an interspecific yeast hybrid // The EMBO Journal. 1996. Vol. 15. P. 1726–1733.
- Araújo J. P. M., Evans H. C., Kepler R., Hughes D. P. Zombie-ant fungi across continents: 15 new species and new combinations within Ophiocordyceps. I. Myrmecophilous hirsutelloid species // Studies in Mycology. 2018. Vol. 90. P. 119–160.
- Libkind D., Hittinger C. T., Valério E. et al. Microbe domestication and the identification of the wild genetic stock of lager-brewing yeast // Proceedings of the National Academy of Sciences USA. 2011. Vol. 108. P. 14539–14544.
- Dettman J. R., Jacobson D. J., Taylor J. W. A multilocus genealogical approach to phylogenetic species recognition in the model eukaryote Neurospora // Evolution. 2003. Vol. 57. P. 2703–2720.
- O’Donnell K., Ward T. J., Geiser D. M., Kistler H. C., Aoki T. Genealogical concordance between the mating type locus and seven other nuclear genes supports formal recognition of nine phylogenetically distinct species within the Fusarium graminearum clade // Fungal Genetics and Biology. 2004. Vol. 41. P. 600–623.
- Vu D., Groenewald M., Szöke S. et al. DNA barcoding analysis of more than 9 000 yeast isolates contributes to quantitative thresholds for yeast species and genera delimitation // Studies in Mycology. 2016. Vol. 85. P. 91–105.
- Vu D., Groenewald M., de Vries M. et al. Large-scale generation and analysis of filamentous fungal DNA barcodes boosts coverage for kingdom fungi and reveals thresholds for fungal species and higher taxon delimitation // Studies in Mycology. 2019. Vol. 92. P. 135–154.
- Stielow J. B., Lévesque C. A., Seifert K. A. et al. One fungus, which genes? Development and assessment of universal primers for potential secondary fungal DNA barcodes // Persoonia. 2015. Vol. 35. P. 242–263.
- Nilsson R. H., Ryberg M., Kristiansson E. et al. Taxonomic reliability of DNA sequences in public sequence databases: a fungal perspective // PLoS ONE. 2006. Vol. 1. e59.
- Kõljalg U., Nilsson R. H., Abarenkov K. et al. Towards a unified paradigm for sequence-based identification of fungi // Molecular Ecology. 2013. Vol. 22. P. 5271–5277.
- Matute D. R., Sepúlveda V. E. Fungal species boundaries in the genomics era // Fungal Genetics and Biology. 2019. Vol. 131. 103249.
- Sepúlveda V. E., Márquez R., Turissini D. A., Goldman W. E., Matute D. R. Genome sequences reveal cryptic speciation in the human pathogen Histoplasma capsulatum // mBio. 2017. Vol. 8. e01339-17.
- Libkind D., Čadež N., Opulente D. A. et al. Towards yeast taxogenomics: lessons from novel species descriptions based on complete genome sequences // FEMS Yeast Research. 2020. Vol. 20. foaa042.
- Giraud T., Refrégier G., Le Gac M., de Vienne D. M., Hood M. E. Speciation in fungi // Fungal Genetics and Biology. 2008. Vol. 45. P. 791–802.
- Balajee S. A., Gribskov J. L., Hanley E., Nickle D., Marr K. A. Aspergillus lentulus sp. nov., a new sibling species of A. fumigatus // Eukaryotic Cell. 2005. Vol. 4. P. 625–632.
- Hagen F., Khayhan K., Theelen B. et al. Recognition of seven species in the Cryptococcus gattii/Cryptococcus neoformans species complex // Fungal Genetics and Biology. 2015. Vol. 78. P. 16–48.
- Kwon-Chung K. J., Bennett J. E., Wickes B. L. et al. The case for adopting the “species complex” nomenclature for the etiologic agents of cryptococcosis // mSphere. 2017. Vol. 2. e00357-16.
- Fisher M. C., Koenig G. L., White T. J., Taylor J. W. Molecular and phenotypic description of Coccidioides posadasii sp. nov., previously recognized as the non-California population of Coccidioides immitis // Mycologia. 2002. Vol. 94. P. 73–84.
- Tavanti A., Davidson A. D., Gow N. A. R., Maiden M. C. J., Odds F. C. Candida orthopsilosis and Candida metapsilosis spp. nov. to replace Candida parapsilosis groups II and III // Journal of Clinical Microbiology. 2005. Vol. 43. P. 284–292.
- Marimon R., Cano J., Gené J. et al. Sporothrix brasiliensis, S. globosa, and S. mexicana, three new Sporothrix species of clinical interest // Journal of Clinical Microbiology. 2007. Vol. 45. P. 3198–3206.
- Martel A., Spitzen-van der Sluijs A., Blooi M. et al. Batrachochytrium salamandrivorans sp. nov. causes lethal chytridiomycosis in amphibians // Proceedings of the National Academy of Sciences USA. 2013. Vol. 110. P. 15325–15329.
- Islam M. T., Croll D., Gladieux P. et al. Emergence of wheat blast in Bangladesh was caused by a South American lineage of Magnaporthe oryzae // BMC Biology. 2016. Vol. 14. 84.
- Geml J., Laursen G. A., O’Neill K., Nusbaum H. C., Taylor D. L. Beringian origins and cryptic speciation events in the fly agaric (Amanita muscaria) // Molecular Ecology. 2006. Vol. 15. P. 225–239.
- O’Donnell K., Rooney A. P., Mills G. L. et al. Phylogeny and historical biogeography of true morels (Morchella) reveals an early Cretaceous origin and high continental endemism and provincialism in the Holarctic // Fungal Genetics and Biology. 2011. Vol. 48. P. 252–265.
- Spribille T., Tuovinen V., Resl P. et al. Basidiomycete yeasts in the cortex of ascomycete macrolichens // Science. 2016. Vol. 353. P. 488–492.
- Turland N. J., Wiersema J. H., Barrie F. R. et al. (eds.) International Code of Nomenclature for algae, fungi, and plants (Shenzhen Code) // Regnum Vegetabile. Vol. 159. Glashütten: Koeltz Botanical Books, 2018.
- Crous P. W., Gams W., Stalpers J. A., Robert V., Stegehuis G. MycoBank: an online initiative to launch mycology into the 21st century // Studies in Mycology. 2004. Vol. 50. P. 19–22.
- Hawksworth D. L., Crous P. W., Redhead S. A. et al. The Amsterdam declaration on fungal nomenclature // IMA Fungus. 2011. Vol. 2. P. 105–112.
- Houbraken J., Frisvad J. C., Samson R. A. Fleming’s penicillin producing strain is not Penicillium chrysogenum but P. rubens // IMA Fungus. 2011. Vol. 2. P. 87–95.
- Rosling A., Cox F., Cruz-Martinez K. et al. Archaeorhizomycetes: unearthing an ancient class of ubiquitous soil fungi // Science. 2011. Vol. 333. P. 876–879.
- Jones M. D. M., Forn I., Gadelha C. et al. Discovery of novel intermediate forms redefines the fungal tree of life // Nature. 2011. Vol. 474. P. 200–203.
- Lücking R., Aime M. C., Robbertse B. et al. Fungal taxonomy and sequence-based nomenclature // Nature Microbiology. 2021. Vol. 6. P. 540–548.
- Hawksworth D. L., Lücking R. Fungal diversity revisited: 2.2 to 3.8 million species // Microbiology Spectrum. 2017. Vol. 5, no. 4. FUNK-0052-2016.
Обсуждение
Загружаем обсуждение…