
У шляпочного гриба шизофиллум, растущего на мёртвой древесине по всему миру, больше двадцати тысяч «полов». У пекарских дрожжей — два, но клетка умеет менять свой пол раз в поколение, вырезая один ген и вставляя другой. У мукора, чёрной плесени на хлебе, полов тоже два, и называются они «плюс» и «минус», потому что ничем не отличаются. А у пресноводного гриба моноблефариса есть настоящие яйцеклетки и настоящие сперматозоиды. Половой процесс грибов — одна из самых странных глав биологии: клетки сливаются, но ядра — нет; два генома живут в одной клетке годами, прежде чем объединиться; единственная диплоидная клетка в жизни гриба существует считаные часы, а потом сразу делится мейозом. При этом грибы, которых сто лет считали бесполыми, одни за другими оказываются способными к половому процессу — просто никто не знал, как их уговорить.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О бесполом размножении — в статье «Бесполое размножение грибов», о строении клетки — в статье «Строение грибной клетки», о сумчатых и базидиальных грибах — в статьях «Аскомицеты» и «Базидиомицеты», о смене ядерных фаз — в статье «Жизненные циклы грибов».
- Как изучали пол у грибов
- Зачем грибам половой процесс
- Три этапа и разрыв между ними
- Совместимость: типы спаривания вместо полов
- Дрожжи: два типа и смена пола
- Нейроспора и идиоморфы
- Тетраполярные грибы: полы тысячами
- Феромоны: как партнёры находят друг друга
- Плазмогамия: пять способов слить клетки
- Дикарион: крючок и пряжка
- Кариогамия и мейоз
- В сумке: от зиготы до восьми спор
- На базидии: четыре споры и выстрел
- Зигоспора мукоровых
- Половой процесс зооспоровых грибов
- Жизненные циклы грибов
- Ржавчина: пять спор и два хозяина
- Скрытый пол «бесполых» грибов
- Что мейоз грибов дал генетике
- Эгоистичные гены в мейозе
- Половой процесс на службе человека
- Частые вопросы
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали пол у грибов
Сумки со спорами видели ещё в XVIII веке, но что это итог полового процесса, понял Антон де Бари в 1860-х годах: он описал у сумчатых грибов половые органы — женский аскогон и мужской антеридий — и проследил, как после их контакта образуются сумки [1, 2]. Казалось, у грибов всё как у растений: есть мужское и женское. Эту картину разрушил в 1904 году американец Альберт Блейксли. Работая с мукоровыми плесенями, он заметил, что одни культуры никогда не образуют зигоспор, сколько бы их ни держали, а в паре с некоторыми другими — образуют. Внешне партнёры были неотличимы, и Блейксли, отказавшись от слов «самец» и «самка», назвал их «плюс» и «минус». Так было открыто явление гетероталлизма: половой процесс возможен только между мицелиями разных, но внешне одинаковых типов [3].
- 1729П. А. Микели зарисовывает сумки со спорами, не зная, что это половое спороношение
- 1866А. де Бари: сумки и базидии — итог слияния ядер; описаны половые органы сумчатых грибов
- 1904А. Блейксли: у мукора есть «плюс» и «минус» — штаммы, неотличимые внешне, но дающие зигоспоры только вместе
- 1920Г. Книп: у шизофиллума четыре группы совместимости — тетраполярная гетероталлия
- 1931А. Буллер: дикариотический мицелий «заражает» ядрами одноядерный — феномен Буллера
- 1949К. Линдегрен: тетрадный анализ дрожжей — генетика по четырём спорам одной сумки
- 1968Сиренин — первый выделенный половой феромон гриба (алломицес); 1969 — триспоровые кислоты мукоровых
- 1977Дж. Хикс, Дж. Стратерн, А. Херсковиц: кассетная модель смены типа спаривания у дрожжей
- 1987Э. Селкер: RIP — нейроспора засыпает мутациями любые повторы ДНК перед мейозом
- 1990Идиоморфы: локусы типов спаривания нейроспоры — не аллели, а разные гены на одном месте
- 1992У. Кюс и Л. Кэсселтон: локус B базидиомицетов кодирует феромоны и их рецепторы
- 2000Кандида, «бесполые» дрожжи, спаривается в теле мыши; 2003 — парасексуальный цикл замкнут
- 2005Криптококк размножается половым путём с партнёром того же типа спаривания
- 2009Половой цикл найден у возбудителя аспергиллёза спустя 145 лет после описания вида
- 2013Половой цикл запущен у промышленного пеницилла — скрещивания в селекции штаммов
- строение
- цитология
- генетика
- молекулы и геномы
В 1920 году Ганс Книп обнаружил у шляпочного гриба шизофиллума не два, а четыре класса совместимости, каждый из которых скрещивался только с одним другим, — тетраполярную гетероталлию [4]. Артур Буллер в 1931 году описал, как дикариотический мицелий «оплодотворяет» одноядерный, передавая ему ядра, — феномен Буллера [5]. Джон Рейпер в 1950–1960-х годах подсчитал, что у шизофиллума типов спаривания больше двадцати тысяч, и написал первую книгу по генетике пола у грибов [6]. Карл Линдегрен в 1940-х научился вскрывать сумки дрожжей и высевать четыре споры порознь — тетрадный анализ сделал дрожжи генетическим объектом [7].
Молекулярная эра началась с феромонов — сиренина алломицеса (1968) и триспоровых кислот мукоровых (1969) — и с кассетной модели смены типа спаривания у дрожжей (1977), объяснившей, как клетка переключает пол. В 1990-х годах прочитали локусы типов спаривания нейроспоры и базидиомицетов, а в 2000–2010-х грибы, считавшиеся бесполыми, — кандида, криптококк, возбудитель аспергиллёза, промышленный пеницилл — один за другим оказались способными к половому процессу [8, 9, 10, 11, 12].
Зачем грибам половой процесс
Бесполое размножение быстрее и дешевле, и у грибов оно даёт основную массу спор. Зачем тогда половой процесс? Ответ тот же, что для всех эукариот: рекомбинация. Мейоз перетасовывает гены двух родителей, и среди потомков появляются сочетания, которых не было ни у одного из них, — в том числе лишённые вредных мутаций, которые у клона накапливаются необратимо («храповик Мёллера»), и устойчивые к новым паразитам и ядам. Половой процесс у грибов, кроме того, почти всегда связан с переживанием: мейоспоры — аскоспоры, зигоспоры, телиоспоры — толстостенные, устойчивые к холоду и сухости, и образуются при истощении субстрата. Гриб размножается бесполым путём, пока хорошо, и переходит к половому, когда становится плохо [13, 14].
Цена полового процесса тоже есть: нужен партнёр, нужно время (у аспергилла — полгода на созревание плодовых тел), а гены удачного генотипа «разбавляются» чужими. Поэтому многие грибы держат половой процесс как редкий резерв: кандида, аспергилл, пеницилл десятилетиями считались бесполыми, потому что в лаборатории скрещивались раз в сто лет. Оценки по геномам показывают, что даже у них рекомбинация идёт — редко, но достаточно, чтобы популяция не была набором клонов [15, 16].
Три этапа и разрыв между ними
Половой процесс любого эукариота — это слияние двух клеток, слияние их ядер и мейоз. У животных первые два события происходят в одном акте оплодотворения, а мейоз отнесён в образование гамет. Грибы разделили все три.
Плазмогамия — слияние цитоплазм двух клеток; их ядра оказываются рядом, но не сливаются. Кариогамия — слияние ядер, дающее единственную диплоидную клетку. Мейоз следует за кариогамией почти сразу и возвращает гаплоидность. Между плазмогамией и кариогамией у аскомицетов и базидиомицетов лежит дикарион — клетки с двумя разными ядрами, делящимися синхронно; у базидиомицетов это целый мицелий, живущий годами и образующий плодовые тела, у аскомицетов — короткие аскогенные гифы внутри плодового тела. Дикарион — изобретение грибов: ни у растений, ни у животных ничего подобного нет [17, 18].
Зачем откладывать кариогамию? По-видимому, это способ совместить выгоды обоих состояний. Дикарион генетически почти диплоид: у него два набора генов, и вредная мутация в одном прикрыта исправным геном в другом. Но ядра не слиты, и гриб в любой момент может «разобрать» дикарион обратно на составляющие, а при кариогамии и мейозе — рекомбинировать именно те два ядра, которые успешно вместе прожили. Кроме того, двуядерный мицелий базидиомицетов обменивается ядрами с одноядерными (феномен Буллера): встретив гаплоидный мицелий совместимого типа, дикарион отдаёт ему одно из своих ядер, и тот тоже становится дикарионом — «заражение» полом без слияния целых мицелиев [5, 6].
Совместимость: типы спаривания вместо полов
У грибов нет самцов и самок. Есть типы спаривания — генетически заданная совместимость: слиться и дать потомство могут клетки, различающиеся по локусу (или локусам) типа спаривания. Партнёры при этом морфологически одинаковы, гамет разного размера, как правило, нет, и ни один из них не «мать» и не «отец». Исключения — грибы с половыми органами, где один партнёр отдаёт ядра, а другой принимает, но и там любой мицелий может быть и донором, и реципиентом: нейроспора типа A оплодотворяет нейроспору типа a своими микроконидиями и сама принимает её микроконидии [9, 19].
- Один мицелийскрещивается сам с собой
- Как устроенооба типа спаривания в одном геноме или переключение типа (дрожжи)
- Примерыпекарские дрожжи с геном HO, сордария, шампиньон (вторично)
- Два типа спариванияодин локус, два идиоморфа
- Совместимы50 % случайных пар; братья-сёстры — тоже 50 %
- Примерынейроспора (A/a), мукор (+/−), криптококк, головня
- Два локуса, множество аллелейA — гомеодоменные белки, B — феромоны и рецепторы
- Совместимыпочти все чужие (до 98 %), но лишь 25 % братьев-сестёр
- Примерышизофиллум (более 20 000 типов), навозник, вёшенка
Систем совместимости три. При гомоталлизме мицелий, выросший из одной споры, способен к половому процессу сам с собой: либо в его геноме есть оба типа спаривания (как у сордарии и некоторых аспергиллов), либо клетки умеют переключать тип (как у дрожжей). При биполярной гетероталлии тип задаёт один локус с двумя вариантами, и совместима половина случайных пар — нейроспора, мукор, криптококк, головнёвые грибы. При тетраполярной гетероталлии локусов два, и каждый в популяции представлен десятками аллелей: совместимы почти все чужие пары, но лишь четверть «родных» — спор из одного плодового тела. Так гриб одновременно запрещает самооплодотворение и почти никогда не остаётся без партнёра [6, 20].
Термины «гомо-» и «гетероталлизм» ввёл Блейксли, и важно не путать их с самоопылением и перекрёстным опылением растений: гомоталлический гриб может и скрещиваться с другими, а гетероталлический — не может только сам с собой. Есть и вторичный гомоталлизм: у шампиньона двуспоровая базидия даёт споры с двумя ядрами разных типов, так что каждая спора прорастает сразу в плодоносящий дикарион, а у нейроспоры тетраспермы сумка с четырьмя двуядерными спорами устроена так же. Вторичный гомоталлизм удобен для гриба, которому некого искать, — например, для культивируемого шампиньона, предки которого жили на навозе лошадей в редких кучах [21, 17].
Дрожжи: два типа и смена пола
У пекарских дрожжей два типа спаривания — a и α, и определяет их локус MAT, несущий либо гены a, либо гены α. Гаплоидная клетка a выделяет пептидный феромон a-фактор и несёт рецептор к α-фактору; клетка α — наоборот. Почуяв партнёра, клетки останавливают цикл, вытягиваются навстречу друг другу (в «шму»), сливаются, ядра сливаются тут же — и получается диплоидная клетка a/α, которая у дрожжей, в отличие от большинства грибов, не торопится в мейоз, а почкуется как диплоид, пока хватает питания. Диплоидные дрожжи — норма: пекарские и пивные штаммы диплоидны или полиплоидны. Лишь при голодании по азоту диплоид проходит мейоз и образует сумку с четырьмя аскоспорами — две a и две α [22].
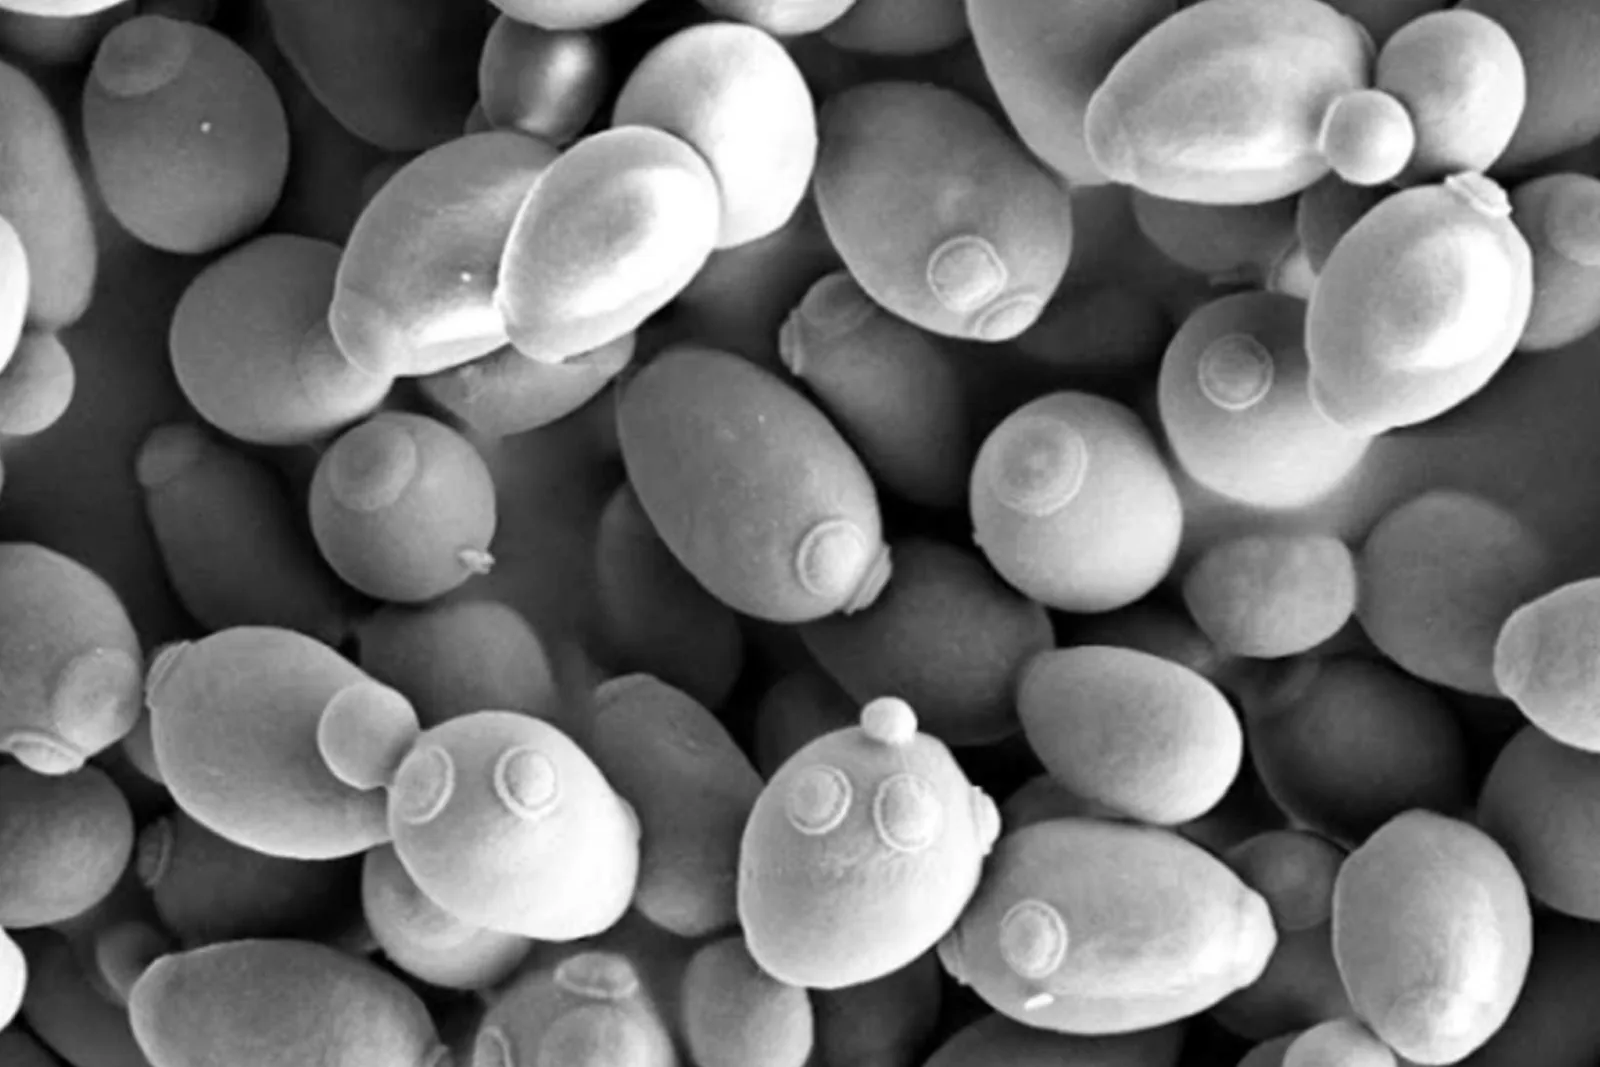
Самое удивительное у дрожжей — смена типа спаривания. Дикие штаммы гомоталличны: колония, выросшая из одной споры a, через несколько поколений содержит и клетки α, которые спариваются с соседями. Как клетка меняет пол, объяснила в 1977 году кассетная модель Хикса, Стратерна и Херсковица: кроме «играющего» локуса MAT, в геноме есть две «молчащие» копии — кассеты HMLα и HMRa, упакованные в неактивный хроматин. Фермент HO-эндонуклеаза разрезает ДНК в локусе MAT, и клетка чинит разрыв, копируя туда содержимое противоположной кассеты: a заменяется на α или наоборот [8, 22]. Переключение подчинено правилам: оно происходит только в материнской клетке, а не в только что отпочковавшейся дочери (белок Ash1 в дочери подавляет HO), и только в начале цикла; в результате после двух делений из одной клетки получается пара клеток a и пара α, стоящих рядом, — и они спариваются. Лабораторные штаммы несут мутацию ho и пол не меняют, иначе гаплоидные линии невозможно было бы поддерживать.
Кассеты и хроматин. Почему молчащие кассеты не работают, хотя несут те же гены? Их заглушают белки Sir, которые «застёгивают» хроматин на этих участках; та же система глушит теломеры и регулирует старение дрожжей. Изучая, почему HML и HMR молчат, генетики открыли один из главных механизмов эпигенетики — гетерохроматин, собираемый белками-сиртуинами, — и те же белки потом нашли у человека.
Нейроспора и идиоморфы
У нейроспоры и большинства плесневых аскомицетов типа спаривания тоже два — A и a (у аспергиллов и пенициллов — MAT1-1 и MAT1-2). Когда в 1990 году локусы прочитали, оказалось, что они не аллели одного гена: участки ДНК в локусе A и в локусе a не имеют между собой ничего общего — разные гены, разной длины, кодирующие разные транскрипционные факторы, просто занимающие одно место на хромосоме. Роберт Метценберг и Луиза Гласс назвали их идиоморфами [9]. Белки идиоморфов — регуляторы: они включают гены феромонов, рецепторов и половых структур и одновременно запрещают мицелиям разных типов сливаться вегетативно (у нейроспоры такие гетерокарионы гибнут) — чтобы ядра встречались только в половом процессе.
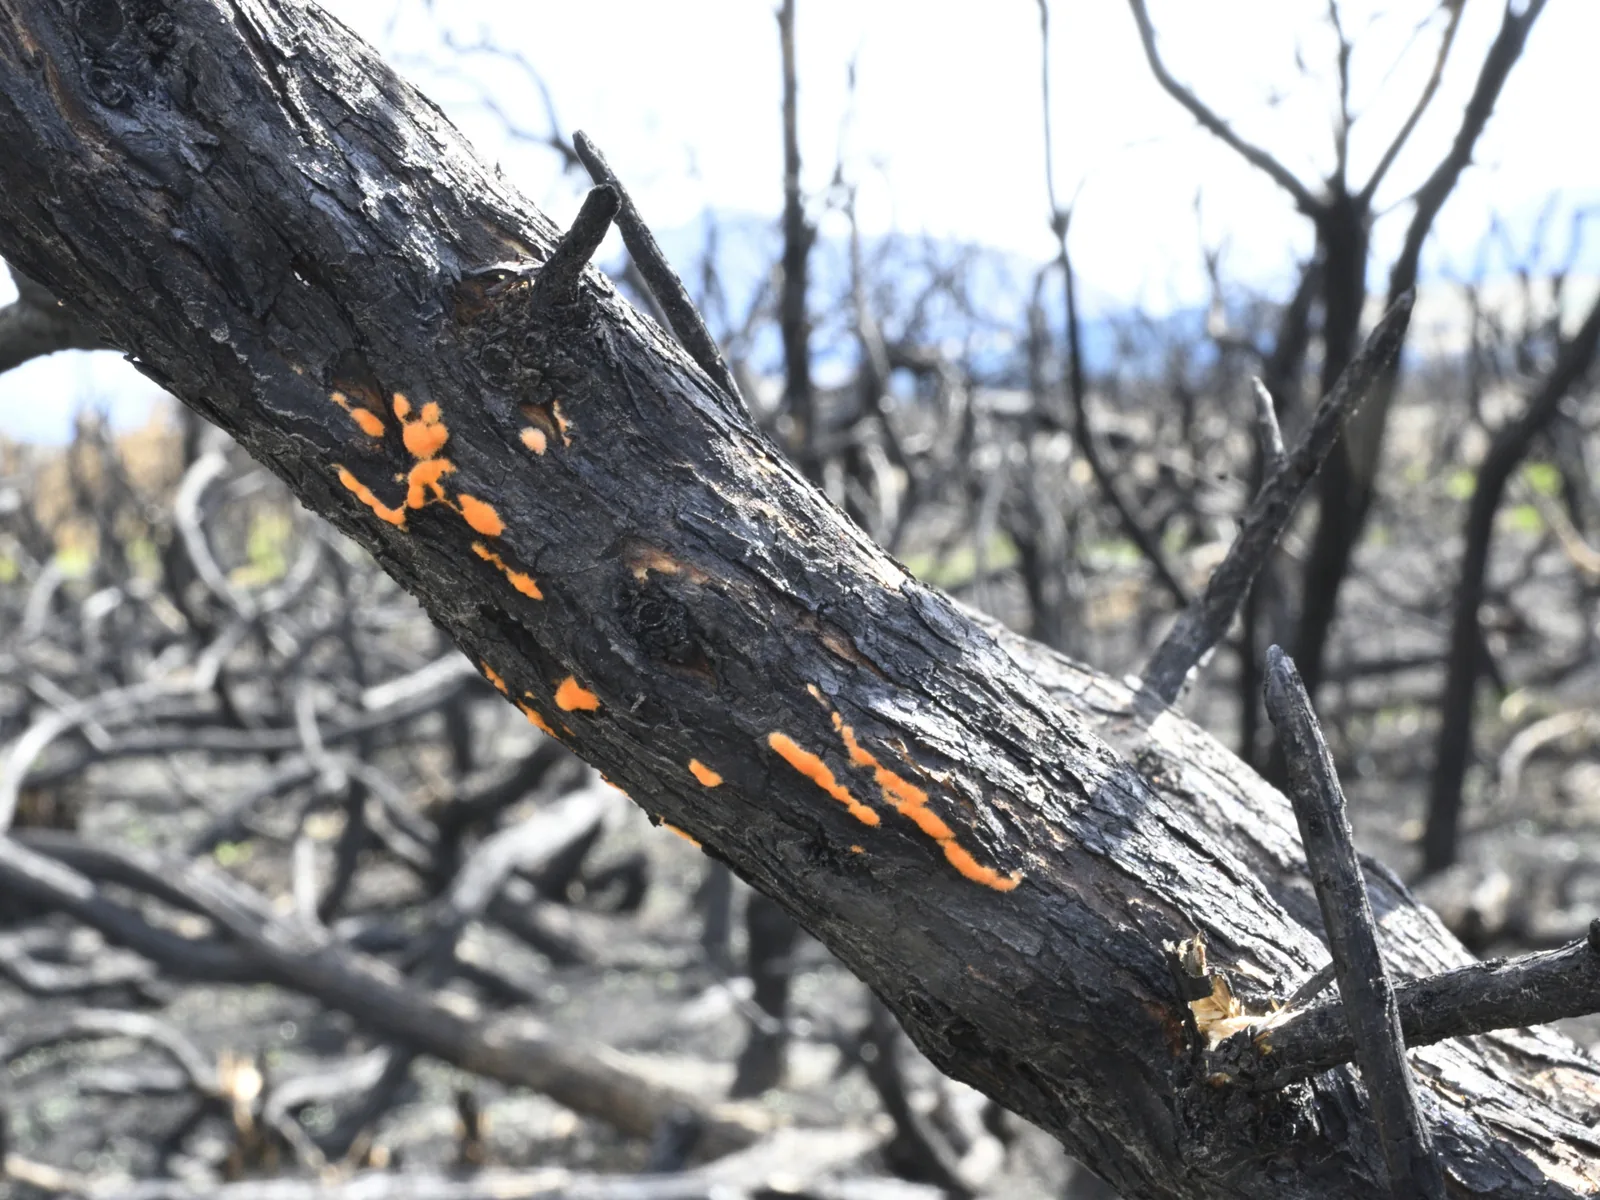
Половой процесс нейроспоры выглядит так. При недостатке азота мицелий любого типа образует зачатки плодовых тел — протоперитеции с аскогоном, из которого торчит длинная воспринимающая гифа, трихогина. Трихогина растёт по градиенту феромона к микроконидии или гифе противоположного типа, сливается с ней и втягивает ядро в аскогон. Там ядра двух типов делятся и расходятся по аскогенным гифам с крючками, в каждом крючке происходит кариогамия, мейоз и один митоз — и созревает сумка с восемью аскоспорами, лежащими в ряд в том порядке, в каком разошлись хромосомы. Перитеций выстреливает споры на десятки сантиметров; прорастают они только после прогрева до 60 °C — нейроспора заселяет гари, и её оранжевый налёт на обгорелой древесине дал ей народное имя «гриб пожарищ» [23, 9].
Тетраполярные грибы: полы тысячами
У большинства шляпочных грибов совместимость задают два несцепленных локуса — A и B. Локус A кодирует пары гомеодоменных транскрипционных факторов, локус B — феромоны и их рецепторы. Для слияния ядер в дикарион и образования пряжек нужно, чтобы партнёры различались по обоим локусам: продукты A двух партнёров образуют работающий гетеродимер только из разных аллелей, а феромон одного партнёра должен подойти к рецептору другого. Аллелей много: у шизофиллума — более 300 вариантов A и более 80 вариантов B, что даёт свыше 20 тысяч типов спаривания; у навозника — около 12 тысяч. Шанс, что два случайных мицелия шизофиллума совместимы, превышает 98 % [24, 10, 20].
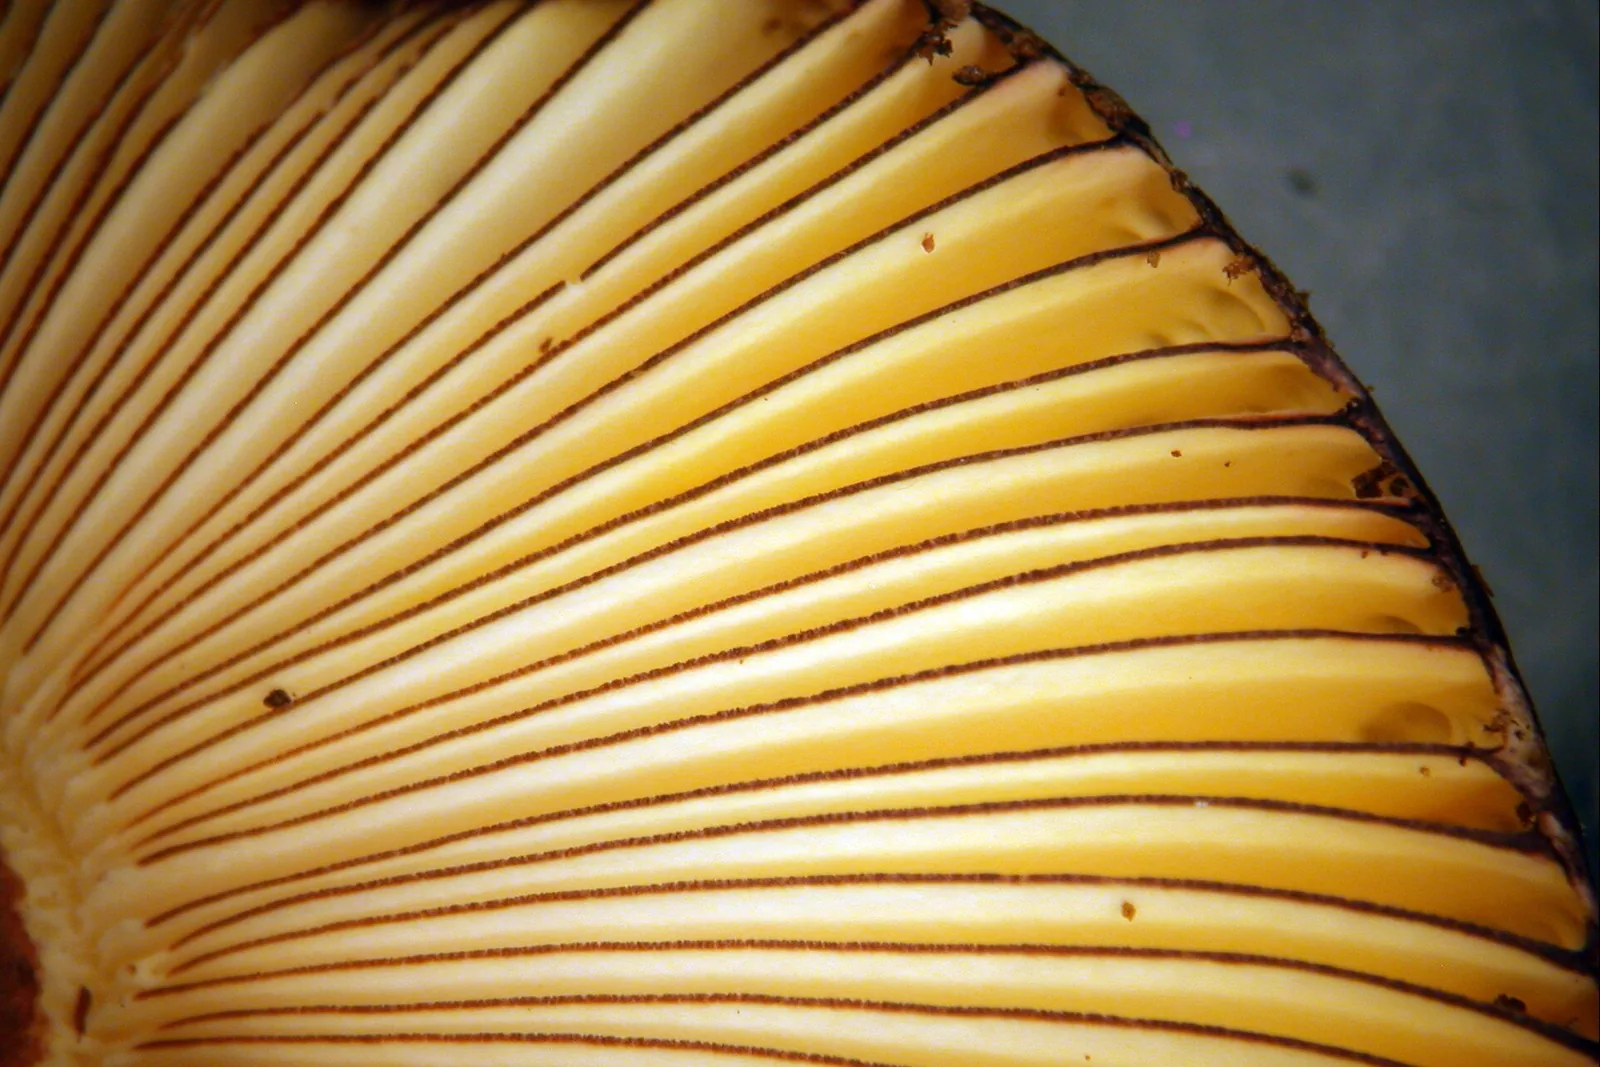
Как устроено такое разнообразие? Каждый локус — на самом деле несколько сцепленных сублокусов (Aα, Aβ, Bα, Bβ), и совместимость достигается различием хотя бы по одному; аллели различаются не точечными заменами, а целыми наборами генов, разошедшимися десятки миллионов лет назад и поддерживаемыми отбором: редкий аллель всегда в выигрыше, потому что совместим почти со всеми, — так называемый отрицательный частотно-зависимый отбор, тот же, что поддерживает группы крови и гены иммунной совместимости у животных. При этом тетраполярная система жёстко запрещает инбридинг: из четырёх спор одной базидии совместимы лишь пары, различающиеся по обоим локусам, — четверть сочетаний.
У головнёвых и ржавчинных грибов, а также у криптококка система вторично стала биполярной: два локуса сцепились в один огромный участок хромосомы, не рекомбинирующий, — своего рода половую хромосому. У криптококка такой локус MAT длиной более 100 тысяч пар нуклеотидов — и это одна из моделей того, как возникали половые хромосомы животных и растений [16, 14].
Феромоны: как партнёры находят друг друга
Партнёр, неотличимый внешне, должен быть отличим химически, и грибы решают это феромонами трёх химических семейств.
Пептиды. У дрожжей α-фактор — пептид из 13 аминокислот, a-фактор — пептид из 12 с присоединённым липидом (фарнезилом); у базидиомицетов феромоны локуса B устроены как a-фактор. Рецепторы — белки с семью трансмембранными спиралями, работающие через G-белок, как рецепторы запаха и гормонов у человека; путь от рецептора к ядру у дрожжей — каскад киназ — стал первым полностью разобранным сигнальным путём эукариот. Концентрация феромона подсказывает направление: клетка дрожжей выпускает выступ в сторону большей концентрации, а трихогина нейроспоры растёт по градиенту к партнёру [22, 10].
Трисporовые кислоты мукоровых — терпеноиды, производные β-каротина, и у них замечательное свойство: ни один партнёр не может синтезировать их в одиночку. «Плюс» делает один предшественник, «минус» — другой, каждый выделяет свой в среду, поглощает чужой и достраивает его до активного вещества. Феромон получается только там, где есть оба, — и там же из гиф вырастают зигофоры, которые растут навстречу друг другу. Попутно триспоровые кислоты включают синтез каротина, и спаривающаяся культура желтеет — на этом основано промышленное получение β-каротина из гриба Blakeslea trispora, названного в честь Блейксли [25].
Сиренин — первый выделенный половой феромон грибов (1968): сесквитерпен, который выделяют женские гаметы водного гриба алломицеса и на который плывут мужские. Он действует в концентрации 10⁻¹⁰ моль/л, а мужские гаметы его разрушают, поглотив, чтобы не «оглохнуть» от собственного следа. Мужские гаметы в ответ выделяют паризин, привлекающий женские. Имя феромону дали в честь сирен — за способность приманивать пловцов [26].
Плазмогамия: пять способов слить клетки
Узнав друг друга, партнёры должны объединить цитоплазмы. У грибов для этого есть пять способов — от настоящего оплодотворения с яйцеклеткой до простого слияния двух обычных гиф.
- Гаметангиогамиясливаются целые половые клетки-гаметангии: зигоспора мукора
- Гаметангиальный контактантеридий отдаёт ядра аскогону через трихогину: сумчатые грибы
- Планогамияподвижные гаметы со жгутиком: алломицес, моноблефарис (оогамия)
- Сперматизациямелкие клетки-спермации на воспринимающие гифы: ржавчина, нейроспора
- Соматогамиясливаются обычные гифы или дрожжевые клетки: шляпочные грибы, дрожжи
Планогамия — слияние подвижных гамет со жгутиками, как у животных и водорослей, — есть только у зооспоровых грибов. У алломицеса гаметы различаются размером и окраской (мелкие оранжевые мужские, крупные бесцветные женские), у моноблефариса — настоящая оогамия: неподвижная яйцеклетка в оогонии и сперматозоиды из антеридия. Это единственный случай оогамии среди настоящих грибов [17, 18].
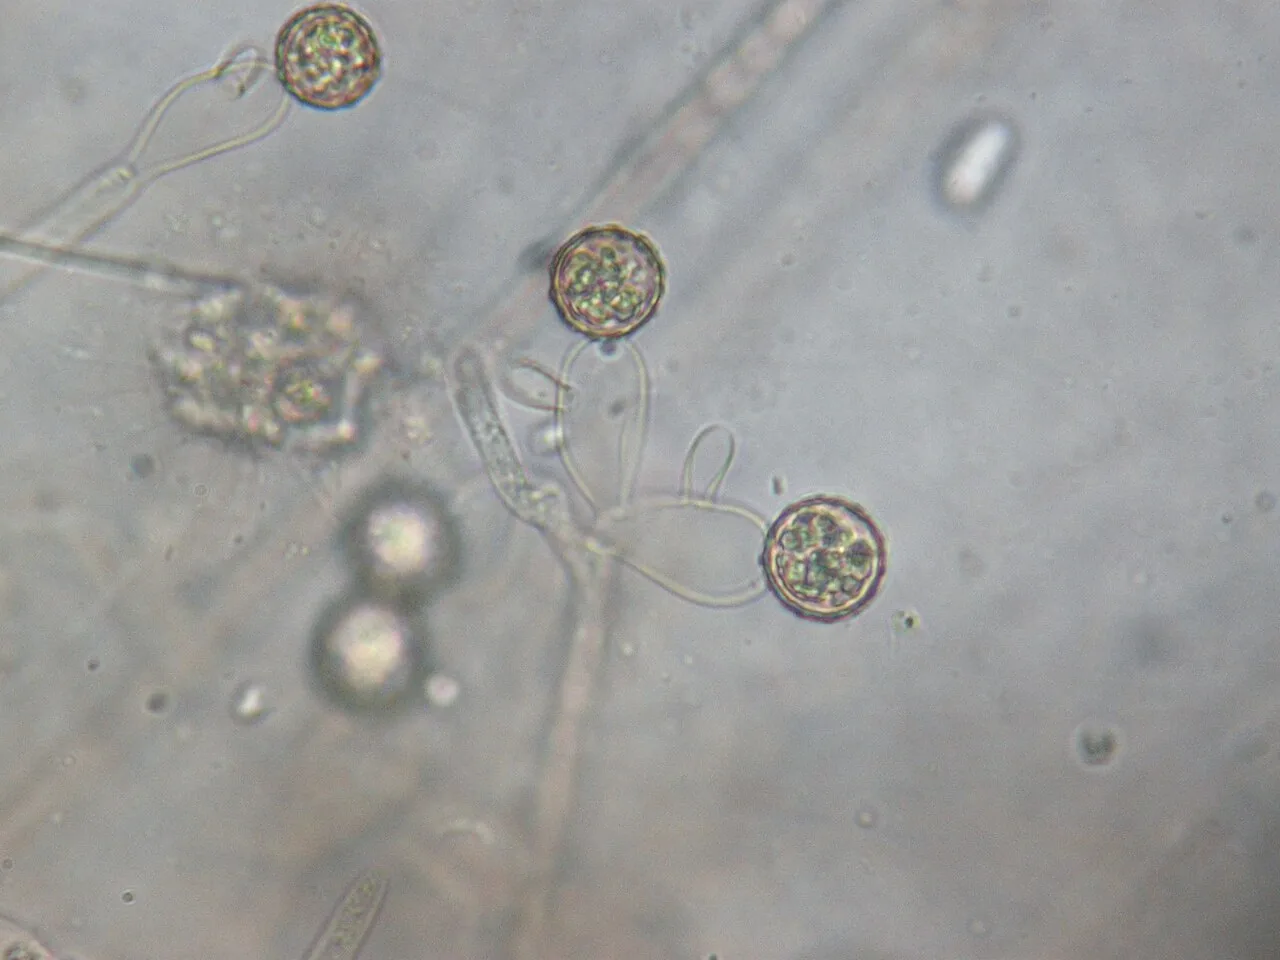
Гаметангиогамия — слияние целых половых клеток, гаметангиев, — у мукоровых: две гифы противоположных типов растут навстречу, их концы вздуваются, отделяются перегородками в многоядерные гаметангии, стенка между ними растворяется, и содержимое объединяется в зигоспору. Гаметангиальный контакт — у сумчатых грибов: мужской антеридий прикладывается к женскому аскогону и переливает в него ядра через трихогину; собственное содержимое антеридия в зиготу не входит. Сперматизация — у ржавчинных грибов и многих сумчатых: мелкие неподвижные клетки-спермации (у нейроспоры — микроконидии, у ржавчины — пикниоспоры) переносятся ветром, водой или насекомыми на воспринимающие гифы; спермаций — чистый «отец», он отдаёт ядро и ничего больше. Соматогамия — у большинства базидиомицетов и у дрожжей: сливаются обычные вегетативные гифы или клетки, никаких половых органов нет вовсе [27, 28].
Последовательность от планогамии к соматогамии повторяет эволюцию грибов: половые органы, унаследованные от жгутиковых предков, упрощались до тех пор, пока не исчезли совсем, а «пол» целиком перешёл в гены совместимости. У самых сложных грибов, шляпочных, половой процесс начинается с того, что две гифы на опушке леса срастаются перемычкой.
Дикарион: крючок и пряжка
После плазмогамии у аскомицетов и базидиомицетов в клетке два ядра, и гриб должен делить их так, чтобы каждая новая клетка получала по одному ядру каждого партнёра. Для этого у обеих групп есть похожие приспособления: крючок (крозье) в аскогенных гифах сумчатых грибов и пряжка на гифах базидиомицетов [17].
Пряжки видны в микроскоп как боковые петельки у каждой перегородки дикариотического мицелия, и по ним миколог узнаёт, что мицелий двуядерный: у вёшенки и опёнка пряжки есть, у шампиньона и белого гриба их нет (их дикарион обходится другим механизмом). У сумчатых грибов крючок образуется только внутри плодового тела, и его верхушечная двуядерная клетка превращается в сумку: ядра в ней сливаются, и следует мейоз. Из основания крючка тем временем вырастает новый крючок, и так один аскогенный «куст» даёт десятки сумок [18].
Дикарион базидиомицетов — удивительно устойчивое состояние. Два ядра делятся синхронно сотни и тысячи раз, не сливаясь; у ржавчины дикарион переходит из споры в спору всё лето; у шляпочных грибов двуядерный мицелий живёт десятилетиями и образует все плодовые тела, а кариогамия происходит только в базидиях, за часы до мейоза. У некоторых грибов дикарион даже «распадается» и собирается заново: при встрече с другим мицелием ядра могут покинуть одного партнёра и уйти к другому (феномен Буллера), так что генотип дикариона со временем меняется [5, 6].
Кариогамия и мейоз
Кариогамия — слияние ядер — происходит у грибов в особой клетке: молодой сумке, молодой базидии, зигоспоре, телиоспоре ржавчины, покоящемся спорангии хитридиевых. Эта клетка — единственная диплоидная в жизни большинства грибов, и живёт она часы или дни: сразу за кариогамией начинается мейоз. Исключения — дрожжи, у которых диплоид размножается почкованием, и алломицес с настоящим диплоидным поколением.
Мейоз грибов идёт по той же программе, что у всех эукариот: синапсис гомологов, кроссинговер, два деления. Но наблюдать его у грибов удобнее, чем у кого бы то ни было: четыре продукта одного мейоза остаются вместе — в сумке или на базидии, — и их можно высеять порознь и проанализировать. Это тетрадный анализ, которого нет у животных (из четырёх продуктов мейоза самки три гибнут) и который сделал дрожжи и нейроспору главными объектами генетики мейоза: на них открыли генную конверсию, механизм кроссинговера через двухцепочечный разрыв, белки синаптонемного комплекса и контрольные точки мейоза [23, 7].
В сумке: от зиготы до восьми спор
Сумка (аск) — клетка, в которой у аскомицетов происходят кариогамия, мейоз и образование спор. Из крючка аскогенной гифы отделяется двуядерная клетка; ядра сливаются; диплоидное ядро делится мейозом на четыре, каждое — ещё раз митозом, и вокруг восьми ядер отшнуровываются аскоспоры. У нейроспоры и других грибов с узкими сумками споры лежат в ряд в порядке делений — упорядоченная тетрада: первые четыре споры — потомки одного ядра первого деления мейоза, вторые четыре — другого. По расположению признаков в сумке видно, разошлись ли аллели гена в первом или втором делении мейоза, а значит, был ли кроссинговер между геном и центромерой; доля сумок второго типа даёт расстояние от гена до центромеры. Так картировали центромеры нейроспоры в 1940-х годах, задолго до молекулярных методов [23].
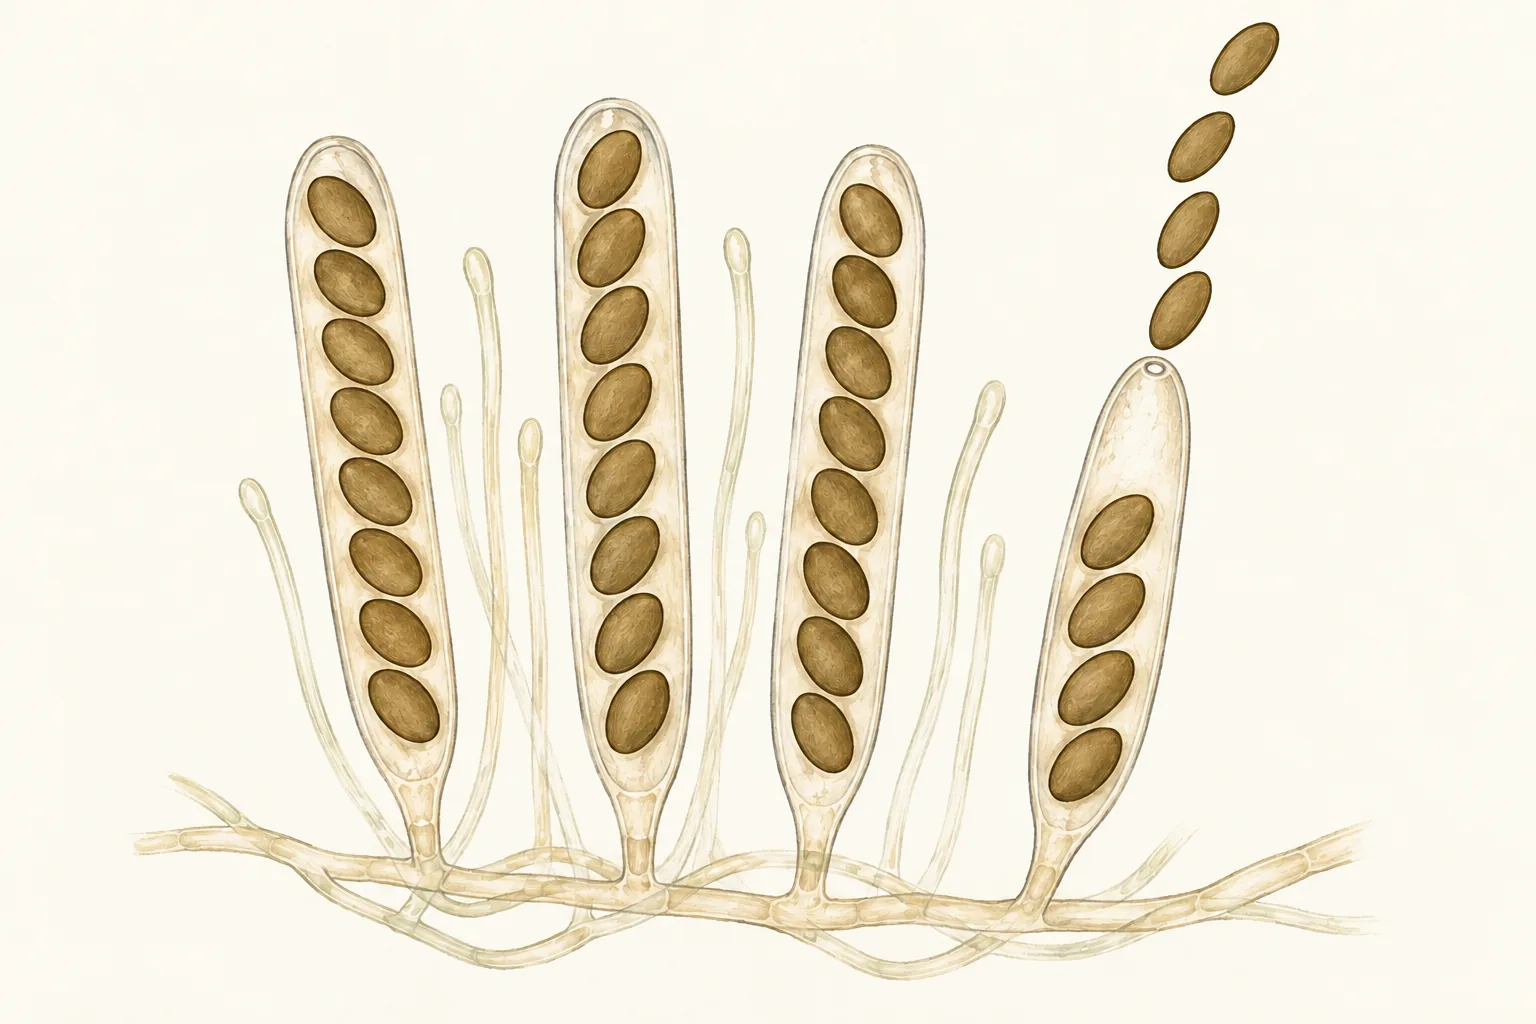
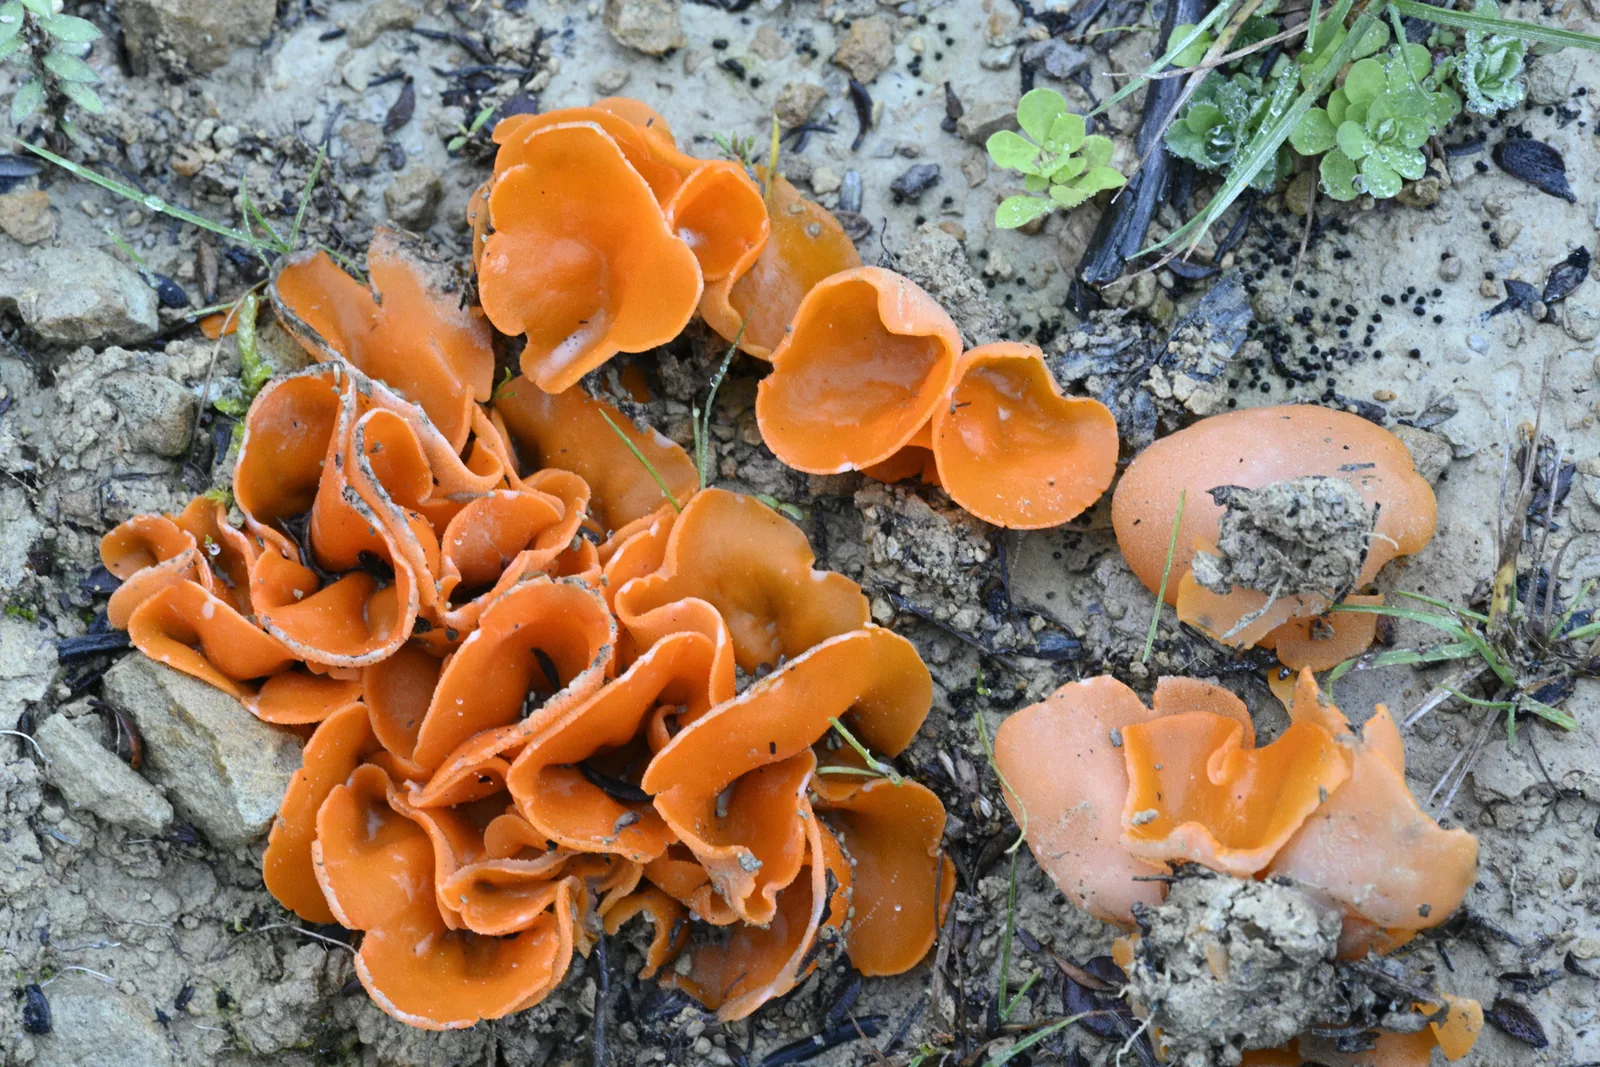
Сумки собраны в плодовые тела — аскомы: закрытые клейстотеции (аспергилл, мучнистая роса), кувшинчатые перитеции с отверстием (нейроспора, спорынья), открытые блюдцевидные апотеции (сморчки, пецицы) и погружённые в ткань хозяина псевдотеции. Зрелая сумка — пушка: в ней растёт тургор (у сордарии — до 1,5 МПа), верхушка вскрывается крышечкой или порой, и восемь спор выстреливаются струёй на несколько сантиметров — из приземного слоя воздуха туда, где есть ветер. Апотеции сморчков и пециц, если на них дохнуть, выпускают облачко спор с тихим шипением: тысячи сумок стреляют разом, реагируя на изменение влажности [17, 29].
Трюфели — аскомицеты, ушедшие под землю: их сумки не стреляют, а споры разносят животные, привлечённые запахом; в сумке трюфеля спор не восемь, а от одной до шести, и они крупные, с орнаментом. Спорынья образует перитеции весной на проросшем склероции, и её нитевидные аскоспоры попадают в цветки ржи — единственное время, когда гриб может заразить злак.
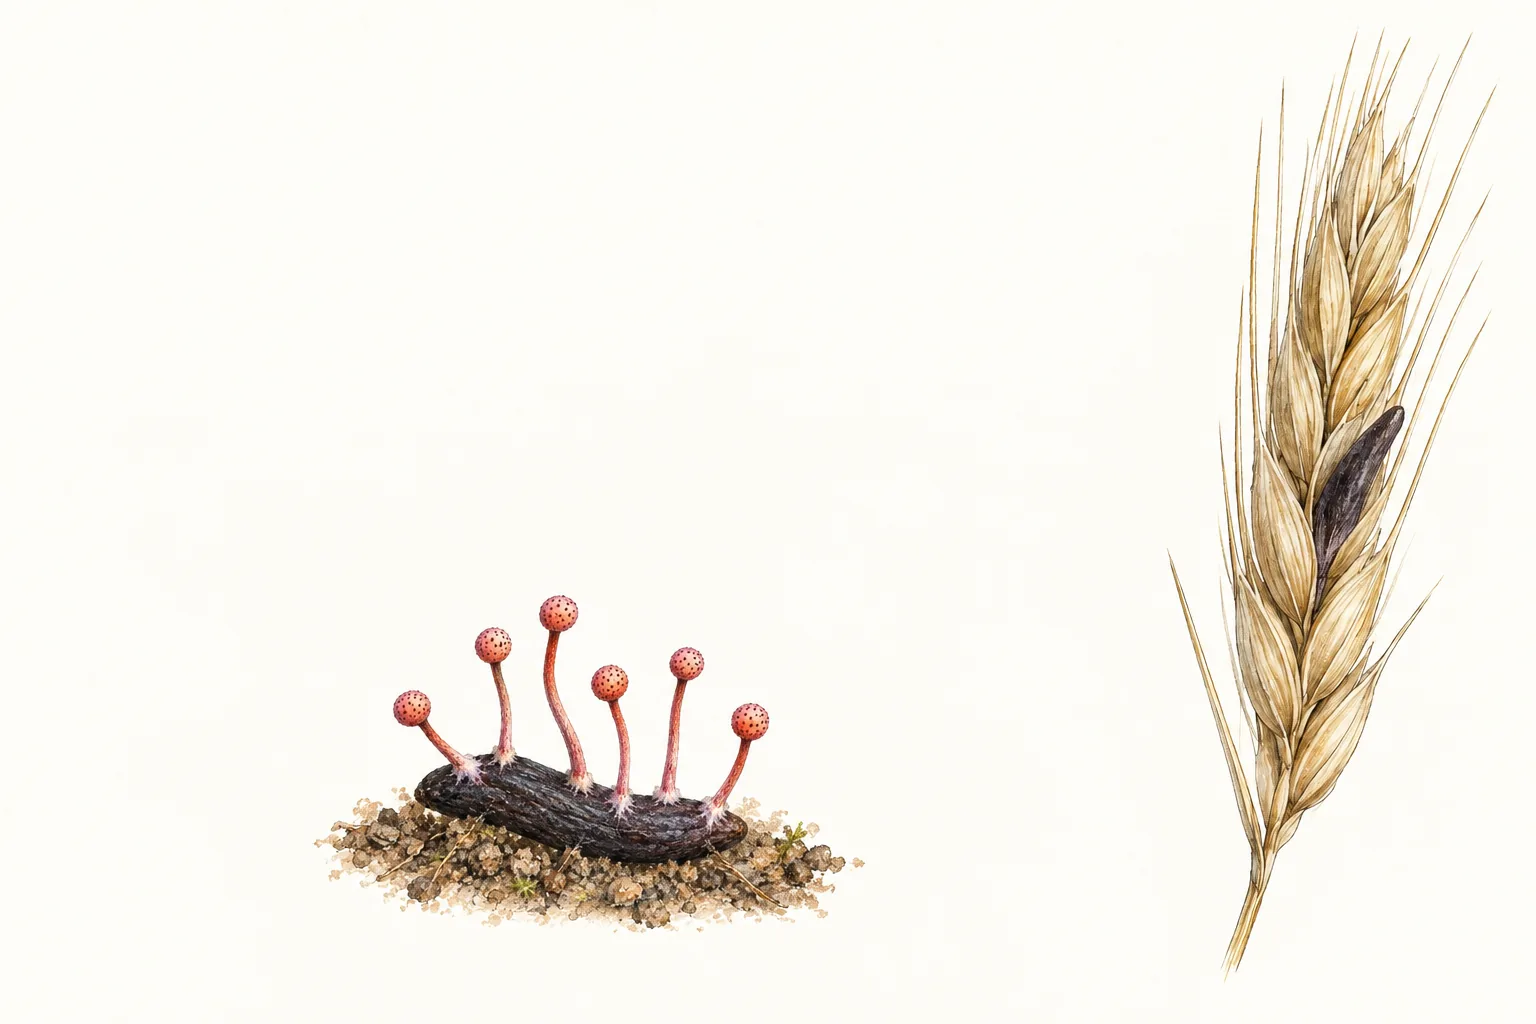
На базидии: четыре споры и выстрел
Базидия — клетка базидиомицетов, в которой сливаются ядра дикариона и проходит мейоз; четыре гаплоидных ядра уходят в четыре выроста-стеригмы, и на каждой созревает базидиоспора. У шляпочных грибов, трутовиков и дождевиков базидия цельная (холобазидия); у ржавчинных и головнёвых — разделена перегородками на четыре клетки (фрагмобазидия) и вырастает из толстостенной покоящейся телиоспоры. Пластинки, трубочки, шипики и складки плодовых тел — это способы разместить как можно больше базидий на единице площади: у крупного шампиньона их миллиарды, и за сутки он выпускает около миллиарда спор [17].
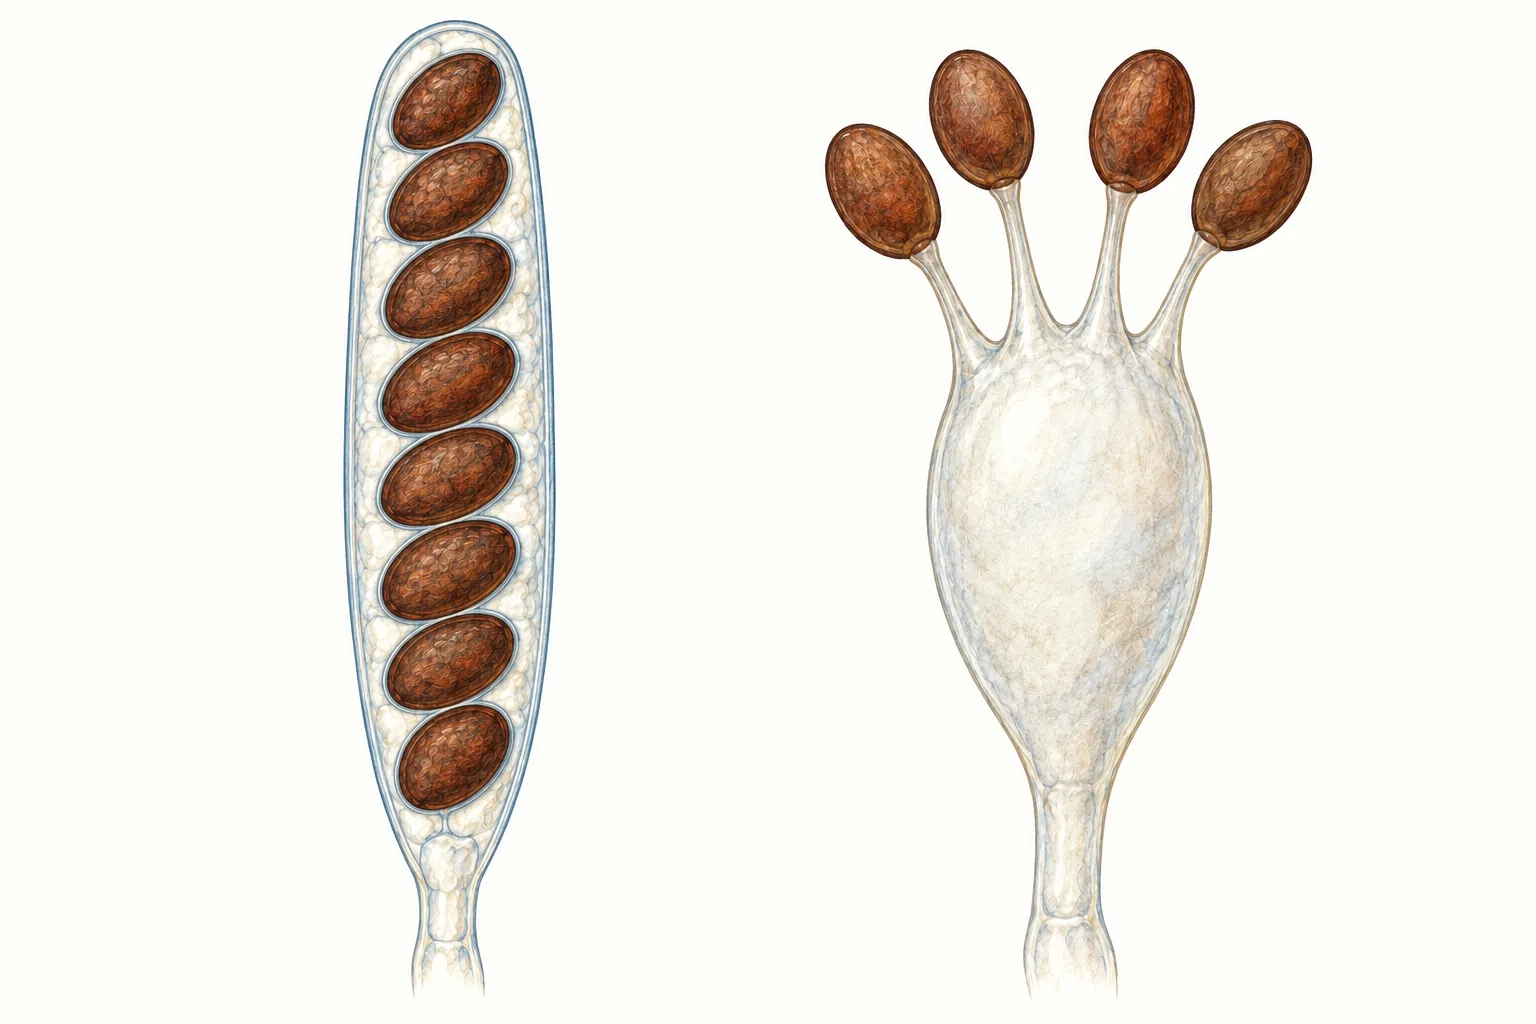
Базидиоспора стартует с базидии уникальным способом. У её основания из выделяемого сахара конденсируется капля воды — капля Буллера, — а на самой споре растёт плёнка влаги; когда капля касается плёнки, они сливаются за микросекунды, центр масс смещается, и спора срывается со стеригмы со скоростью около метра в секунду и ускорением в десятки тысяч g. Пролетев долю миллиметра, спора замедляется и падает вниз между пластинками — ровно настолько, чтобы не прилипнуть к соседней. Поэтому пластинки должны стоять строго вертикально, и гриб выправляет шляпку гравитропизмом. Выстрел снят на высокоскоростную камеру в 2005 году [30, 5].
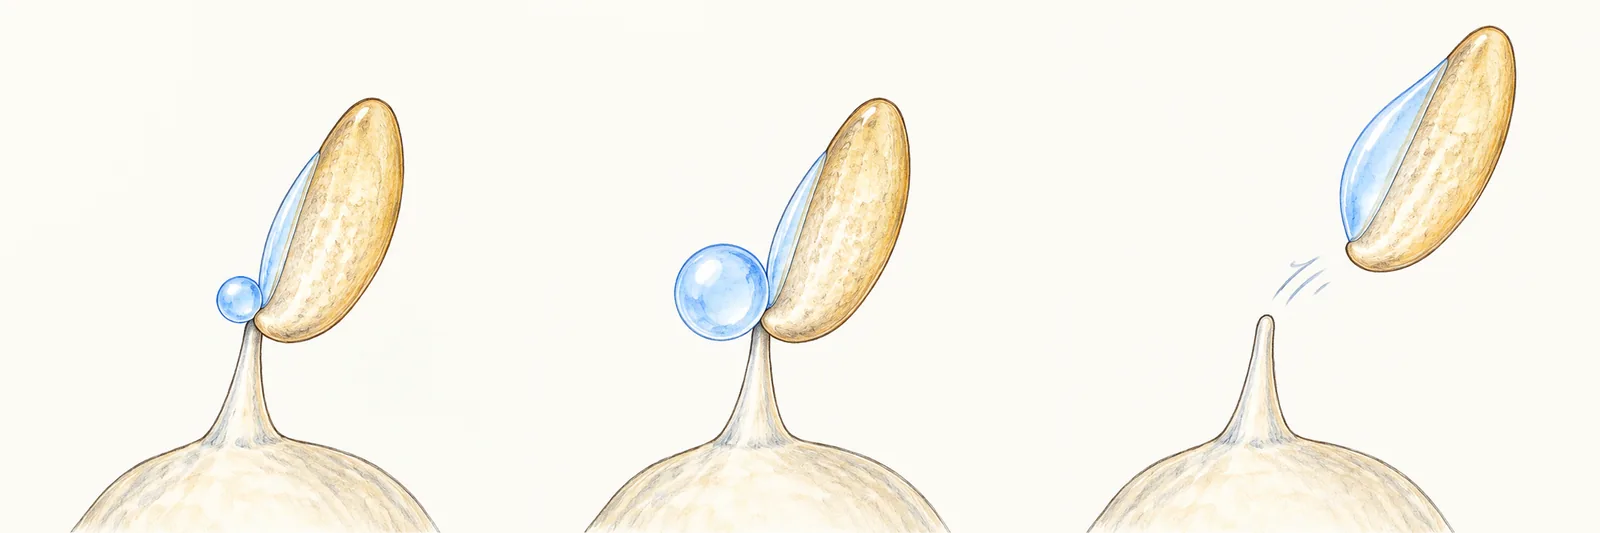
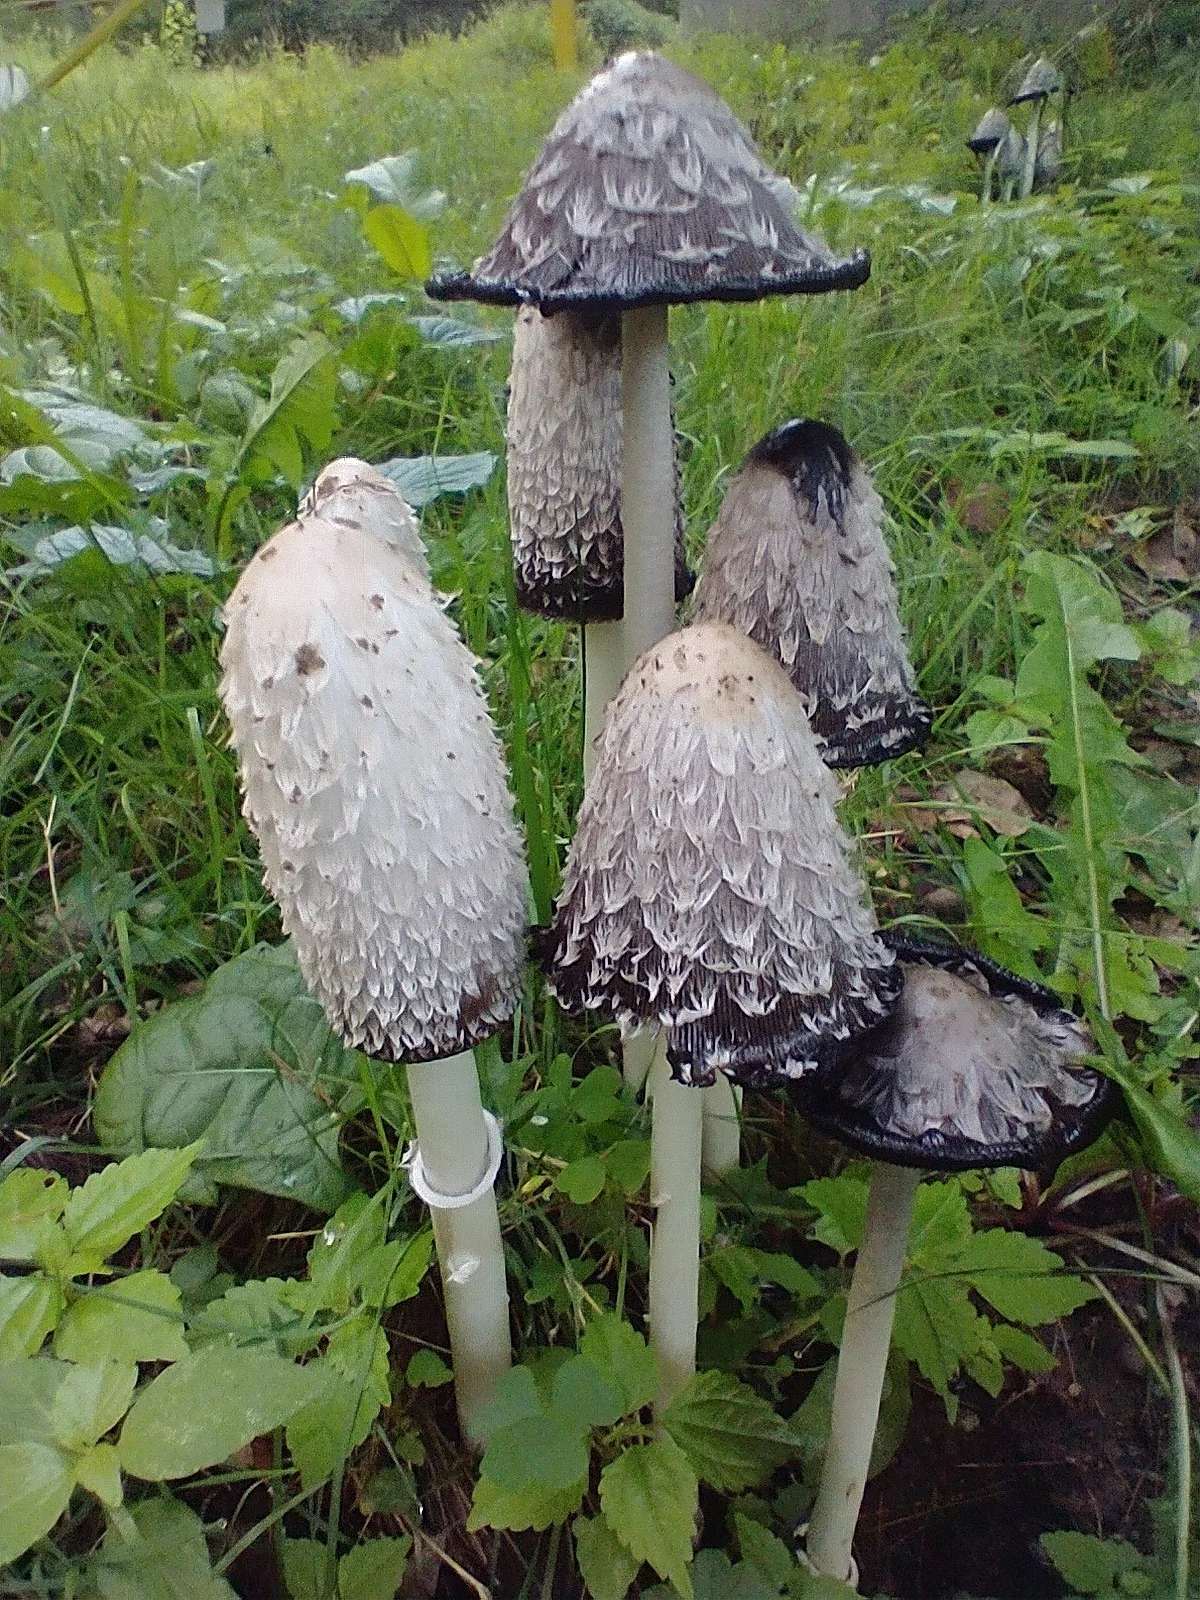
Не все базидиомицеты стреляют. Дождевики и трюфелевидные базидиомицеты утратили активный выброс: споры созревают внутри и рассеиваются ветром через отверстие или животными. Навозники решают задачу иначе: созревшие пластинки расплываются в чёрную жидкость — аутолиз начинается снизу, где споры уже выпущены, и освобождает место для верхних. Для систематики важнее, что у базидии гриба навозника четыре споры, а у шампиньона — две: двуспоровая базидия — ключ к его вторичному гомоталлизму.
Зигоспора мукоровых
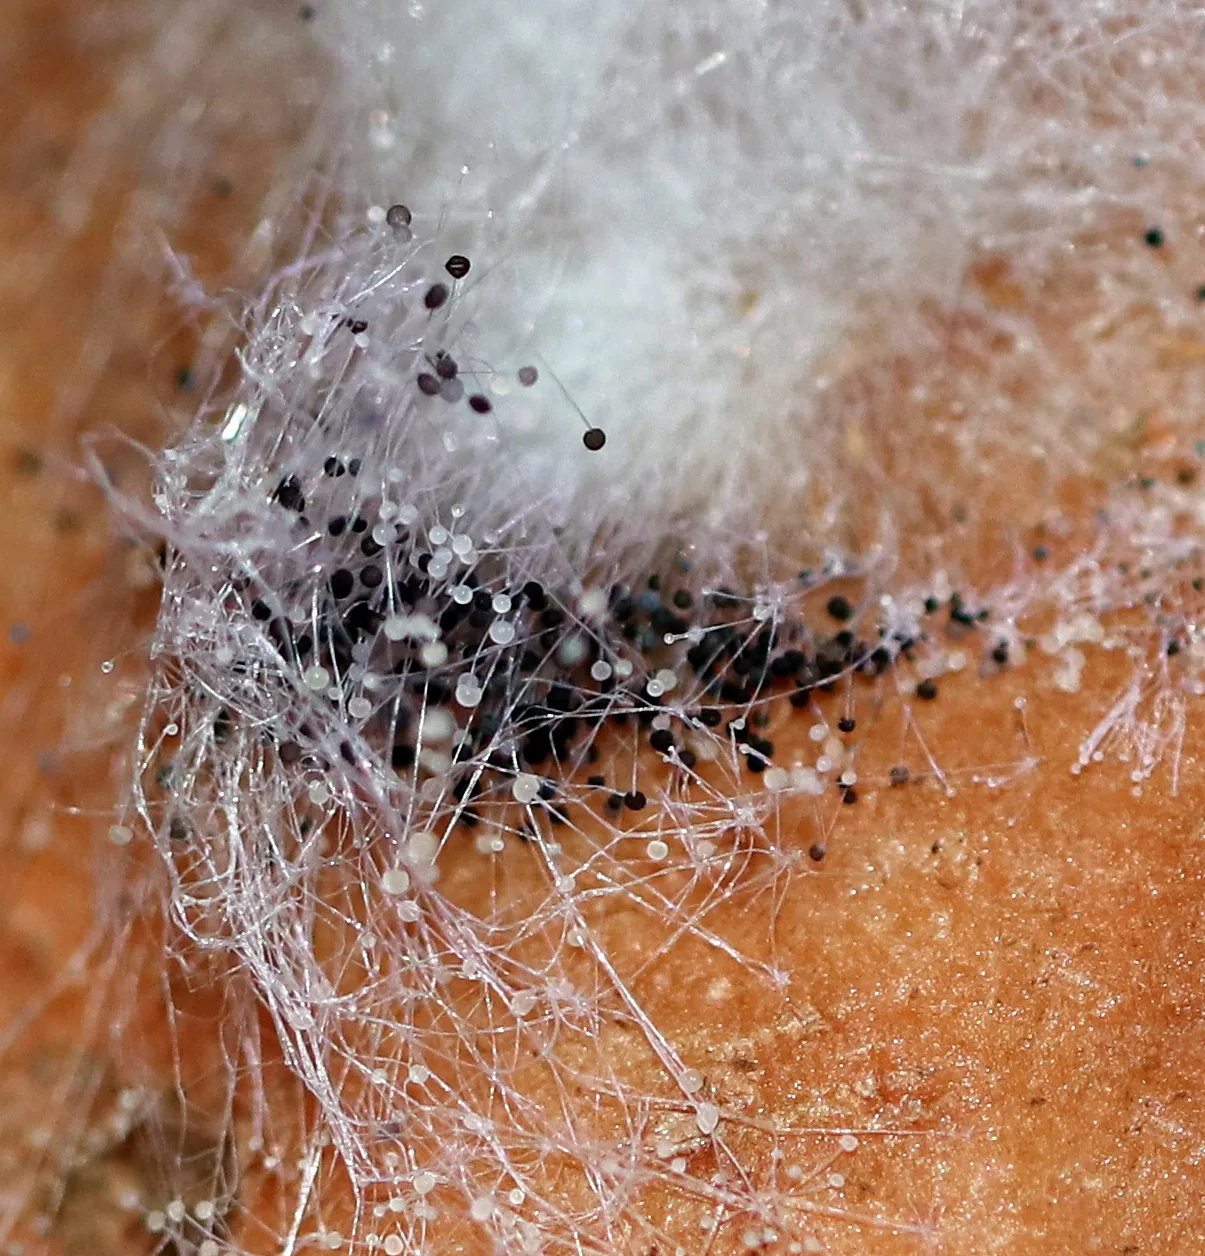
У мукора, ризопуса, пилоболуса половой процесс начинается с триспоровых кислот и заканчивается зигоспорой — толстостенной, тёмной, бородавчатой покоящейся спорой, в которой сливаются многие пары ядер из двух гаметангиев. Зигоспора лежит месяцами, затем прорастает спорангиеносцем с «зародышевым» спорангием; мейоз проходит при прорастании, и все споры этого спорангия у многих видов одного типа спаривания, а у других — обоих. Какие ядра из многих участвуют в кариогамии и мейозе, а какие дегенерируют, — вопрос, по которому цитологи спорят сто лет. Зигоспоры редки в природе и в лаборатории: нужно свести «плюс» и «минус», подобрать среду, и ждать неделями; гриб Blakeslea trispora спаривается охотно, потому его и используют как источник каротина [3, 25, 17].
Половой процесс есть и у зоопагомицетов: у энтомофторовых — похожий на мукоровый, с зигоспорами; у базидиоболюса — редкий случай, когда гаметангии неравны и ядро переходит из «клювика» одной клетки в другую. У гломеромицетов, образующих арбускулярную микоризу, половой процесс не наблюдали никогда, но в геномах найдены гены мейоза и типов спаривания, и генетика популяций указывает на скрытую рекомбинацию — очередной «бесполый» гриб, по-видимому, бесполый лишь для наблюдателя [16, 14].
Половой процесс зооспоровых грибов
Зооспоровые грибы сохранили половой процесс, унаследованный от жгутиковых предков, — с подвижными гаметами. У хитридиевых гаметы часто неотличимы от зооспор, и слияние происходит между равными клетками или между клеткой и ризоидальным талломом; у синхитриума, возбудителя рака картофеля, после слияния зооспор-гамет образуется покоящаяся спора с толстой стенкой, которая десятилетиями сохраняется в почве. Алломицес — редкий среди грибов случай чередования поколений: его диплоидный спороталлом образует и бесполые зооспорангии, и толстостенные покоящиеся спорангии, в которых проходит мейоз; гаплоидные зооспоры дают гаметоталлом с мужскими и женскими гаметангиями, гаметы сливаются — и зигота прорастает в новый спороталлом. Два поколения внешне одинаковы, как у многих водорослей, и чередуются строго, как у растений [17, 18].
Жизненные циклы грибов
По тому, какая фаза преобладает, циклы грибов делят на четыре типа.
| Тип цикла | Что преобладает | Где диплоид | Примеры |
|---|---|---|---|
| Гаплоидный | Гаплоидный мицелий или таллом | Только зигота, сразу мейоз | Мукоровые, хитридиевые, многие аскомицеты |
| Гапло-дикариотический | Гаплоидный мицелий и дикарион | Сумка или базидия, часы | Плесневые аскомицеты (короткий дикарион), все базидиомицеты (долгий дикарион) |
| Гапло-диплоидный | И гаплоид, и диплоид размножаются | Диплоидные клетки почкуются | Пекарские дрожжи, кандида, некоторые хитридиевые |
| Чередование поколений | Два равноправных поколения | Диплоидный спороталлом | Алломицес |
Общее правило: у грибов, в отличие от животных, гаплоидная фаза способна к самостоятельной жизни и размножению, а диплоидная чаще всего сведена к одной клетке. Это имеет следствие для генетики: мутация в гаплоидном мицелии проявляется сразу, без скрещивания до гомозиготы, и именно поэтому грибы стали объектами, на которых открыли связь гена с ферментом. Оборотная сторона — вредная мутация не может прятаться за исправным аллелем; дикарион и гетерокарион, по-видимому, и есть грибной способ обзавестись «запасным» геномом, не отказываясь от выгод гаплоидности [29, 14].
Ржавчина: пять спор и два хозяина
Самый сложный половой цикл среди грибов — у ржавчинных базидиомицетов, и его расшифровка в XIX веке (де Бари, 1865) была одним из первых триумфов микологии: оказалось, что «ржавчина пшеницы» и «ржавчина барбариса» — один гриб, который не может замкнуть цикл без обоих хозяев. Крестьяне Европы знали об этом задолго до науки: в Руане ещё в 1660 году запретили сажать барбарис рядом с полями [1, 2].
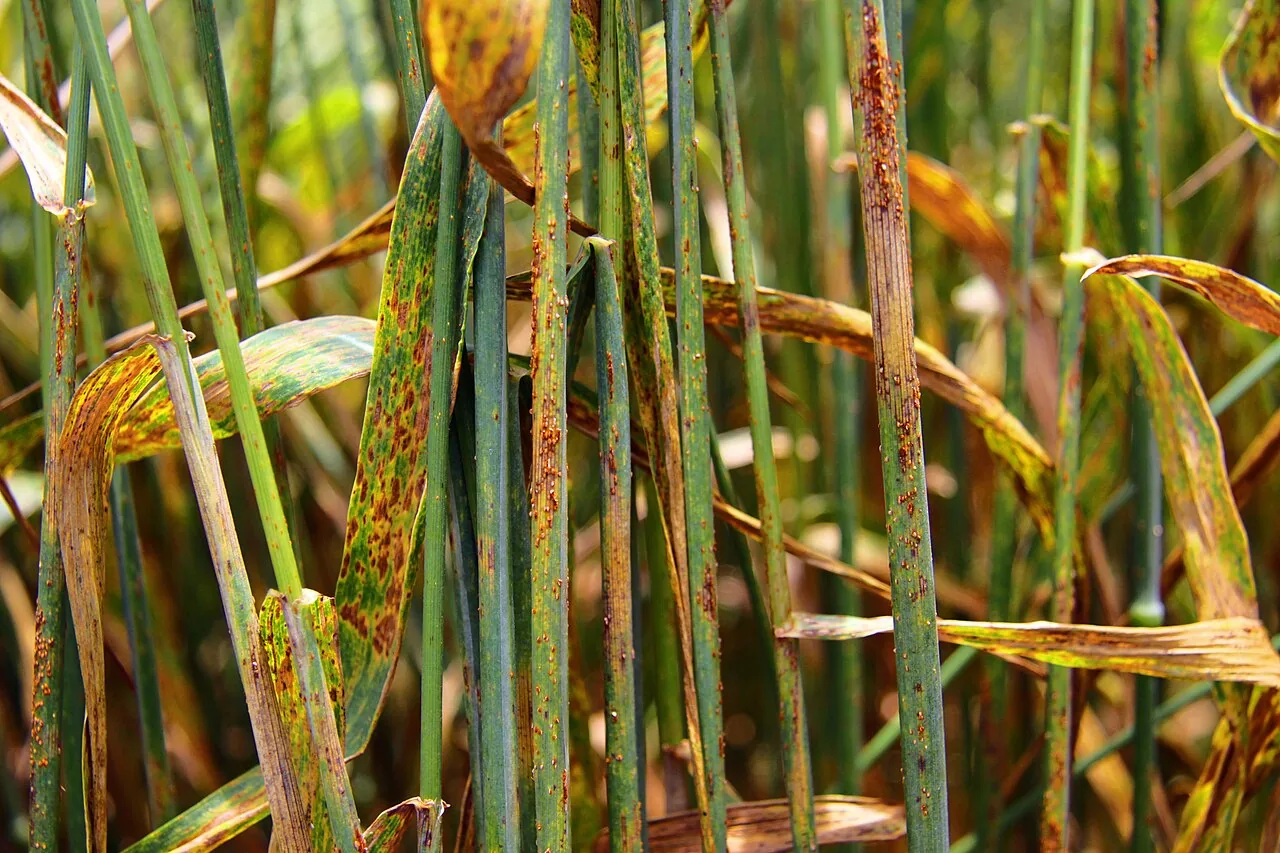
Половой процесс происходит на барбарисе: пикнии выделяют сладкий нектар с запахом, привлекающий мух и жуков, которые переносят спермации между пикниями разных типов спаривания, — грибы, как цветковые растения, используют насекомых-опылителей. После сперматизации образуется дикарион, и всё остальное — эциоспоры, урединиоспоры, телиоспоры — несёт два ядра; кариогамия происходит в телиоспоре, мейоз — в базидии весной. На пшенице гриб размножается только бесполыми урединиоспорами, и за лето проходит до десятка поколений: именно они дают эпидемии [17].
Значение цикла — практическое. Половой процесс на барбарисе рождает новые расы ржавчины, преодолевающие устойчивость сортов; кампании по уничтожению барбариса в США (1918–1980-е) и в СССР резко замедлили появление новых рас, а там, где барбарис остался, — в Восточной Африке — в 1999 году возникла раса Ug99, поражающая почти все сорта мира. Ржавчина груши живёт на можжевельнике, ржавчина сосны — на смородине, и везде разрыв цикла — уничтожение промежуточного хозяина — остаётся главной мерой защиты [31].
Скрытый пол «бесполых» грибов
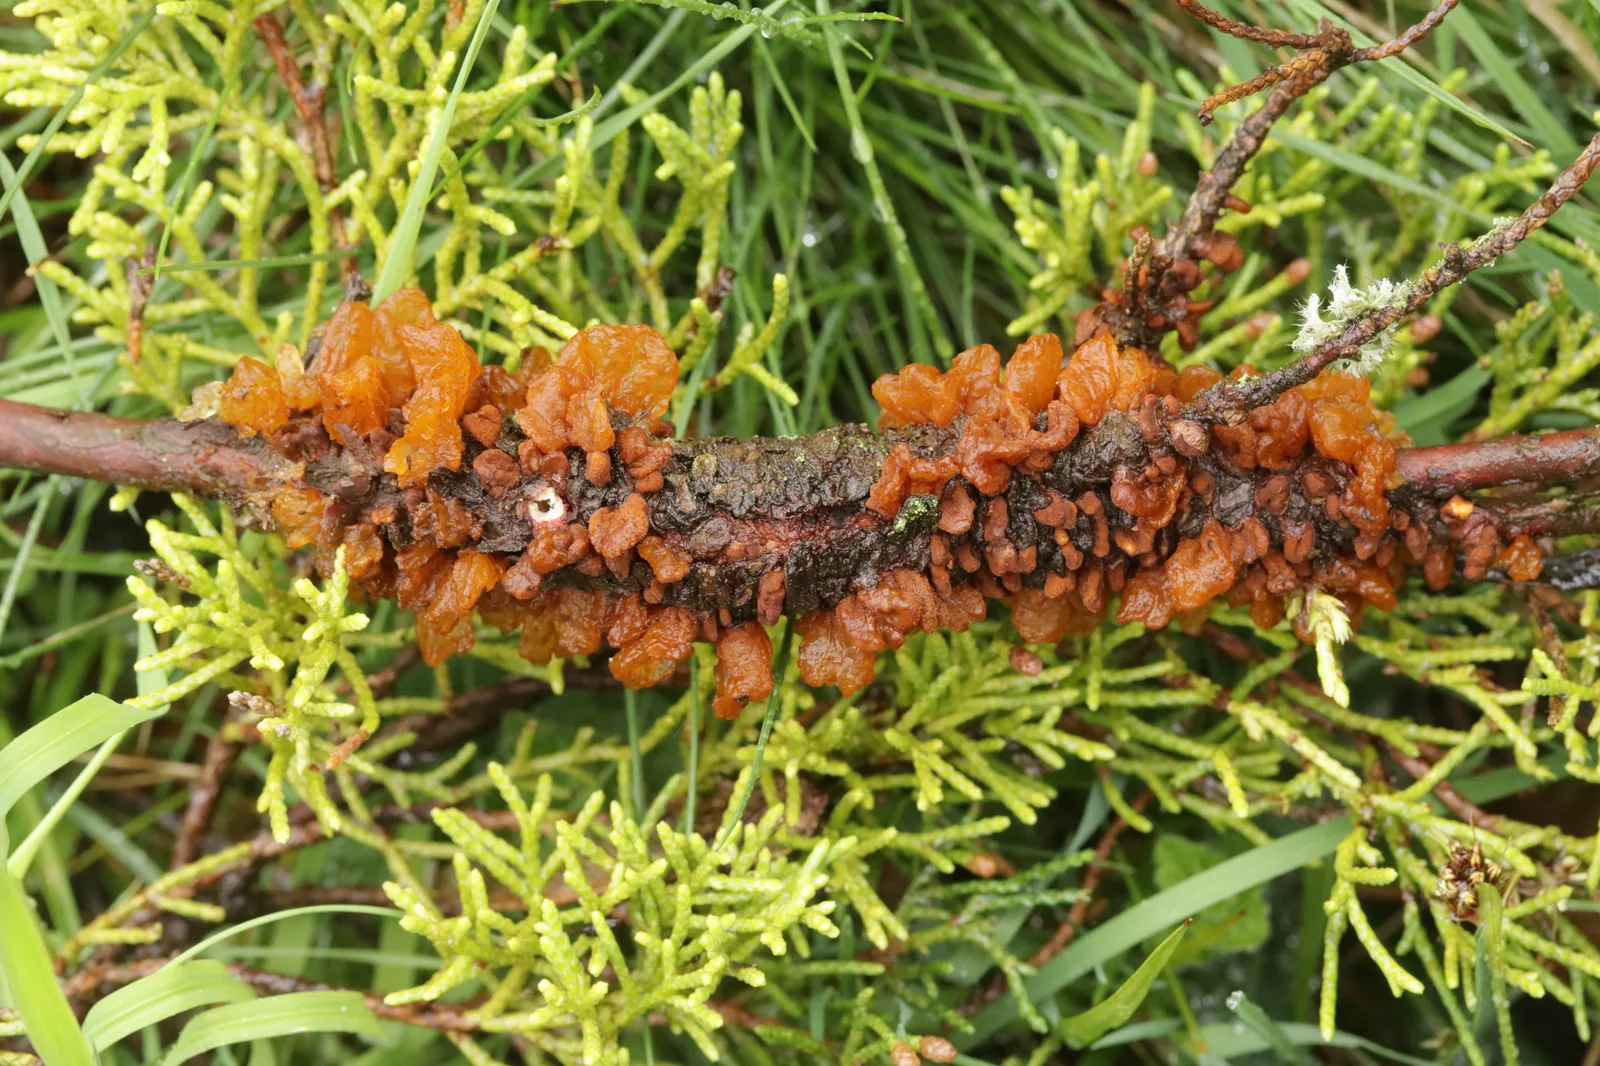
К 2000 году около пятой части описанных грибов числились бесполыми: пеницилл, аспергилл, фузариум, кандида, криптококк. Геномика заставила в этом усомниться: у «бесполых» видов оказались целы гены мейоза, феромонов и типов спаривания, а в популяциях — соотношение типов спаривания 1 : 1 и следы рекомбинации. Оставалось найти условия.
- Кандида (2000–2003). Кристина Халл и Александр Джонсон показали, что диплоидная кандида несёт локус MAT с генами a и α, и клетки, потерявшие один из них, спариваются — впервые это удалось увидеть в теле мыши. Полного мейоза у кандиды нет: тетраплоид, получившийся при слиянии, теряет хромосомы при митозах, возвращаясь к диплоидности, — парасексуальный цикл с «ущербным» мейозом. Спариваются только клетки в особом «матовом» состоянии (opaque), которое включается при 37 °C редко, — отсюда столетие «бесполости» [32, 33].
- Криптококк (2005). У возбудителя менингита в природе почти все изоляты одного типа, α, и спариваться им не с кем. Сяожун Линь и Джозеф Хайтман показали, что клетки α спариваются друг с другом: сливаются, ядра сливаются, проходит мейоз — половой процесс без партнёра другого типа, «однополый» [34].
- Возбудитель аспергиллёза (2009). Вид описан в 1863 году, и 145 лет никто не видел его сумок. Селин О’Горман и Пол Дайер свели изоляты противоположных типов на овсяном агаре в темноте — и через шесть месяцев получили клейстотеции с аскоспорами; потомство оказалось рекомбинантным. Открытие объяснило, откуда у гриба берутся новые сочетания генов устойчивости к азолам [11, 15].
- Промышленный пеницилл (2013). Группа Ульриха Кюка применила тот же рецепт — овсяный агар, темнота, биотин, партнёры разных типов — к Penicillium chrysogenum, бесполому «со времён Флеминга», и получила аскоспоры; скрещивания сразу пошли в дело: потомки сочетали высокий выход пенициллина с отсутствием жёлтого пигмента, мешавшего очистке [12].
Общий вывод этих работ: чисто бесполых грибов, вероятно, очень мало. Пол у них не утрачен, а скрыт — включается редко, в особых условиях, иногда без партнёра, но достаточно, чтобы популяция не была клоном. Для медицины это важно: там, где есть рекомбинация, устойчивость к лекарствам распространяется быстрее [15, 16].
Что мейоз грибов дал генетике
Четыре споры одной сумки — четыре продукта одного мейоза, и это сделало грибы незаменимыми для генетики. Тетрадный анализ позволил увидеть то, что у животных и растений скрыто статистикой: что аллели расходятся в мейозе ровно 2 : 2 (менделевская сегрегация в одной клетке), что иногда это правило нарушается — 3 : 1 — и такое отклонение, генная конверсия, оказалось следом репарации гетеродуплексной ДНК при кроссинговере; что кроссинговер происходит на стадии четырёх хроматид, а не двух. Упорядоченные тетрады нейроспоры дали способ измерить расстояние от гена до центромеры, а дрожжи — первый молекулярный механизм рекомбинации: модель двухцепочечного разрыва, построенную на дрожжевых тетрадах в 1983 году, затем подтвердили у всех эукариот, включая человека [23, 7].
На нейроспоре же открыт RIP — «точечные мутации, вызванные повторами»: перед мейозом гриб находит в геноме любые дублированные участки длиной от нескольких сотен пар нуклеотидов и засыпает обе копии мутациями, превращая их в нерабочий хлам. Это защита от мобильных элементов, и она настолько эффективна, что в геноме нейроспоры их почти нет, — но платой стала невозможность дуплицировать гены, главный путь появления новых генов у остальных эукариот. Ещё один механизм, мейотическое глушение, выключает в мейозе любой ген, у которого нет пары на гомологичной хромосоме, — так гриб защищается от чужеродных вставок [35].
Эгоистичные гены в мейозе
Мейоз справедлив: каждый аллель попадает в половину спор. Но некоторые гены научились его обманывать. У нейроспоры и подоспоры известны убийцы спор — участки хромосомы, которые при мейозе в гетерозиготе убивают те споры сумки, которые их не унаследовали: из восьми аскоспор выживают четыре, и все несут убийцу. Ген-убийца выделяет яд, а сам защищён противоядием; спора без него гибнет. Так эгоистичный элемент распространяется в популяции, не давая носителю никакого преимущества, — «мейотический драйв». У подоспоры гены-убийцы Spok образуют целые комплексы, и разные их сочетания определяют, кто кого убьёт в данном скрещивании [36, 37].
Другой «эгоист» — прион het-s подоспоры: белок, который умеет существовать в двух формах и передаёт форму по наследству, как прионы дрожжей; он участвует в вегетативной несовместимости и заодно объясняет, как белок может быть носителем наследственной информации. Грибы, с их открытым мейозом, оказались лучшим местом, где такие явления можно разглядеть.
Половой процесс на службе человека
Там, где у гриба есть половой процесс, человек ведёт селекцию, как у растений. Шампиньон — самый выращиваемый гриб мира — из-за вторичного гомоталлизма долго не поддавался скрещиванию: каждая спора давала готовый дикарион, и скрестить две линии было невозможно. Селекционеры научились выделять редкие одноядерные споры и в 1980 году вывели гибрид Horst U1 — белый шампиньон, от которого происходят почти все современные промышленные штаммы; патентные споры вокруг него идут до сих пор [21].
Вёшенку и шиитаке скрещивают через тетраполярную систему: выбирают совместимые одноядерные мицелии и соединяют их. Дрожжи для пива и вина — гибриды: лагерные дрожжи возникли в XV веке в Баварии от скрещивания пекарских дрожжей с холодолюбивым диким видом из Патагонии (Saccharomyces eubayanus), и сегодня новые гибриды создают намеренно, спаривая споры разных видов. Пеницилл после 2013 года тоже скрещивают, а в селекции сыродельных пенициллов и кодзи-аспергиллов используют типы спаривания, чтобы объединять свойства штаммов. Обратная задача — не дать грибу половой процесс: в хранилищах ржавчины и на полях уничтожают промежуточных хозяев, чтобы не плодить расы.
Частые вопросы
Есть ли у грибов самцы и самки? Нет. Есть типы спаривания — генетически совместимые партнёры, внешне одинаковые. Лишь у немногих водных грибов (моноблефарис) есть настоящие яйцеклетки и сперматозоиды, а у сумчатых — мужские и женские органы, но любой мицелий несёт и те и другие.
Мухомор — он или она? Ни то ни другое. Плодовое тело мухомора выросло из двуядерного мицелия, то есть из «супружеской пары» двух мицелиев разных типов спаривания; каждая его базидия сливает ядра обоих партнёров и даёт споры четырёх сочетаний.
Почему у гриба двадцать тысяч полов, а у нас два? У грибов цель типов спаривания — запретить самооплодотворение и при этом сделать партнёром почти любого встречного; для этого чем больше типов, тем лучше. У животных пол — это ещё и разделение труда между крупной яйцеклеткой и мелким сперматозоидом, а такая система устойчива только при двух полах.
Дрожжи размножаются половым путём? Да: гаплоидные клетки a и α спариваются, диплоид при голодании образует сумку с четырьмя спорами. В тесте и в пиве дрожжи почти всегда почкуются как диплоиды, и половой процесс незаметен.
Если гриб размножается спорами, зачем ему пол? Споры бывают и бесполые, и половые. Бесполые — копии родителя, для расселения в хорошие времена; половые — с новыми сочетаниями генов и толстой стенкой, для плохих времён и новых условий.
Что значит «гриб-гермафродит»? Обычно так называют гомоталлические грибы, способные к половому процессу в одиночку. Слово неточное: гермафродит — организм с органами обоих полов, а у гомоталлического гриба чаще просто оба типа спаривания в одном геноме или умение их переключать.
Что нужно знать к ЕГЭ
- половой процесс грибов — слияние клеток (плазмогамия), затем слияние ядер (кариогамия) и мейоз; у высших грибов между ними — двуядерная стадия;
- у мукора: гифы разных мицелиев («+» и «−») сливаются, образуется зигоспора; при её прорастании — мейоз и спорангий со спорами;
- у сумчатых грибов (дрожжи, пеницилл, сморчки, спорынья) после слияния ядер — мейоз и образование сумки с восемью аскоспорами (у дрожжей — с четырьмя);
- у базидиальных грибов (шляпочные, трутовики, головня, ржавчина) ядра сливаются в базидии; после мейоза на базидии образуются четыре базидиоспоры; споры на пластинках и в трубочках — результат полового процесса;
- мицелий шляпочного гриба, образующий плодовые тела, — двуядерный (дикарион), выросший из слияния двух гаплоидных мицелиев;
- полов у грибов нет, есть типы спаривания; мейоз у большинства грибов происходит сразу после слияния ядер, поэтому мицелий гаплоидный;
- дрожжи при неблагоприятных условиях размножаются половым путём: клетки сливаются, затем мейоз и сумка со спорами.
Ловушки. «Споры шляпочного гриба образуются бесполым путём» — нет, базидиоспоры — результат мейоза после слияния ядер. «Мицелий шляпочного гриба диплоидный» — двуядерный (n + n), а диплоидна только молодая базидия. «У грибов есть мужские и женские особи» — нет, типы спаривания. «Зигоспора мукора прорастает в мицелий» — в спорангиеносец со спорангием, после мейоза. «Мейоз у грибов происходит при образовании гамет» — нет, сразу после слияния ядер (зиготическая редукция).
Для олимпиад
Тетрадный анализ. В упорядоченной сумке нейроспоры расположение 4 : 4 (AAAAaaaa) означает расхождение аллелей в первом делении мейоза — кроссинговера между геном и центромерой не было; расположение 2 : 2 : 2 : 2 или 2 : 4 : 2 — во втором делении, кроссинговер был. Расстояние ген — центромера в сантиморганах равно половине доли сумок второго типа (половине, потому что в каждой такой тетраде рекомбинантны лишь две хроматиды из четырёх): d = ½ · (число сумок второго деления / все сумки) · 100 %.
Вероятность совместимости. Биполярная система с двумя типами: случайная пара совместима с вероятностью 1/2, споры одной сумки — тоже 1/2. Тетраполярная с nA и nB аллелями: случайная пара — (1 − 1/nA)(1 − 1/nB); для шизофиллума (300 и 80) — около 0,984; споры одной базидии — только 1/4 сочетаний, потому что из четырёх спор (A1B1, A1B2, A2B1, A2B2) совместимы лишь пары, различные по обоим локусам.
Отрицательный частотно-зависимый отбор. Редкий аллель локуса типа спаривания совместим с большей долей популяции, чем частый, и его частота растёт, пока не сравняется с остальными; поэтому аллели типов спаривания — одни из самых древних полиморфизмов: у шизофиллума линии аллелей A разошлись до разделения видов рода. Тот же механизм поддерживает аллели гистосовместимости у позвоночных и самонесовместимости у растений.
Кассетная модель. Переключение типа у дрожжей — программируемая генная конверсия: HO-эндонуклеаза делает двухцепочечный разрыв в MAT, репарация копирует донорскую кассету. Выбор донора неслучаен: клетки a копируют преимущественно HMLα, клетки α — HMRa (система «усилителя рекомбинации» на левом плече хромосомы III). Переключается только материнская клетка в G1 — асимметрия обеспечена мРНК ASH1, доставляемой в почку.
Мейотический драйв. Убийца спор в гетерозиготе Sk/sk даёт сумки с четырьмя живыми спорами, все Sk; при полной эффективности частота Sk в популяции растёт по формуле p′ = p / (p + (1 − p)/2) за поколение скрещиваний между носителями и неносителями, пока элемент не зафиксируется или не появится устойчивый аллель. У подоспоры несколько генов Spok с разной силой образуют иерархию: сильный убивает споры без него, слабый — только при отсутствии сильного.
Выстрел базидиоспоры. Капля Буллера объёмом порядка 10⁻¹⁵ л сливается с плёнкой на споре за микросекунды; импульс капли передаётся споре массой около 10⁻¹³ кг, разгоняя её до ~1 м/с; при тормозном пути 0,1 мм в воздухе среднее отрицательное ускорение a = v²/(2s) = 1/(2·10⁻⁴) = 5000 м/с² ≈ 500 g — спора останавливается, не долетев до соседней пластинки.
Задания с разбором
Задание 1
Назовите три этапа полового процесса грибов и объясните, чем их последовательность отличается от оплодотворения у животных.
Разбор
Плазмогамия — слияние цитоплазм двух клеток без слияния ядер; кариогамия — слияние ядер с образованием диплоидной клетки; мейоз — редукционное деление, возвращающее гаплоидность. У животных плазмогамия и кариогамия происходят в одном акте оплодотворения, мейоз — заранее, при образовании гамет, а диплоидная фаза — вся жизнь особи. У грибов между плазмогамией и кариогамией может пройти долгое время (дикарион у аскомицетов и базидиомицетов), а мейоз следует сразу за кариогамией, так что диплоидна лишь одна клетка — сумка, базидия, зигоспора.
Задание 2
Что такое типы спаривания и чем они отличаются от полов? Что открыл Блейксли и почему назвал штаммы «плюс» и «минус»?
Разбор
Тип спаривания — генетически заданная совместимость: половой процесс возможен между клетками с разными вариантами локуса типа спаривания; партнёры морфологически одинаковы, гамет разного размера нет, число типов может быть любым. Пол у животных — ещё и разделение на крупную яйцеклетку и мелкий сперматозоид, а полов только два. Блейксли в 1904 году обнаружил, что мукоровые плесени делятся на две группы, внешне неотличимые, но образующие зигоспоры только при встрече представителей разных групп (гетероталлизм); не найдя различий, он назвал их нейтрально — «+» и «−».
Задание 3
Сравните гомоталлизм, биполярную и тетраполярную гетероталлию: генетическая основа, доля совместимых пар среди чужих и среди спор одного плодового тела, примеры.
Разбор
Гомоталлизм: мицелий из одной споры способен к половому процессу сам с собой — оба типа спаривания в геноме (сордария, часть аспергиллов) или переключение типа (дрожжи с геном HO); вторичный гомоталлизм — двуядерные споры (шампиньон). Биполярная гетероталлия: один локус, два варианта (идиоморфа); совместимы 1/2 случайных пар и 1/2 спор одной сумки — нейроспора, мукор, криптококк. Тетраполярная: два локуса (A — гомеодоменные факторы, B — феромоны и рецепторы) со многими аллелями; совместимы почти все чужие пары (до 98 %), но лишь 1/4 спор одной базидии — шизофиллум, навозник, вёшенка.
Задание 4
Как дрожжевая клетка меняет тип спаривания? Почему переключается только материнская клетка и зачем это нужно?
Разбор
Кроме рабочего локуса MAT, в геноме есть две молчащие кассеты — HMLα и HMRa, заглушённые гетерохроматином (белки Sir). HO-эндонуклеаза вносит двухцепочечный разрыв в MAT, и репарация копирует туда содержимое противоположной кассеты: a → α или α → a. Переключается только материнская клетка в начале цикла: в дочерней клетке HO подавлен белком Ash1, мРНК которого переносится в почку. В результате после двух делений рядом оказываются пары клеток a и α, и они спариваются — колония из одной споры становится диплоидной, получая выгоды диплоидности (прикрытие вредных мутаций) и возможность мейоза.
Задание 5
Что такое идиоморфы? Какие функции выполняют продукты локуса типа спаривания у нейроспоры?
Разбор
Идиоморфы — участки ДНК, занимающие одно и то же место на хромосоме у разных типов спаривания, но не гомологичные друг другу (разные гены, разной длины), в отличие от аллелей одного гена. У нейроспоры это mat A и mat a, кодирующие разные транскрипционные факторы. Они включают гены феромонов и рецепторов, обеспечивают узнавание партнёра, запускают развитие плодового тела после оплодотворения и запрещают вегетативное слияние мицелиев разных типов (гетерокарионы A + a нежизнеспособны), чтобы ядра встречались только в половом процессе.
Задание 6
Опишите три семейства половых феромонов грибов и особенность синтеза триспоровых кислот.
Разбор
Пептиды (дрожжи, базидиомицеты): α-фактор — пептид из 13 аминокислот, a-фактор и феромоны базидиомицетов — короткие липидированные пептиды; рецепторы — белки с семью трансмембранными спиралями, сопряжённые с G-белком. Трисporовые кислоты (мукоровые) — терпеноиды из β-каротина; каждый тип спаривания синтезирует свой предшественник, выделяет его, поглощает чужой и достраивает до активного феромона — феромон образуется только при встрече обоих партнёров и заодно включает синтез каротина. Сиренин (алломицес) — сесквитерпен женских гамет, привлекающий мужские в концентрации 10⁻¹⁰ моль/л; мужские гаметы отвечают паризином.
Задание 7
Перечислите пять способов плазмогамии у грибов с примерами и расположите их в порядке, отражающем эволюцию.
Разбор
Планогамия — слияние подвижных гамет (алломицес, оогамия моноблефариса); гаметангиогамия — слияние целых гаметангиев (зигоспора мукора); гаметангиальный контакт — антеридий отдаёт ядра аскогону через трихогину (сумчатые грибы); сперматизация — неподвижные спермации (пикниоспоры ржавчины, микроконидии нейроспоры) переносятся на воспринимающие гифы; соматогамия — слияние вегетативных гиф или клеток без половых органов (шляпочные грибы, дрожжи). Эволюция шла от подвижных гамет через половые органы к их утрате: у самых сложных базидиомицетов пол задан только генами совместимости.
Задание 8
Как крючок аскомицетов и пряжка базидиомицетов обеспечивают правильное деление дикариона? Чем они различаются по судьбе?
Разбор
Верхушечная двуядерная клетка выпускает боковой вырост назад; одно ядро входит в него; оба ядра делятся синхронно с ориентацией веретён, при которой одно дочернее ядро первого партнёра остаётся в выросте, одно ядро второго — в основании, а по одному ядру каждого партнёра — в верхушечной клетке; две перегородки отделяют верхушечную клетку (a + b); вырост сливается с клеткой-основанием, возвращая ей второе ядро. У аскомицетов крючок образуется в аскогенных гифах плодового тела, и его верхушечная клетка становится сумкой (кариогамия и мейоз); у базидиомицетов пряжка остаётся на вегетативном мицелии как петелька у перегородки, а дикарион живёт годами.
Задание 9
Проследите события в сумке нейроспоры от двуядерной клетки до восьми спор. Почему споры лежат в ряд и что это даёт генетику?
Разбор
Кариогамия → мейоз I → мейоз II (четыре гаплоидных ядра) → митоз (восемь ядер) → отшнуровка восьми аскоспор. Сумка узкая, веретёна делений ориентированы вдоль неё, и ядра не меняют порядка, поэтому споры лежат в последовательности делений: первые четыре — потомки одного ядра мейоза I. Если аллели расходятся в первом делении, споры лежат 4 : 4; если во втором (был кроссинговер между геном и центромерой) — 2 : 2 : 2 : 2 или 2 : 4 : 2. Доля сумок второго типа, делённая пополам, даёт расстояние ген — центромера; тетрадный анализ позволил также увидеть генную конверсию (3 : 1) и доказать кроссинговер на стадии четырёх хроматид.
Задание 10
Как базидиоспора отделяется от базидии? Почему пластинки гриба должны быть вертикальны и как гриб это обеспечивает?
Разбор
У основания споры из выделяемых сахаров конденсируется капля Буллера, на самой споре — плёнка влаги; капля сливается с плёнкой за микросекунды, центр масс смещается, и спора срывается со стеригмы (скорость около 1 м/с, ускорение десятки тысяч g), пролетает долю миллиметра, тормозится воздухом и падает вниз между пластинками. Если пластинки наклонены, спора прилипнет к соседней, поэтому плодовое тело гравитропизмом держит пластинки вертикально, а при наклоне ножка изгибается за часы. Дождевики и трюфелевидные грибы активный выброс утратили, навозники используют аутолиз пластинок.
Задание 11
Опишите половой процесс мукора. Где проходят кариогамия и мейоз, и какие споры образуются при прорастании зигоспоры?
Разбор
Гифы мицелиев «+» и «−» под действием триспоровых кислот образуют зигофоры, растущие навстречу; их концы вздуваются и отделяются перегородками в многоядерные гаметангии; стенка между гаметангиями растворяется — гаметангиогамия; зигота одевается толстой тёмной бородавчатой стенкой — зигоспора, в которой сливаются пары ядер (кариогамия). После периода покоя зигоспора прорастает спорангиеносцем с зародышевым спорангием; мейоз происходит при прорастании, споры спорангия гаплоидны и дают мицелии одного или обоих типов спаривания.
Задание 12
Опишите цикл стеблевой ржавчины пшеницы: пять типов спор, хозяева, ядерные фазы, место кариогамии и мейоза. Почему уничтожение барбариса замедляет появление новых рас?
Разбор
Базидиоспоры (n) с проросших телиоспор заражают барбарис; на нём — пикнии со спермациями и воспринимающими гифами (n), насекомые переносят спермации между пикниями разных типов спаривания (сперматизация); образуется дикарион и эции с эциоспорами (n + n), заражающими пшеницу; на пшенице — урединии с урединиоспорами (n + n), повторяющими заражение всё лето; к осени — телии с телиоспорами, в которых происходит кариогамия (2n); весной в телиоспоре мейоз, вырастает четырёхклеточная базидия с базидиоспорами. Половой процесс (сперматизация, мейоз) идёт только на барбарисе; без него гриб размножается клонально урединиоспорами, и новые расы, преодолевающие устойчивость сортов, возникают гораздо реже.
Задание 13
Почему аспергилл, пеницилл, кандиду и криптококк считали бесполыми и как у каждого нашли половой процесс?
Разбор
Их половой процесс включается редко и в особых условиях. У возбудителя аспергиллёза (2009) и промышленного пеницилла (2013) сумки получили, сведя изоляты противоположных типов спаривания на овсяном агаре в темноте на месяцы. У кандиды (2000) спаривание показали в теле мыши между клетками, потерявшими один из генов локуса MAT и перешедшими в «матовое» состояние; полного мейоза нет — тетраплоид теряет хромосомы (парасексуальный цикл). У криптококка (2005) клетки одного типа α спариваются друг с другом с кариогамией и мейозом — однополое размножение. Подсказкой во всех случаях были целые гены мейоза и типов спаривания в геномах и следы рекомбинации в популяциях.
Задание 14
Что такое RIP и убийцы спор? Какую цену платит нейроспора за защиту от повторов?
Разбор
RIP — процесс, при котором перед мейозом дублированные участки ДНК (от нескольких сотен пар нуклеотидов) в обеих копиях засыпаются мутациями C → T и выключаются; это защита от мобильных элементов, но она делает невозможной дупликацию генов — основной путь возникновения новых генов, и геном нейроспоры почти не содержит семейств генов. Убийцы спор — хромосомные участки с геном яда и противоядия: в гетерозиготе споры, не унаследовавшие убийцу, гибнут, и из восьми аскоспор выживают четыре, все с убийцей; так элемент распространяется без пользы для носителя (мейотический драйв). У подоспоры несколько генов Spok образуют иерархию убийц.
Задание 15 (олимпиадное)
При скрещивании нейроспоры дикого типа с мутантом по гену окраски спор из 200 упорядоченных сумок 36 показали расположение второго деления (2 : 2 : 2 : 2 или 2 : 4 : 2), остальные — 4 : 4. Определите расстояние от гена до центромеры. Почему результат нужно делить пополам?
Разбор
Доля сумок второго деления: 36 / 200 = 0,18 = 18 %. Расстояние ген — центромера d = 18 % / 2 = 9 сантиморган. Делить нужно потому, что в тетраде с кроссинговером между геном и центромерой рекомбинантны только две хроматиды из четырёх: в каждой такой сумке половина спор родительского типа, половина — рекомбинантного, и частота рекомбинации (доля рекомбинантных хроматид) равна половине доли таких сумок.
Задание 16 (олимпиадное)
У шизофиллума в популяции 300 аллелей локуса A и 80 аллелей локуса B, все равной частоты. Найдите вероятность, что два случайно взятых одноядерных мицелия совместимы (должны различаться по обоим локусам). Найдите ту же вероятность для двух спор одной базидии и для биполярного гриба с двумя типами спаривания. Объясните эволюционный смысл различия.
Разбор
Случайная пара: P = (1 − 1/300)(1 − 1/80) = 0,9967 · 0,9875 ≈ 0,984, то есть 98,4 %. Споры одной базидии несут сочетания A1B1, A1B2, A2B1, A2B2; из шести возможных пар различаются по обоим локусам только две (A1B1 × A2B2 и A1B2 × A2B1): P = 2/6 = 1/3 для пары спор, или 1/4 среди всех сочетаний типов. Биполярный гриб с двумя типами: P = 1/2 и для чужих, и для родных. Тетраполярная система почти не ограничивает скрещивание с чужими мицелиями и при этом сильно ограничивает инбридинг — её смысл в сочетании доступности партнёра с запретом самооплодотворения.
Литература
- de Bary A. Vergleichende Morphologie und Biologie der Pilze, Mycetozoen und Bacterien. Leipzig: W. Engelmann, 1884.
- Ainsworth G. C. Introduction to the History of Mycology. Cambridge: Cambridge University Press, 1976.
- Blakeslee A. F. Sexual reproduction in the Mucorineae // Proceedings of the American Academy of Arts and Sciences. 1904. Vol. 40. P. 205–319.
- Kniep H. Über morphologische und physiologische Geschlechtsdifferenzierung // Verhandlungen der Physikalisch-medizinischen Gesellschaft zu Würzburg. 1920. Bd. 46. S. 1–18.
- Buller A. H. R. Researches on Fungi. Vol. IV. London: Longmans, Green and Co., 1931.
- Raper J. R. Genetics of Sexuality in Higher Fungi. New York: Ronald Press, 1966.
- Lindegren C. C. The Yeast Cell, Its Genetics and Cytology. St. Louis: Educational Publishers, 1949.
- Hicks J., Strathern J. N., Herskowitz I. Interconversion of yeast mating types III. Action of the homothallism (HO) gene in cells recovered from imposed diploidy // Genetics. 1977. Vol. 85. P. 395–405.
- Metzenberg R. L., Glass N. L. Mating type and mating strategies in Neurospora // BioEssays. 1990. Vol. 12. P. 53–59.
- Casselton L. A., Olesnicky N. S. Molecular genetics of mating recognition in basidiomycete fungi // Microbiology and Molecular Biology Reviews. 1998. Vol. 62. P. 55–70.
- O'Gorman C. M., Fuller H. T., Dyer P. S. Discovery of a sexual cycle in the opportunistic fungal pathogen Aspergillus fumigatus // Nature. 2009. Vol. 457. P. 471–474.
- Böhm J., Hoff B., O'Gorman C. M. et al. Sexual reproduction and mating-type-mediated strain development in the penicillin-producing fungus Penicillium chrysogenum // Proceedings of the National Academy of Sciences USA. 2013. Vol. 110. P. 1476–1481.
- Otto S. P. The evolutionary enigma of sex // American Naturalist. 2009. Vol. 174. P. S1–S14.
- Heitman J., Sun S., James T. Y. Evolution of fungal sexual reproduction // Mycologia. 2013. Vol. 105. P. 1–27.
- Dyer P. S., O'Gorman C. M. Sexual development and cryptic sexuality in fungi: insights from Aspergillus species // FEMS Microbiology Reviews. 2012. Vol. 36. P. 165–192.
- Ni M., Feretzaki M., Sun S., Wang X., Heitman J. Sex in fungi // Annual Review of Genetics. 2011. Vol. 45. P. 405–430.
- Webster J., Weber R. W. S. Introduction to Fungi. 3rd ed. Cambridge: Cambridge University Press, 2007.
- Alexopoulos C. J., Mims C. W., Blackwell M. Introductory Mycology. 4th ed. New York: John Wiley & Sons, 1996.
- Kronstad J. W., Staben C. Mating type in filamentous fungi // Annual Review of Genetics. 1997. Vol. 31. P. 245–276.
- Kües U. From two to many: multiple mating types in Basidiomycetes // Fungal Biology Reviews. 2015. Vol. 29. P. 126–166.
- Sonnenberg A. S. M., Baars J. J. P., Gao W., Visser R. G. F. Developments in breeding of Agaricus bisporus var. bisporus: progress made and technical and legal hurdles to take // Applied Microbiology and Biotechnology. 2017. Vol. 101. P. 1819–1829.
- Herskowitz I. Life cycle of the budding yeast Saccharomyces cerevisiae // Microbiological Reviews. 1988. Vol. 52. P. 536–553.
- Perkins D. D. Neurospora: the organism behind the molecular revolution // Genetics. 1992. Vol. 130. P. 687–701.
- Kothe E. Tetrapolar fungal mating types: sexes by the thousands // FEMS Microbiology Reviews. 1996. Vol. 18. P. 65–87.
- Austin D. J., Bu'Lock J. D., Gooday G. W. Trisporic acids: sexual hormones from Mucor mucedo and Blakeslea trispora // Nature. 1969. Vol. 223. P. 1178–1179.
- Machlis L., Nutting W. H., Rapoport H. The structure of sirenin // Journal of the American Chemical Society. 1968. Vol. 90. P. 1674–1676.
- Гарибова Л. В., Лекомцева С. Н. Основы микологии: морфология и систематика грибов и грибоподобных организмов. М.: Товарищество научных изданий КМК, 2005.
- Kendrick B. The Fifth Kingdom. 3rd ed. Newburyport: Focus Publishing, 2000.
- Deacon J. W. Fungal Biology. 4th ed. Malden: Blackwell Publishing, 2006.
- Pringle A., Patek S. N., Fischer M., Stolze J., Money N. P. The captured launch of a ballistospore // Mycologia. 2005. Vol. 97. P. 866–871.
- Fisher M. C., Henk D. A., Briggs C. J. et al. Emerging fungal threats to animal, plant and ecosystem health // Nature. 2012. Vol. 484. P. 186–194.
- Hull C. M., Raisner R. M., Johnson A. D. Evidence for mating of the "asexual" yeast Candida albicans in a mammalian host // Science. 2000. Vol. 289. P. 307–310.
- Bennett R. J., Johnson A. D. Completion of a parasexual cycle in Candida albicans by induced chromosome loss in tetraploid strains // EMBO Journal. 2003. Vol. 22. P. 2505–2515.
- Lin X., Hull C. M., Heitman J. Sexual reproduction between partners of the same mating type in Cryptococcus neoformans // Nature. 2005. Vol. 434. P. 1017–1021.
- Selker E. U., Cambareri E. B., Jensen B. C., Haack K. R. Rearrangement of duplicated DNA in specialized cells of Neurospora // Cell. 1987. Vol. 51. P. 741–752.
- Turner B. C., Perkins D. D. Spore killer, a chromosomal factor in Neurospora that kills meiotic products not containing it // Genetics. 1979. Vol. 93. P. 587–606.
- Vogan A. A., Ament-Velásquez S. L., Granger-Farbos A. et al. Combinations of Spok genes create multiple meiotic drivers in Podospora // eLife. 2019. Vol. 8. e46454.
Обсуждение
Загружаем обсуждение…