
Клетка гриба — обычная эукариотическая клетка: с ядром, митохондриями, эндоплазматической сетью, аппаратом Гольджи, рибосомами и цитоскелетом. Но перестроена она под необычную задачу — расти в длину, не двигаясь с места, всасывать растворённую пищу и при этом прокладывать себе путь сквозь почву, древесину и ткани хозяина. Поэтому у неё есть органеллы, которых нет больше ни у кого: шпиценкёрпер на верхушке гифы, полярное тельце веретена вместо центросомы, тельца Воронина у пор между клетками, трубчатые вакуоли, тянущиеся через весь мицелий. А на самых простых грибных клетках, дрожжах, человечество узнало, как работает клеточный цикл, секреция и аутофагия — три Нобелевские премии за полвека.
В статье разобраны:
- клеточная стенка и плазматическая мембрана: хитин, глюканы, эргостерол и мишени лекарств;
- верхушка гифы: шпиценкёрпер, пузырьки, цитоскелет и как клетка растёт в длину;
- ядро, закрытый митоз, полярные тельца веретена, многоядерность и движение ядер;
- митохондрии и их судьба у разных грибов: гидрогеносомы и митосомы;
- эндоплазматическая сеть, аппарат Гольджи, рибосомы, пероксисомы и тельца Воронина;
- вакуоль: лизосома, склад и транспортная сеть; липидные капли и гликоген;
- клетки без гиф: дрожжи и зооспоры;
- дрожжевая клетка как модель и что на ней открыли.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О признаках и границах царства — в статье «Что объединяет грибы», о родстве с животными — в статье «Грибы среди эукариот», о строении и жизни грибов в целом — в статье «Царство грибы», о спорах — в статье «Бесполое размножение грибов».
- Как изучали грибную клетку
- Общий план
- Клеточная стенка
- Плазматическая мембрана
- Верхушка гифы и шпиценкёрпер
- Цитоскелет
- Ядро и его деление
- Митохондрии
- ЭПС, аппарат Гольджи и рибосомы
- Пероксисомы и тельца Воронина
- Вакуоль
- Запасные вещества
- Перегородки и цитокинез
- Дрожжи и зооспоры: клетки без гиф
- Дрожжевая клетка как модель
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали грибную клетку
Гифа гриба — удобный объект для микроскопа: прозрачная трубка, в которой видно движение содержимого. Поэтому многие органеллы грибной клетки описали в XIX веке: в 1864 году Михаил Воронин заметил плотные тельца у перегородок гиф сумчатых грибов, а в 1924 году Ганс Брунсвик — тёмное пятно на самой верхушке растущей гифы, которое Манфред Гирбардт в 1957 году назвал шпиценкёрпером, «верхушечным тельцем» [1, 2]. Электронная микроскопия 1960–1970-х годов показала, что это скопление пузырьков, а подсчёты Коллинджа и Тринчи на нейроспоре — что к верхушке подходят десятки тысяч пузырьков в минуту [3].
- 1864М. Воронин описывает плотные тельца у перегородок гиф сумчатых грибов — тельца Воронина
- 1924Г. Брунсвик замечает тёмное пятно на верхушке гифы; в 1957 году М. Гирбардт называет его шпиценкёрпером
- 1971Л. Хартвелл: гены клеточного цикла (cdc) и септины — на почкующихся дрожжах
- 1974А. Коллиндж и А. Тринчи: к верхушке гифы нейроспоры подходят десятки тысяч пузырьков в минуту
- 1978С. Бартники-Гарсия: хитосомы — пузырьки, несущие хитинсинтазу
- 1980П. Новик и Р. Шекман: мутанты дрожжей sec раскрывают путь секреции
- 1986Н. Ярлетт и соавторы: у грибов рубца вместо митохондрий — гидрогеносомы
- 1992Ё. Осуми: аутофагия в вакуоли дрожжей — начало генетики аутофагии
- 1994Дрожжевые прионы: белок меняет форму и передаёт её по наследству
- 1996Геном дрожжей — первый геном эукариота
- 2000Г. Джедд и Н. Чуа: белок Hex-1 — основа тельца Воронина
- 2002Митосомы микроспоридий: митохондрии не отсутствовали, а редуцировались
- 2010Сверка стеролов у 175 видов: у зооспоровых грибов — холестерол, у поздних ветвей — эргостерол
- 201547 % жизненно важных генов дрожжей заменимы человеческими
- цитология гифы
- генетика на дрожжах
- органеллы
Вторая линия истории — дрожжи. На них Лиланд Хартвелл в 1970-х годах нашёл гены клеточного цикла и септины, Рэнди Шекман в 1980-м — гены секреторного пути, Ёсинори Осуми в 1992-м — аутофагию; в 1996 году дрожжи стали первым эукариотом с прочитанным геномом [4, 5, 6, 7]. Третья линия — органеллы, которых у грибов «не должно быть»: гидрогеносомы грибов рубца (1986), митосомы микроспоридий (2002), холестерол вместо эргостерола у зооспоровых грибов (2010) [8, 9, 10].
Общий план
У грибов два основных типа клеток: гифа — трубка, растущая верхушкой, обычно многоядерная, и дрожжевая клетка — округлая одноядерная, размножающаяся почкованием или делением. У зооспоровых грибов есть ещё подвижная зооспора со жгутиком. Внутреннее устройство у всех одно: стенка, мембрана, ядро, митохондрии, система мембран, вакуоль, цитоскелет. Различия — в пропорциях и в том, как эти части организованы в пространстве.
- Ядро с оболочкой и порамигеном компактный, 10–60 млн пар нуклеотидов
- Митохондрииплоские кристы, своя ДНК
- ЭПС и аппарат Гольджисекреция ферментов и белков стенки
- Рибосомы 80Sоколо 200 тысяч в клетке дрожжей
- Цитоскелетактин, микротрубочки, септины
- Пероксисомы, липидные капликак у животных и растений
- Хитиновая стенкакаркас, защита, узнавание
- Шпиценкёрперцентр верхушечного роста гифы
- Полярное тельце веретенавместо центросомы; митоз закрытый
- Тельца Ворониназатычки для пор септ (пецизомицеты)
- Хитосомыпузырьки с хитинсинтазой
- Трубчатые вакуолисеть для транспорта по мицелию
- Пластидыникогда не было
- Центриолитолько у зооспоровых грибов как базальные тельца
- Жгутиктолько у зооспор древних ветвей
- Фагосомыклетка со стенкой не заглатывает
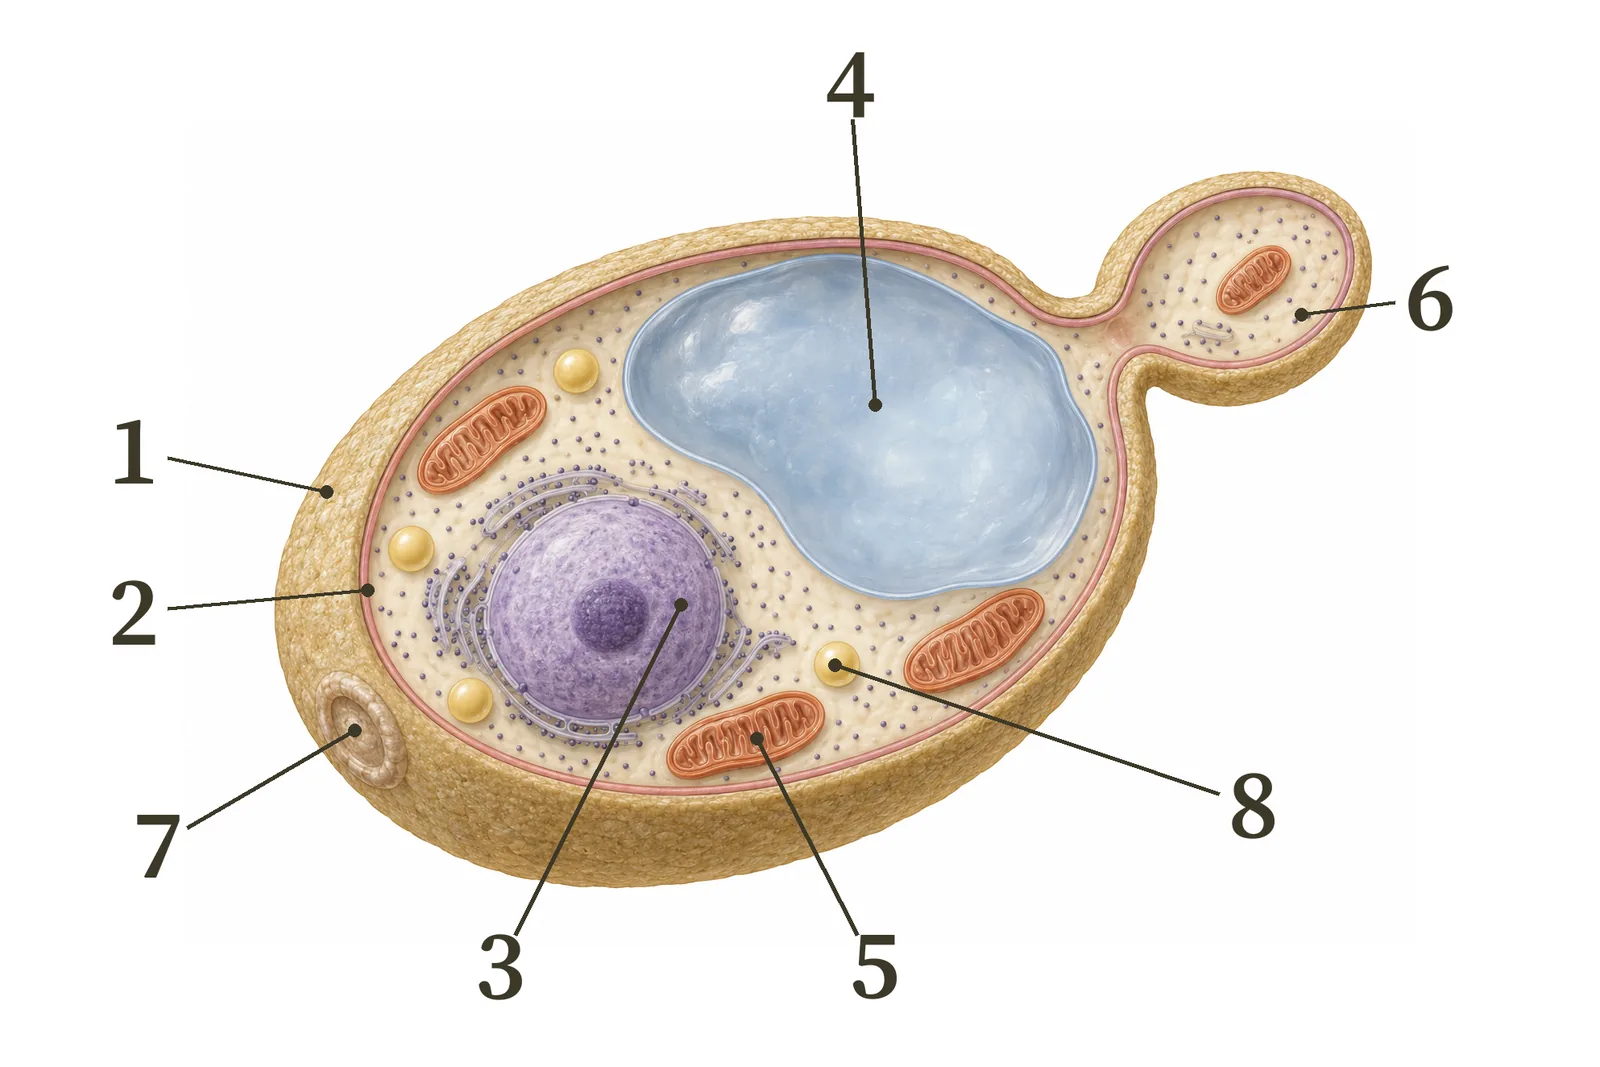
Масштаб. Клетка пекарских дрожжей — шар диаметром 5–10 мкм и объёмом около 40–60 фемтолитров (кубических микрометров), в 20–30 раз меньше клетки печени человека. В ней одно ядро, одна крупная вакуоль, несколько десятков митохондрий, объединённых в сеть, и около 200 тысяч рибосом [11]. Гифа — трубка диаметром 2–10 мкм неограниченной длины: один участок гифы нейроспоры длиной в миллиметр содержит сотни ядер.
Клеточная стенка
Стенка — внешний слой клетки, составляющий 20–40 % её сухой массы. Внутри — микрофибриллы хитина, ковалентно сшитые с β-1,3-глюканом; снаружи — β-1,6-глюкан, маннопротеины, у многих — меланин и гидрофобины [12]. Стенка держит тургор (0,5–1 МПа у обычной гифы), задаёт форму клетки, защищает от высыхания и ферментов, а белки её наружного слоя служат «визитной карточкой» для других организмов. Подробно о составе стенки — в статье «Что объединяет грибы»; здесь — о том, как стенка строится и работает.
Как стенка строится. Хитин и глюканы синтезируют ферменты, встроенные в плазматическую мембрану: хитинсинтазы и глюкансинтазы выдавливают растущие цепи наружу, где те кристаллизуются в микрофибриллы. Хитинсинтазы доставляются к мембране в особых пузырьках — хитосомах, открытых Бартники-Гарсией в 1978 году [13]. Сшивки между хитином и глюканами, а также маннопротеины добавляют ферменты, выделенные в стенку. Стенка — не мёртвая оболочка: она постоянно перестраивается, а при повреждении клетка запускает «аварийный» синтез хитина.
Меланин и гидрофобины. Меланин — тёмный полимер, который многие грибы откладывают в стенку: он защищает от ультрафиолета, окислителей и ферментов, а у возбудителя пирикуляриоза риса делает стенку аппрессория непроницаемой для глицерина, чтобы создать давление в 8 МПа [14, 15]. Гидрофобины — мелкие белки, самособирающиеся в водоотталкивающую плёнку на поверхности воздушных гиф и спор: благодаря им гифы выходят из воды в воздух, а споры не смачиваются и разносятся ветром [16].
Плазматическая мембрана
Мембрана гриба устроена как у всех эукариот — бислой фосфолипидов с белками, — но стерол в ней свой: эргостерол, а не холестерол. Эргостерол отличается двумя дополнительными двойными связями и метильной группой, делает мембрану более жёсткой и упорядоченной. Эта разница — главная мишень противогрибковых лекарств: азолы блокируют синтез эргостерола, полиены (амфотерицин, нистатин) связывают его и продырявливают мембрану [17]. У самых древних ветвей — зооспоровых грибов — основной стерол не эргостерол, а холестерол, как у животных, так что эргостерол — приобретение более поздних ветвей [10].
В мембране работают сотни белков-переносчиков: для сахаров, аминокислот, фосфата, ионов. Движущая сила — градиент протонов, который создаёт протонная АТФаза мембраны, перекачивающая H⁺ наружу: среда вокруг гриба подкисляется, а внутрь вещества входят вместе с протонами. Это главное отличие от животной клетки, где транспорт движет градиент натрия. Как у растений, грибная мембрана прижата тургором к стенке, и при плазмолизе отходит от неё.
Верхушка гифы и шпиценкёрпер
Гифа растёт только верхушкой, и именно там сосредоточена самая специфичная часть грибной клетки.
- 1клеточная стенка: у верхушки тонкая и растяжимая, дальше — толстая и затвердевшая
- 2септа с порой и двумя тельцами Воронина по сторонам
- 3ядро в старом участке гифы
- 4ядро с полярным тельцем веретена на оболочке; ядра движутся по микротрубочкам
- 5митохондрии, вытянутые вдоль гифы
- 6трубчатые вакуоли — транспорт на большие расстояния
- 7эндоплазматическая сеть вокруг ядра
- 8шпиценкёрпер — скопление пузырьков, направляющее рост
- 9эндоцитозный воротничок позади верхушки: мембрана возвращается в клетку
- 10секреторные пузырьки с ферментами и материалом стенки идут к верхушке
- 11микротрубочки — рельсы для пузырьков и ядер
Шпиценкёрпер — скопление сотен секреторных пузырьков, лежащее у самого кончика гифы. Пузырьки приходят к нему по микротрубочкам из тела гифы, а от шпиценкёрпера по коротким актиновым нитям расходятся к мембране верхушки и сливаются с ней, выбрасывая наружу ферменты и материал стенки и встраивая в мембрану новые участки с хитинсинтазами. Куда смещается шпиценкёрпер — туда поворачивает гифа; если он исчезает, рост останавливается. По сути это распределительный центр, который превращает поток пузырьков в рост в одном направлении [2, 18].
Поток огромен. У нейроспоры гифа удлиняется на 40 мкм в минуту, и, чтобы обеспечить мембраной и стенкой такую скорость, к верхушке должно подходить около 40 тысяч пузырьков в минуту [3]. Позади верхушки, на расстоянии нескольких микрометров, лежит кольцо актиновых пятен — эндоцитозный воротничок: здесь лишняя мембрана и часть белков возвращаются внутрь клетки эндоцитозом и снова направляются к верхушке. Так клетка одновременно и наращивает поверхность, и перерабатывает её [2].
Давление для роста создаёт тургор: вода входит в клетку по осмотическому градиенту, который поддерживают вакуоль и накопленные растворённые вещества, и давит на стенку. Растяжима только тонкая верхушка; старая стенка затвердевает сшивками. Поэтому гифа — как тюбик, который выдавливается с одного конца [19].
Цитоскелет
Цитоскелет гриба состоит из тех же трёх систем, что у животных: микротрубочек, актиновых нитей и септинов.
- Микротрубочки тянутся вдоль гифы и служат рельсами: по ним моторные белки кинезины везут пузырьки к верхушке, а динеины — обратно и перемещают ядра. Мутанты аспергилла с дефектным динеином не могут распределять ядра по гифе — так в 1994 году нашли роль динеина в движении ядер [20].
- Актиновые нити образуют пятна в эндоцитозном воротничке, кабели для короткого транспорта у верхушки и сократимое кольцо при образовании септы. У дрожжей актиновые кабели ведут пузырьки в растущую почку.
- Септины — белки, собирающиеся в кольца и нити; открыты Хартвеллом в 1971 году среди генов, нужных для отделения почки дрожжей [21]. У гиф септины размечают место будущей септы и точки ветвления, у дрожжей образуют кольцо на шейке почки, у возбудителя пирикуляриоза — кольцо в аппрессории, через которое прорастает проникающий отросток [22].
В гифах цитоплазма течёт — иногда со скоростью микрометров в секунду — от старых участков к растущим; вместе с ней перемещаются ядра и органеллы, а у нейроспоры даже перемешиваются ядра разных участков колонии [23].
Ядро и его деление
Ядро гриба обычно мелкое, 1–3 мкм, с оболочкой и порами, как у всех эукариот. Гаплоидный геном дрожжей — 12 млн пар нуклеотидов в 16 хромосомах; у большинства грибов геномы 20–60 млн, с короткими интронами и малым числом повторов [7, 24].
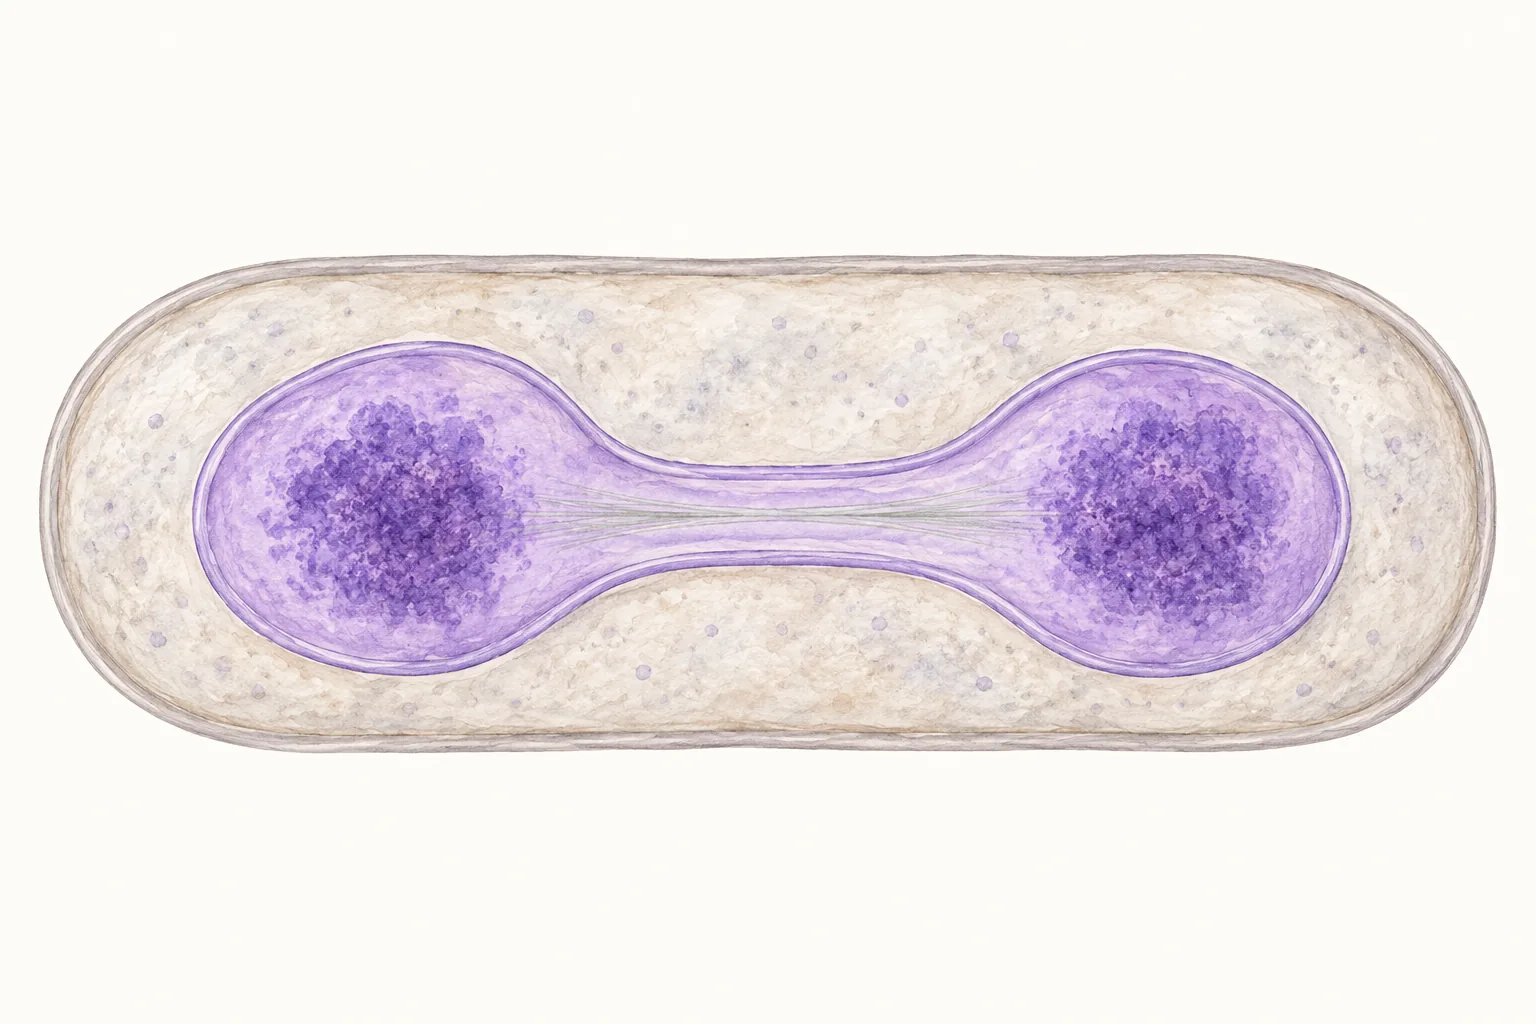
Митоз у большинства грибов закрытый: ядерная оболочка не распадается, веретено собирается внутри ядра, хромосомы расходятся к полюсам, и ядро перешнуровывается надвое. Центр организации веретена — не центросома с центриолями, а полярное тельце веретена: многослойная белковая пластинка, встроенная в ядерную оболочку. Оно удваивается раз в цикл, а его слои обращены одной стороной в нуклеоплазму (туда растут микротрубочки веретена), другой — в цитоплазму (туда — микротрубочки, по которым движется само ядро) [25, 26]. Хромосомы грибов во время митоза не конденсируются так сильно, как у животных, и под световым микроскопом деление ядра часто почти незаметно.
Многоядерность. В гифе без перегородок или с пористыми септами ядра делятся синхронно или волнами и перемещаются по микротрубочкам. У аскомицетов и базидиомицетов в клетке может лежать два генетически разных ядра — дикарион, — и при делении клетки оба ядра делятся одновременно, а у базидиомицетов особая боковая выпячка, пряжка, следит, чтобы каждая дочерняя клетка получила по одному ядру каждого типа. Это уникальный грибной способ держать два генома в одной клетке, не сливая их [27, 23].
Митохондрии
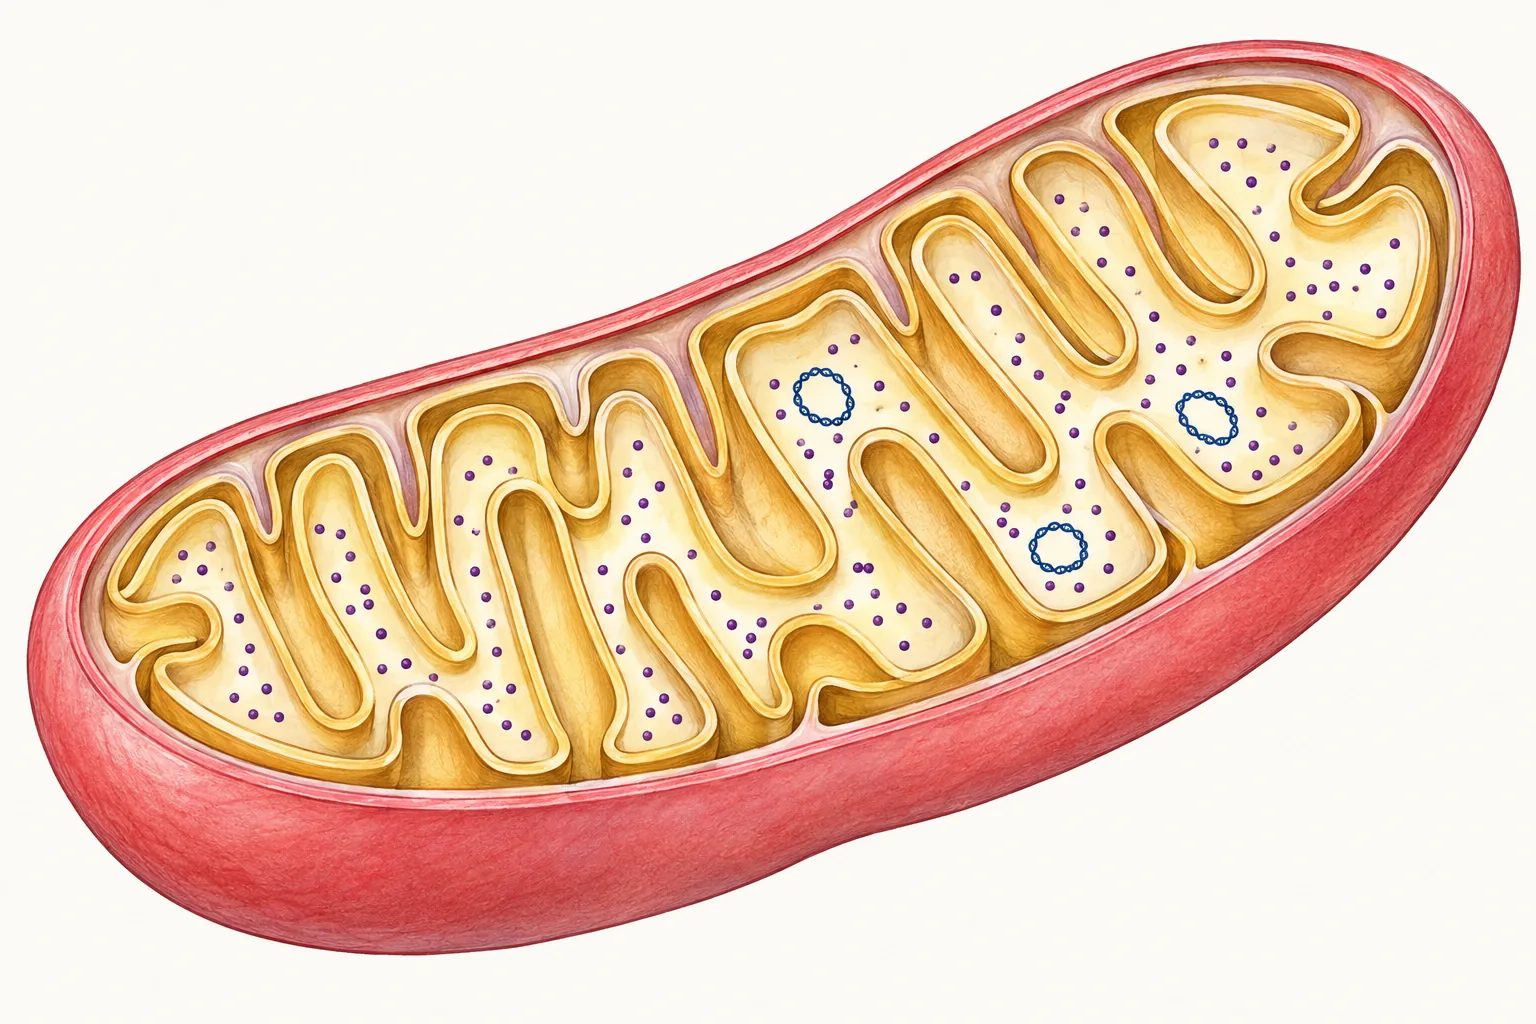
Митохондрии грибов — типичные эукариотические: две мембраны, плоские кристы, собственная ДНК (кольцевая или линейная, от 20 до 100 тысяч пар нуклеотидов) и рибосомы бактериального типа. В гифах они вытянуты вдоль оси и перемещаются по микротрубочкам, у дрожжей образуют разветвлённую сеть под мембраной, которая сливается и делится в зависимости от условий [28].
- Обычные митохондрииплоские кристы, кольцевая или линейная ДНК
- Наследованиечаще от одного родителя; у дрожжей — от обоих
- Дрожжимогут жить без дыхания — «мелкие» мутанты
- Гидрогеносомыбез ДНК и дыхательной цепи
- Что делаютпируват → ацетат, CO₂ и водород
- Гденеокаллимастиговые в рубце жвачных
- Митосомыкрошечные, без ДНК
- Что осталосьсборка железо-серных кластеров
- ЭнергияАТФ воруют у клетки хозяина
Три особенности. Во-первых, наследование: у большинства грибов митохондрии передаются от одного из партнёров, а у дрожжей — от обоих, и потом в почках случайно закрепляется один тип. Во-вторых, пекарские дрожжи могут жить без дыхания: мутанты без функциональной митохондриальной ДНК («мелкие», petite) растут на глюкозе только за счёт брожения — это одна из причин, почему дрожжи так удобны для генетики митохондрий. В-третьих, у части грибов митохондрии изменены до неузнаваемости. У грибов рубца жвачных (неокаллимастиговых), живущих без кислорода, вместо митохондрий — гидрогеносомы: органеллы без ДНК и дыхательной цепи, которые превращают пируват в ацетат, углекислый газ и водород [8]. У микроспоридий — митосомы, крошечные пузырьки без ДНК, сохранившие лишь сборку железо-серных кластеров; энергию микроспоридии воруют у клетки хозяина переносчиками АТФ [9].
ЭПС, аппарат Гольджи и рибосомы
Эндоплазматическая сеть гриба — система цистерн и трубочек, продолжающая ядерную оболочку; на шероховатой ЭПС синтезируются белки, идущие наружу и в мембраны, — в том числе все внеклеточные ферменты, которыми гриб переваривает пищу. Для осмотрофа это главный «цех»: гриб, разлагающий древесину, выделяет наружу граммы белка на литр культуры. На дрожжах Шекман в 1980 году выделил 23 гена секреторного пути (sec), мутации в которых останавливают движение белков на разных этапах, — так был описан путь ЭПС → Гольджи → мембрана, общий для всех эукариот [5].
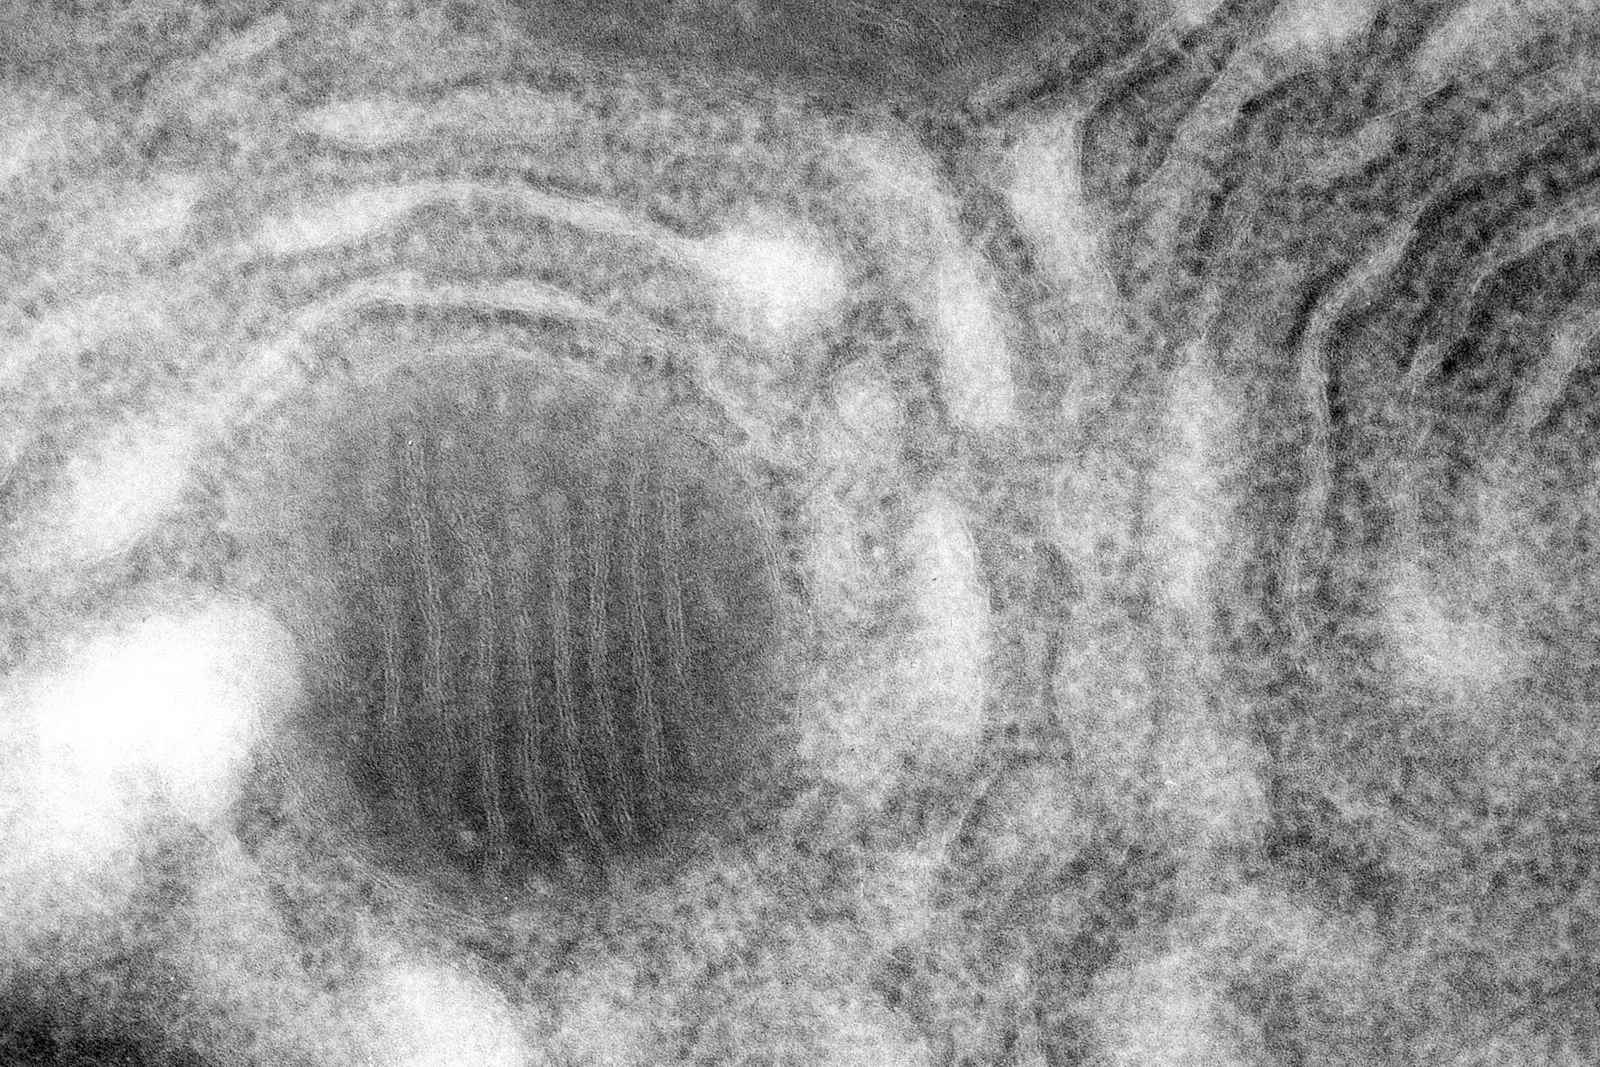
Аппарат Гольджи у грибов выглядит иначе, чем на школьных рисунках: у пекарских дрожжей и многих гиф это не стопка цистерн, а отдельные разбросанные цистерны и трубчатые сети, которые созревают одна в другую. Именно на дрожжах с их «рассыпанным» Гольджи было прямо показано созревание цистерн: одна и та же цистерна за минуты меняет набор ферментов от ранних к поздним. Функции те же, что у всех: гликозилирование белков (у грибов — преимущественно маннозой, отсюда маннопротеины стенки), сортировка в вакуоль и к мембране, упаковка пузырьков, идущих к шпиценкёрперу [2].
Рибосомы — эукариотические, 80S; в клетке дрожжей их около 200 тысяч, и при быстром росте синтез рибосом — главная статья расходов клетки. Часть ферментов, нужных грибу, синтезируется на свободных рибосомах в цитоплазме, часть — на ЭПС для выделения наружу [11].
Пероксисомы и тельца Воронина
Пероксисомы — пузырьки с ферментами окисления жирных кислот и каталазой; у грибов, растущих на жирах и спиртах (например, у дрожжей, живущих на метаноле), они занимают большую часть клетки. У грибов пероксисомы делают и то, чего нет у животных: в них проходят стадии синтеза пенициллина и части других вторичных метаболитов.
Тельца Воронина — особые пероксисомы пецизомицетов (большинства плодосумчатых и плесневых аскомицетов). Белок Hex-1 самособирается в них в плотный гексагональный кристалл; тельца сидят по сторонам поры в септе и при разрыве гифы за миллисекунды затыкают пору, не давая цитоплазме вытечь из соседних клеток [29]. Мутанты без Hex-1 при повреждении теряют содержимое целых участков мицелия. У сахаромицетов и у базидиомицетов телец Воронина нет: у первых нет и пор в септах, у вторых роль затычки выполняют другие структуры.
Вакуоль
Вакуоль — самая крупная органелла грибной клетки и самая многозадачная. Это одновременно лизосома, склад и транспортная система [30].
- Протеазы, нуклеазы, липазыкислая среда, pH около 5
- Аутофагияразборка собственных органелл при голодании
- Полифосфат, аминокислоты, ионыаргинин, кальций, цинк
- Осморегуляциятургор и объём клетки
- Обезвреживаниетяжёлые металлы, токсины
- Трубчатые вакуолисеть по всей гифе, течёт в обе стороны
- Фосфор у микоризных грибовполифосфат идёт от почвы к корню
Как лизосома, вакуоль содержит протеазы, нуклеазы, липазы и фосфатазы при pH около 5; сюда направляются на разборку изношенные белки и органеллы. Именно в вакуоли дрожжей Осуми в 1992 году увидел скопление непереваренных «аутофагических телец» у мутантов без протеаз и за несколько лет нашёл гены аутофагии — ATG, общие для всех эукариот [6]. Как склад, вакуоль хранит полифосфат, аминокислоты (прежде всего аргинин), ионы кальция, цинка, меди и обезвреживает тяжёлые металлы и токсины; как осморегулятор — набирает и отдаёт воду, поддерживая тургор.
В гифах вакуоль устроена не как единый пузырь, а как подвижная сеть трубок, тянущихся через клетки и септы и непрерывно перестраивающихся. По этой сети вещества переносятся на большие расстояния в обе стороны: у микоризных грибов полифосфат, собранный мицелием в почве, идёт по трубчатым вакуолям к корню растения [31]. Так мицелий решает задачу, которую у животных решает кровь: доставку на сантиметры и метры, где диффузия бесполезна.
Запасные вещества
Запасные вещества грибов — гликоген (гранулы в цитоплазме, как у животных), липиды в липидных каплях (у многих грибов — десятки процентов сухой массы; мортиереллы и мукоровые используют для промышленного получения полиненасыщенных жирных кислот), трегалоза — дисахарид, защищающий белки и мембраны при высыхании и заморозке, и полифосфат в вакуоли. Глицерин и другие многоатомные спирты накапливаются как осмолиты: ими клетка повышает внутреннее давление, не отравляя себя солью [32, 19].
Перегородки и цитокинез
У аскомицетов и базидиомицетов гифа разделена септами, которые врастают от стенки к центру, как закрывающаяся диафрагма, и оставляют пору. Место септы размечает кольцо септинов, затем сократимое актомиозиновое кольцо втягивает мембрану, а хитинсинтазы достраивают перегородку. У дрожжей тот же механизм отделяет почку: на шейке между материнской клеткой и почкой собирается септиновое кольцо, затем перегородка из хитина, и после разделения на материнской клетке остаётся хитиновый рубец — по числу рубцов можно сосчитать, сколько раз клетка почковалась [22, 21]. У мукоромицетов и зооспоровых грибов вегетативные гифы септ почти не образуют: ядра делятся, а клетка — нет, и получается ценоцит с сотнями ядер.
Дрожжи и зооспоры: клетки без гиф
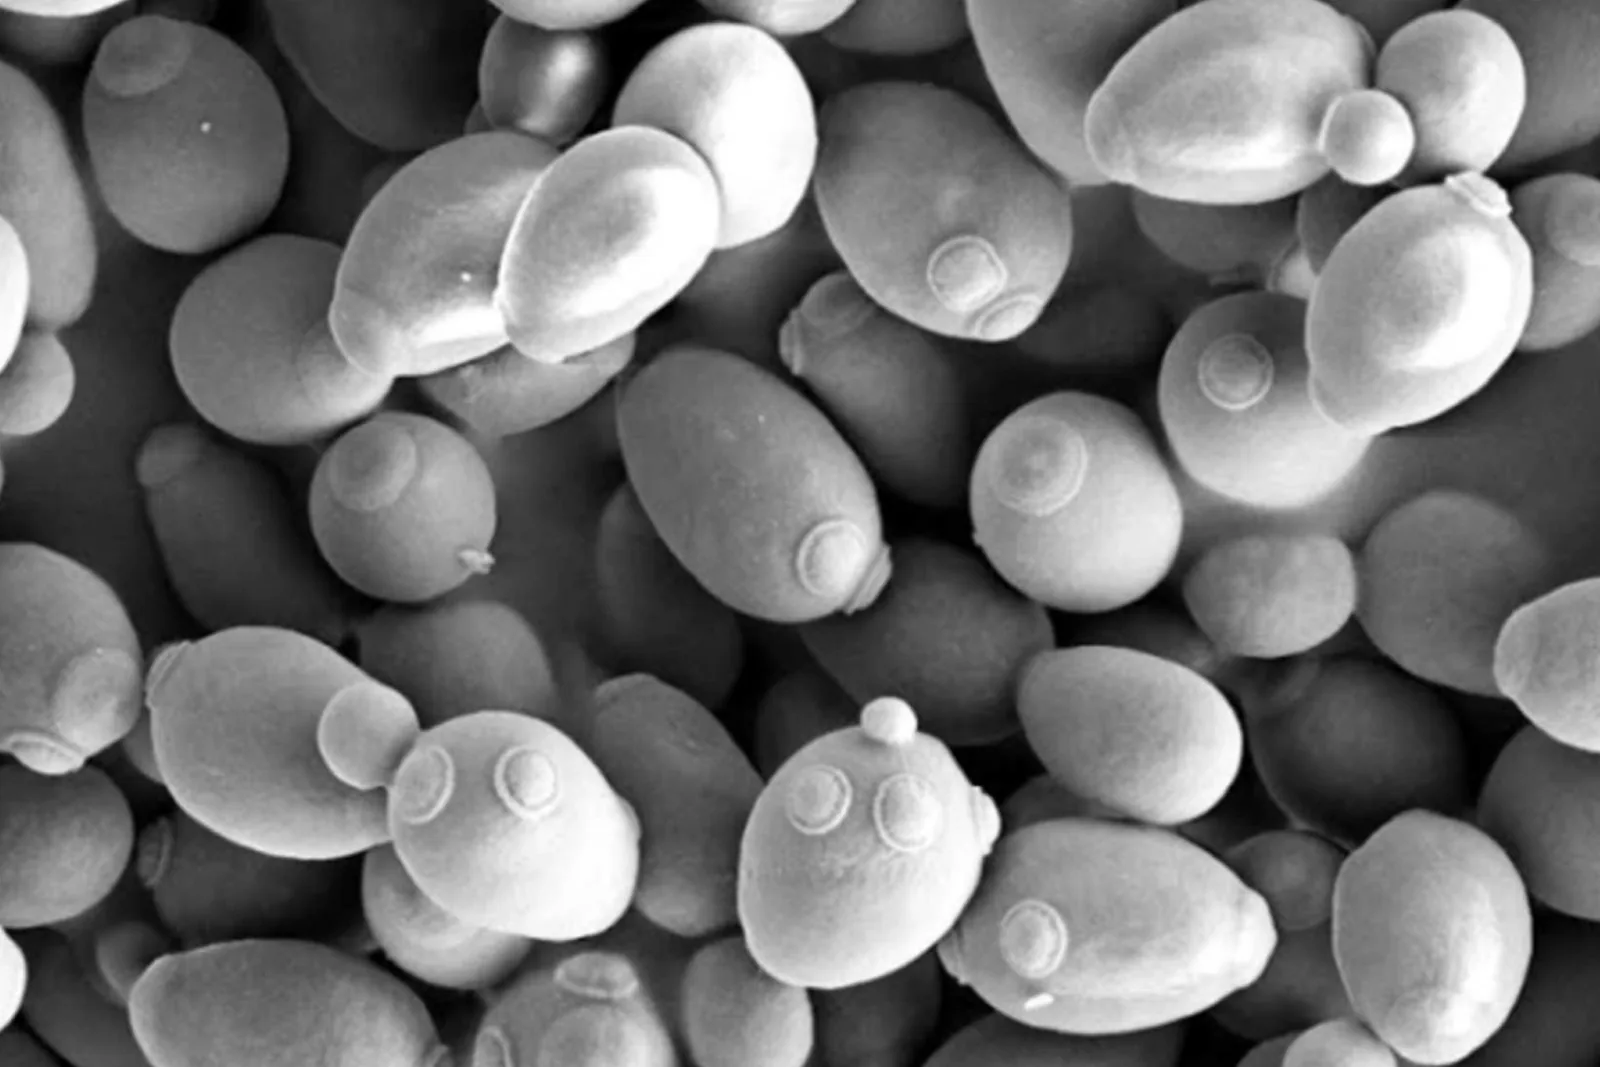
Дрожжевая клетка — гриб, отказавшийся от гифы. Пекарские дрожжи делятся почкованием: на материнской клетке вырастает почка, в неё по актиновым кабелям переносятся пузырьки, митохондрии и, после закрытого митоза, одно из дочерних ядер; почка всегда меньше матери, и у «старой» клетки накапливаются рубцы. Делящиеся дрожжи (Schizosaccharomyces) растут в длину и делятся перегородкой посередине, как бактерии, — поэтому на них удобно изучать, как клетка измеряет свой размер. Многие патогены переключаются между формами: кандида в ткани человека прорастает гифами, а в крови существует как дрожжи, и это переключение управляет её болезнетворностью [33].
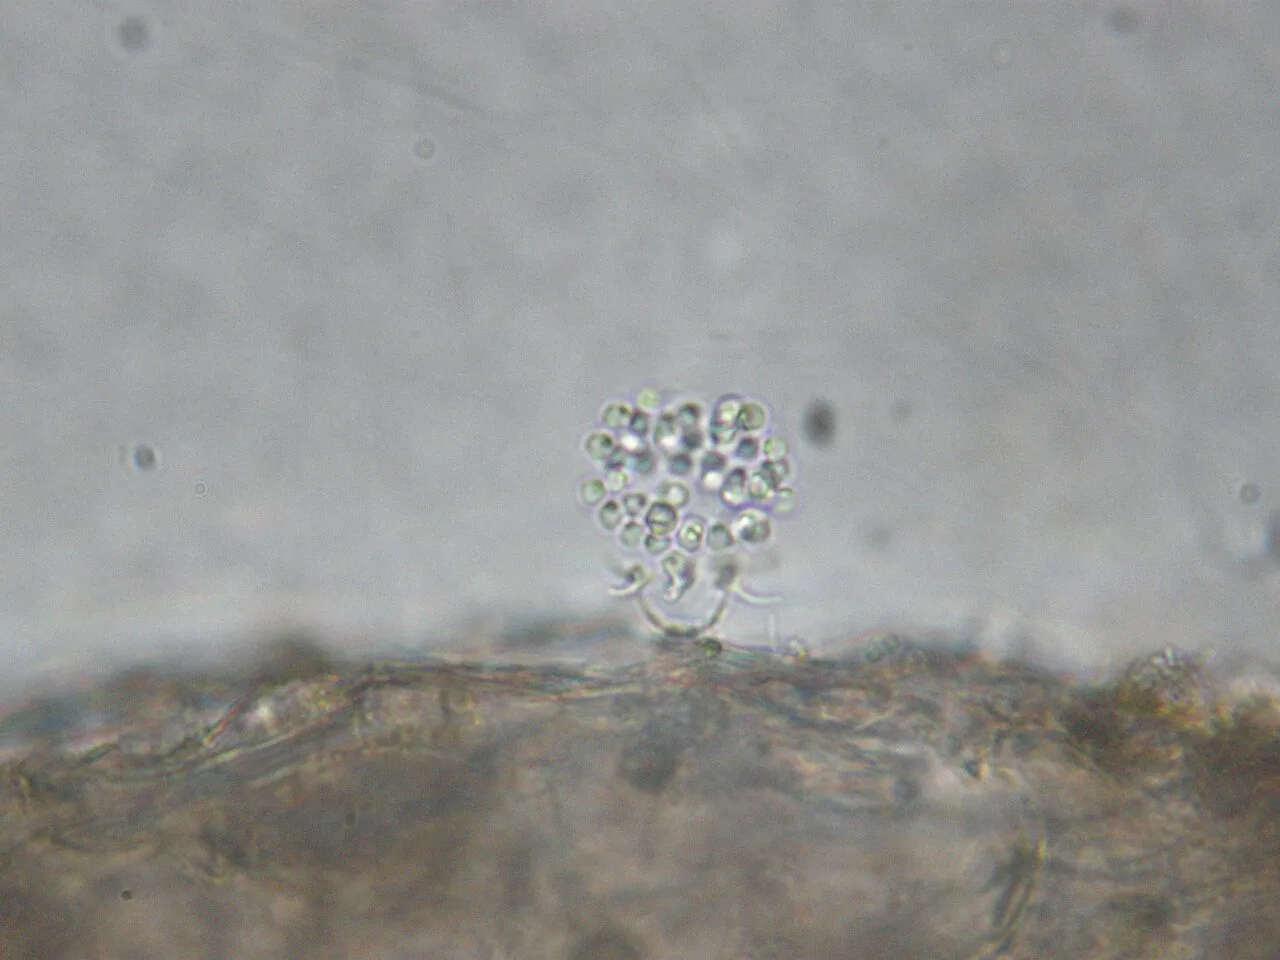
Зооспора хитридиевых и других зооспоровых грибов — единственная грибная клетка без стенки и со жгутиком. Жгутик один, задний, гладкий, с базальным тельцем из центриоли — реликт общего предка с животными. Внутри зооспоры — ядро, одна митохондрия, крупная липидная капля и рибосомы, собранные в плотное «ядерное облако»; у многих хитридиевых есть румпосома — решётчатая мембранная структура, связанная с жгутиком, и микротельце-липидный комплекс. Набор и расположение этих структур различаются по группам настолько закономерно, что в 1980 году Барр перестроил систему хитридиевых по ультраструктуре зооспор — и молекулярные древа это подтвердили [34, 35]. Проплавав часы, зооспора садится на субстрат, втягивает жгутик, одевается стенкой и прорастает.
Дрожжевая клетка как модель
Простая, быстро растущая, гаплоидная и легко изменяемая генетически, дрожжевая клетка стала тем объектом, на котором впервые разобрали основные процессы эукариотической клетки.
- Гены cdcХартвелл, 1970-е; Нобелевская премия 2001
- Септиныкольцо на шейке почки
- Мутанты secпуть секреции; Нобелевская премия 2013
- Аутофагиягены ATG; Нобелевская премия 2016
- Первый геном эукариота1996 год, около 6000 генов
- Прионыбелки, наследуемые по форме
- «Очеловеченные» дрожжи47 % жизненно важных генов заменимы
Хартвелл по размеру почки отбирал мутантов, у которых цикл останавливался в определённой точке, и так нашёл гены cdc и понятие контрольной точки (Нобелевская премия 2001 года, с Нёрсом и Хантом) [4]. Шекман по накоплению белков внутри клетки выделил мутантов секреторного пути (Нобелевская премия 2013 года, с Ротманом и Зюдхофом) [5]. Осуми в вакуолях дрожжей без протеаз увидел аутофагию и нашёл её гены (Нобелевская премия 2016 года) [6]. Рид Уикнер в 1994 году показал, что некоторые наследуемые признаки дрожжей передаются не генами, а формой белка — это дрожжевые прионы [36]. А в 2015 году почти половину жизненно важных генов дрожжей удалось заменить человеческими — клетка гриба и клетка человека устроены настолько сходно, что их детали взаимозаменяемы [37].
Что нужно знать к ЕГЭ
- клетка гриба эукариотическая: ядро, митохондрии, ЭПС, аппарат Гольджи, рибосомы, вакуоли, цитоскелет; пластид нет;
- клеточная стенка из хитина (у растений — из целлюлозы, у бактерий — из муреина); под ней — плазматическая мембрана;
- запасное вещество — гликоген (как у животных), а также капли жира; крахмала нет;
- клетки гиф у низших грибов (мукор) не разделены перегородками — мицелий неклеточный, многоядерный; у высших — разделены септами с порами; у высших грибов клетки могут содержать два ядра (дикарион);
- дрожжи — одноклеточные грибы, размножаются почкованием; клетка с одним ядром, крупной вакуолью, митохондриями;
- центриолей у большинства грибов нет, митоз идёт без разрушения ядерной оболочки;
- питание — всасывание через стенку и мембрану после выделения ферментов наружу (органеллы секреции — ЭПС и аппарат Гольджи).
Ловушки. «В клетке гриба есть хлоропласты» — нет, грибы гетеротрофы. «Стенка гриба из целлюлозы» — из хитина. «Запасное вещество гриба — крахмал» — гликоген. «Клетки гриба всегда одноядерные» — гифы мукора многоядерные, у высших грибов бывает два ядра. «Дрожжи размножаются только спорами» — главный способ — почкование. «Вакуоль есть только у растений» — у грибов вакуоль крупная и выполняет роль лизосомы.
Для олимпиад
Пузырьки и рост. Гифа нейроспоры диаметром 10 мкм удлиняется на 40 мкм/мин. Новая мембрана в минуту: π · d · ΔL = 3,14 · 10 · 40 ≈ 1260 мкм². Пузырёк диаметром 100 нм несёт мембрану площадью π · d² ≈ 0,0314 мкм². Значит, нужно 1260 / 0,0314 ≈ 40 000 пузырьков в минуту — что и наблюдали Коллиндж и Тринчи [3]. Избыток мембраны (пузырёк приносит её больше, чем нужно по площади) возвращается эндоцитозным воротничком.
Диффузия против течения. Время диффузии на расстояние x: t ≈ x²/(2D). Для малой молекулы (D ≈ 10⁻⁹ м²/с) на 1 см: t ≈ 10⁻⁴ / (2·10⁻⁹) = 5·10⁴ с ≈ 14 ч; для белка (D ≈ 10⁻¹⁰) — почти 6 суток. Течение цитоплазмы со скоростью 5 мкм/с проходит 1 см за 2000 с ≈ 33 мин. Поэтому мицелий, тянущийся на сантиметры и метры, не может обойтись диффузией и использует ток цитоплазмы, трубчатые вакуоли и транспорт по микротрубочкам.
Полярное тельце веретена дрожжей — многослойная пластинка около 150 нм в диаметре, встроенная в ядерную оболочку; её центральная пластинка закреплена в оболочке, наружная организует цитоплазматические микротрубочки, внутренняя — ядерные. Удваивается в G1, как центросома, но консервативным способом: новое тельце собирается на «полумосте» рядом со старым [25].
Стеролы по ветвям. У зооспоровых грибов основной стерол — холестерол и другие Δ5-стеролы, у мукоромицетов — 24-метилстеролы, у дикарий — эргостерол; гломеромицеты эргостерола почти не содержат, поэтому измерять их биомассу в почве по эргостеролу нельзя [10].
Протонная АТФаза мембраны (Pma1 у дрожжей) — самый массовый белок плазмалеммы, до 20 % её белка; она тратит до четверти всего АТФ клетки, создавая мембранный потенциал около −150 мВ и градиент pH, за счёт которых работают симпортёры сахаров и аминокислот с H⁺.
Гидрогеносомы и митосомы — два независимых исхода редукции митохондрий у анаэробов и внутриклеточных паразитов; оба сохраняют двойную мембрану и импорт белков по митохондриальному типу, а митосомы — сборку железо-серных кластеров, единственную функцию, без которой эукариотическая клетка, по-видимому, не обходится.
Задания с разбором
Задание 1
Перечислите органеллы грибной клетки, общие со всеми эукариотами, и назовите структуры, характерные только для грибов. Чего в грибной клетке нет?
Разбор
Общие: ядро с оболочкой и порами, митохондрии, эндоплазматическая сеть, аппарат Гольджи, рибосомы 80S, пероксисомы, вакуоль, цитоскелет из микротрубочек, актина и септинов, липидные капли. Только у грибов: хитиновая клеточная стенка, шпиценкёрпер, полярные тельца веретена, тельца Воронина (пецизомицеты), хитосомы, трубчатые вакуоли, гидрогеносомы у грибов рубца. Нет пластид, центриолей (кроме зооспоровых грибов) и жгутиков (кроме зооспор), нет фагосом.
Задание 2
Как строится клеточная стенка гриба? Какую роль в этом играют хитосомы, меланин и гидрофобины?
Разбор
Хитинсинтазы и глюкансинтазы встроены в плазматическую мембрану и выдавливают растущие цепи хитина и β-глюкана наружу, где те собираются в микрофибриллы; хитинсинтазы доставляются к мембране в пузырьках-хитосомах. Сшивки между полимерами и маннопротеины добавляют ферменты, выделенные в стенку. Меланин откладывается в стенку как защита от ультрафиолета, окислителей и ферментов и делает стенку непроницаемой (аппрессорий). Гидрофобины — самособирающиеся белки, образующие водоотталкивающую плёнку на воздушных гифах и спорах.
Задание 3
Чем плазматическая мембрана гриба отличается от мембраны клетки животного и как это используют в медицине? Что движет транспорт веществ через мембрану гриба?
Разбор
Стерол мембраны — эргостерол вместо холестерола; азолы блокируют его синтез, полиены связывают его в мембране и делают её проницаемой. Транспорт через мембрану гриба движет градиент протонов, создаваемый протонной АТФазой (у животных — градиент натрия, создаваемый натрий-калиевой АТФазой): вещества входят в клетку симпортом с H⁺, а среда вокруг гриба подкисляется.
Задание 4
Что такое шпиценкёрпер и как он обеспечивает рост гифы? Что происходит с мембраной позади верхушки?
Разбор
Шпиценкёрпер — скопление секреторных пузырьков у верхушки гифы. Пузырьки приходят к нему по микротрубочкам, а от него по актиновым нитям расходятся к мембране верхушки, сливаются с ней и выделяют ферменты и материал стенки; смещение шпиценкёрпера поворачивает гифу. Тургор растягивает тонкую верхушку, старая стенка затвердевает. Позади верхушки лежит эндоцитозный воротничок — кольцо актиновых пятен, где избыток мембраны и часть белков возвращаются в клетку и снова направляются к верхушке.
Задание 5
Как устроен митоз у большинства грибов? Что такое полярное тельце веретена?
Разбор
Митоз закрытый: ядерная оболочка сохраняется, веретено собирается внутри ядра, хромосомы (слабо конденсированные) расходятся, ядро вытягивается и перешнуровывается надвое. Полярное тельце веретена — многослойная белковая пластинка, встроенная в ядерную оболочку; оно организует и ядерные микротрубочки веретена, и цитоплазматические, по которым перемещается ядро; удваивается раз в цикл. Центриолей у наземных грибов нет.
Задание 6
Какие три варианта судьбы митохондрий известны у грибов? Почему открытие митосом изменило представления о микроспоридиях?
Разбор
Обычные митохондрии с плоскими кристами и своей ДНК (большинство грибов); гидрогеносомы грибов рубца — органеллы без ДНК и дыхательной цепи, превращающие пируват в ацетат, CO₂ и водород; митосомы микроспоридий — крошечные пузырьки без ДНК, сохранившие сборку железо-серных кластеров. Микроспоридий считали древнейшими эукариотами, никогда не имевшими митохондрий; митосомы (2002) показали, что митохондрии у них были и редуцировались при паразитизме, а их простота — вторичная.
Задание 7
В чём особенности аппарата Гольджи у грибов и что на дрожжах было показано о его работе?
Разбор
У пекарских дрожжей и многих гиф аппарат Гольджи — не стопка цистерн, а отдельные рассеянные цистерны и трубчатые сети. На дрожжах прямо показано созревание цистерн: одна и та же цистерна за минуты меняет набор ферментов от ранних к поздним. Функции обычные: гликозилирование (преимущественно маннозой — отсюда маннопротеины стенки), сортировка белков в вакуоль и к мембране, упаковка пузырьков для шпиценкёрпера. На дрожжах Шекман выделил 23 гена sec, описав путь ЭПС → Гольджи → мембрана.
Задание 8
Что такое тельца Воронина, у каких грибов они есть и что случится с мицелием без них?
Разбор
Тельца Воронина — особые пероксисомы с кристаллом белка Hex-1, лежащие по сторонам поры септы у пецизомицетов (большинства плодосумчатых и плесневых аскомицетов). При разрыве гифы ток вытекающей цитоплазмы прижимает тельце к поре и закупоривает её за миллисекунды, изолируя повреждённую клетку. Без них (мутанты hex-1) при повреждении цитоплазма вытекает из целых участков мицелия. У сахаромицетов их нет (нет и пор), у базидиомицетов поры закрывают другие структуры.
Задание 9
Назовите функции вакуоли гриба. Чем вакуоль гифы отличается от вакуоли дрожжей и как это связано с транспортом?
Разбор
Функции: переваривание (протеазы, нуклеазы, липазы при pH около 5; аутофагия), запас полифосфата, аминокислот, ионов; обезвреживание тяжёлых металлов и токсинов; осморегуляция и поддержание тургора. У дрожжей вакуоль — один крупный пузырь; в гифах — подвижная сеть трубок, проходящая через клетки и септы, по которой вещества (например, полифосфат у микоризных грибов) переносятся на большие расстояния в обе стороны, чего диффузия обеспечить не может.
Задание 10
Как образуется септа в гифе и как отделяется почка у дрожжей? Как узнать возраст дрожжевой клетки?
Разбор
Место септы размечает кольцо септинов; сократимое актомиозиновое кольцо втягивает мембрану от стенки к центру, хитинсинтазы достраивают перегородку, в центре остаётся пора. У дрожжей на шейке между материнской клеткой и почкой собирается септиновое кольцо, затем хитиновая перегородка; после разделения на материнской клетке остаётся хитиновый рубец. Число рубцов равно числу делений — так определяют репликативный возраст клетки.
Задание 11
Опишите строение зооспоры хитридиевого гриба. Почему ультраструктуру зооспор используют в систематике?
Разбор
Зооспора — клетка без стенки с одним задним гладким жгутиком, базальное тельце которого — центриоль; внутри — ядро, одна митохондрия, крупная липидная капля, рибосомы, собранные в плотное скопление, у многих — румпосома (решётчатая мембранная структура у жгутика) и микротельце-липидный комплекс. Взаимное расположение этих структур постоянно внутри группы и различно между группами, поэтому Барр в 1980 году перестроил по нему систему хитридиевых, и молекулярные данные подтвердили его деление: признак отражает родство.
Задание 12
Какие открытия, сделанные на дрожжевой клетке, отмечены Нобелевскими премиями, и почему дрожжи оказались удобным объектом?
Разбор
Гены клеточного цикла и контрольные точки (Хартвелл, 2001, с Нёрсом и Хантом); гены секреторного пути sec и механизм везикулярного транспорта (Шекман, 2013, с Ротманом и Зюдхофом); гены аутофагии ATG (Осуми, 2016). Удобство: гаплоидная клетка (мутация проявляется сразу), быстрый рост на простой среде, размер почки показывает стадию цикла, легко получать и картировать мутантов, геном мал и прочитан первым среди эукариотов, большинство основных генов имеют человеческие гомологи.
Задание 13
Сравните клетку гриба с клеткой растения и клеткой животного по пяти признакам.
Разбор
Стенка: хитин — целлюлоза — нет. Запас: гликоген — крахмал — гликоген. Пластиды: нет — есть — нет. Митоз и центр веретена: закрытый, полярное тельце — открытый, без центриолей — открытый, центросома с центриолями. Вакуоль: крупная, лизосомная и транспортная — крупная центральная, тургорная — мелкие, лизосомы отдельно. Движущая сила транспорта через мембрану: градиент H⁺ — градиент H⁺ — градиент Na⁺. Стерол мембраны: эргостерол — ситостерол и стигмастерол — холестерол.
Задание 14
Что такое дикарион и как клетка удерживает два ядра, не давая им слиться и не теряя ни одно при делении?
Разбор
Дикарион — клетка с двумя генетически разными гаплоидными ядрами, возникшая после слияния клеток двух мицелиев без слияния ядер (аскомицеты, базидиомицеты). При делении оба ядра делятся синхронно; у базидиомицетов боковая выпячка — пряжка — принимает одно из дочерних ядер и переносит его в заднюю клетку, так что каждая дочерняя клетка получает по ядру каждого типа. Долипоровые септы агарикомицетов не пропускают ядра между клетками, сохраняя соотношение. Слияние ядер происходит только в базидии или сумке перед мейозом.
Задание 15 (олимпиадное)
Гифа диаметром 10 мкм удлиняется на 40 мкм в минуту. Секреторный пузырёк имеет диаметр 100 нм. Сколько пузырьков в минуту должно сливаться с мембраной верхушки, чтобы обеспечить прирост площади мембраны? Сколько — если пузырёк несёт ещё и материал стенки толщиной 0,1 мкм, а объём пузырька целиком идёт на стенку?
Разбор
Прирост боковой поверхности: S = π · d · ΔL = 3,14 · 10 · 40 ≈ 1260 мкм²/мин. Площадь мембраны пузырька: π · d² = 3,14 · (0,1)² ≈ 0,0314 мкм². Нужно 1260 / 0,0314 ≈ 40 000 пузырьков в минуту. Объём новой стенки: S · h = 1260 · 0,1 ≈ 126 мкм³; объём пузырька π d³/6 ≈ 5,2·10⁻⁴ мкм³; на стенку потребовалось бы 126 / 5,2·10⁻⁴ ≈ 240 000 пузырьков. Поскольку материал стенки доставляется в концентрированном виде и достраивается снаружи ферментами, реальная потребность ближе к первой оценке — около 40 000, что совпадает с подсчётами Коллинджа и Тринчи.
Задание 16 (олимпиадное)
Оцените время диффузии малой молекулы (D = 10⁻⁹ м²/с) и белка (D = 10⁻¹⁰ м²/с) на 1 см вдоль гифы по формуле t = x²/(2D). Сравните с переносом током цитоплазмы со скоростью 5 мкм/с. Какой вывод о строении мицелия отсюда следует?
Разбор
x = 10⁻² м, x² = 10⁻⁴ м². Малая молекула: t = 10⁻⁴ / (2·10⁻⁹) = 5·10⁴ с ≈ 14 ч. Белок: t = 10⁻⁴ / (2·10⁻¹⁰) = 5·10⁵ с ≈ 5,8 суток. Течение: 10⁻² м / (5·10⁻⁶ м/с) = 2000 с ≈ 33 мин. Диффузия на сантиметры непригодна, поэтому мицелий — не набор изолированных клеток, а система с током цитоплазмы, трубчатыми вакуолями и транспортом по микротрубочкам через поры септ; изоляция участков (тельца Воронина) включается лишь при повреждении.
Литература
- Girbardt M. Der Spitzenkörper von Polystictus versicolor // Planta. 1957. Vol. 50. P. 47–59.
- Steinberg G., Peñalva M. A., Riquelme M., Wösten H. A., Harris S. D. Cell biology of hyphal growth // Microbiology Spectrum. 2017. Vol. 5. FUNK-0034-2016.
- Collinge A. J., Trinci A. P. J. Hyphal tips of wild-type and spreading colonial mutants of Neurospora crassa // Archives of Microbiology. 1974. Vol. 99. P. 353–368.
- Hartwell L. H., Culotti J., Pringle J. R., Reid B. J. Genetic control of the cell division cycle in yeast // Science. 1974. Vol. 183. P. 46–51.
- Novick P., Field C., Schekman R. Identification of 23 complementation groups required for post-translational events in the yeast secretory pathway // Cell. 1980. Vol. 21. P. 205–215.
- Takeshige K., Baba M., Tsuboi S., Noda T., Ohsumi Y. Autophagy in yeast demonstrated with proteinase-deficient mutants and conditions for its induction // Journal of Cell Biology. 1992. Vol. 119. P. 301–311.
- Goffeau A., Barrell B. G., Bussey H. et al. Life with 6000 genes // Science. 1996. Vol. 274. P. 546–567.
- Yarlett N., Orpin C. G., Munn E. A., Yarlett N. C., Greenwood C. A. Hydrogenosomes in the rumen fungus Neocallimastix patriciarum // Biochemical Journal. 1986. Vol. 236. P. 729–739.
- Williams B. A. P., Hirt R. P., Lucocq J. M., Embley T. M. A mitochondrial remnant in the microsporidian Trachipleistophora hominis // Nature. 2002. Vol. 418. P. 865–869.
- Weete J. D., Abril M., Blackwell M. Phylogenetic distribution of fungal sterols // PLoS ONE. 2010. Vol. 5. e10899.
- Milo R., Phillips R. Cell Biology by the Numbers. New York: Garland Science, 2016.
- Gow N. A. R., Latge J.-P., Munro C. A. The fungal cell wall: structure, biosynthesis, and function // Microbiology Spectrum. 2017. Vol. 5. FUNK-0035-2016.
- Bartnicki-Garcia S., Bracker C. E., Reyes E., Ruiz-Herrera J. Isolation of chitosomes from taxonomically diverse fungi and synthesis of chitin microfibrils in vitro // Experimental Mycology. 1978. Vol. 2. P. 173–192.
- Eisenman H. C., Casadevall A. Synthesis and assembly of fungal melanin // Applied Microbiology and Biotechnology. 2012. Vol. 93. P. 931–940.
- Howard R. J., Ferrari M. A., Roach D. H., Money N. P. Penetration of hard substrates by a fungus employing enormous turgor pressures // Proceedings of the National Academy of Sciences USA. 1991. Vol. 88. P. 11281–11284.
- Wösten H. A. B. Hydrophobins: multipurpose proteins // Annual Review of Microbiology. 2001. Vol. 55. P. 625–646.
- Odds F. C., Brown A. J. P., Gow N. A. R. Antifungal agents: mechanisms of action // Trends in Microbiology. 2003. Vol. 11. P. 272–279.
- Riquelme M., Aguirre J., Bartnicki-García S. et al. Fungal morphogenesis, from the polarized growth of hyphae to complex reproduction and infection structures // Microbiology and Molecular Biology Reviews. 2018. Vol. 82. e00068-17.
- Lew R. R. How does a hypha grow? The biophysics of pressurized growth in fungi // Nature Reviews Microbiology. 2011. Vol. 9. P. 509–518.
- Xiang X., Beckwith S. M., Morris N. R. Cytoplasmic dynein is involved in nuclear migration in Aspergillus nidulans // Proceedings of the National Academy of Sciences USA. 1994. Vol. 91. P. 2100–2104.
- Hartwell L. H. Genetic control of the cell division cycle in yeast. IV. Genes controlling bud emergence and cytokinesis // Experimental Cell Research. 1971. Vol. 69. P. 265–276.
- Gladfelter A. S. Control of filamentous fungal cell shape by septins and formins // Nature Reviews Microbiology. 2006. Vol. 4. P. 223–229.
- Roper M., Ellison C., Taylor J. W., Glass N. L. Nuclear and genome dynamics in multinucleate ascomycete fungi // Current Biology. 2011. Vol. 21. P. R786–R793.
- Naranjo-Ortiz M. A., Gabaldón T. Fungal evolution: cellular, genomic and metabolic complexity // Biological Reviews. 2020. Vol. 95. P. 1198–1232.
- Jaspersen S. L., Winey M. The budding yeast spindle pole body: structure, duplication, and function // Annual Review of Cell and Developmental Biology. 2004. Vol. 20. P. 1–28.
- Sazer S., Lynch M., Needleman D. Deciphering the evolutionary history of open and closed mitosis // Current Biology. 2014. Vol. 24. P. R1099–R1103.
- Webster J., Weber R. W. S. Introduction to Fungi. 3rd ed. Cambridge: Cambridge University Press, 2007.
- Basse C. W. Mitochondrial inheritance in fungi // Current Opinion in Microbiology. 2010. Vol. 13. P. 712–719.
- Jedd G., Chua N.-H. A new self-assembled peroxisomal vesicle required for efficient resealing of the plasma membrane // Nature Cell Biology. 2000. Vol. 2. P. 226–231.
- Klionsky D. J., Herman P. K., Emr S. D. The fungal vacuole: composition, function, and biogenesis // Microbiological Reviews. 1990. Vol. 54. P. 266–292.
- Ashford A. E., Allaway W. G. The role of the motile tubular vacuole system in mycorrhizal fungi // Plant and Soil. 2002. Vol. 244. P. 177–187.
- Deacon J. W. Fungal Biology. 4th ed. Malden: Blackwell Publishing, 2006.
- Sudbery P. E. Growth of Candida albicans hyphae // Nature Reviews Microbiology. 2011. Vol. 9. P. 737–748.
- Barr D. J. S. An outline for the reclassification of the Chytridiales, and for a new order, the Spizellomycetales // Canadian Journal of Botany. 1980. Vol. 58. P. 2380–2394.
- Alexopoulos C. J., Mims C. W., Blackwell M. Introductory Mycology. 4th ed. New York: John Wiley & Sons, 1996.
- Wickner R. B. [URE3] as an altered URE2 protein: evidence for a prion analog in Saccharomyces cerevisiae // Science. 1994. Vol. 264. P. 566–569.
- Kachroo A. H., Laurent J. M., Yellman C. M. et al. Systematic humanization of yeast genes reveals conserved functions and genetic modularity // Science. 2015. Vol. 348. P. 921–925.
Обсуждение
Загружаем обсуждение…