
Что общего у дрожжей в тесте, плесени на хлебе, белого гриба под берёзой, ржавчины на пшенице и паразита, живущего внутри клетки водоросли и не имеющего даже клеточной стенки? Все они — грибы. Царство Fungi объединяет организмы, различающиеся размером в миллион раз и способом жизни во всём, и всё же микологи уверенно отличают гриб от не-гриба — а молекулярные данные последних двадцати лет показали, что интуиция их почти не подводила, за несколькими поучительными исключениями.
В статье разобраны:
- как менялось определение гриба — от «растения без хлорофилла» до ветви древа жизни;
- признаки, которые объединяют грибы: клеточная стенка, осмотрофное питание, гифы, споры, особенности ядра и обмена веществ;
- какие из этих признаков уникальны, а какие грибы делят с животными или приобрели не один раз;
- границы царства на 2026 год: кто внутри, кто снаружи и кто на самой границе;
- что грибы потеряли и приобрели на своём пути от одноклеточного предка;
- спорные случаи: микроспоридии, розелла, афелиды, дрожжи, лишайники.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О месте грибов среди эукариот и родстве с животными — в статье «Грибы среди эукариот», о системе отделов — в статьях «Голомикоты» и «Настоящие грибы», о науке о грибах — в статье «Что изучает микология».
- Как менялось определение гриба
- Два определения: по образу жизни и по родству
- Признаки грибов
- Клеточная стенка
- Осмотрофное питание
- Гифы и мицелий
- Перегородки и поры
- Ядро, деление и обмен веществ
- Споры и жизненные циклы
- Какие признаки уникальны
- Границы царства на 2026 год
- У основания древа: афелиды, розелла, микроспоридии
- Кто не гриб
- Что грибы потеряли и приобрели
- Спорные случаи
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как менялось определение гриба
Для Линнея гриб был растением, лишённым цветков и листьев, и определение держалось на том, чего у гриба нет. Антон де Бари в 1860-х годах первым описал грибы как особую группу со своим планом строения — мицелием из гиф, — и первым заметил, что «водяные плесени» и фитофтора устроены иначе, но всё же оставил их среди грибов. Полтора века определение гриба уточнялось шаг за шагом: сначала по строению, потом по химии клеточной стенки, затем по генам [1, 2].
- 1753К. Линней: грибы — растения без цветков и листьев
- 1866А. де Бари: мицелий из гиф — общий план строения грибов; «водяные плесени» устроены иначе
- 1968С. Бартники-Гарсия: по химии стенки грибы делятся на типы; у оомицетов целлюлоза, а не хитин
- 1969Р. Уиттекер: грибы — царство, определяемое всасывающим питанием
- 1981Т. Кавалье-Смит переносит оомицетов к бурым водорослям
- 1993Молекулярные древа: грибы — сёстры животных
- 2006Т. Джеймс и соавторы: древо грибов по шести генам; хитридиевые и «зигомицеты» — не единые группы
- 2007Классификация 67 микологов: ветви царства — по родству, а не по форме
- 2011Криптомицеты: грибы без хитиновой стенки на питающейся стадии, найденные по ДНК из воды и почвы
- 2013Микроспоридии — родня розеллы и грибы у основания древа
- 2014С. Карпов и соавторы: афелиды, розеллиды и микроспоридии — опистоспоридии
- 2016Геномы разделяют «зигомицеты» на мукоромицетов и зоопагомицетов
- 2018Л. Тедерсоо и соавторы: 18 отделов, опистоспоридии — внутри царства
- 2021Санхитриевые — новый отдел; жгутик утрачен не менее четырёх раз; древо по 1644 геномам
- 2023Афелиды — ближайшая родня грибов; найдены молекулярные синапоморфии «афелиды + грибы»
- строение
- химия и питание
- молекулярные древа
- граница царства
Поворотный момент — работы Сальвадора Бартники-Гарсии 1960-х годов. Он показал, что по составу клеточной стенки грибы делятся на несколько химических типов и что у оомицетов стенка построена из целлюлозы, а не из хитина. Это был первый прямой довод, что «водяные плесени» — не грибы [3]. В 1969 году Уиттекер выделил грибы в царство по способу питания [4], в 1981 году Кавалье-Смит перенёс оомицетов к бурым водорослям, а в 1987-м объединил грибы с животными в опистоконтов [5]. Молекулярные древа 1993 года подтвердили родство с животными [6], а шестигенное древо 2006 года и классификация 2007 года впервые описали ветви внутри царства по родству, а не по форме [7, 8].
Самые неожиданные открытия пришлись на 2010-е годы. В 2011 году в пробах пресной воды и почвы обнаружили огромное разнообразие ДНК неизвестных организмов, родственных паразиту розелле, — их назвали криптомицетами, «скрытыми грибами», и оказалось, что у них нет хитиновой стенки на питающейся стадии [9]. В 2013 году геномы показали, что микроспоридии — паразиты, которых сто лет считали простейшими, — ближайшие родственники розеллы [10]. В 2014 году российские протистологи во главе с Сергеем Карповым описали афелидов и предложили объединить их с розеллидами и микроспоридиями в надтип опистоспоридий [11]. Граница царства сдвинулась вниз по древу, к организмам, которые заглатывают пищу, как амёбы.
Два определения: по образу жизни и по родству
Сегодня у слова «гриб» два значения, и важно их различать.
Определение по образу жизни — старое, функциональное: гриб — это эукариот, который питается всасыванием после внешнего переваривания, имеет клеточную стенку и размножается спорами, а тело его обычно построено из гиф. Под него попадают и оомицеты, и некоторые другие неродственные организмы; поэтому его используют там, где важен образ жизни, — в фитопатологии, экологии, промышленности, — и там говорят о «грибах и грибоподобных организмах».
Определение по родству — современное, филогенетическое: грибы — это одна ветвь древа эукариот внутри опистоконтов, сестринская нуклеариям, и всё, что в эту ветвь входит, — грибы, каким бы ни был образ жизни. По этому определению микроспоридия без стенки, митохондрий и гиф — гриб, а оомицет с гифами, стенкой и спорами — нет. Именно это определение принято в современных сводках и в этой статье [12, 13].
Два определения почти совпадают: у подавляющего большинства видов ветви есть все «грибные» признаки, и разногласия касаются нескольких тысяч видов на самом основании древа. Но для понимания эволюции важна именно граница: что считать первым грибом и какой признак появился первым.
Признаки грибов
Ниже — набор признаков, которые объединяют основную массу грибов. У каждого есть исключения, и к ним мы вернёмся.
- Клеточная стенкахитин и β-глюканы; 20–40 % сухой массы
- Закрытый митозверетено на полярных тельцах внутри ядра; центриолей нет
- Компактный геном10–60 млн пар нуклеотидов, короткие интроны
- Запас и мембраныгликоген, липиды; эргостерол
- Обмен веществлизин через α-аминоадипат; мочевина; вторичные метаболиты
- Осмотрофияферменты наружу, всасывание мономеров
- Гетеротрофияпластид нет и не было
- Гифыверхушечный рост, шпиценкёрпер, тургор до 8 МПа
- Неограниченный ростмицелий растёт, пока есть субстрат
- Неподвижностьподвижны только зооспоры древних ветвей
- Спорымитоспоры и мейоспоры; выстрел, ветер, вода
- Гаплоидная фазадиплоидна лишь зигота
- Дикариондва ядра в клетке у аскомицетов и базидиомицетов
- Типы спариваниявместо полов; до десятков тысяч
- Задний жгутику зооспор древних ветвей; утрачен наземными грибами
Клеточная стенка
Клеточная стенка гриба — слоистый каркас, который составляет от 20 до 40 % сухой массы клетки. Внутренний слой — микрофибриллы хитина, полимера N-ацетилглюкозамина, сшитые с β-1,3-глюканом, разветвлённым полимером глюкозы; снаружи — β-1,6-глюкан, маннопротеины (белки с цепочками маннозы), у многих — меланин и гидрофобины [14]. Хитин придаёт стенке прочность на растяжение, глюканы — упругость, белки наружного слоя определяют, как клетку узнают другие организмы: именно β-глюканы и маннаны распознаёт иммунная система человека, а у растений рецепторы ловят обрывки хитина и запускают защиту.
Состав стенки меняется по группам, и Бартники-Гарсия ещё в 1968 году предложил использовать его как систематический признак. У хитридиевых и других зооспоровых грибов — хитин и глюканы; у мукоромицетов — хитин и хитозан (хитин без ацетильных групп); у аскомицетов и базидиомицетов — хитин с β-глюканами и маннопротеинами; у дрожжей хитина лишь 1–2 % массы стенки, а основу составляют глюканы и маннопротеины [3, 14]. У оомицетов стенка из целлюлозы и β-глюканов, иногда с малой примесью хитина, — и это одно из первых доказательств, что они не грибы.
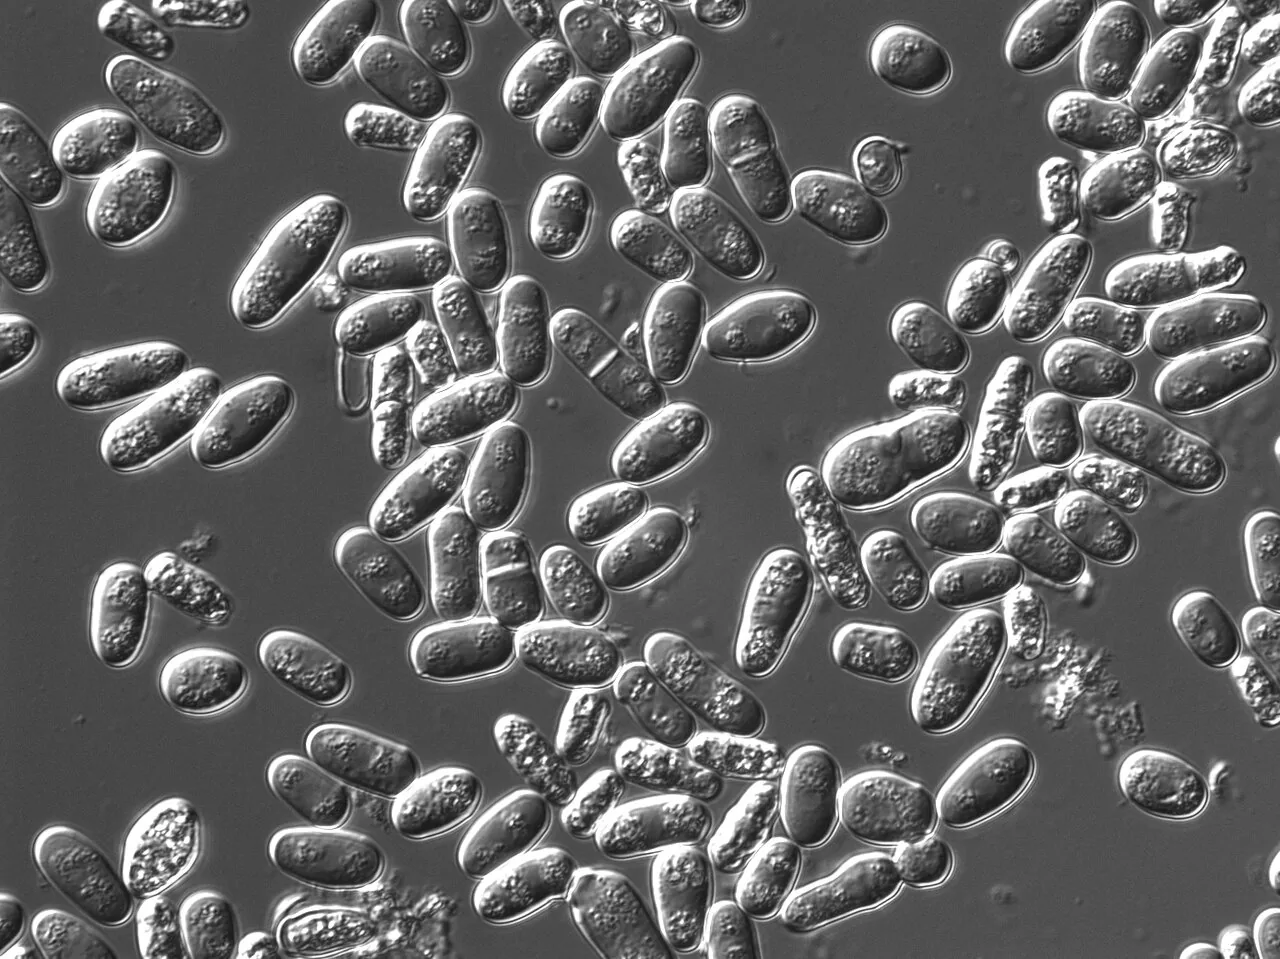
Стенка есть не на всех стадиях. Зооспоры хитридиевых плавают голыми, а розелла и афелиды живут внутри клетки хозяина без стенки и одевают её только при образовании спор. Поэтому точнее говорить, что у грибов хитиновая стенка есть хотя бы на одной стадии цикла, а у основной массы — на вегетативной [15].
Осмотрофное питание
Грибы — гетеротрофы, и получают органическое вещество всасыванием: клетка выделяет гидролазы в среду, ферменты расщепляют полимеры до мономеров, а мономеры — сахара, аминокислоты, нуклеотиды, жирные кислоты — переносятся через мембрану белками-транспортёрами. Такое питание называют осмотрофным в отличие от фаготрофного, при котором клетка захватывает частицы. Клетка со стенкой фагоцитировать не может: стенка не позволяет мембране обернуться вокруг частицы. Поэтому стенка и осмотрофия — две стороны одного решения [16, 15].
Внешнее переваривание имеет следствия. Во-первых, набор ферментов определяет, чем гриб питается: разрушители древесины выделяют целлюлазы и лигнинразрушающие пероксидазы, паразиты животных — протеазы и кератиназы, дрожжи почти ничего не выделяют и живут на готовых сахарах. Во-вторых, выделенные ферменты и продукты — «общее благо»: ими пользуются и соседние грибы, и бактерии, и в такой среде гены полезных ферментов часто переходят между организмами горизонтально [17]. В-третьих, всасывание выгодно только при большой поверхности — и это объясняет форму гриба.
Отличие от животных здесь принципиально, но и у него есть исключение: афелиды и розелла, стоящие у основания древа грибов, питаются фаготрофно — афелида заглатывает содержимое клетки водоросли, а розелла поглощает органеллы хозяина. Предки грибов были фаготрофами, и переход к всасыванию — событие внутри грибной ветви [18, 19].
Гифы и мицелий
Типичное тело гриба — мицелий из гиф, трубок диаметром 2–10 мкм, растущих только верхушкой. К кончику гифы по микротрубочкам и актиновым нитям непрерывно подходят пузырьки с ферментами синтеза стенки и её предшественниками и собираются в шпиценкёрпер — «верхушечное тельце», которое направляет рост. Старые участки стенки затвердевают, а верхушка остаётся мягкой; поэтому гифа растёт в длину, а не в ширину, и может ветвиться, образуя сеть [20].
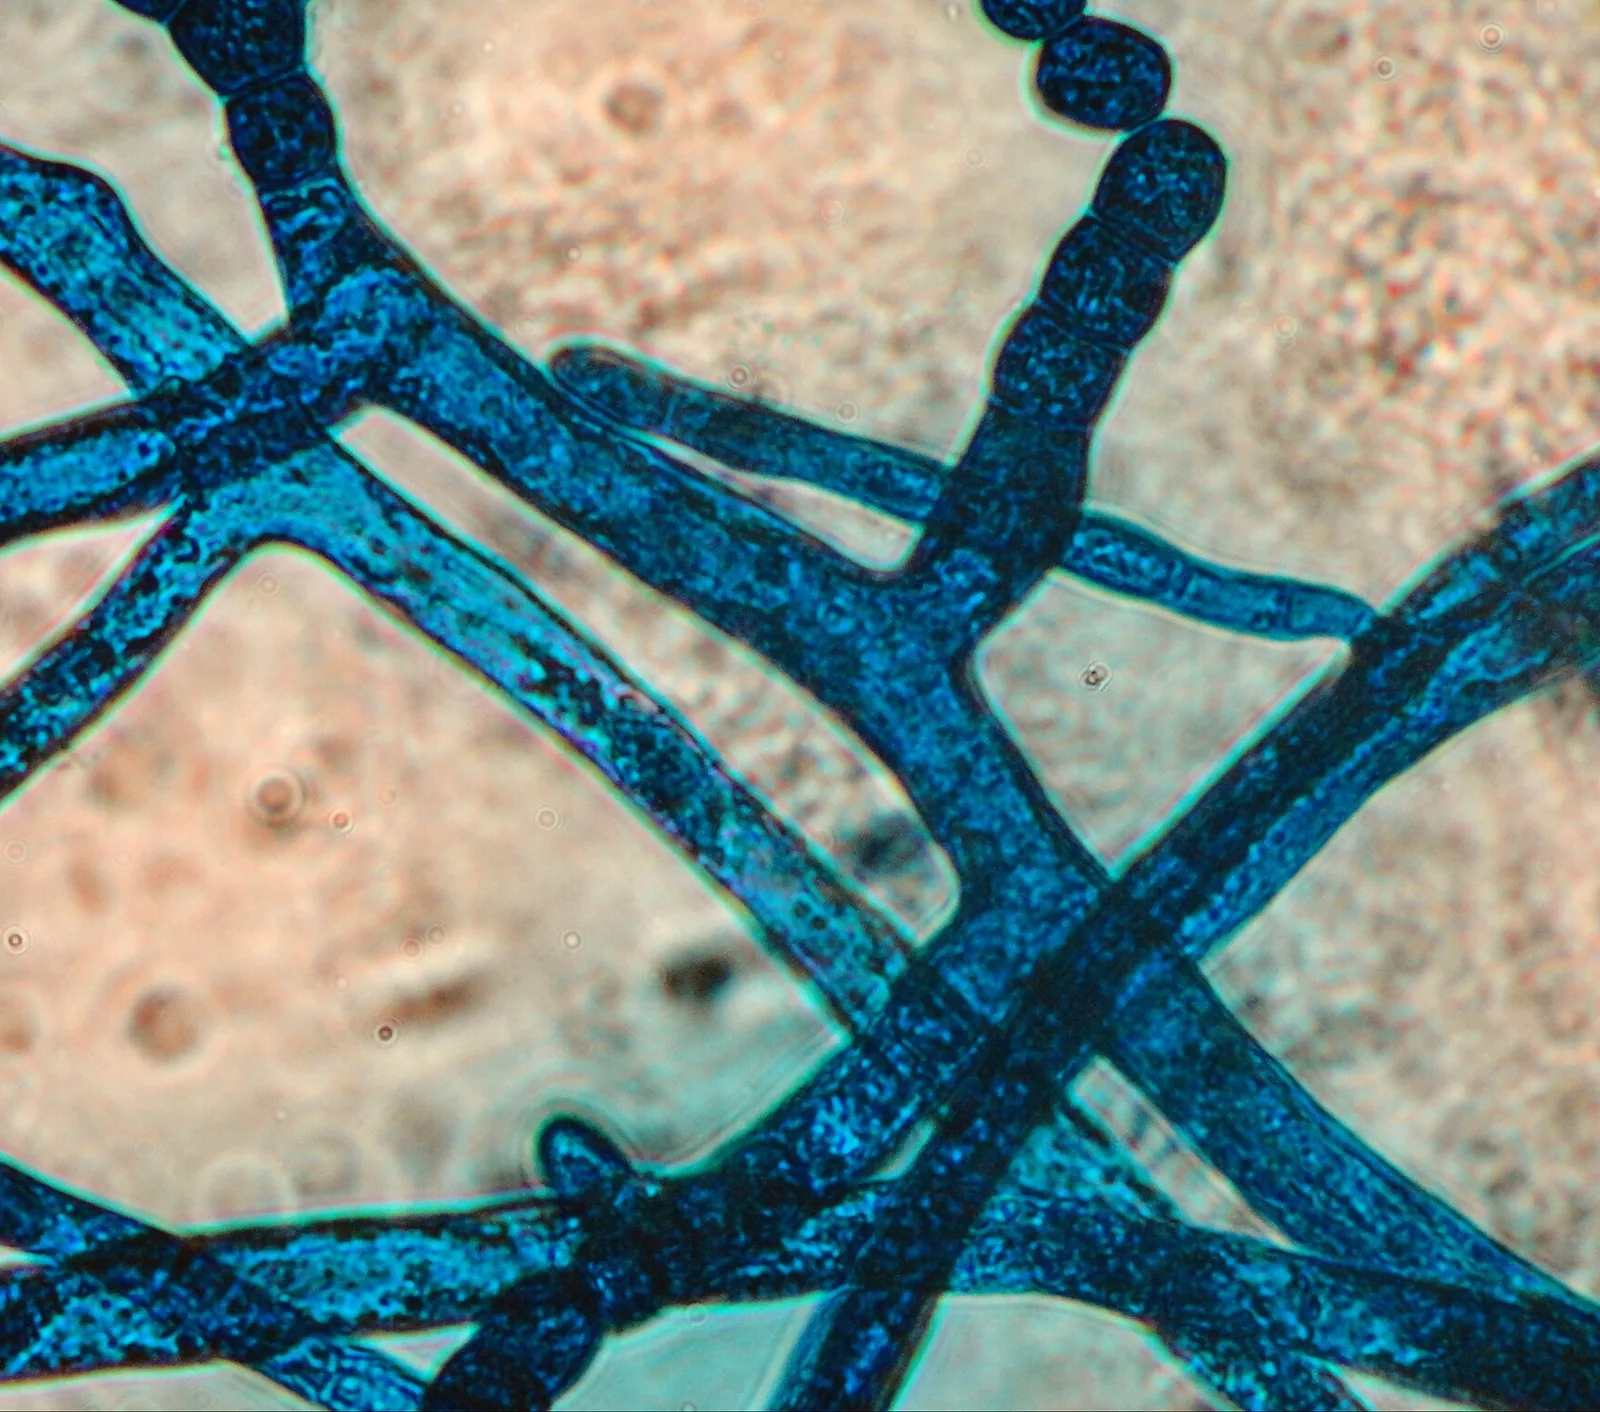
Гифа — решение задачи осмотрофа: максимум поверхности при минимуме объёма и способность продвигаться внутрь субстрата. Тургорное давление в гифе — от 0,5 до 1 МПа, а в специальных клетках-присосках, аппрессориях, которыми паразиты пробивают покровы растений, оно достигает 8 МПа — в 40 раз больше давления в автомобильной шине. Возбудитель пирикуляриоза риса пробивает так кутикулу листа и даже тонкую пластмассу [21, 22].
Мицелий может быть устроен по-разному. У мукоромицетов и большинства зооспоровых грибов гифы без перегородок — одна многоядерная клетка (ценоцит). У аскомицетов и базидиомицетов гифы разделены септами. Гифы могут сплетаться в шнуры и ризоморфы, по которым опёнок переползает между пнями, в склероции — покоящиеся клубочки, и в плодовые тела. А некоторые грибы отказались от гиф: дрожжи — одноклеточные почкующиеся или делящиеся грибы, возникавшие в разных ветвях аскомицетов и базидиомицетов независимо, — и многие патогены переключаются между дрожжевой и гифальной формой (диморфизм) [23, 15].
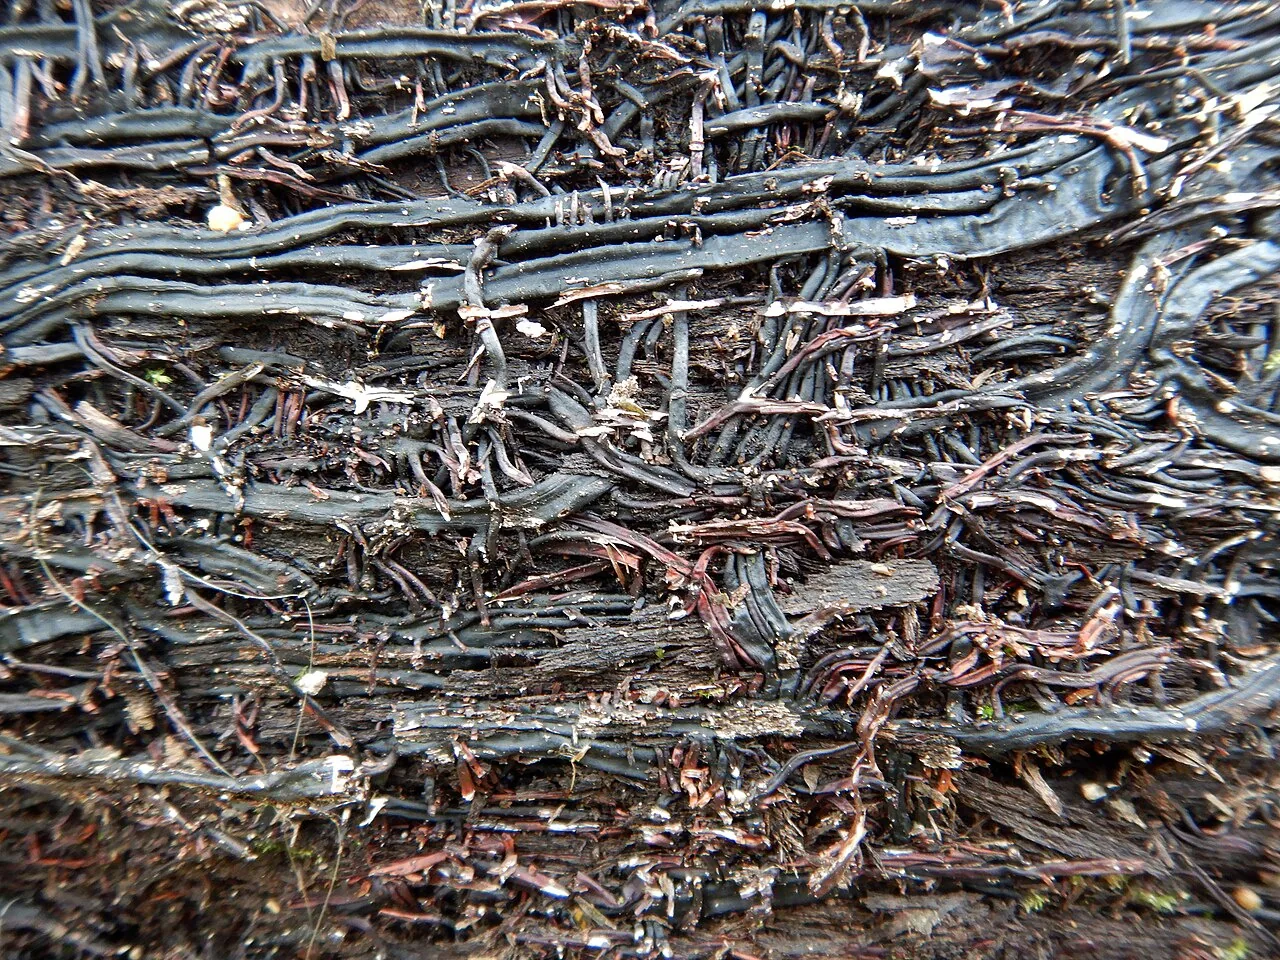
Гифа возникла не один раз. У самых древних ветвей грибов — хитридиевых — тела одноклеточные, с ризоидами; гифы есть у бластокладиевых, у моноблефаридовых и у всех наземных грибов. Сравнение строения и древа показало, что гифальный рост возник в царстве по меньшей мере два-три раза независимо [24], а анализ 72 геномов в 2019 году — что для этого не понадобилось одного «гена гифы»: гифа собралась из множества мелких изменений в генах, часть из которых работала ещё при фагоцитозе у предков [25].
Перегородки и поры
Перегородки (септы) в гифах — признак, по которому группы грибов различаются под микроскопом, и один из немногих признаков, надёжно отражающих родство.
- Септ почти нетгифа — одна многоядерная клетка (ценоцит)
- Перегородкитолько у спорангиев и повреждённых участков
- Простая порапроходят цитоплазма, органеллы, ядра
- Тельца Воронинабелок Hex-1; закупоривают пору при разрыве гифы
- Гдепецизомицеты; у сахаромицетов нет
- Долипоровая септапора с бочонкообразным утолщением
- Парентосомымембранные колпачки с двух сторон
- Что пропускаетцитоплазму — да, ядра — как правило, нет: держит дикарион
У мукоромицетов и зооспоровых грибов септы в вегетативном мицелии почти не образуются — только отгораживают спорангии и повреждённые участки. У аскомицетов септа имеет одну центральную пору, через которую свободно проходят цитоплазма, органеллы и ядра; рядом с порой лежат тельца Воронина — плотные белковые шарики, которые при повреждении гифы закупоривают пору и спасают остальной мицелий от вытекания. Их открыл в 1864 году Михаил Воронин, а их главный белок, Hex-1, нашли только в 2000 году [26]. У базидиомицетов-агарикомицетов пора окружена бочонкообразным утолщением — это долипоровая септа, а с обеих сторон её прикрывают мембранные колпачки, парентосомы. Такая септа пропускает цитоплазму, но, как правило, задерживает ядра, что важно для поддержания дикариона [23, 1].
Ядро, деление и обмен веществ
Ядра грибов мелкие, а геномы компактные: 10–60 млн пар нуклеотидов, с короткими интронами и малым числом повторов. Митоз у большинства грибов закрытый: ядерная оболочка сохраняется, веретено строится внутри ядра на полярных тельцах веретена, встроенных в оболочку; центриолей нет (они сохраняются лишь у зооспоровых грибов как базальные тельца жгутика) [27]. Клетка гифы часто многоядерна, и ядра в ней перемещаются через поры септ.
Обмен веществ грибов тоже имеет общие черты. Запасные вещества — гликоген и липиды; стерол мембран — эргостерол; лизин синтезируется через α-аминоадипиновую кислоту (у растений и бактерий — через диаминопимелиновую); многие грибы выделяют избыток азота в виде мочевины [28, 29]. Главное же отличие от большинства эукариот — богатейший вторичный метаболизм: кластеры генов поликетидсинтаз и нерибосомных пептидсинтетаз дают тысячи соединений — антибиотики, микотоксины, пигменты, сигнальные вещества, — которыми грибы защищают субстрат от конкурентов и регулируют собственное развитие [15].
Споры и жизненные циклы
Все грибы размножаются спорами — клетками, предназначенными для расселения или переживания неблагоприятных условий. Споры бывают двух родов (подробно — в статье «Бесполое размножение грибов»). Митоспоры образуются без мейоза: зооспоры хитридиевых, спорангиоспоры мукора, конидии пеницилла и аспергилла. Мейоспоры образуются после мейоза: аскоспоры в сумках, базидиоспоры на базидиях; у мукоромицетов мейоз проходит в прорастающей зигоспоре [23].
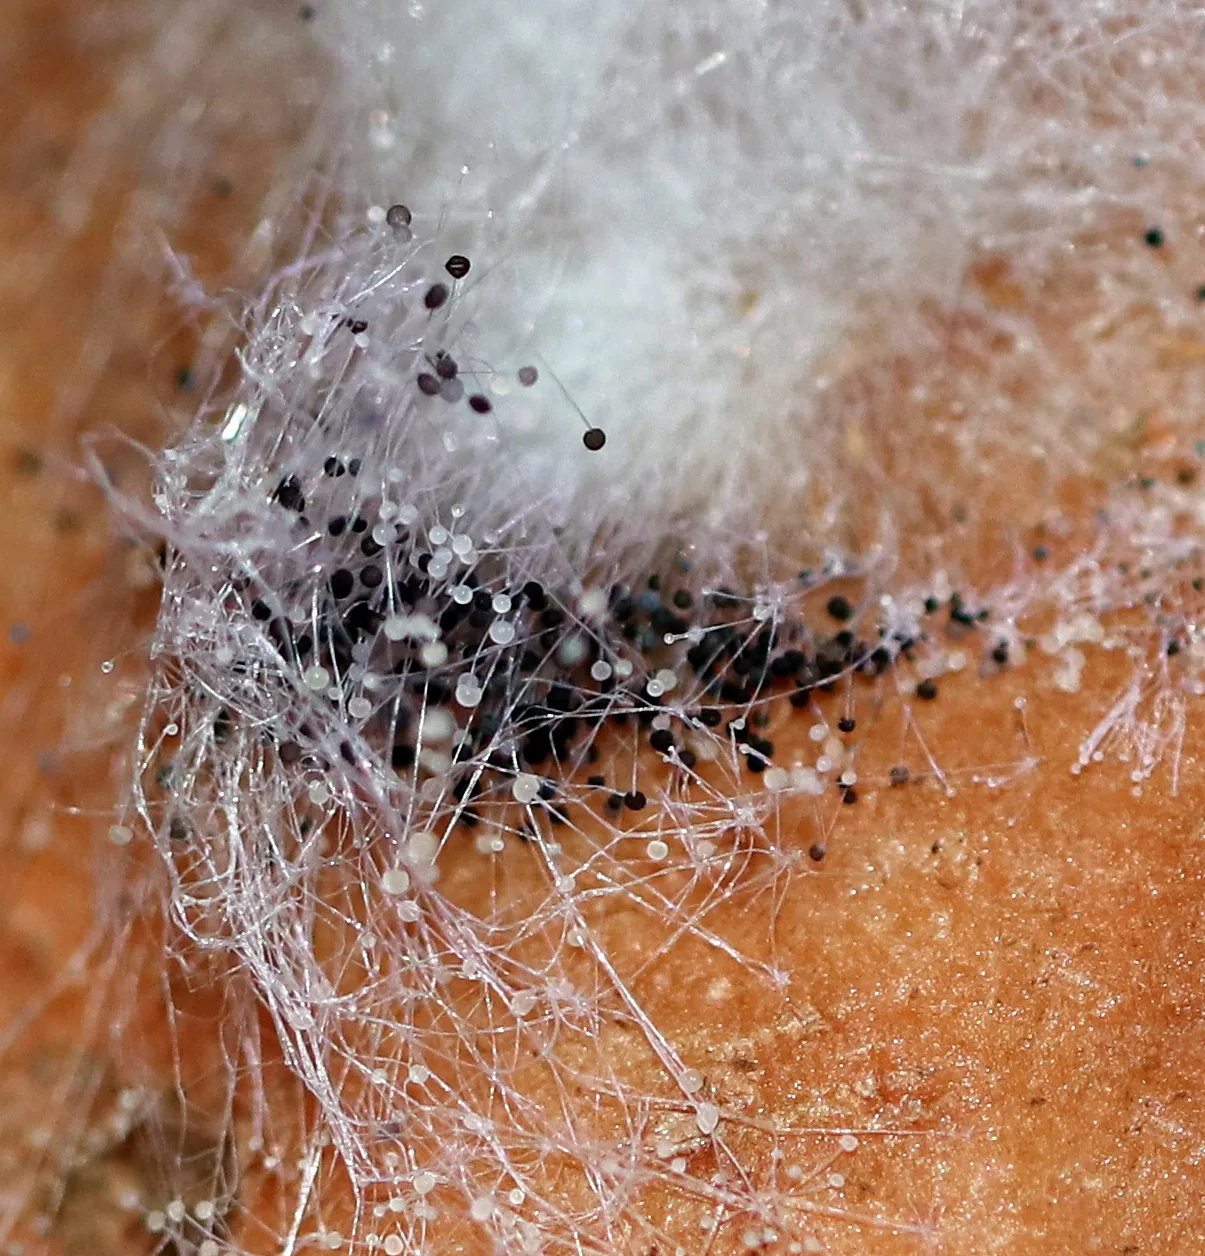
Жизненный цикл грибов отличается от циклов растений и животных преобладанием гаплоидной фазы. Мицелий гаплоиден; диплоидна лишь зигота, которая обычно сразу делится мейозом. У аскомицетов и базидиомицетов между слиянием клеток и слиянием ядер проходит время — иногда годы, — и в клетках лежат два разных ядра: это дикарион, признак, давший имя подцарству Dikarya. Полов у грибов нет: совместимость определяют типы спаривания, заданные одним или двумя локусами; у шляпочного гриба шизофиллума их более 20 тысяч, и любые два мицелия с разными типами могут слиться [30].
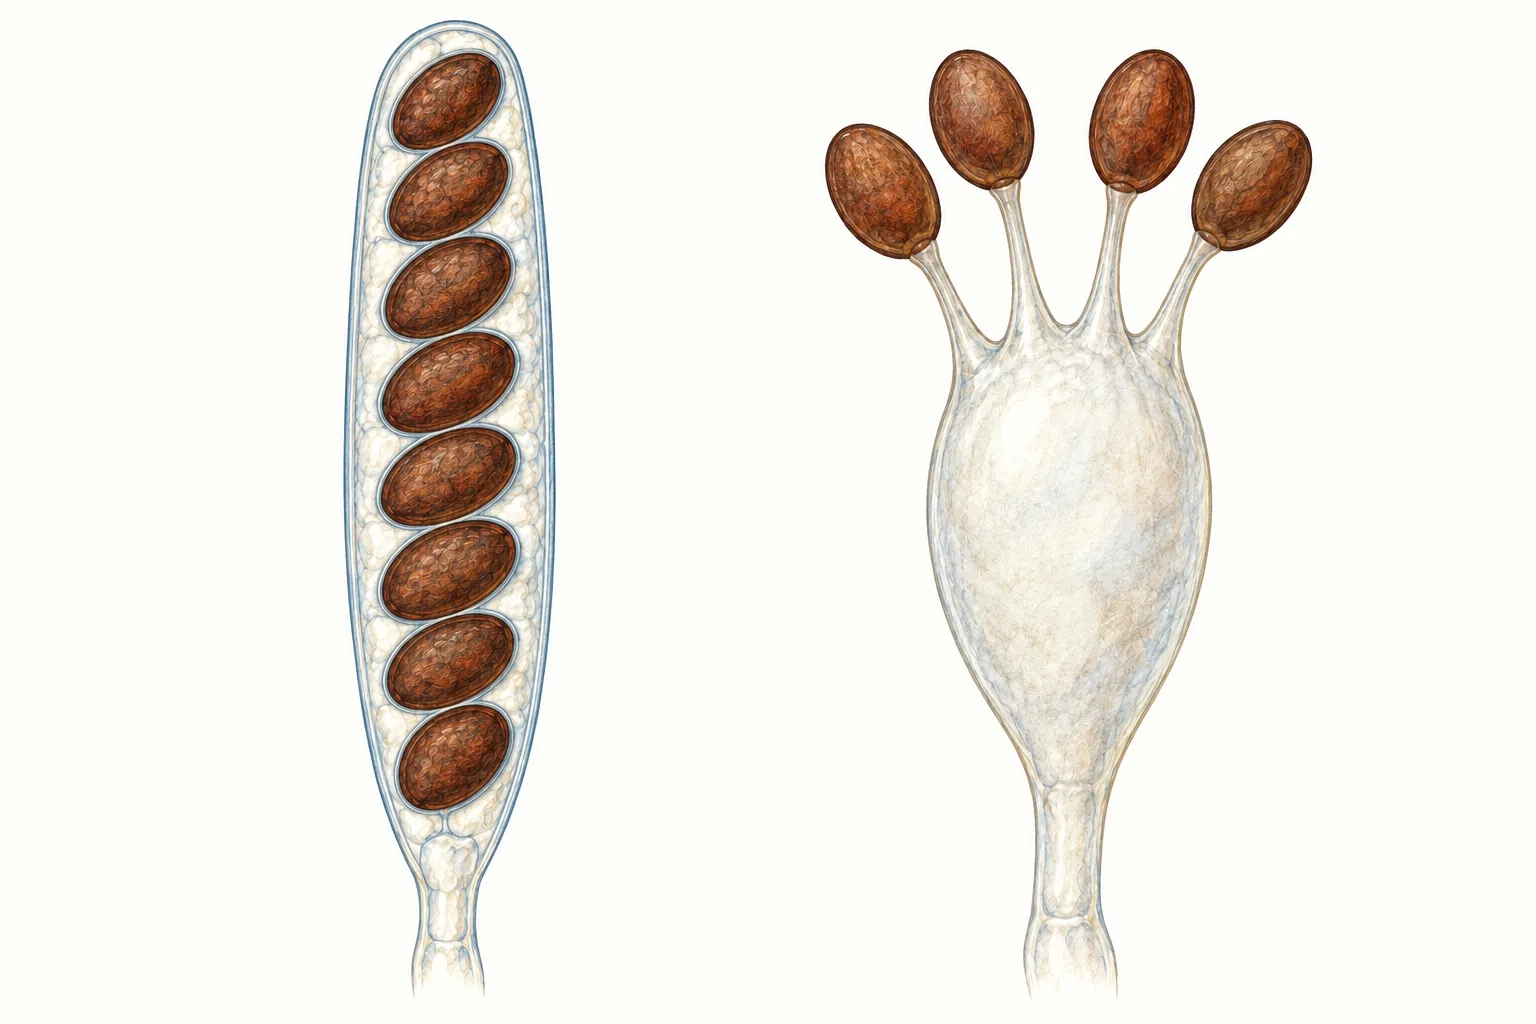
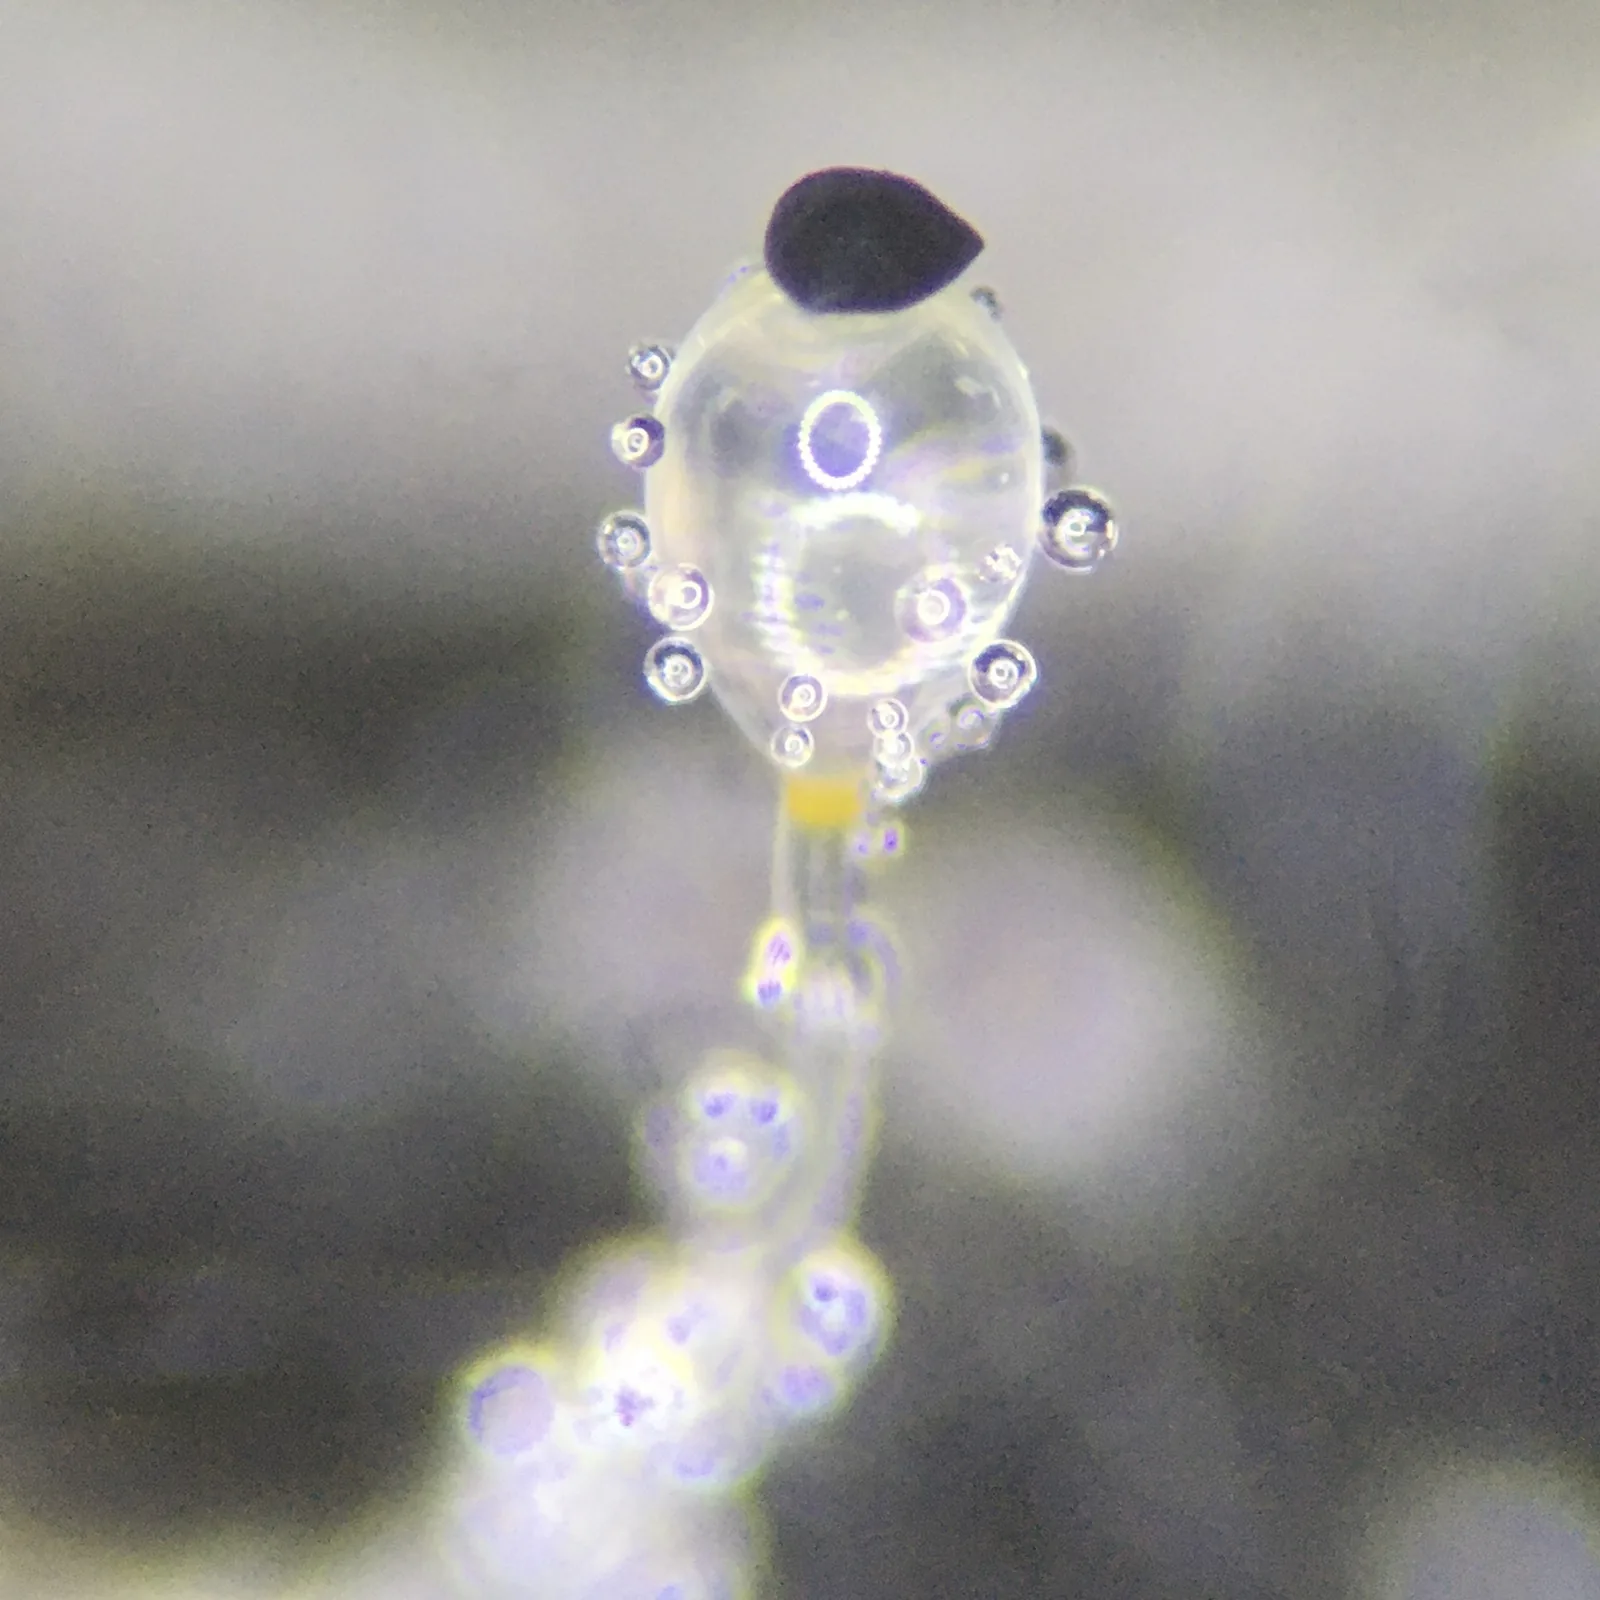
Самые быстрые полёты в природе. Споры грибы не только рассеивают ветром, но и выстреливают. Пилоболус, растущий на навозе, отстреливает спорангий со скоростью до 13 м/с (ускорение около 20 000 g) на два с лишним метра; сумчатый гриб аскоболюс выбрасывает сумку со спорами с ускорением до 180 000 g, и форма аскоспор подобрана эволюцией так, чтобы свести к минимуму сопротивление воздуха; базидиоспора стартует с пластинки за счёт капли воды, сливающейся с её основанием, — механизм Буллера. Эти выстрелы — самые быстрые движения в живой природе [31, 32].
Какие признаки уникальны
Признак, по которому узнают гриб, и признак, который возник у предка грибов один раз (синапоморфия), — не одно и то же. Разберём список честно.
| Признак | Есть ли у других | Возник ли у грибов один раз |
|---|---|---|
| Хитин в стенке | Есть у членистоногих и других животных (кутикула, щетинки), у некоторых протистов | Хитиновая стенка вегетативной клетки — да, у предка грибов без опистоспоридий; хитинсинтазы унаследованы от общего предка с животными |
| Осмотрофное питание | Есть у оомицетов, бактерий, части протистов | Да, переход от фаготрофии — внутри грибной ветви; у афелид и розеллы его ещё нет |
| Гифы | Есть у оомицетов, актиномицетов (бактерии), некоторых водорослей | Нет: возникли в царстве два-три раза независимо |
| Гликоген как запас | Есть у животных, бактерий | Нет, унаследован |
| Эргостерол | Есть у некоторых протистов (трипаносомы, зелёные водоросли частично) | Нет, но ланостерольный путь общий с животными |
| Лизин через α-аминоадипат | Есть у эвгленозоев, у бактерии термус | Спорно: возможно, древний признак, утраченный другими |
| Полярные тельца веретена, закрытый митоз | Закрытый митоз есть у многих протистов | Полярное тельце как структура — характерно для грибов |
| Задний жгутик | Есть у животных, хоанофлагеллят | Нет, предковый признак опистоконтов; у грибов утрачен не менее четырёх раз |
| Дикарион | Нет | Да, у предка Dikarya |
| Тельца Воронина, долипоровые септы | Нет | Да, но у отдельных подгрупп аскомицетов и базидиомицетов |
Итог отрезвляющий: ни один из бытовых признаков гриба не является одновременно уникальным и общим для всего царства. Надёжную границу даёт только родство — положение на древе. Единственный признак, который возник у общего предка всех грибов, включая опистоспоридий, и сохранился у всех, — молекулярный: в 2023 году филогеномный анализ нашёл несколько общих для афелид и грибов редких изменений в белках, в том числе вставки в генах, участвующих в делении и транспорте, которых нет у нуклеарий и животных [19].
Границы царства на 2026 год
Царство Fungi по современным сводкам — это от 9 до 19 отделов в зависимости от того, насколько дробно авторы делят древние ветви [12, 33, 34]. Две системы сосуществуют. Укрупнённая (Спатафора и соавторы, 2016; Наранхо-Ортис и Габальдон, 2019) выделяет около девяти клад ранга отдела [35, 12]; дробная (Тедерсоо и соавторы, 2018; сводка Виджаявардене и соавторов, 2022) даёт ранг отдела почти каждой древней ветви. Обе опираются на одно и то же древо и различаются лишь рангами.
- Хитридиевые — зооспоры с задним жгутиком; водные и почвенные; порядок отделения трёх групп (хитридиомицеты, моноблефаридовые и неокаллимастиговые) не установлен
- Хитридиомицеты — батрахохитриум
- Моноблефаридовые — оогамия
- Неокаллимастиговые — грибы рубца
- Бластокладиевые — алломицес
- Санхитриевые — амёбоидные зооспоры
- Ольпидиевые и наземные грибы — ольпидиевые (ещё со жгутиком) и наземные грибы без жгутика; порядок трёх ветвей не установлен; порядок отделения трёх групп (ольпидиевые, зоопаговые и родня и мукоровые в широком смысле и дикарии) не установлен
- Ольпидиевые — ольпидиум
- Зоопаговые и родня — энтомофтора
- Мукоровые в широком смысле — симбионты и сапротрофы, многие с микоризой; порядок отделения трёх групп (мортиерелловые, мукоровые и гломеромицеты) не установлен
- Мукоровые — мукор, ризопус
- Гломеромицеты — микориза
- Дикарии — стадия с двумя ядрами в клетке
- Зелёные ветви — грибы со жгутиковыми зооспорами, коричневые и красные — без жгутика
| Группа | В дробной системе | Главные признаки | Представители |
|---|---|---|---|
| Опистоспоридии (у основания древа) | Aphelidiomycota, Rozellomycota, Microsporidia | Внутриклеточные паразиты; фаготрофия у афелид и розеллы; у микроспоридий утрачены жгутик и митохондрии | Парафелидий, розелла, нозема |
| Зооспоровые грибы | Chytridiomycota, Monoblepharomycota, Neocallimastigomycota, Blastocladiomycota, Sanchytriomycota, Olpidiomycota | Зооспоры с задним жгутиком; одноклеточные талломы с ризоидами или гифы; водные, почвенные, в рубце жвачных | Батрахохитриум, синхитриум, алломицес, ольпидиум |
| Зоопагомицеты | Zoopagomycota, Kickxellomycota, Entomophthoromycota, Basidiobolomycota | Наземные грибы без жгутика; паразиты и хищники животных, грибов, амёб; симбионты кишечника насекомых | Энтомофтора, зоопаге, базидиоболюс |
| Мукоромицеты | Mucoromycota, Mortierellomycota, Glomeromycota, Calcarisporiellomycota | Ценоцитный мицелий, спорангии, зигоспоры; гломеромицеты — арбускулярная микориза | Мукор, ризопус, мортиерелла, гломус |
| Аскомицеты | Ascomycota | Мейоспоры в сумках; септы с простой порой и тельцами Воронина у пецизомицетов; дрожжи, плесени, лишайниковые грибы | Дрожжи, пеницилл, аспергилл, сморчок, трюфель |
| Базидиомицеты | Basidiomycota (и Entorrhizomycota) | Мейоспоры на базидиях; долгий дикарион; долипоровые септы у агарикомицетов | Шляпочные грибы, трутовики, ржавчина, головня |
Порядок отделения древних ветвей ещё уточняется: по данным 2021 года хитридиевые отделились первыми среди зооспоровых грибов, санхитриевые оказались сестрой бластокладиевых, а ольпидиевые — ближайшими родственниками наземных грибов, то есть жгутик был утрачен у общего предка зоопагомицетов, мукоромицетов и дикарий уже после отделения ольпидиума [36, 37].
У основания древа: афелиды, розелла, микроспоридии
Самый спорный участок границы — три группы внутриклеточных паразитов, которых в 2014 году Карпов и соавторы объединили в надтип опистоспоридий [11].
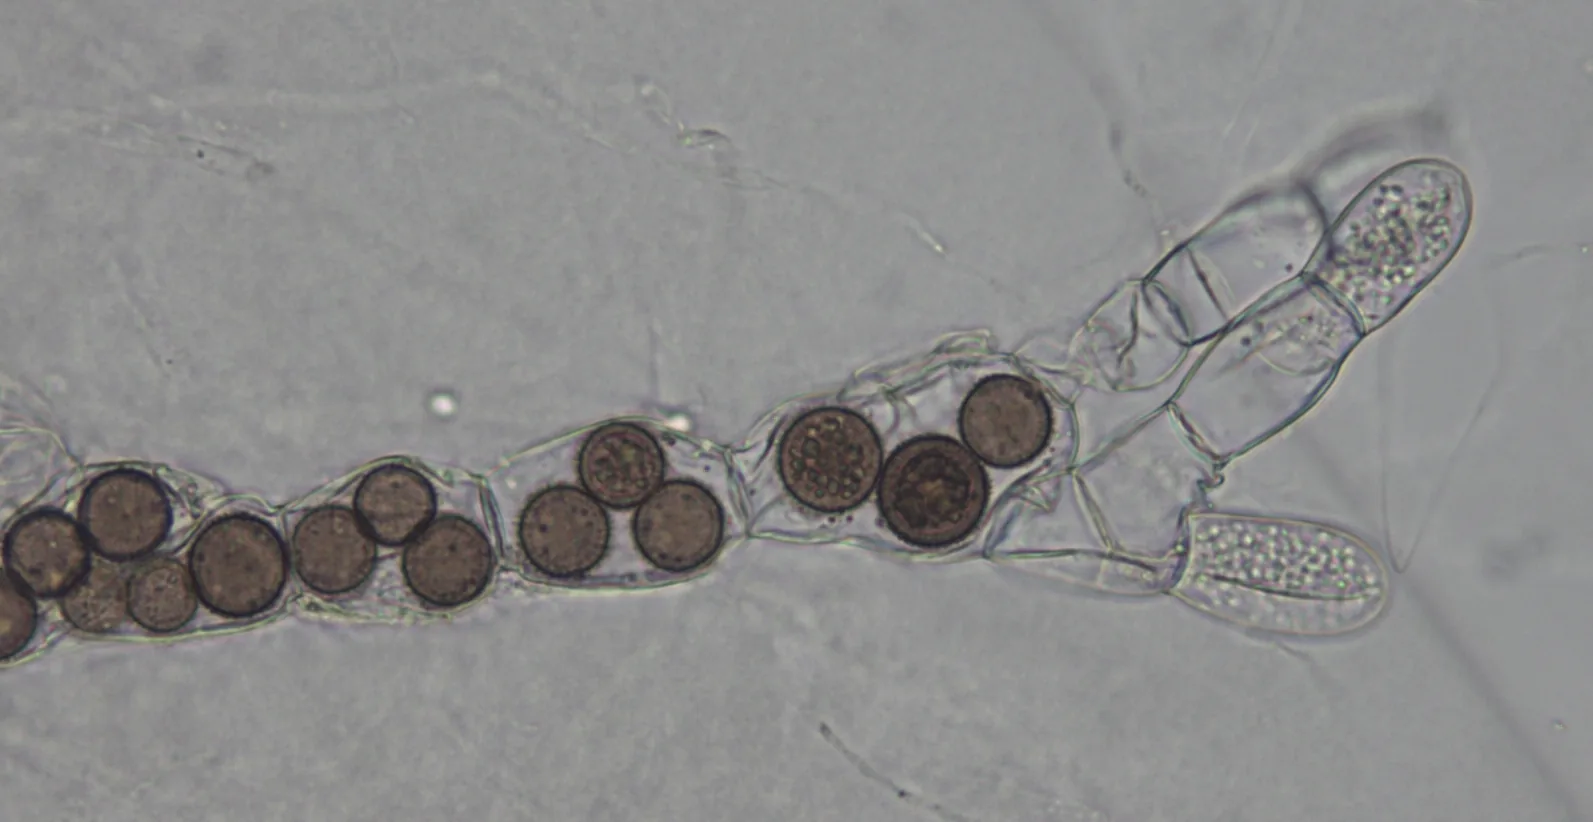
- Афелиды — паразиты водорослей. Зооспора с задним жгутиком садится на клетку водоросли, проникает внутрь и превращается в амёбу, которая заглатывает содержимое хозяина фагоцитозом, растёт и делится на новые зооспоры. Стенки у питающейся стадии нет.
- Розелла и её родня (розелломицеты, они же криптомицеты) — паразиты водных грибов и оомицетов; живут внутри клетки хозяина без стенки, поглощая его органеллы, а споры одевают хитиновой стенкой. По данным ДНК из проб воды и почвы, это одна из самых разнообразных и при этом почти не изученных групп грибов [9].
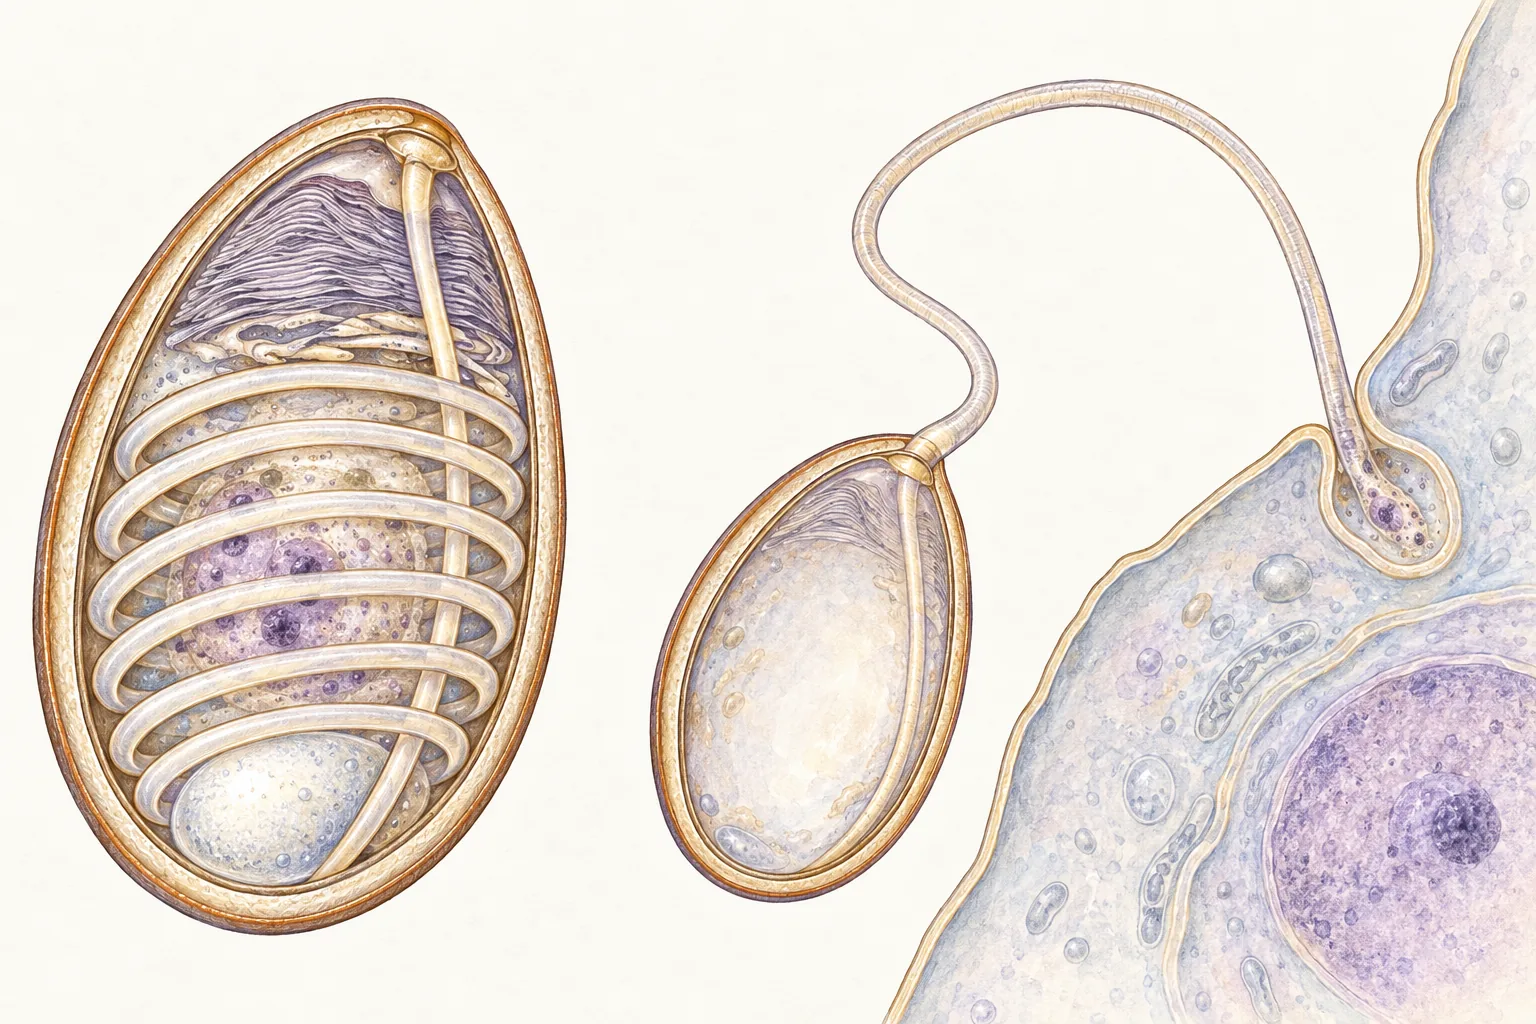
- Микроспоридии — около 1500 видов внутриклеточных паразитов животных, от насекомых до человека. Спора с полярной трубкой выстреливает её в клетку хозяина и впрыскивает содержимое. У микроспоридий нет жгутика, а митохондрии превратились в крошечные митосомы без собственной ДНК; геномы — самые маленькие среди эукариот, у некоторых видов меньше 3 млн пар нуклеотидов. В XX веке их относили к простейшим и даже к «архезоям» — якобы древнейшим эукариотам без митохондрий, пока в 2002 году митосомы не были найдены, а в 2013-м геномы не связали их с розеллой [38, 10].
Опистоспоридии ли это единая группа — вопрос. Филогеномика 2018–2023 годов показала, что афелиды — ближайшие родственники остальных грибов, а розелла с микроспоридиями отделились раньше; значит, «опистоспоридии» — не ветвь, а ступени у основания древа [18, 19]. Включать ли их в царство? Сводки последних лет (Тедерсоо и соавторы, 2018; Виджаявардене и соавторы, 2022) включают: отделы Aphelidiomycota, Rozellomycota и Microsporidia числятся в царстве Fungi. Другие авторы предпочитают говорить о «грибах в широком смысле» и оставлять слово «настоящие грибы» за ветвью с хитиновой стенкой вегетативной клетки. Для понимания эволюции разница невелика: в любом случае предок грибов был фаготрофным паразитом или хищником со жгутиковой стадией, а стенка и всасывание появились позже.
Кто не гриб
Снаружи границы остаются организмы, которых по образу жизни долго считали грибами.
- Опистоспоридииафелиды, розелломицеты, микроспоридии — в сводках 2018–2022 годов внутри царства
- Зооспоровые грибыхитридиевые, моноблефаридовые, неокаллимастиговые, бластокладиевые, санхитриевые, ольпидиевые
- Зоопагомицетыэнтомофторовые, зоопаговые, кикселловые
- Мукоромицетымукоровые, мортиерелловые, гломеромицеты
- Дикарииаскомицеты и базидиомицеты — 97 % описанных видов
- Нуклеарии и фонтикулаголомикоты, сестринская группа грибов
- Оомицеты, гифохитриевые, лабиринтуловыестраменопилы
- Слизевикиамёбозои
- Плазмодиофоровыеризарии
- Актиномицетыбактерии
- Лишайникине группа, а симбиоз грибов с фотобионтом
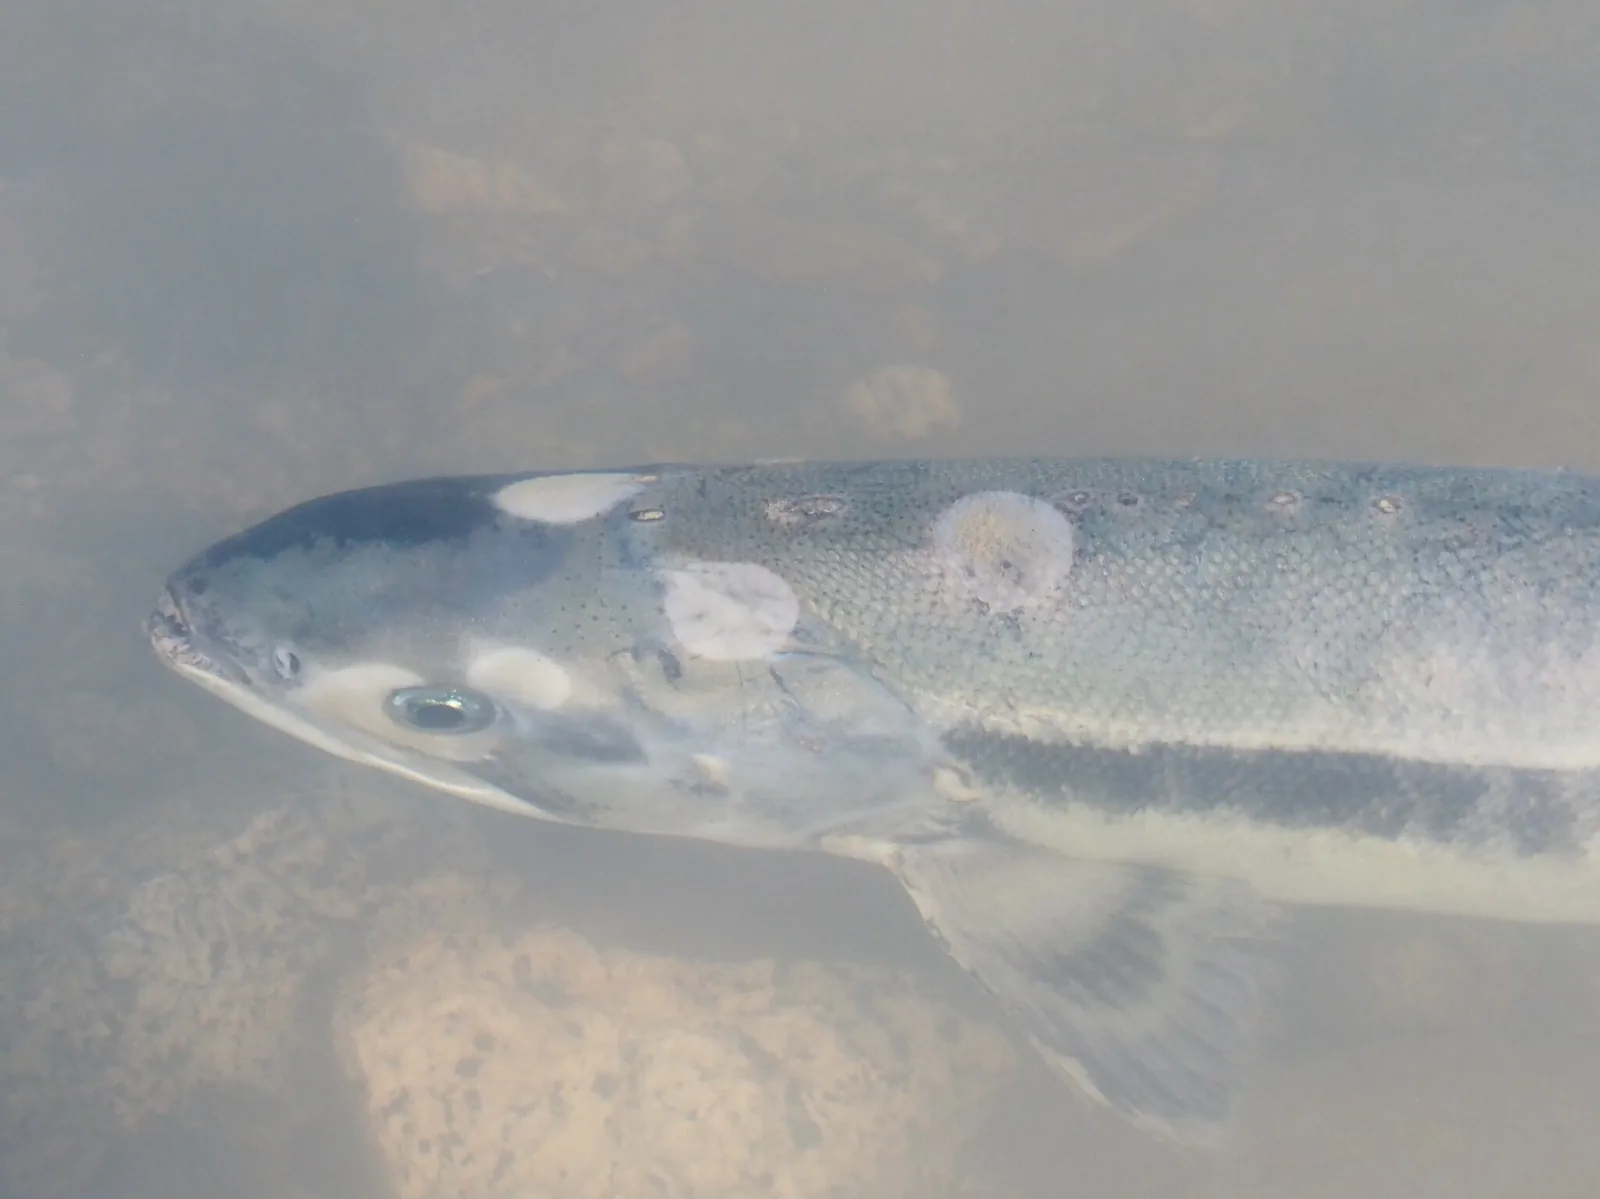
- Оомицеты (фитофтора, сапролегния, возбудители мильдью и ложной мучнистой росы) — страменопилы, родственники бурых водорослей и диатомей. Гифы, осмотрофия, спорангии — всё как у грибов, но стенка из целлюлозы, мицелий диплоидный, зооспоры с двумя разными жгутиками, запас — миколаминарин, лизин — через диаминопимелат. Классический пример конвергенции [39].
- Гифохитриевые и лабиринтуловые — тоже страменопилы; лабиринтулы живут в море, скользя по сети выделяемой слизи.
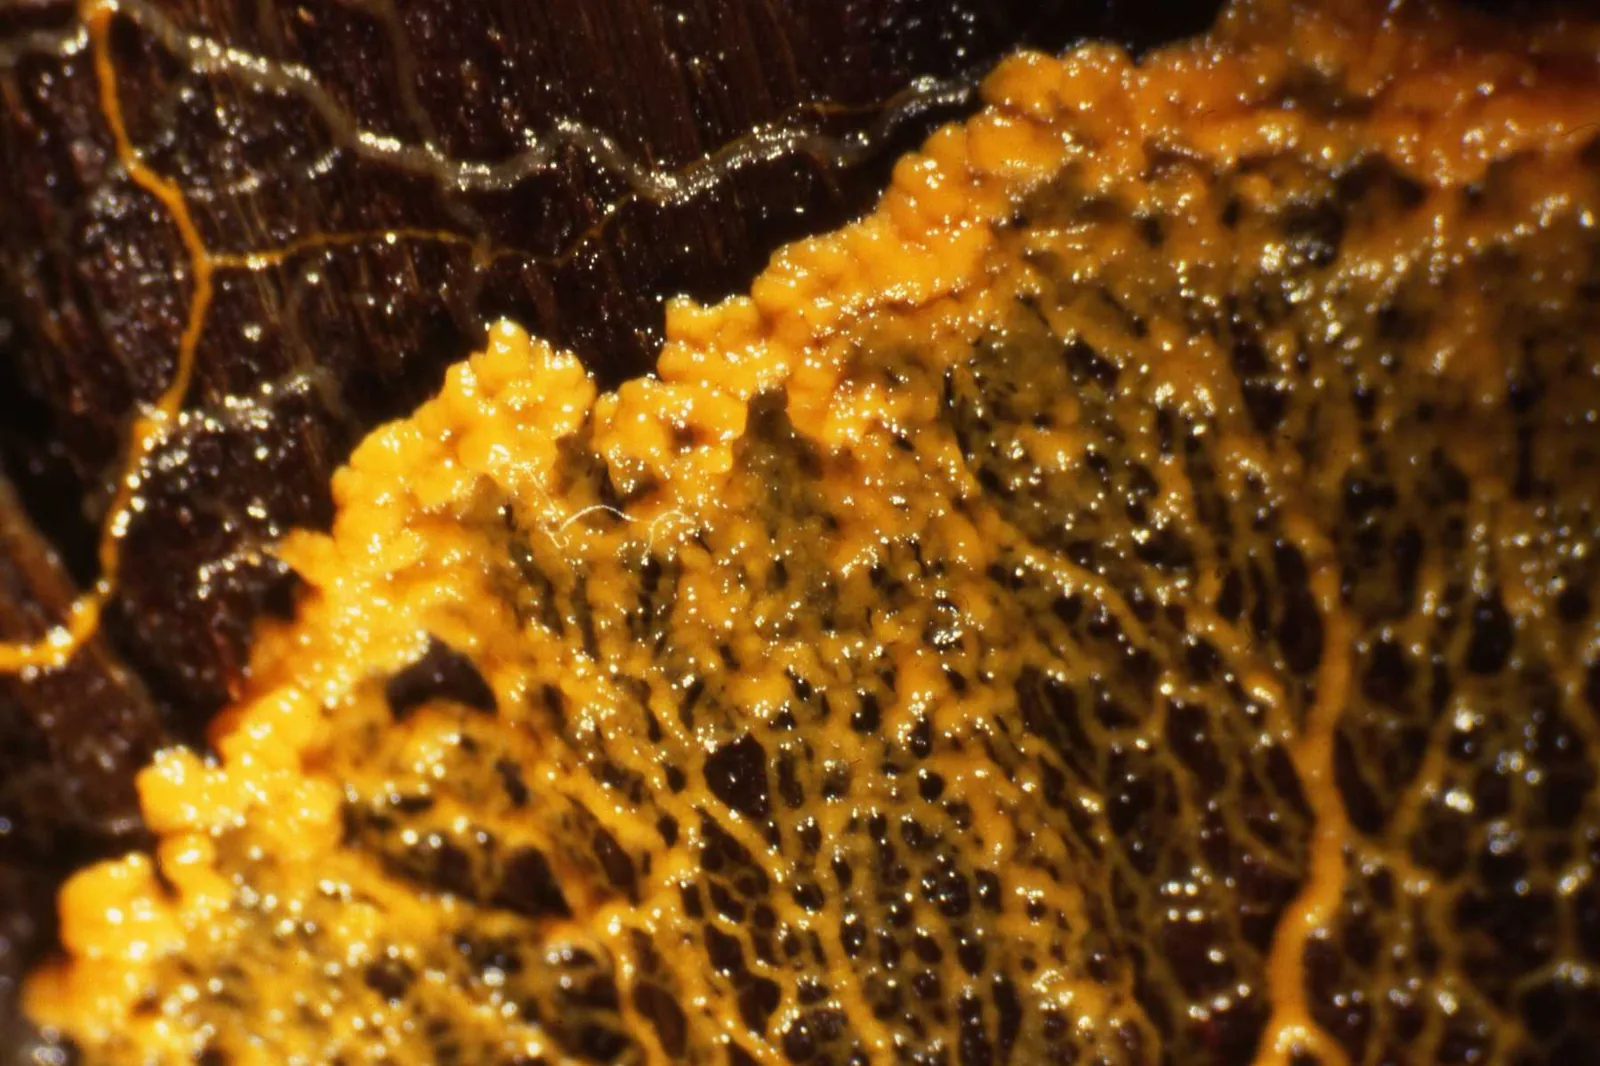
- Слизевики — амёбозои: плазмодиальные (физарум) и клеточные (диктиостелиум). Большую часть жизни — амёбы, питающиеся фагоцитозом; на грибы похожи лишь спороношения.
- Плазмодиофоровые (возбудитель килы капусты) — ризарии, родственники фораминифер и радиолярий.
- Актиномицеты — бактерии с ветвящимся мицелием, которых в XIX веке называли «лучистыми грибками»; отсюда названия «актиномикоз» и «стрептомицин».
- Лишайники — не отдельная группа, а образ жизни грибов (в основном аскомицетов) с водорослью или цианобактерией; название лишайника — это название его гриба.
А с другой стороны границы, уже внутри голомикот, но вне грибов, стоят нуклеарии — пресноводные амёбы с тонкими ложноножками, сестринская группа всего царства, — и фонтикула, амёба, строящая многоклеточные плодовые тела. Они показывают, с чего начинались грибы: с амёбы, поедающей бактерий и водоросли.
Что грибы потеряли и приобрели
Путь от общего предка опистоконтов к шляпочному грибу — это цепочка приобретений и потерь, которые можно расставить по древу.
Геномные сравнения 2021–2022 годов добавили к этой картине неожиданную черту: эволюция грибов шла в основном через потери. На пути к грибам предки теряли гены почти всех функциональных категорий, тогда как предки животных их накапливали [40]. Внутри царства волны упрощения повторялись не раз: микроспоридии потеряли жгутик, митохондрии и большую часть генов, санхитриевые — подвижность жгутика, дрожжи — гифы, многие паразиты — сотни ферментов. Грибы — минималисты, и в этом, возможно, секрет их успеха: компактный геном, быстрый рост, экономная клетка [36, 15].
Приобретения тоже были. Хитиновая стенка вегетативной клетки и всасывание — первое; гифа — второе, и повторялось; дикарион с отложенным слиянием ядер — третье; сложные плодовые тела из переплетённых гиф, возникавшие у аскомицетов и базидиомицетов независимо, — четвёртое; ферменты разрушения лигнина у агарикомицетов — пятое. Каждое из них открывало грибам новую среду: почву, древесину, тело растения, воздух для спор [41, 42].
Спорные случаи
Микроспоридии. Гриб без стенки на вегетативной стадии, без гиф, без митохондрий, без жгутика, со спорой, стреляющей трубкой. По образу жизни — ничего грибного; по родству — грибы у основания древа. Самый яркий пример того, что царство определяется родством.
Дрожжи. «Одноклеточные грибы» школьных учебников — не группа, а форма: одноклеточность возникала независимо у сахаромицетов, у делящихся дрожжей (тафриномицеты), у базидиомицетных дрожжей (криптококк, малассезия) и у ряда патогенов, переключающихся между формами. Дрожжевая форма — вторичное упрощение гифального предка [15].
Лишайники. Не группа и не организм, а симбиоз; лихенизация возникала у грибов не один раз, и лишайниковые грибы рассеяны по древу аскомицетов и немногих базидиомицетов.
Ольпидиум. Одноклеточный паразит корней со жгутиковыми зооспорами, которого по строению относили к хитридиевым; по геномам он оказался ближайшим родственником наземных грибов без жгутика — то есть потеря жгутика произошла сразу после его отделения [37, 36].
Санхитриевые. Паразиты водорослей, описанные в России (Карпов и соавторы); их зооспоры ползают как амёбы, а жгутик укорочен до неподвижного «псевдоцилия» с необычно длинным базальным тельцем. По геномам 2021 года — отдельный отдел, сестринский бластокладиевым; один из четырёх независимых случаев утраты жгутика в царстве [36].
Прототакситы. Девонские «стволы» до 8 м высотой, которых с 2001 года считали гигантскими грибами; анализ 2025 года не нашёл в них следов хитина, и теперь их относят к вымершей ветви эукариот вне всех современных царств. Самые древние бесспорные грибы — Ourasphaira возрастом 1,0–0,9 млрд лет с гифами и хитином [43].
Что нужно знать к ЕГЭ
- грибы — отдельное царство эукариот; около 150 тысяч описанных видов;
- признаки растений у грибов: клеточная стенка, неподвижность, неограниченный рост, размножение спорами, всасывание веществ, отсутствие центриолей у большинства;
- признаки животных: гетеротрофность, хитин, гликоген, мочевина, отсутствие пластид;
- только у грибов: тело из гиф (мицелий), стенка из хитина, а не целлюлозы, осмотрофное питание с внешним перевариванием;
- мицелий низших грибов (мукор) неклеточный, многоядерный; у высших — разделён перегородками с порами; дрожжи одноклеточны;
- размножение: вегетативное (частями мицелия, почкование дрожжей), бесполое спорами (спорангиоспоры мукора, конидии пеницилла), половое (зигоспоры, аскоспоры в сумках, базидиоспоры на базидиях); преобладание гаплоидной фазы;
- школьные группы — низшие (мукор) и высшие (аскомицеты: дрожжи, пеницилл, спорынья; базидиомицеты: шляпочные, трутовики, головня, ржавчина); фитофтора по школьной программе — гриб, по современной системе — оомицет;
- лишайник — симбиоз гриба с водорослью или цианобактерией.
Ловушки. «Стенка гриба из целлюлозы» — из хитина. «Грибы запасают крахмал» — гликоген. «Плодовое тело — орган гриба, как лист» — это сплетение гиф для образования спор, настоящих тканей и органов у грибов нет. «Мицелий мукора многоклеточный» — неклеточный, многоядерный. «Дрожжи — низшие грибы» — по школьной программе аскомицеты, то есть высшие. «Споры грибов образуются только мейозом» — конидии и спорангиоспоры образуются митозом. «Грибы заглатывают пищу» — всасывают после внешнего переваривания.
Для олимпиад
Тургор и проникновение. Аппрессорий возбудителя пирикуляриоза риса развивает давление 8,0 МПа (около 80 атм) за счёт накопления глицерина до 3,2 моль/л; по уравнению Вант-Гоффа π = cRT при 298 К концентрация 3,2 моль/л даёт около 7,9 МПа — измеренная и расчётная величины сходятся [21, 22]. Стенка аппрессория укреплена меланином, который не пропускает глицерин наружу: мутанты без меланина не создают давления и не заражают.
Геометрия гифы. Отношение поверхности к объёму у цилиндра радиусом r равно 2/r (без учёта торцов): при r = 2,5 мкм — 0,8 мкм⁻¹. Шар того же объёма, что 1 мм такой гифы (около 19 600 мкм³), имеет радиус около 16,7 мкм и отношение 3/R ≈ 0,18 мкм⁻¹ — в четыре с половиной раза меньше. Поэтому мицелий всасывает эффективнее любой компактной клетки той же массы.
Утраты жгутика. По распределению 60 с лишним жгутиковых белков в геномах голомикот жгутик был утрачен не менее четырёх раз: у микроспоридий, у санхитриевых (частично), у предка наземных грибов после отделения ольпидиума и в отдельных ветвях хитридиевых [36].
Синапоморфии афелид и грибов. Галиндо и соавторы (2023) нашли редкие вставки и делеции в консервативных белках, общие для афелид и грибов и отсутствующие у розеллы, микроспоридий, нуклеарий и животных, — молекулярное обоснование монофилии «афелиды + грибы» и парафилии опистоспоридий [19].
Тельца Воронина. Белок Hex-1 самособирается в гексагональные кристаллы внутри пероксисом; тельце удерживается у поры септы, а при разрыве гифы ток цитоплазмы прижимает его к поре за миллисекунды. Признак пецизомицетов — большинства плодосумчатых и плесневых аскомицетов; у сахаромицетов и тафриномицетов их нет [26].
Типы спаривания. У тетраполярных базидиомицетов совместимость задают два несцепленных локуса — A (гомеодоменные белки) и B (феромоны и рецепторы); у шизофиллума аллелей A более 300, B более 80, всего свыше 20 000 типов, и вероятность совместимости двух случайных спор превышает 98 % [30].
Задания с разбором
Задание 1
Сформулируйте два определения гриба — по образу жизни и по родству. В каких случаях они расходятся?
Разбор
По образу жизни гриб — эукариот с осмотрофным питанием (внешнее переваривание и всасывание), клеточной стенкой, размножением спорами и, как правило, телом из гиф. По родству гриб — член одной ветви древа эукариот внутри опистоконтов, сестринской нуклеариям. Расхождения: оомицеты, слизевики, плазмодиофоровые подходят под первое определение, но не входят в ветвь; микроспоридии, розелла, афелиды не подходят под первое (нет стенки на вегетативной стадии, фаготрофия), но входят в ветвь. Современная систематика пользуется вторым определением.
Задание 2
Опишите строение клеточной стенки гриба. Какие функции выполняют её компоненты и чем стенка отличается у разных групп?
Разбор
Внутренний слой — микрофибриллы хитина, сшитые с β-1,3-глюканом (прочность и упругость), снаружи — β-1,6-глюкан и маннопротеины (взаимодействие со средой, узнавание), часто меланин (защита от ультрафиолета и ферментов) и гидрофобины (водоотталкивание). Стенка составляет 20–40 % сухой массы. У зооспоровых грибов — хитин и глюканы; у мукоромицетов — хитин и хитозан; у аскомицетов и базидиомицетов — хитин, глюканы и маннопротеины; у дрожжей хитина 1–2 %, основа — глюканы и маннопротеины. У оомицетов стенка из целлюлозы, что указывает на их неродство грибам.
Задание 3
Почему клеточная стенка и осмотрофное питание — две стороны одного решения? Какие следствия имеет внешнее переваривание?
Разбор
Клетка со стенкой не может фагоцитировать: стенка не даёт мембране охватить частицу, зато защищает от осмотического разрыва при всасывании растворов. Поэтому стенка и всасывание сопутствуют друг другу. Следствия: набор выделяемых ферментов определяет субстрат гриба; ферменты и продукты становятся доступны соседям, что делает возможным горизонтальный перенос генов между грибами и бактериями; всасывание требует большой поверхности, что определяет нитчатую форму тела; гриб вынужден прорастать в субстрат, а не захватывать его.
Задание 4
Как растёт гифа? Почему рост только верхушечный и какое давление развивает гифа?
Разбор
К верхушке гифы по цитоскелету подходят пузырьки с ферментами синтеза стенки (хитинсинтазами, глюкансинтазами) и собираются в шпиценкёрпер; там стенка наращивается и остаётся мягкой, а по мере удаления от верхушки затвердевает из-за образования поперечных сшивок. Тургорное давление (0,5–1 МПа) растягивает только мягкую верхушку, поэтому гифа удлиняется, не утолщаясь. В аппрессориях паразитов давление достигает 8 МПа, что позволяет пробивать кутикулу растений.
Задание 5
Сравните септы мукоромицетов, аскомицетов и агарикомицетов. Что такое тельца Воронина и зачем они нужны?
Разбор
У мукоромицетов септ в вегетативном мицелии почти нет — гифы ценоцитные, многоядерные. У аскомицетов септа с простой центральной порой, через которую проходят цитоплазма, органеллы и ядра; у пецизомицетов рядом с порой лежат тельца Воронина — пероксисомные тельца из белка Hex-1, которые при повреждении гифы закупоривают пору и не дают вытечь цитоплазме всего мицелия. У агарикомицетов долипоровая септа: пора с бочонкообразным утолщением, прикрытая с двух сторон мембранными парентосомами; пропускает цитоплазму, но задерживает ядра, что поддерживает дикарион.
Задание 6
Чем митоз большинства грибов отличается от митоза животных и растений? Какие органеллы организуют веретено?
Разбор
У большинства грибов митоз закрытый: ядерная оболочка не распадается, веретено собирается внутри ядра. Его организуют полярные тельца веретена — многослойные белковые пластинки, встроенные в ядерную оболочку; центриолей у наземных грибов нет (у зооспоровых они сохраняются как базальные тельца жгутика). У животных митоз открытый, веретено организуют центросомы с центриолями; у растений — открытый, без центриолей.
Задание 7
Разделите споры грибов на митоспоры и мейоспоры, приведите примеры. В какой фазе — гаплоидной или диплоидной — проходит большая часть жизни гриба?
Разбор
Митоспоры образуются без мейоза: зооспоры хитридиевых, спорангиоспоры мукора, конидии пеницилла и аспергилла. Мейоспоры — после мейоза: аскоспоры в сумках, базидиоспоры на базидиях; у мукоромицетов мейоз проходит при прорастании зигоспоры. Большая часть жизни гриба проходит в гаплоидной фазе (мицелий, споры); у аскомицетов и базидиомицетов — в дикариотической (два гаплоидных ядра в клетке); диплоидна лишь зигота (у базидиомицетов — молодая базидия), которая сразу делится мейозом.
Задание 8
Что такое типы спаривания и чем они отличаются от полов? Почему у некоторых грибов их тысячи?
Разбор
Тип спаривания — генетически заданная совместимость: слиться могут клетки с разными аллелями локуса (или локусов) типа спаривания. От полов отличается тем, что партнёры морфологически одинаковы, нет гамет разного размера, а число типов может быть любым. У тетраполярных базидиомицетов совместимость определяют два локуса с множеством аллелей: у шизофиллума более 300 аллелей A и более 80 аллелей B дают свыше 20 000 типов. Это повышает вероятность встречи совместимого партнёра почти до 100 % при сохранении запрета на самооплодотворение.
Задание 9
Какие признаки грибов являются синапоморфиями (возникли у предка один раз), а какие возникали многократно или унаследованы от более древних предков? Приведите по два примера.
Разбор
Синапоморфии: хитиновая стенка вегетативной клетки с осмотрофией (у предка грибов без опистоспоридий), дикарион (у предка Dikarya), долипоровая септа (агарикомицеты), тельца Воронина (пецизомицеты), молекулярные вставки, общие для афелид и грибов. Многократно: гифы (два-три раза), дрожжевая форма (много раз), утрата жгутика (не менее четырёх раз), лихенизация, сложные плодовые тела. Унаследованы от общих с животными предков: хитин и хитинсинтазы, гликоген, задний жгутик, ланостерольный путь синтеза стеролов, плоские кристы митохондрий.
Задание 10
Назовите группы у основания древа грибов и укажите, какие «грибные» признаки у них отсутствуют. Почему их всё же относят к грибам?
Разбор
Афелиды, розелломицеты (криптомицеты) и микроспоридии. У афелид и розеллы нет стенки на питающейся стадии и питание фаготрофное; у микроспоридий нет жгутика, митохондрии редуцированы до митосом, нет гиф, геномы крайне малы. Относят к грибам по родству: на филогеномных древах они образуют ступени у основания грибной ветви после отделения нуклеарий, а афелиды делят с остальными грибами редкие молекулярные вставки. Сводки 2018–2022 годов числят их отделами царства Fungi; некоторые авторы называют их опистоспоридиями и оставляют «настоящие грибы» за ветвью с хитиновой стенкой.
Задание 11
Оомицет и гриб: укажите не менее пяти различий и объясните, почему сходство их образа жизни называют конвергенцией.
Разбор
Различия: стенка из целлюлозы и глюканов (у грибов хитин); диплоидный мицелий (гаплоидный); зооспоры с двумя разными жгутиками — перистым передним и гладким задним (один задний); запасное вещество миколаминарин (гликоген); лизин через диаминопимелат (α-аминоадипат); родство со страменопилами — бурыми водорослями и диатомеями (с животными); митохондрии с трубчатыми кристами (плоские). Сходство — гифы, осмотрофия, спорангии — возникло независимо как приспособление к одному образу жизни: всасыванию растворённых веществ из субстрата, в который организм прорастает. Это конвергенция.
Задание 12
Как филогеномика 2011–2023 годов изменила представления о микроспоридиях?
Разбор
Микроспоридий считали простейшими, а из-за отсутствия митохондрий — древнейшими эукариотами («архезоями»). В 2002 году у них нашли митосомы — остатки митохондрий, значит, митохондрии были и утрачены. В 2011 году открыли криптомицеты (родню розеллы) по ДНК из воды и почвы; в 2013-м геномы показали, что микроспоридии — ближайшие родственники розеллы и вместе с ней стоят у основания грибов; в 2014-м их объединили с афелидами в опистоспоридии, а в 2018–2023 годах выяснили, что афелиды ближе к остальным грибам, чем розелла и микроспоридии. Итог: микроспоридии — грибы, крайне упрощённые паразитизмом, и их малые геномы — результат потерь, а не древности.
Задание 13
Почему дрожжи и лишайники нельзя считать таксонами царства грибов?
Разбор
Дрожжи — одноклеточная форма роста, возникавшая независимо в разных ветвях: сахаромицеты, делящиеся дрожжи (тафриномицеты), базидиомицетные дрожжи (криптококк, малассезия), диморфные патогены. Это вторичное упрощение гифальных предков, а не ветвь древа. Лишайники — симбиоз гриба с фотобионтом; лихенизация возникала не один раз у аскомицетов и немногих базидиомицетов, лишайниковые грибы рассеяны по древу, а название лишайника — это название гриба. Таксон должен быть ветвью древа (монофилетической группой), а обе категории — полифилетические жизненные формы.
Задание 14
Сколько раз в эволюции грибов утрачивался жгутик и где на древе это произошло? Что показал пример ольпидиума?
Разбор
По распределению жгутиковых белков в геномах — не менее четырёх независимых утрат: у микроспоридий; у санхитриевых (жгутик укорочен до неподвижного псевдоцилия); у общего предка наземных грибов (зоопагомицетов, мукоромицетов, дикарий); в отдельных ветвях зооспоровых грибов. Ольпидиум — одноклеточный паразит корней с подвижными зооспорами, которого по строению относили к хитридиевым, — по геномам оказался ближайшим родственником наземных грибов. Значит, утрата жгутика у наземных грибов произошла после отделения ольпидиума, а жгутиковая стадия сохранялась у их предков дольше, чем считали.
Задание 15 (олимпиадное)
Аппрессорий гриба развивает давление 8,0 МПа. Рассчитайте по уравнению Вант-Гоффа, какая концентрация осмотически активного вещества (глицерина) нужна для такого давления при 25 °C (R = 8,314 Дж/(моль·К)). Какую силу создаёт это давление на проникающий отросток площадью 1 мкм²? Выразите давление в атмосферах.
Разбор
c = π/(RT) = 8,0·10⁶ / (8,314 · 298) ≈ 3230 моль/м³ ≈ 3,2 моль/л — именно такую концентрацию глицерина измерили в аппрессории возбудителя пирикуляриоза. Сила F = pS = 8,0·10⁶ Па · 10⁻¹² м² = 8·10⁻⁶ Н = 8 мкН. В атмосферах: 8,0·10⁶ / 1,013·10⁵ ≈ 79 атм — примерно в 40 раз больше давления в шине легкового автомобиля. Чтобы глицерин не вытекал, стенка аппрессория укреплена меланином.
Задание 16 (олимпиадное)
Гифа имеет радиус 2,5 мкм. Рассчитайте отношение площади боковой поверхности к объёму для гифы и для шаровидной клетки того же объёма, что отрезок гифы длиной 1 мм. Во сколько раз гифа выгоднее для всасывания?
Разбор
Для цилиндра S/V = 2πrL / (πr²L) = 2/r = 2 / 2,5 = 0,8 мкм⁻¹. Объём отрезка гифы V = πr²L = 3,14 · 6,25 · 1000 ≈ 19 600 мкм³. Радиус шара того же объёма R = (3V/4π)^(1/3) = (4690)^(1/3) ≈ 16,7 мкм; S/V = 3/R ≈ 0,18 мкм⁻¹. Отношение 0,8 / 0,18 ≈ 4,5: при том же объёме цитоплазмы гифа имеет в четыре с половиной раза большую поверхность для выделения ферментов и всасывания, и выигрыш растёт с длиной гифы.
Литература
- Alexopoulos C. J., Mims C. W., Blackwell M. Introductory Mycology. 4th ed. New York: John Wiley & Sons, 1996.
- Белякова Г. А., Дьяков Ю. Т., Тарасов К. Л. Ботаника. Т. 1. Водоросли и грибы. М.: Академия, 2006.
- Bartnicki-Garcia S. Cell wall chemistry, morphogenesis, and taxonomy of fungi // Annual Review of Microbiology. 1968. Vol. 22. P. 87–108.
- Whittaker R. H. New concepts of kingdoms of organisms // Science. 1969. Vol. 163. P. 150–160.
- Cavalier-Smith T. The origin of fungi and pseudofungi // Evolutionary Biology of the Fungi / Ed. A. D. M. Rayner, C. M. Brasier, D. Moore. Cambridge: Cambridge University Press, 1987. P. 339–353.
- Baldauf S. L., Palmer J. D. Animals and fungi are each other's closest relatives: congruent evidence from multiple proteins // Proceedings of the National Academy of Sciences USA. 1993. Vol. 90. P. 11558–11562.
- James T. Y., Kauff F., Schoch C. L. et al. Reconstructing the early evolution of Fungi using a six-gene phylogeny // Nature. 2006. Vol. 443. P. 818–822.
- Hibbett D. S., Binder M., Bischoff J. F. et al. A higher-level phylogenetic classification of the Fungi // Mycological Research. 2007. Vol. 111. P. 509–547.
- Jones M. D. M., Forn I., Gadelha C. et al. Discovery of novel intermediate forms redefines the fungal tree of life // Nature. 2011. Vol. 474. P. 200–203.
- James T. Y., Pelin A., Bonen L. et al. Shared signatures of parasitism and phylogenomics unite Cryptomycota and Microsporidia // Current Biology. 2013. Vol. 23. P. 1548–1553.
- Karpov S. A., Mamkaeva M. A., Aleoshin V. V. et al. Morphology, phylogeny, and ecology of the aphelids (Aphelidea, Opisthokonta) and proposal for the new superphylum Opisthosporidia // Frontiers in Microbiology. 2014. Vol. 5. Art. 112.
- Naranjo-Ortiz M. A., Gabaldón T. Fungal evolution: diversity, taxonomy and phylogeny of the Fungi // Biological Reviews. 2019. Vol. 94. P. 2101–2137.
- James T. Y., Stajich J. E., Hittinger C. T., Rokas A. Toward a fully resolved fungal tree of life // Annual Review of Microbiology. 2020. Vol. 74. P. 291–313.
- Gow N. A. R., Latge J.-P., Munro C. A. The fungal cell wall: structure, biosynthesis, and function // Microbiology Spectrum. 2017. Vol. 5. FUNK-0035-2016.
- Naranjo-Ortiz M. A., Gabaldón T. Fungal evolution: cellular, genomic and metabolic complexity // Biological Reviews. 2020. Vol. 95. P. 1198–1232.
- Deacon J. W. Fungal Biology. 4th ed. Malden: Blackwell Publishing, 2006.
- Richards T. A., Talbot N. J. Horizontal gene transfer in osmotrophs: playing with public goods // Nature Reviews Microbiology. 2013. Vol. 11. P. 720–727.
- Torruella G., Grau-Bové X., Moreira D. et al. Global transcriptome analysis of the aphelid Paraphelidium tribonemae supports the phagotrophic origin of fungi // Communications Biology. 2018. Vol. 1. Art. 231.
- Galindo L. J., Torruella G., López-García P. et al. Phylogenomics supports the monophyly of aphelids and fungi and identifies new molecular synapomorphies // Systematic Biology. 2023. Vol. 72. P. 505–515.
- Riquelme M., Aguirre J., Bartnicki-García S. et al. Fungal morphogenesis, from the polarized growth of hyphae to complex reproduction and infection structures // Microbiology and Molecular Biology Reviews. 2018. Vol. 82. e00068-17.
- Howard R. J., Ferrari M. A., Roach D. H., Money N. P. Penetration of hard substrates by a fungus employing enormous turgor pressures // Proceedings of the National Academy of Sciences USA. 1991. Vol. 88. P. 11281–11284.
- de Jong J. C., McCormack B. J., Smirnoff N., Talbot N. J. Glycerol generates turgor in rice blast // Nature. 1997. Vol. 389. P. 244–245.
- Webster J., Weber R. W. S. Introduction to Fungi. 3rd ed. Cambridge: Cambridge University Press, 2007.
- Dee J. M., Mollicone M., Longcore J. E., Roberson R. W., Berbee M. L. Cytology and molecular phylogenetics of Monoblepharidomycetes provide evidence for multiple independent origins of the hyphal habit in the Fungi // Mycologia. 2015. Vol. 107. P. 710–728.
- Kiss E., Hegedüs B., Virágh M. et al. Comparative genomics reveals the origin of fungal hyphae and multicellularity // Nature Communications. 2019. Vol. 10. Art. 4080.
- Jedd G., Chua N.-H. A new self-assembled peroxisomal vesicle required for efficient resealing of the plasma membrane // Nature Cell Biology. 2000. Vol. 2. P. 226–231.
- Jaspersen S. L., Winey M. The budding yeast spindle pole body: structure, duplication, and function // Annual Review of Cell and Developmental Biology. 2004. Vol. 20. P. 1–28.
- Velasco A. M., Leguina J. I., Lazcano A. Molecular evolution of the lysine biosynthetic pathways // Journal of Molecular Evolution. 2002. Vol. 55. P. 445–459.
- Desmond E., Gribaldo S. Phylogenomics of sterol synthesis: insights into the origin, evolution, and diversity of a key eukaryotic feature // Genome Biology and Evolution. 2009. Vol. 1. P. 364–381.
- Casselton L. A., Olesnicky N. S. Molecular genetics of mating recognition in basidiomycete fungi // Microbiology and Molecular Biology Reviews. 1998. Vol. 62. P. 55–70.
- Yafetto L., Carroll L., Cui Y. et al. The fastest flights in nature: high-speed spore discharge mechanisms among fungi // PLoS ONE. 2008. Vol. 3. e3237.
- Roper M., Pepper R. E., Brenner M. P., Pringle A. Explosively launched spores of ascomycete fungi have drag-minimizing shapes // Proceedings of the National Academy of Sciences USA. 2010. Vol. 107. P. 17474–17479.
- Tedersoo L., Sánchez-Ramírez S., Kõljalg U. et al. High-level classification of the Fungi and a tool for evolutionary ecological analyses // Fungal Diversity. 2018. Vol. 90. P. 135–159.
- Wijayawardene N. N., Hyde K. D., Dai D. Q. et al. Outline of Fungi and fungus-like taxa — 2021 // Mycosphere. 2022. Vol. 13. P. 53–453.
- Spatafora J. W., Chang Y., Benny G. L. et al. A phylum-level phylogenetic classification of zygomycete fungi based on genome-scale data // Mycologia. 2016. Vol. 108. P. 1028–1046.
- Galindo L. J., López-García P., Torruella G., Karpov S., Moreira D. Phylogenomics of a new fungal phylum reveals multiple waves of reductive evolution across Holomycota // Nature Communications. 2021. Vol. 12. Art. 4973.
- Li Y., Steenwyk J. L., Chang Y. et al. A genome-scale phylogeny of the kingdom Fungi // Current Biology. 2021. Vol. 31. P. 1653–1665.
- Williams B. A. P., Hirt R. P., Lucocq J. M., Embley T. M. A mitochondrial remnant in the microsporidian Trachipleistophora hominis // Nature. 2002. Vol. 418. P. 865–869.
- Гарибова Л. В., Лекомцева С. Н. Основы микологии: морфология и систематика грибов и грибоподобных организмов. М.: Товарищество научных изданий КМК, 2005.
- Ocaña-Pallarès E., Williams T. A., López-Escardó D. et al. Divergent genomic trajectories predate the origin of animals and fungi // Nature. 2022. Vol. 609. P. 747–753.
- Nagy L. G., Kovács G. M., Krizsán K. Complex multicellularity in fungi: evolutionary convergence, single origin, or both? // Biological Reviews. 2018. Vol. 93. P. 1778–1794.
- Berbee M. L., James T. Y., Strullu-Derrien C. Early diverging fungi: diversity and impact at the dawn of terrestrial life // Annual Review of Microbiology. 2017. Vol. 71. P. 41–60.
- Loron C. C., François C., Rainbird R. H. et al. Early fungi from the Proterozoic era in Arctic Canada // Nature. 2019. Vol. 570. P. 232–235.
Обсуждение
Загружаем обсуждение…