
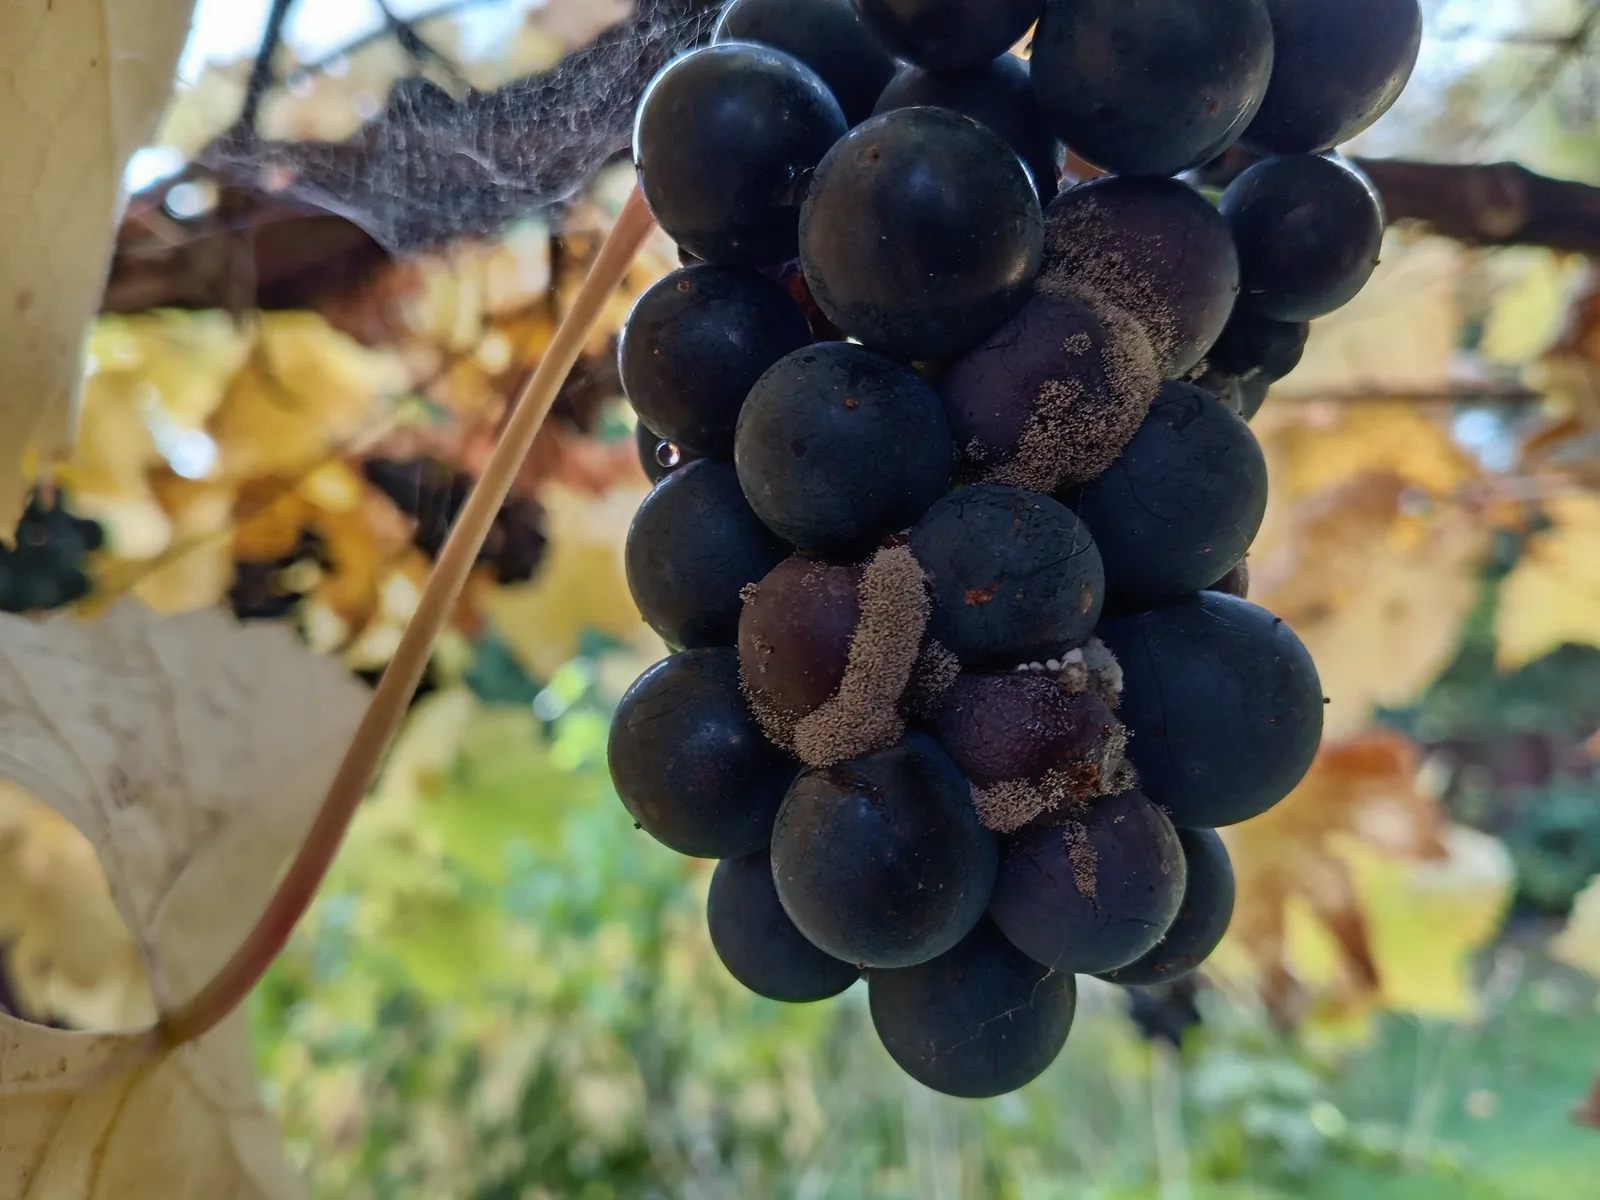
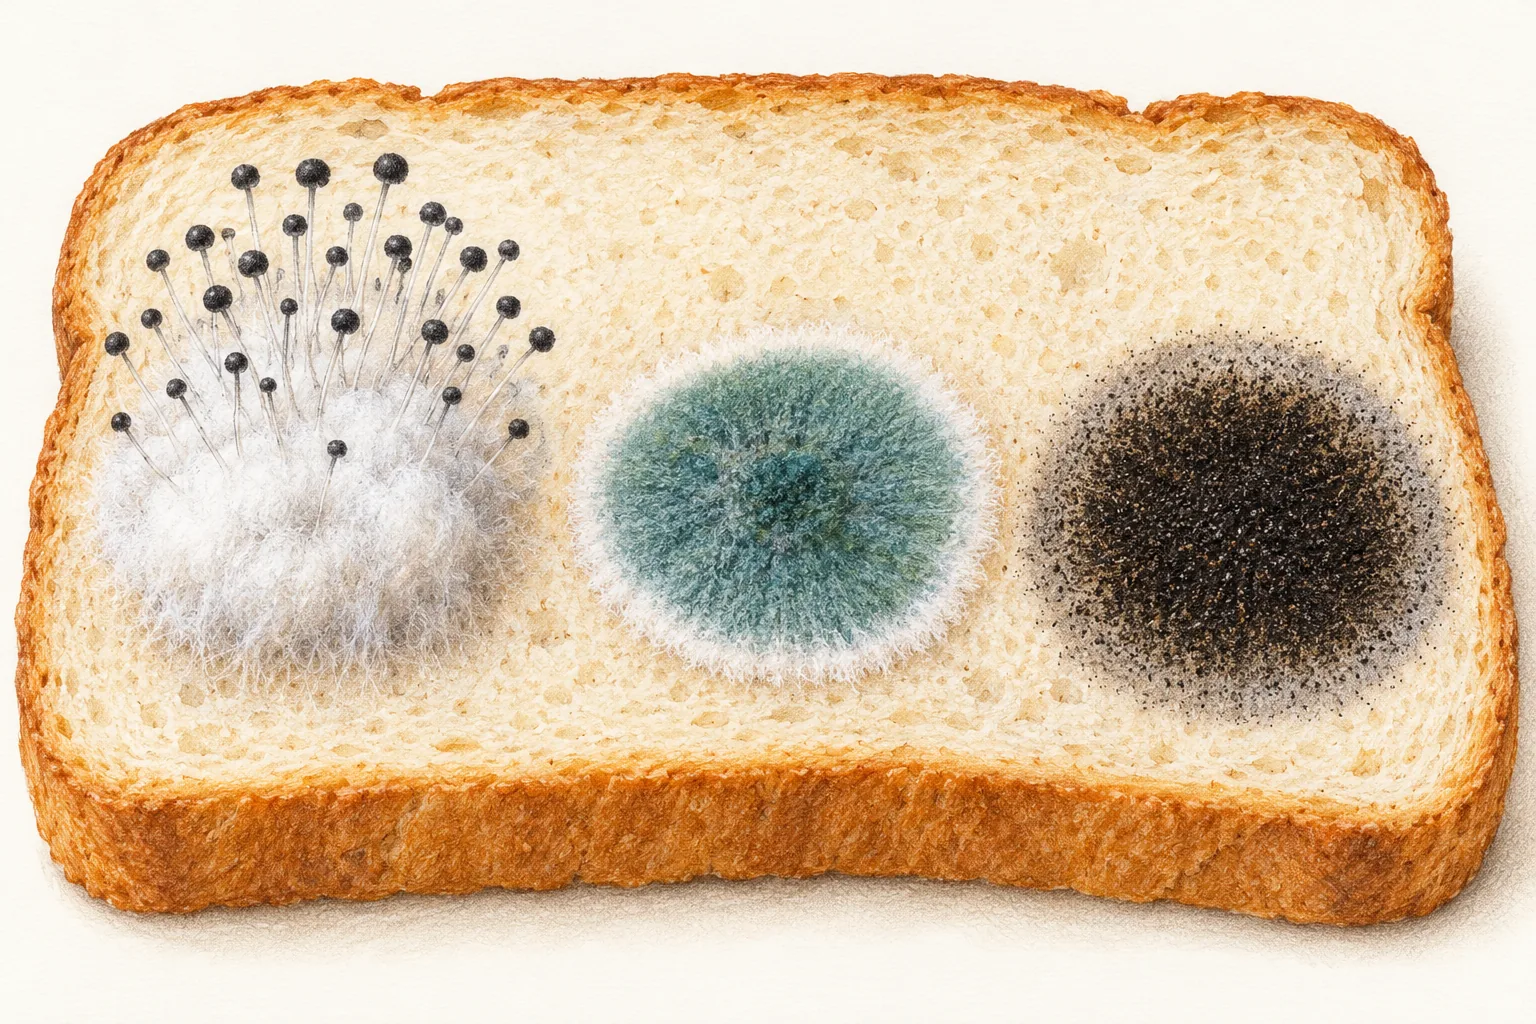
Каждый вдох приносит в лёгкие человека несколько сотен спор плесневого гриба аспергилла — и так каждый день, всю жизнь. Зелёный налёт на хлебе, пушистая плесень на варенье, чёрные точки мукора, сизая пыль на заплесневелом лимоне — всё это бесполые споры, которые гриб производит миллиардами, чтобы разослать во все стороны копии самого себя. Бесполое размножение — главный способ, которым грибы захватывают пространство: оно быстрое, не требует партнёра и даёт потомство, генетически тождественное родителю, а значит, так же хорошо приспособленное к субстрату, на котором тот уже преуспел.
В статье разобраны:
- что такое бесполое размножение и митоспоры, чем они отличаются от спор полового процесса;
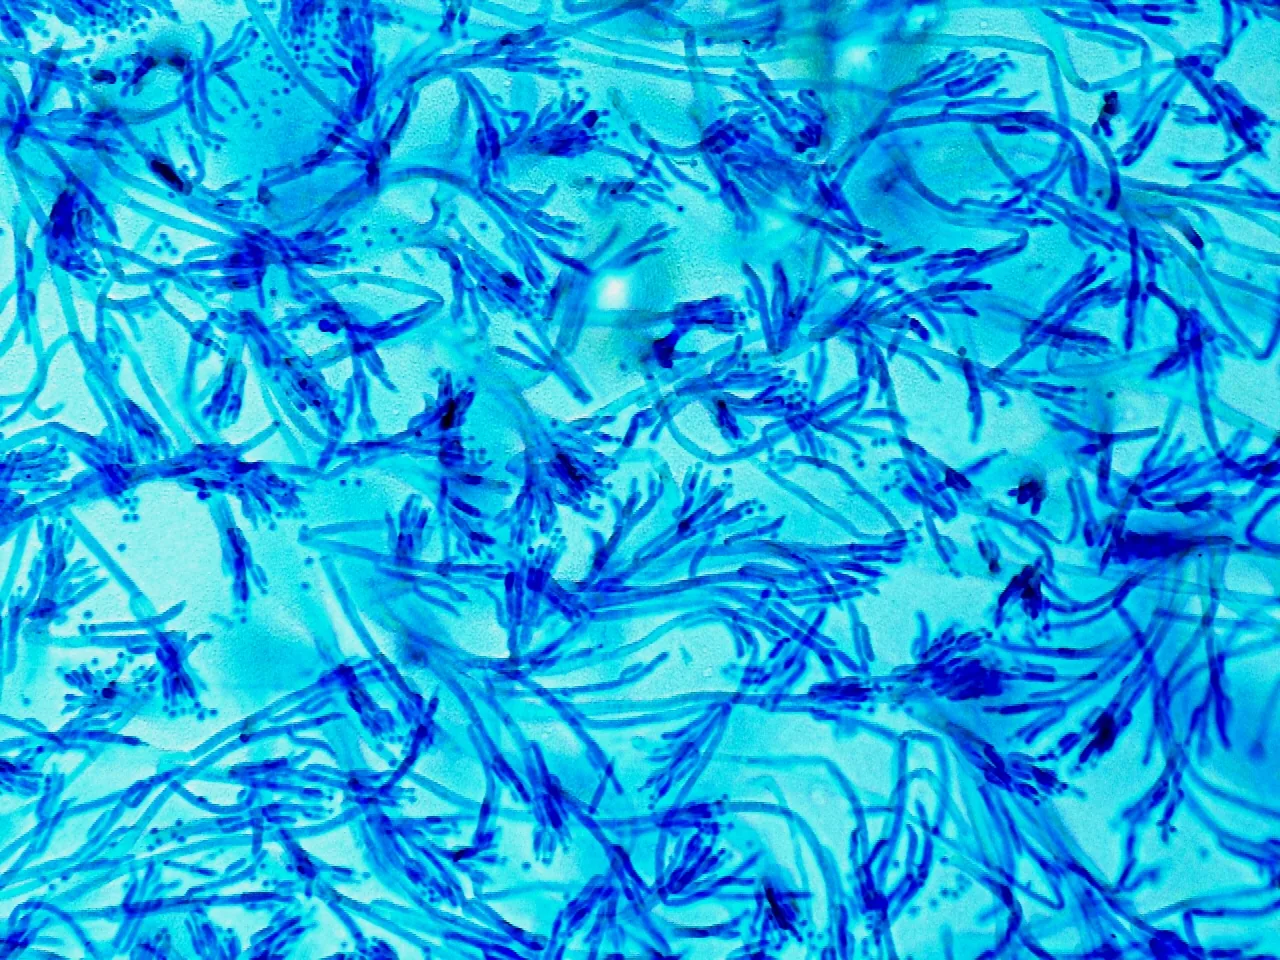
- конидии: как они образуются (фиалиды, аннеллиды, артроконидии и другие способы), как устроены конидиеносцы пеницилла и аспергилла, как включается конидиеобразование;
- спорангиоспоры мукоромицетов: спорангий, колумелла, выстрел пилоболуса;
- зооспоры: строение, плавание, хемотаксис, инцистирование; зооспоры как переносчики вирусов и возбудители хитридиомикоза;
- вегетативное размножение: почкование, деление, хламидоспоры, фрагменты мицелия;
- физика расселения спор: размеры, оседание, выстрелы;
- споры в воздухе, аллергия и инфекции; несовершенные грибы и «один гриб — одно название»;
- генетика бесполого размножения: клоны, гетерокариоз, парасексуальный цикл.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О строении клетки — в статье «Строение грибной клетки», о признаках и границах царства — в статье «Что объединяет грибы», о сумчатых грибах — в статье «Аскомицеты», о хитридиевых — в статье «Хитридиевые грибы».
- Как изучали споры грибов
- Митоспоры и мейоспоры
- Три типа бесполых спор
- Конидии
- Как образуются конидии
- Как включается конидиеобразование
- Спорангиоспоры
- Зооспоры
- Вегетативное размножение
- Физика расселения
- Споры в воздухе: аллергия и инфекции
- Несовершенные грибы и одно название
- Генетика бесполого размножения
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали споры грибов
Что плесень размножается спорами, доказал в 1729 году Пьер Антонио Микели: он переносил «пыль» с плесени на свежие срезы дыни и получал ту же плесень, а без переноса срезы оставались чистыми. Это был первый опыт, показавший, что грибы не зарождаются из гнили сами собой [1, 2]. Полтора века спустя Антон де Бари проследил жизненные циклы сумчатых грибов и установил, что многие «виды» плесеней — на самом деле бесполые стадии грибов с сумками. Но связать стадии удавалось не всегда, и в 1880-х годах Пьер Андреа Саккардо построил для несвязанных форм отдельную систему по форме, перегородкам и окраске конидий — удобную для определения, но ничего не говорящую о родстве [3, 4].
- 1729П. А. Микели: споры плесеней прорастают и дают ту же плесень — бесполое размножение грибов спорами
- 1866А. де Бари: конидии — не отдельные виды, а бесполые стадии сумчатых грибов
- 1880П. Саккардо делит несовершенные грибы по форме, перегородкам и окраске конидий
- 1953С. Хьюз: важно не как выглядит конидия, а как она образуется — начало учения о конидиогенезе
- 1956Г. Понтекорво: парасексуальный цикл — обмен генами без полового процесса
- 1960Ультраструктура зооспор — надёжный признак родства у хитридиевых (Д. Барр, 1980)
- 1971К. Ингольд: «Споры грибов: освобождение и рассеивание» — физика расселения
- 1988Гены brlA, abaA, wetA — каскад конидиеобразования аспергилла
- 2006Молекулярное древо: несовершенные грибы рассыпаны по аскомицетам и базидиомицетам
- 2008Съёмка выстрелов спор на 250 000 кадров в секунду: ускорения до 180 000 g
- 2011Амстердамская декларация: «один гриб — одно название», конец двойных имён анаморф
- 2021Санхитриевые: зооспоры с неподвижным жгутиком; жгутик утрачен в царстве не менее четырёх раз
- первые наблюдения
- систематика конидий
- генетика и древа
- физика расселения
В 1953 году Стэнли Хьюз предложил смотреть не на готовую конидию, а на то, как она рождается, — и описал основные типы конидиогенеза, которые используют до сих пор [5]. Сесил Ингольд в середине XX века превратил изучение расселения спор в точную науку: он измерял, как споры отрываются, летят и оседают [6]. В 1980-х годах на аспергилле нашли гены, включающие образование конидий, в 2008 году выстрелы спор сняли на скорости 250 тысяч кадров в секунду [7, 8], а молекулярные древа 2000-х годов разнесли «несовершенные грибы» по их настоящим местам среди аскомицетов и базидиомицетов [9].
Митоспоры и мейоспоры
Спора — клетка, предназначенная для расселения или переживания неблагоприятных условий. У грибов споры бывают двух родов. Мейоспоры образуются после мейоза и несут перекомбинированные гены: аскоспоры в сумках, базидиоспоры на базидиях, споры, выходящие из проросшей зигоспоры мукора. Митоспоры образуются без мейоза, обычным делением ядер, и генетически тождественны родительскому мицелию. Бесполое размножение — это размножение митоспорами, и у грибов оно преобладает: многие виды размножаются только так, а у остальных за один сезон бесполых поколений проходит десятки, а половое — одно [10, 11].
Зачем грибу бесполое размножение, если оно не даёт новых сочетаний генов? Потому что гриб, выросший на субстрате, уже доказал, что его генотип к этому субстрату подходит, и выгоднее разослать его копии, чем экспериментировать. Споры к тому же дешевы: конидия пеницилла — это одна клетка размером 3 мкм, а колония производит их миллиардами. Половой процесс грибы включают, как правило, когда субстрат истощается и нужно пережить плохие времена или сменить место.
Три типа бесполых спор
Митоспоры грибов различаются тем, где и как они образуются и как расселяются.
- Где образуютсяна конидиеносцах, открыто; отшнуровываются или отчленяются
- У когоаскомицеты и базидиомицеты; ржавчина — урединиоспоры
- Как расселяютсяветром, водой, насекомыми; сухие, часто с меланином
- Примерыпеницилл, аспергилл, ботритис, кладоспориум
- Где образуютсявнутри спорангия, делением протопласта
- У когомукоромицеты; у зоопагомицетов — споровые мешочки на один-несколько спор
- Как расселяютсяветром, каплями, выстрелом целого спорангия
- Примерымукор, ризопус, пилоболус
- Где образуютсявнутри зооспорангия; выходят через пору
- У когохитридиевые, бластокладиевые, неокаллимастиговые, ольпидиевые
- Как расселяютсяплавают сами, со жгутиком, часы; затем инцистируются
- Примерыбатрахохитриум, синхитриум, алломицес
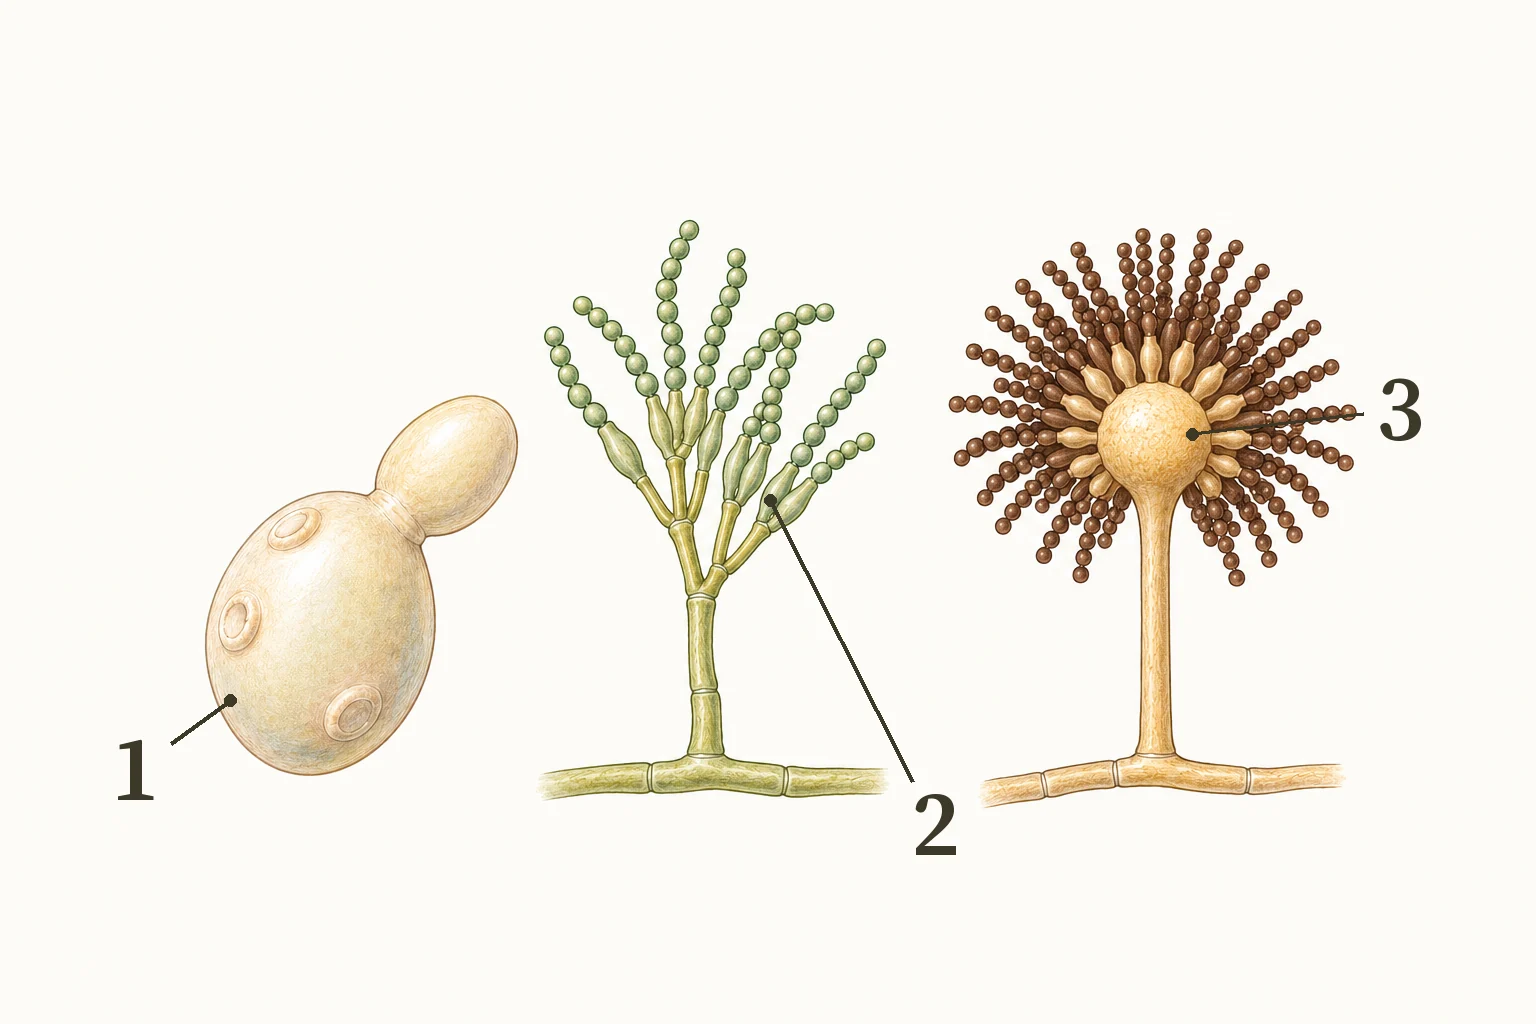
- 1конидиеносец пеницилла
- 2метула — веточка конидиеносца
- 3фиалида — бутылковидная клетка, отшнуровывающая конидии
- 4цепочка конидий: самая молодая — у основания
- 5опорная клетка аспергилла, из которой растёт конидиеносец
- 6вздутие конидиеносца, несущее фиалиды лучами
- 7спорангиеносец мукора
- 8колумелла — стерильное вздутие внутри спорангия
- 9спорангий со спорангиоспорами
- 10ризоиды хитридиевого гриба в субстрате
- 11зооспорангий
- 12пора выхода
- 13зооспоры с одним задним жгутиком
Зооспоры — самый древний тип: они есть у зооспоровых грибов, стоящих у основания древа, и плавают с помощью заднего жгутика, унаследованного от общего предка с животными. Спорангиоспоры образуются внутри замкнутого мешка — спорангия — и характерны для мукоромицетов. Конидии образуются открыто, на поверхности специальных гиф, и господствуют у аскомицетов и базидиомицетов — то есть у 97 % описанных видов грибов [3, 12].
Конидии
Конидия — бесполая спора, которая образуется не внутри спорангия, а снаружи, на специализированной гифе — конидиеносце — или прямо на обычной гифе. Конидии бывают одноклеточными и многоклеточными, бесцветными и окрашенными меланином, шаровидными, веретеновидными, нитевидными, звёздчатыми; по форме и окраске их описывал Саккардо, и его термины — амероспоры (одноклеточные), дидимоспоры (двуклеточные), фрагмоспоры (с поперечными перегородками), диктиоспоры (с перегородками в двух направлениях), сколекоспоры (нитевидные), стауроспоры (звёздчатые) — используют до сих пор [4].
Два хрестоматийных конидиеносца — у пеницилла и аспергилла. У пеницилла конидиеносец ветвится на вершине, как кисточка (отсюда латинское название — «кисточка»): веточки-метулы несут бутылковидные клетки — фиалиды, — и каждая фиалида отшнуровывает из горлышка цепочку конидий. У аспергилла конидиеносец не ветвится, а вздувается на конце в шарик, и фиалиды сидят на нём радиально, как лучи, — конидиеносец похож на кропило (лат. aspergillum), которым священник окропляет прихожан. В обоих случаях конидии в цепочке стареют снизу вверх: самая молодая — у фиалиды, самая старая — на конце цепочки [10, 3].
Конидиеносцы могут собираться в сложные структуры — конидиомы. Пучок склеенных конидиеносцев — коремия (синнема); подушечка — спородохий; кувшинчик, погружённый в ткань растения, с отверстием наверху — пикнида; блюдце под покровом хозяина — ацервула. Пикниды и ацервулы характерны для паразитов растений: они защищают споры и выпускают их в слизи, которую разносят капли дождя и насекомые [13].
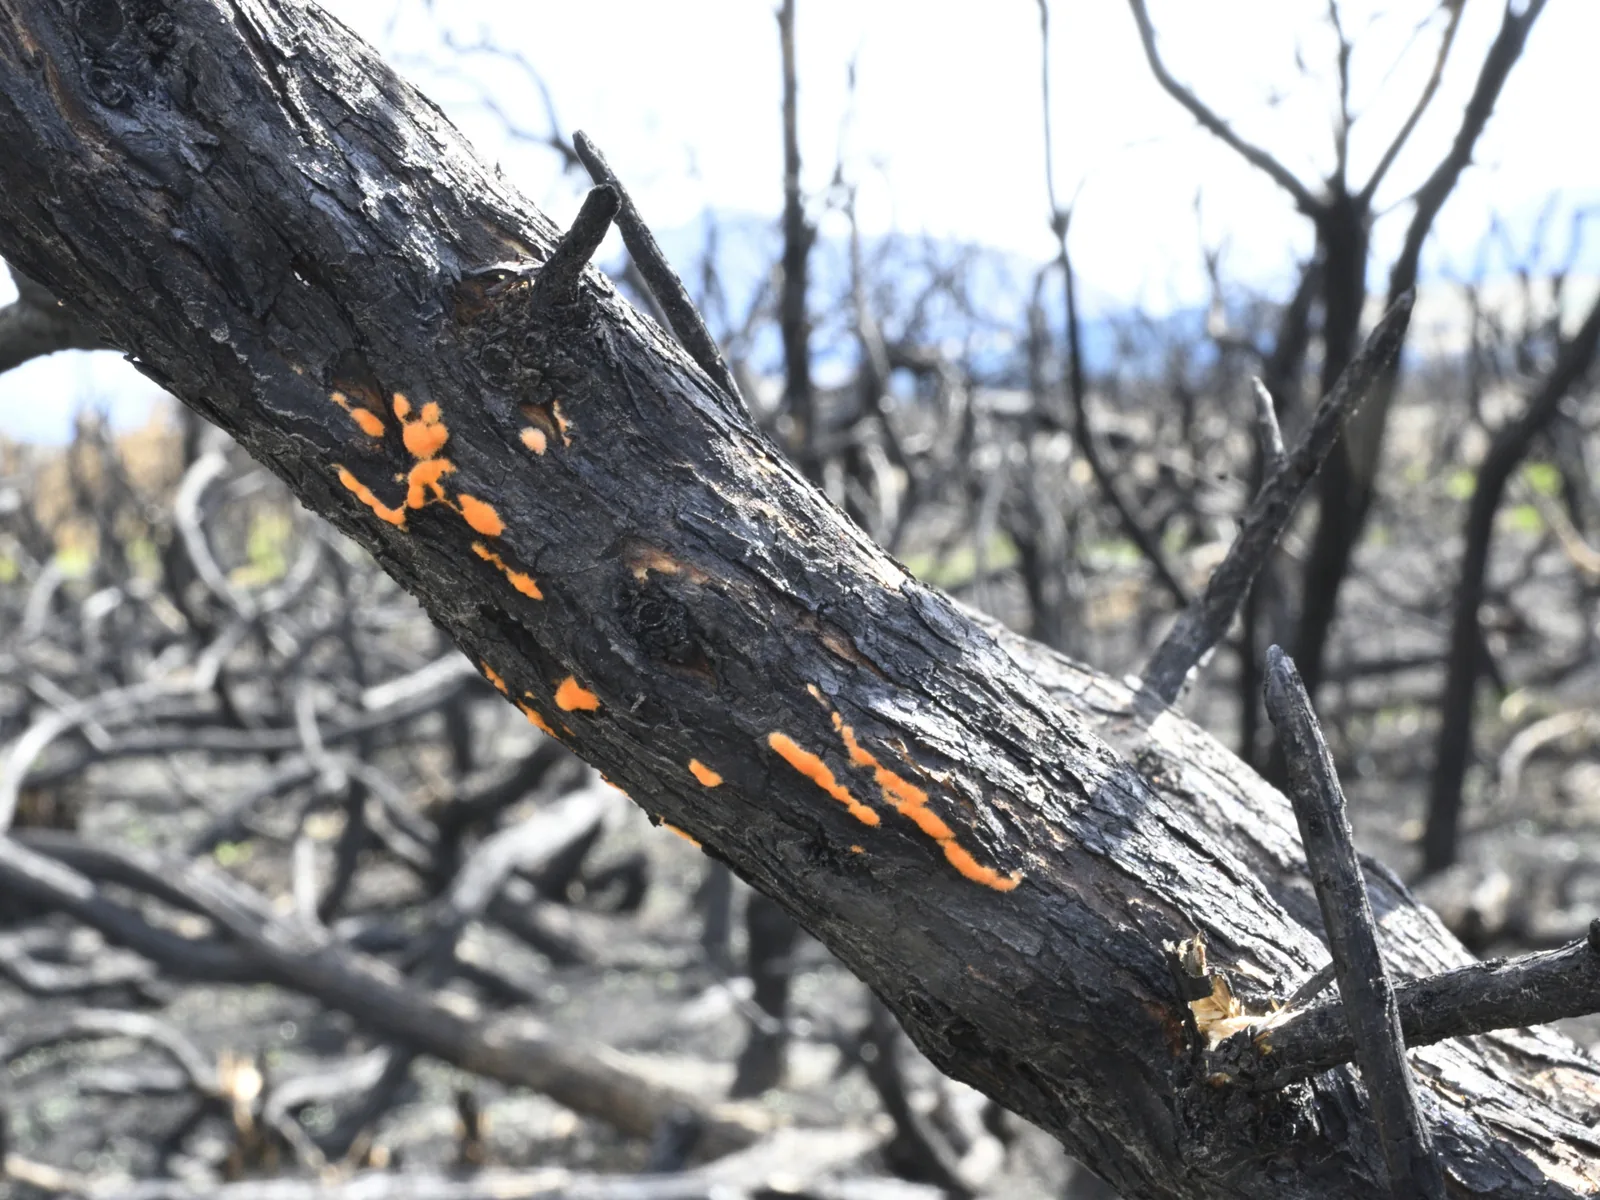
Конидии образуют и базидиомицеты. Урединиоспоры ржавчинных грибов — именно конидии: они повторяют заражение злаков всё лето, а их оранжевые пустулы и дали болезни имя. Многие шляпочные грибы образуют оидии — конидии, на которые распадаются гифы [10].
Как образуются конидии
Хьюз показал, что для систематики важнее не форма конидии, а то, как она отделяется от родительской клетки. Все способы сводятся к двум [5, 4].
- Фиалидныеиз горлышка бутылковидной клетки, цепочкой: пеницилл, аспергилл, фузариум
- Аннеллидныепосле каждой конидии на клетке остаётся кольцо: скопуляриопсис
- Симподиальныеконидиеносец растёт зигзагом, конидия на каждом колене: ботритис, споротрикс
- Через поруконидия выдувается через пору в толстой стенке: альтернария, гельминтоспориум
- Почкованиембластоконидии дрожжей; в цепочках — кладоспориум
- Артроконидиигифа распадается на членики: геотрихум, кокцидиоидес
- Хламидоспорытолстостенные покоящиеся клетки внутри гифы: кандида, фузариум
- Алевриоконидииконидия — вся вздутая верхушка клетки, отламывается: микроспорум
Бластический конидиогенез: конидия выдувается из клетки-родителя, как почка, и отделяется перегородкой. Если конидии одна за другой выходят из горлышка одной и той же клетки, та называется фиалидой (пеницилл, аспергилл, фузариум). Если после каждой конидии на верхушке остаётся кольцевой рубец, клетка — аннеллида. Если конидиеносец после каждой конидии продолжает расти вбок и получается зигзаг с конидиями на коленах — рост симподиальный (ботритис, споротрикс). У альтернарии и гельминтоспориума конидия выдувается через пору в толстой тёмной стенке и сама может образовывать следующую — получаются цепочки крупных многоклеточных диктиоспор. Почкование дрожжей — тоже бластический конидиогенез: почка и есть конидия.
Талический конидиогенез: в спору превращается целая, уже существующая клетка гифы. Если гифа распадается на членики — это артроконидии (геотрихум, возбудитель кокцидиоидомикоза); если отдельная клетка внутри гифы округляется, утолщает стенку и накапливает запасы — это хламидоспора (кандида, фузариум); если вздувается и отламывается верхушка — алевриоконидия.
Споры, которые нельзя назвать безобидными. Артроконидии гриба Coccidioides из пустынных почв юго-запада США и Мексики поднимаются с пылью; вдохнув их, человек заболевает кокцидиоидомикозом — «лихорадкой долины», которой ежегодно заболевают десятки тысяч людей, а раскопки, стройки и пыльные бури дают вспышки [14]. Хламидоспоры кандиды образуются только при недостатке кислорода и питания; их используют для определения вида в лаборатории, а зачем они нужны самому грибу, до конца не ясно [15].
Как включается конидиеобразование
На модельном грибе Aspergillus nidulans генетики разобрали, какие гены переключают гифу с роста на спороношение. Нужен сигнал — выход гифы на воздух, свет, сухость, нехватка питания; затем срабатывает каскад из трёх регуляторов, названных по виду мутантов [7].
У мутантов по гену brlA конидиеносец растёт бесконечно длинной палочкой, не образуя ни вздутия, ни спор, — их назвали «щетинистыми» (bristle). У мутантов abaA вместо фиалид получаются цепочки вздутий без конидий — «абакус», счёты. У мутантов wetA конидии образуются, но не созревают: не накапливают трегалозу и защитные белки и лопаются — «мокрые» колонии. Три гена включаются по очереди, а последний через обратную связь выключает первый, так что спороношение завершается само. Похожие каскады найдены у пеницилла, у возбудителя аспергиллёза и у многих других плесеней [7].
У нейроспоры конидиеобразование подчиняется биологическим часам: в темноте гриб образует полосу макроконидий раз в сутки, и по полосам на длинной «гоночной» трубке можно видеть период часов. На этом грибе нашли гены часов (frequency, white collar), устроенных по тому же принципу, что часы животных [16, 17].
Зрелая конидия — покоящаяся клетка с низким содержанием воды, запасом трегалозы и липидов, толстой стенкой, часто с меланином, и наружным слоем гидрофобинов, которые собираются в «палочковый» узор и делают спору несмачиваемой. Такая спора не слипается с соседями, не намокает и легко подхватывается ветром; меланин защищает её от ультрафиолета и от фагоцитов. Прорастает конидия, когда есть вода и источник углерода: за несколько часов она набухает, включает синтез белка и выпускает ростковую трубку [18, 19, 20].
Спорангиоспоры
Спорангиоспоры образуются внутри замкнутого мешка — спорангия, — где многоядерный протопласт делится на сотни или тысячи одноядерных спор. Это бесполое размножение мукоромицетов: мукора, ризопуса, пилоболуса. Спорангий сидит на спорангиеносце, а внутрь спорангия вдаётся стерильное вздутие спорангиеносца — колумелла. Созревшая стенка спорангия растворяется или лопается, споры высыпаются и разносятся ветром или каплями воды; у ризопуса колумелла после этого выворачивается зонтиком [10, 3].
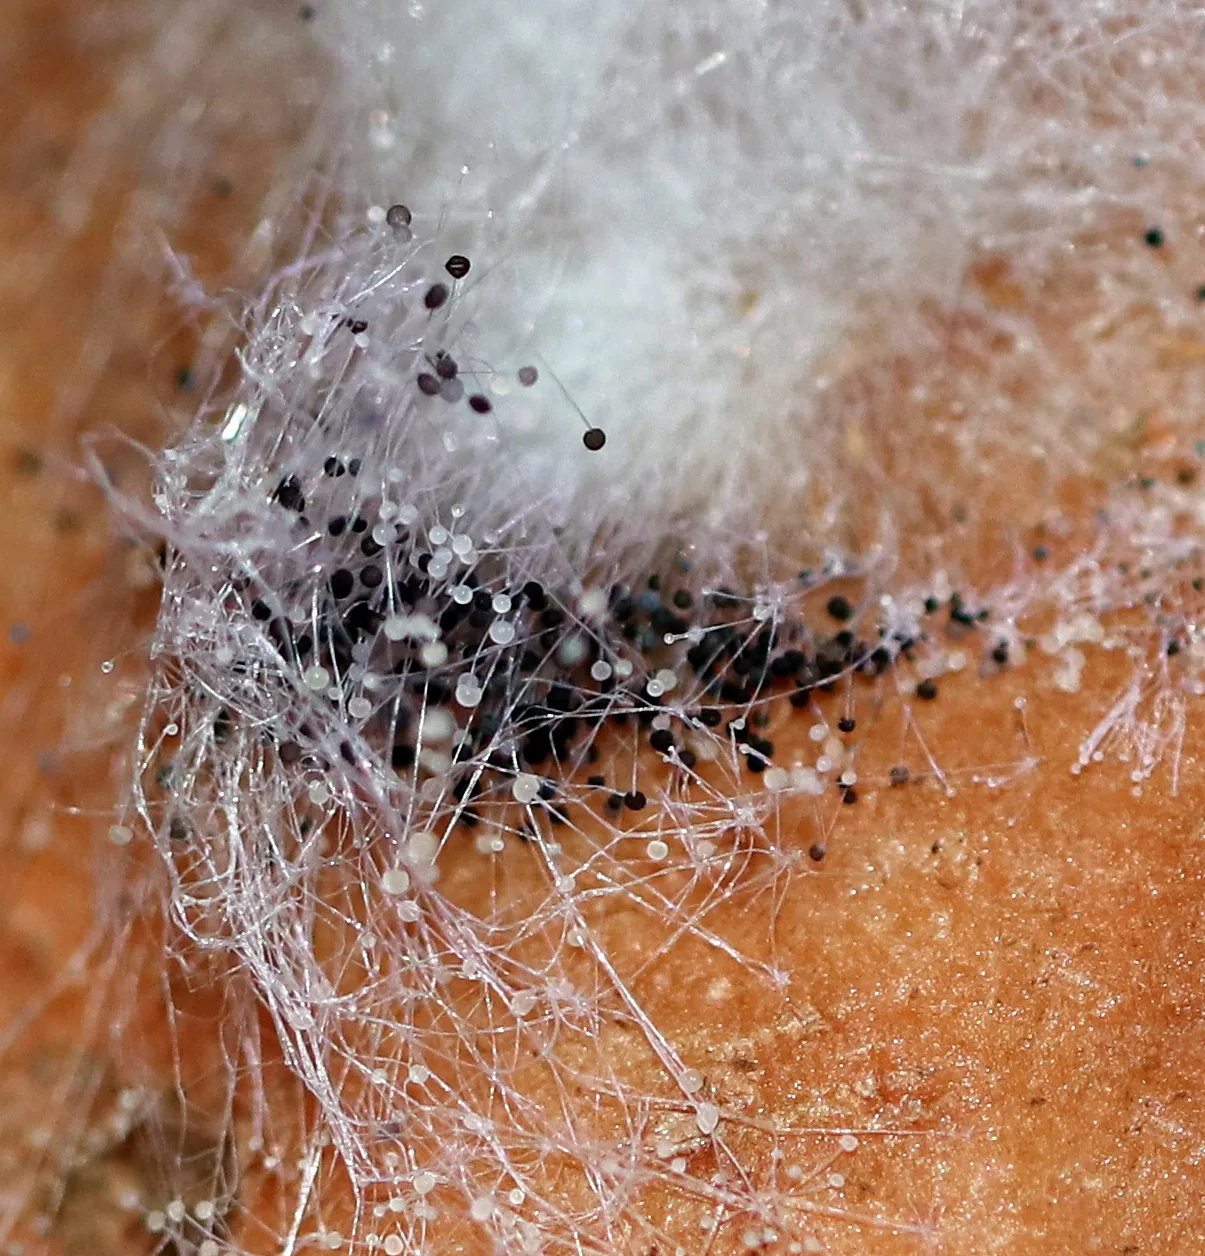
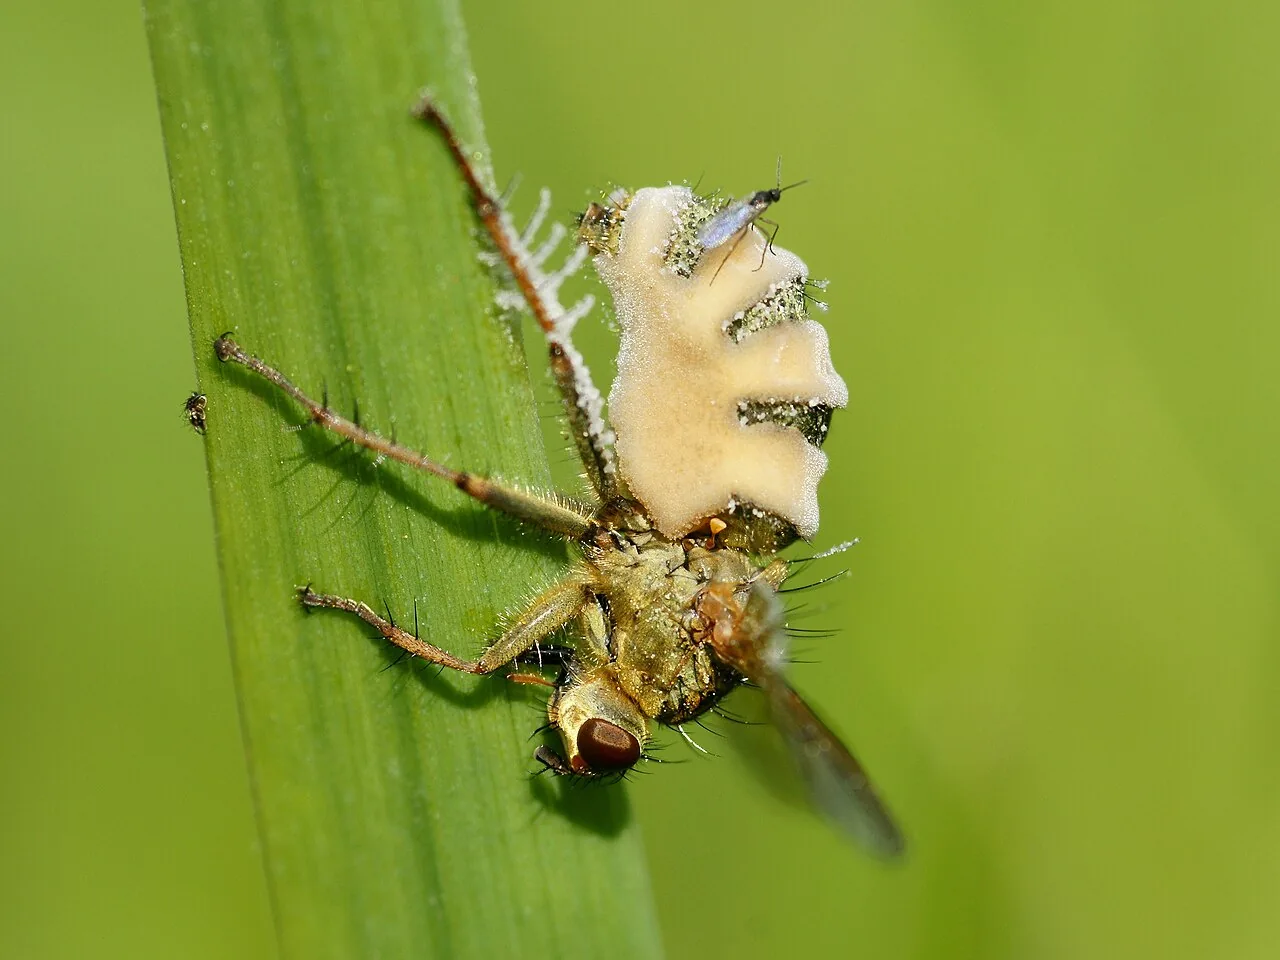
У многих мукоромицетов спорангии уменьшены: спорангиоли содержат по нескольку спор или одну, а мероспорангии — цилиндрические мешочки, в которых споры лежат в один ряд. Односпоровый спорангиоль внешне неотличим от конидии, и считается, что конидии зоопагомицетов и некоторых мукоромицетов — это спорангии, сократившиеся до одной споры [3, 21]. У энтомофторы, паразита мух, односпоровые спорангиоли выстреливаются с погибшего насекомого и, если не попали на новую муху, прорастают вторичными спорами-«ракетами», стреляющими снова.
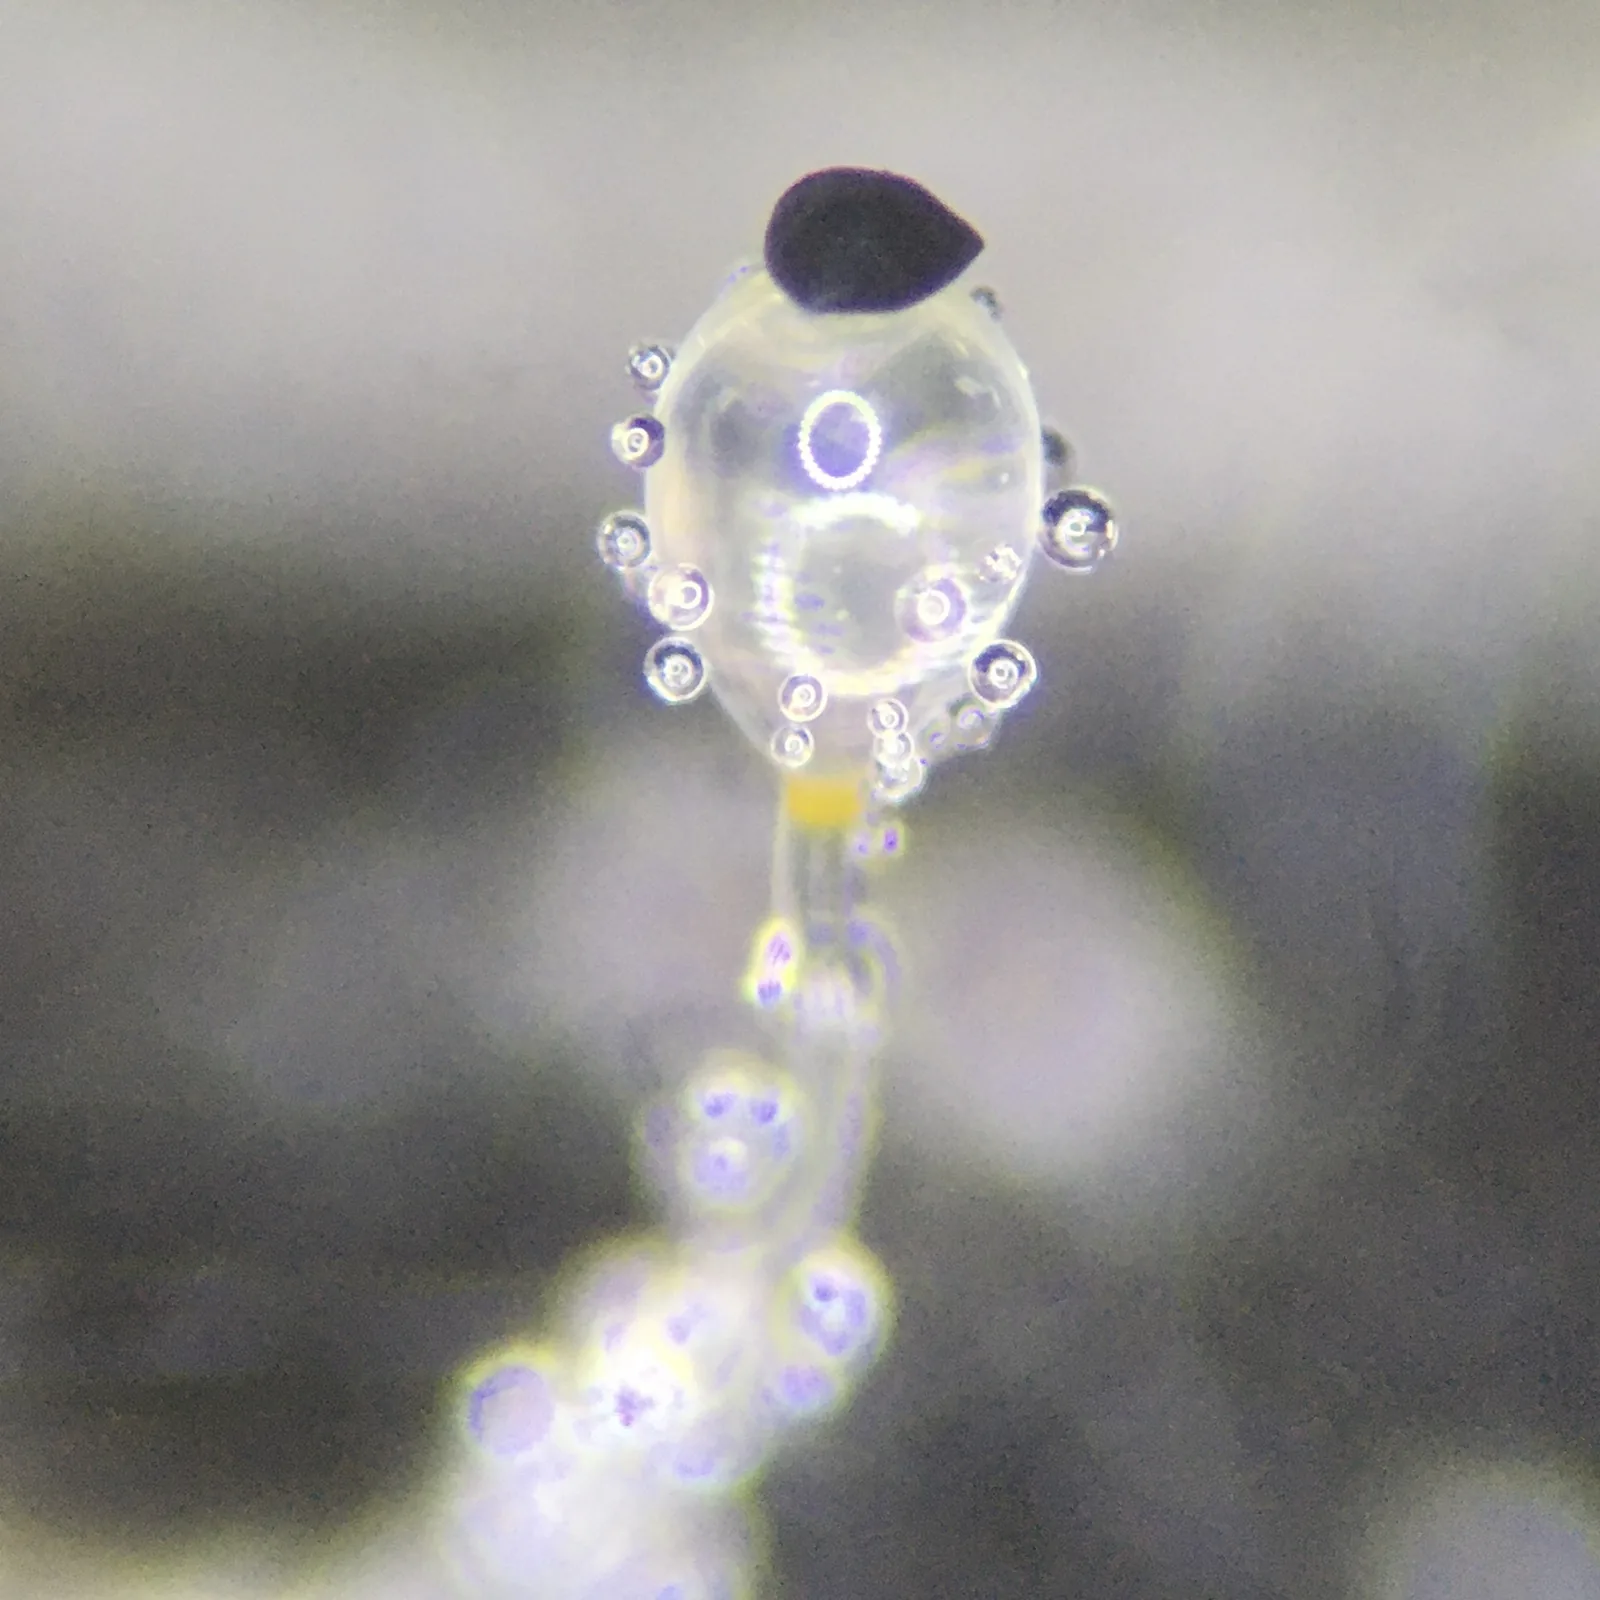
Пушка пилоболуса. Пилоболус растёт на навозе травоядных, а чтобы попасть в следующее животное, его споры должны оказаться на траве подальше от навоза, который скот не ест. Гриб решает задачу выстрелом: под чёрным спорангием раздувается прозрачный пузырь-спорангиеносец, который работает как линза и поворачивает всю конструкцию к свету; давление в пузыре растёт до нескольких атмосфер, он лопается, и спорангий с клейкой подошвой улетает на два с лишним метра, прилипая к травинке. Съёмка 2008 года показала скорость вылета до 13 м/с и ускорение около 20 000 g; у сумчатого гриба аскоболюса, который стреляет сумкой со спорами, ускорение доходит до 180 000 g — это самые быстрые движения в живой природе [8].
Зооспоры
Зооспора — подвижная спора с одним задним жгутиком, которая образуется внутри зооспорангия и выходит из него через пору или под откинувшейся крышечкой. Это бесполое размножение зооспоровых грибов: хитридиевых, бластокладиевых, моноблефаридовых, неокаллимастиговых, ольпидиевых. Зооспора — единственная клетка грибов без клеточной стенки и единственная, способная плыть [22, 23].
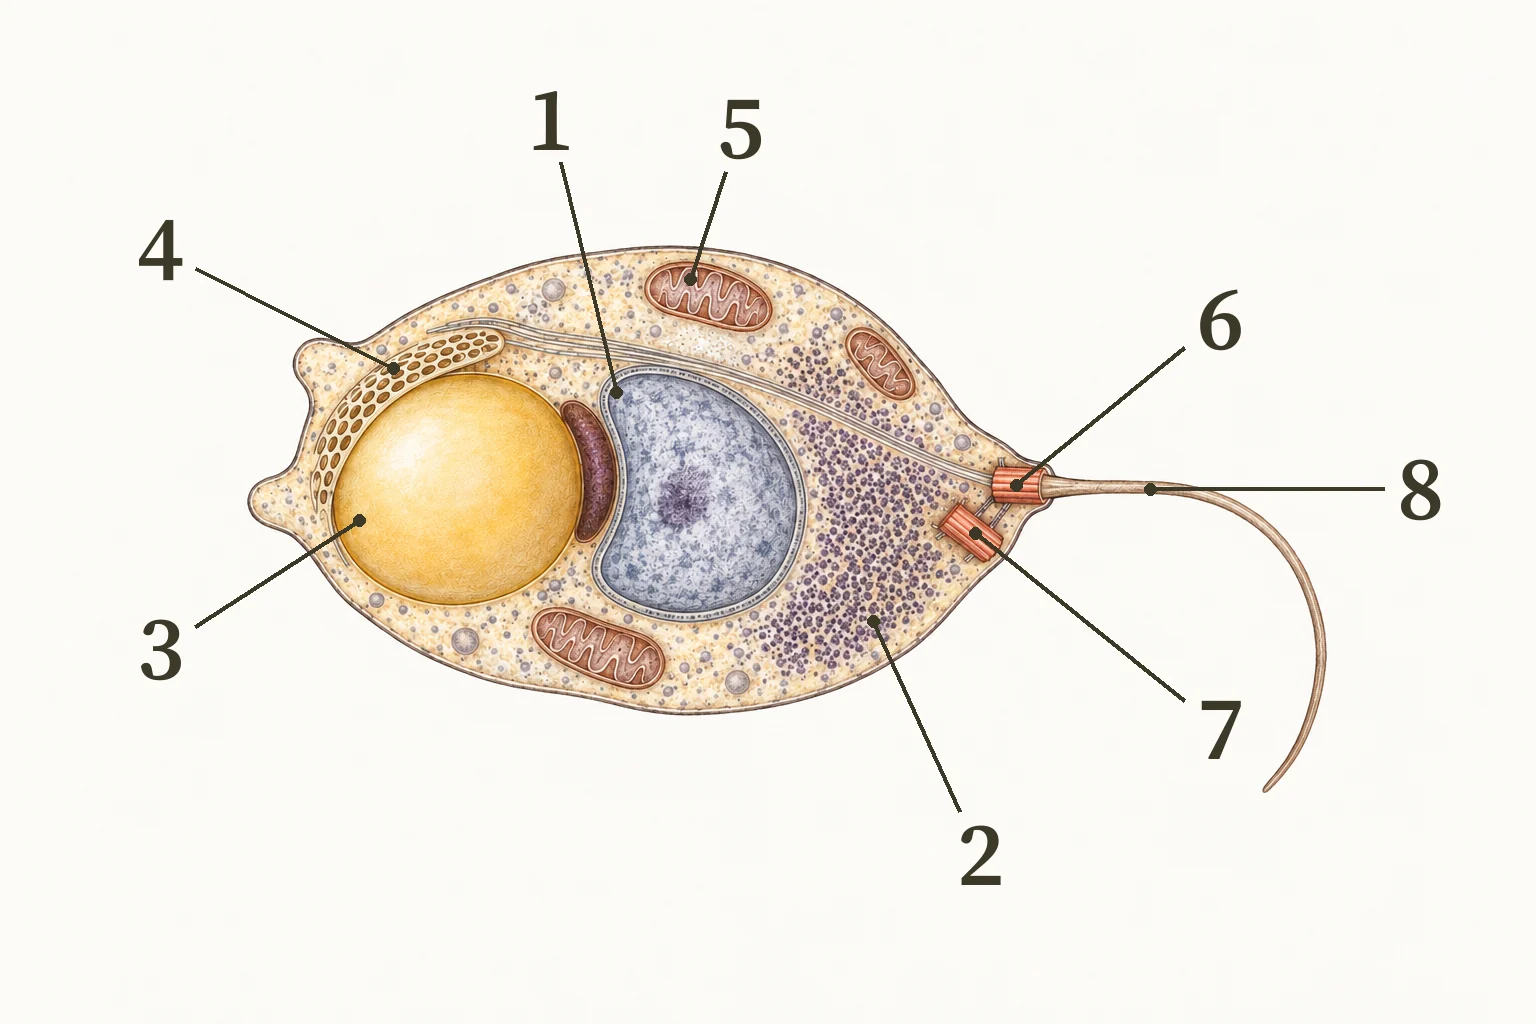
- 1ядро
- 2рибосомы, собранные в плотное скопление
- 3липидная капля — запас энергии на время плавания
- 4микротельце и пористая цистерна (румпосома) рядом с каплей — у многих хитридиомицетов
- 5митохондрия
- 6кинетосома — основание жгутика
- 7вторая центриоль, не образующая жгутика
- 8единственный задний жгутик; у его основания — подпорки, связывающие жгутик с клеткой
- взаимное расположение этих структур — главный признак порядков хитридиевых
Зооспора не питается: она живёт на запасе липидной капли и плывёт, пока хватает топлива, — часы, редко больше суток. Плывёт не наугад: зооспоры идут по градиенту веществ, выделяемых субстратом, — сахаров, аминокислот, а у возбудителя хитридиомикоза амфибий — компонентов кератина кожи. Зооспоры батрахохитриума активны меньше суток и проплывают по агару в среднем 1–2 см, прежде чем осесть; в воде, где сопротивление меньше, — дальше [24]. Найдя субстрат, зооспора втягивает жгутик, округляется, одевается стенкой — инцистируется — и прорастает ризоидами или ростковой трубкой [22].
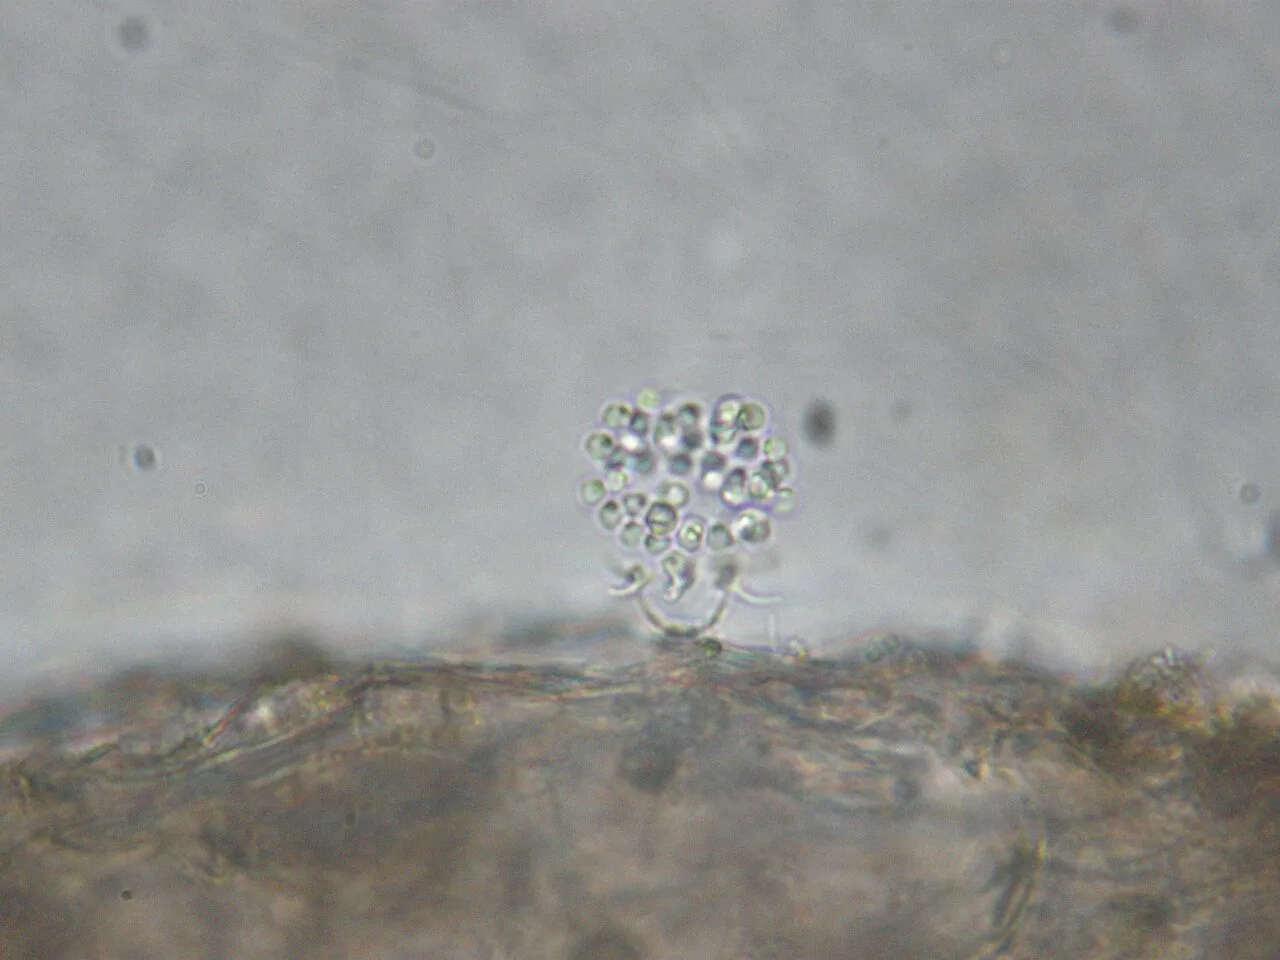
Водный гриб Blastocladiella emersonii стал моделью клеточной дифференцировки: его зооспора за считаные минуты превращается в цисту, включая синтез стенки и перестраивая цитоскелет, и весь процесс можно запускать по команде, изменив состав среды [25]. Зооспоры ольпидиума — паразита корней — переносят растительные вирусы: вирус, прикрепившийся к поверхности зооспоры, попадает в клетку корня вместе с грибом; так распространяются вирус некроза табака и вирус большой жилки салата [26]. У санхитриевых, описанных в 2021 году, жгутик зооспоры укорочен и неподвижен, а сама зооспора ползает как амёба — один из нескольких случаев утраты жгутика в царстве [27].
Вегетативное размножение
Кроме спор, грибы размножаются частями тела. Почкование дрожжей и деление делящихся дрожжей — бесполое размножение одноклеточных форм; строго говоря, почка — это бластическая конидия. Фрагментация мицелия: любой кусочек гифы с ядром прорастает в новый мицелий — на этом основано выращивание грибов из «грибницы» и распространение плесеней в вентиляции. Хламидоспоры и склероции — покоящиеся структуры: первые — одиночные толстостенные клетки, вторые — плотные клубки гиф с запасами, которые годами лежат в почве (склероции спорыньи, склеротинии) и прорастают, когда появится хозяин [10, 11].
Физика расселения
Спора — микроскопический объект, и её полёт подчиняется законам, непривычным для нашего масштаба. Для частицы размером в микрометры воздух вязок, как сироп: конидия аспергилла диаметром 3 мкм оседает в неподвижном воздухе со скоростью около 0,3 мм/с и падает с высоты метра почти час. Зато малейший ток воздуха уносит её вверх, и такие споры поднимаются в стратосферу и пересекают океаны [6, 28].
Отсюда стратегии. Мелкие сухие конидии (пеницилл, аспергилл, кладоспориум) рассчитаны на ветер: их много, они не смачиваются и легко отрываются. Крупные клейкие конидии (фузариум, коллетотрихум) рассчитаны на капли дождя и насекомых. Выстрел нужен там, где споры образуются у самой земли, в неподвижном «пограничном слое» воздуха: пилоболус и аскоболюс выбрасывают их на высоту, где уже есть ветер. Зооспоры рассчитаны на воду и сами ищут цель. Между ними — целый спектр: споры, рассеиваемые с брызгами, споры со слизью, споры, переносимые на теле насекомых в специальных карманах (у короедов и их грибов).
Форма для скорости. Споры, которые выстреливаются, имеют форму, сводящую сопротивление воздуха к минимуму: в 2010 году Марк Ропер и соавторы показали, что форма аскоспор сумчатых грибов близка к оптимальной для снарядов такого размера, а отклонение от неё на 1 % уменьшало бы дальность заметно. Эволюция «подобрала» обтекаемость точнее, чем это можно было бы ожидать [29].
Споры в воздухе: аллергия и инфекции
Воздух полон грибных спор — их в нём больше, чем пыльцы. Летом и осенью в кубометре воздуха средней полосы тысячи и десятки тысяч спор, в основном кладоспориума и альтернарии; при обмолоте, в сенохранилищах и компостных цехах — миллионы [28]. Споры альтернарии и кладоспориума — одни из главных причин сезонной аллергии и приступов астмы, а вдыхание больших количеств спор вызывает «лёгкое фермера» и другие аллергические альвеолиты.
Конидии Aspergillus fumigatus размером 2,5–3 мкм достигают альвеол, и каждый человек вдыхает их по нескольку сотен в день. У здорового человека макрофаги лёгких уничтожают их; при ослабленном иммунитете конидии прорастают, и развивается инвазивный аспергиллёз — одна из самых смертоносных грибных инфекций [30, 31]. Споры плесеней на зерне — источник микотоксинов; пылевые бури разносят артроконидии кокцидиоидеса; споры возбудителей ржавчины пшеницы перелетают между континентами. Бесполые споры — главный инструмент и расселения, и заражения [32, 33].
Несовершенные грибы и одно название
У многих аскомицетов половая стадия (телеоморфа) наблюдается редко или не найдена вовсе, и гриб известен только по конидиям (анаморфа). Такие грибы веками называли несовершенными — «Fungi imperfecti», или «дейтеромицеты», — и держали в отдельной формальной группе, не отражающей родства. Их тысячи: пеницилл, аспергилл, фузариум, альтернария, кандида в бесполой форме — всё это «несовершенные» формы сумчатых грибов, а некоторые — базидиомицетов [4, 3].
Когда связь стадий удавалось доказать, у гриба оказывалось два законных названия: одно для телеоморфы, другое для анаморфы, — например, Emericella nidulans и Aspergillus nidulans. Молекулярные методы сделали двойные имена ненужными: по ДНК анаморфу можно отнести к роду без всяких сумок. В 2011 году микологи приняли Амстердамскую декларацию и изменили кодекс по принципу «один гриб — одно название», а «несовершенные грибы» перестали быть группой системы — остался лишь удобный термин для бесполых форм [34, 35].
Генетика бесполого размножения
Митоспоры дают клоны: потомство генетически идентично родителю, если не считать новых мутаций. Но у грибов и бесполое размножение не исключает обмена генами. Гифы одного вида сливаются (анастомозируют), и в общей цитоплазме оказываются ядра разных генотипов — гетерокарион; конидия, получившая несколько ядер, уносит с собой сразу несколько генотипов. У аспергилла Гвидо Понтекорво в 1950-х годах открыл парасексуальный цикл: в гетерокарионе два гаплоидных ядра изредка сливаются в диплоидное, в нём при митозе происходит кроссинговер, а затем хромосомы теряются одна за другой, пока ядро снова не станет гаплоидным — с новым сочетанием генов, полученным без мейоза и без полового процесса [36]. Так рекомбинируют многие «бесполые» грибы, включая патогены человека.
Вторая оговорка: у многих «несовершенных» грибов геном содержит исправные гены типов спаривания и мейоза, и половой процесс у них просто не замечен; у возбудителя аспергиллёза его нашли в 2009 году после полутора веков наблюдений. Чисто бесполых линий, по-видимому, немного, и живут они недолго: без рекомбинации накапливаются вредные мутации.
Что нужно знать к ЕГЭ
- бесполое размножение грибов — спорами, образующимися без мейоза, и вегетативно (частями мицелия, почкованием дрожжей);
- мукор: споры образуются внутри спорангиев на спорангиеносцах — спорангиоспоры; пеницилл и аспергилл: споры (конидии) отшнуровываются на концах конидиеносцев — у пеницилла ветвистых, как кисточка, у аспергилла вздутых, как кропило;
- дрожжи размножаются почкованием; при неблагоприятных условиях — половым путём с образованием сумок со спорами;
- зооспоры со жгутиком — у водных и почвенных грибов (хитридиевые);
- споры рассеиваются ветром, водой, животными; у шляпочных грибов споры образуются на пластинках и в трубочках плодового тела после полового процесса (базидиоспоры) — это уже половое размножение;
- плесневые грибы быстро размножаются бесполым путём и портят продукты; споры грибов в воздухе — аллергены;
- значение бесполого размножения: быстрое увеличение численности и расселение при благоприятных условиях; потомство — копии родителя.
Ловушки. «Споры мукора образуются на концах гиф открыто» — нет, внутри спорангия. «Конидии пеницилла образуются в спорангиях» — нет, отшнуровываются открыто на конидиеносцах. «Бесполые споры образуются мейозом» — нет, митозом; мейоз — при образовании аскоспор и базидиоспор. «Дрожжи размножаются делением надвое» — пекарские дрожжи почкуются (почка меньше материнской клетки); делятся пополам делящиеся дрожжи. «Споры грибов — то же, что споры бактерий» — нет: у бактерий спора служит для переживания, а не для размножения.
Для олимпиад
Оседание споры. Скорость оседания малой частицы в воздухе по Стоксу: v = 2r²Δρg/(9η). Для конидии диаметром 3 мкм (r = 1,5 мкм), плотности 1100 кг/м³ и вязкости воздуха 1,8·10⁻⁵ Па·с: v ≈ 3·10⁻⁴ м/с = 0,3 мм/с; метр она пролетает примерно за час. Скорость растёт как квадрат радиуса: спора диаметром 30 мкм оседает в 100 раз быстрее — 3 см/с. Поэтому мелкие споры летят далеко, а крупные рассчитаны на капли и насекомых.
Выстрел. Если пилоболус выстреливает спорангий на 2,5 м под углом 45° (без учёта сопротивления воздуха), начальная скорость v = √(Rg) ≈ 5 м/с; при разгоне на пути 0,5 мм среднее ускорение a = v²/(2s) ≈ 2,5·10⁴ м/с² ≈ 2500 g. Измеренные значения выше (до 13 м/с и около 20 000 g), потому что сопротивление воздуха для тела такого размера велико и реальная начальная скорость должна быть больше расчётной [8].
Сколько спор. Конидиеносец аспергилла несёт тысячи конидий, колония в чашке Петри — порядка 10⁹–10¹⁰; гигантский дождевик (половое спороношение) — около 7·10¹² базидиоспор. При таком выходе доля спор, нашедших субстрат, может быть ничтожной.
Каскад brlA → abaA → wetA — пример развёрнутой во времени генной программы с обратной связью: WetA подавляет BrlA, и спороношение завершается. Мутанты названы по фенотипу: bristle («щетина»), abacus («счёты»), wet-white («мокрые белые»).
Парасексуальный цикл: гетерокарион → слияние ядер (диплоид, частота около 10⁻⁶) → митотический кроссинговер → гаплоидизация через анеуплоиды (потеря хромосом по одной). Используется в генетическом картировании грибов без полового процесса и объясняет рекомбинацию у «бесполых» патогенов.
Зооспоры и энергия. Зооспора не питается и плывёт за счёт липидной капли; плавание — самый дорогой способ расселения на единицу расстояния, но единственный, позволяющий выбирать цель по химическому градиенту. Хемотаксис зооспор батрахохитриума к кератину и сахарам кожи объясняет, почему гриб заражает именно амфибий и как находит их в водоёме.
Задания с разбором
Задание 1
Чем митоспоры отличаются от мейоспор? Назовите по три примера тех и других и объясните, почему у грибов преобладает бесполое размножение.
Разбор
Митоспоры образуются без мейоза и генетически тождественны родителю: конидии, спорангиоспоры, зооспоры, бластоконидии (почки) дрожжей, артроконидии. Мейоспоры образуются после мейоза и несут новые сочетания генов: аскоспоры, базидиоспоры, споры, образующиеся при прорастании зигоспоры. Бесполое размножение преобладает, потому что оно быстрое, не требует партнёра, даёт огромное число дешёвых спор и воспроизводит генотип, уже доказавший пригодность к данному субстрату; половой процесс включается при ухудшении условий.
Задание 2
Сравните три типа бесполых спор грибов по месту образования, группам грибов и способу расселения.
Разбор
Конидии образуются открыто на конидиеносцах или гифах; у аскомицетов и базидиомицетов (включая урединиоспоры ржавчины); расселяются ветром, каплями, насекомыми, сухие и часто меланизированные. Спорангиоспоры образуются внутри спорангия делением протопласта; у мукоромицетов (у зоопагомицетов — односпоровые спорангиоли); расселяются ветром, каплями, выстрелом спорангия. Зооспоры образуются внутри зооспорангия, выходят через пору; у зооспоровых грибов (хитридиевые, бластокладиевые, неокаллимастиговые, ольпидиевые); плывут сами с помощью заднего жгутика, затем инцистируются.
Задание 3
Опишите строение конидиеносцев пеницилла и аспергилла. Где в цепочке находится самая молодая конидия и почему?
Разбор
У пеницилла конидиеносец на вершине ветвится: веточки (метулы) несут бутылковидные фиалиды, каждая отшнуровывает цепочку конидий — получается «кисточка». У аспергилла конидиеносец не ветвится, а вздувается на конце; фиалиды сидят на вздутии радиально, цепочки расходятся лучами — «кропило». Самая молодая конидия — у фиалиды: каждая новая выдувается из горлышка фиалиды и отодвигает предыдущие, так что цепочка стареет к концу (базипетальный рост).
Задание 4
В чём разница между бластическим и талическим конидиогенезом? Назовите по два примера и укажите, к какому типу относится почкование дрожжей.
Разбор
При бластическом конидиогенезе конидия выдувается из родительской клетки, как почка, и затем отделяется перегородкой: фиалидные конидии пеницилла и аспергилла, симподиальные конидии ботритиса, пороконидии альтернарии, почки дрожжей. При талическом конидиогенезе в спору превращается уже существующая клетка гифы: артроконидии геотрихума и кокцидиоидеса (гифа распадается на членики), хламидоспоры кандиды и фузариума (клетка округляется и утолщает стенку). Почкование дрожжей — бластический конидиогенез: почка и есть бластоконидия.
Задание 5
Опишите генетический каскад конидиеобразования у аспергилла. Какие фенотипы имеют мутанты по каждому гену и почему их так назвали?
Разбор
Сигналы среды (воздух, свет, голод) через регуляторы fluG и flb включают brlA — главный переключатель, запускающий вздутие конидиеносца; BrlA включает abaA, задающий метулы и фиалиды; AbaA включает wetA, отвечающий за созревание конидии (стенка, трегалоза), а WetA по обратной связи подавляет brlA, завершая программу. Мутанты brlA растут бесконечной палочкой без спор («щетина», bristle); abaA — образуют цепочки вздутий без конидий («счёты», abacus); wetA — образуют незрелые, лопающиеся конидии («мокрые», wet).
Задание 6
Как устроен спорангий мукора? Что такое колумелла, спорангиоль и мероспорангий, и как связаны односпоровые спорангиоли с конидиями?
Разбор
Спорангий — замкнутый шаровидный мешок на спорангиеносце, внутри которого многоядерный протопласт делится на сотни одноядерных спорангиоспор; в спорангий вдаётся колумелла — стерильное вздутие спорангиеносца; зрелая стенка растворяется или лопается. Спорангиоль — уменьшенный спорангий с несколькими спорами или одной; мероспорангий — цилиндрический мешочек с рядом спор. Односпоровый спорангиоль внешне неотличим от конидии, и конидии зоопагомицетов и части мукоромицетов рассматривают как спорангии, редуцированные до одной споры.
Задание 7
Как и зачем стреляет пилоболус? Какие физические величины при этом измерены?
Разбор
Пилоболус живёт на навозе; чтобы попасть в следующее травоядное, споры должны оказаться на траве вдали от навоза, который скот не ест. Прозрачный пузырь под спорангием работает линзой и поворачивает спорангиеносец к свету (фототропизм); в пузыре растёт осмотическое давление, он лопается, и спорангий с клейкой подошвой вылетает на два с лишним метра и прилипает к траве. Скорость вылета до 13 м/с, ускорение около 20 000 g; у аскоболюса, стреляющего сумкой со спорами, — до 180 000 g.
Задание 8
Опишите строение и поведение зооспоры хитридиевого гриба от выхода из зооспорангия до прорастания.
Разбор
Зооспора — клетка без стенки с одним задним гладким жгутиком, ядром, митохондрией, липидной каплей (запас энергии), скоплением рибосом; у многих — румпосома и микротельце. Выходит из зооспорангия через пору или крышечку, плывёт часы (редко больше суток), не питаясь, по градиенту веществ субстрата (хемотаксис); найдя цель, втягивает или сбрасывает жгутик, округляется, одевается хитиновой стенкой (инцистируется) и прорастает ризоидами или ростковой трубкой в новый таллом с зооспорангием.
Задание 9
Какую роль играют зооспоры в хитридиомикозе амфибий и в переносе вирусов растений?
Разбор
Зооспоры батрахохитриума плывут по градиенту веществ кожи амфибий (кератин, сахара), оседают на коже, инцистируются и прорастают в эпидермис; новые зооспорангии выпускают зооспоры в воду, заражая соседей — так гриб распространяется в водоёме и вызвал сокращение сотен видов амфибий. Зооспоры ольпидиума, паразита корней, несут на поверхности частицы вирусов (некроза табака, большой жилки салата); проникая в клетку корня, зооспора вносит в неё вирус — гриб служит переносчиком.
Задание 10
Что такое «несовершенные грибы»? Почему эта группа упразднена и как решена проблема двойных названий?
Разбор
Несовершенные грибы (Fungi imperfecti, «дейтеромицеты») — формальная группа грибов, известных только по бесполым стадиям (анаморфам): пеницилл, аспергилл, фузариум, альтернария и другие. Группа не отражает родства: по молекулярным данным эти грибы — бесполые формы разных аскомицетов и базидиомицетов. Двойные названия (для телеоморфы и анаморфы одного вида) существовали, пока связь стадий нельзя было доказать; когда ДНК позволила относить анаморфы к родам, Амстердамская декларация 2011 года ввела принцип «один гриб — одно название».
Задание 11
Почему мелкие споры летят далеко, а крупные — нет? Какие стратегии расселения спор существуют у грибов?
Разбор
Для частиц микрометрового размера воздух вязок: скорость оседания по Стоксу пропорциональна квадрату радиуса, и спора в 3 мкм оседает со скоростью около 0,3 мм/с — её уносит любой ток воздуха, а 30-микронная оседает в 100 раз быстрее. Стратегии: мелкие сухие несмачиваемые конидии — на ветер (пеницилл, кладоспориум); крупные клейкие — на капли дождя и насекомых (фузариум, пикниды); выстрел из приземного неподвижного слоя воздуха (пилоболус, аскоболюс, базидиоспоры); зооспоры — активное плавание в воде с хемотаксисом; перенос в карманах тела насекомых (грибы короедов).
Задание 12
Что защищает зрелую конидию и какие вещества обеспечивают её покой и прорастание?
Разбор
Толстая стенка с меланином (защита от ультрафиолета, окислителей, ферментов и фагоцитов); наружный слой гидрофобинов, собранных в палочковый узор (несмачиваемость, лёгкий отрыв ветром, маскировка от иммунной системы); низкое содержание воды; запас трегалозы (защита белков и мембран при высыхании) и липидов. Прорастание запускают вода и источник углерода: спора набухает, включает синтез белка, расщепляет трегалозу и выпускает ростковую трубку.
Задание 13
Как грибы, размножающиеся только бесполым путём, получают новые сочетания генов? Опишите гетерокариоз и парасексуальный цикл.
Разбор
Гифы одного вида сливаются (анастомоз), и в общей цитоплазме оказываются ядра разных генотипов — гетерокарион; многоядерные конидии уносят несколько генотипов сразу. В парасексуальном цикле (Понтекорво, 1950-е, на аспергилле) два гаплоидных ядра гетерокариона изредка сливаются в диплоидное; при митозах в нём происходит кроссинговер; затем хромосомы теряются по одной, и ядро возвращается к гаплоидности с новым сочетанием генов — рекомбинация без мейоза и полового процесса.
Задание 14
Почему споры грибов в воздухе опасны для человека? Приведите три разных механизма вреда.
Разбор
Аллергия: споры альтернарии и кладоспориума — сезонные аллергены, вызывающие ринит и астму; массовое вдыхание спор (сено, компост) — аллергический альвеолит («лёгкое фермера»). Инфекция: конидии Aspergillus fumigatus (2,5–3 мкм) достигают альвеол, и при ослабленном иммунитете прорастают — инвазивный аспергиллёз; артроконидии кокцидиоидеса из пыли вызывают кокцидиоидомикоз. Токсины: споры и мицелий плесеней на зерне и кормах производят микотоксины (афлатоксины), которые попадают в пищу.
Задание 15 (олимпиадное)
Рассчитайте по формуле Стокса v = 2r²Δρg/(9η) скорость оседания в воздухе конидии диаметром 3 мкм (плотность 1100 кг/м³, плотность воздуха пренебрежимо мала, η = 1,8·10⁻⁵ Па·с, g = 9,81 м/с²). За сколько минут она опустится на 1 м в неподвижном воздухе? Во сколько раз быстрее оседает спора диаметром 30 мкм?
Разбор
r = 1,5·10⁻⁶ м; v = 2 · (1,5·10⁻⁶)² · 1100 · 9,81 / (9 · 1,8·10⁻⁵) = 2 · 2,25·10⁻¹² · 10 791 / 1,62·10⁻⁴ ≈ 3,0·10⁻⁴ м/с = 0,3 мм/с. Время на 1 м: 1 / 3,0·10⁻⁴ ≈ 3300 с ≈ 56 мин. Скорость пропорциональна r², поэтому спора диаметром 30 мкм оседает в 100 раз быстрее — около 3 см/с, за 33 с. Мелкие споры поэтому переносятся на тысячи километров, а крупные падают рядом.
Задание 16 (олимпиадное)
Пилоболус выстреливает спорангий на 2,5 м. Считая угол вылета 45° и пренебрегая сопротивлением воздуха, найдите начальную скорость. Если разгон происходит на пути 0,5 мм, оцените среднее ускорение в единицах g. Почему измеренные значения (до 13 м/с, около 20 000 g) больше расчётных?
Разбор
Дальность при 45°: R = v²/g, откуда v = √(Rg) = √(2,5 · 9,81) ≈ 4,95 м/с ≈ 5 м/с. Ускорение: a = v²/(2s) = 24,5 / (2 · 5·10⁻⁴) ≈ 2,45·10⁴ м/с² ≈ 2500 g. Измеренные скорости выше, потому что для тела миллиметрового размера сопротивление воздуха велико и дальность 2,5 м требует начальной скорости много больше 5 м/с; ускорение, соответственно, достигает десятков тысяч g. При этом пилоболус — не рекордсмен: аскоболюс, стреляющий сумкой, развивает до 180 000 g.
Литература
- Micheli P. A. Nova plantarum genera. Florentiae: Typis Bernardi Paperinii, 1729.
- Ainsworth G. C. Introduction to the History of Mycology. Cambridge: Cambridge University Press, 1976.
- Alexopoulos C. J., Mims C. W., Blackwell M. Introductory Mycology. 4th ed. New York: John Wiley & Sons, 1996.
- Kendrick B. The Fifth Kingdom. 3rd ed. Newburyport: Focus Publishing, 2000.
- Hughes S. J. Conidiophores, conidia, and classification // Canadian Journal of Botany. 1953. Vol. 31. P. 577–659.
- Ingold C. T. Fungal Spores: Their Liberation and Dispersal. Oxford: Clarendon Press, 1971.
- Adams T. H., Wieser J. K., Yu J.-H. Asexual sporulation in Aspergillus nidulans // Microbiology and Molecular Biology Reviews. 1998. Vol. 62. P. 35–54.
- Yafetto L., Carroll L., Cui Y. et al. The fastest flights in nature: high-speed spore discharge mechanisms among fungi // PLoS ONE. 2008. Vol. 3. e3237.
- James T. Y., Kauff F., Schoch C. L. et al. Reconstructing the early evolution of Fungi using a six-gene phylogeny // Nature. 2006. Vol. 443. P. 818–822.
- Webster J., Weber R. W. S. Introduction to Fungi. 3rd ed. Cambridge: Cambridge University Press, 2007.
- Deacon J. W. Fungal Biology. 4th ed. Malden: Blackwell Publishing, 2006.
- Белякова Г. А., Дьяков Ю. Т., Тарасов К. Л. Ботаника. Т. 1. Водоросли и грибы. М.: Академия, 2006.
- Гарибова Л. В., Лекомцева С. Н. Основы микологии: морфология и систематика грибов и грибоподобных организмов. М.: Товарищество научных изданий КМК, 2005.
- Nguyen C., Barker B. M., Hoover S. et al. Recent advances in our understanding of the environmental, epidemiological, immunological, and clinical dimensions of coccidioidomycosis // Clinical Microbiology Reviews. 2013. Vol. 26. P. 505–525.
- Staib P., Morschhäuser J. Chlamydospore formation in Candida albicans and Candida dubliniensis — an enigmatic developmental programme // Mycoses. 2007. Vol. 50. P. 1–12.
- Springer M. L. Genetic control of fungal differentiation: the three sporulation pathways of Neurospora crassa // BioEssays. 1993. Vol. 15. P. 365–374.
- Dunlap J. C., Loros J. J. Making time: conservation of biological clocks from fungi to animals // Microbiology Spectrum. 2017. Vol. 5. FUNK-0039-2016.
- Wösten H. A. B. Hydrophobins: multipurpose proteins // Annual Review of Microbiology. 2001. Vol. 55. P. 625–646.
- Eisenman H. C., Casadevall A. Synthesis and assembly of fungal melanin // Applied Microbiology and Biotechnology. 2012. Vol. 93. P. 931–940.
- d'Enfert C. Fungal spore germination: insights from the molecular genetics of Aspergillus nidulans and Neurospora crassa // Fungal Genetics and Biology. 1997. Vol. 21. P. 163–172.
- Spatafora J. W., Chang Y., Benny G. L. et al. A phylum-level phylogenetic classification of zygomycete fungi based on genome-scale data // Mycologia. 2016. Vol. 108. P. 1028–1046.
- Gleason F. H., Lilje O. Structure and function of fungal zoospores: ecological implications // Fungal Ecology. 2009. Vol. 2. P. 53–59.
- Barr D. J. S. An outline for the reclassification of the Chytridiales, and for a new order, the Spizellomycetales // Canadian Journal of Botany. 1980. Vol. 58. P. 2380–2394.
- Piotrowski J. S., Annis S. L., Longcore J. E. Physiology of Batrachochytrium dendrobatidis, a chytrid pathogen of amphibians // Mycologia. 2004. Vol. 96. P. 9–15.
- Lovett J. S. Growth and differentiation of the water mold Blastocladiella emersonii: cytodifferentiation and the role of ribonucleic acid and protein synthesis // Bacteriological Reviews. 1975. Vol. 39. P. 345–404.
- Rochon D., Kakani K., Robbins M., Reade R. Molecular aspects of plant virus transmission by olpidium and plasmodiophorid vectors // Annual Review of Phytopathology. 2004. Vol. 42. P. 211–241.
- Galindo L. J., López-García P., Torruella G., Karpov S., Moreira D. Phylogenomics of a new fungal phylum reveals multiple waves of reductive evolution across Holomycota // Nature Communications. 2021. Vol. 12. Art. 4973.
- Lacey M. E., West J. S. The Air Spora: A Manual for Catching and Identifying Airborne Biological Particles. Dordrecht: Springer, 2006.
- Roper M., Pepper R. E., Brenner M. P., Pringle A. Explosively launched spores of ascomycete fungi have drag-minimizing shapes // Proceedings of the National Academy of Sciences USA. 2010. Vol. 107. P. 17474–17479.
- Latgé J.-P. Aspergillus fumigatus and aspergillosis // Clinical Microbiology Reviews. 1999. Vol. 12. P. 310–350.
- Brown G. D., Denning D. W., Gow N. A. R. et al. Hidden killers: human fungal infections // Science Translational Medicine. 2012. Vol. 4. 165rv13.
- Fisher M. C., Henk D. A., Briggs C. J. et al. Emerging fungal threats to animal, plant and ecosystem health // Nature. 2012. Vol. 484. P. 186–194.
- Bennett J. W., Klich M. Mycotoxins // Clinical Microbiology Reviews. 2003. Vol. 16. P. 497–516.
- Hawksworth D. L., Crous P. W., Redhead S. A. et al. The Amsterdam Declaration on Fungal Nomenclature // IMA Fungus. 2011. Vol. 2. P. 105–112.
- Taylor J. W. One Fungus = One Name: DNA and fungal nomenclature twenty years after PCR // IMA Fungus. 2011. Vol. 2. P. 113–120.
- Pontecorvo G. The parasexual cycle in fungi // Annual Review of Microbiology. 1956. Vol. 10. P. 393–400.
Обсуждение
Загружаем обсуждение…