
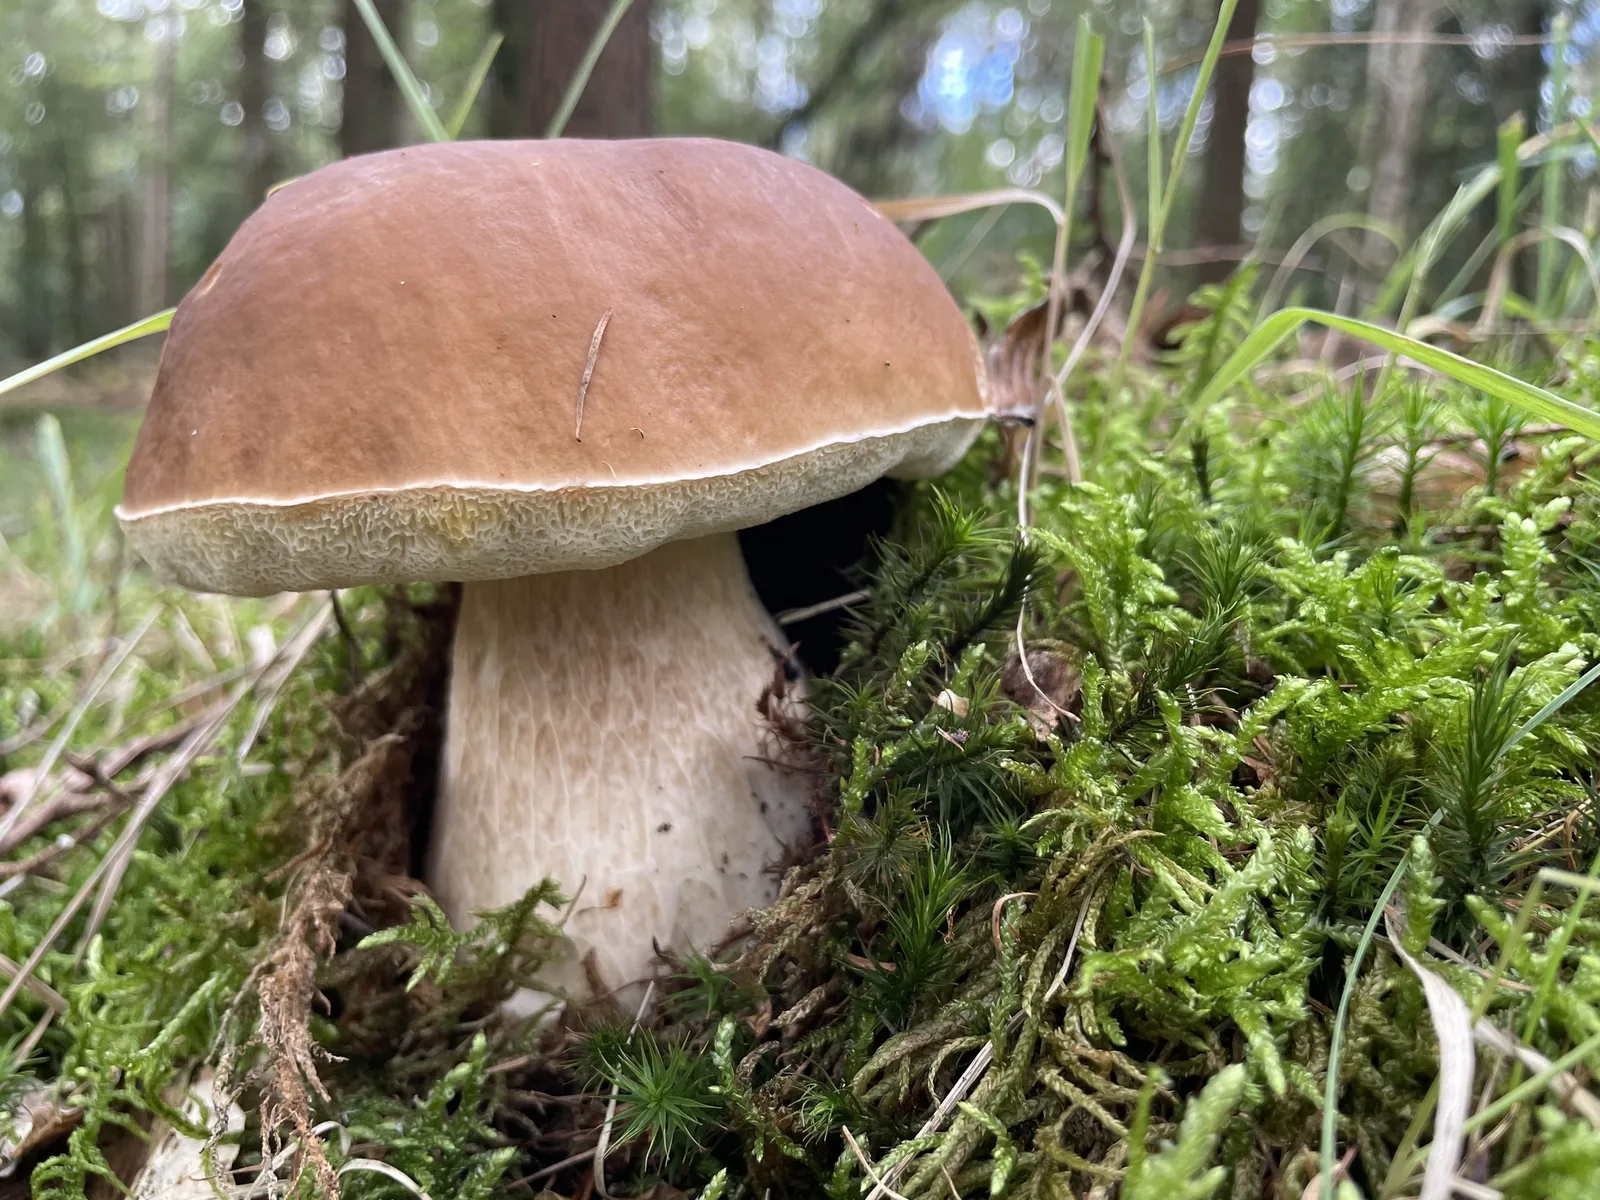
Белый гриб, который несут из леса в корзине, — организм, в каждой клетке которого живут два ядра от двух разных «родителей», и ни разу за всю его жизнь они не слились. Опёнок, чей мицелий в Орегоне занимает почти десять квадратных километров, — напротив, диплоиден, как человек, хотя его ближайшие родственники такими не бывают. Пекарские дрожжи живут и гаплоидами, и диплоидами, переходя из одного состояния в другое по нескольку раз в неделю. А головня кукурузы в гаплоидной фазе — безобидные дрожжи на листьях, в двуядерной — паразит, превращающий початки в чёрные желваки. Число наборов хромосом в ядре и число ядер в клетке у грибов — не застывшие свойства вида, как у нас, а этапы жизненного цикла, и у каждой группы эти этапы расставлены по-своему. Поняв, как они устроены, можно объяснить и почему плодовые тела растут только у одних мицелиев, и откуда берутся новые расы ржавчины, и почему одни грибы так быстро приспосабливаются, а другие десятилетиями остаются клонами.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О половом процессе — в статье «Половой процесс у грибов», о бесполом размножении — в статье «Бесполое размножение грибов», о строении клетки и ядра — в статье «Строение грибной клетки», о дрожжах и диморфизме — в статье «Дрожжи и мицелиальные формы».
- Как изучали жизненные циклы грибов
- Три ядерные фазы: n, n + n и 2n
- Что меняет фазу
- Карта фаз у разных грибов
- Типы жизненных циклов
- Хитридиевые: почти целиком гаплоидная жизнь
- Алломицес: два поколения, как у водорослей
- Мукоровые: гаплоид с диплоидной зигоспорой
- Аскомицеты: короткий дикарион внутри плодового тела
- Тафрина: дикарион-паразит у сумчатого гриба
- Дрожжи: два способа жить без дикариона
- Базидиомицеты: жизнь в фазе n + n
- Одноядерный и двуядерный мицелий
- Опёнок: диплоидный мицелий
- Головня: смена фазы — смена образа жизни
- Ржавчина: фазы пяти спор и рождение Ug99
- Гломеромицеты: тысячи ядер в одной споре
- Кандида и другие постоянные диплоиды
- Гетерокарион, парасексуальный цикл и анеуплоидия
- Какая фаза переживает зиму
- Фаза и болезнетворность
- Зачем грибу гаплоидность
- Как узнать фазу
- Частые вопросы
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали жизненные циклы грибов
Жизненный цикл гриба долго было невозможно проследить: споры прорастали в мицелий, мицелий давал другие споры, и что связывает одну форму с другой, оставалось загадкой. Антон де Бари в 1860–1880-х годах первым начал выращивать грибы из одной споры и следить за ними от начала до конца. Он увидел, что в молодой сумке сливаются два ядра, и понял, что у грибов есть стадия, когда ядра живут парой, не сливаясь. Он же расшифровал самый запутанный из известных циклов — у ржавчины пшеницы, — доказав, что пять разных спор на двух растениях принадлежат одному грибу [1, 2].
- 1866А. де Бари: в сумке сливаются два ядра — у грибов есть стадия, где ядра живут парой
- 1884А. де Бари описывает цикл ржавчины пшеницы с пятью спорами и двумя хозяевами
- 1904А. Блейксли: мукоровые гетероталличны — цикл требует двух мицелиев
- 1920Г. Книп и Х. Кнолль: двуядерный мицелий базидиомицетов — особая фаза цикла
- 1931А. Буллер: дикарион может «заражать» ядрами одноядерный мицелий
- 1941Р. Эмерсон: у алломицеса чередуются диплоидное и гаплоидное поколения
- 1956Г. Понтекорво: парасексуальный цикл — рекомбинация без мейоза
- 1978Р. Ульрих и Дж. Андерсон: мицелий опёнка диплоиден, а не двуядерен
- 1988А. Херсковиц: жизненный цикл дрожжей — модель смены фаз
- 2003К. Зейл: в больших популяциях гаплоидные дрожжи приспосабливаются быстрее
- 2006Гаплоидные и тетраплоидные линии дрожжей за 1800 поколений сходятся к диплоидности
- 2016Гломеромицеты: в спорах — ядра двух типов, как в дикарионе
- 2019Раса ржавчины Ug99 возникла обменом целыми ядрами между дикарионами
- первые описания
- цитология
- генетика
- геномы и эксперименты
В начале XX века цикл стали связывать с числом ядер и хромосом. Альберт Блейксли в 1904 году показал, что мукоровые замыкают цикл только при встрече двух мицелиев разного типа [3]. Ганс Книп и Хайнрих Кнолль в 1910–1920-х годах описали двуядерный мицелий шляпочных грибов и пряжки, а Артур Буллер в 1931 году — как двуядерный мицелий передаёт ядра одноядерному [4]. Ральф Эмерсон в 1941 году нашёл у водного гриба алломицеса чередование диплоидного и гаплоидного поколений — цикл, который считали принадлежностью растений и водорослей [5]. Гвидо Понтекорво в 1956 году открыл, что грибы умеют перекомбинировать гены и вовсе без мейоза [6].
Вторая половина века принесла неожиданности. В 1978 году Роберт Ульрих и Джеймс Андерсон показали, что мицелий опёнка, в отличие от всех других шляпочных грибов, диплоиден [7]. В 2000-х годах эксперименты на дрожжах позволили впервые проверить теорию: в 2003 году Клиффорд Зейл обнаружил, что гаплоидные популяции в больших масштабах приспосабливаются быстрее диплоидных, а в 2006 году группа Сары Отто — что гаплоидные и тетраплоидные линии дрожжей за 1800 поколений сами возвращаются к диплоидности [8, 9]. Геномика 2016–2019 годов нашла дикарионоподобное устройство у гломеромицетов, где о половом процессе ничего не известно, и показала, что опасная раса ржавчины Ug99 возникла обменом целыми ядрами между двумя дикарионами [10, 11].
Три ядерные фазы: n, n + n и 2n
У животного все клетки тела диплоидны, гаплоидны только гаметы. У гриба в разные моменты жизни ядра могут быть в трёх состояниях, и каждое — полноценная фаза, способная расти и размножаться [12, 13].
Гаплоидная фаза (n). В ядре один набор хромосом. Мицелий, выросший из одной споры, обычно гаплоиден и гомокариотичен: все его ядра одинаковы, потомки ядра споры. Таковы мицелии мукора, пеницилла, нейроспоры, одноядерный (первичный) мицелий шляпочных грибов, гаплоидные дрожжи. Гаплоидная фаза — исходная для грибов: ею начинается и кончается почти любой цикл.
Дикариотическая фаза (n + n). В клетке два гаплоидных ядра разного происхождения — от двух партнёров, — которые делятся синхронно и не сливаются. Генетически такая клетка почти диплоидна (в ней два набора генов), но ядра остаются раздельными. Дикарион — отличительная черта подцарства Dikarya, аскомицетов и базидиомицетов, и больше ни у кого в живом мире такой фазы нет. Его частный случай — гетерокарион: мицелий, в общей цитоплазме которого живут ядра разных генотипов в любой пропорции; дикарион — упорядоченный гетерокарион, где в каждой клетке ровно по одному ядру каждого типа.
Диплоидная фаза (2n). Ядра двух партнёров слились, в ядре два набора хромосом. У большинства грибов диплоидна одна клетка — зигота, молодая сумка, молодая базидия, зигоспора, телиоспора, — и живёт она часы или месяцы покоя, после чего делится мейозом. У немногих грибов диплоид растёт и размножается: пекарские дрожжи почкуются диплоидными клетками, у опёнка диплоиден весь мицелий, у алломицеса — целое поколение.
Важно не путать два счёта. Плоидность — число наборов хромосом в одном ядре: n, 2n, иногда 3n и 4n. Число ядер в клетке — отдельная величина: гифа мукора гаплоидна, но в одной её клетке сотни ядер; клетка дикариона несёт два гаплоидных ядра, и её записывают как n + n, а не 2n. На экзамене и в генетических задачах эта разница принципиальна: клетка n + n при мейозе не делится — сначала её ядра должны слиться [14].
Что меняет фазу
Фазу меняют три события полового процесса, а митоз только копирует то, что есть.
- Плазмогамияслияние клеток: n → n + n (или сразу 2n, если ядра сольются)
- Кариогамияслияние ядер: n + n → 2n
- Мейоз2n → четыре ядра n с новыми сочетаниями генов
- Митозфазу не меняет: копирует ядро
- Зиготический мейозсразу после кариогамии; взрослая особь гаплоидна — большинство грибов
- Гаметический мейозпри образовании гамет; особь диплоидна — животные
- Споровый мейозпри образовании спор; два поколения — растения, алломицес
- Дикарионплазмогамия и кариогамия разнесены во времени: аскомицеты, базидиомицеты
- Диплоидные почкующиеся клеткипекарские дрожжи, кандида
- Диплоидный мицелийопёнок — редкое исключение
Плазмогамия — слияние клеток — переводит гаплоид в дикарион (или в гетерокарион), если ядра не сливаются сразу. У дрожжей и мукоровых ядра сливаются почти тут же, и дикарион проскакивает за минуты. Кариогамия переводит дикарион в диплоид. Мейоз возвращает диплоид к гаплоидности, и четыре его продукта несут новые сочетания генов. Жизненный цикл любого гриба — это то, как эти три события расставлены во времени и сколько митозов происходит между ними.
В общей биологии циклы эукариот делят по месту мейоза. При зиготическом мейозе зигота сразу делится мейозом, и всё многоклеточное тело гаплоидно — так у хламидомонады, спирогиры и большинства грибов. При гаметическом мейоз происходит при образовании гамет, и тело диплоидно — так у животных и у бурой водоросли фукуса. При споровом мейоз даёт споры, из которых вырастает гаплоидное поколение, — так у растений, у ламинарии и у гриба алломицеса. Грибы добавили к этой схеме своё: промежуток между плазмогамией и кариогамией, растянутый у базидиомицетов на годы [15, 16].
Карта фаз у разных грибов
Сопоставим, какую долю жизни гриба — того времени, когда он растёт, питается и размножается, — занимает каждая фаза у десяти представителей разных групп. Доли условные: покоящиеся споры не учтены, а соотношение меняется с условиями, но общая картина видна сразу.
- гаплоидная фаза (n)
- дикариотическая фаза (n + n)
- диплоидная фаза (2n)
- 1хитридиевый гриб (синхитриум)
- 2алломицес
- 3мукор
- 4нейроспора
- 5делящиеся дрожжи
- 6пекарские дрожжи
- 7пузырчатая головня кукурузы
- 8шляпочный гриб (навозник, вёшенка)
- 9опёнок
- 10кандида
Синяя гаплоидная полоса — у тех, кто ближе к основанию древа (хитридиевые, мукоровые) и у большинства плесневых аскомицетов. Жёлтая дикариотическая полоса появляется у дикарий и вырастает в почти всю жизнь у шляпочных грибов. Красная диплоидная — тонкая черта у большинства и широкая у трёх «исключений»: алломицеса, пекарских дрожжей и опёнка, к которым добавляются постоянно диплоидные кандида и ряд других грибов, утративших мейоз. Эволюция грибов не шла к одной «правильной» фазе: каждая группа нашла своё соотношение, подходящее её образу жизни.
Типы жизненных циклов
Если свести разнообразие к схеме, у грибов можно выделить шесть типов циклов [12, 14, 17].
| Тип цикла | Чем живёт гриб | Где диплоид | Примеры |
|---|---|---|---|
| Гаплонтный | Гаплоидным мицелием или талломом | Только зигота или зигоспора, сразу мейоз | Хитридиевые, мукоровые, делящиеся дрожжи |
| Гаплонтный с коротким дикарионом | Гаплоидным мицелием; дикарион — несколько дней внутри плодового тела | Молодая сумка | Нейроспора, аспергилл, пеницилл, сморчки, спорынья |
| Дикариотический | Двуядерным мицелием годами; гаплоид — короткая стадия после споры | Молодая базидия, телиоспора | Шляпочные грибы, трутовики, ржавчина, головня; у сумчатых — тафрина |
| Гапло-диплонтный | И гаплоидными, и диплоидными клетками, обе фазы размножаются | Почкующиеся диплоидные клетки | Пекарские дрожжи |
| Диплонтный | Диплоидным мицелием или клетками | Почти вся жизнь | Опёнок, кандида |
| Чередование поколений | Два равноправных поколения, гаплоидное и диплоидное | Спороталлом | Алломицес и другие бластокладиевые |
Главное отличие от растений: у растений обе фазы — это разные организмы, гаметофит и спорофит, различающиеся строением; у грибов гаплоид, дикарион и диплоид обычно выглядят одинаково — та же гифа, тот же мицелий, — и различаются только ядрами. Исключения есть, и они интересны: у головни гаплоид — дрожжи, а дикарион — гифа; у ржавчины каждая фаза образует свои споры; у шляпочных грибов плодовые тела строит только дикарион.
Хитридиевые: почти целиком гаплоидная жизнь
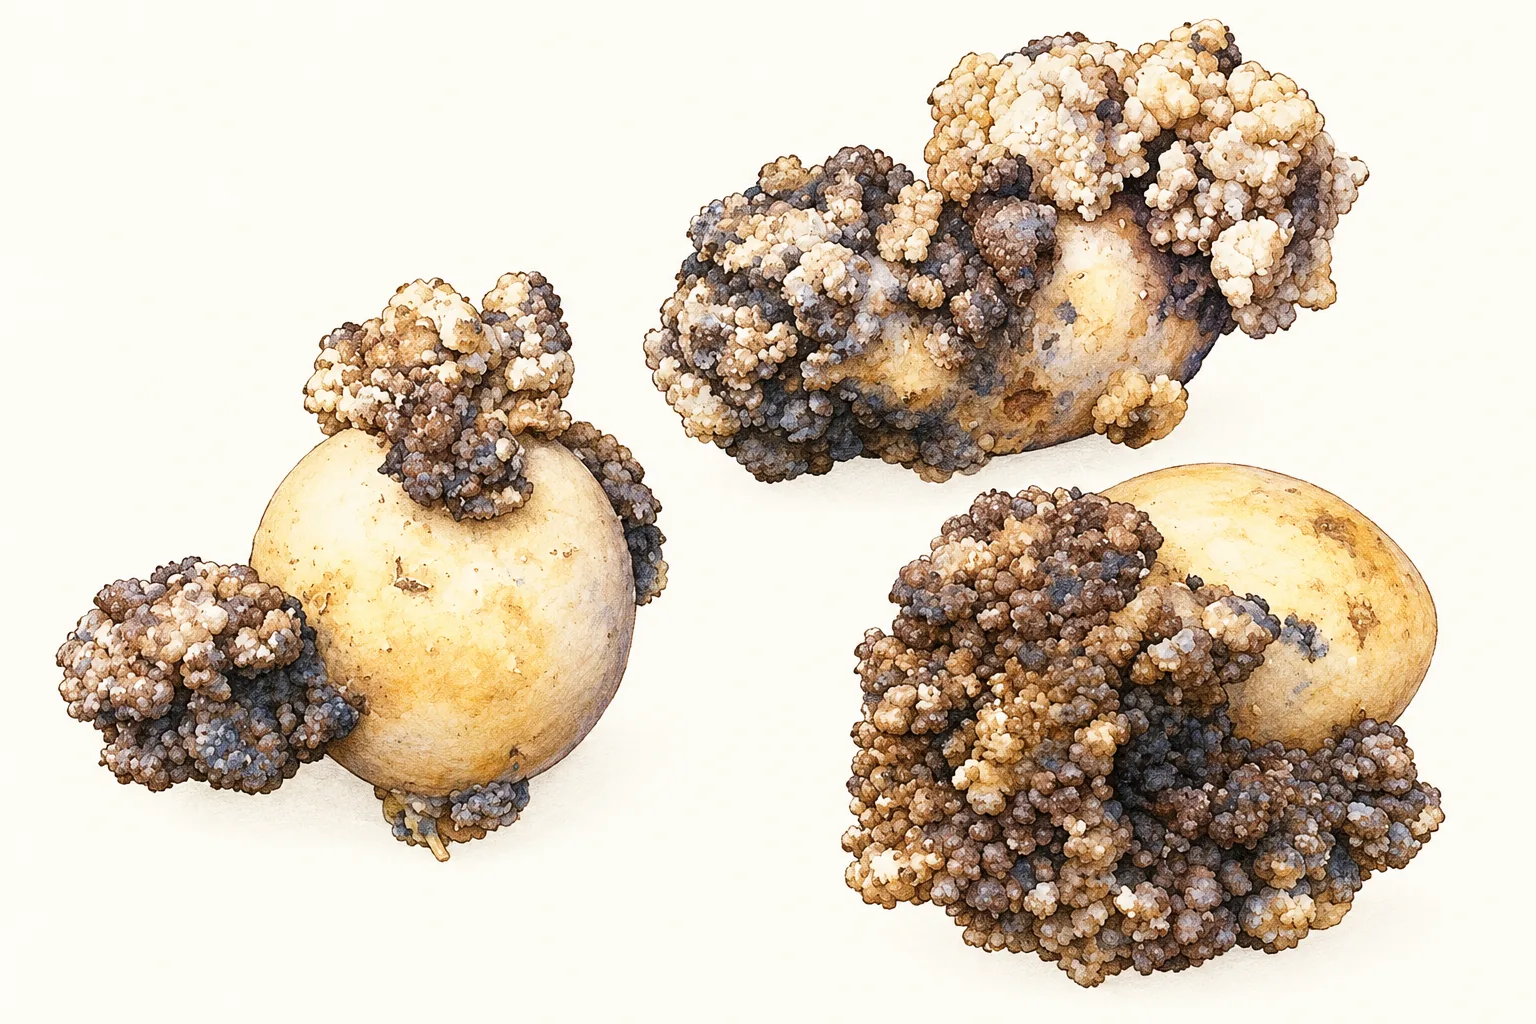
Хитридиевые грибы — одноклеточные или почти одноклеточные: таллом с ризоидами, превращающийся в зооспорангий. Почти вся их жизнь гаплоидна: гаплоидная зооспора оседает, прорастает, таллом растёт и выпускает новые гаплоидные зооспоры, и так поколение за поколением, пока есть хозяин или субстрат. Половой процесс включается редко: сливаются две зооспоры-гаметы или два таллома, и зигота одевается толстой стенкой, превращаясь в покоящийся спорангий. Мейоз происходит при его прорастании, и снова выходят гаплоидные зооспоры [12, 13].
Покоящийся спорангий — единственная диплоидная клетка цикла, но живёт она долго. У синхитриума, возбудителя рака картофеля, летом идут один за другим бесполые циклы из гаплоидных зооспор, заражающих клетки клубня, а к осени образуются покоящиеся (зимние) спорангии, которые остаются живыми в почве более 40 лет и заражают картофель, едва его снова посадят на это поле [18]. Так диплоидная фаза, ничтожная по участию в росте, оказывается главной по времени: она связывает десятилетия.
Алломицес: два поколения, как у водорослей
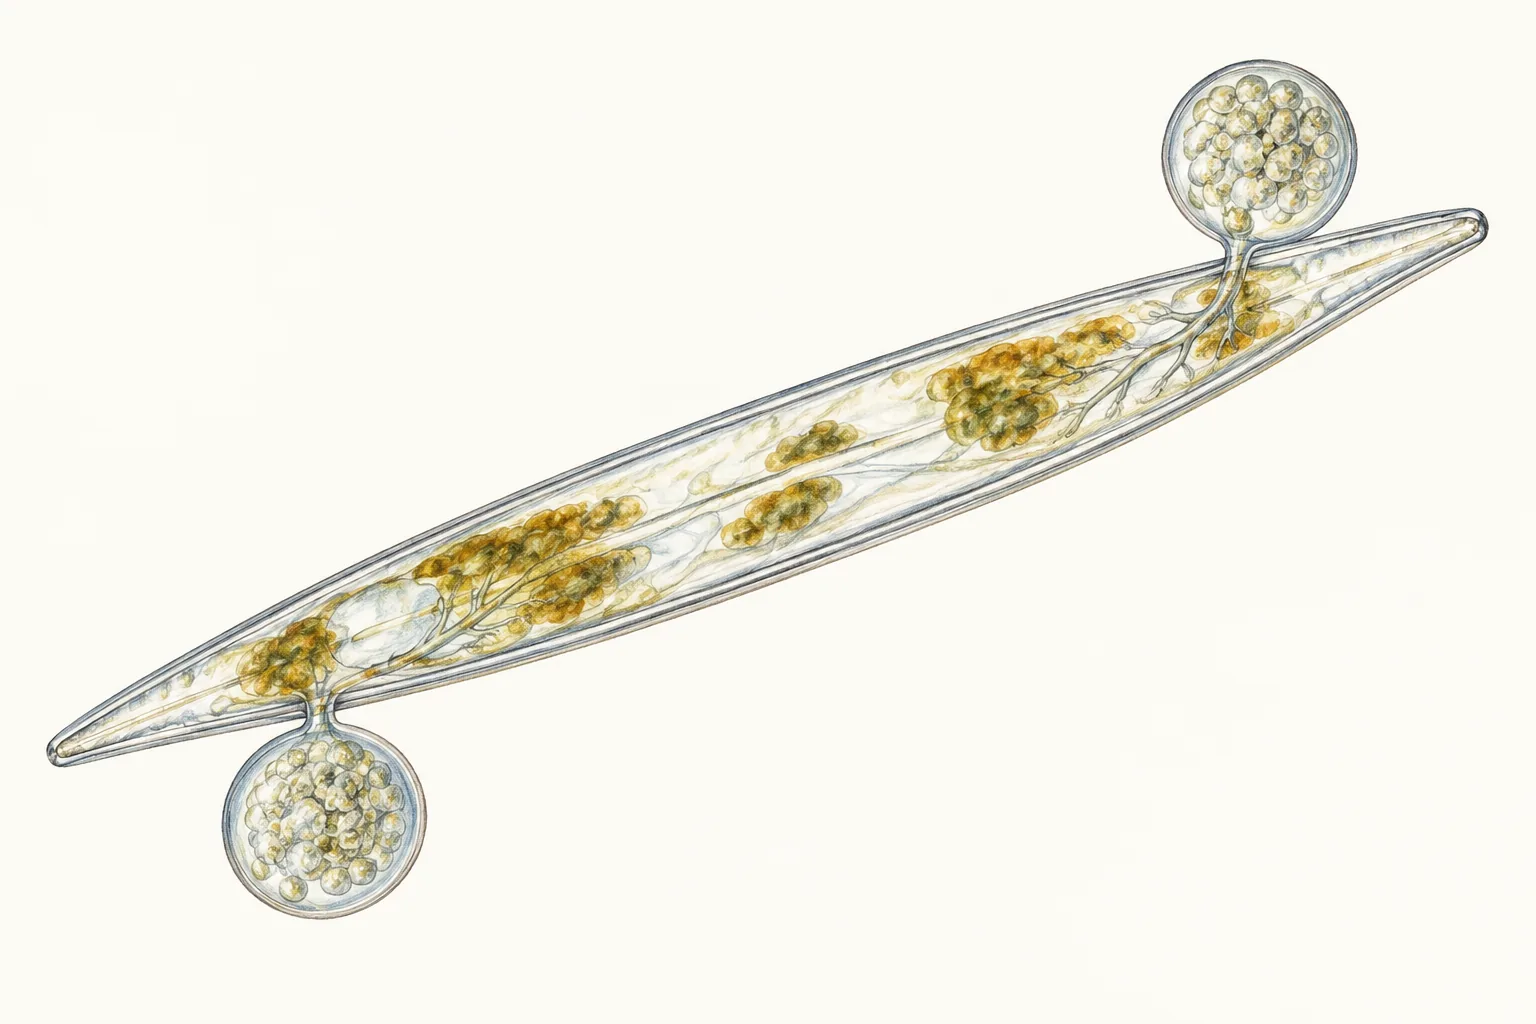
Ральф Эмерсон, выращивая водные грибы из тропических почв, обнаружил у алломицеса цикл, который до того знали только у водорослей и растений: изоморфное чередование поколений. Два мицелия, внешне одинаковых, сменяют друг друга: диплоидный спороталлом и гаплоидный гаметоталлом [5].
Диплоидный спороталлом размножается двумя способами. Тонкостенные зооспорангии выпускают диплоидные зооспоры, вырастающие в новые спороталломы, — это бесполое размножение диплоида. Толстостенные, бурые, с шипиками покоящиеся спорангии выдерживают высыхание; при прорастании в них проходит мейоз, и выходят гаплоидные зооспоры. Из них вырастают гаметоталломы — такие же ветвистые мицелии, но с гаметангиями на концах ветвей: оранжевыми мужскими (их окрашивает гамма-каротин) и бесцветными женскими. Мелкие оранжевые мужские гаметы плывут на сиренин, выделяемый крупными женскими, гаметы сливаются, и зигота прорастает в новый диплоидный спороталлом [5, 12].
Алломицес показал, что чередование поколений возникало в эволюции эукариот не раз и не обязательно связано с выходом на сушу. Его родственники в роде показывают, как такие циклы упрощаются: у некоторых видов гаметоталлом сокращён до нескольких клеток или вовсе исчез, и цисты из покоящегося спорангия выпускают сразу гаметы. Эмерсон использовал эти виды, чтобы показать, как один и тот же набор стадий может быть «собран» разными способами, — образец того, как жизненный цикл меняется в эволюции.
Мукоровые: гаплоид с диплоидной зигоспорой
У мукора, ризопуса, пилоболуса цикл гаплонтный. Мицелий из спорангиоспоры гаплоиден и многоядерен; гриб размножается бесполыми спорангиоспорами столько поколений, сколько позволяет пища. Половой процесс начинается со встречи двух мицелиев разного типа спаривания — «плюс» и «минус» — и заканчивается зигоспорой [3, 12].
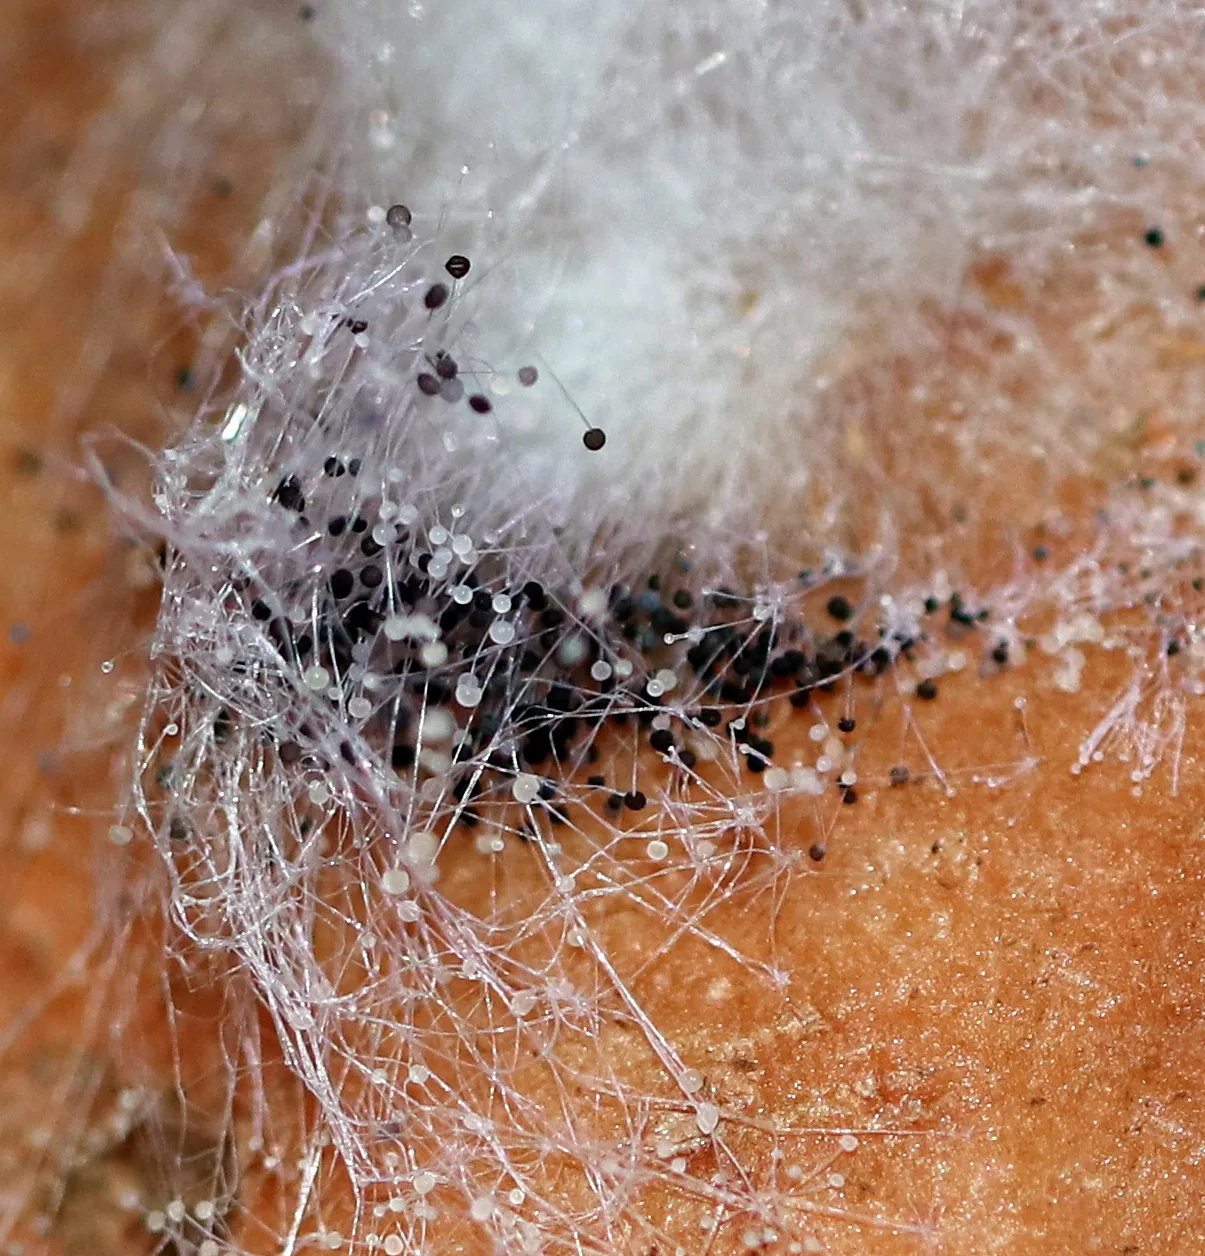
Зигоспора — многоядерная клетка, в которой сливаются многие пары ядер, а часть ядер дегенерирует; что именно происходит внутри, цитологи выясняют больше века, потому что толстая тёмная стенка не пропускает свет. Известно, что мейоз проходит при прорастании, а не сразу после кариогамии: зигоспора покоится месяцами, затем выпускает спорангиеносец с «зародышевым» спорангием, и его споры гаплоидны. У одних видов все споры одного спорангия оказываются одного типа спаривания — видимо, из всех диплоидных ядер выживает лишь одно, прошедшее мейоз, и его потомки заполняют спорангий; у других встречаются оба типа. Так в одной структуре сходятся и долгий покой, и редукция, и отбор ядер [13].
Аскомицеты: короткий дикарион внутри плодового тела
У нейроспоры, аспергилла, пеницилла, сморчков и спорыньи мицелий, который мы видим, гаплоиден. Дикарион у них есть, но живёт несколько дней и спрятан внутри плодового тела, в аскогенных гифах, которые растут из оплодотворённого аскогона [19, 12].
В аскогенной гифе ядра двух партнёров делятся парами, а крючки, о которых подробно рассказано в статье о половом процессе, распределяют их по клеткам так, чтобы каждая получила по одному ядру каждого типа. В концевой клетке крючка ядра сливаются — это молодая сумка, единственная диплоидная клетка цикла. Тут же следуют мейоз и один митоз, и созревают восемь аскоспор. Если провести линию времени от прорастания аскоспоры до созревания новых, у нейроспоры она займёт около двух недель, и из них дикарион — пара суток, диплоид — часы.
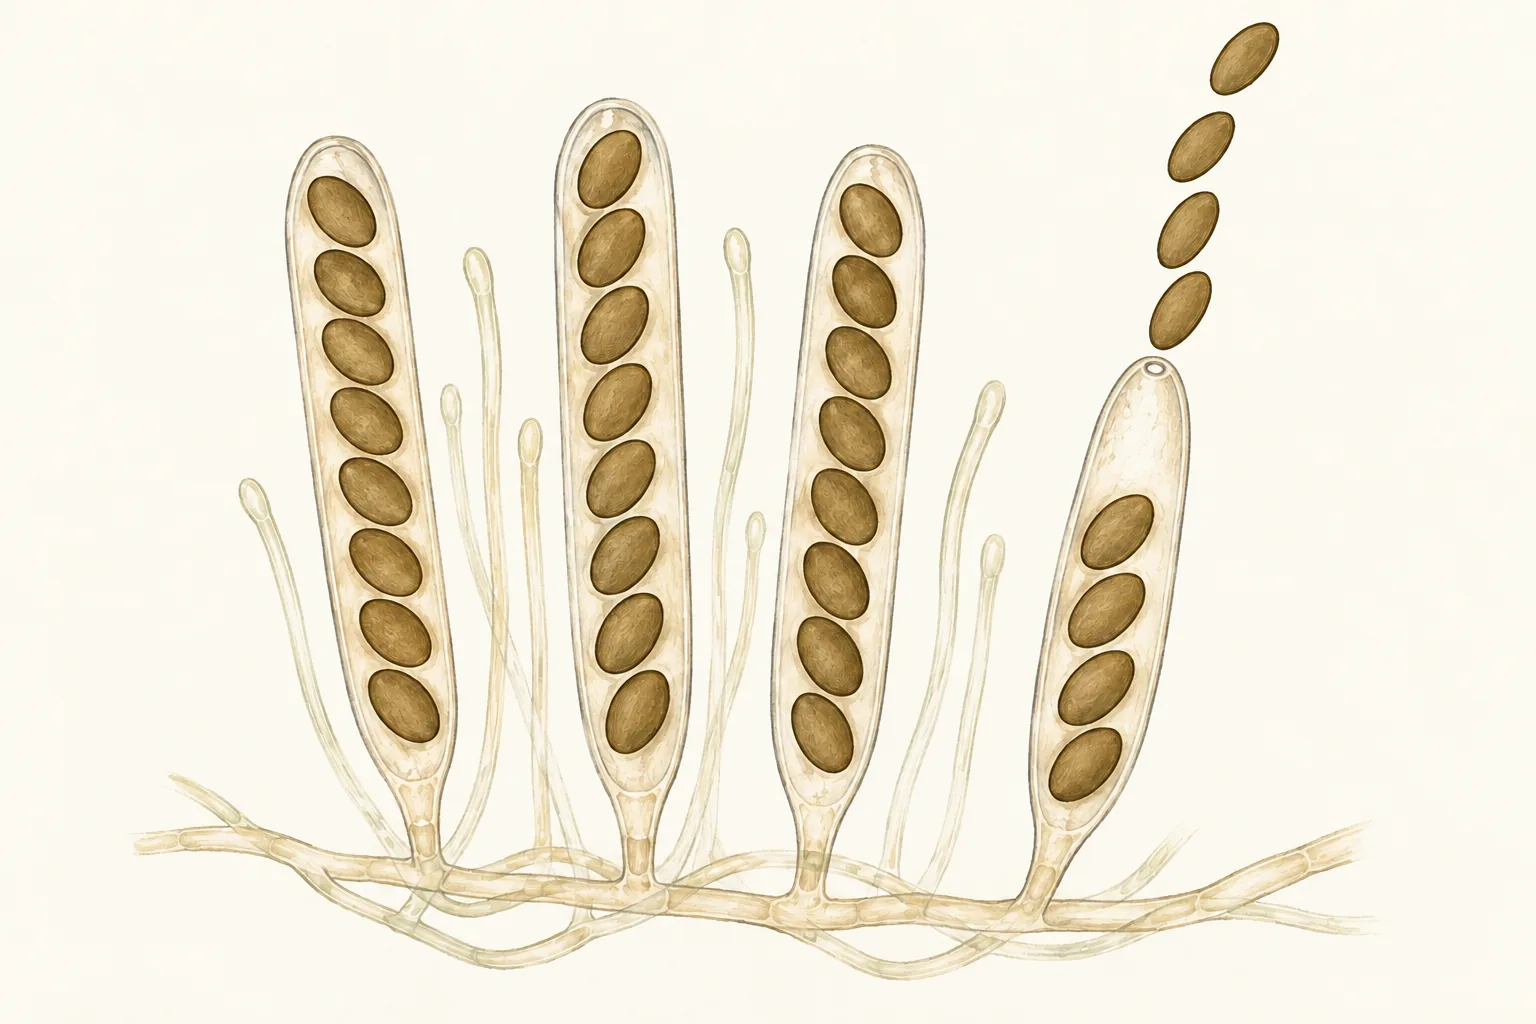
Тем не менее короткий дикарион у сумчатых не случаен: он позволяет одному оплодотворению дать не одну, а десятки сумок. Аскогенные гифы ветвятся, и каждая ветвь заканчивается крючками, так что пара ядер, попавшая в аскогон, размножается митозами и затем проходит мейоз многократно. Это аналог «размножения зиготы», который у растений реализован в спорофите, а у красных водорослей — в особом поколении, карпоспорофите. Грибы решили ту же задачу дикарионом [13].
Тафрина: дикарион-паразит у сумчатого гриба
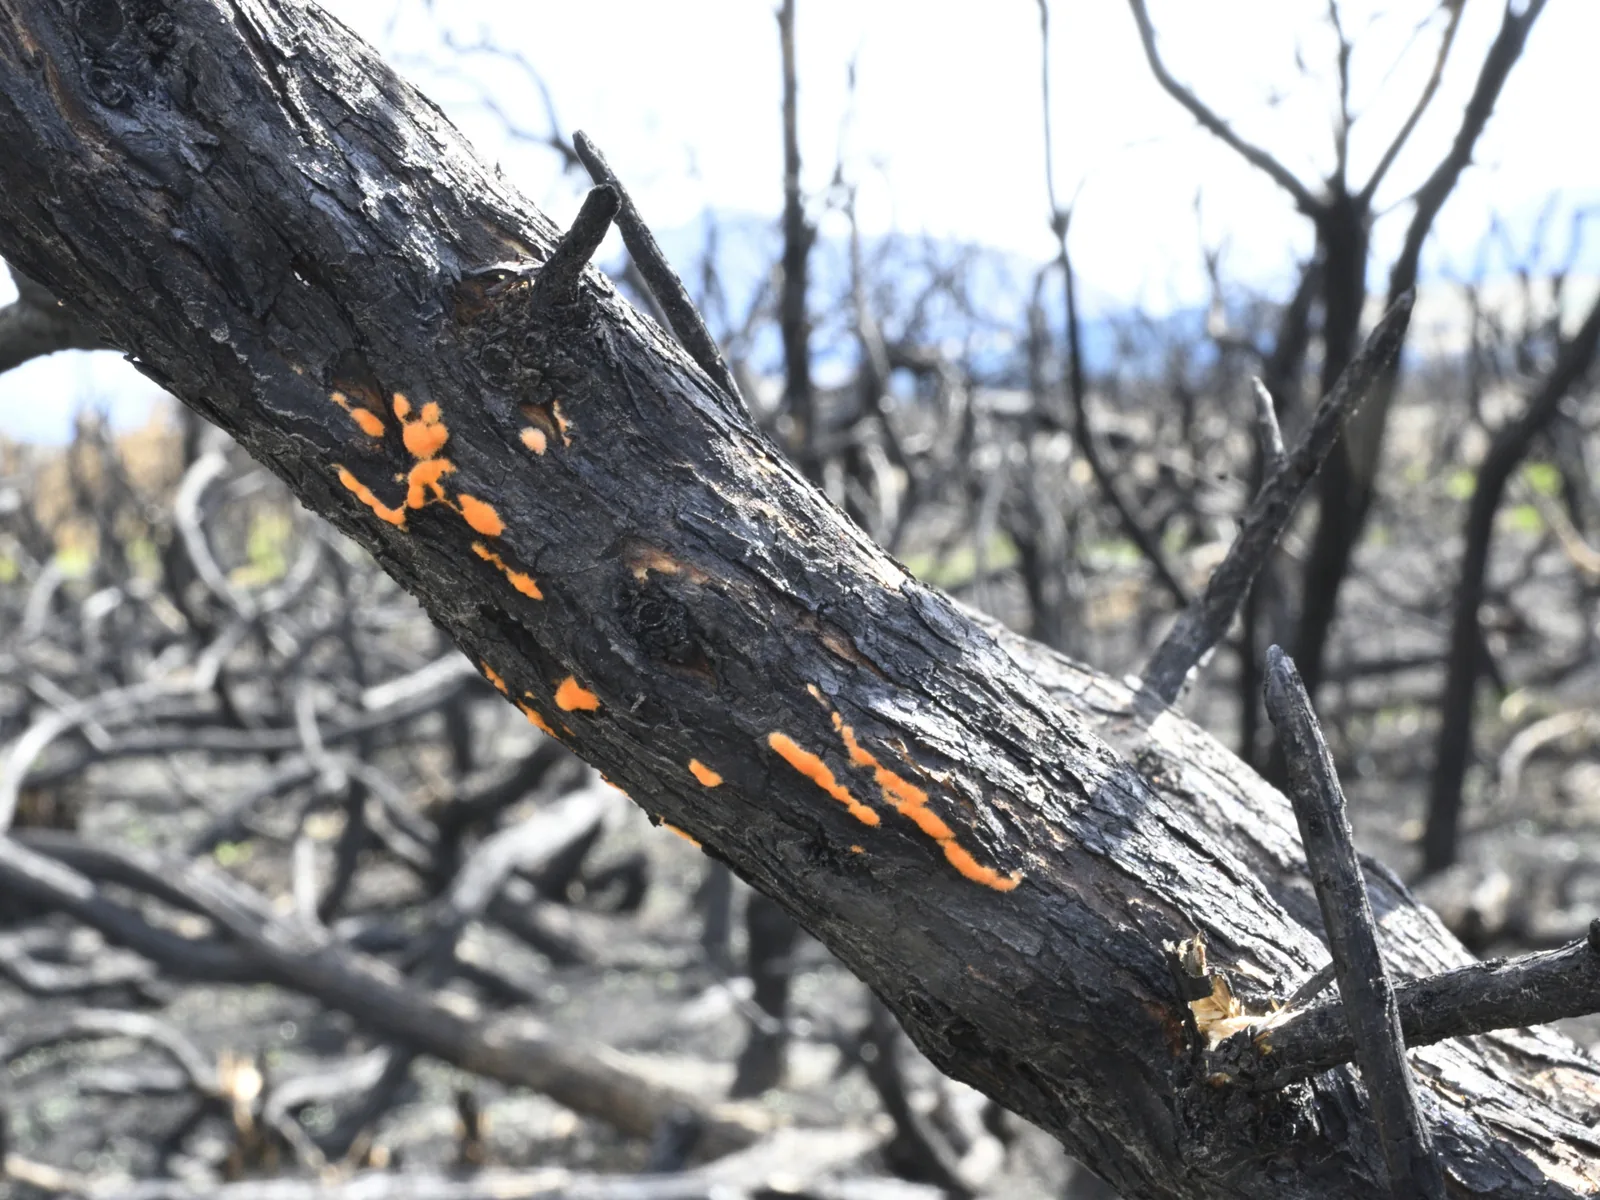
Среди аскомицетов есть группа, у которой дикарион живёт долго и, как у базидиомицетов, совпадает с паразитизмом. Это тафрина — возбудитель курчавости листьев персика, «ведьминых мётел» берёзы и вишни, «кармашков» сливы [20].
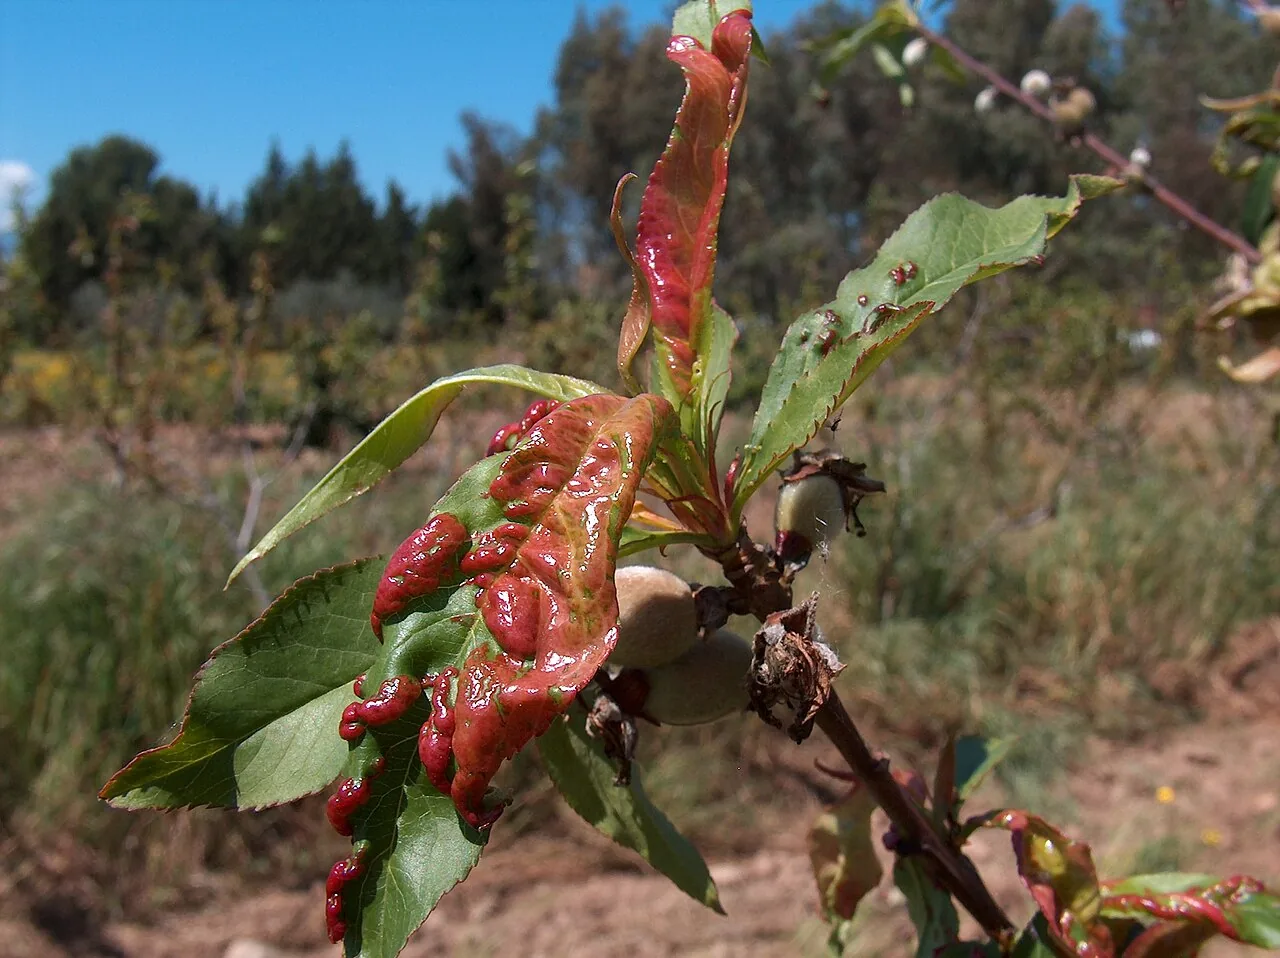
Аскоспоры тафрины, выпав из сумки, почкуются как дрожжи — это гаплоидная фаза, живущая сапротрофно на поверхности коры и почек. Весной две гаплоидные клетки сливаются (или ядро одной клетки делится, и потомки остаются вместе), и из почки дерева в молодой лист прорастает двуядерный мицелий: только он способен заражать. Дикарион растёт между клетками листа, вызывая их разрастание — лист вздувается и краснеет, — а затем выходит под кутикулу и образует на поверхности слой аскогенных клеток. В них ядра сливаются, проходит мейоз, и сумки прорывают кутикулу; аскоспоры в сумке часто начинают почковаться ещё внутри неё. Плодового тела нет вовсе — и тафрину относят к древней ветви сумчатых, тафриномицетам, вместе с делящимися дрожжами и пневмоцистой.
Дрожжи: два способа жить без дикариона
У дрожжей дикариона нет: клетки сливаются, и ядра сливаются сразу. Но два самых изученных вида дрожжей показывают два противоположных решения — какая фаза будет главной.
Пекарские дрожжи Saccharomyces cerevisiae — гапло-диплонты. Гаплоидные клетки типов a и α почкуются неограниченно; встретившись, они сливаются, и получается диплоид a/α, который тоже почкуется неограниченно. Мейоз происходит только при голодании, особенно по азоту, на средах с ацетатом: диплоидная клетка превращается в сумку с четырьмя спорами. В природе и в промышленности дрожжи живут в основном диплоидами: споры, прорастая, сразу спариваются с соседями по сумке, а гомоталличные штаммы ещё и переключают тип спаривания, чтобы восстановить диплоидность из одной споры [21].
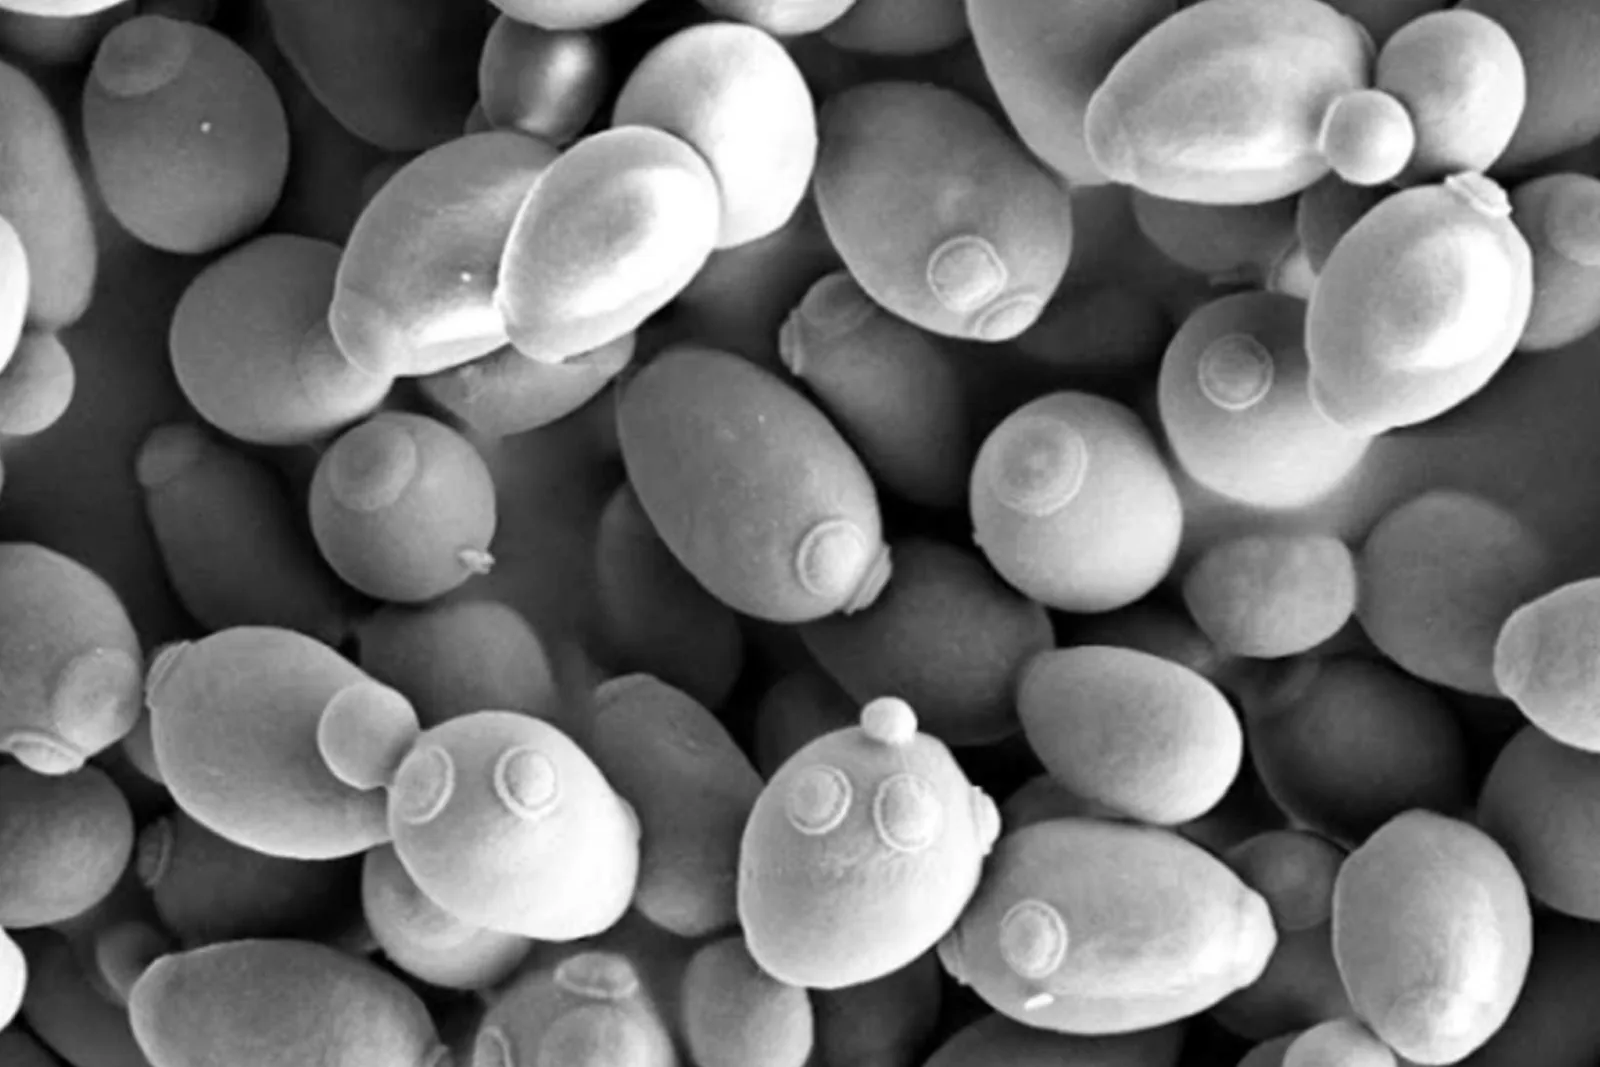
Делящиеся дрожжи Schizosaccharomyces pombe — гаплонты. Они размножаются гаплоидными клетками, делящимися пополам; при голодании по азоту клетки противоположных типов спаривания сливаются, и зигота немедленно, без единого митоза, проходит мейоз, превращаясь в сумку с четырьмя спорами. Диплоид у делящихся дрожжей можно удержать в лаборатории, быстро переведя зиготу на богатую среду, но в природе он почти не встречается [22].
Почему два близких по образу жизни гриба выбрали противоположное? Теория, обсуждаемая ниже, предсказывает: диплоидность выгодна, когда много вредных мутаций и их надо «прятать», гаплоидность — когда популяции огромны и важна скорость приспособления. Эксперимент подтвердил обе половины прогноза. В 2003 году Клиффорд Зейл вёл параллельно гаплоидные и диплоидные популяции пекарских дрожжей: в больших популяциях гаплоиды приспособились быстрее, в малых разницы не было [8]. А в 2006 году Аления Герстейн и Сара Отто запустили гаплоидные, диплоидные и тетраплоидные линии и через 1800 поколений обнаружили, что все гаплоидные и тетраплоидные линии сами стали диплоидными: гаплоиды удвоили геном, тетраплоиды потеряли половину хромосом [9]. Пекарские дрожжи «помнят», что их нормальное состояние — диплоид.
Плоидность в пивоварне. Промышленные штаммы пекарских и винных дрожжей часто диплоидны, триплоидны или тетраплоидны, с лишними копиями отдельных хромосом: высокая плоидность даёт крупные клетки, устойчивость к спирту и стабильность свойств, а неспособность к нормальному мейозу защищает штамм от расщепления. Лагерные дрожжи, на которых варят большую часть пива мира, — гибрид пекарских дрожжей с холодолюбивым диким видом Saccharomyces eubayanus, найденным в 2011 году в лесах Патагонии; гибрид почти бесплоден, и его свойства передаются только клонально [23].
Базидиомицеты: жизнь в фазе n + n
У шляпочных грибов, трутовиков, дождевиков, ржавчины и головни цикл перевёрнут по сравнению с сумчатыми: гаплоидная фаза короткая, а основная жизнь проходит в фазе n + n [24, 25].
Базидиоспора прорастает в одноядерный, или первичный, мицелий. Он гаплоиден, без пряжек, растёт медленнее и плодовых тел обычно не образует. Встретив совместимый мицелий, он сливается с ним, ядра переходят через поры перегородок и расходятся по мицелию партнёра, так что через несколько дней оба мицелия становятся двуядерными. Этот вторичный, дикариотический мицелий и есть «гриб»: он растёт в почве или древесине годами и десятилетиями, образует микоризу, разрушает лигнин и каждую осень выпускает плодовые тела. Плодовое тело целиком построено из гиф дикариона; только в базидиях, выстилающих пластинки или трубочки, ядра сливаются, и на несколько часов появляется диплоидная клетка, сразу делящаяся мейозом [12].
Почему базидиомицеты держат фазу n + n так долго? Предлагают несколько объяснений, и они не исключают друг друга. Дикарион генетически почти диплоид: рецессивная вредная мутация в одном ядре прикрыта исправным аллелем в другом, — то, что даёт животным диплоидность. При этом ядра раздельны, и гриб может заменить одно из них, получив ядро от встречного мицелия (феномен Буллера), — обновить половину генома без мейоза. Наконец, мейоз откладывается до момента, когда пара ядер уже доказала свою жизнеспособность годами роста, и рекомбинирует только удачные сочетания [24, 26].
Одноядерный и двуядерный мицелий
Одноядерный и двуядерный мицелий одного вида различаются не только ядрами, и миколог по ряду признаков узнаёт, какой перед ним.
| Признак | Одноядерный (первичный) | Двуядерный (вторичный) |
|---|---|---|
| Ядра в клетке | Одно (или несколько одинаковых) | Два разных, n + n |
| Пряжки у перегородок | Нет (бывают ложные, незамкнутые) | Есть у большинства видов |
| Скорость роста | Обычно ниже | Обычно выше, мицелий плотнее |
| Плодовые тела | Как правило, не образует | Образует |
| Продолжительность жизни | Дни и недели после прорастания споры | Годы и десятилетия |
| Откуда берётся | Из базидиоспоры | Слияние двух совместимых одноядерных мицелиев |
| Конидии | Многие виды образуют одноядерные оидии | Оидии двуядерные или их нет |
Различие используют в селекции. Чтобы скрестить два штамма вёшенки или шиитаке, из плодовых тел выделяют одноядерные мицелии, растящие из одиночных спор, и подсаживают их попарно: где появились пряжки, там получился дикарион, и его можно испытать на урожай. Шампиньон устроен иначе: его базидия несёт две споры, и каждая получает по два ядра разных типов, так что споры прорастают сразу в двуядерный мицелий — вторичный гомоталлизм. Это удобно для выращивания, но мешает селекции: одноядерные мицелии шампиньона приходится искать среди редких спор с одним ядром [27].
Дикарион не всегда держится строго «по паре». Ядра делятся синхронно, но соотношение двух типов ядер в мицелии шампиньона может отклоняться от 1 : 1, а при стрессе часть клеток теряет одно из ядер, и из них отрастают одноядерные участки — «расщепление дикариона». Такие участки можно выделить и снова скрестить — приём, которым пользуются при поиске новых сочетаний.
Опёнок: диплоидный мицелий
Опёнок осенний — самый известный «нарушитель» правил базидиомицетов. Его базидиоспоры прорастают в обычный гаплоидный мицелий, совместимые мицелии сливаются, образуется дикарион — но ненадолго. Вскоре ядра сливаются, и дальше растёт мицелий с одним диплоидным ядром в клетке, без пряжек. Это показали в 1978 году Роберт Ульрих и Джеймс Андерсон: вегетативный мицелий опёнка в природе диплоиден, и диплоидны его тяжи-ризоморфы и плодовые тела, а мейоз происходит, как обычно, в базидиях [7].
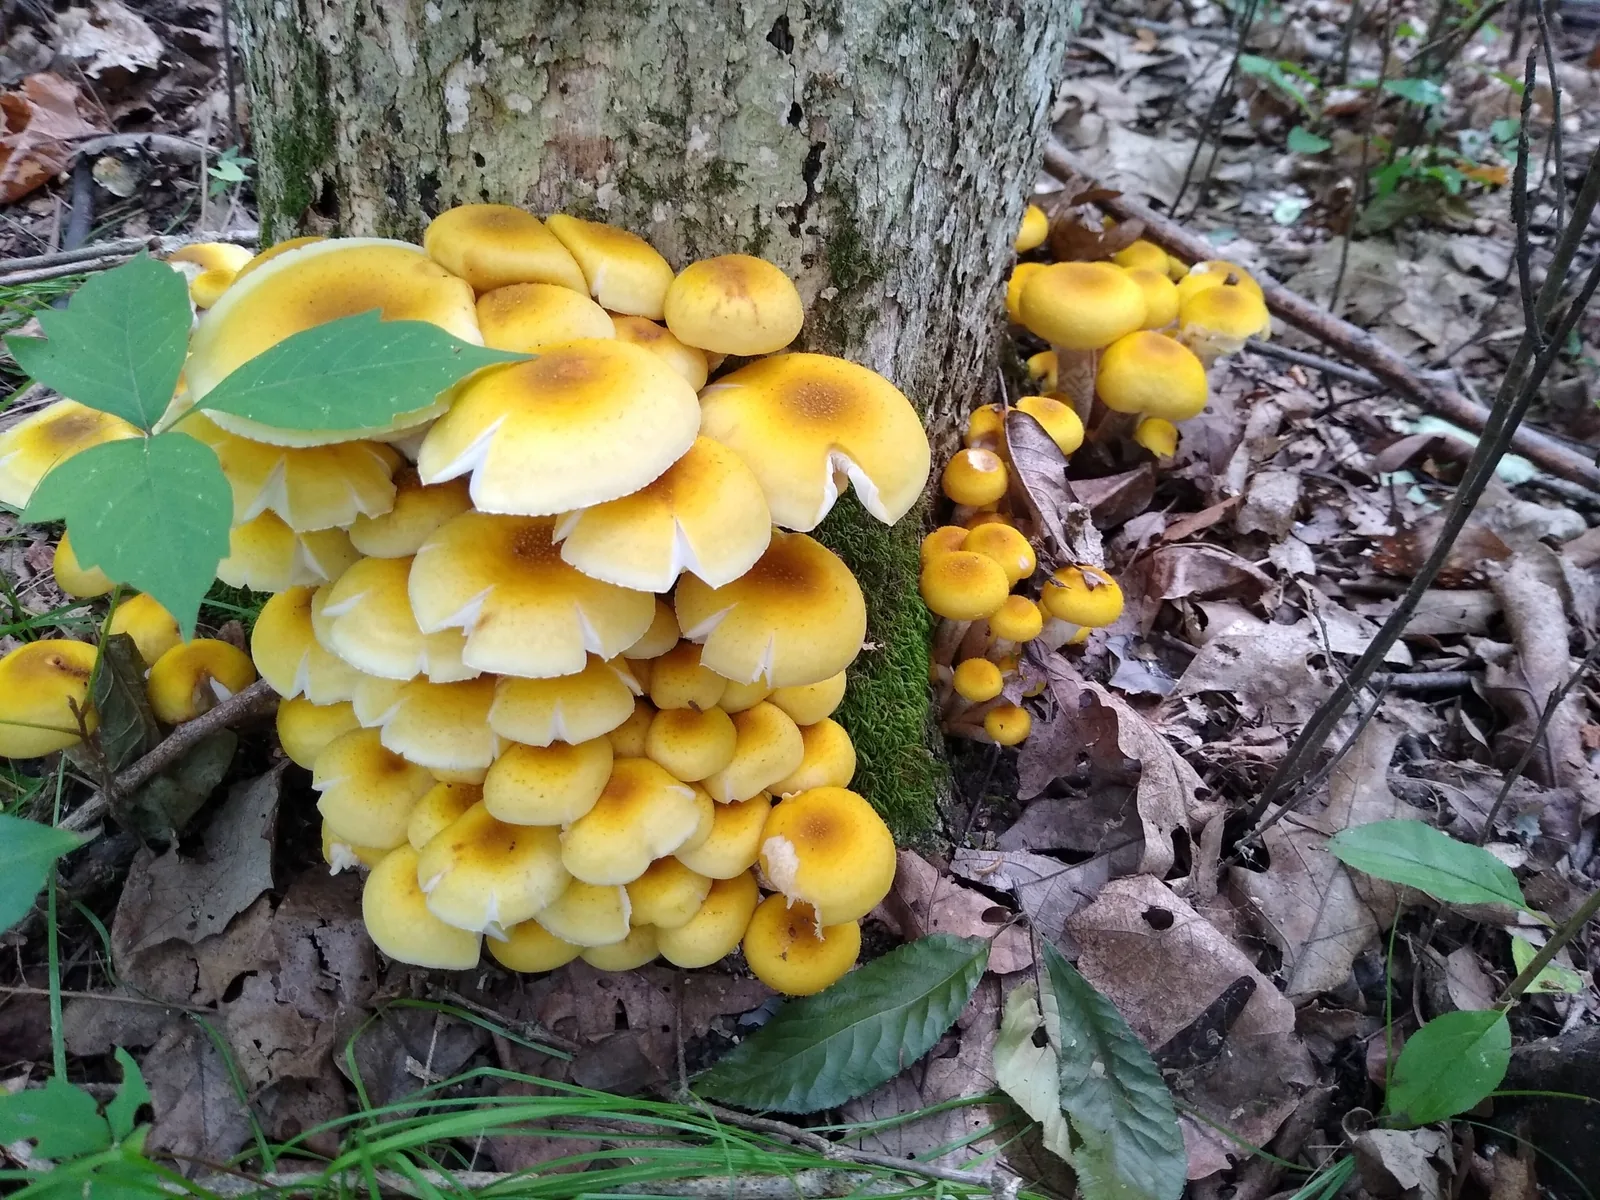
Отсюда следует, что «самый большой организм на Земле» — генет опёнка в национальном лесу Малур в Орегоне, занимающий 965 гектаров и проживший, по оценкам, от 1900 до 8650 лет, — диплоиден по всей своей площади [28]. Почему опёнок отказался от дикариона, неизвестно. Возможно, для паразита, годами захватывающего корни деревьев, выгоднее стабильный диплоид, у которого не может «потеряться» одно из ядер; возможно, это случайность истории. Но пример показывает, что дикарион — не обязательная судьба базидиомицета, а один из вариантов.
Головня: смена фазы — смена образа жизни
У головнёвых грибов каждая фаза цикла имеет свой облик и свой образ жизни, и на пузырчатой головне кукурузы Ustilago maydis это видно лучше всего [29].
Гаплоидная фаза — споридии: одноклеточные дрожжеподобные клетки, почкующиеся на поверхности растений и в почве и питающиеся сахарами, как обычные дрожжи. Заразить кукурузу они не могут. Для этого нужны две споридии, различающиеся по обоим локусам типа спаривания — a (феромоны и рецепторы) и b (гомеодоменные белки). Сливаясь, они дают двуядерную гифу, и только дикарион, активирующий программу паразитизма под управлением белков локуса b, проникает в ткани растения. Он растёт в початках, стеблях и листьях, заставляя клетки хозяина делиться и образовывать желваки, а затем распадается на тёмные толстостенные телиоспоры, в которых ядра сливаются. Весной телиоспора прорастает трубкой-базидией, в ней идёт мейоз, и от трубки отпочковываются новые гаплоидные споридии.
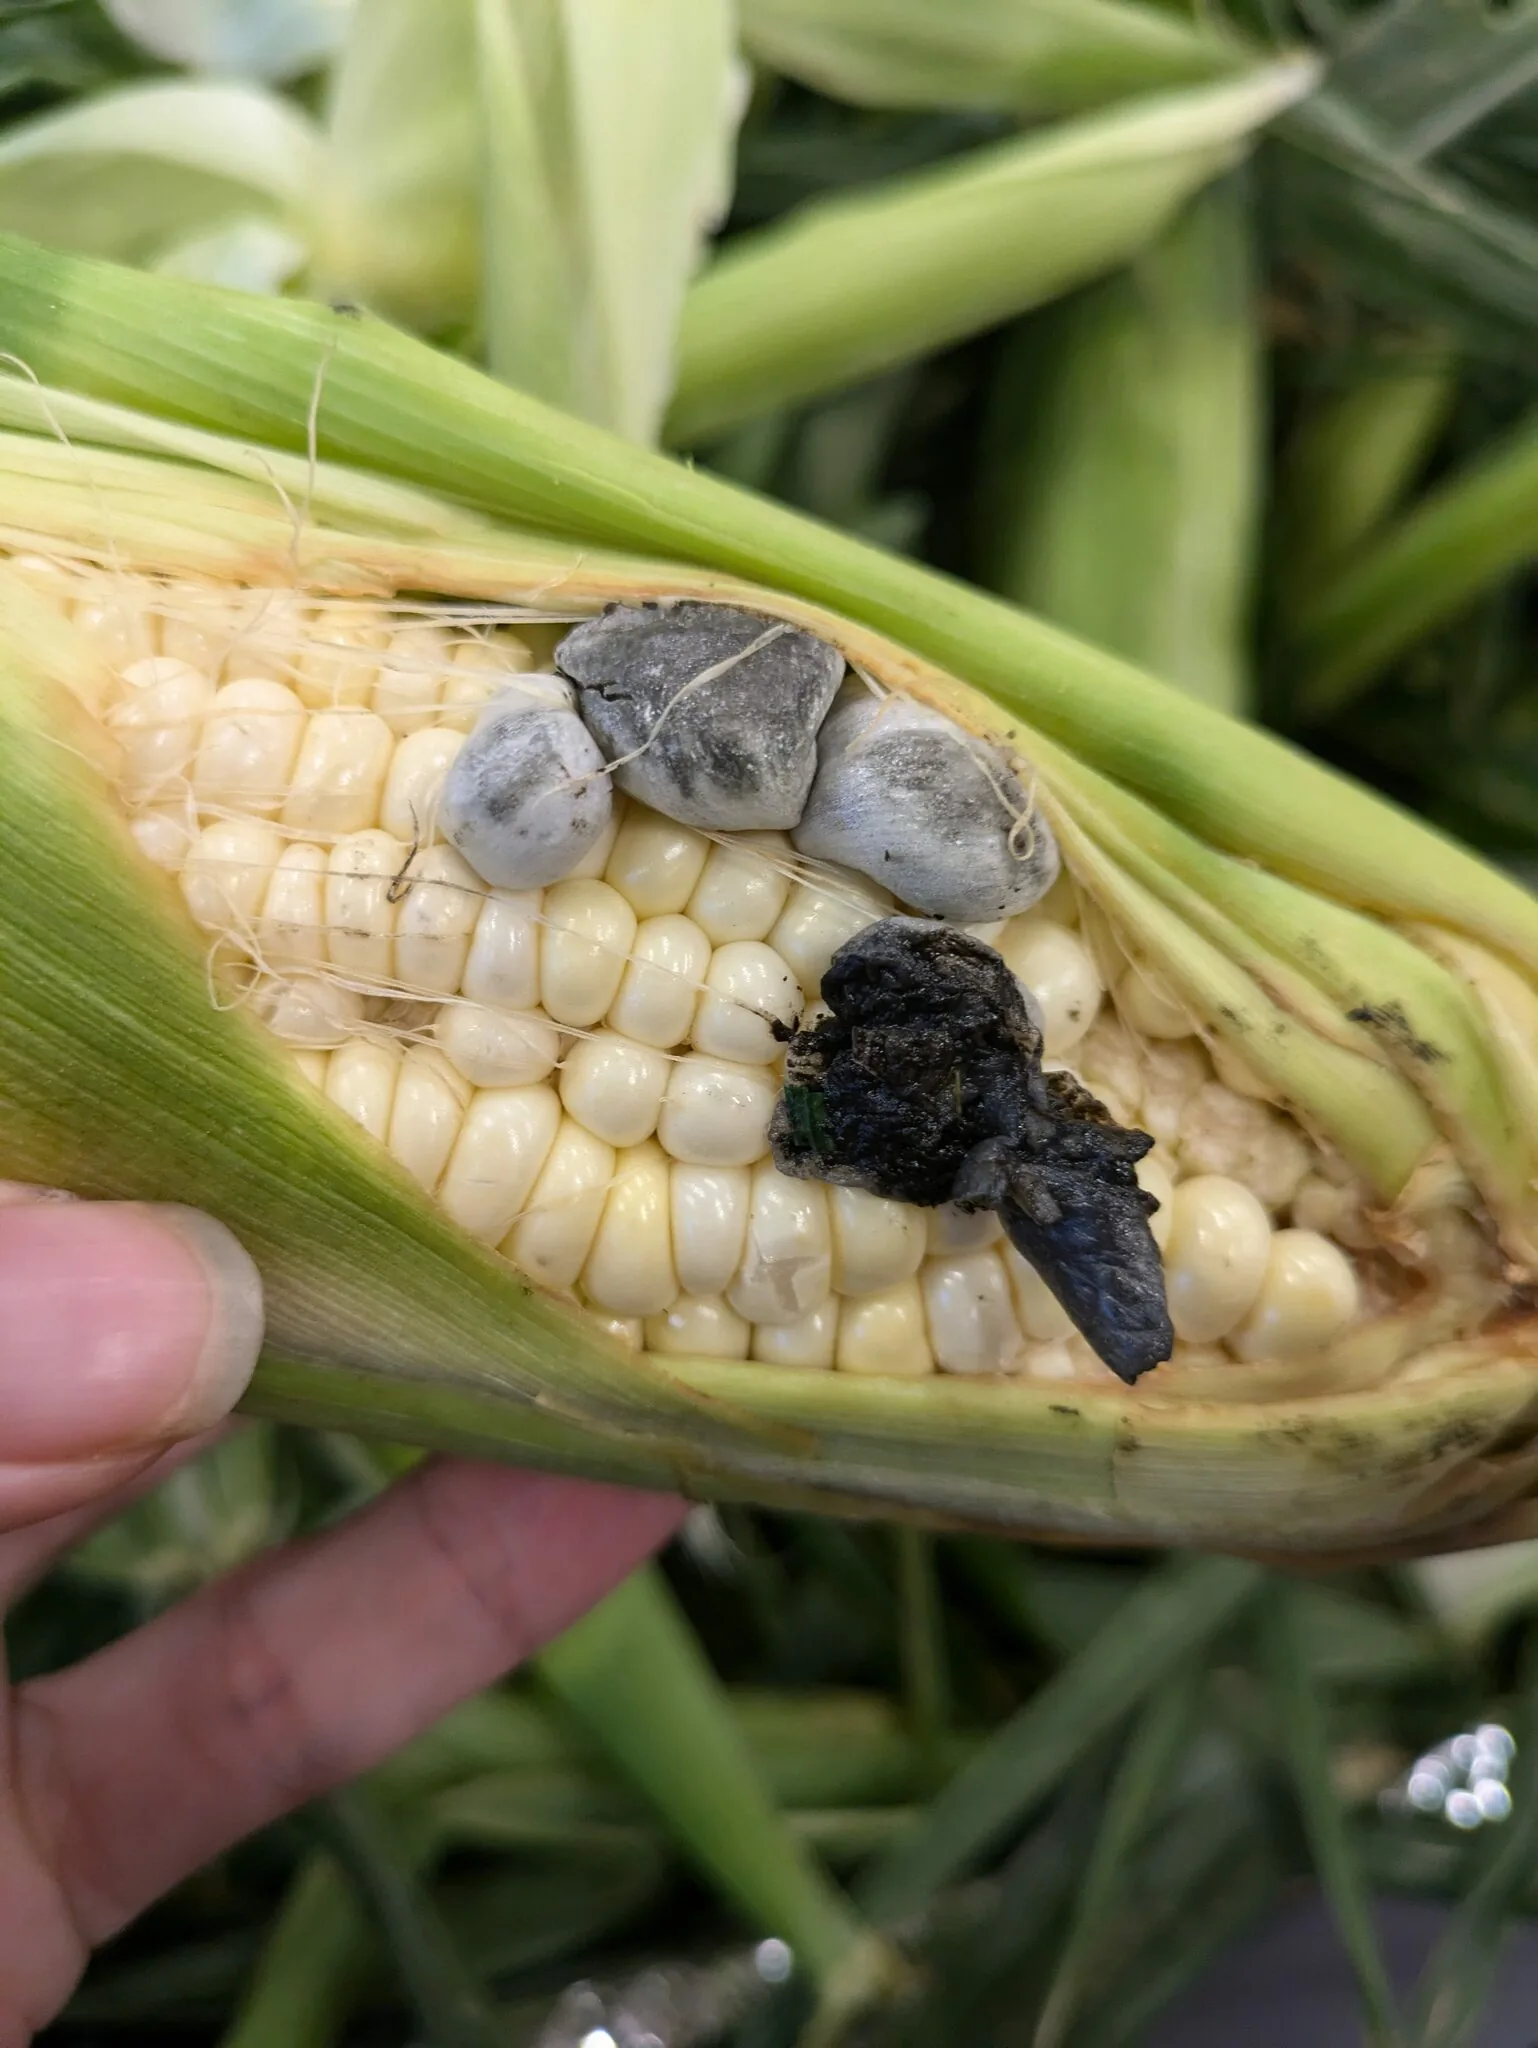
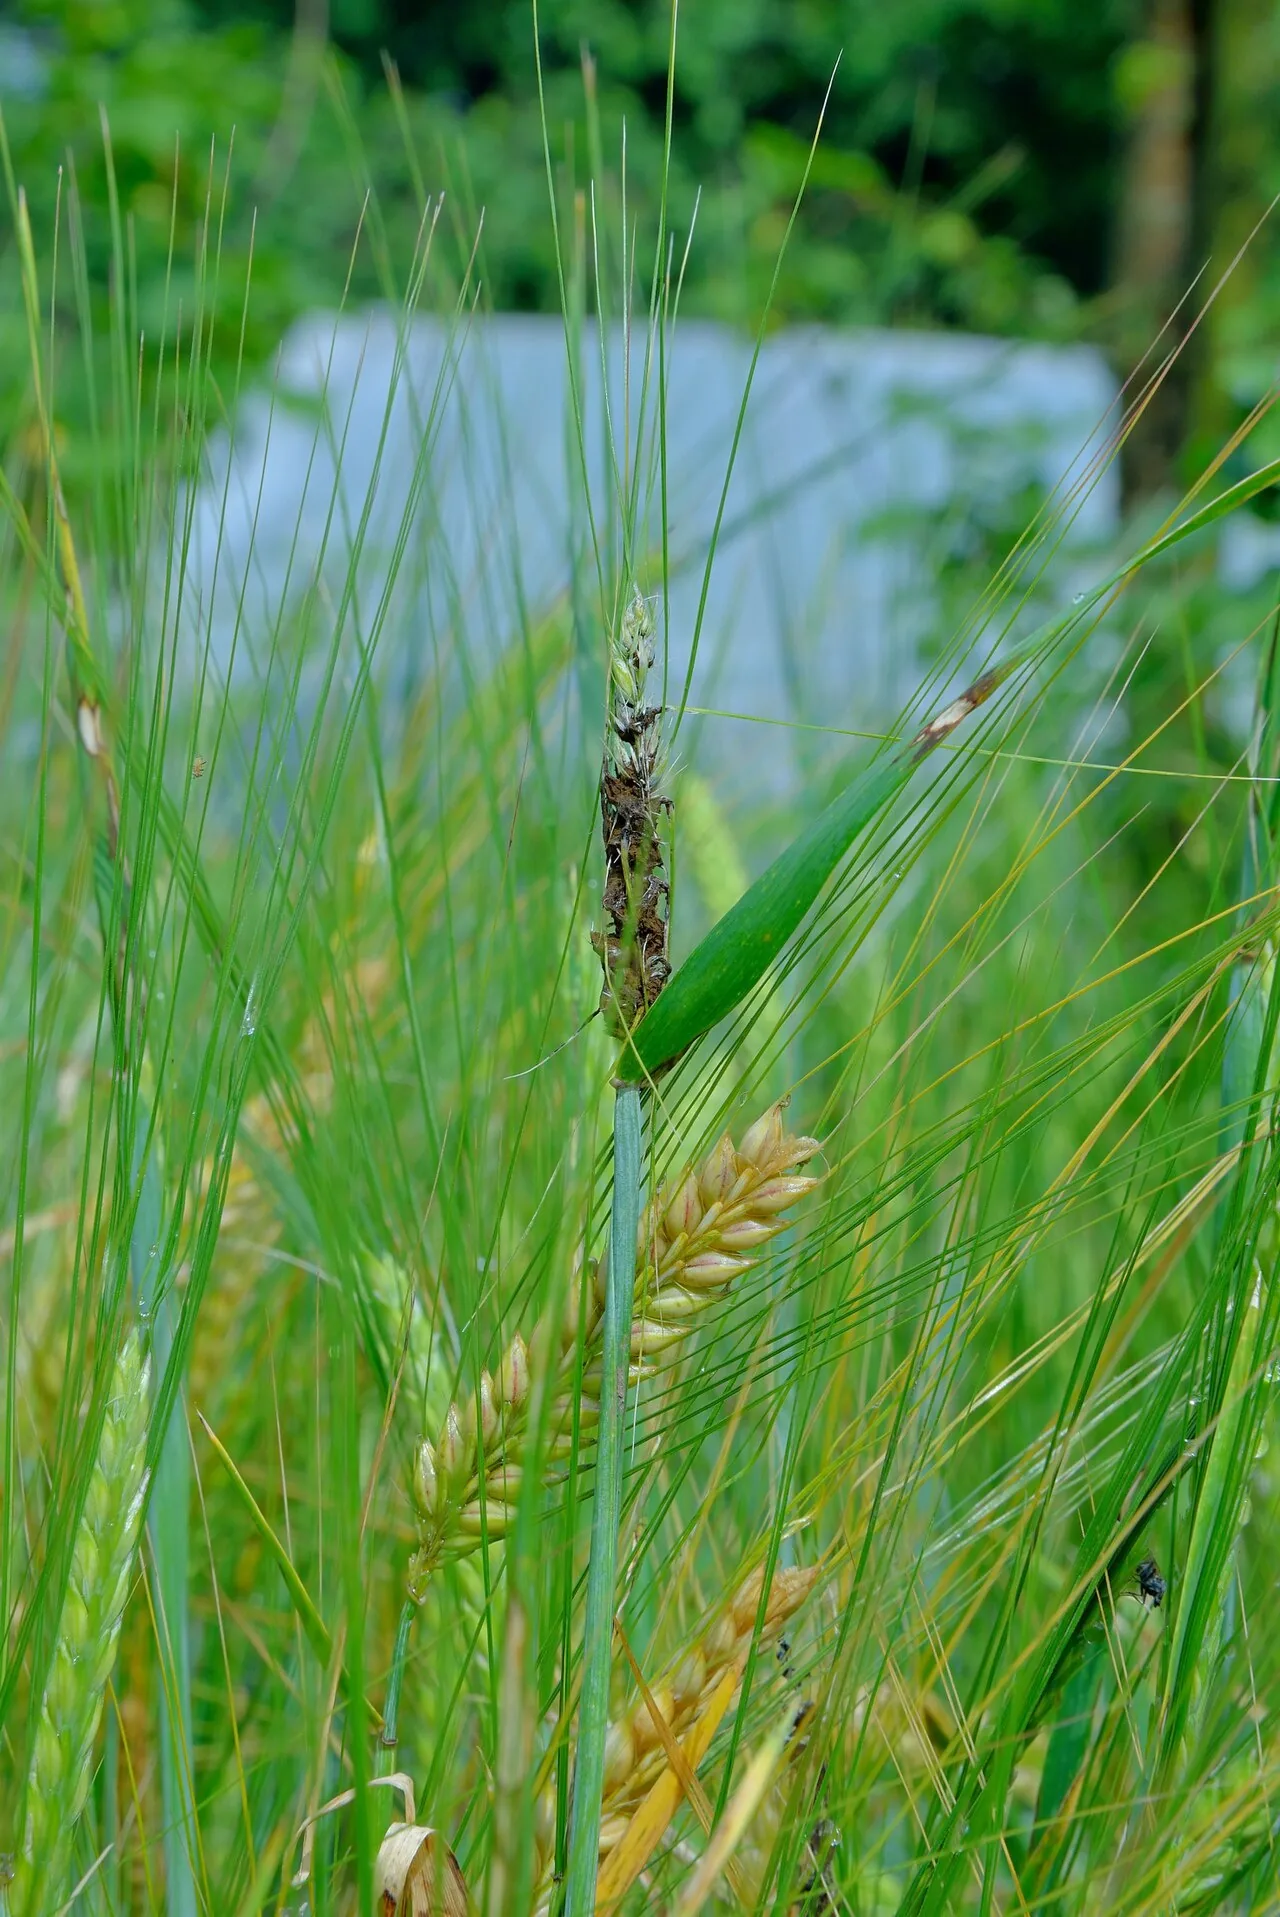
Так один ген-регулятор — белковый комплекс локуса b, образующийся только из двух разных аллелей, — одновременно «проверяет», что ядра пришли от разных родителей, и включает паразитизм. Гриб не может стать паразитом, не получив сначала чужой половины генома. Пыльная головня пшеницы и ячменя устроена похоже, но заражает цветок и проникает в зародыш зерна, где дикарион ждёт прорастания семени, а потом растёт внутри растения до колошения и превращает колос в массу спор.
Ржавчина: фазы пяти спор и рождение Ug99
Цикл стеблевой ржавчины пшеницы разобран в статье о половом процессе; здесь посмотрим на него как на смену ядерных фаз. Каждой фазе соответствуют свои споры [12, 13].
| Спора | Где образуется | Ядерная фаза | Что даёт |
|---|---|---|---|
| Базидиоспора | На базидии из проросшей телиоспоры | n | Заражает барбарис; гаплоидный мицелий |
| Спермаций (пикниоспора) | В пикниях на верхней стороне листа барбариса | n | Переносится насекомыми к воспринимающим гифам другого типа — плазмогамия |
| Эциоспора | В эциях на нижней стороне листа барбариса | n + n | Заражает пшеницу |
| Урединиоспора | В пустулах на пшенице | n + n | Повторно заражает пшеницу всё лето |
| Телиоспора | В телиях на пшенице к осени | n + n, затем 2n | Зимует; ядра сливаются; весной мейоз |
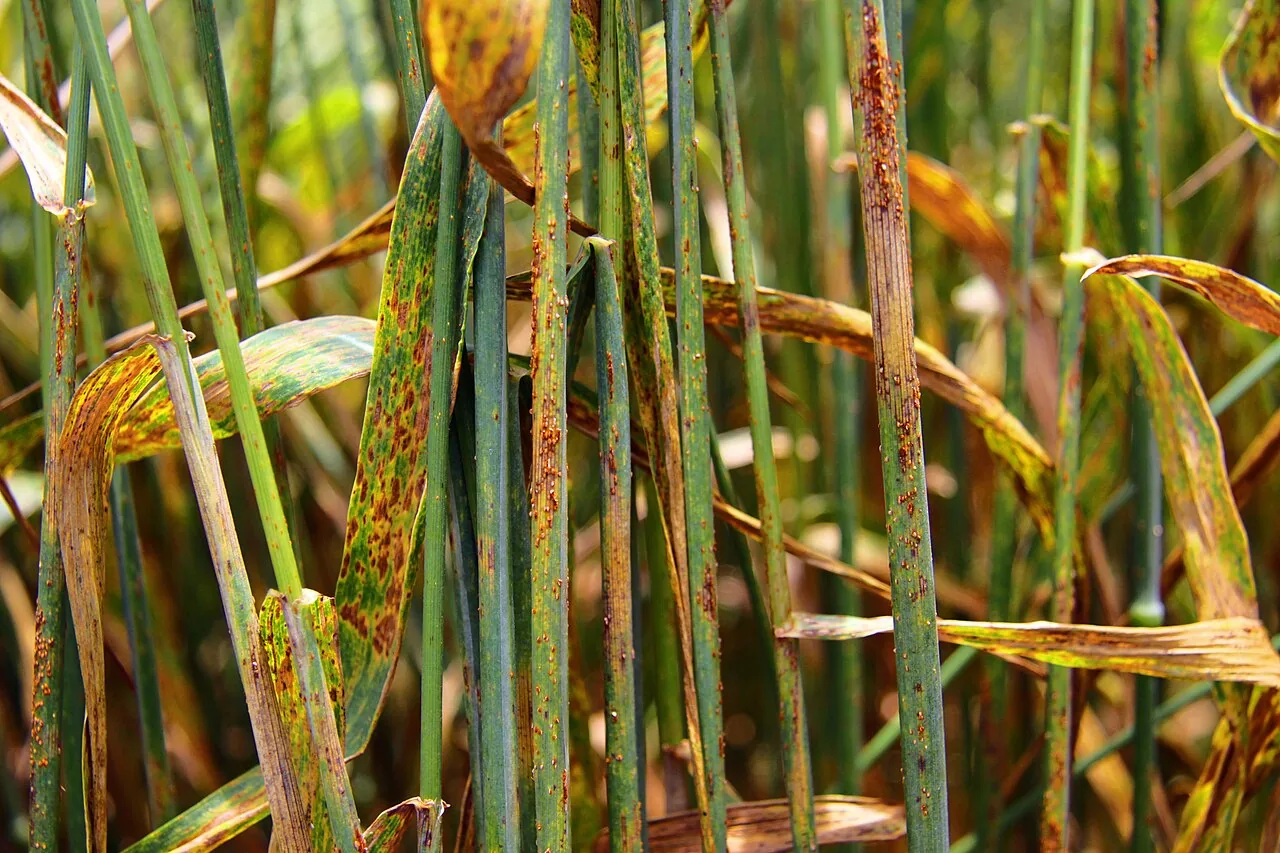
Дикарион ржавчины живёт всё лето, передаваясь от урединиоспоры к урединиоспоре, и каждая пустула на пшенице — клон двуядерного мицелия. Долгое время считалось, что без барбариса, на котором идёт половой процесс, ржавчина размножается строго клонально и меняется только мутациями. В 2019 году группа Фэн Ли и Мелании Фигероа прочитала по отдельности оба ядра расы Ug99 — той, что появилась в Уганде в 1998–1999 годах и поражает почти все сорта пшеницы мира, — и обнаружила, что одно её ядро идентично ядру старой африканской расы Pgt21, а второе пришло от неизвестного родителя. Значит, Ug99 возникла не мутацией и не половым процессом, а соматической гибридизацией: два дикариона срослись гифами и обменялись целыми ядрами, и получился новый дикарион с неизвестным прежде сочетанием двух геномов [11]. Так фаза n + n оказалась не только способом прятать мутации, но и механизмом мгновенного появления новых рас — без мейоза, без барбариса, прямо на поле.
Гломеромицеты: тысячи ядер в одной споре
Гломеромицеты, образующие арбускулярную микоризу с большинством наземных растений, устроены совсем иначе. Их гифы не разделены перегородками, а споры — крупные, до полумиллиметра у некоторых видов, — содержат сотни и тысячи ядер. Половой процесс у них не наблюдали никогда, и долго считалось, что это древнейшие бесполые организмы, размножающиеся сотни миллионов лет без мейоза [30].
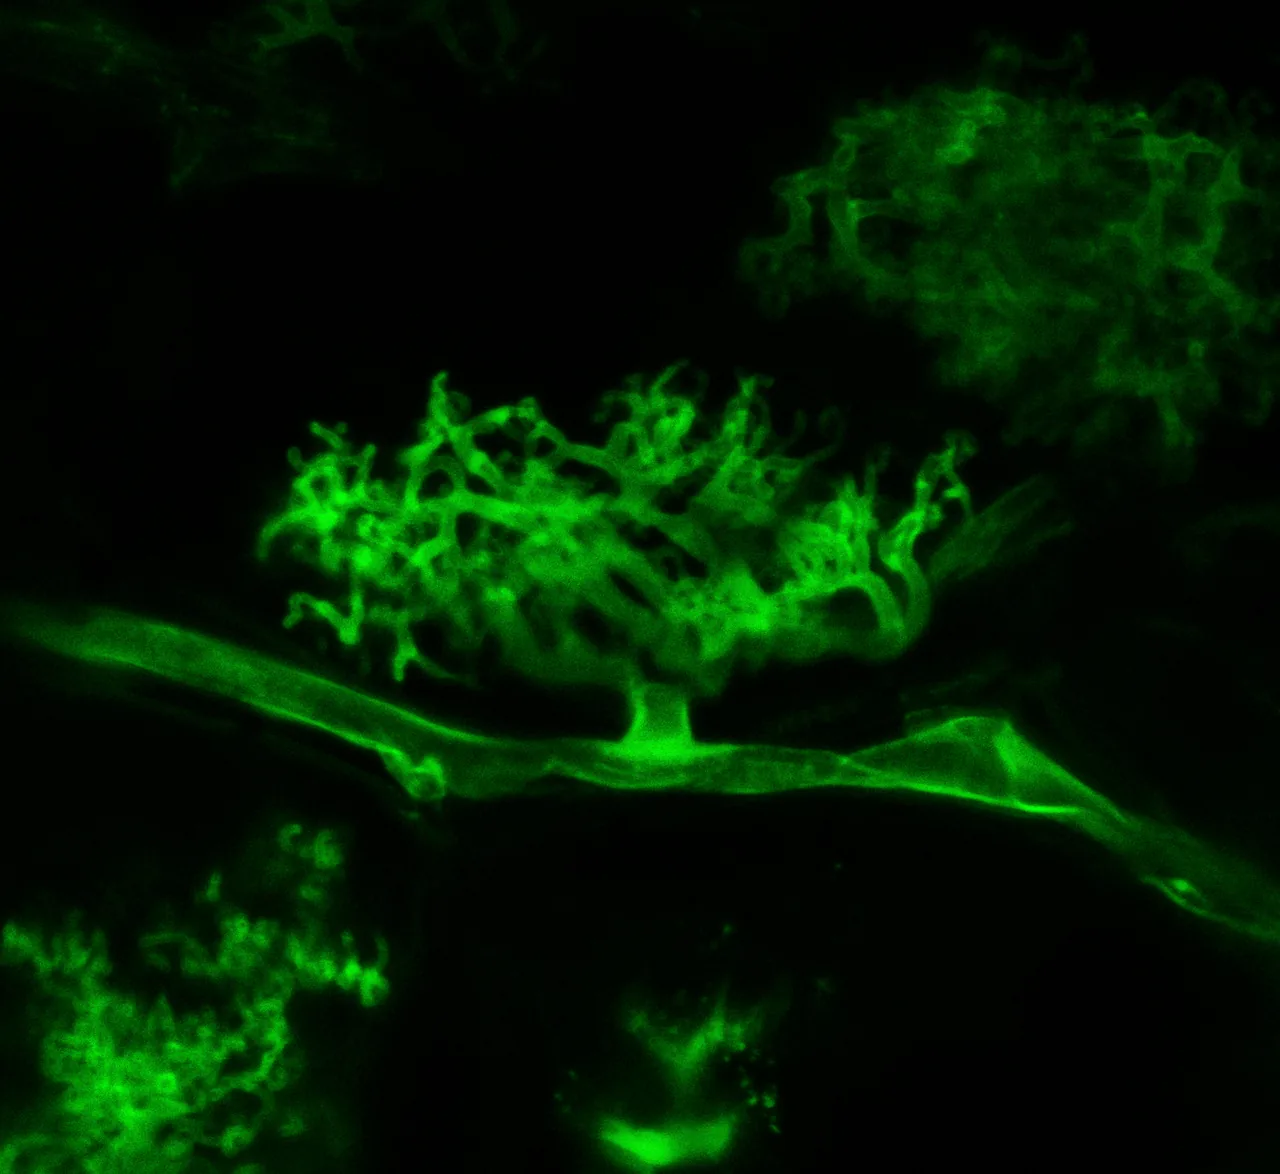
Геномика это опровергла. В 2016 году Жанна Ропар и Николя Коради, прочитав геномы пяти изолятов Rhizophagus irregularis, обнаружили, что одни изоляты содержат ядра одного генотипа (гомокарионы), а другие — ядра двух генотипов, причём различающихся по участку, похожему на локус типа спаривания дикарий. Такие изоляты они назвали дикарионоподобными: в их общей цитоплазме живут две популяции ядер, как в дикарионе, только без пряжек и без строгого счёта «одно к одному» [10]. Позже по одиночным ядрам нашли следы рекомбинации между ними. По-видимому, гломеромицеты сохранили скрытый половой процесс, а их «многоядерная фаза» — особый вариант гетерокариона, в котором популяция ядер переносится в спору целиком.
Кандида и другие постоянные диплоиды
Кандида — диплоидные дрожжи, живущие в кишечнике и на слизистых человека. Полного мейоза у неё не найдено, и её цикл — один из самых необычных. Диплоидные клетки a/α почкуются; иногда одна из копий хромосомы с локусом типа спаривания теряется, клетка становится a/a или α/α и, перейдя в особое «матовое» состояние, способна спариваться. Слияние двух диплоидов даёт тетраплоид, который не проходит мейоза, а при митозах теряет хромосомы одну за другой, пока снова не станет диплоидом или почти диплоидом — с новым сочетанием генов. Это парасексуальный цикл, замкнутый у кандиды в 2003 году [31].
Постоянная диплоидность выгодна кандиде как комменсалу: она прячет вредные мутации, а потеря гетерозиготности по отдельным хромосомам в ответ на лекарства даёт ей быструю устойчивость — устойчивые к азолам штаммы часто содержат лишнюю копию одного плеча хромосомы 5 с геном мишени. Анеуплоидия — изменение числа отдельных хромосом — у грибов вообще служит быстрым, обратимым способом приспособления, и кандида с криптококком пользуются им особенно охотно [32].
Гетерокарион, парасексуальный цикл и анеуплоидия
Кроме трёх «правильных» фаз, у грибов есть промежуточные состояния, не укладывающиеся в схему.
Гетерокарион. Гифы разных мицелиев одного вида срастаются, и в общей цитоплазме оказываются ядра двух или нескольких генотипов в произвольной пропорции. В отличие от дикариона, здесь нет пряжек и счёта: доля ядер каждого типа меняется с условиями, и мицелий может «подстраивать» свой генотип, увеличивая долю выгодных ядер. Гетерокарион позволяет совмещать гены, полезные в разных средах, без полового процесса. У многих грибов слияние с чужими мицелиями ограничено системой вегетативной несовместимости: если мицелии различаются по одному из десятка генов het, слившиеся клетки погибают [6, 33].
Парасексуальный цикл, открытый Понтекорво на аспергилле, проходит в гетерокарионе: изредка (примерно одно ядро на миллион) два ядра разных генотипов сливаются в диплоидное, при митозах в нём случается кроссинговер, затем ядро теряет хромосомы по одной до гаплоидности — и получается рекомбинант без мейоза. Так рекомбинируют грибы, у которых половой процесс неизвестен или редок; на парасексуальном цикле строили генетические карты аспергилла и вели селекцию промышленных пенициллов [6].
Анеуплоидия и полиплоидия. Лишняя или недостающая хромосома, которая у животных обычно смертельна, у грибов переносится легко и служит быстрым ответом на стресс. Промышленные дрожжи полиплоидны, у ржавчинных и некоторых других грибов в природе встречаются триплоиды и тетраплоиды. Плоидность у грибов — гибкий параметр, а не постоянная вида.
Какая фаза переживает зиму
Если посмотреть, какой стадией гриб переживает холод, засуху или отсутствие хозяина, обнаружится закономерность: очень часто это клетка, в которой ядра уже слились или вот-вот сольются.
| Гриб | Покоящаяся стадия | Ядерная фаза | Сколько живёт |
|---|---|---|---|
| Синхитриум (рак картофеля) | Покоящийся спорангий | 2n | Более 40 лет в почве |
| Алломицес | Толстостенный покоящийся спорангий | 2n, мейоз при прорастании | Годы в сухой почве |
| Мукор, ризопус | Зигоспора | 2n | Месяцы |
| Ржавчина пшеницы | Телиоспора | n + n, затем 2n | Зима на стерне |
| Головня кукурузы | Телиоспора | 2n | Годы в почве |
| Мучнистая роса, аспергилл | Клейстотеций с сумками | Сумки 2n, аскоспоры n | Зима на опавших листьях |
| Спорынья | Склероций | n (гаплоидный мицелий) | Зима в почве |
| Шляпочные грибы | Мицелий в почве и древесине | n + n | Годы и десятилетия |
Почему покоятся так часто диплоидные клетки? Одно объяснение — ремонт ДНК. За месяцы покоя в спору попадают разрывы и повреждения ДНК от ультрафиолета, высыхания и окислителей. Гаплоидной клетке, если повреждены обе цепи, нечем восстановить потерянный участок; диплоидная клетка может скопировать его с гомологичной хромосомы, а мейоз при прорастании — та же гомологичная рекомбинация — заодно исправляет повреждения. Второе объяснение — время для рекомбинации: условия после зимы непредсказуемы, и выход из покоя через мейоз даёт потомству новые сочетания генов именно тогда, когда среда сменилась. Так покой и половой процесс у грибов оказываются связаны: половые споры, как правило, и есть зимующие [16, 14].
Шляпочные грибы — исключение, подтверждающее правило: их дикариотический мицелий в почве и древесине сам по себе долговечен, защищён субстратом и несёт два набора генов, так что ему не нужна отдельная покоящаяся стадия. Покой у них — это просто медленный рост зимой и остановка плодоношения.
Фаза и болезнетворность
У многих паразитов способность заражать включается только в определённой фазе, и это делает жизненный цикл ключом к пониманию болезни.
- Дикарион — паразит. У головни и тафрины гаплоидные дрожжеподобные клетки — безобидные сапротрофы, а заражает только двуядерный мицелий. У ржавчины на пшенице живёт только дикарион, а гаплоидная фаза ограничена барбарисом. Включение паразитизма вслед за слиянием клеток разных партнёров встречается у разных групп независимо — видимо, так гриб «проверяет», что у него две разные половины генома, прежде чем вложиться в долгую жизнь внутри хозяина [29, 20].
- Гаплоид — паразит. Возбудитель пирикуляриоза риса, фузариумы, аспергиллы заражают в гаплоидной фазе; половой процесс у них редок или не нужен для болезни. Здесь важна скорость: гаплоидная популяция на поле быстро отбирает мутантов, преодолевающих устойчивость сорта.
- Диплоид — паразит. Кандида — диплоидный комменсал и патоген человека. Её форма меняется не с фазой, а с условиями: дрожжи в крови, гифы в тканях.
- Плоидность как оружие. Криптококк, гаплоидные дрожжи, вызывающие менингит, в лёгких человека образует титанические клетки — гигантские, во много раз крупнее обычных, с многократно умноженным геномом. Макрофаг не может их поглотить, а при делении они дают гаплоидное и анеуплоидное потомство, среди которого быстро находятся клоны, устойчивые к лекарствам и стрессу [34].
Практический вывод для фитопатологии: там, где болезнетворна только одна фаза, разрыв цикла — уничтожение промежуточного хозяина ржавчины, протравливание семян от головни, удаление зимующих листьев с клейстотециями — бьёт по самому уязвимому звену. А там, где гриб может обмениваться ядрами между дикарионами, как ржавчина, новые расы появляются и без полового процесса, и одной борьбы с барбарисом мало [11, 35].
Зачем грибу гаплоидность
Животные почти все диплоидны, грибы почти все гаплоидны или дикариотичны. Почему так по-разному? Теория эволюции жизненных циклов, сведённая в обзоре Барбары Мейбл и Сары Отто, называет несколько факторов, и у грибов они действуют в пользу гаплоидности чаще, чем у животных [16, 36].
- Прикрытие мутаций. В диплоиде рецессивная вредная мутация не проявляется, пока не встретится в паре, — диплоиды выигрывают в среде с высоким темпом мутаций. Но это преимущество временное: прикрытые мутации накапливаются в популяции. Гаплоид немедленно «показывает» каждую мутацию отбору и очищается от вредных быстрее.
- Скорость приспособления. Полезная рецессивная мутация в гаплоиде сразу видна отбору; в диплоиде она должна сначала стать частой. В огромных популяциях микроорганизмов, где полезных мутаций много, гаплоиды приспосабливаются быстрее — это и показал опыт Зейла на дрожжах [8].
- Экономия. Гаплоидная клетка меньше, ей нужно меньше азота и фосфора на копирование ДНК, отношение поверхности к объёму у неё выше. Это значит больше всасывания на единицу массы — для осмотрофа существенно. В опытах пекарские дрожжи-гаплоиды выигрывают при недостатке питания, диплоиды — при его избытке.
- Размер популяции и образ жизни. Организм, живущий огромными популяциями клонов и быстро меняющий среду, выигрывает от гаплоидности; долгоживущий крупный организм, накопивший много делений, — от диплоидности.
Дикарион выглядит как компромисс, совмещающий лучшее из двух: в нём есть прикрытие мутаций, как в диплоиде, но ядра остаются раздельными и при необходимости могут быть заменены, а рекомбинация откладывается до проверки пары временем. То, что дикарион возник один раз у общего предка аскомицетов и базидиомицетов и подцарство Dikarya включает 97 % описанных видов грибов, — довод в пользу того, что компромисс удачен [26].
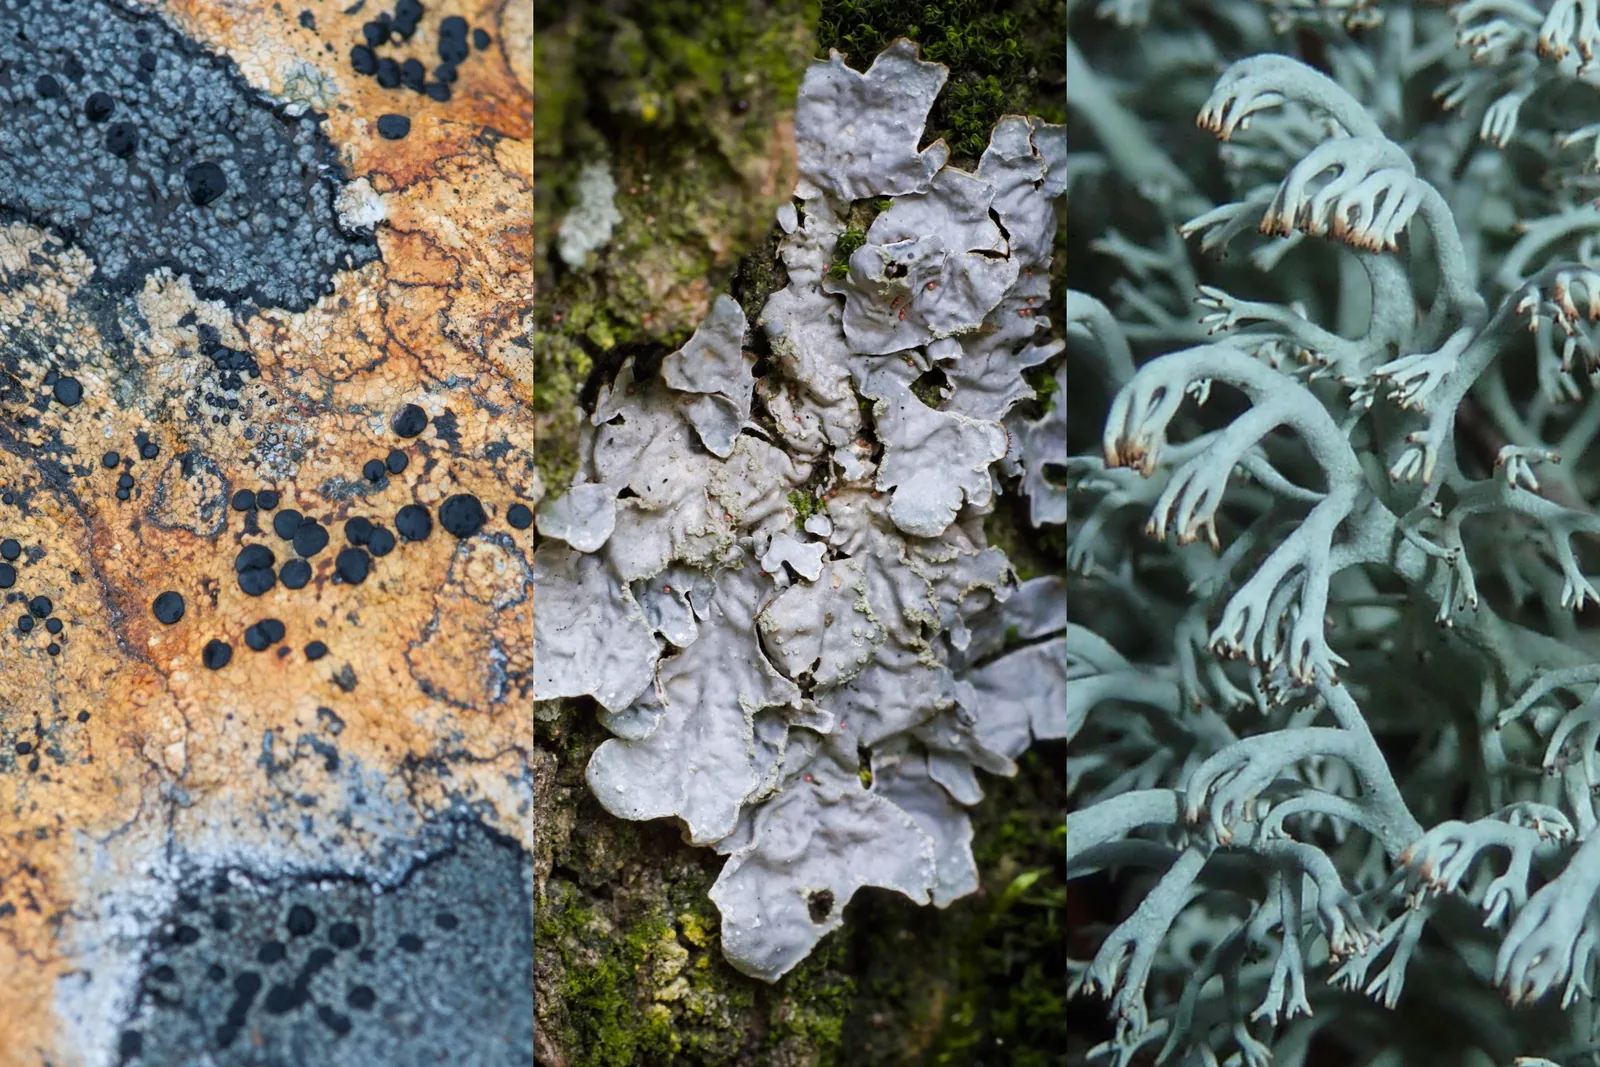
Лишайниковые грибы показывают ещё одну сторону: почти все они аскомицеты с гаплоидным мицелием, а размножаются в основном вегетативно — кусочками таллома с водорослью, соредиями и изидиями, — так что половой процесс с сумками и спорами у многих редок. Долгоживущий лишайник, растущий по миллиметру в год, оказывается почти клоном, и генетическое разнообразие его популяций часто поразительно низко.
Как узнать фазу
Определить фазу гриба на практике можно несколькими способами, и каждый отвечает на свой вопрос.
- Пряжки. Самый быстрый признак дикариона у базидиомицетов: петелька у каждой перегородки видна при увеличении 400×. Но есть исключения: у шампиньона и многих видов дикарион без пряжек, у опёнка пряжек нет, потому что мицелий диплоиден.
- Окраска ядер. Красители, связывающиеся с ДНК (например, DAPI, светящийся голубым в ультрафиолете), показывают, сколько ядер в клетке: одно, два или сотни.
- Проточная цитометрия. Клетки или выделенные ядра окрашивают и пропускают через лазер по одной; яркость пропорциональна количеству ДНК, и по ней видно, гаплоидны ядра или диплоидны, и на какой стадии цикла клетки. Так проверяют плоидность промышленных дрожжей и находят анеуплоидов.
- Генетика. Если в потомстве одной культуры расщепляются признаки, значит, в ней были ядра разных генотипов или диплоид. Тетрадный анализ показывает, был ли мейоз.
- Геномика. Чтение генома отдельных ядер или длинными фрагментами позволяет разделить гаплотипы ядер дикариона — именно так установили происхождение Ug99.
Частые вопросы
Белый гриб — гаплоид или диплоид? Ни то ни другое: его мицелий и плодовое тело двуядерны, n + n. Диплоидны только молодые базидии на стенках трубочек, и только несколько часов перед мейозом.
Можно ли сказать, что дикарион — это «диплоид с раздельными ядрами»? По числу наборов генов — да, в клетке два набора. По поведению — нет: ядра делятся отдельно, могут разойтись или заменяться, и мейоз невозможен, пока они не сольются. Поэтому дикарион записывают как n + n, а не 2n.
Почему у гриба не бывает «диплоидного тела», как у нас? Бывает — у опёнка, кандиды, пекарских дрожжей, у спороталлома алломицеса. Но у большинства грибов отбор сделал выгоднее гаплоидную или дикариотическую жизнь: огромные популяции, быстрый рост, всасывающее питание.
Если мицелий мукора гаплоиден, как он обходится без второй копии генов? Так же, как бактерии: каждая мутация сразу проверяется отбором, и вредные быстро удаляются. Многоядерность при этом даёт некоторую защиту: в одной гифе ядра могут немного различаться, и повреждённое ядро не губит всю клетку.
Плодовое тело гриба — это половое поколение? Плодовое тело — орган спороношения дикариона: в нём происходят кариогамия и мейоз. Ни гаметофитом, ни спорофитом в растительном смысле оно не является.
Сколько живёт диплоид у шляпочного гриба? Часы: от слияния ядер в молодой базидии до мейоза. За всю жизнь мицелия, длящуюся десятилетия, это мгновение — но через него проходят все его гены.
Что нужно знать к ЕГЭ
- у большинства грибов мицелий гаплоидный (n): мукор, пеницилл, дрожжи в гаплоидной фазе;
- у мукора: мицелий n, спорангиоспоры n (митоз), зигота (зигоспора) 2n, при её прорастании — мейоз, споры зародышевого спорангия n;
- у сумчатых грибов: мицелий n, молодая сумка 2n (после слияния ядер), аскоспоры n (мейоз, затем митоз — восемь спор), конидии n (митоз);
- у шляпочных грибов: споры n, первичный мицелий n, вторичный (образующий плодовые тела) мицелий двуядерный n + n, молодая базидия 2n, базидиоспоры n (мейоз);
- мейоз у грибов происходит сразу после слияния ядер (зиготическая редукция), поэтому взрослые стадии гаплоидны или двуядерны;
- дрожжи могут размножаться почкованием и как гаплоиды, и как диплоиды; при неблагоприятных условиях — мейоз и сумка с четырьмя спорами;
- сравнение с растениями: у мхов и папоротников чередуются гаметофит n и спорофит 2n; у грибов чередования поколений, как правило, нет.
Ловушки. «Клетки плодового тела шляпочного гриба диплоидны» — нет, двуядерны (n + n). «Споры мукора, образующиеся в спорангиях на мицелии, возникают мейозом» — нет, митозом; мейоз — при прорастании зигоспоры. «Аскоспоры образуются митозом» — нет, мейозом (и затем одним митозом). «У грибов есть гаметофит и спорофит» — у большинства нет; исключение — алломицес. «Дикарион — это диплоидная клетка» — нет: два гаплоидных ядра не слиты.
Для олимпиад
Счёт ДНК. Пусть гаплоидный геном гриба — 1C. Гаплоидная клетка в G1 содержит 1C, после S-фазы — 2C; дикариотическая клетка в G1 — 2C (два ядра по 1C), после S — 4C; молодая базидия после слияния ядер — 2C в одном ядре, перед мейозом (после премейотической S-фазы) — 4C; каждая из четырёх базидиоспор — 1C. Проточная цитометрия различает гаплоид в G2 и диплоид в G1 только по числу ядер, а не по количеству ДНК: обе клетки дают пик 2C.
Мутационная нагрузка. Если частота рецессивного летального аллеля в популяции q, то в гаплоидной фазе гибнет доля q особей (каждая особь с аллелем), а в диплоидной или дикариотической при случайном составлении пар — только q². При q = 0,02: гаплоиды теряют 2 %, диплоиды — 0,04 %, в 50 раз меньше. Зато в гаплоидной популяции аллель удаляется в каждом поколении, а в диплоидной накапливается до равновесия μ = q² (для летального рецессива), то есть q ≈ √μ.
Мейоз и споры. Из одной базидии — четыре базидиоспоры, из одной сумки нейроспоры — восемь (мейоз + митоз), из одной телиоспоры головни — четыре гаплоидных ядра, дающих бесконечные почкующиеся клоны споридий. Число мейозов на плодовое тело шляпочного гриба — порядка 10⁹, и за сезон один мицелий проводит больше мейозов, чем всё человечество за год.
Тетраполярный дикарион. Дикарион с генотипом ядер A1B1 + A2B2 после кариогамии и мейоза даёт базидиоспоры четырёх типов спаривания (A1B1, A1B2, A2B1, A2B2) в равных долях при несцепленных локусах; совместимы (различаются по обоим локусам) лишь пары A1B1 × A2B2 и A1B2 × A2B1.
Соматическая гибридизация. Если два дикариона AB и CD обмениваются ядрами, возможны новые дикарионы AC, AD, BC, BD — четыре новых сочетания без единого мейоза. Ug99 — один из таких гибридов (одно ядро от Pgt21, второе от неизвестного родителя) [11].
Задания с разбором
Задание 1
Назовите три ядерные фазы жизненного цикла грибов и объясните, чем дикариотическая фаза отличается от диплоидной.
Разбор
Гаплоидная (n) — в ядре один набор хромосом; дикариотическая (n + n) — в клетке два гаплоидных ядра разного происхождения, делящиеся синхронно и не сливающиеся; диплоидная (2n) — ядра слились, в ядре два набора хромосом. Дикарион генетически содержит два набора генов, как диплоид, но ядра раздельны: они могут разойтись, одно из них может быть заменено (феномен Буллера), мейоз невозможен без предварительной кариогамии. Дикарион есть только у аскомицетов и базидиомицетов.
Задание 2
Какие события полового процесса меняют ядерную фазу и в каком направлении? Меняет ли фазу митоз?
Разбор
Плазмогамия (слияние клеток) переводит гаплоидные клетки в дикарион или гетерокарион (n + n); кариогамия (слияние ядер) — дикарион в диплоид (2n); мейоз — диплоид в четыре гаплоидных ядра (n) с новыми сочетаниями генов. Митоз фазу не меняет: он копирует ядро, и клетка остаётся в той же фазе; поэтому гриб может размножаться бесполым путём в любой фазе — гаплоидными конидиями, двуядерными урединиоспорами, диплоидными почками дрожжей.
Задание 3
Сравните зиготический, гаметический и споровый мейоз. Приведите примеры организмов и укажите, какой тип преобладает у грибов.
Разбор
Зиготический — зигота сразу делится мейозом, взрослое тело гаплоидно: хламидомонада, спирогира, большинство грибов (мукор, нейроспора). Гаметический — мейоз при образовании гамет, тело диплоидно: животные, фукус. Споровый — мейоз при образовании спор, из которых вырастает гаплоидное поколение; чередуются поколения: растения, ламинария, гриб алломицес. У грибов преобладает зиготический мейоз, но у аскомицетов и базидиомицетов между плазмогамией и кариогамией вставлена дикариотическая фаза.
Задание 4
Определите хромосомный набор клеток мицелия, спорангиоспор, зигоспоры и спор зародышевого спорангия мукора. Каким делением образуется каждая из этих клеток?
Разбор
Мицелий — n, растёт митозами из гаплоидной споры. Спорангиоспоры — n, образуются митозом в спорангии на гаплоидном мицелии (бесполое размножение). Зигоспора — 2n (ядра в ней сливаются после слияния гаметангиев двух мицелиев «+» и «−»). Споры зародышевого спорангия — n, образуются после мейоза при прорастании зигоспоры и последующих митозах.
Задание 5
Определите ядерную фазу клеток одноядерного мицелия, вторичного мицелия, плодового тела, молодой базидии и базидиоспор шляпочного гриба. Каким делением образуются базидиоспоры?
Разбор
Одноядерный (первичный) мицелий — n, вырастает из базидиоспоры. Вторичный мицелий — n + n, двуядерный, образуется при слиянии двух совместимых первичных мицелиев. Плодовое тело — n + n, построено из гиф вторичного мицелия. Молодая базидия — 2n, в ней сливаются два ядра. Базидиоспоры — n, образуются в результате мейоза ядра базидии; четыре ядра переходят в четыре споры.
Задание 6
Почему дикарион у сумчатых грибов называют коротким, а у базидиомицетов — длительным? Какую роль играет дикарион у тех и других?
Разбор
У сумчатых дикарион существует несколько дней в аскогенных гифах внутри плодового тела после оплодотворения аскогона; основной мицелий гаплоиден. Его роль — размножить пару ядер митозами, чтобы одно оплодотворение дало десятки сумок. У базидиомицетов дикарион — основная фаза жизни: вторичный мицелий растёт годами, образует плодовые тела, микоризу, разрушает древесину; гаплоидная фаза короткая. Его роль — прикрыть рецессивные мутации, как у диплоида, сохранить возможность замены ядра и отложить мейоз до проверки пары временем.
Задание 7
Опишите жизненный цикл алломицеса. Чем он напоминает цикл ульвы и отличается от циклов других грибов?
Разбор
Диплоидный спороталлом образует тонкостенные зооспорангии (диплоидные зооспоры, бесполое размножение) и толстостенные покоящиеся спорангии, в которых при прорастании проходит мейоз; гаплоидные зооспоры вырастают в гаплоидный гаметоталлом с мужскими (оранжевыми) и женскими (бесцветными) гаметангиями; гаметы сливаются, зигота прорастает в спороталлом. Как у ульвы — изоморфное чередование гаплоидного и диплоидного поколений с споровым мейозом. У большинства грибов мейоз зиготический и чередования поколений нет.
Задание 8
Сравните жизненные циклы пекарских и делящихся дрожжей. В какой фазе каждый вид проводит большую часть жизни?
Разбор
Пекарские дрожжи — гапло-диплонты: гаплоидные клетки a и α почкуются; слившись, дают диплоид a/α, который тоже почкуется неограниченно; при голодании по азоту диплоид проходит мейоз и образует сумку с четырьмя спорами. В природе и промышленности живут в основном диплоидами. Делящиеся дрожжи — гаплонты: гаплоидные клетки делятся пополам; при голодании клетки разных типов сливаются, и зигота сразу проходит мейоз, образуя сумку с четырьмя спорами. Живут гаплоидами.
Задание 9
Чем жизненный цикл опёнка отличается от цикла других шляпочных грибов? Почему говорят, что «самый большой организм» диплоиден?
Разбор
У опёнка дикарион, образовавшийся после слияния совместимых мицелиев, вскоре превращается в диплоид: ядра сливаются, и вегетативный мицелий, ризоморфы и плодовые тела состоят из клеток с одним диплоидным ядром, без пряжек; мейоз — в базидиях. У других шляпочных грибов основной мицелий двуядерный. Генет опёнка в Орегоне, занимающий 965 га, — это один вегетативный мицелий одного генотипа, а он у опёнка диплоиден.
Задание 10
Опишите жизненный цикл пузырчатой головни кукурузы. Почему гаплоидные споридии не могут заразить растение?
Разбор
Гаплоидные споридии почкуются как дрожжи на поверхности растений, питаясь сапротрофно. Две споридии, различающиеся по локусам a и b, сливаются; образуется двуядерная гифа, которая проникает в кукурузу, вызывает желваки и распадается на телиоспоры; в телиоспорах ядра сливаются (2n). Весной телиоспора прорастает базидией, проходит мейоз, отпочковываются новые споридии. Программу паразитизма включает белковый комплекс, образующийся только из двух разных аллелей локуса b, то есть только в клетке с ядрами двух разных партнёров; одиночная споридия этого комплекса не имеет.
Задание 11
Укажите ядерную фазу каждой из пяти спор стеблевой ржавчины пшеницы. Где происходят плазмогамия, кариогамия и мейоз?
Разбор
Базидиоспоры — n; спермации (пикниоспоры) — n; эциоспоры — n + n; урединиоспоры — n + n; телиоспоры — n + n, затем 2n после кариогамии. Плазмогамия — на листе барбариса, когда спермаций сливается с воспринимающей гифой пикния другого типа; кариогамия — в телиоспоре на пшенице осенью; мейоз — при прорастании телиоспоры весной, в базидии.
Задание 12
Как возникла раса стеблевой ржавчины Ug99? Почему это открытие изменило представление о «клональных» ржавчинах?
Разбор
Прочитав по отдельности геномы двух ядер Ug99, исследователи (2019) обнаружили, что одно ядро идентично ядру старой африканской расы Pgt21, а второе пришло от неизвестного родителя, причём без следов рекомбинации. Значит, два дикариона срослись гифами и обменялись целыми ядрами — соматическая гибридизация. Считалось, что без барбариса (полового хозяина) ржавчина меняется только мутациями; оказалось, что обмен ядрами между дикарионами мгновенно даёт новые сочетания геномов прямо на поле, без мейоза.
Задание 13
Как устроены ядра в спорах гломеромицетов и что показали геномы 2016 года?
Разбор
Гифы гломеромицетов без перегородок, а крупные споры содержат сотни и тысячи ядер. Половой процесс не наблюдали никогда. Геномы изолятов Rhizophagus irregularis показали, что одни содержат ядра одного генотипа (гомокарионы), а другие — ядра двух генотипов, различающиеся по участку, похожему на локус типа спаривания дикарий (дикарионоподобные изоляты). Это указывает на скрытый половой процесс и особый вариант гетерокариона, переносимого в спору целиком; позже нашли следы рекомбинации между ядрами.
Задание 14
Назовите три фактора, от которых, по современной теории, зависит выгодность гаплоидной или диплоидной фазы. Что показали опыты на дрожжах?
Разбор
Прикрытие вредных мутаций (выгодно диплоидам, особенно при высоком темпе мутаций, но мутации накапливаются); скорость приспособления (полезные рецессивные мутации сразу видны отбору у гаплоидов — выгодно в больших популяциях); экономия ресурсов (гаплоидные клетки меньше, им нужно меньше азота и фосфора — выгодно при недостатке пищи). Зейл (2003): в больших популяциях гаплоидные дрожжи приспосабливались быстрее диплоидных, в малых — одинаково. Герстейн и Отто (2006): гаплоидные и тетраплоидные линии за 1800 поколений сами становились диплоидными.
Задание 15 (олимпиадное)
Гаплоидный геном гриба составляет 40 млн пар нуклеотидов. Сколько пар нуклеотидов ДНК содержит: а) гаплоидная клетка в G1; б) клетка дикариона в G2; в) молодая базидия сразу после кариогамии; г) базидия перед первым делением мейоза; д) одна базидиоспора? Можно ли по количеству ДНК отличить гаплоидную клетку в G2 от дикариотической в G1?
Разбор
а) 1C = 40 млн. б) Два ядра, каждое после репликации 2C: 4C = 160 млн. в) Одно ядро 2C = 80 млн (два гаплоидных ядра в G1 слились). г) После премейотической S-фазы 4C = 160 млн. д) 1C = 40 млн. Гаплоидная клетка в G2 и дикариотическая в G1 содержат одинаково — 2C = 80 млн; различить их можно только по числу ядер (одно или два), например окраской ядер, но не по общему количеству ДНК.
Задание 16 (олимпиадное)
Частота рецессивного летального аллеля в популяции гриба равна 0,02. Какая доля особей погибает из-за этого аллеля, если гриб живёт гаплоидом? Если он живёт диплоидом или дикарионом, а пары ядер составляются случайно? Во сколько раз различаются потери? Что произойдёт с частотой аллеля в каждой популяции через много поколений, если темп мутаций 10⁻⁶?
Разбор
Гаплоид: гибнет каждая особь с аллелем — доля q = 0,02 (2 %). Диплоид или дикарион: гибнут только гомозиготы — q² = 0,0004 (0,04 %); потери в 0,02 / 0,0004 = 50 раз меньше. Равновесие отбора и мутаций: у гаплоида q ≈ μ = 10⁻⁶ (аллель удаляется сразу); у диплоида для летального рецессива q² ≈ μ, q ≈ √10⁻⁶ = 10⁻³ — в тысячу раз выше. Диплоид платит меньше в каждом поколении, но несёт в популяции гораздо больший груз прикрытых мутаций.
Литература
- de Bary A. Vergleichende Morphologie und Biologie der Pilze, Mycetozoen und Bacterien. Leipzig: W. Engelmann, 1884.
- Ainsworth G. C. Introduction to the History of Mycology. Cambridge: Cambridge University Press, 1976.
- Blakeslee A. F. Sexual reproduction in the Mucorineae // Proceedings of the American Academy of Arts and Sciences. 1904. Vol. 40. P. 205–319.
- Buller A. H. R. Researches on Fungi. Vol. IV. London: Longmans, Green and Co., 1931.
- Emerson R. An experimental study of the life cycles and taxonomy of Allomyces // Lloydia. 1941. Vol. 4. P. 77–144.
- Pontecorvo G. The parasexual cycle in fungi // Annual Review of Microbiology. 1956. Vol. 10. P. 393–400.
- Ullrich R. C., Anderson J. B. Sex and diploidy in Armillaria mellea // Experimental Mycology. 1978. Vol. 2. P. 119–129.
- Zeyl C., Vanderford T., Carter M. An evolutionary advantage of haploidy in large yeast populations // Science. 2003. Vol. 299. P. 555–558.
- Gerstein A. C., Chun H.-J. E., Grant A., Otto S. P. Genomic convergence toward diploidy in Saccharomyces cerevisiae // PLoS Genetics. 2006. Vol. 2. e145.
- Ropars J., Toro K. S., Noel J. et al. Evidence for the sexual origin of heterokaryosis in arbuscular mycorrhizal fungi // Nature Microbiology. 2016. Vol. 1. Art. 16033.
- Li F., Upadhyaya N. M., Sperschneider J. et al. Emergence of the Ug99 lineage of the wheat stem rust pathogen through somatic hybridisation // Nature Communications. 2019. Vol. 10. Art. 5068.
- Webster J., Weber R. W. S. Introduction to Fungi. 3rd ed. Cambridge: Cambridge University Press, 2007.
- Alexopoulos C. J., Mims C. W., Blackwell M. Introductory Mycology. 4th ed. New York: John Wiley & Sons, 1996.
- Deacon J. W. Fungal Biology. 4th ed. Malden: Blackwell Publishing, 2006.
- Evert R. F., Eichhorn S. E. Raven Biology of Plants. 8th ed. New York: W. H. Freeman, 2013.
- Mable B. K., Otto S. P. The evolution of life cycles with haploid and diploid phases // BioEssays. 1998. Vol. 20. P. 453–462.
- Гарибова Л. В., Лекомцева С. Н. Основы микологии: морфология и систематика грибов и грибоподобных организмов. М.: Товарищество научных изданий КМК, 2005.
- Przetakiewicz J. The viability of winter sporangia of Synchytrium endobioticum (Schilb.) Perc. from Poland // American Journal of Potato Research. 2015. Vol. 92. P. 704–708.
- Perkins D. D. Neurospora: the organism behind the molecular revolution // Genetics. 1992. Vol. 130. P. 687–701.
- Mix A. J. A monograph of the genus Taphrina // University of Kansas Science Bulletin. 1949. Vol. 33. P. 3–167.
- Herskowitz I. Life cycle of the budding yeast Saccharomyces cerevisiae // Microbiological Reviews. 1988. Vol. 52. P. 536–553.
- Egel R. (ed.) The Molecular Biology of Schizosaccharomyces pombe. Berlin: Springer, 2004.
- Libkind D., Hittinger C. T., Valério E. et al. Microbe domestication and the identification of the wild genetic stock of lager-brewing yeast // Proceedings of the National Academy of Sciences USA. 2011. Vol. 108. P. 14539–14544.
- Raper J. R. Genetics of Sexuality in Higher Fungi. New York: Ronald Press, 1966.
- Casselton L. A., Olesnicky N. S. Molecular genetics of mating recognition in basidiomycete fungi // Microbiology and Molecular Biology Reviews. 1998. Vol. 62. P. 55–70.
- Heitman J., Sun S., James T. Y. Evolution of fungal sexual reproduction // Mycologia. 2013. Vol. 105. P. 1–27.
- Sonnenberg A. S. M., Baars J. J. P., Gao W., Visser R. G. F. Developments in breeding of Agaricus bisporus var. bisporus: progress made and technical and legal hurdles to take // Applied Microbiology and Biotechnology. 2017. Vol. 101. P. 1819–1829.
- Ferguson B. A., Dreisbach T. A., Parks C. G., Filip G. M., Schmitt C. L. Coarse-scale population structure of pathogenic Armillaria species in a mixed-conifer forest in the Blue Mountains of northeast Oregon // Canadian Journal of Forest Research. 2003. Vol. 33. P. 612–623.
- Brefort T., Doehlemann G., Mendoza-Mendoza A. et al. Ustilago maydis as a pathogen // Annual Review of Phytopathology. 2009. Vol. 47. P. 423–445.
- Smith S. E., Read D. J. Mycorrhizal Symbiosis. 3rd ed. London: Academic Press, 2008.
- Bennett R. J., Johnson A. D. Completion of a parasexual cycle in Candida albicans by induced chromosome loss in tetraploid strains // EMBO Journal. 2003. Vol. 22. P. 2505–2515.
- Ni M., Feretzaki M., Sun S., Wang X., Heitman J. Sex in fungi // Annual Review of Genetics. 2011. Vol. 45. P. 405–430.
- Kohli Y., Kohn L. M. Random association among alleles in clonal populations of Sclerotinia sclerotiorum // Fungal Genetics and Biology. 1998. Vol. 23. P. 139–149.
- Gerstein A. C., Fu M. S., Mukaremera L. et al. Polyploid titan cells produce haploid and aneuploid progeny to promote stress adaptation // mBio. 2015. Vol. 6. e01340-15.
- Fisher M. C., Henk D. A., Briggs C. J. et al. Emerging fungal threats to animal, plant and ecosystem health // Nature. 2012. Vol. 484. P. 186–194.
- Otto S. P. The evolutionary enigma of sex // American Naturalist. 2009. Vol. 174. P. S1–S14.
Обсуждение
Загружаем обсуждение…