
Гигантский макроцистис вырастает до 45 метров и за сутки может прибавить около полуметра [1]. Но к растениям он не относится: по родству он ближе к диатомеям и оомицетам, чем к дубу или ели. Сложное многоклеточное тело бурые водоросли приобрели независимо от растений, животных и грибов, и началось это около 450 миллионов лет назад [2][3].
Эта группа интересна не только размерами. Из золы бурых водорослей получили иод, из их бульона — вещество, которое открыло людям вкус умами, а альгинат из их клеточных стенок сегодня есть в мороженом и стоматологических слепках. Их леса кормят целые прибрежные сообщества, а теперь на глазах исчезают там, где море слишком прогрелось.
- 1. Что такое бурые водоросли
- 2. Как их изучали
- 3. Происхождение и система
- 4. Клетка
- 5. Как устроено тело
- 6. Химия: альгинат, маннит, иод и серная кислота
- 7. Три типа жизненного цикла
- 8. Феромоны и половые хромосомы
- 9. Фукус: оплодотворение в прибойной зоне
- 10. Подводные леса
- 11. Каланы, ежи и морская корова
- 12. Почему леса исчезают
- 13. Саргассум: водоросль открытого океана
- 14. Бурые водоросли и человек
- 15. Что рассказали геномы
- 16. Интересные факты
- 17. Частые вопросы
- 18. Что пока не решено
- 19. Что нужно знать для ЕГЭ
- 20. Для олимпиад
- Задания с разбором
- Литература
1. Что такое бурые водоросли
Определение. Бурые водоросли (Phaeophyceae) — класс многоклеточных фотосинтезирующих организмов из отдела охрофитов в группе страменопилов. В их пластидах есть хлорофиллы a и c и бурый пигмент фукоксантин, в клеточной стенке — альгинаты и фукоиданы, а запасные вещества — ламинарин и маннит [4][5].
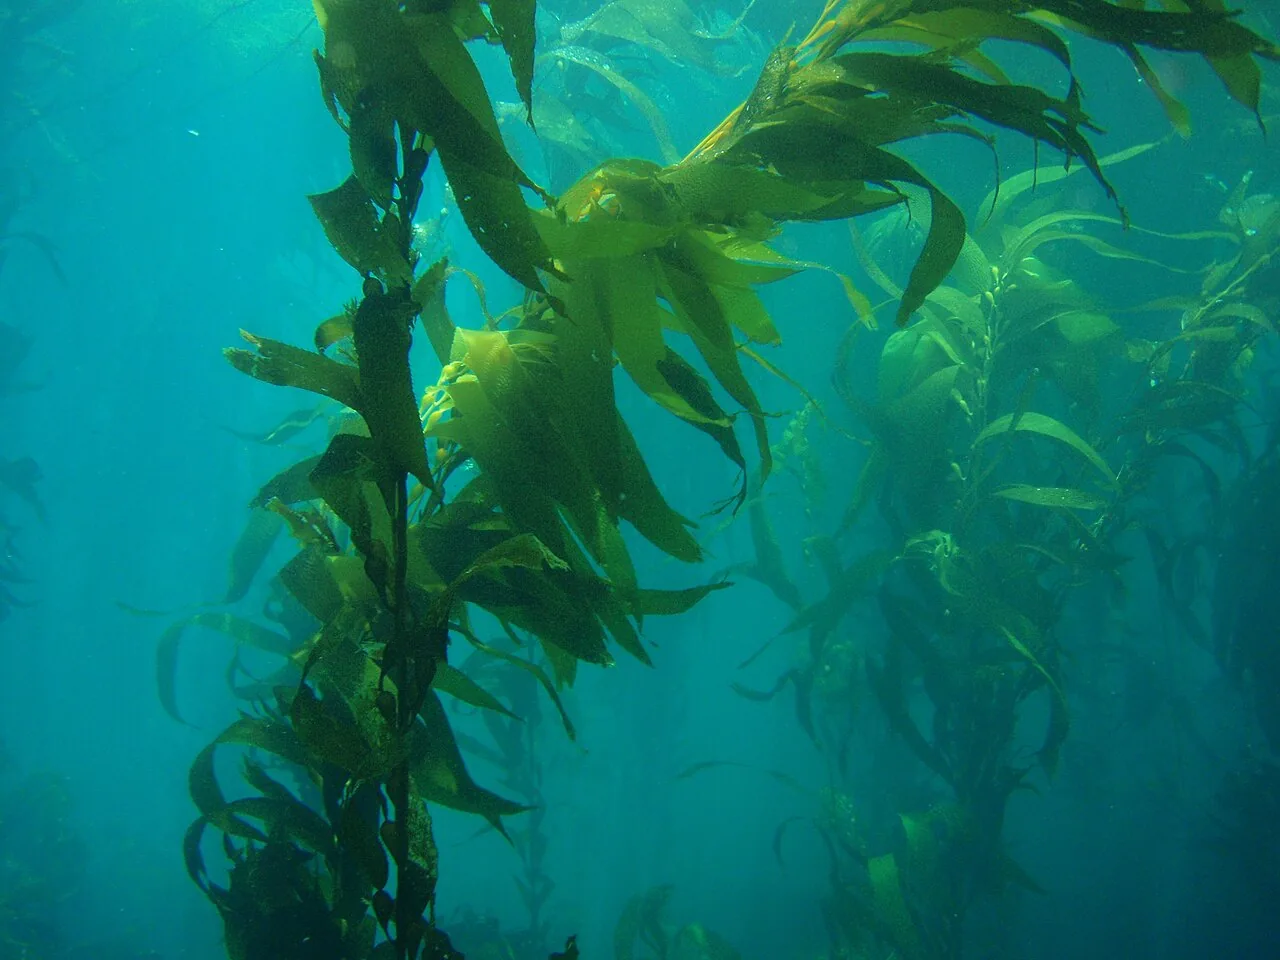
Известно около двух тысяч видов, и почти все они морские [4]. Размеры различаются чрезвычайно: от нитей в несколько сантиметров, как у эктокарпуса, до десятков метров у макроцистиса. Бурые водоросли господствуют на скалистых берегах умеренных и холодных морей [3][6].
Важно не путать эту группу с красными и зелёными водорослями. Слово «водоросли» не называет единую родственную группу: это обобщающее название разных линий фотосинтезирующих организмов. Зелёные водоросли родственны наземным растениям, а бурые относятся совсем к другой ветви эукариот — страменопилам, вместе с диатомеями и оомицетами. Общая для всех страменопилов черта видна у подвижных клеток: передний жгутик несёт жёсткие волоски-мастигонемы, а задний гладкий. Об этой группе подробнее рассказано в статье «Охрофиты».
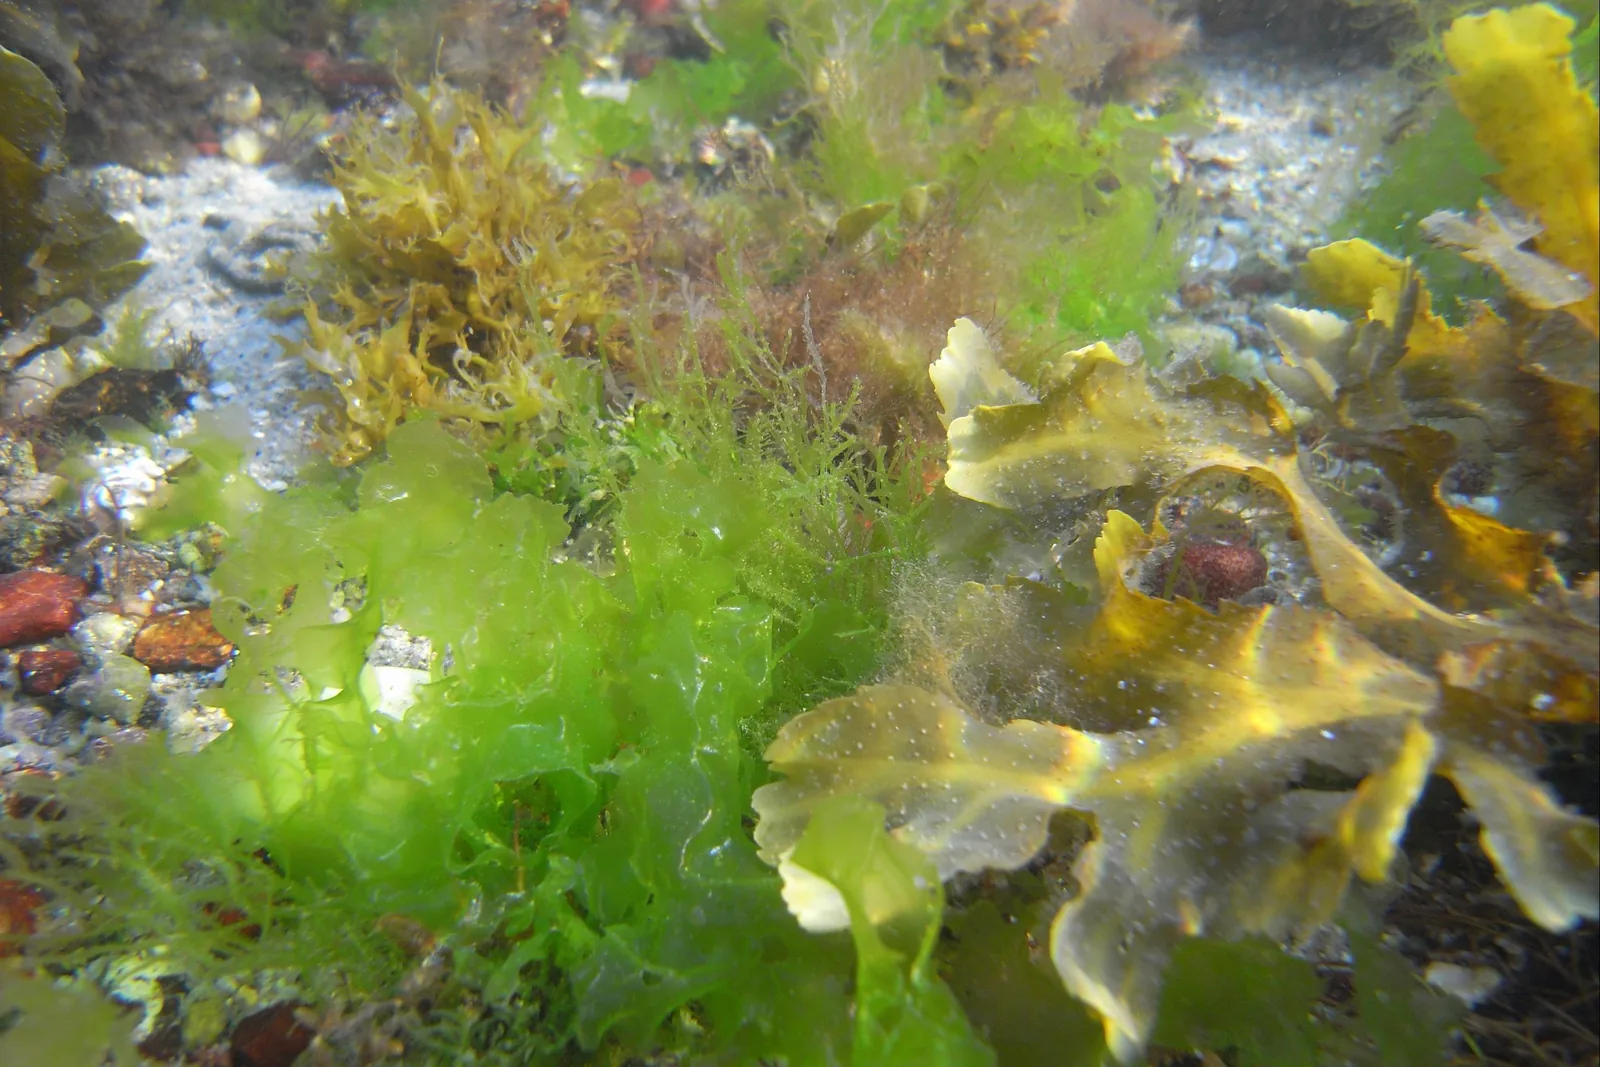
Важно. Морская капуста — не капуста и не растение. Это спорофит бурой водоросли: сахарины или ламинарии. Сходство водорослей с растениями — результат конвергенции: одинаковых задач, а не общего многоклеточного предка [3].
2. Как их изучали
- 1753К. Линней выделяет род Fucus
- 1811Б. Куртуа открывает иод в золе морских водорослей
- 1883Э. Стэнфорд описывает альгин
- 1908К. Икэда выделяет глутамат из бульона на ламинарии
- 1915К. Соважо находит микроскопический гаметофит ламинариевых
- 1966в пузырях бурых водорослей находят угарный газ
- 1971Д. Мюллер расшифровывает половой аттрактант эктокарпуса
- 1974Дж. Эстес и Дж. Палмисано: каланы определяют облик прибрежных сообществ
- 1994опыт на фукусе: клеточная стенка задаёт судьбу клетки
- 2008иодид в ламинарии оказывается неорганическим антиоксидантом
- 2010прочитан геном эктокарпуса
- 2011появляется Великий атлантический пояс саргассума
- 2014морская жара начинает уничтожать леса у Северной Калифорнии
- 2024возраст группы около 450 млн лет; десятки новых геномов; мужской ген HMG
- 2025масса саргассового пояса превышает 30 млн т
- строение и циклы
- вещества
- клетка и гены
- экология
Люди знали бурые водоросли задолго до науки. На стоянке Монте-Верде в Чили, возрастом около 14 тысяч лет, в очагах нашли остатки девяти видов морских водорослей, принесённых с далёких берегов. Их, судя по всему, использовали как пищу и лекарство [7].
Наука начала с описания внешнего вида: Карл Линней описал в 1753 году род Fucus, но долго водоросли различали только по форме. Следующие открытия пришли со стороны химии. В 1811 году французский селитровар Бернар Куртуа, работая с золой морских водорослей, получил неизвестное вещество с фиолетовыми парами. Так был открыт иод. В 1883 году шотландский химик Эдвард Стэнфорд описал альгин — вещество, которое сегодня производят в промышленных масштабах [8]. А в 1908 году в Токио Кикунаэ Икэда выделил из бульона на ламинарии глутамат и связал его с особым вкусом, который назвал умами [9].
Главная биологическая загадка долго оставалась нерешённой. Ламинарии образуют зооспоры, а из зооспор, казалось бы, сразу должны вырастать новые большие слоевища. Камиль Соважо в 1915 году показал, что это не так: из зооспоры вырастает микроскопическое поколение, гаметофит. Так у ламинариевых нашли смену поколений с огромной разницей в размерах.
Вторая половина XX века принесла молекулярные и экологические открытия. В 1971 году Дитер Мюллер с соавторами расшифровал вещество, привлекающее мужские гаметы эктокарпуса к женским [10]. В 1974 году Джеймс Эстес и Джон Палмисано сравнили Алеутские острова с каланами и без них и показали, что от этих зверей зависит облик прибрежных сообществ [11]. В 2010 году вышел геном эктокарпуса [3], а в 2024 году — сравнение десятков геномов бурых водорослей [12].
3. Происхождение и система
Бурые водоросли — единственная группа гетероконтных протистов со сложной многоклеточностью [2]. Их многоклеточность возникла самостоятельно, а не унаследована от других многоклеточных организмов.
Возраст группы долго оценивали очень по-разному. В 2024 году Чхве и соавторы построили древо по геномам пластид 138 видов и по новому прочтению окаменелостей. Настоящая многоклеточность с плазмодесмами и специализированными половыми клетками возникла у бурых водорослей в позднем ордовике, около 450 млн лет назад. Но основные порядки начали быстро расходиться намного позже, в мезозое, на фоне распада Пангеи [2]. Таким образом, по возрасту они примерно сопоставимы с первыми наземными растениями.
- Фукофициды (Fucophycidae) — порядок отделения пяти групп (десмарестиевые, фукусовые, тилоптеридовые, ламинариевые и эктокарповые) не установлен
- Дискоспорангиевые — самые ранние ветви: мелкие нити.
- Ишигеевые — небольшая группа морских водорослей.
- Сфацеляриевые — мелкие ветвящиеся нити с крупной верхушечной клеткой.
- Диктиотовые — Dictyota, Padina: пластинчатые водоросли тёплых морей.
- Десмарестиевые — Desmarestia, у многих видов в клетках серная кислота.
- Фукусовые — фукус, аскофиллум, саргассум: только диплоидное поколение.
- Тилоптеридовые — небольшой порядок, родственный ламинариевым.
- Ламинариевые — ламинария, сахарина, макроцистис, нереоцистис: большие спорофиты.
- Эктокарповые — эктокарпус, модельный объект генетики бурых водорослей.
- Порядок ветвей внутри фукофицид и часть мелких порядков на схеме упрощены.
Современная система разделяет группу примерно на два десятка порядков [13][4]. На схеме показаны основные ветви. Самые ранние, дискоспорангиевые, представлены мелкими нитями. Большинство знакомых форм относится к двум поздним группам: к диктиотофицидам (например, диктиота и падина) и к фукофицидам (фукус, саргассум, ламинария, эктокарпус).
Интересно, что самые заметные формы появились сравнительно недавно. Сложные ламинариевые возникли, по-видимому, в северо-восточной части Тихого океана и быстро разошлись на границе эоцена и олигоцена, около 34 млн лет назад, возможно, в связи с похолоданием. Ветвящиеся формы и пузыри, характерные для современных лесов, возникали у ламинариевых несколько раз за последние 15–20 млн лет [14]. Значит, лес из макроцистиса гораздо моложе самих бурых водорослей.
Менялся и способ размножения. Исходным, по-видимому, было слияние одинаковых гамет (изогамия). Затем появилось оплодотворение крупной яйцеклетки сперматозоидом (оогамия). А в меловом периоде в трёх линиях одновременно изогамия появилась снова; она связана со способностью гамет развиваться без оплодотворения [2].
Основные представители
| Род | Порядок | Где живёт | Чем примечателен |
|---|---|---|---|
| Эктокарпус (Ectocarpus) | эктокарповые | побережья морей | тонкие нити; с 2004 года модельный объект генетики [15] |
| Диктиота (Dictyota) | диктиотовые | тёплые и умеренные моря | плоские ленты, ветвящиеся надвое |
| Падина (Padina) | диктиотовые | тёплые моря | веерообразное слоевище с отложениями извести |
| Фукус (Fucus) | фукусовые | литораль умеренных и холодных морей | нет многоклеточного гаплоидного поколения |
| Аскофиллум (Ascophyllum) | фукусовые | литораль Северной Атлантики | живёт много лет; в зимы со льдом слоевища часто обламываются [16] |
| Саргассум (Sargassum) | фукусовые | тёплые моря, открытый океан | два вида плавают, не прикрепляясь ко дну |
| Ламинария и сахарина (Laminaria, Saccharina) | ламинариевые | холодные и умеренные моря | морская капуста |
| Макроцистис (Macrocystis) | ламинариевые | холодные воды обоих полушарий | до 45 м, пузырь у основания каждой пластины [1] |
| Нереоцистис (Nereocystis) | ламинариевые | север Тихого океана | один крупный пузырь с угарным газом [17] |
| Ундария (Undaria) | ламинариевые | родом из северо-западной части Тихого океана | съедобная вакамэ и опасный вселенец [18] |
| Десмарестия (Desmarestia) | десмарестиевые | холодные моря | серная кислота в клетках [19] |
4. Клетка
Строением клетки бурые водоросли сильно отличаются от растений, хотя и похожи на них внешне.
Пластиды и пигменты
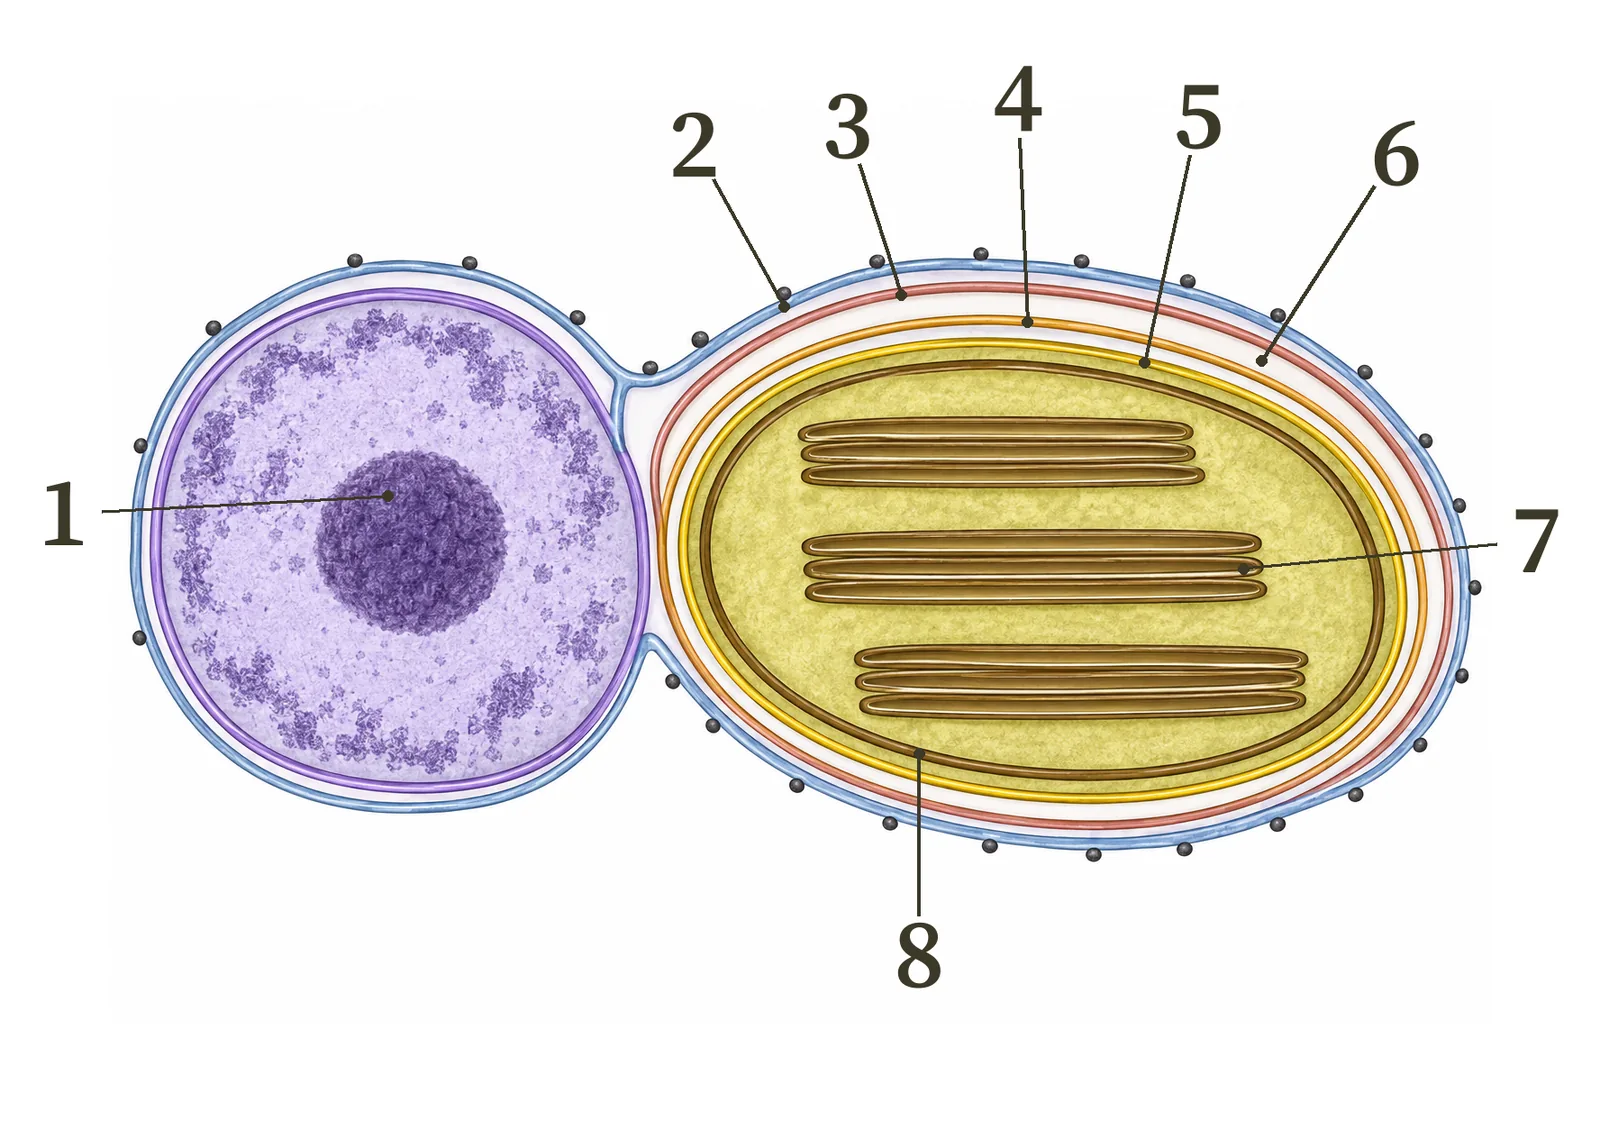
Пластида бурой водоросли досталась ей от красной водоросли при вторичном эндосимбиозе [5]. Поэтому она окружена не двумя, а четырьмя мембранами. Цвет ей придаёт фукоксантин, каротиноид, который поглощает сине-зелёный свет. Он особенно полезен на глубине, куда красный свет почти не доходит. Геном эктокарпуса содержит расширенный набор генов светособирающих белков и синтеза пигментов; это помогает выдерживать резкие изменения освещённости на литорали [3].
Плазмодесмы
Соседние клетки связаны плазмодесмами. Эти цитоплазматические мостики возникли у бурых водорослей независимо от растений и устроены проще: внутри них нет трубки из эндоплазматической сети, которая есть у растений [20]. Именно появление плазмодесм, по данным 2024 года, связано с возникновением настоящей многоклеточности в этой группе [2].
Клеточная стенка
Стенка бурых водорослей состоит из компонентов разного происхождения. Целлюлоза унаследована от красного эндосимбионта. Сульфатированные фуканы синтезируются путём, который сближает водоросли с животными. А последние этапы синтеза альгината, по-видимому, получены горизонтальным переносом от актинобактерий [5]. В геноме эктокарпуса нет известных семейств целлюлаз и экспансинов, поэтому механизм растяжения стенки, вероятно, другой [5]. Фукоиданы и альгинаты составляют трёхмерный матрикс, в котором целлюлоза занимает меньшую часть, чем у растений [21].
Цитоскелет
Растительная клетка выстраивает целлюлозные волокна с помощью микротрубочек, лежащих под мембраной. У вегетативных клеток бурых водорослей таких кортикальных микротрубочек нет, а микротрубочки расходятся от центросом с центриолями, которых у цветковых растений нет. Цитокинез у них тоже идёт иначе: в нём участвует актиновый диск [22]. Это ещё одно напоминание о том, что сходство с растениями только внешнее.
Физоды
В цитоплазме многих бурых водорослей лежат пузырьки — физоды. В них хранятся флоротаннины, о которых речь пойдёт ниже.
5. Как устроено тело
- Примерэктокарпус
- Строениеветвящаяся нить в один ряд клеток
- Ростделятся клетки по всей нити или в отдельных зонах
- Примерфукус, саргассум
- Строениеветвистое слоевище, у многих воздушные пузыри
- Ростверхушечная клетка на концах ветвей
- Примерламинария, макроцистис
- Строениеподошва, стволик, пластина, проводящие клетки
- Ростмеристема между стволиком и пластиной
Тело бурой водоросли называется слоевищем, или талломом. Формально оно не расчленено на органы, но у крупных видов части слоевища похожи на органы растений.
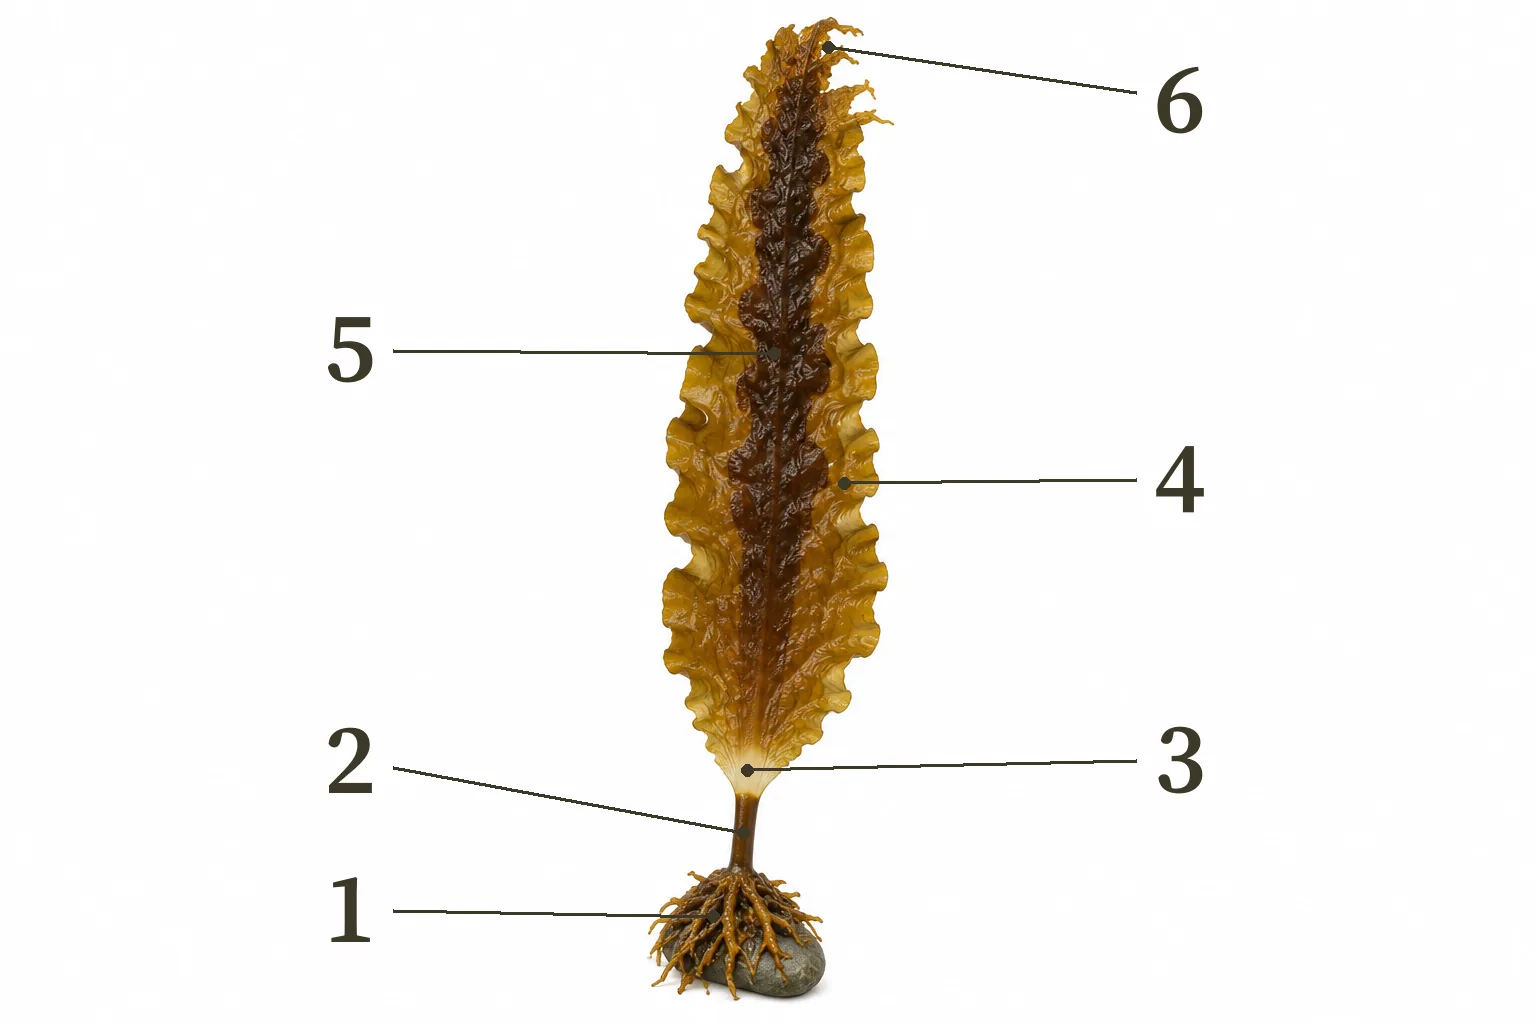
У ламинарии выделяют прикрепляющую подошву (ризоиды), стволик и пластину. Подошва только прикрепляет водоросль к камню: воду и соли всасывает вся поверхность слоевища, поэтому никаких аналогов корня и ксилемы здесь нет. Зона роста, меристема, лежит между стволиком и пластиной. Пластина нарастает снизу, а старая верхушка постепенно изнашивается и отмирает.
Проводящая система
В сердцевине крупных ламинариевых проходят вытянутые клетки с ситовидными пластинками на концах. По ним от освещённых участков к местам роста и в тёмные нижние части движется маннит. По строению это явная параллель с флоэмой растений, хотя возникла она независимо. Измерения на макроцистисе показали, что размеры его проводящих элементов закономерно меняются и соответствуют модели оптимального транспорта, как у растений. Но у других ламинариевых такие соотношения выражены слабо [23]. Значит, оптимальная проводящая система — не обязательное условие для всех крупных водорослей.
Заметим важное отличие: ксилемы у бурых водорослей нет. Она и не нужна: водоросль окружена водой и всасывает её всей поверхностью.
Пузыри
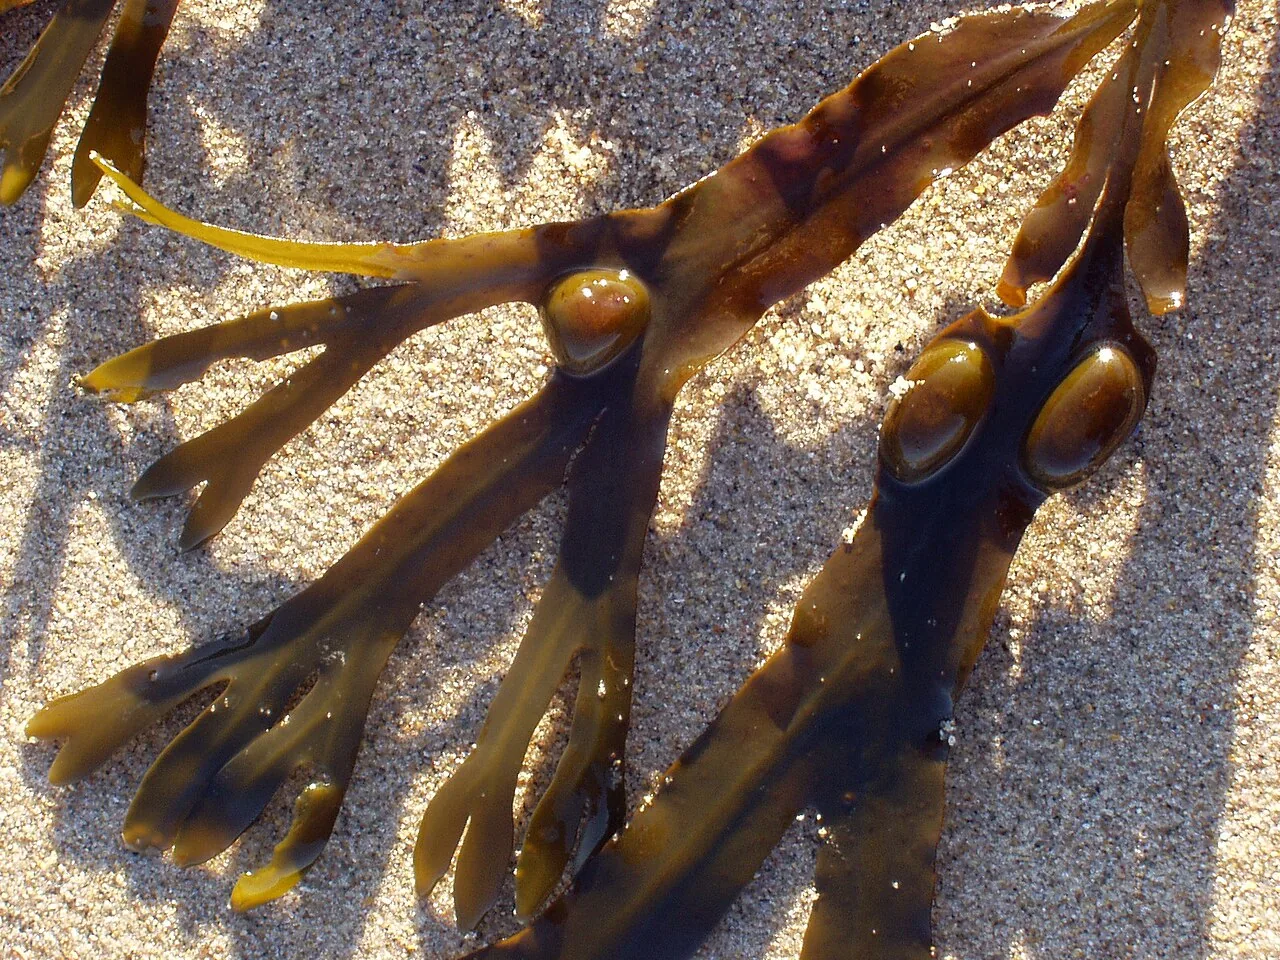
Воздушные пузыри фукуса, саргассума и макроцистиса поднимают пластины к свету. Их содержимое — не просто воздух. В пузырях некоторых бурых водорослей, в том числе нереоцистиса из Тихого океана, нашли угарный газ, причём водоросли сами его образуют [17]. Зачем нужно столь ядовитое для нас вещество, до конца не выяснено.
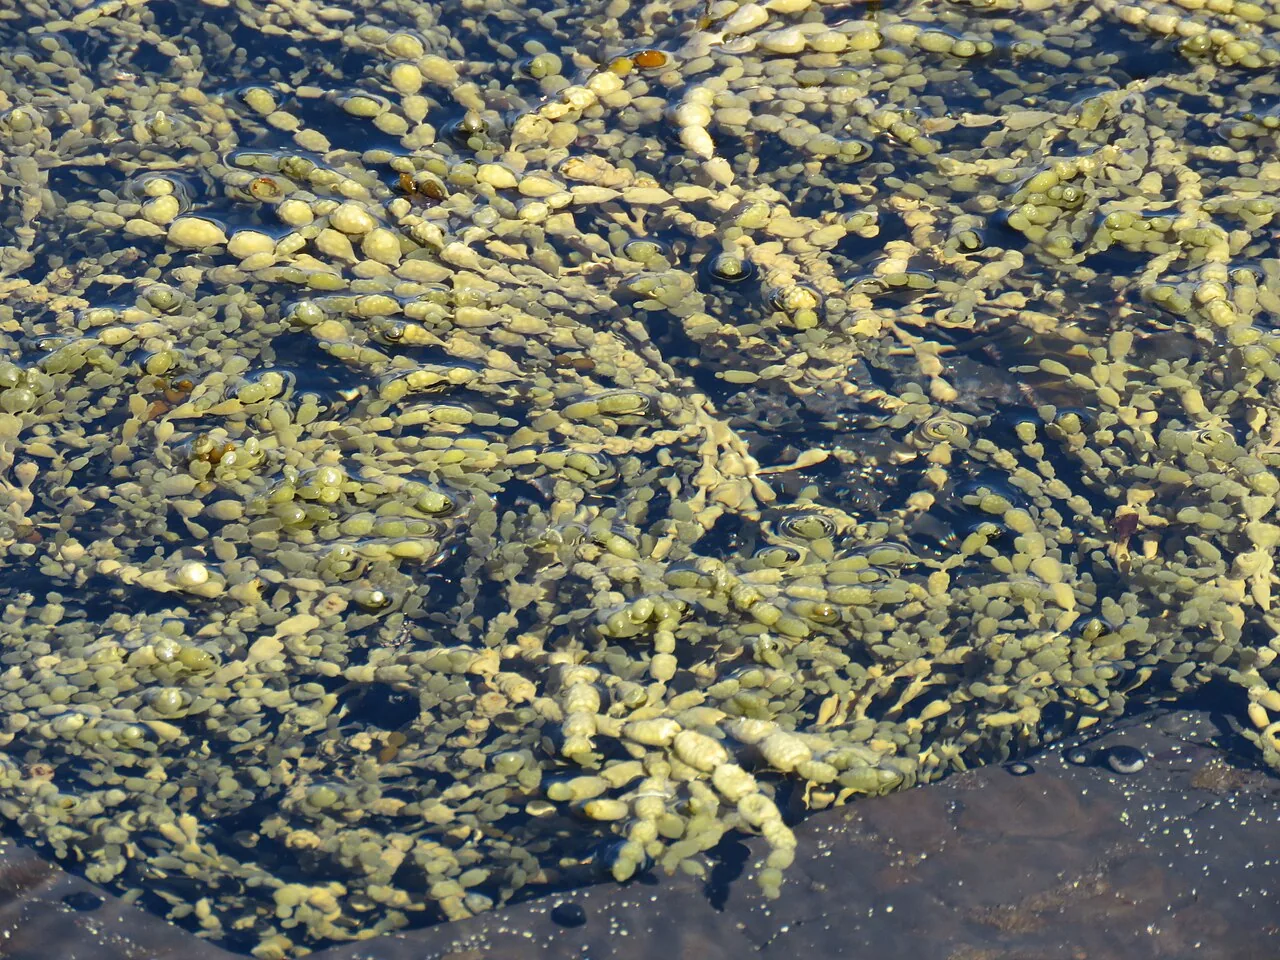
Как выдержать прибой
Волна действует на водоросль с силой, которую можно оценить по формуле F = ½ρCSv², где ρ — плотность среды, C — коэффициент сопротивления, зависящий от формы, S — площадь, v — скорость потока. Плотность воды примерно в 800 раз больше плотности воздуха. Поэтому поток воды действует при той же скорости во столько же раз сильнее ветра.
Удивительно, что водоросли на волноприбойных берегах не обтекаемы и построены из непрочных, податливых материалов. Как они выживают? Марк Денни и Брайан Гейлорд объясняют это гибкостью. Небольшая водоросль изгибается в потоке и сама принимает обтекаемую форму, поэтому сила заметно уменьшается. Крупная движется вместе с водой и какое-то время просто не сопротивляется ей. Но у такой стратегии есть предел: когда длинное слоевище вытягивается до конца, инерция резко дёргает его [24]. Ещё в 1977 году М. Кёль и С. Уэйнрайт показали на нереоцистисе, что стволик этой водоросли растяжим и способен поглощать энергию рывков [25].
Отсюда понятен один неожиданный вывод: размер крупной водоросли может ограничиваться не только светом и пищей, но и механической прочностью. Если слоевище становится слишком большим, волна просто срывает его. Шторма выносят на берег огромные массы таких водорослей. Часть их не погибает, а становится плотом.
6. Химия: альгинат, маннит, иод и серная кислота
Альгиновая кислота
Альгиновая кислота — длинная цепь из остатков двух уроновых кислот: β-D-маннуроновой (M) и α-L-гулуроновой (G). Они отличаются конфигурацией у пятого атома углерода. Цепь сначала строится из остатков M, а затем фермент маннуронан-C5-эпимераза превращает часть их в G прямо в готовом полимере. В геноме сахарины это семейство ферментов заметно расширено [26].
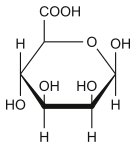 β-D-маннуроновая кислота (M)
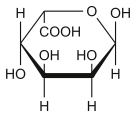 α-L-гулуроновая кислота (G)
Почему это важно? Участки из нескольких остатков G изгибаются так, что между двумя цепями образуются полости нужного размера. Ион Ca²⁺ входит в такую полость и связывает цепи: получается структура, которую назвали «яичной коробкой» [27]. Чем больше в цепи участков G, тем жёстче гель. Поэтому соотношение M и G определяет свойства ткани, и из одного полимера получаются материалы разной жёсткости.
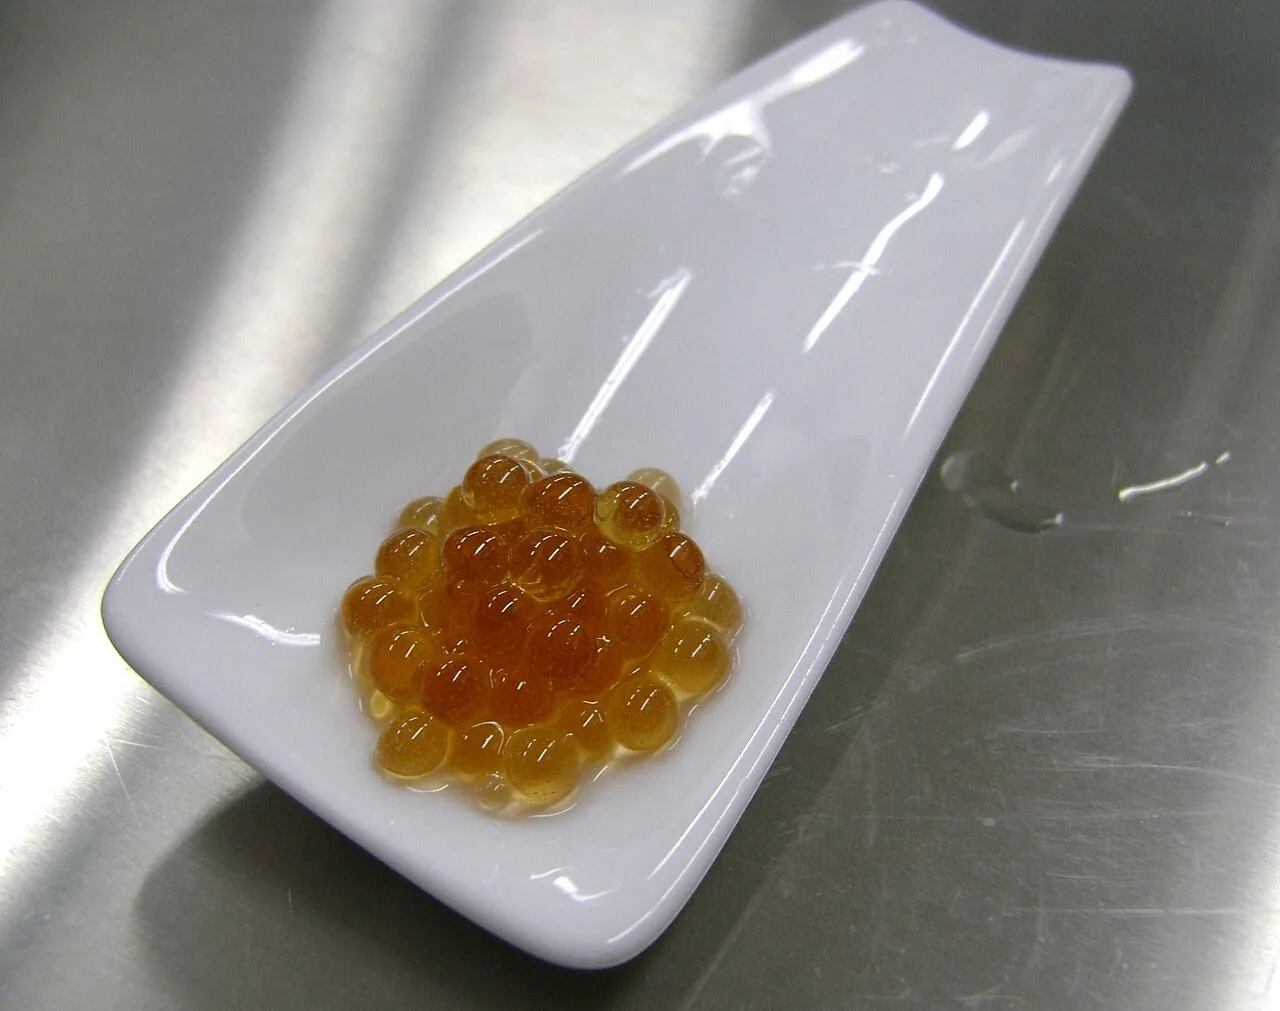
Это свойство легко увидеть на кухне: каплю раствора альгината натрия опускают в раствор соли кальция, и поверхность сразу превращается в гель. Ион Na⁺ несёт один заряд и цепи не сшивает, а ион Ca²⁺ несёт два заряда и связывает две цепи.
Запасные вещества
Бурые водоросли запасают не крахмал, а ламинарин — короткий полимер β-D-глюкозы, и маннит — шестиатомный спирт. Маннит служит также переносимым веществом и помогает поддерживать осмотическое давление в клетке.
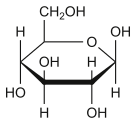 β-D-глюкоза — звено ламинарина и хризоламинарина
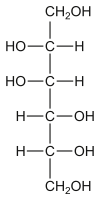 маннит (шестиатомный спирт)
Флоротаннины
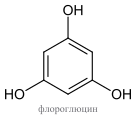
Флоротаннины — полимеры флороглюцина (1,3,5-тригидроксибензола). Путь их синтеза появился именно на раннем этапе истории группы [12]. Эти вещества горчат и вяжут, поглощают ультрафиолет, участвуют в строении стенки и отпугивают растительноядных животных.
Иод
Ламинариевые — самые сильные накопители иода среди живых организмов [28]. Долго было неясно, в какой форме он находится и зачем нужен. В 2008 году Ф. Кюппер и соавторы с помощью рентгеновской абсорбционной спектроскопии показали, что накапливается иодид I⁻. Он легко реагирует с активными формами кислорода, то есть служит неорганическим антиоксидантом. Такой антиоксидант у живых организмов описан впервые.
На этом история не заканчивается. При окислительном стрессе, например на отливе, иодид выходит из клетки. На поверхности слоевища он реагирует с озоном; образуется молекулярный иод I₂, затем оксиды иода, а они дают мельчайшие частицы — будущие центры конденсации облаков [28]. Так процессы внутри водоросли влияют на химию прибрежной атмосферы. В геномах сахарины и эктокарпуса гены обмена галогенов тоже выделяются [26][3].
Серная кислота
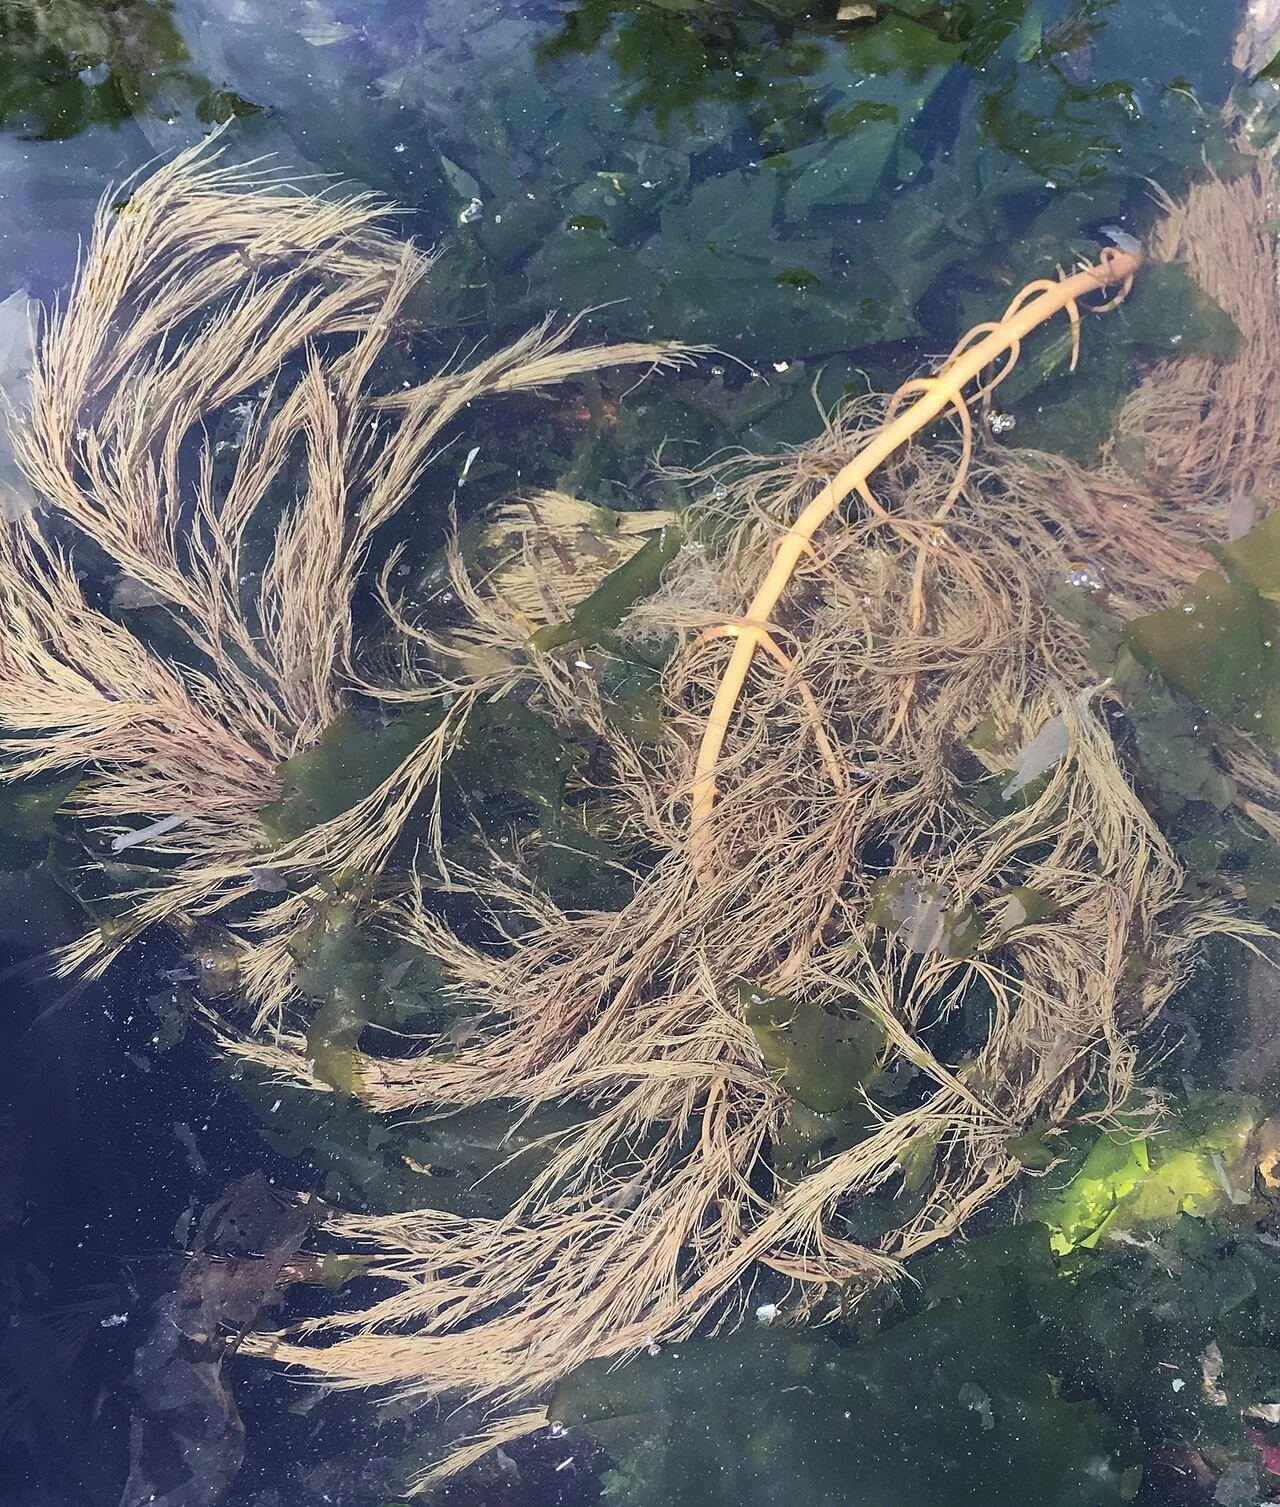
Десмарестия хранит в клетках серную кислоту. Опыты показали, что кислота отпугивает морских ежей [19].
7. Три типа жизненного цикла
Жизненные циклы бурых водорослей удобно сравнивать, отвечая на два вопроса: сколько в цикле многоклеточных поколений и насколько они различаются.
Эктокарпус: два сходных поколения
Из зиготы снова вырастает спорофит.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
Спорофит и гаметофит эктокарпуса — похожие нити. Диплоидный спорофит образует при мейозе гаплоидные зооспоры, из них развивается гаплоидный гаметофит. Он образует гаметы при митозе. Такую смену поколений называют изоморфной. Простота работы с этим организмом сделала его главной генетической моделью бурых водорослей.
Ламинария: большой спорофит и крошечный гаметофит
Из зиготы на гаметофите вырастает новый спорофит.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
То, что продают как морскую капусту, — спорофит. В тёмных пятнах на пластине, сорусах, при мейозе образуются гаплоидные зооспоры. Из них вырастают микроскопические мужские и женские гаметофиты. Мужской образует сперматозоиды, женский — яйцеклетки; оба делают это при митозе. Зигота остаётся на женском гаметофите и прорастает в новый спорофит.
Фукус: только диплоидное поколение
Отдельного гаплоидного поколения нет — как у животных.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
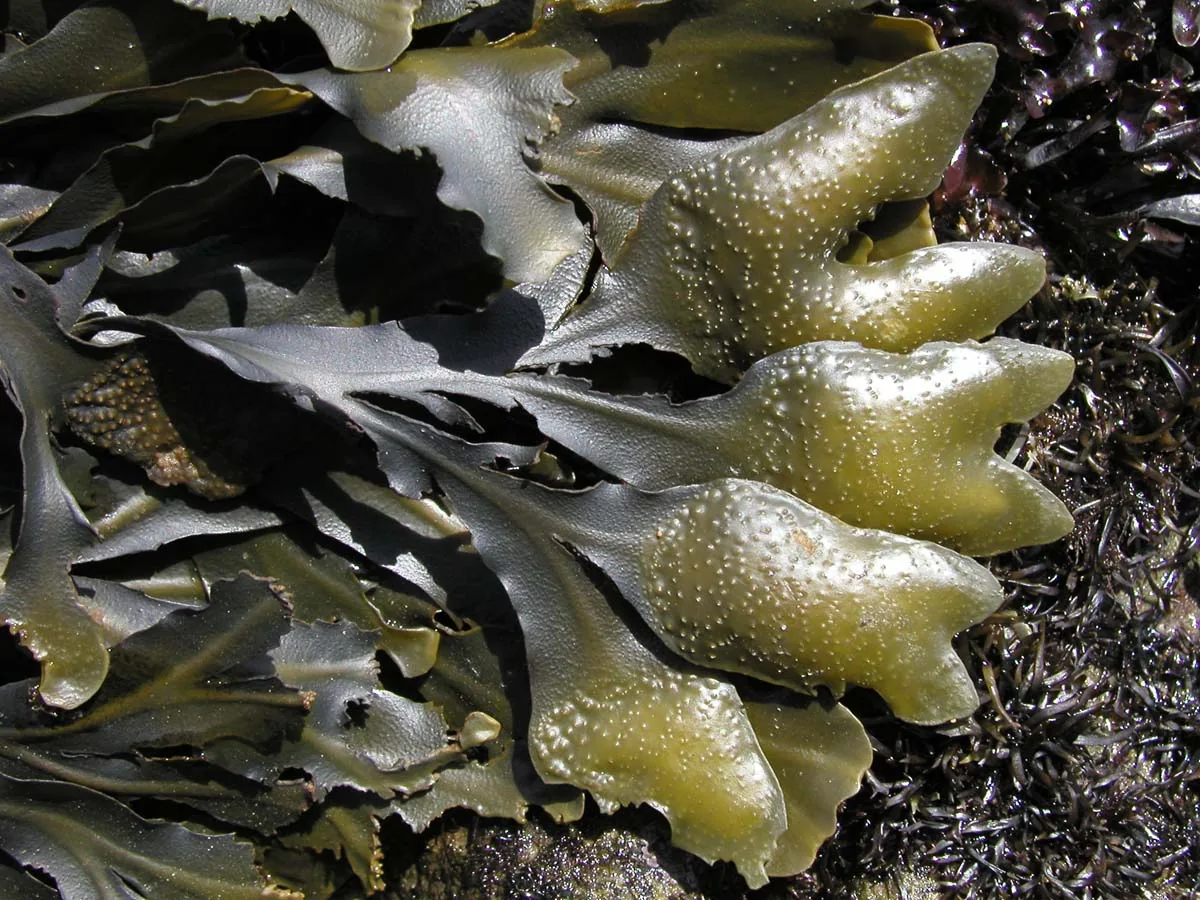
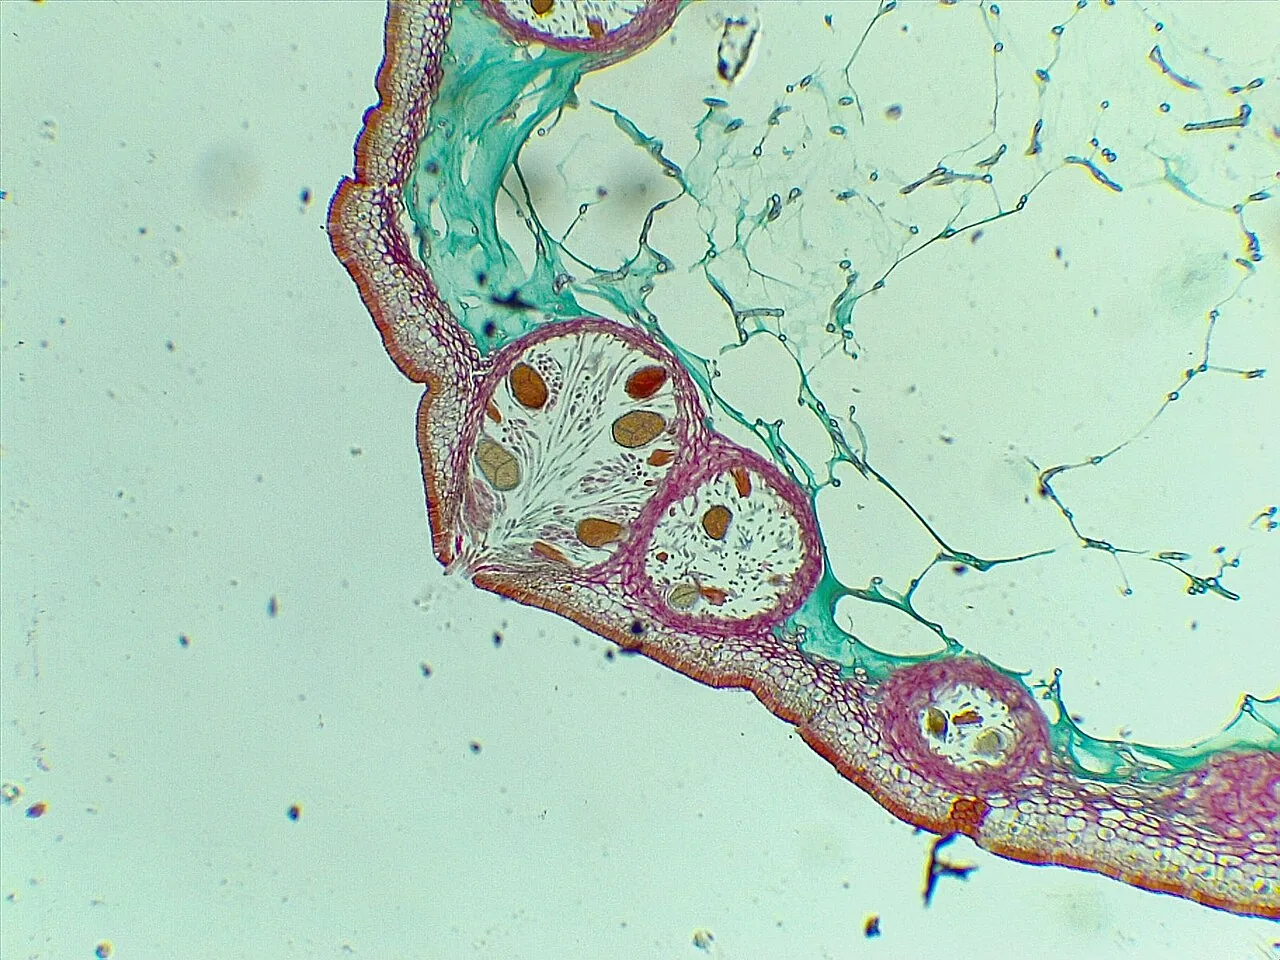
У фукуса многоклеточное поколение одно, и оно диплоидно. В полостях-концептакулах на концах ветвей при мейозе образуются гаметы. Каждый оогоний даёт 8 яйцеклеток, а каждый антеридий — 64 сперматозоида: после мейоза следуют дополнительные митозы. Такой цикл напоминает цикл животных.
Какой ген управляет сменой поколений
Что заставляет одну и ту же последовательность ДНК строить то спорофит, то гаметофит? У эктокарпуса нашли мутанта, у которого спорофит превращается в полноценный гаметофит, и весь цикл сводится к повторению гаметофита. Авторы назвали ген OUROBOROS, по змее, кусающей свой хвост [29]. Затем выяснилось, что такое же действие оказывает второй ген, SAMSARA. Их белки образуют пару и относятся к семейству гомеодоменных факторов TALE. В том же семействе есть регуляторы жизненного цикла у зелёных водорослей и мхов [30]. Отсюда важный вывод: система управления сменой поколений очень древняя, и в разных линиях она независимо стала управлять развитием спорофита [30].
8. Феромоны и половые хромосомы
Как гамета находит гамету
В море гаметы быстро разносятся течением, поэтому у многих бурых водорослей женская гамета выделяет летучее вещество — феромон. Один из первых таких феромонов был расшифрован в 1971 году у эктокарпуса: это цис-производное циклогептадиена с бутеновой цепью [10]. Такие вещества действуют на коротком расстоянии: они создают вокруг гаметы «облако», и мужские гаметы находят женскую, оказавшись поблизости.
Половые хромосомы U и V
У человека пол определяет диплоидный набор XX или XY. У бурых водорослей с выраженным гаметофитом пол проявляется у гаплоидного поколения. Женский гаметофит несёт хромосому U, мужской — V, а у диплоидного спорофита есть обе [31]. Поэтому половина зооспор спорофита ламинарии даёт женские гаметофиты, а половина — мужские.
Система UV у эктокарпуса устроена необычно. Хромосомы U и V расходятся более 70 млн лет, но деградировали слабо, а участок, определяющий пол, сравнительно мал. Вероятно, причина в том, что в гаплоидном поколении гены проверяются отбором напрямую: нет второй копии, которая могла бы скрыть вредную мутацию. V доминирует над U: женский путь развития, по-видимому, включается, если мужских генов нет [31].
В 2024 году был найден и сам мужской ген. Им оказался ген с доменом HMG, а гены с таким доменом определяют мужской пол и у животных: к этому семейству относится ген SRY млекопитающих. Линии бурых водорослей и животных разошлись более миллиарда лет назад, и эти гены были привлечены к определению пола независимо [32]. Это хороший пример того, как эволюция повторно использует один и тот же молекулярный инструмент.
9. Фукус: оплодотворение в прибойной зоне
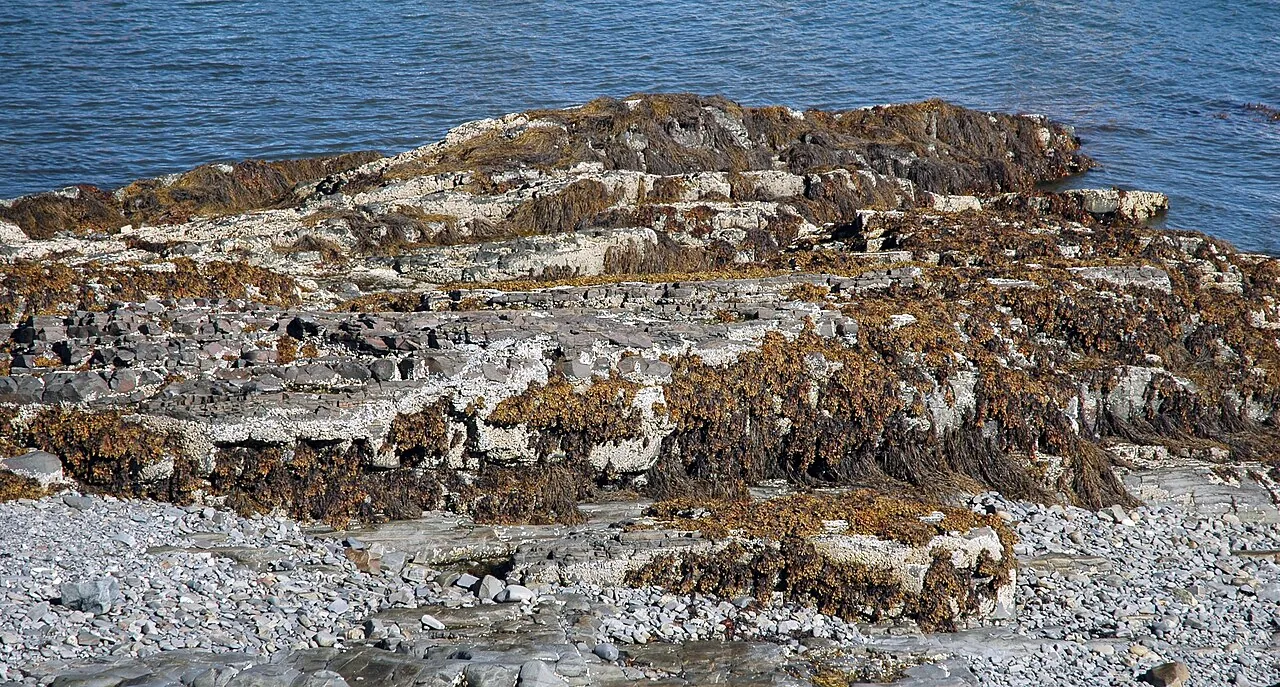
Фукус живёт на литорали — полосе берега, которую море то заливает, то обнажает. Казалось бы, наружное оплодотворение в прибое обречено: гаметы мгновенно разнесутся, и шансов встретиться почти нет. Математические модели предсказывали именно это.
В 1996 году Э. Серран и соавторы проверили это на Fucus vesiculosus в Балтийском море. Оказалось, что водоросль выпускает много гамет только тогда, когда скорость воды не превышает примерно 0,2 м/с, причём в определённое время, вечером, с учётом лунного цикла. В природе почти все яйцеклетки оказывались оплодотворёнными: близко к 100 % [33]. Иными словами, гаметы выходят в воду в затишье, а не в прибой.
Как зигота выбирает направление
Яйцеклетка фукуса оплодотворяется в воде, и зигота развивается вне материнских тканей. Поэтому она давно служит объектом для изучения полярности клетки. Зигота воспринимает направление света и закладывает ось: на одном конце будет ризоид, на другом — слоевище. Первое деление разделяет эти две судьбы.
В 1994 году Ф. Бергер и соавторы провели на двуклеточных зародышах Fucus spiralis красивый опыт с лазером. Если вынуть клетку из её стенки, она теряет определённую судьбу. Если оставить клетку в стенке, она придерживается своего пути. А если привести клетку в контакт со стенкой клетки другого типа, она меняет судьбу [34]. Значит, клеточная стенка участвует в определении судьбы клетки.
Новый вид за 400 лет
Фукусы показали и пример удивительно быстрого видообразования. Балтийское море образовалось всего 8–10 тысяч лет назад, и условия там непростые: вода солоноватая, видов мало. Здесь с помощью микросателлитных маркеров был выявлен новый вид бурой водоросли, Fucus radicans, возникший за последние примерно 400 лет. Он обитает только в Балтике и ближе всего к местному фукусу пузырчатому, но в зоне совместного обитания эти виды заметно изолированы репродуктивно. Помогло, вероятно, частое бесполое размножение обрывками: оно облегчает закрепление новых форм [35]. Обычно столь быстрое видообразование ожидают у гибридных растений или в изолированных озёрах, а не в открытом море.
10. Подводные леса
Леса, образованные ламинариевыми и фукусовыми, — одна из самых широко распространённых морских экосистем, хотя внимания им достаётся мало [36][37].
Продуктивность
В 2022 году А. Пессарродона и соавторы обобщили измерения более чем в 400 точках. Заросли морских водорослей оказались самым обширным прибрежным биомом с крупной фотосинтезирующей растительностью. Больше всего дают леса крупных бурых водорослей. Средняя чистая первичная продукция составила 656 г углерода на квадратный метр в год в сублиторали и 1711 г в литорали. Это до 10 раз больше, чем у прибрежного фитопланктона в умеренных и полярных морях [38].
Ярусы леса
Как и наземный лес, подводный имеет ярусы [39]. Верхний полог образуют пластины у поверхности, например у макроцистиса. Ниже располагаются более низкие ламинарии, затем подлесок из красных водорослей и животные на дне. Лес снижает силу волн и течений, затеняет дно и создаёт убежище для молоди рыб. Обрывки слоевищ уносятся течением и кормят сообщества далеко за пределами леса [6].
Дорога ламинариевых
Леса, возможно, сыграли роль и в истории человечества. Джон Эрландсон и соавторы предположили, что первые люди, заселявшие Америку, могли двигаться на лодках вдоль северотихоокеанского побережья, где заросли давали пищу и спокойную воду. Эту идею назвали гипотезой дороги ламинариевых (kelp highway) [40]. Находки водорослей на стоянке Монте-Верде хорошо с ней согласуются, хотя и не доказывают её [7].
Углерод
Часть органического вещества водорослей тонет и уходит на глубину, где может сохраняться долго. Дорте Краузе-Йенсен и Карлос Дуарте оценили захоронение углерода морскими макроводорослями примерно в 173 млн т в год [41]. Это оценка с большим разбросом: она основана на косвенных расчётах, и надёжность её оспаривается. Поэтому представлять выращивание водорослей как простое решение проблемы климата пока рано.
Сколько стоят леса
В 2023 году А. Эгер и соавторы оценили три вида пользы лесов из шести основных родов: производство рыбы, удаление азота и связывание углерода. Один гектар в год даёт, по их оценке, от 64 400 до 147 100 долларов, а все леса вместе — около 500 млрд долларов в год. Главную долю составляют рыбный промысел и удаление азота. Вклад связывания углерода оказался гораздо скромнее: 4,91 млн т в год [42]. Это почти в 35 раз меньше оценки 2016 года, хотя речь идёт о разных объектах: в одном случае о шести родах, образующих леса, в другом — обо всех макроводорослях. Такое расхождение хорошо показывает, насколько эти расчёты пока приблизительны.
Растворённый углерод и фукоидан
Есть и другой, менее заметный путь. Живые водоросли выделяют в воду растворённые вещества. Опыты 2023 года с фукусом пузырчатым на финском побережье Балтики показали, что он выделяет фукоидан в количестве около 0,3 % биомассы в сутки; на него приходится 44–50 % всего выделяемого растворённого органического углерода. Этот полисахарид плохо разлагается, а для его синтеза не нужны азот и фосфор: он содержит только углерод, кислород, водород и серу. Поэтому такой путь связывания углерода не зависит от роста водоросли [43]. Сколько такого фукоидана действительно сохраняется в океане надолго, ещё предстоит выяснить.
Леса на глубине
Обычно считается, что ламинариевым нужны холодные воды, а в тропиках им на смену приходят коралловые рифы. Но в 2007 году Майкл Грэм и соавторы построили модель, которая предсказала более 23 500 км² неизученных зарослей на глубине 30–200 м в тропиках, где к освещённым слоям поднимается холодная вода. Проверка на Галапагосских островах подтвердила прогноз: там на глубинах больше 60 м нашли обширные заросли Eisenia galapagensis вместе с холодноводной флорой и фауной [44]. Возможно, такие глубинные участки служат убежищами при потеплении поверхностных вод.
11. Каланы, ежи и морская корова
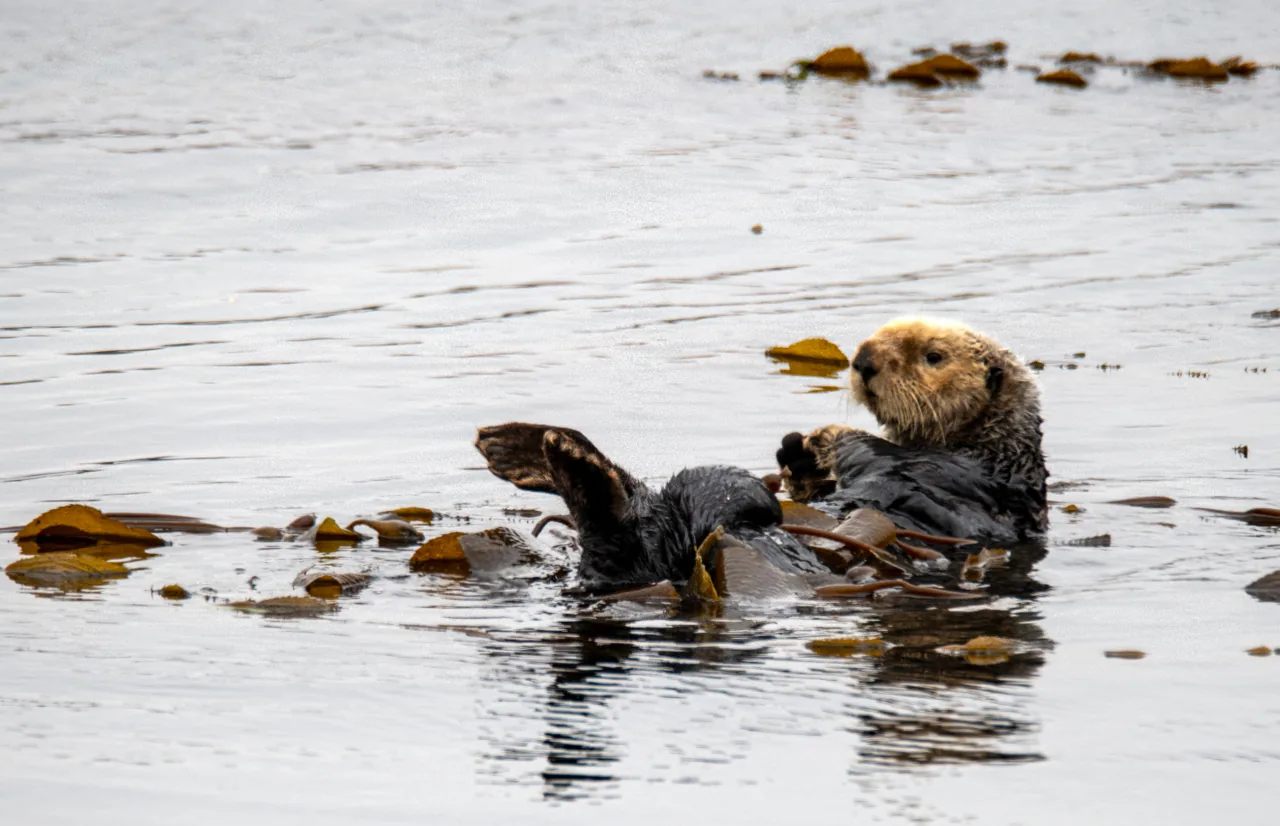
Экологи знают мало таких ярких примеров, как история каланов.
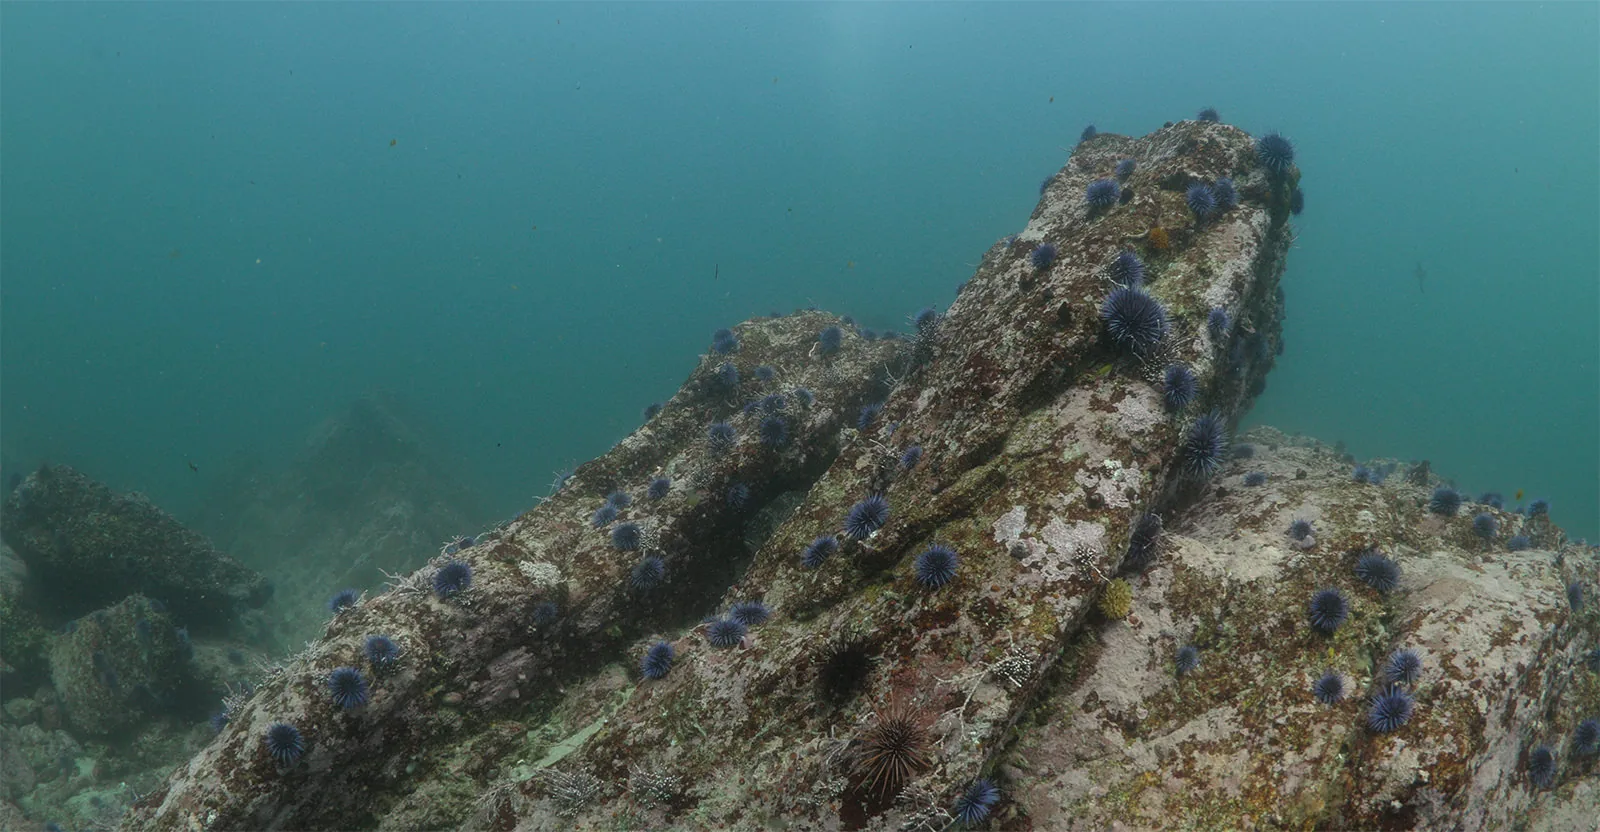
В 1974 году Эстес и Палмисано сравнили острова западной части Алеутской гряды. Там, где жили каланы, морских ежей было мало, а заросли водорослей были густыми. Там, где каланов истребили промысловики, ежи объедали водоросли, и сообщество было совсем другим [11]. Такую цепочку влияний, идущую сверху вниз по пищевой сети, называют трофическим каскадом.
У этой истории есть неожиданное продолжение. Стеллерова морская корова питалась бурыми водорослями и к 1741 году, когда её встретили европейцы у Командорских островов, сохранилась только там. Считается, что охотники истребили её за 27 лет. Но Эстес и соавторы в 2016 году показали, что её исчезновение могло быть неизбежным и без этого. Промысел каланов приводил к росту числа ежей и потере водорослей, поэтому морская корова лишилась бы корма, даже если бы ни одну из них не убили [45]. Значит, вымирание одного вида может быть скрытым следствием исчезновения другого.
Почему пустошь держится так долго
Обратный переход идёт намного труднее прямого. Сравнение разных регионов мира показало, что лес разрушается при одной численности ежей, а чтобы он вернулся, ежей должно стать намного меньше [46]. Это явление называют гистерезисом: система остаётся в новом состоянии, даже когда условие, вызвавшее переход, уже ослабло. На голых камнях ежи выживают долго, потому что питаются всем, что могут найти. Поэтому просто вернуть хищника не всегда достаточно.
12. Почему леса исчезают
Большинство бурых водорослей, образующих леса, холодолюбивы, поэтому потепление океана для них особенно опасно.
Сразу оговоримся: нельзя сказать, что леса гибнут всюду одинаково. Глобальный анализ временных рядов за полвека выявил снижение в 38 % изученных экорегионов, рост в 27 % и отсутствие заметных изменений в 35 %. Средний мировой спад невелик, а различия между регионами очень велики [47]. Причины в разных местах свои. Вот два самых ярких случая.
Австралия. После десятилетий потепления морские волны жары сократили ареал лесов на западном побережье Австралии на 100 км. На их месте распространились дерновинки мелких водорослей и тропические виды, а травоядные рыбы мешали лесу восстановиться [48].
Северная Калифорния. С 2014 по 2019 год заросли нереоцистиса исчезли вдоль 350 км побережья. Этому предшествовало падение численности хищников, питающихся ежами [49]. Главным таким хищником была морская звезда-подсолнух Pycnopodia helianthoides. Болезнь и морская жара привели к падению её численности на 80–100 % на протяжении около 3000 км от Калифорнии до Аляски [50]. Когда хищника не стало, а водоросли ослабли от жары и нехватки питательных веществ, ежи превратили лес в пустошь, и новое состояние оказалось устойчивым [49].
Эти два примера показывают, что не только температура сама по себе разрушает леса, но и то, как она сочетается с потерей связей в сообществе. Леса были устойчивы к колебаниям температуры, пока не совпали во времени несколько неблагоприятных воздействий [49].
Вселенцы
Ундария, съедобная вакамэ, родом из северо-западной части Тихого океана. С 1971 года, когда её впервые отметили за пределами родного ареала, она распространилась во многих регионах мира и считается одним из самых опасных морских вселенцев. Однако её реальное влияние на экосистемы оказалось скромнее, чем думали: в большинстве регионов она, по-видимому, не меняет сообщество коренным образом, а меры борьбы с ней почти не дали результата [18].
13. Саргассум: водоросль открытого океана
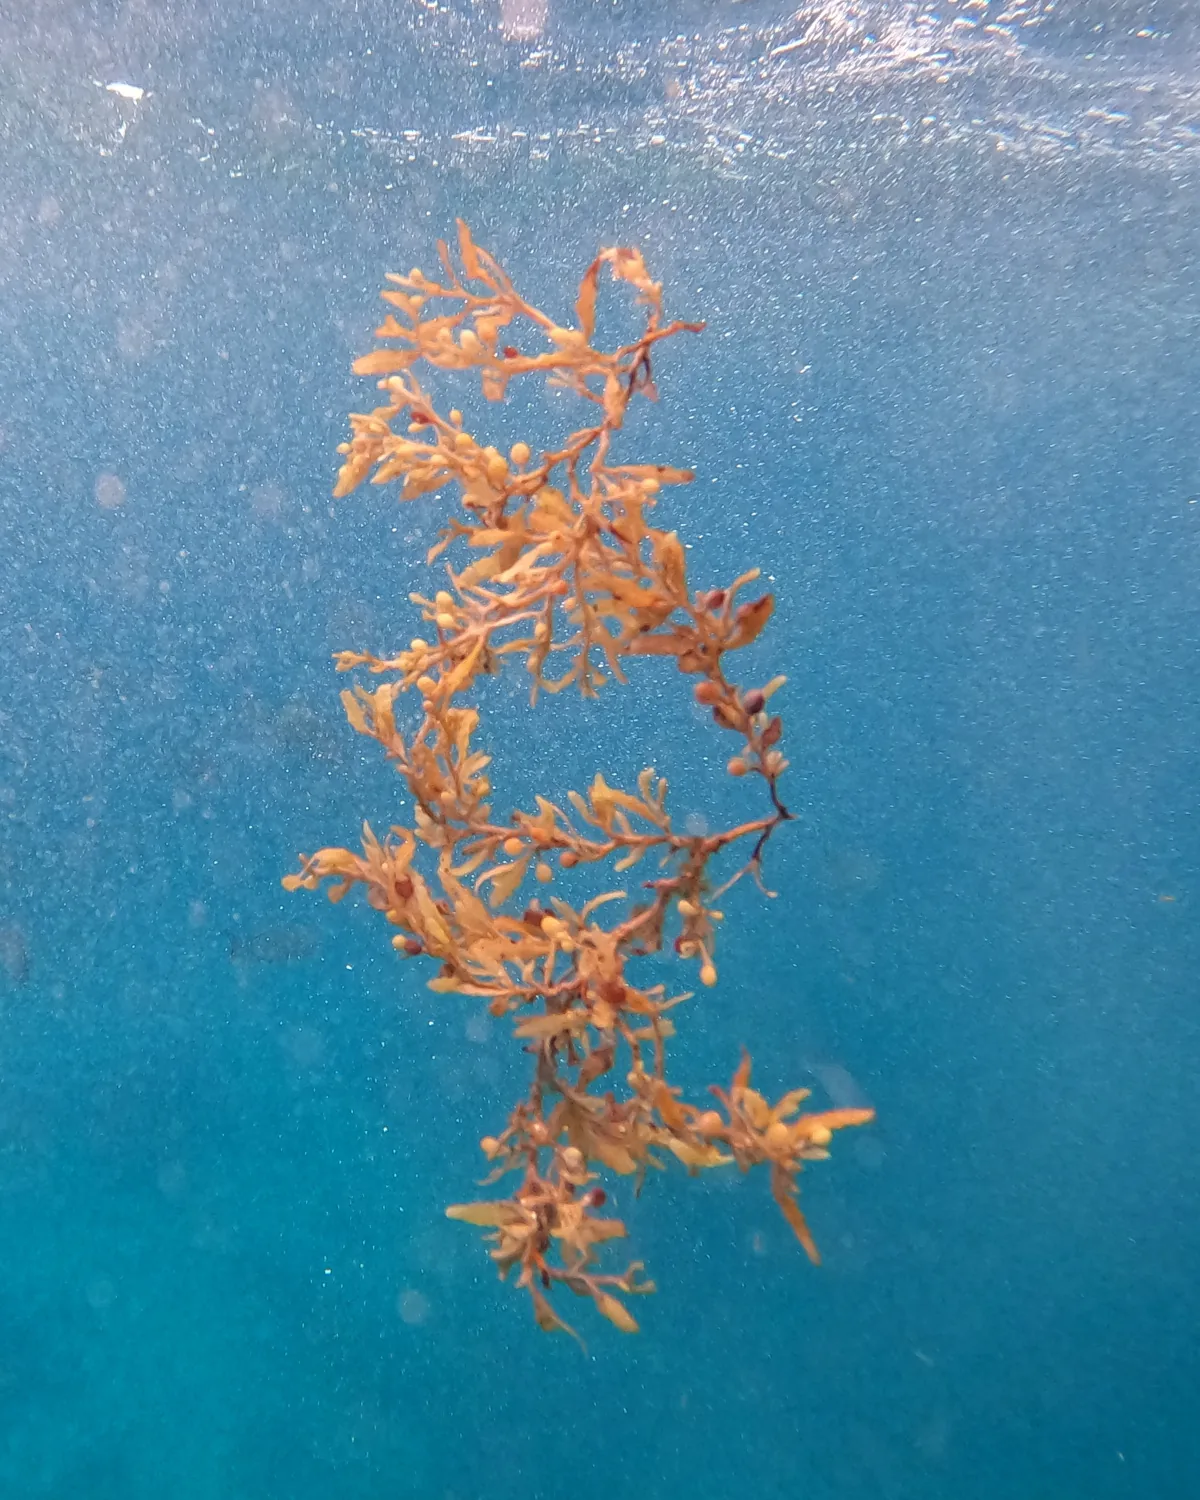
Бурые водоросли обычно прикреплены ко дну, но два вида саргассума живут в открытом океане, плавая на пузырях и размножаясь обрывками. Они скапливаются в Саргассовом море — единственном море без берегов. Само название дали португальские моряки, и эти скопления описаны ещё в записях Колумба.
С 2011 года картина изменилась. На спутниковых снимках появился Великий атлантический пояс саргассума, от Западной Африки до Мексиканского залива. В июне 2018 года он растянулся на 8850 км и содержал более 20 млн т водорослей [51]. В 2025 году его масса превысила 30 млн т [52].
Причина не сводится к одному фактору. Вначале, по-видимому, сыграли роль изменение атмосферной циркуляции и глубокое зимнее перемешивание, поднимающее питательные вещества [52]. Важны также апвеллинг у берегов Западной Африки и сток Амазонки [51]. Работа 2026 года добавила ещё одну причину: организмы, живущие на самих водорослях, и стареющие скопления возвращают питательные вещества в верхний слой, и этот вклад со временем стал главным [52].
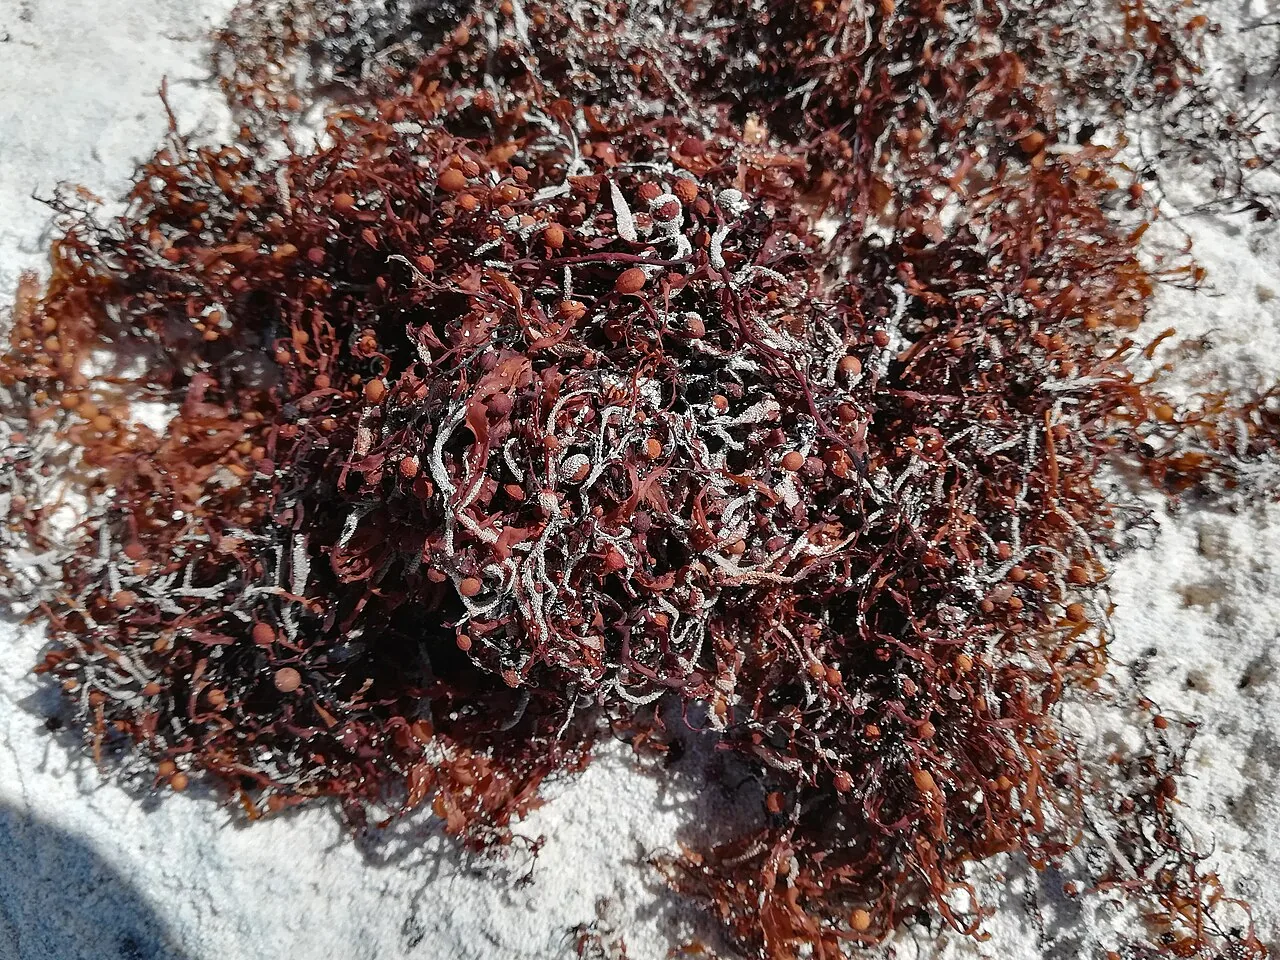
Для людей это настоящая проблема. На пляжах Карибского моря огромные массы гниющих водорослей выделяют сероводород и аммиак, что опасно для здоровья и разрушает туризм [53].
Плоты через океан
Плавают не только саргассумы. Оторванные штормом крупные бурые водоросли с пузырями или с воздухоносной тканью становятся плотами, на которых путешествуют мелкие животные. В работе 2018 года описаны слоевища макроцистиса и дурвиллеи, найденные на берегу Антарктиды. Генетический анализ и модель течений показали, что они прибыли из умеренных широт, преодолев более 20 тысяч км. Значит, океанические штормы способны пересекать барьер, долго считавшийся непроходимым для таких организмов [54].
14. Бурые водоросли и человек
Еда и умами
Сахарина японская (Saccharina japonica) — один из самых экономически важных видов морских водорослей [26]. Бульон комбу стал отправной точкой открытия: Икэда выделил из него глутамат натрия и описал новый вкус умами [9].
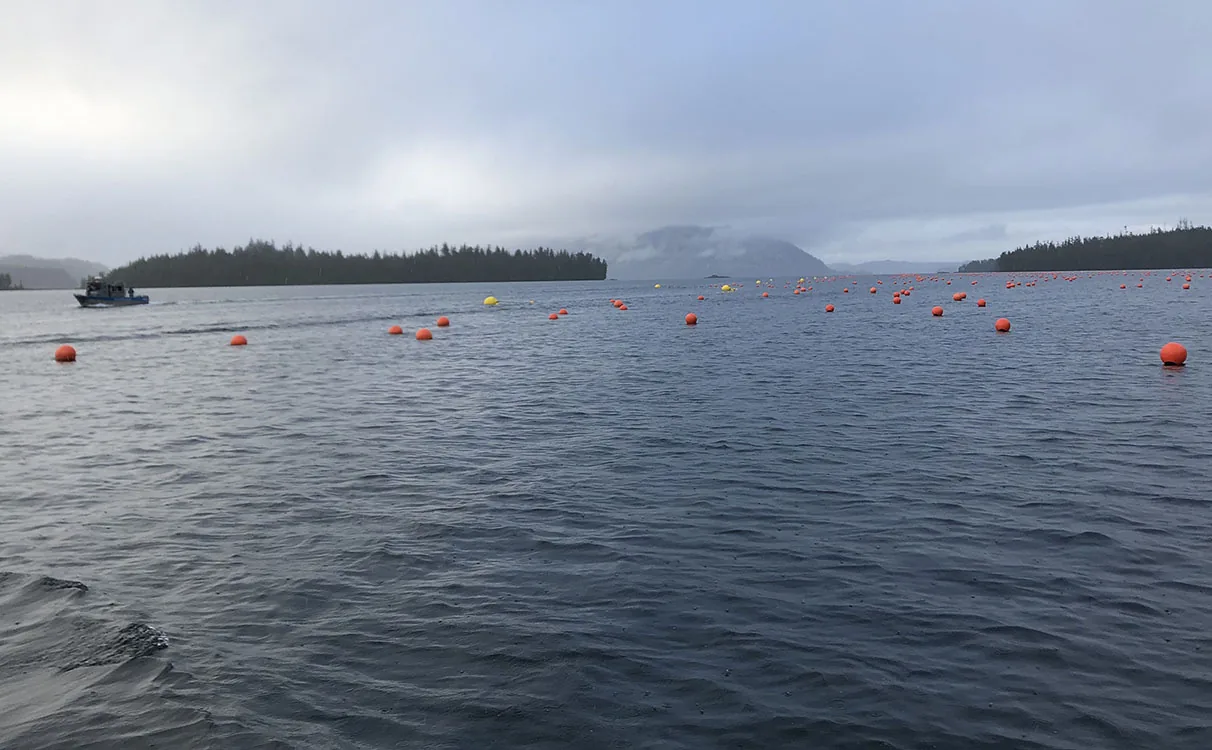
По данным ФАО, в 2022 году в мире добыли и вырастили 37,8 млн т водорослей (не только бурых), и 97 % этого количества приходится на Азию [55].
Альгинаты
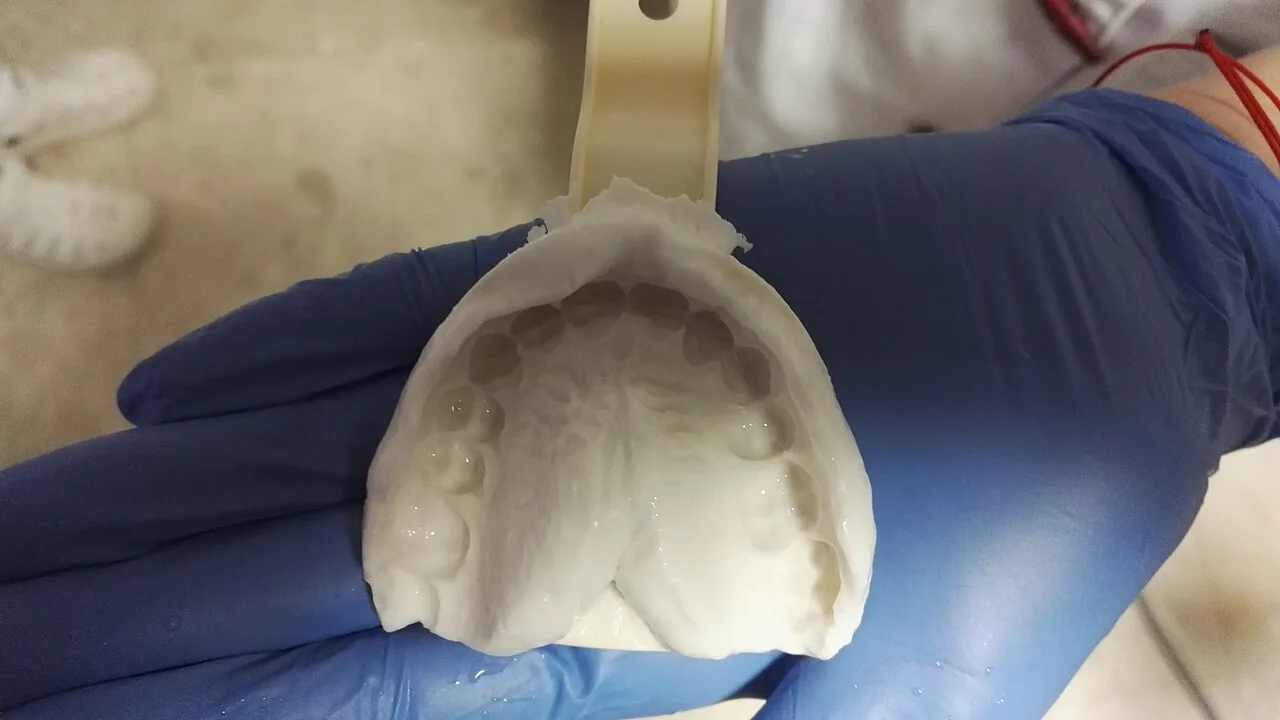
Способность альгината образовывать гели с кальцием используют в пищевой промышленности (мороженое, соусы), при создании раневых повязок и в стоматологии.
Иод: польза и риск
Морская капуста — богатый источник иода, но содержание его очень различается. В исследовании коммерческих образцов оно менялось от 16 мкг/г в красной водоросли нори до 8165 мкг/г в гранулах из Laminaria digitata [56]. Для сравнения: взрослому человеку рекомендуют около 150 мкг иода в сутки. Один грамм таких гранул содержит в 54 раза больше суточной нормы. Поэтому избыток морской капусты может вызвать нарушения работы щитовидной железы: водоросли не заменяют лекарства, а при болезнях щитовидной железы стоит посоветоваться с врачом.
Мышьяк
Бурые водоросли накапливают также мышьяк. Обычно он находится в малотоксичной органической форме. Но в водоросли хидзики (Sargassum fusiforme) велика доля неорганического мышьяка, и это настоящий повод для осторожности [57].
15. Что рассказали геномы
Геном эктокарпуса, опубликованный в 2010 году, содержит 214 млн пар нуклеотидов. В нём нашлось семейство рецепторных киназ. Близкие молекулы независимо возникли при появлении многоклеточности у животных и растений. Так что переход к многоклеточности, по-видимому, связан с развитием сигнальных систем [3]. Геном сахарины крупнее: 537 млн пар нуклеотидов и 18 733 белковых гена [26].
В 2024 году международный проект сравнил десятки геномов от всех основных порядков. Возникновение бурых водорослей сопровождалось резким появлением новых семейств генов, перестройками белковых доменов, многими событиями горизонтального переноса и появлением новых сигнальных молекул. Появились и ключевые пути обмена: синтез внеклеточного матрикса на основе альгината, обмен галогенов и синтез флоротаннинов. Изменения генома оказались тесно связаны с изменениями жизненного цикла и строения жгутиков [12].
Особенно неожиданна роль вирусов. Большие вирусные геномы встраивались в геномы бурых водорослей на протяжении всей их истории и заметно повлияли на состав генов [12]. Уже в геноме эктокарпуса нашли встроенный вирусный геном [3].
16. Интересные факты
- До полуметра в сутки. Макроцистис растёт очень быстро и достигает 45 м [1].
- Иод из золы. Иод открыт в 1811 году при переработке золы морских водорослей.
- Ген мужского пола. У бурых водорослей и животных мужской пол определяют гены одного семейства с доменом HMG, но эта роль возникла у них независимо [32].
- Угарный газ в пузырях. Его нашли в пузырях нереоцистиса [17].
- Серная кислота для защиты. Десмарестия отпугивает ею морских ежей [19].
- Иод и облака. Иодид, выходящий из ламинарий, реагирует с озоном; продукты реакции дают частицы — предшественники центров конденсации облаков [28].
- Гены от бактерий. Важнейший компонент стенки, альгинат, синтезируется с помощью ферментов, гены которых получены от актинобактерий [5].
- Морская корова. Стеллерова корова могла вымереть из-за потери каланов и водорослей, даже если бы люди не убили ни одной из них [45].
- Затишье в прибое. Фукус выпускает основную массу гамет при слабом движении воды и оплодотворяет почти все яйцеклетки [33].
- Пояс длиной 8850 км. Таким был саргассовый пояс в июне 2018 года [51].
17. Частые вопросы
Бурые водоросли — растения?
Нет. По современной системе они относятся к страменопилам, а не к царству растений. В школьных учебниках их обычно рассматривают вместе с растениями: на экзамене важно опираться на формулировки программы, но знать, что родства с растениями нет.
Почему они бурые, если у них есть хлорофилл?
Хлорофилл есть, но бурый пигмент фукоксантин маскирует его зелёный цвет. При нагревании фукоксантин разрушается, поэтому некоторые водоросли зеленеют, если их обдать кипятком.
Морскую капусту можно есть каждый день?
Зависит от количества и от содержания иода, которое очень различается [56]. Здоровому человеку небольшие порции обычно не опасны, но большие дозы дают заведомый избыток иода. При болезнях щитовидной железы надо посоветоваться с врачом.
Как водоросль дышит?
Как и другие аэробные организмы, она поглощает растворённый в воде кислород, а на свету ещё и образует его при фотосинтезе. Газообмен идёт всей поверхностью слоевища.
Есть ли ламинариевые леса в России?
Да. Заросли ламинариевых распространены в холодных морях страны: на Дальнем Востоке, в Баренцевом и Белом морях.
18. Что пока не решено
- Точный возраст группы и её порядков. Оценка около 450 млн лет опирается на новое прочтение окаменелостей, которое могут пересмотреть [2].
- Захоронение углерода. Сколько углерода от лесов уходит надолго, известно плохо [41].
- Причины саргассового пояса. Вклады ветра, стока рек, апвеллинга и самих водорослей продолжают уточнять [51][52].
- Как растёт стенка. Обычных целлюлаз и экспансинов в геноме эктокарпуса нет, поэтому механизм растяжения стенки неизвестен [5].
- Роль встроенных вирусов. Как именно вирусные гены повлияли на эволюцию группы, только начинают изучать [12].
- Можно ли восстановить леса. Там, где установилась ежовая пустошь или дерновинки, восстановление идёт трудно [48][49].
19. Что нужно знать для ЕГЭ
На экзамене бурые водоросли встречаются прежде всего в заданиях о жизненном цикле ламинарии.
- Спорофит ламинарии (2n) — большое слоевище, которое мы видим. Образует споры при мейозе.
- Споры (n) — образуются из клеток спорангиев при мейозе, дают гаметофиты.
- Гаметофит (n) — микроскопический. Образует гаметы при митозе.
- Гаметы (n) — яйцеклетки и сперматозоиды. После оплодотворения образуется зигота (2n).
- Зигота (2n) — из неё при митозе развивается спорофит.
Ловушки. 1) У ламинарии гаметы образуются при митозе, а не при мейозе: при мейозе образуются споры. 2) У фукуса наоборот: гаметы образуются при мейозе, потому что гаплоидного многоклеточного поколения нет. 3) «Водоросли лишены тканей и органов» — формулировка школьного курса: для экзамена её сохраняем, хотя у крупных бурых водорослей есть специализированные клетки и ткани. 4) Ризоиды только прикрепляют, а не всасывают. 5) Запасные вещества — ламинарин и маннит, а не крахмал.
20. Для олимпиад
Сравнение трёх групп водорослей
| Признак | Бурые | Красные | Зелёные |
|---|---|---|---|
| Хлорофиллы | a, c | a | a, b |
| Дополнительные пигменты | фукоксантин | фикобилины | каротиноиды |
| Мембраны пластиды | четыре | две | две |
| Запасное вещество | ламинарин, маннит | багрянковый крахмал | крахмал |
| Полисахариды стенки | альгинаты, фукоиданы, целлюлоза | агар, каррагинаны, целлюлоза | целлюлоза |
| Жгутики | разные: передний с мастигонемами и гладкий задний | нет | обычно одинаковые |
Количественные ориентиры
- Возраст группы: около 450 млн лет [2]; быстрое расхождение сложных ламинариевых — около границы эоцена и олигоцена [14].
- Геномы: эктокарпус — 214 млн п. н. [3]; сахарина — 537 млн п. н., 18 733 гена [26].
- Продукция: 656 и 1711 г C/(м²·год) в сублиторали и литорали [38].
- Саргассовый пояс: 8850 км и более 20 млн т в 2018 году [51]; более 30 млн т в 2025 году [52].
На что обратить внимание
- Конвергенция с растениями. Плазмодесмы, проводящие клетки, меристемы и рецепторные киназы возникли независимо [20][23][3].
- Независимое использование одних молекул. Факторы TALE и белки HMG работают в похожих процессах у очень далёких групп [30][32].
- Мозаичная стенка. Её компоненты получены из разных источников: от эндосимбионта, общего предка с животными и бактерий [5].
Задания с разбором
Задание 1
Какой набор хромосом характерен для спорофита, споры, гаметофита и гаметы ламинарии? В результате какого деления образуются споры и гаметы? Ответ поясните.
Ответ
Спорофит — 2n, спора — n, гаметофит — n, гамета — n. Спорофит развивается из зиготы (2n) при митозе. Споры образуются из клеток спорангиев спорофита при мейозе. Гаметофит развивается из споры при митозе. Гаметы образуются на гаметофите при митозе.
Задание 2
Сравните, при каком делении образуются гаметы у ламинарии и у фукуса. Почему они различаются?
Ответ
У ламинарии гаметы образуются при митозе на гаплоидном гаметофите, поэтому для них не нужно уменьшать набор хромосом. У фукуса многоклеточного гаплоидного поколения нет, диплоидное слоевище образует гаметы при мейозе, поэтому при их образовании набор хромосом уменьшается вдвое.
Задание 3
В оогонии фукуса образуется 8 яйцеклеток, а в антеридии — 64 сперматозоида. Сколько делений митоза следует за мейозом в каждом случае?
Ответ
Мейоз даёт 4 клетки. Для получения 8 яйцеклеток нужно одно деление митоза: 4 · 2 = 8. Для получения 64 сперматозоидов нужно четыре последовательных деления: 4 · 2⁴ = 64.
Задание 4
Спорофит ламинарии несёт половые хромосомы U и V. Какая доля его зооспор даст женские гаметофиты? Могут ли у спорофита быть две хромосомы U? Ответ поясните.
Ответ
Половина. При мейозе хромосомы U и V расходятся, поэтому половина зооспор получит U и даст женские гаметофиты, а другая половина получит V и даст мужские. Обычный спорофит не может нести две U, потому что он возникает при слиянии женской гаметы с U и мужской гаметы с V.
Задание 5
Каплю раствора альгината натрия опустили в раствор хлорида кальция, и образовался шарик геля. Объясните этот опыт. Что произойдёт, если вместо хлорида кальция взять хлорид калия?
Ответ
Ион Ca²⁺ несёт два положительных заряда и связывает карбоксильные группы двух соседних цепей, сшивая их в сетку; образуется гель. Ион K⁺ несёт один заряд и не может связать две цепи таким образом, поэтому плотный гель не образуется.
Задание 6
Какие запасные вещества и пигменты отличают бурые водоросли от зелёных? Какое значение имеет фукоксантин для обитателей глубины?
Ответ
Запасные вещества бурых водорослей — ламинарин и маннит, а зелёных — крахмал. У бурых есть хлорофиллы a и c и фукоксантин, у зелёных — хлорофиллы a и b. Фукоксантин поглощает сине-зелёный свет, который глубже всего проникает в воду, и передаёт энергию хлорофиллу.
Задание 7
На острове полностью истребили каланов. Как, вероятно, изменятся численность морских ежей и состояние водорослевого леса? Приведите цепочку причин и следствий и назовите это явление.
Ответ
Без хищника численность морских ежей растёт. Ежи активно поедают водоросли, лес редеет и может смениться ежовой пустошью. Исчезает убежище рыб и беспозвоночных, падает первичная продукция. Это явление называют трофическим каскадом.
Задание 8
В июне 2018 года саргассовый пояс длиной 8850 км содержал более 20 млн т водорослей. Сколько в среднем водорослей приходилось на 1 км его длины? Почему нельзя считать, что водоросли распределены равномерно?
Ответ
20 000 000 т / 8850 км ≈ 2260 т/км. Это среднее значение. На самом деле течения и ветер собирают водоросли в отдельные полосы и скопления, поэтому в одних местах их намного больше, а в других почти нет.
Задание 9
В образце гранул из ламинарии содержится 8165 мкг иода на 1 г. Рекомендованная суточная норма иода для взрослого — 150 мкг. Во сколько раз 1 г гранул превышает суточную норму? Какой вывод можно сделать?
Ответ
8165 / 150 ≈ 54 раза. Даже небольшая порция таких гранул содержит многократно больше рекомендуемого количества иода, поэтому такие продукты нужно использовать осторожно, особенно при болезнях щитовидной железы.
Задание 10
Макроцистис прирастает примерно на 0,5 м в сутки. За сколько суток при такой скорости он достиг бы длины 45 м? Какие части тела помогают ему удерживать пластины у поверхности и как вещества доставляются к нижним частям?
Ответ
45 / 0,5 = 90 суток. Пластины удерживают воздушные пузыри. Освещённые пластины образуют органические вещества (в основном маннит), которые передвигаются по клеткам с ситовидными пластинками к тёмным нижним частям.
Задание 11 (олимпиадное)
При мутации гена OUROBOROS спорофит эктокарпуса превращается в гаметофит. (а) Что станет с чередованием поколений? (б) Почему такой результат говорит, что ген управляет именно программой развития? (в) Гомологичные гены управляют развитием спорофита у мхов. Как можно объяснить такое сходство у линий, не родственных по многоклеточности?
Ответ
(а) Чередование нарушится: цикл сведётся к повторению гаметофита.
(б) Изменение одного гена переключает всю программу строения и размножения поколения, а не отдельный признак: у мутантов появляются черты и маркерные транскрипты гаметофита.
(в) Факторы TALE управляли жизненным циклом очень давно, ещё до появления сложной многоклеточности. В разных линиях древний механизм был независимо использован для развития спорофита.
Задание 12 (олимпиадное)
Средняя чистая первичная продукция лесов в сублиторали — 656 г C/(м²·год). (а) Сколько углерода образует за год лес площадью 1 км²? (б) Если доля, надолго захороненная на глубине, составляет 10 %, сколько это будет в тоннах? (в) Почему эта оценка не означает, что выращивание водорослей легко решит проблему климата? Приведите не менее двух причин.
Ответ
(а) В 1 км² содержится 10⁶ м²; 656 · 10⁶ г = 656 т углерода в год.
(б) 656 · 0,1 ≈ 66 т.
(в) Доля захоронения известна плохо; выращенные водоросли обычно собирают и потребляют, и углерод быстро возвращается в атмосферу; большая часть органического вещества разлагается в толще воды; создание плантаций само требует затрат энергии и может иметь последствия для прибрежных экосистем.
Задание 13 (олимпиадное)
Волна движется со скоростью 5 м/с и действует на пластину площадью 0,2 м². Примем коэффициент сопротивления жёсткой пластины C = 0,5, плотность воды 1000 кг/м³, плотность воздуха 1,2 кг/м³. (а) Какая сила действует на пластину в воде? (б) Какая сила действовала бы на неё в воздухе при той же скорости? (в) Какой станет сила в воде, если, изгибаясь, пластина уменьшит коэффициент сопротивления в 10 раз?
Ответ
(а) F = ½ · 1000 · 0,5 · 0,2 · 5² = 1250 Н.
(б) F = ½ · 1,2 · 0,5 · 0,2 · 5² = 1,5 Н, то есть примерно в 830 раз меньше.
(в) 1250 / 10 = 125 Н. Значит, гибкость снижает нагрузку в той же степени, в какой снижает коэффициент сопротивления.
Литература
- Graham M. H., Vásquez J. A., Buschmann A. H. Global ecology of the giant kelp Macrocystis: from ecotypes to ecosystems // Oceanography and Marine Biology: An Annual Review. 2007. Vol. 45. P. 39–88.
- Choi S. W., Graf L., Choi J. W. et al. Ordovician origin and subsequent diversification of the brown algae // Current Biology. 2024. Vol. 34. P. 740–754.
- Cock J. M., Sterck L., Rouzé P. et al. The Ectocarpus genome and the independent evolution of multicellularity in brown algae // Nature. 2010. Vol. 465. P. 617–621.
- Bringloe T. T., Starko S., Wade R. M. et al. Phylogeny and evolution of the brown algae // Critical Reviews in Plant Sciences. 2020. Vol. 39. P. 281–321.
- Michel G., Tonon T., Scornet D. et al. The cell wall polysaccharide metabolism of the brown alga Ectocarpus siliculosus. Insights into the evolution of extracellular matrix polysaccharides in Eukaryotes // New Phytologist. 2010. Vol. 188. P. 82–97.
- Smale D. A., Burrows M. T., Moore P. et al. Threats and knowledge gaps for ecosystem services provided by kelp forests: a northeast Atlantic perspective // Ecology and Evolution. 2013. Vol. 3. P. 4016–4038.
- Dillehay T. D., Ramírez C., Pino M. et al. Monte Verde: seaweed, food, medicine, and the peopling of South America // Science. 2008. Vol. 320. P. 784–786.
- Stanford E. C. C. Algin: a new substance obtained from some of the commoner species of marine algae // Scientific American Supplement. 1883. Vol. 16. P. 6323–6324.
- Ikeda K. New seasonings // Chemical Senses. 2002. Vol. 27. P. 847–849.
- Müller D. G., Jaenicke L., Donike M., Akintobi T. Sex attractant in a brown alga: chemical structure // Science. 1971. Vol. 171. P. 815–817.
- Estes J. A., Palmisano J. F. Sea otters: their role in structuring nearshore communities // Science. 1974. Vol. 185. P. 1058–1060.
- Denoeud F., Godfroy O., Cruaud C. et al. Evolutionary genomics of the emergence of brown algae as key components of coastal ecosystems // Cell. 2024. Vol. 187. P. 6943–6965.
- Silberfeld T., Rousseau F., de Reviers B. An updated classification of brown algae (Ochrophyta, Phaeophyceae) // Cryptogamie, Algologie. 2014. Vol. 35. P. 117–156.
- Starko S., Soto Gomez M., Darby H. et al. A comprehensive kelp phylogeny sheds light on the evolution of an ecosystem // Molecular Phylogenetics and Evolution. 2019. Vol. 136. P. 138–150.
- Peters A. F., Marie D., Scornet D. et al. Proposal of Ectocarpus siliculosus (Ectocarpales, Phaeophyceae) as a model organism for brown algal genetics and genomics // Journal of Phycology. 2004. Vol. 40. P. 1079–1088.
- Åberg P. A demographic study of two populations of the seaweed Ascophyllum nodosum // Ecology. 1992. Vol. 73. P. 1473–1487.
- Chapman D. J., Tocher R. D. Occurrence and production of carbon monoxide in some brown algae // Canadian Journal of Botany. 1966. Vol. 44. P. 1438–1442.
- Epstein G., Smale D. A. Undaria pinnatifida: a case study to highlight challenges in marine invasion ecology and management // Ecology and Evolution. 2017. Vol. 7. P. 8624–8642.
- Pelletreau K. N., Muller-Parker G. Sulfuric acid in the phaeophyte alga Desmarestia munda deters feeding by the sea urchin Strongylocentrotus droebachiensis // Marine Biology. 2002. Vol. 141. P. 1–9.
- Terauchi M., Nagasato C., Kajimura N. et al. Ultrastructural study of plasmodesmata in the brown alga Dictyota dichotoma (Dictyotales, Phaeophyceae) // Planta. 2012. Vol. 236. P. 1013–1026.
- Deniaud-Bouët E., Kervarec N., Michel G. et al. Chemical and enzymatic fractionation of cell walls from Fucales: insights into the structure of the extracellular matrix of brown algae // Annals of Botany. 2014. Vol. 114. P. 1203–1216.
- Katsaros C., Karyophyllis D., Galatis B. Cytoskeleton and morphogenesis in brown algae // Annals of Botany. 2006. Vol. 97. P. 679–693.
- Drobnitch S. T., Jensen K. H., Prentice P., Pittermann J. Convergent evolution of vascular optimization in kelp (Laminariales) // Proceedings of the Royal Society B. 2015. Vol. 282. Art. 20151667.
- Denny M., Gaylord B. The mechanics of wave-swept algae // Journal of Experimental Biology. 2002. Vol. 205. P. 1355–1362.
- Koehl M. A. R., Wainwright S. A. Mechanical adaptations of a giant kelp // Limnology and Oceanography. 1977. Vol. 22. P. 1067–1071.
- Ye N., Zhang X., Miao M. et al. Saccharina genomes provide novel insight into kelp biology // Nature Communications. 2015. Vol. 6. Art. 6986.
- Grant G. T., Morris E. R., Rees D. A. et al. Biological interactions between polysaccharides and divalent cations: the egg-box model // FEBS Letters. 1973. Vol. 32. P. 195–198.
- Küpper F. C., Carpenter L. J., McFiggans G. B. et al. Iodide accumulation provides kelp with an inorganic antioxidant impacting atmospheric chemistry // PNAS. 2008. Vol. 105. P. 6954–6958.
- Coelho S. M., Godfroy O., Arun A. et al. OUROBOROS is a master regulator of the gametophyte to sporophyte life cycle transition in the brown alga Ectocarpus // PNAS. 2011. Vol. 108. P. 11518–11523.
- Arun A., Coelho S. M., Peters A. F. et al. Convergent recruitment of TALE homeodomain life cycle regulators to direct sporophyte development in land plants and brown algae // eLife. 2019. Vol. 8. Art. e43101.
- Ahmed S., Cock J. M., Pessia E. et al. A haploid system of sex determination in the brown alga Ectocarpus sp. // Current Biology. 2014. Vol. 24. P. 1945–1957.
- Luthringer R., Raphalen M., Guerra C. et al. Repeated co-option of HMG-box genes for sex determination in brown algae and animals // Science. 2024. Vol. 383. Art. eadk5466.
- Serrão E. A., Pearson G., Kautsky L., Brawley S. H. Successful external fertilization in turbulent environments // PNAS. 1996. Vol. 93. P. 5286–5290.
- Berger F., Taylor A., Brownlee C. Cell fate determination by the cell wall in early Fucus development // Science. 1994. Vol. 263. P. 1421–1423.
- Pereyra R. T., Bergström L., Kautsky L., Johannesson K. Rapid speciation in a newly opened postglacial marine environment, the Baltic Sea // BMC Evolutionary Biology. 2009. Vol. 9. Art. 70.
- Eger A. M., Filbee-Dexter K., Fraschetti S., Vergés A. Where kelp forests meet people: an analysis of the spatial overlap among human population, global economies, and environmental threats to kelp forest ecosystems // Annals of Botany. 2026. Art. mcag226.
- Steneck R. S., Graham M. H., Bourque B. J. et al. Kelp forest ecosystems: biodiversity, stability, resilience and future // Environmental Conservation. 2002. Vol. 29. P. 436–459.
- Pessarrodona A., Assis J., Filbee-Dexter K. et al. Global seaweed productivity // Science Advances. 2022. Vol. 8. Art. eabn2465.
- Dayton P. K. Ecology of kelp communities // Annual Review of Ecology and Systematics. 1985. Vol. 16. P. 215–245.
- Erlandson J. M., Graham M. H., Bourque B. J. et al. The kelp highway hypothesis: marine ecology, the coastal migration theory, and the peopling of the Americas // Journal of Island and Coastal Archaeology. 2007. Vol. 2. P. 161–174.
- Krause-Jensen D., Duarte C. M. Substantial role of macroalgae in marine carbon sequestration // Nature Geoscience. 2016. Vol. 9. P. 737–742.
- Eger A. M., Marzinelli E. M., Beas-Luna R. et al. The value of ecosystem services in global marine kelp forests // Nature Communications. 2023. Vol. 14. Art. 1894.
- Buck-Wiese H., Andskog M. A., Nguyen N. P. et al. Fucoid brown algae inject fucoidan carbon into the ocean // PNAS. 2023. Vol. 120. Art. e2210561119.
- Graham M. H., Kinlan B. P., Druehl L. D. et al. Deep-water kelp refugia as potential hotspots of tropical marine diversity and productivity // PNAS. 2007. Vol. 104. P. 16576–16580.
- Estes J. A., Burdin A., Doak D. F. Sea otters, kelp forests, and the extinction of Steller’s sea cow // PNAS. 2016. Vol. 113. P. 880–885.
- Ling S. D., Scheibling R. E., Rassweiler A. et al. Global regime shift dynamics of catastrophic sea urchin overgrazing // Philosophical Transactions of the Royal Society B. 2015. Vol. 370. Art. 20130269.
- Krumhansl K. A., Okamoto D. K., Rassweiler A. et al. Global patterns of kelp forest change over the past half-century // PNAS. 2016. Vol. 113. P. 13785–13790.
- Wernberg T., Bennett S., Babcock R. C. et al. Climate-driven regime shift of a temperate marine ecosystem // Science. 2016. Vol. 353. P. 169–172.
- McPherson M. L., Finger D. J. I., Houskeeper H. F. et al. Large-scale shift in the structure of a kelp forest ecosystem co-occurs with an epizootic and marine heatwave // Communications Biology. 2021. Vol. 4. Art. 298.
- Harvell C. D., Montecino-Latorre D., Caldwell J. M. et al. Disease epidemic and a marine heat wave are associated with the continental-scale collapse of a pivotal predator (Pycnopodia helianthoides) // Science Advances. 2019. Vol. 5. Art. eaau7042.
- Wang M., Hu C., Barnes B. B. et al. The great Atlantic Sargassum belt // Science. 2019. Vol. 365. P. 83–87.
- Zhou X., Novi L., Hay M. E. et al. Changing drivers of the Great Atlantic Sargassum Belt from physical forcing to ecological control // Nature Communications. 2026. Vol. 17. Art. 4600.
- Resiere D., Valentino R., Nevière R. et al. Sargassum seaweed on Caribbean islands: an international public health concern // The Lancet. 2018. Vol. 392. P. 2691.
- Fraser C. I., Morrison A. K., Hogg A. M. et al. Antarctica’s ecological isolation will be broken by storm-driven dispersal and warming // Nature Climate Change. 2018. Vol. 8. P. 704–708.
- FAO. The State of World Fisheries and Aquaculture 2024. Rome: FAO, 2024.
- Teas J., Pino S., Critchley A., Braverman L. E. Variability of iodine content in common commercially available edible seaweeds // Thyroid. 2004. Vol. 14. P. 836–841.
- Rose M., Lewis J., Langford N. et al. Arsenic in seaweed — forms, concentration and dietary exposure // Food and Chemical Toxicology. 2007. Vol. 45. P. 1263–1267.
Обсуждение
Загружаем обсуждение…