
Морская капуста из банки, бурая слизь на камнях в весенней реке, золотистый налёт на стенках аквариума, сорок пять метров подводного леса у берегов Калифорнии и каждая пятая молекула кислорода, которой мы дышим, — всё это работа одной группы организмов. Её называют охрофитами. Это ламинарии и фукусы, диатомеи в стеклянных панцирях, золотистые и желтозелёные водоросли и ещё десяток малоизвестных классов.
В статье понятно и по порядку: кто такие охрофиты и чем они отличаются от зелёных растений и красных водорослей; как устроена их клетка — два разных жгутика и пластида в четырёх мембранах; какие у них пигменты и запасные вещества; современная система классов; подробно о диатомеях, бурых водорослях и малых классах; жизненные циклы ламинарии, фукуса и диатомеи; откуда у охрофитов пластида; значение для планеты и человека. Вещества бурых водорослей показаны структурными формулами. В конце — формулировки для ЕГЭ, раздел для олимпиад и 15 заданий с разбором.
- Кто такие охрофиты
- Место в системе живого
- Клетка охрофита
- Пигменты и запасные вещества
- Современная система
- Диатомовые водоросли
- Почему диатомеи мельчают
- Болидофиты и пармалеи
- Бурые водоросли: строение
- Химия бурых водорослей
- Жизненные циклы бурых водорослей
- Подводные леса и плавучие острова
- Золотистые водоросли
- Желтозелёные водоросли
- Другие классы
- Откуда у охрофитов пластида
- Значение для планеты и человека
- История изучения
- Удивительные факты
- Что пока не решено
- Что писать на ЕГЭ
- Для олимпиад
- Задания с разбором
Кто такие охрофиты
Определение. Охрофиты (Ochrophyta, от греч. ochros — бледно-жёлтый, phyton — растение) — фотосинтезирующие страменопилы: эукариоты с пластидой красного происхождения, окружённой четырьмя мембранами, хлорофиллами a и c и, у большинства, бурым пигментом фукоксантином. Их подвижные клетки несут два разных жгутика: передний с трёхчастными волосками и задний гладкий.
Слово «водоросли» не обозначает родственную группу: так называют все организмы, которые фотосинтезируют с выделением кислорода, живут в основном в воде и не имеют органов наземных растений. Зелёные, красные и бурые водоросли выглядят похоже, но относятся к разным ветвям древа эукариот, далеко разошедшимся друг от друга. Охрофиты — одна из таких ветвей.
Разнообразие охрофитов огромно. Самые мелкие — клетки пелагофитов и болидофитов размером 1–2 мкм, меньше многих бактерий. Самые крупные — бурые водоросли макроцистисы длиной до 45 м. Между ними — одноклеточные диатомеи в кремнёвых панцирях (описано больше 12 тысяч видов, а существует, по оценкам, в несколько раз больше), колонии золотистых водорослей, огромные многоядерные клетки вошерии и ботридия, около двух тысяч видов бурых водорослей. Всего охрофитов описано больше 20 тысяч видов.
В школьных учебниках бурые, диатомовые, золотистые и желтозелёные водоросли рассматривают как отделы растений. По современным данным они растениями не являются: их общий предок с зелёными растениями — одноклеточный эукариот, живший больше миллиарда лет назад, а пластиду охрофиты получили отдельно, «съев» красную водоросль.
Место в системе живого
Охрофиты входят в страменопилы (Stramenopiles), или гетероконтов, — одну из крупнейших ветвей эукариот. К страменопилам относятся и бесцветные организмы: оомицеты (среди них фитофтора — возбудитель фитофтороза картофеля), опалины из кишечника лягушек, бластоцисты из кишечника человека, морские хищные жгутиконосцы. Страменопилы вместе с альвеолятами (инфузориями, динофлагеллятами, споровиками) и ризариями образуют супергруппу SAR, или TSAR (подробно — в статьях о страменопилах и о супергруппе TSAR).
Ближайшие бесцветные родственники охрофитов — солнечники-актинофриды: их общий предок с охрофитами был хищником, способным заглатывать водоросли. Охрофиты — единственная ветвь страменопил, в которой есть фотосинтез.
Клетка охрофита
Возьмём подвижную клетку охрофита — например, зооспору бурой водоросли или золотистую водоросль охромонас — и разберём её устройство.
- Два разных жгутика — отсюда старое название «разножгутиковые» (гетероконты). Передний, более длинный жгутик покрыт двумя рядами жёстких трёхчастных волосков — мастигонем (от лат. stramen — солома: волоски похожи на соломинки, отсюда и название «страменопилы»). Волоски обращают направление тяги: волна, бегущая по жгутику от основания к концу, не толкает, а тянет клетку вперёд. Задний жгутик гладкий и часто служит рулём.
- Глазок (стигма) — скопление оранжевых капель каротиноидов в пластиде, напротив вздутия у основания заднего жгутика. В вздутии находится светочувствительный белок; глазок затеняет его с одной стороны, и клетка определяет, где источник света.
- Пластида — обычно жёлто-бурая или золотистая. Она окружена четырьмя мембранами: двумя собственными, мембраной, оставшейся от съеденной водоросли, и наружной мембраной эндоплазматической сети клетки-хозяина. Наружная мембрана часто переходит прямо в оболочку ядра и несёт рибосомы. Внутри тилакоиды лежат стопками по три, а у края пластиды проходит опоясывающая ламелла — тилакоид, огибающий все остальные. Часто есть пиреноид — белковое тельце, где сосредоточен фермент рубиско (подробнее — в статье о пиреноиде).
- Запасной углевод откладывается не в пластиде, как крахмал у зелёных водорослей, а в цитоплазме, в особой вакуоли.
- Покровы самые разные: голая клетка (рафидофиты), кремнёвые чешуйки (синура), домик-лорика (динобрион), кремнёвый панцирь (диатомеи), клеточная стенка из целлюлозы и альгиновых кислот (бурые водоросли).
Белки пластиды в основном закодированы в ядре и синтезируются в цитоплазме. Чтобы попасть в пластиду, такой белок должен пройти четыре мембраны. Поэтому у него два «адреса»: сигнальный пептид, по которому белок попадает в эндоплазматическую сеть (а значит, сквозь наружную мембрану), и транзитный пептид, который ведёт его через две внутренние мембраны, — тот же, что у растений (подробно — в статье об импорте белков в хлоропласт).
Пигменты и запасные вещества
Цвет охрофитов определяют пигменты пластиды. Хлорофилл a есть у всех фотосинтезирующих организмов, а вместо хлорофилла b зелёных растений у охрофитов хлорофиллы c. Главный «бурый» пигмент — каротиноид фукоксантин. Он поглощает сине-зелёный свет с длиной волны 450–540 нм — именно такой свет проникает глубже всего в морскую воду, — и передаёт энергию хлорофиллу. Поэтому бурые водоросли и диатомеи хорошо фотосинтезируют там, где красного света уже нет.
| Группа | Хлорофиллы | Главный каротиноид | Запас | Цвет |
|---|---|---|---|---|
| Диатомовые | a, c | фукоксантин | хризоламинарин, жиры | золотисто-бурый |
| Бурые | a, c | фукоксантин | ламинарин, маннит | от оливкового до тёмно-бурого |
| Золотистые | a, c | фукоксантин | хризоламинарин | золотистый |
| Желтозелёные | a, c | вошериаксантин, нет фукоксантина | хризоламинарин, жиры | жёлто-зелёный |
| Эустигматофиты | только a | виолаксантин | жиры | жёлто-зелёный |
| Для сравнения: зелёные растения | a, b | лютеин | крахмал в пластиде | зелёный |
Желтозелёные водоросли и эустигматофиты не имеют фукоксантина, поэтому выглядят зелёными; долгое время их путали с зелёными водорослями. Отличить можно по запасному веществу: крахмала, который окрашивается йодом в синий цвет, у них нет.
Запасной углевод охрофитов — хризоламинарин, а у бурых водорослей — близкий к нему ламинарин. Это короткие цепочки из остатков глюкозы, соединённых связью β-1,3 (в крахмале связь α-1,4). Ламинарин растворим в воде и хранится в вакуолях.
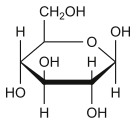 β-D-глюкоза — звено ламинарина и хризоламинарина
Другой запас бурых водорослей — шестиатомный спирт маннит, родственник глюкозы и маннозы. В сухой массе ламинарий его бывает до четверти; он служит и запасом, и веществом, удерживающим воду в клетках. Маннит придаёт сушёной морской капусте сладковатый вкус и белый налёт на поверхности.
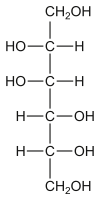 маннит (шестиатомный спирт)
Современная система
Раньше охрофитов делили на отделы по цвету и строению. Молекулярные данные (последовательности сотен генов) показали, что охрофиты — единая ветвь, которая делится на две большие группы: диатомистов (диатомовые и их ближайшие родственники) и хризистов (золотистые, бурые, желтозелёные и другие). Число классов — около двадцати; часть из них описана по нескольким видам, найденным в культурах.
- Актинофриды бесцветные солнечники
- Диатомовые кремнёвый панцирь из двух створок
- Болидофиты жгутиконосцы и пармалеи
- Диктиохофиты силикофлагелляты, педииеллы
- Пелагофиты мельчайший планктон
- Пингвиофиты богаты омега-3 кислотами
- Золотистые динобрион, синура
- Эустигматофиты наннохлоропсис
- Рафидофиты хаттонелла
- Бурые многоклеточные, до 45 м
- Желтозелёные вошерия, ботридий
- Феотамниофиты и другие мелкие классы
- 1охрофиты: пластида красного происхождения в четырёх мембранах
- 2диатомисты (Diatomista)
- 3хризисты (Chrysista)
- 4кремнёвые покровы диатомей и пармалей
- 5ветвь бурых и желтозелёных (PX-клада)
- развилки из трёх и более ветвей — порядок ветвления пока не решён
| Класс | Число видов (примерно) | Особенности | Примеры |
|---|---|---|---|
| Диатомовые (Bacillariophyceae) | больше 12 000 | кремнёвый панцирь из двух створок, без жгутиков, кроме сперматозоидов | навикула, пиннулярия, хетоцерос |
| Болидофиты (Bolidophyceae) | около 20 | мельчайшие жгутиконосцы и неподвижные клетки с кремнёвыми пластинками (пармалеи) | болидомонас, трипарма |
| Диктиохофиты (Dictyochophyceae) | несколько десятков | внутренний кремнёвый скелет или щупальца | диктиоха, псевдохаттонелла |
| Пелагофиты (Pelagophyceae) | около 20 | клетки 1–3 мкм, океанский пикопланктон | ауреококк, пелагомонас |
| Пингвиофиты (Pinguiophyceae) | 5 | очень много жиров с омега-3 кислотами | пингвиококк |
| Золотистые (Chrysophyceae) | около 1200 | пресноводные, часто колонии, миксотрофы, кремнёвые цисты | динобрион, синура, охромонас |
| Эустигматофиты (Eustigmatophyceae) | больше 100 | только хлорофилл a, глазок вне пластиды | наннохлоропсис |
| Рафидофиты (Raphidophyceae) | около 30 | крупные голые жгутиконосцы, вызывают гибель рыбы | хаттонелла, гетеросигма |
| Желтозелёные (Xanthophyceae) | около 600 | без фукоксантина, часто многоядерные | вошерия, ботридий, трибонема |
| Бурые (Phaeophyceae) | около 2000 | многоклеточные, почти все морские | ламинария, фукус, макроцистис, саргассум |
Диатомовые водоросли
Диатомеи — одноклеточные водоросли в кремнёвом панцире. Панцирь состоит из аморфного водного кремнезёма (опала) и устроен как коробочка с крышкой: бо́льшая половина — эпитека — надета на меньшую — гипотеку. Каждая половина состоит из створки (дна или крышки) и поясковых ободков (боковых стенок). Створки пронизаны тысячами пор, узор которых постоянен у каждого вида: по нему диатомей и определяют.
- Центрические диатомеи — круглые, с радиальным узором створки (коскинодискус, талассиозира). Они в основном живут в морском планктоне и часто соединяются в цепочки (хетоцерос, мелозира).
- Перистые диатомеи — удлинённые, с двусторонне-симметричной створкой (навикула, пиннулярия). У многих вдоль створки проходит щель — шов. Через шов клетка выделяет слизь, которая скользит назад по мембране, увлекаемая белками-моторами, и клетка ползёт по дну со скоростью до 10–20 мкм в секунду.
Диатомеи — диплоидные организмы. Гаплоидны у них только гаметы, которые образуются мейозом, как у животных. У центрических диатомей половой процесс — оогамия: крупная неподвижная яйцеклетка и мелкие сперматозоиды с одним передним жгутиком, покрытым волосками. Это единственная жгутиковая стадия диатомей. У перистых гаметы безжгутиковые, амебоидные: две клетки сближаются, и гаметы сливаются попарно.
Диатомеи — главные фотосинтетики холодных и богатых питательными веществами вод. Весной, когда вода перемешана и полна нитратов и кремния, в озёрах и морях начинается «цветение» диатомей. Оно длится до тех пор, пока не кончится кремний: без него диатомея не может построить створку и разделиться. После этого диатомей сменяют другие водоросли. Отмершие панцири тонут и уносят с собой углерод на дно океана; за миллионы лет из них образуются толщи диатомита — лёгкой пористой породы.
Почему диатомеи мельчают
При делении диатомеи две половины панциря расходятся: каждая дочерняя клетка получает одну старую створку и строит внутри неё новую. Старая створка всегда становится крышкой (эпитекой), а новая — донцем (гипотекой). Клетка, которой досталась материнская крышка, сохраняет размер. Клетка, которой досталось материнское донце, оказывается мельче: её новое донце строится внутри старого. Так при каждом делении половина потомков становится немного меньше, и средний размер клеток в культуре со временем уменьшается. Это правило установили в 1869 году Джон Макдональд и Эрнст Пфитцер.
- 1эпитека — бо́льшая створка, «крышка»
- 2гипотека — меньшая створка, «донце»; у дочерних клеток новая гипотека (голубая) строится внутри старой створки
- 3клетка, получившая донце, мельче родительской; самые мелкие клетки переходят к половому размножению
- 4клетка, получившая крышку, сохраняет размер
- три поколения: из одной клетки — восемь, и средний размер уменьшается с каждым делением
Бесконечно уменьшаться клетка не может. Когда диатомея достигает примерно трети исходного размера, она переходит к половому размножению. Гаметы сливаются, и зигота, ещё без жёсткого панциря, сильно растёт, окружённая лишь тонкой оболочкой с кремнёвыми полосками. Такую растущую зиготу называют ауксоспорой (от греч. auxo — расти). Внутри неё строится новый панцирь максимального размера, и цикл начинается снова.
После ауксоспоры снова идут деления крупной клетки.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
Болидофиты и пармалеи
Ближайшие родственники диатомей — болидофиты: крошечные (1–2 мкм) жгутиконосцы океанского планктона, открытые в 1999 году. Их название происходит от слова «болид»: клетки плавают очень быстро. Долгое время отдельно изучали пармалей — неподвижные клетки такого же размера, покрытые пятью-восемью кремнёвыми пластинками, — и не знали, кто это. В 2016 году японские исследователи показали, что пармалеи и болидофиты — один и тот же организм на разных стадиях жизни. Покрытые кремнём пармалеи похожи на то, как мог выглядеть общий предок болидофитов и диатомей, ещё не «сложивший» свой панцирь из двух створок.
Бурые водоросли: строение
Бурые водоросли (Phaeophyceae) — около двух тысяч видов, почти все морские. Это единственные среди охрофитов крупные многоклеточные организмы, и многоклеточность у них возникла независимо от растений, животных, грибов и красных водорослей. Самые простые бурые водоросли — разветвлённые нити (эктокарпус), самые сложные — ламинарии, у которых есть разные ткани.
Тело бурой водоросли называется слоевищем, или талломом: оно не разделено на корни, стебли и листья. Но у крупных видов есть похожие по функциям части:
- ризоиды (у крупных ламинариевых — разветвлённая подошва, гаптер) прикрепляют водоросль к камню. Воду и соли они не всасывают: их поглощает вся поверхность слоевища;
- стволик (ножка) — гибкий и прочный, выдерживает удары волн;
- пластина — главный орган фотосинтеза;
- воздушные пузыри у фукуса, саргассума и макроцистиса удерживают пластины у поверхности, ближе к свету.
У ламинарии зона роста — меристема — находится между стволиком и пластиной. Пластина нарастает снизу, а её конец изнашивается и обрывается, поэтому у многих ламинарий пластина каждый год обновляется. Внутри слоевища различают наружный слой мелких клеток с пластидами (кору) и сердцевину, по которой проходят вытянутые клетки с ситовидными пластинками на концах. По ним, как по ситовидным трубкам растений, сахара (маннит) перемещаются от освещённых пластин к ризоидам и меристеме. Соседние клетки бурых водорослей связаны плазмодесмами — цитоплазматическими мостиками сквозь стенку.
Есть ли у водорослей ткани? В школьных учебниках пишут, что у водорослей нет тканей и органов. Для ЕГЭ так и отвечайте: тело водоросли — слоевище, не расчленённое на органы. Но знайте, что у крупных бурых водорослей клетки специализированы: есть покровный, фотосинтезирующий, проводящий слой и меристема. Это настоящие ткани, хотя и не такие, как у растений.
Химия бурых водорослей
Клеточная стенка бурых водорослей состоит из целлюлозы и двух веществ, которых нет у растений.
Альгиновые кислоты — длинные цепи из остатков двух сахарных кислот: маннуроновой (M) и гулуроновой (G). Они отличаются только положением группы COOH у пятого атома углерода: фермент эпимераза уже в готовой цепи превращает часть остатков M в G. Участки из остатков G связывают ионы кальция, как яйца в ячейках коробки, и соседние цепи «склеиваются» в гель. Чем больше G, тем гель жёстче. Альгинаты делают слоевище одновременно прочным и гибким, а в штормовом море — не ломким.
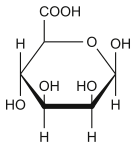 β-D-маннуроновая кислота (M)
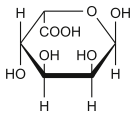 α-L-гулуроновая кислота (G)
Фукоидан — полисахарид из остатков сахара фукозы с серной кислотой; он удерживает воду и защищает водоросль от высыхания на отливе.
Ещё одна особенность бурых водорослей — флоротаннины: полимеры флороглюцина (1,3,5-тригидроксибензола). Это дубильные вещества, родственники таннинов растений: горькие и вяжущие, они отпугивают морских ежей и брюхоногих моллюсков, поглощают ультрафиолет и укрепляют стенку.
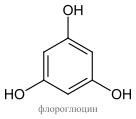
Наконец, бурые водоросли накапливают йод: в ламинарии его в десятки тысяч раз больше, чем в морской воде. Иодид служит водоросли противоокислителем: при стрессе (например, на отливе) он выходит из клеток и обезвреживает активные формы кислорода. Именно из золы морских водорослей французский химик Бернар Куртуа в 1811 году открыл йод.
Жизненные циклы бурых водорослей
У бурых водорослей встречаются все основные типы жизненных циклов. Сравним три примера — от простого к сложному.
Эктокарпус: два одинаковых поколения
Эктокарпус — разветвлённая буроватая нить длиной несколько сантиметров. Диплоидное поколение (спорофит) образует в спорангиях мейозом гаплоидные подвижные зооспоры. Из них вырастает гаплоидное поколение (гаметофит), внешне неотличимое от спорофита. Гаметофит митозом образует гаметы; при их слиянии получается зигота, из которой вырастает спорофит. Такую смену поколений называют изоморфной.
Из зиготы снова вырастает спорофит.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
Ламинария: большой спорофит и крошечный гаметофит
То, что продают как морскую капусту, — спорофит ламинарии (сахарины), диплоидная водоросль длиной от одного до нескольких метров. На пластине образуются тёмные пятна — сорусы, в которых мейозом образуются гаплоидные зооспоры. Зооспора оседает на дно и прорастает в микроскопический гаметофит из нескольких клеток, мужской или женский. Мужской гаметофит образует сперматозоиды, женский — яйцеклетки. После оплодотворения зигота остаётся на женском гаметофите и прорастает в новый спорофит. Гаметы образуются митозом, ведь гаметофит уже гаплоидный.
Из зиготы на гаметофите вырастает новый спорофит.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
Пол гаметофита определяют половые хромосомы, но не так, как у человека: у бурых водорослей пол выражен у гаплоидного поколения. Женский гаметофит несёт хромосому U, мужской — V, а у диплоидного спорофита есть обе. Поэтому половина зооспор одного спорофита даёт женские гаметофиты, половина — мужские.
Фукус: только диплоидное поколение
Фукус — бурая водоросль приливно-отливной зоны с ремневидным ветвящимся слоевищем и воздушными пузырями. Его клетки диплоидны. На концах ветвей образуются вздутия с ямками — скафидиями (концептакулами), в которых мейозом сразу образуются яйцеклетки и сперматозоиды. Отдельного гаплоидного поколения нет: как у животных и диатомей, гаплоидны только гаметы. Оплодотворение происходит в воде, и из зиготы вырастает новый фукус.
Отдельного гаплоидного поколения нет — как у животных.
- диплоидная стадия (2n)
- гаплоидная стадия (n)
| Водоросль | Диплоидная стадия (2n) | Гаплоидная стадия (n) | Где мейоз | Как образуются гаметы |
|---|---|---|---|---|
| Эктокарпус | спорофит — нить | гаметофит — такая же нить | при образовании зооспор | митозом на гаметофите |
| Ламинария | спорофит — большое слоевище | гаметофит — микроскопическая нить | при образовании зооспор в сорусах | митозом на гаметофите |
| Фукус | вся водоросль | только гаметы | при образовании гамет в скафидиях | мейозом |
Подводные леса и плавучие острова
- Ламинариевые леса. Макроцистис достигает 45 м и растёт до полуметра в сутки. Его заросли у берегов Калифорнии, Чили, Тасмании и Новой Зеландии, как и заросли ламинарий у берегов Европы, Приморья и Камчатки, — одни из самых продуктивных сообществ Земли. В них живут тысячи видов: рыбы, ракообразные, морские ежи, каланы. Каланы поедают морских ежей и тем самым спасают леса: там, где каланов истребили, ежи «выкашивают» водоросли до голого камня.
- Литораль. Фукусы и аскофиллум покрывают камни в зоне приливов и отливов. На отливе они часами лежат на воздухе, теряя до 90 % воды, а с приливом снова набухают.
- Саргассово море. В середине Атлантики плавают скопления саргассума — бурой водоросли, которая никогда не прикрепляется ко дну и размножается обрывками. Это единственное море без берегов. С 2011 года от Западной Африки до Мексиканского залива каждое лето возникает огромный «саргассовый пояс»: в 2018 году его масса превысила 20 млн т, а выброшенные на пляжи Карибского моря водоросли гниют, выделяя сероводород.
- Кислотная водоросль. Десмарестия хранит в вакуолях серную кислоту, и её клеточный сок имеет pH около 1. Это защита от морских ежей; если сорванную десмарестию положить в ведро с другими водорослями, кислота их погубит.
Золотистые водоросли
Золотистые водоросли (Chrysophyceae) — около 1200 видов, в основном жители чистых пресных вод, особенно холодных и бедных минеральными солями. Многие из них — миксотрофы: фотосинтезируют и одновременно заглатывают бактерий, а при недостатке света переходят почти целиком на «хищное» питание.
- Динобрион образует древовидные колонии: каждая клетка сидит в прозрачном бокаловидном домике (лорике), прикреплённом к домику предыдущей клетки.
- Синура — шаровидная колония клеток, покрытых кремнёвыми чешуйками. При массовом развитии придаёт воде запах огурцов или рыбы.
- Гидрурус живёт в ледяных горных ручьях и образует бурые слизистые шнуры длиной до 30 см с неприятным запахом.
Золотистые водоросли образуют покоящиеся цисты — стоматоцисты — с кремнёвой стенкой и порой, закрытой пробкой. Цисты сохраняются в донных отложениях тысячи лет. Поскольку разные виды золотистых живут при разной кислотности воды, по цистам в слоях ила восстанавливают историю озера — например, когда началось его закисление кислотными дождями.
Желтозелёные водоросли
Желтозелёные водоросли (Xanthophyceae) — около 600 видов пресных вод и влажной почвы. Фукоксантина у них нет, поэтому они зелёные, и раньше их относили к зелёным водорослям.
- Вошерия образует на влажной земле и на дне ручьёв зелёный «войлок» из ветвящихся трубок. Каждая трубка — одна огромная клетка с тысячами ядер и без перегородок (такое строение называют сифональным). Половое размножение — оогамия: на трубке развиваются оогонии с одной яйцеклеткой и антеридии со сперматозоидами. Пластиды морской вошерии крадёт и использует для фотосинтеза морской слизень элизия (подробнее).
- Ботридий на влажной глине образует зелёные пузырьки размером около 2 мм с бесцветными ризоидами — каждый пузырёк тоже одна многоядерная клетка.
- Трибонема — неразветвлённые нити в прудах; её стенка состоит из Н-образных половинок, вставленных друг в друга.
Другие классы
- Эустигматофиты. Мелкие (2–4 мкм) клетки, у которых из хлорофиллов есть только хлорофилл a. Наннохлоропсис накапливает до половины сухой массы в виде жиров, в том числе омега-3 кислот; его выращивают как корм для мальков рыб и моллюсков и как сырьё для биотоплива. Название класса означает «настоящий глазок»: у зооспор глазок лежит вне пластиды.
- Рафидофиты. Крупные (до 100 мкм) голые жгутиконосцы морских заливов и пресных вод. Хаттонелла и гетеросигма при «цветении» убивают рыбу: клетки выделяют активные формы кислорода и слизь, повреждающие жабры. В 1972 году во Внутреннем Японском море хаттонелла погубила около 14 млн выращиваемых рыб.
- Диктиохофиты. Силикофлагелляты (диктиоха) имеют внутренний скелет из кремнёвых трубочек в форме звезды или корзинки. Их ископаемые скелеты известны с мелового периода, и по соотношению видов определяют температуру древних морей. К диктиохофитам относится и псевдохаттонелла, «цветение» которой в 2016 году погубило миллионы лососей на фермах Чили. Педиеллы — жгутиконосцы с венцом щупалец, которыми ловят бактерий.
- Пелагофиты. Клетки 1–3 мкм, одни из самых обильных фотосинтетиков открытого океана. Ауреококк в 1985 году вызвал у берегов США «бурый прилив», погубивший промысел морских гребешков.
- Пингвиофиты (от лат. pinguis — жирный) — несколько видов, клетки которых очень богаты жирами с омега-3 кислотами.
Откуда у охрофитов пластида
Пластиды растений и зелёных водорослей произошли от цианобактерии, поглощённой эукариотической клеткой, — это первичный эндосимбиоз. У охрофитов история сложнее: их предок, бесцветный хищник, проглотил одноклеточную красную водоросль и не переварил её. Водоросль постепенно утратила ядро (у охрофитов от него не осталось следов), митохондрии и почти все гены; гены, нужные для пластиды, переместились в ядро хозяина. От водоросли осталась только её пластида с лишней мембраной, а сама она оказалась в пузырьке эндоплазматической сети хозяина. Так и получились четыре мембраны. Это вторичный эндосимбиоз.
Долго считали, что вторичную красную пластиду получил один общий предок охрофитов, криптофитов, гаптофитов и альвеолят (гипотеза хромальвеолят). Но молекулярные деревья показали, что эти группы не родственники друг другу. Сейчас обсуждают серию эндосимбиозов: красную водоросль поглотил предок одной из групп, а затем пластида «перешла» к другим вместе с поглощёнными водорослями — третичные и четвертичные эндосимбиозы. В 2017 году выяснилось, что около четверти белков пластиды охрофитов имеют «зелёное» происхождение: возможно, в их предках побывала и зелёная водоросль.
По молекулярным часам охрофиты обособились несколько сотен миллионов лет назад. Надёжные ископаемые диатомеи известны с юрского периода (около 190 млн лет назад), а расцвет диатомей, силикофлагеллят и золотистых водорослей пришёлся на меловой период и кайнозой. Бурые водоросли почти не оставляют ископаемых, но по молекулярным данным их крупные ветви разошлись в мезозое.
Значение для планеты и человека
- Кислород и климат. Диатомеи дают около 20 % всей первичной продукции Земли и около 40 % — в океане. Тонущие панцири уносят углерод в глубину — это часть «биологического насоса», снижающего количество CO2 в атмосфере.
- Пища. Диатомеи — основа пищевых цепей холодных морей: их едят веслоногие рачки и криль, а тех — рыбы, пингвины и киты. Ламинарии (морская капуста), ундария (вакаме) и хидзики — пищевые водоросли; в Китае, Корее и Японии их выращивают на миллионах тонн ежегодно.
- Альгинаты (пищевые добавки E400–E405) загущают мороженое, соусы и кремы; из них делают слепки зубов у стоматолога, раневые повязки, оболочки капсул и «икру» в молекулярной кулинарии.
- Диатомит идёт на фильтры для пива, вина и воды бассейнов, абразивы, теплоизоляцию, наполнители. В 1867 году Альфред Нобель, пропитав диатомит нитроглицерином, получил безопасный для перевозки динамит.
- Йод и удобрения. Морские водоросли — исторический источник йода и калийных удобрений; их до сих пор вносят в почву на побережьях.
- Вредные «цветения». Диатомея псевдонитцшия выделяет домоевую кислоту — нейротоксин, накапливающийся в моллюсках. В 1987 году в Канаде отравление мидиями погубило трёх человек и вызвало у выживших стойкую потерю памяти. Рафидофиты, диктиохофиты и пелагофиты губят рыбу и моллюсков на фермах.
- Нанотехнологии. Панцири диатомей — образцы пористых материалов с порами в десятки нанометров; их изучают для фильтров, датчиков и доставки лекарств.
История изучения
- 1753К. Линней описывает род фукус (Fucus) — среди «водорослей» растительного царства
- 1783О. Ф. Мюллер впервые описывает диатомею — подвижную колонию бациллярии
- 1836Х. Эренберг находит ископаемые диатомеи в горных породах; У. Харви делит водоросли по цвету на бурые, красные и зелёные
- 1867А. Нобель пропитывает нитроглицерином диатомит — получается динамит
- 1899А. Лютер выделяет «разножгутиковых» (Heterokontae) — желтозелёные водоросли с неравными жгутиками
- 1914А. Пашер объединяет желтозелёные, золотистые и диатомовые в один отдел по пигментам и запасному веществу
- 1950-еэлектронная микроскопия: трёхчастные волоски на переднем жгутике, четыре мембраны вокруг пластиды
- 1986Т. Кавалье-Смит вводит название Ochrophyta для фотосинтезирующих разножгутиковых
- 1989Д. Паттерсон объединяет их с бесцветными родственниками в страменопилы
- 2004Прочитан геном первой водоросли с вторичной пластидой — диатомеи Thalassiosira pseudonana
- 2010Прочитан геном бурой водоросли эктокарпуса — модели для изучения многоклеточности
- 2016Пармалеи с кремнёвыми пластинками оказываются стадией жизненного цикла болидофитов — ближайших родственников диатомей
- 2022Ближайшим бесцветным родственником охрофитов оказывается солнечник актинофрис
- описание и морфология
- строение клетки
- молекулярные данные
Удивительные факты
- Бациллярия — колония диатомей, клетки которой скользят друг вдоль друга, и колония то вытягивается в длинную ленту, то складывается, как раздвижная линейка.
- Диатомеи — самые известные организмы со стеклянной клеточной стенкой. Кремнёвые чешуйки и пластинки есть ещё у синуры, пармалей и силикофлагеллят, но сплошной стеклянный «футляр» из двух половин — только у диатомей.
- У диатомей работает орнитиновый цикл, как у животных при образовании мочевины, — но служит он для быстрого перераспределения азота.
- Если клетку диатомеи лишить кремния, она не может разделиться, но продолжает фотосинтезировать и накапливает жир — этим пользуются при выращивании диатомей для биотоплива.
- Ламинарии выделяют в воздух молекулярный йод; над зарослями водорослей на отливе из него образуются частицы, на которых конденсируется влага, — водоросли участвуют в образовании прибрежных облаков.
- Морская капуста — главный природный источник йода в питании жителей многих приморских стран; йододефицит там встречается редко.
- Саргассово море названо по водоросли саргассуму, а она — по португальскому слову sargaço: её пузыри напоминали морякам Колумба мелкий виноград.
- Бурая водоросль хормозира на новозеландской литорали похожа на бусы из пузырей, наполненных водой, — это запас воды на время отлива.
Что пока не решено
- Откуда пластида. Кто и у кого первым получил красную пластиду — охрофиты, криптофиты или гаптофиты, — и сколько раз она переходила между ними.
- Порядок ветвления классов. Положение пингвиофитов, эустигматофитов и нескольких мелких классов на древе пока ненадёжно.
- Сколько видов диатомей. Описано больше 12 тысяч, а оценки реального числа — от 30 до 100 тысяч и больше.
- Как возникла многоклеточность бурых водорослей. Геном эктокарпуса показал, что у бурых водорослей много своих генов передачи сигналов, которых нет у растений и животных. Как именно они управляют развитием ткани, изучено мало.
- Почему разрастается саргассовый пояс. Предполагают роль удобрений, смываемых реками Амазонкой и Конго, пыли из Сахары и изменения течений, но точного объяснения нет.
Что писать на ЕГЭ
- Бурые водоросли — многоклеточные морские водоросли. Тело — слоевище (таллом), не расчленённое на органы; прикрепляются к грунту ризоидами. Крупнейшие достигают десятков метров (макроцистис), в Белом и Баренцевом морях — ламинария, фукус.
- Клетки бурых водорослей содержат хлорофиллы и бурый пигмент фукоксантин, который поглощает сине-зелёный свет, проникающий на глубину. Запасные вещества — ламинарин (полисахарид) и маннит, а не крахмал.
- Ламинария: в жизненном цикле преобладает спорофит (2n); зооспоры (n) образуются мейозом; из них развиваются мужские и женские гаметофиты (n); гаметы (n) образуются митозом; после оплодотворения из зиготы (2n) развивается спорофит.
- Диатомовые водоросли — одноклеточные, клетка заключена в кремнезёмный панцирь из двух створок; образуют диатомит; важнейшая часть фитопланктона.
- Значение бурых водорослей: образуют подводные леса и служат местом обитания и пищей животных; источник йода, альгинатов, пищевой продукт (морская капуста), удобрение.
Ловушки. 1) У бурых водорослей нет корней — ризоиды только прикрепляют, а воду и соли поглощает вся поверхность. 2) Слоевище ламинарии — спорофит (2n), а не гаметофит. 3) Зооспоры ламинарии образуются мейозом, а гаметы — митозом. 4) У фукуса гаплоидны только гаметы. 5) Запас бурых водорослей — ламинарин и маннит, а не крахмал. 6) Фукоксантин — каротиноид, а не хлорофилл. 7) Панцирь диатомей кремнезёмный, а не известковый (известковые чешуйки — у кокколитофорид, это гаптофиты). 8) Красные водоросли (порфира, анфельция) — не бурые: у них фикобилины, запас — багрянковый крахмал.
Для тренировки — тема «Многообразие организмов» в тренажёре ЕГЭ по биологии.
Для олимпиад
Свет на глубине
Вода поглощает свет, и интенсивность убывает с глубиной экспоненциально: I = I0·e−kz, где k — коэффициент ослабления. Для красного света он в чистой морской воде около 0,3–0,5 м−1, для сине-зелёного — около 0,02–0,05 м−1. Уже на глубине 10 м красного света почти не остаётся, а сине-зелёный проникает на десятки метров. Фукоксантин поглощает именно сине-зелёный свет и передаёт энергию хлорофиллу a с эффективностью около 80–90 %. Это объясняет, почему на глубине среди водорослей преобладают бурые и красные, а не зелёные. Но «закон Энгельмана» (хроматическая адаптация водорослей по глубине) соблюдается лишь приблизительно: распределение водорослей зависит и от общего количества света, и от поедания, и от прибоя.
Ксантофилловый цикл диатомей
При избытке света диатомеи быстро превращают пигмент диадиноксантин в диатоксантин, который сбрасывает лишнюю энергию в виде тепла (нефотохимическое тушение). В темноте реакция идёт обратно. Такой же защитный цикл у растений работает на других пигментах (виолаксантин — зеаксантин). Диатомеи, живущие в перемешиваемой воде, за минуты переходят от темноты глубины к яркому солнцу у поверхности, и быстрый цикл защищает их фотосистемы.
Механизм концентрирования CO2
В воде CO2 растворяется слабо и диффундирует медленно, а рубиско плохо отличает его от кислорода. Диатомеи активно поглощают гидрокарбонат-ионы, накачивают их в пластиду и в пиреноиде с помощью карбоангидразы превращают в CO2 прямо возле рубиско. Концентрация CO2 вокруг фермента в десятки раз выше, чем в воде.
Сколько делений до ауксоспоры. Если при каждом делении мелкая дочерняя клетка уменьшается на Δ, то после n делений самая мелкая линия клеток имеет размер D0 − nΔ, а средний размер в культуре — D0 − nΔ/2 (половина потомков каждого деления сохраняет размер). Зная порог перехода к половому размножению, можно оценить, через сколько поколений культура «состарится». Поэтому лабораторные культуры диатомей без полового процесса со временем вымирают, если их не обновлять.
Задания с разбором
Задания 1–9 — в формате ЕГЭ (с элементами ответа для заданий с развёрнутым ответом), 10–15 — олимпиадные.
Задание 1
Выберите три признака, характерных для бурых водорослей.
- содержат пигмент фукоксантин
- запасное вещество — крахмал
- прикрепляются к грунту ризоидами
- клетки содержат хлорофилл b
- запасают ламинарин и маннит
- тело расчленено на корень, стебель и листья
Разбор
Ответ: 135. Крахмал и хлорофилл b — признаки зелёных водорослей и растений; у бурых водорослей тело — слоевище, не расчленённое на органы.
Задание 2
Установите соответствие между признаками и группами водорослей: к каждой позиции первого столбца подберите позицию из второго.
ПРИЗНАКИ: А) одноклеточные; Б) клетка в кремнезёмном панцире; В) образуют подводные леса; Г) есть ризоиды и стволик; Д) из отмерших клеток образуется диатомит; Е) используются для получения альгинатов.
ГРУППЫ: 1) диатомовые; 2) бурые.
Разбор
Ответ: 112212. Одноклеточность, панцирь и диатомит — у диатомовых; подводные леса, ризоиды со стволиком и альгинаты — у бурых.
Задание 3
Установите последовательность стадий жизненного цикла ламинарии, начиная со спорофита.
- образование гамет
- развитие гаметофита
- образование зооспор в сорусах
- оплодотворение
- спорофит
Разбор
Ответ: 53214. Спорофит образует зооспоры → из зооспор вырастают гаметофиты → гаметофиты образуют гаметы → оплодотворение → из зиготы вырастает спорофит.
Задание 4
Какой хромосомный набор характерен для клеток слоевища ламинарии, её зооспор и гамет? Из каких клеток и в результате какого деления образуются зооспоры и гаметы? В клетках слоевища ламинарии японской 62 хромосомы — сколько их в зооспоре и в яйцеклетке?
Разбор
Элементы ответа: 1) слоевище — спорофит, его клетки диплоидны (2n); 2) зооспоры гаплоидны (n), образуются из клеток спорофита в сорусах мейозом; 3) гаметы гаплоидны (n), образуются на гаметофите (n) митозом; 4) в зооспоре и в яйцеклетке по 31 хромосоме.
Задание 5
Почему бурые водоросли способны жить на большей глубине, чем зелёные? Ответ поясните.
Разбор
Элементы ответа: 1) с глубиной вода поглощает сначала красный, затем жёлтый свет, глубже всего проникает сине-зелёный; 2) хлорофиллы зелёных водорослей поглощают в основном красный и синий свет; 3) бурый пигмент фукоксантин поглощает сине-зелёный свет и передаёт энергию хлорофиллу, поэтому бурые водоросли фотосинтезируют при свете, недоступном зелёным.
Задание 6
Найдите три ошибки в приведённом тексте. Укажите номера предложений, в которых они сделаны, исправьте их.
(1) Бурые водоросли — многоклеточные, преимущественно морские организмы. (2) Их тело расчленено на корень, стебель и лист. (3) В клетках бурых водорослей есть хлорофилл и бурый пигмент фукоксантин. (4) Запасным веществом служит крахмал. (5) Слоевище ламинарии — гаплоидный гаметофит. (6) Ламинарию используют в пищу и для получения йода.
Разбор
Элементы ответа: 1) в предложении 2: тело — слоевище (таллом), не расчленённое на органы, прикрепляется ризоидами; 2) в предложении 4: запасные вещества — ламинарин и маннит; 3) в предложении 5: слоевище ламинарии — диплоидный спорофит.
Задание 7
Чем жизненный цикл фукуса отличается от жизненного цикла ламинарии? Какие клетки фукуса гаплоидны и каким делением они образуются?
Разбор
Элементы ответа: 1) у ламинарии чередуются диплоидный спорофит и гаплоидный гаметофит; у фукуса гаплоидного поколения нет; 2) у фукуса гаплоидны только гаметы; 3) они образуются мейозом в скафидиях (концептакулах) на концах ветвей диплоидной водоросли.
Задание 8
Укажите не менее трёх значений бурых водорослей в природе и для человека.
Разбор
Элементы ответа: 1) в природе: образуют подводные леса — место обитания, укрытие и пищу для множества животных, производят органическое вещество и кислород; 2) для человека: пищевой продукт (морская капуста), источник йода; 3) из них получают альгинаты (загустители, стоматологические слепочные массы, повязки), маннит, удобрения.
Задание 9
Исследователь выращивал диатомеи в пяти колбах с одинаковой питательной средой, в которую добавил разное количество кремниевой кислоты, при одинаковых освещении и температуре. Через неделю он подсчитал число клеток. В колбах с большим содержанием кремния клеток было больше, а в колбе без кремния число клеток почти не изменилось. 1) Какой параметр задавал экспериментатор (независимая переменная), а какой менялся в зависимости от него (зависимая)? 2) Почему без кремния диатомеи не размножаются? 3) Почему в колбе без кремния клетки при этом не погибли сразу?
Разбор
Элементы ответа: 1) независимая переменная — концентрация кремниевой кислоты, зависимая — число клеток (скорость размножения); 2) при делении каждая дочерняя клетка строит новую створку панциря из кремнезёма; без кремния створка не образуется и деление не завершается; 3) клетки продолжают фотосинтезировать и запасают вещества (жиры), им не хватает материала только для деления.
Задание 10
Диаметр створки центрической диатомеи 60 мкм. При каждом делении мелкая дочерняя клетка на 0,5 мкм меньше материнской. К половому размножению клетки переходят при диаметре 20 мкм. 1) Через сколько делений самая мелкая линия клеток достигнет этого порога? 2) Через сколько поколений до 20 мкм уменьшится средний диаметр клеток в культуре? 3) Сколько суток понадобится в первом случае, если клетки делятся раз в сутки?
Разбор
1) (60 − 20) / 0,5 = 80 делений. 2) Средний диаметр уменьшается на 0,5 / 2 = 0,25 мкм за поколение: 40 / 0,25 = 160 поколений. 3) 80 суток.
Задание 11
Интенсивность света в воде убывает по закону I = I0·e−kz. Для сине-зелёного света k = 0,1 м−1, для красного — 0,5 м−1. 1) Какая доля сине-зелёного и красного света доходит до глубины 20 м? 2) Какой вывод можно сделать о роли фукоксантина?
Разбор
1) Сине-зелёный: e−2 ≈ 13,5 %; красный: e−10 ≈ 0,005 %, то есть практически ничего. 2) На глубине 20 м фотосинтез возможен почти только за счёт сине-зелёного света; фукоксантин, поглощающий именно его, позволяет бурым водорослям и диатомеям использовать этот свет.
Задание 12
Цепь альгиновой кислоты содержит 1000 остатков, остатки M и G в отношении 3 : 2. Фермент эпимераза превратил 30 % остатков M в остатки G. 1) Сколько остатков M и G стало в цепи? 2) Как изменится свойство геля с ионами кальция и почему? 3) Почему у водорослей прибойной зоны в стволике больше G, чем в пластине?
Разбор
1) Было M = 600, G = 400; превращено 600 · 0,3 = 180 остатков; стало M = 420, G = 580. 2) Гель станет жёстче: участки из остатков G связывают ионы кальция и сшивают соседние цепи. 3) Стволик выдерживает удары волн и должен быть прочным, а пластина — гибкой, чтобы не рваться в потоке.
Задание 13
Первичная продукция всей Земли — около 100 млрд т углерода в год; на диатомеи приходится около 20 %. Сколько тонн кислорода выделяют диатомеи за год, если при фотосинтезе на каждый моль связанного углерода выделяется моль O2?
Разбор
Диатомеи связывают 20 млрд т углерода, то есть 20 · 1015 г / 12 г/моль ≈ 1,67 · 1015 моль. Столько же молей O2: 1,67 · 1015 · 32 г ≈ 5,3 · 1016 г ≈ 53 млрд т кислорода в год.
Задание 14
Макроцистис растёт со скоростью 0,5 м в сутки. 1) За сколько суток он может вырасти от дна на глубине 45 м до поверхности? 2) Откуда берутся вещества для такого быстрого роста основания слоевища, лежащего в полутьме? 3) Какие приспособления удерживают пластины у поверхности?
Разбор
1) 45 / 0,5 = 90 суток. 2) Сахара (маннит), образованные при фотосинтезе в пластинах у поверхности, по проводящим клеткам сердцевины доставляются к растущим частям и ризоидам. 3) Воздушные пузыри у основания пластин.
Задание 15
У ламинарии пол определяется половыми хромосомами U и V. 1) Какие половые хромосомы у спорофита, женского и мужского гаметофитов? 2) Какая доля зооспор одного спорофита разовьётся в женские гаметофиты? 3) Чем такое определение пола отличается от человеческого?
Разбор
1) Спорофит (2n) — UV; женский гаметофит (n) — U, мужской — V. 2) При мейозе хромосомы U и V расходятся в разные зооспоры, поэтому половина зооспор даёт женские гаметофиты. 3) У человека пол определяется у диплоидного организма (XX или XY), а у ламинарии — у гаплоидного поколения; у спорофита пола нет, он всегда содержит и U, и V.
Литература
- Белякова Г. А., Дьяков Ю. Т., Тарасов К. Л. Ботаника. Т. 2. Водоросли и грибы. М.: Академия, 2006.
- Lee R. E. Phycology. 5th ed. Cambridge University Press, 2018.
- Graham L. E., Graham J. M., Wilcox L. W., Cook M. E. Algae. 3rd ed. LJLM Press, 2016.
- Round F. E., Crawford R. M., Mann D. G. The diatoms: biology and morphology of the genera. Cambridge University Press, 1990.
- Armbrust E. V. et al. The genome of the diatom Thalassiosira pseudonana: ecology, evolution, and metabolism // Science. 2004. Vol. 306. P. 79–86.
- Bowler C. et al. The Phaeodactylum genome reveals the evolutionary history of diatom genomes // Nature. 2008. Vol. 456. P. 239–244.
- Cock J. M. et al. The Ectocarpus genome and the independent evolution of multicellularity in brown algae // Nature. 2010. Vol. 465. P. 617–621.
- Allen A. E. et al. Evolution and metabolic significance of the urea cycle in photosynthetic diatoms // Nature. 2011. Vol. 473. P. 203–207.
- Derelle R., López-García P., Timpano H., Moreira D. A phylogenomic framework to study the diversity and evolution of stramenopiles (= heterokonts) // Mol. Biol. Evol. 2016. Vol. 33. P. 2890–2898.
- Dorrell R. G. et al. Chimeric origins of ochrophytes and haptophytes revealed through an ancient plastid proteome // eLife. 2017. Vol. 6. e23717.
- Küpper F. C. et al. Iodide accumulation provides kelp with an inorganic antioxidant impacting atmospheric chemistry // PNAS. 2008. Vol. 105. P. 6954–6958.
- Wang M. et al. The great Atlantic Sargassum belt // Science. 2019. Vol. 365. P. 83–87.
- Azuma T. et al. An enigmatic stramenopile sheds light on early evolution in Ochrophyta plastid organellogenesis // Mol. Biol. Evol. 2022. Vol. 39. msac065.
Обсуждение
Загружаем обсуждение…