
В морских осадках, в том числе очень древних, геохимики находят необычные спирты с цепью из 28–32 атомов углерода. По соотношению этих молекул научились оценивать температуру поверхности моря в прошлом. Долгое время оставалось неизвестным, какие организмы их образуют. Ответ дала работа 2022 года: главные производители — морские эустигматофиты, причём из ветви, которую до сих пор никто не видел живой в культуре [1].
Эта группа мельчайших водорослей вообще полна неожиданностей. Из неё выращивают сырьё для кормов и биотоплива, в её пластидах работают гены, полученные от бактерий, а долгое время этих организмов просто путали с другим классом.
- 1. Что такое эустигматофиты
- 2. Как их выделили
- 3. Место в системе
- 4. Клетка
- 5. Как собирать свет только с хлорофиллом a
- 6. Стенка, похожая на кутикулу
- 7. Концентрирование CO₂ без пиреноида
- 8. Наннохлоропсис и масло
- 9. Как редактировать геном ради масла
- 10. Омега-3 и корм для рыб
- 11. Бактериальные гены в пластиде и симбионт-риккетсия
- 12. «Тёмная материя» митохондрий
- 13. Термометр древних морей
- 14. Интересные факты
- 15. Частые вопросы
- 16. Что пока не решено
- 17. Что нужно знать для ЕГЭ
- 18. Для олимпиад
- Задания с разбором
- Литература
1. Что такое эустигматофиты
Определение. Эустигматофиты (Eustigmatophyceae) — класс охрофитов, в основном одиночных неподвижных клеток. В их пластиде из хлорофиллов есть только хлорофилл a, а главные каротиноиды — виолаксантин и вошериаксантин [2][3].
Большинство эустигматофитов — одиночные неподвижные клетки пресных вод. Некоторые роды обычны на суше, а преимущественно морских родов всего два [4]: Nannochloropsis и Microchloropsis [1]. Именно они и прославили группу.
Название класса означает «настоящий глазок» (от греческого eu — «хорошо, настоящий» и stigma — «пятно»). Его дали за особенность подвижных клеток: глазок лежит не в пластиде, а в цитоплазме [5].
Ещё недавно группу считали маленькой и неприметной. Такое мнение опиралось на работы 1970-х и 1980-х годов. Но новые культуры и анализ ДНК из природных проб показали намного больше разнообразия, чем ожидалось [6]. При этом исследования сильно смещены в сторону одной линии: наннохлоропсиса и микрохлоропсиса [6]. О всех остальных мы знаем гораздо меньше.
Для группы характерны три особенности.
- Простой набор пигментов. Нет хлорофилла c, который есть у большинства охрофитов, и нет фукоксантина [2].
- Богатство липидами. Многие виды запасают много масла и образуют длинноцепочечные жирные кислоты, а некоторые — необычные длинные спирты [7][1].
- Биологическое и промышленное значение при малой изученности. По клеткам размером в несколько микрометров судят о климате прошлого, из них получают сырьё, но большинство видов почти не исследовано [6][8].
Не путайте. Эустигматофиты — не то же самое, что желтозелёные водоросли и не зелёная хлорелла, хотя внешне мелкие круглые клетки всех этих групп похожи. Кроме того, в продаже и в популярных текстах встречается название «морская хлорелла»: так часто называют именно наннохлоропсис, настоящей хлореллой он не является.
2. Как их выделили
- 1970Д. Хибберд и Г. Лидейл описывают класс
- 1981Д. Хибберд уточняет систему и названия
- 2011наннохлоропсис: точная замена генов
- 2012геном N. gaditana; С. Рампен: диолы как показатель температуры
- 2014новая ветвь Goniochloridales; геномы шести штаммов; строение стенки
- 2015выделен род Microchloropsis
- 2016бактериальный оперон в пластиде; пигменты VCP
- 2017удвоен выход масла; механизм концентрирования CO₂ без пиреноида
- 2018риккетсия внутри эустигматофитов
- 2022источник диолов — неизвестная морская ветвь
- 202651 новый геном органоидов; неизвестные гены митохондрий
- система
- клетка и гены
- биотехнология
- океан
Мелкие жёлто-зелёные неподвижные клетки изучали давно и относили к желтозелёным водорослям (Xanthophyceae). На вид отличить их почти невозможно: круглая или овальная клетка с пластидой и каплей масла. Систематику таких организмов строили по форме клетки, а форм у них немного.
Положение изменила электронная микроскопия. В 1970 году Д. Хибберд и Г. Лидейл показали, что у части организмов совсем иначе устроена подвижная клетка, и описали новый класс [5]. В 1981 году Д. Хибберд уточнил систематику обоих классов и их названия [9]. Туда же позднее отнесли и наннохлоропсис: род из морского пикопланктона, который раньше считали зелёной водорослью.
Но и эта работа не завершена. В 2012 году П. Пршибыл и соавторы изучили культуру Trachydiscus minutus, которую считали желтозелёной водорослью из порядка Mischococcales. У неё нашли не известные прежде зооспоры, пигменты без хлорофилла c и строение пластиды, характерное для эустигматофитов. Анализ гена 18S рРНК поместил её в новую глубокую ветвь класса [2]. Значит, некоторые эустигматофиты и сейчас могут числиться среди желтозелёных под старыми названиями. Подробнее об этих соседях рассказано в статье «Желтозелёные водоросли».
3. Место в системе
Эустигматофиты относятся к охрофитам, а те — к страменопилам, то есть эти водоросли ближе к диатомеям и бурым водорослям, чем к зелёным, на которые они похожи. Сравнение белков, закодированных в пластидах, объединило их с золотистыми водорослями в группу Limnista [10]. Об этой большой линии рассказано в статье «Охрофиты».
- Актинофриды — бесцветные солнечники
- Охрофиты — пластида красного происхождения в четырёх мембранах
- Диатомисты (Diatomista) — порядок отделения четырёх групп (диатомовые и болидофиты, диктиохофиты, пелагофиты и пингвиофиты) не установлен
- Khakista (болидофиты и диатомовые) — кремнёвые покровы диатомей и пармалей
- Диатомовые — кремнёвый панцирь из двух створок
- Болидофиты — жгутиконосцы и пармалеи
- Диктиохофиты — силикофлагелляты, пединеллы
- Пелагофиты — мельчайший планктон
- Пингвиофиты — богаты омега-3 кислотами
- Хризисты (Chrysista) — порядок отделения трёх групп (золотистые, эустигматофиты и рафидофиты и PX-клада) не установлен
- Золотистые — динобрион, синура
- Эустигматофиты — наннохлоропсис
- Рафидофиты — хаттонелла
- PX-клада — ветвь бурых и желтозелёных (PX-клада); порядок отделения трёх групп (бурые, желтозелёные и феотамниофиты и другие мелкие классы) не установлен
- Бурые — многоклеточные, до 45 м
- Желтозелёные — вошерия, ботридий
Почему группу так трудно изучать
Клетки большинства видов мелкие и похожи друг на друга. В световой микроскоп видна лишь округлая клетка с пластидой и каплями масла. Надёжно определить класс можно только по электронной микроскопии, составу пигментов или последовательностям генов, а всё это требует чистой культуры или молекулярных методов. Поэтому неудивительно, что многие виды долго числились среди желтозелёных [2]. К тому же признаки зооспор нельзя изучить, если вид образует их редко или только в особых условиях [2]. Вероятно, в коллекциях культур и старых определителях под чужими названиями ещё скрываются эустигматофиты [4].
Две главные ветви
Внутри класса выделяют две глубоко разошедшиеся ветви. Первая — порядок Eustigmatales, куда входят семейства Monodopsidaceae (в том числе Monodopsis, Nannochloropsis, Microchloropsis), Chlorobotryaceae и Neomonodontaceae, а также род Paraeustigmatos. Вторая — клада Goniochloridales с родом Pseudostaurastrum и несколькими пока не названными группами [11][6].
В 2015 году выяснилось, что род Nannochloropsis в прежнем понимании неоднороден, и часть видов перенесли в новый род Microchloropsis [12]. Поэтому в старых статьях под названием Nannochloropsis gaditana и N. salina описаны водоросли, которые теперь относят к другому роду.
Кто есть кто
| Род | Где живёт | Чем известен |
|---|---|---|
| Nannochloropsis | море, солоноватая вода | корм для коловраток, масло, омега-3 |
| Microchloropsis | море | отделён от наннохлоропсиса в 2015 году; модель для получения масла |
| Monodopsis | пресная вода, почва | оперон из шести бактериальных генов в пластиде |
| Vischeria | почва, биологические корки | масло, оперон в пластиде, необычные тРНК в митохондриях |
| Characiopsis | пресная вода | клетка на ножке; род оказался сборным |
| Trachydiscus | пресная вода | прежде считался желтозелёной водорослью; симбионт-риккетсия |
| Pseudostaurastrum | пресная вода | ветвь Goniochloridales, клетка неправильной угловатой формы |
Трудности с названиями
В 2020 году Р. Амарал и соавторы занялись одной небольшой группой, которую знали как группу Pseudellipsoidion. Они выделили новое семейство и три новых рода. Заодно удалось решить запутанный вопрос об одном виде, описанном как Monodus ovalis и позже переносившемся из рода в род. Род Characiopsis оказался полифилетическим: сходные клетки с ножкой относятся к разным ветвям. Общий признак нового семейства — отсутствие пиреноида, и это помогает отличать его от внешне похожих, но неродственных форм [4]. История показывает, что внешнее сходство мелких клеток мало говорит о родстве.
Самая подробная на сегодня картина получена в 2026 году. М. Рихтарж и соавторы добавили 51 новый геном органоидов, и древо класса получило надёжную поддержку [6].
| Признак | Эустигматофиты | Желтозелёные | Зелёные (хлорелла) |
|---|---|---|---|
| Хлорофиллы | только a | a, c | a, b |
| Главные каротиноиды | виолаксантин, вошериаксантин | диадиноксантин и другие | лютеин и другие |
| Мембраны пластиды | четыре | четыре | две |
| Связь пластиды с оболочкой ядра | нет | обычно есть | нет |
| Опоясывающая ламелла | нет | есть | нет |
| Глазок у зооспоры | вне пластиды | в пластиде | в пластиде |
| Крахмал | нет | нет | есть |
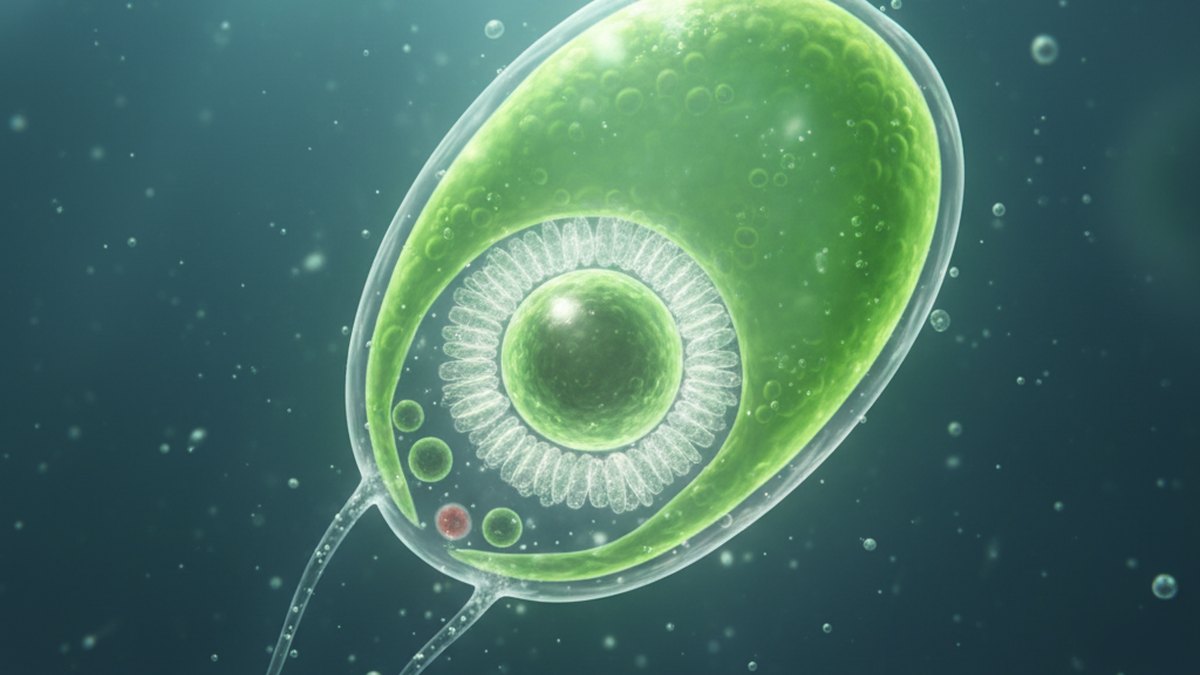
4. Клетка
- Хлорофиллытолько a
- Каротиноидывиолаксантин, вошериаксантин
- Мембранычетыре
- Связь с оболочкой ядранет
- Опоясывающая ламелланет
- Глазокв цитоплазме, вне пластиды
- Запасмасло в каплях
- Половой процессне описан
Обычная вегетативная клетка эустигматофита неподвижна и покрыта стенкой. Размеры различаются: у наннохлоропсиса клетка относится к пикопланктону, то есть имеет диаметр около 2–3 мкм, а у пресноводных и почвенных форм она крупнее [13][4].
Пластида
Пластида красного происхождения окружена четырьмя мембранами, но устроена иначе, чем у большинства охрофитов. У неё нет соединения с оболочкой ядра, а также нет опоясывающей ламеллы — тилакоида, идущего вдоль края пластиды [2]. У бурых и золотистых водорослей оба этих признака обычны. Пиреноид у одних видов есть, а у других нет: например, его нет у наннохлоропсиса и у всех изученных представителей семейства Neomonodontaceae [13][4].
Масляные капли и запасы
В цитоплазме многих видов лежат заметные капли масла. Как они образуются, подробно прослежено в работе о Trachydiscus minutus [2]. Среди запасных углеводов генетические данные указывают на хризоламинарин: у наннохлоропсиса найден набор ферментов, способных расщеплять его и, по мнению авторов, перенаправлять углерод на синтез масла [7].
Иногда в клетках описывают также красновато-коричневую глобулу и пузырьки со слоистым содержимым. Эти структуры считаются особенностью класса, а их функция неясна [14].
Подвижная клетка
Зооспоры есть не у всех видов и часто образуются только в определённых условиях. У Trachydiscus minutus их образование вызывала темнота, подавлял свет, и зависело оно от температуры. Такая зооспора несёт один жгутик с мастигонемами и вздутие у его основания, а глазка у неё нет [2]. У других видов есть и второй, короткий жгутик, а глазок, давший название классу, лежит в цитоплазме на переднем конце клетки [5][14]. Многие виды, включая наннохлоропсис, зооспор вообще не образуют [14].
Размножение
Обычно клетка размножается бесполым путём, образуя внутри материнской клетки автоспоры или зооспоры. Половой процесс в этом классе не описан [14]. Клетки наннохлоропсиса, по данным генетических опытов, гаплоидны [15]. Это важно для биотехнологии: мутация в единственной копии гена сразу проявляется.
5. Как собирать свет только с хлорофиллом a
У большинства охрофитов светособирающие белки несут хлорофиллы a и c и каротиноид фукоксантин. Он поглощает сине-зелёный свет и хорошо передаёт энергию хлорофиллу, потому что в его молекуле есть карбонильная группа. Такая группа, как считалось, важна для передачи энергии у морских водорослей.
У наннохлоропсиса всё иначе. Его светособирающий белок называют виолаксантин-хлорофилл a-белком (VCP). Он содержит только хлорофилл a и связывает виолаксантин, вошериаксантин и эфир вошериаксантина. В молекулах этих каротиноидов карбонильной группы нет. Тем не менее общая эффективность передачи энергии от каротиноидов к хлорофиллу превышает 90 %. Авторы работы назвали это первым примером такого комплекса [3].
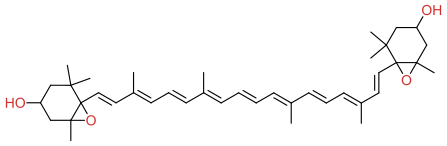
Что значит «передача энергии»? Молекула пигмента поглощает квант света и переходит в возбуждённое состояние. Эта энергия может перейти к соседнему хлорофиллу, если он находится очень близко. Передача идёт за малые доли наносекунды и конкурирует с потерей энергии в виде тепла. Каротиноид обладает несколькими возбуждёнными состояниями, и разные пути передачи работают с разной эффективностью. В VCP выделяются две группы каротиноидов: «синие», которые поглощают примерно до 480 нм, и «красные», поглощение которых простирается примерно до 530 нм. Основной путь у обеих групп начинается с более высокого возбуждённого состояния, но второй путь хорошо работает только у «красных» [3]. Иначе говоря, белок настраивает одни и те же молекулы так, что они поглощают свет в разных участках спектра. Это расширяет полезный диапазон света для клетки без хлорофилла c.
Важная деталь: у растений виолаксантин участвует прежде всего в защите от избытка света. На ярком свету он превращается в зеаксантин, и лишняя энергия рассеивается в виде тепла. Этот процесс называют виолаксантиновым циклом [16]. У эустигматофитов та же молекула работает ещё и как главный сборщик света. Значит, один и тот же пигмент может выполнять в разных организмах разные функции.
Ещё одна новость связана с присоединением ацетильных групп к ксантофиллам. За него отвечает фермент ацетилтрансфераза XACT. Выключение его гена у Nannochloropsis oceanica и у диатомеи полностью прекращает ацетилирование ксантофиллов. Значит, этот шаг объединяет разные группы водорослей с разными пигментами [17].
Необычна и дальнейшая судьба энергии. Фотосистема I наннохлоропсиса связана со светособирающим комплексом VCP. Препринт 2026 года описывает её строение вместе с ферментом, образующим НАДФН; авторы связывают эту близость с повышенной активностью линейного транспорта электронов у этого вида [18].
6. Стенка, похожая на кутикулу
Клетка наннохлоропсиса очень прочная, и это мешает извлекать из неё масло. В 2014 году М. Шольц и соавторы разобрали её стенку. Она оказалась двуслойной. Внутренний слой состоит из целлюлозы и составляет около 75 % массы стенки. Снаружи лежит гидрофобный слой альгенана [19].
Альгенан — очень устойчивый биополимер. У наннохлоропсиса он построен из длинных неразветвлённых насыщенных углеводородных цепей, соединённых простыми эфирными связями. По строению он близок к кутану сосудистых растений [19]. Это хорошая иллюстрация конвергенции: одноклеточная морская водоросль и наземное растение пришли к сходному решению задачи защиты поверхности.
Химически такая стенка напоминает пластик. Простые эфирные связи C–O–C и насыщенные цепи почти не поддаются действию большинства ферментов и растворителей. Поэтому альгенан долго сохраняется и в осадках. Для биотехнолога это проблема: прежде чем получить масло, клетку нужно разрушить, а это один из дорогих шагов производства.
Интересно, что обработка очищенных стенок целлюлазой даёт почти чистый альгенан без жёстких реактивов, которые использовались раньше [19]. Значит, зная устройство стенки, можно подобрать более мягкий способ работы с ней.
7. Концентрирование CO₂ без пиреноида
Водорослям в воде не хватает растворённого углекислого газа. Обычно их выручает механизм концентрирования CO₂, а его центр — пиреноид, скопление рубиско (подробнее — в статье «Пиреноид»). Но у наннохлоропсиса пиреноида нет. Значит ли это, что механизма тоже нет?
В 2017 году К. Джи и К. Нийоги ответили на этот вопрос. Они нашли у Nannochloropsis oceanica фермент карбоангидразу CAH1 и получили мутант с нарушенным геном. Такой мутант плохо рос и фотосинтезировал при обычном содержании CO₂ в воздухе. Значит, механизм концентрирования есть и он необходим. Количество этого фермента зависит от содержания неорганического углерода снаружи, а работает он в просвете эндоплазматической сети вокруг пластиды [13].
Это место особенно интересно. Вторичная пластида окружена дополнительной наружной мембраной, и между мембранами есть отсеки, которых нет у зелёных водорослей. Как считают авторы, такой механизм может быть простым, но эффективным [13]. Вполне возможно, что в мелкой клетке диаметром 2–3 мкм с большим отношением поверхности к объёму пиреноид просто менее важен, хотя это ещё нужно проверять.
8. Наннохлоропсис и масло
Промышленность заинтересовалась этим родом по нескольким причинам. Клетки быстро растут, выдерживают широкий диапазон условий и образуют много запасного масла и ценной эйкозапентаеновой кислоты [7]. Работа 2026 года называет наннохлоропсис одной из трёх главных платформ микроводорослей и наиболее близкой к производству [8].
Почему выгодно быть маленьким
Наннохлоропсис относится к пикопланктону: его диаметр около 2–3 мкм [13]. У шара отношение площади поверхности к объёму равно 6/d, где d — диаметр. При диаметре 2,5 мкм получается 2,4 мкм⁻¹, а при диаметре 10 мкм — только 0,6 мкм⁻¹. Значит, на единицу объёма клетка в 2,5 мкм имеет вчетверо больше поверхности. Минеральные вещества и углекислый газ поступают через поверхность, поэтому мелкая клетка легче снабжает себя при их малых концентрациях. Такие клетки к тому же медленнее тонут и быстро делятся.
Но у малого размера есть и обратная сторона. Для промышленности очень мелкие клетки трудно отделить от воды: они плохо оседают и забивают фильтры, поэтому на сбор урожая уходит заметная часть затрат. Кроме того, в открытых бассейнах такие клетки легко поедают мелкие животные и другие протисты, и культура может быстро погибнуть.
Что происходит при недостатке азота
Лучше всего масло накапливается при азотном голодании. Азот нужен для белков и нуклеиновых кислот, а в жирных кислотах его нет. Рост прекращается, а фотосинтез ещё какое-то время идёт, и углерод направляется в запас. Но клетки при этом перестают размножаться, поэтому общая продуктивность падает [20]. Это главное противоречие всего производства масла из водорослей.
Малый геном с большой историей
Геном N. gaditana составляет около 29 млн пар нуклеотидов и содержит 9052 гена [21]. Для эукариота это мало. Но разнообразие внутри рода велико. Сравнение шести штаммов пяти видов выявило небольшое общее ядро примерно из 2700 генов и общий набор более чем из 38 000 генов [7]. Другими словами, большая часть генов есть не у всех и различается от вида к виду.
Особенно показательна история генов диацилглицеролацилтрансфераз (DGAT) — ферментов, завершающих синтез масла. В каждом штамме их одиннадцать, и они, вероятно, происходят из трёх древних геномов: хозяина при вторичном эндосимбиозе, поглощённой зелёной и поглощённой красной водорослей. В большинстве узлов синтеза липидов авторы находят следы горизонтального переноса [7]. Способность запасать много масла складывалась, таким образом, из частей разного происхождения.
Вывод о поглощённой зелёной водоросли спорен: как обсуждалось в статье «Диатомовые водоросли», такие выводы зависят от того, какие организмы включены в сравнение.
Бассейн или закрытый реактор
Выращивают водоросли двумя способами. В открытом бассейне дешевле, но трудно поддерживать постоянные условия, вода испаряется, а в культуру попадают посторонние организмы. В закрытых реакторах условия намного лучше, однако такие установки дороги и требуют охлаждения и энергии на перемешивание. Для кормов и пищевых продуктов разумна более высокая цена, а для топлива она пока слишком велика.
Как масло становится топливом
Запасное масло — это триацилглицерины, сложные эфиры глицерина и трёх жирных кислот. Такое масло слишком вязкое для двигателя. Поэтому его обрабатывают метанолом в присутствии катализатора. Реакцию называют переэтерификацией, а метиловые эфиры жирных кислот и есть биодизель:
триацилглицерин + 3 CH₃OH → глицерин + 3 метиловых эфира жирных кислот
Для топлива лучше подходят насыщенные и мононенасыщенные кислоты, потому что полиненасыщенные быстрее окисляются. У наннохлоропсиса запасное масло в основном содержит пальмитиновую и пальмитолеиновую кислоты, поэтому он подходит для этой задачи лучше многих водорослей. Но при нынешней стоимости выращивания и очистки такое топливо дороже нефтяного. Поэтому внимание всё больше привлекают ценные продукты, такие как омега-3 кислоты [8].
9. Как редактировать геном ради масла
Замена гена по точному адресу
В клетке есть система гомологичной рекомбинации: чужой участок ДНК может заменить участок с похожими концами. У большинства эукариотических водорослей это почти не работает, и новая ДНК встраивается куда попало. В 2011 году О. Килиан и соавторы показали, что у наннохлоропсиса такая рекомбинация идёт очень эффективно. Они выключили гены нитратредуктазы и нитритредуктазы, и клетки перестали расти на нитрате и нитрите [15].
Такой опыт показывает логику метаболического пути. Нитрат NO₃⁻ сначала восстанавливается до нитрита NO₂⁻, а затем до аммония. Если сломать первую ступень, нитрат становится бесполезным, но нитрит ещё годится. Если сломать вторую, не годятся оба. Если результат совпал с этой схемой, значит, выключены нужные гены.
Почему этому придают такое значение? У многих водорослей учёные могут вставить новый ген только в случайное место генома, и результат трудно предсказать. Если же работает гомологичная рекомбинация, можно заменить именно нужный ген и сравнить мутанта с исходным штаммом. К тому же клетка наннохлоропсиса гаплоидна [15]: у неё нет второй копии, которая могла бы скрыть результат выключения. Всё это сделало его одним из самых удобных объектов генетики среди морских водорослей.
Система CRISPR-Cas9 работает иначе. Короткая направляющая РНК приводит фермент Cas9 к нужному участку ДНК, и фермент разрезает обе цепи. Клетка чинит разрез, и при этом ген часто выходит из строя. Метод позволяет быстро проверить сразу много генов.
Как удвоить масло, не остановив рост
В 2017 году И. Аджави и соавторы нашли решение главного противоречия. С помощью CRISPR-Cas9 они выключали по одному регуляторные гены, активность которых менялась при азотном голодании, и проверили 18 из 20 кандидатов. Выключение одного гена из семейства Zn(II)₂Cys₆ увеличило долю всего углерода, идущего в липиды, с 20 % до 40–55 % при обилии питательных веществ. Но такие мутанты плохо росли [20].
Решением стало не полное выключение, а ослабление работы гена. Такие штаммы давали около 5,0 г липидов на квадратный метр в сутки против примерно 2,5 г у исходного, а рост почти не страдал [20]. Это хороший урок: регулятор нередко важнее отдельного фермента, а точный уровень работы гена может быть важнее его полного включения или выключения.
Но до практического применения ещё далеко. В обзоре 2026 года перечислены главные препятствия: неустойчивая работа встроенных генов, плохая переносимость генетических элементов между видами и то, что поведение штамма в лаборатории часто не совпадает с его поведением в производстве [8].
10. Омега-3 и корм для рыб
Эйкозапентаеновая кислота (ЭПК) — полиненасыщенная кислота с двадцатью атомами углерода и пятью двойными связями. Она относится к омега-3 кислотам: первая двойная связь расположена у третьего атома углерода, если считать с конца цепи. Человек и большинство рыб образуют её плохо, поэтому получают с пищей, а рыбы, в свою очередь, получают её от водорослей через пищевую цепь.
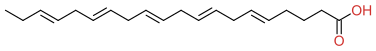
Наннохлоропсис образует много этой кислоты [7]. На этом основано одно из его главных применений: корм для коловраток. Коловраток выращивают в рыбных хозяйствах как первую живую пищу для мальков морских рыб, и наннохлоропсис часто служит стандартным кормом в таких опытах [22]. Его также используют для обогащения живого корма личинок пресноводных рыб. В сравнении на личинках судака в одном ряду с ним проверяли и Trachydiscus minutus, другого эустигматофита [23].
Масло и мембраны — разные задачи
Важно различать два вида липидов. ЭПК у наннохлоропсиса находится в основном в полярных липидах мембран, а запасное масло содержит более короткие и менее ненасыщенные кислоты. Поэтому условия, в которых накапливается больше всего масла, не обязательно лучшие для получения ЭПК. Это объясняет, почему одна и та же культура выращивается по-разному в зависимости от цели.
Полиненасыщенные кислоты важны для самой клетки: двойные связи цис-конфигурации создают изгибы цепей, и мембрана остаётся жидкой при низких температурах. В промышленности полиненасыщенность создаёт другую трудность: такие кислоты быстро окисляются кислородом воздуха, и продукт нужно защищать при хранении.
Другие эустигматофиты
Биотехнология не ограничивается наннохлоропсисом. Vischeria и Trachydiscus живут в других условиях и тоже накапливают много масла. Например, Vischeria sp. WL1, выделенная из биологической почвенной корки, переносит умеренное засоление и считается кандидатом для получения биотоплива [24]. Широкий выбор видов из суши и пресной воды только начинают исследовать.
11. Бактериальные гены в пластиде и симбионт-риккетсия
Обычно гены пластид только теряются: они исчезают или переходят в ядро. Приобретение новых генов от посторонних организмов для пластид считается редким. Поэтому работа Т. Юрченко и соавторов 2016 года привлекла большое внимание.
Шесть бактериальных генов
В геномах пластид Monodopsis и Vischeria нашёлся кластер из шести генов. Они, вероятно, получены от бактерии из группы Bacteroidetes и образуют оперон, похожий на те, что есть у разных бактерий. Анализ белков позволил предположить, что это ферменты пути, синтезирующего вещество на основе изопреноида и циклитола. Возможно, это антимикробное или защитное вещество, но его ещё никто не выделил. Авторы назвали этот случай первым описанием того, как горизонтальный перенос в геном пластиды расширил её обменные возможности [25]. Этот оперон есть у всех пяти изученных штаммов Vischeria [24].
Риккетсия внутри водоросли
Продолжение оказалось ещё необычнее. В 2018 году в клетках нескольких далёких друг от друга эустигматофитов нашли внутриклеточную бактерию, новый род Candidatus Phycorickettsia. Риккетсии — внутриклеточные бактерии, известные прежде всего как возбудители болезней животных и человека; у водорослей их находили, но только у зелёных. Геном этого симбионта лишён ряда компонентов дыхательной цепи и пути синтеза гема. Значит, такая бактерия зависит от клетки-хозяина [26].
И главное: у этой бактерии есть тот самый оперон из шести генов, причём очень близкий к оперону из пластид эустигматофитов. Отсюда вывод: на ранних этапах эволюции класса гены передались между предками симбионта и водоросли. Авторы предполагают, что оперон играет важную роль в заражении, а союз этих организмов длится очень давно [26].
Бактерию обнаружили сразу несколькими способами: по её гену 16S рРНК с помощью ПЦР, флуоресцентной гибридизацией и электронной микроскопией клеток Trachydiscus minutus и Pseudostaurastrum. Гибридизация показывает, что сигнал действительно находится внутри клетки, а не в постороннем загрязнении [26]. Биологическая роль такого союза неизвестна: непонятно, вреден ли симбионт для водоросли. Но случай показывает, насколько сложными бывают отношения в клетке, где встречаются хозяин, бывшая красная водоросль и бактерия.
12. «Тёмная материя» митохондрий
В 2026 году вышла самая большая работа об органоидах этого класса. М. Рихтарж и соавторы прочитали 51 геном органоидов и получили для сравнения 42 штамма с прочитанными геномами и пластиды, и митохондрии [6]. Результаты для двух органоидов оказались противоположными.
Геномы пластид очень устойчивы: состав генов почти одинаков, с небольшими различиями из-за редких потерь и приобретений. Геномы митохондрий устроены иначе: неизменное ядро генов и сильно различающаяся оболочка из дополнительных генов. Два гена, считавшиеся уникальными для эустигматофитов (orfX и orfY), оказались сильно изменёнными генами рибосомных белков rps4 и rps1 [6].
Самое интересное — пять групп совершенно неизвестных генов, которые появились, вероятно, у предка всего класса, но сейчас встречаются пятнами. Таких генов нет нигде вне этой группы. По предсказанию, они кодируют белки, многократно пронизывающие мембрану, с растворимым участком на конце. Что они делают, никто не знает. Кроме того, у рода Vischeria группа необычных тРНК, по-видимому, стала выполнять задачу, не связанную с синтезом белка [6]. Авторы называют это взглядом на «тёмную материю» биологии митохондрий.
Как работают такие сравнения? Если ген есть у далёких представителей класса, он, вероятно, был уже у их общего предка. Если при этом его нет у некоторых потомков, значит, он был потерян. Именно такой пятнистый набор и наблюдается. Ген orfX возник при удвоении гена рибосомного белка, а orfY — ещё один ген рибосомного белка, так сильно изменившийся, что без большого набора геномов его родство установить не удавалось.
Почему такие находки важны для школьника? В учебнике митохондрия выглядит стандартным органоидом. Но разнообразие её генома показывает, что мы далеко не всё знаем даже о самых известных частях клетки.
13. Термометр древних морей
Температура поверхности моря в прошлом — одна из главных величин для понимания климата. Прямых измерений за миллионы лет нет, поэтому её восстанавливают по косвенным показателям: отношениям изотопов, составу раковин, содержанию особых молекул.
Длинные диолы
Длинноцепочечные диолы — это спирты с длинной цепью и двумя гидроксильными группами. Одна группа находится на конце цепи, вторая примерно в середине. Например, C₃₀ 1,15-диол содержит 30 атомов углерода и две группы OH при первом и пятнадцатом атомах.

Такие молекулы находят в морской воде и осадках повсеместно. В 2012 году С. Рампен и соавторы заметили, что соотношение разных диолов связано с температурой поверхности. На этом основан индекс длинноцепочечных диолов (LDI) [27]:
LDI = [C₃₀ 1,15-диол] / ([C₂₈ 1,13-диол] + [C₃₀ 1,13-диол] + [C₃₀ 1,15-диол])
Чем теплее вода, тем больше в смеси C₃₀ 1,15-диола и тем выше индекс. Такой приём похож на старый термометр по алкенонам: организм меняет состав липидов в зависимости от температуры, а мы читаем это по осадку. Почему состав меняется с температурой, точно не установлено; возможно, это связано со свойствами клеточных покровов.
Как измеряют диолы
Сначала из осадка или взвеси в воде растворителем извлекают липиды. Смесь разделяют хроматографией, а вещества определяют с помощью масс-спектрометра. Гидроксильные группы при этом часто заранее превращают в менее полярные производные, чтобы молекулы лучше проходили через колонку. Затем по площадям пиков рассчитывают соотношение диолов. Важно, что для индекса нужны относительные количества, а не абсолютные: это уменьшает влияние потерь при выделении.
Но как проверить, что показатель верен? Для этого поверхностные осадки разных районов сравнивают с измеренной температурой воды над ними [27] [1]. Так получают калибровку. Затем её применяют к древним слоям, для которых прямых измерений нет. Такой подход предполагает, что организмы прошлого реагировали на температуру примерно так же, как современные, и для очень старых осадков это проверить трудно. В образцах возрастом до 74 млн лет на индекс, вероятно, уже влияли другие источники диолов [1].
Загадка источника
Но кто образует эти диолы? Морские виды наннохлоропсиса содержат диолы, но их состав не совпадает с тем, что находят в осадках. Кроме того, сами они не могут объяснить древнейшие диолы, найденные вплоть до мелового периода, в образцах возрастом до 74 млн лет [1].
В 2022 году С. Рампен и соавторы одновременно измерили диолы и последовательности рибосомной РНК в частицах из воды Средиземного моря. Выяснилось, что диолы связаны с особой морской группой эустигматофитов, которая отделилась ещё до разделения всех известных форм класса. Эта группа, судя по ДНК, встречается по всему миру, но живых культур её пока нет [1]. Вероятно, самые распространённые морские эустигматофиты до сих пор никто не держал в лаборатории.
Какую температуру записывает индекс
Индекс особенно тесно связан с температурой самого тёплого месяца, когда перемешанный слой тонок, а солёность и питательные вещества снижены. Это не среднегодовая температура. Авторы предложили расчёт по такой зависимости [1]:
LDI = 0,033 · T − 0,008
Погрешность калибровки составляет 2,4 °C, а применять формулу можно при малой доле C₃₂ 1,15-диола. У метода есть ограничения. В некоторых районах 1,13-диолы вносят диатомеи рода Proboscia, а пресная вода с суши может сместить показатель. Оба влияния можно заметить по другим диолам и учесть [1].
Значение такого показателя в том, что он записывает температуру именно тёплого сезона. Сравнивая его с другими показателями, можно понять, менялись ли сезонные различия, а это важно для предсказания будущего климата.
Что даёт термометр биологии
История с диолами хорошо показывает связь разных наук. Геохимики нашли молекулу и научились использовать её как показатель температуры. Но лишь молекулярная биология смогла указать на производителя. Это важно и практически: зная биологию организма, можно понять, в какое время года и на какой глубине он живёт, а значит, какую именно температуру записывает молекула. Оказалось, что это лето, а не среднее значение за год [1]. Без такого знания восстановленные температуры можно неверно истолковать.
История также напоминает, насколько неполны наши знания о микроскопической жизни в океане. Группа, чьи молекулы встречаются по всему миру и служат инструментом для реконструкции климата, сама известна только по последовательностям ДНК [1].
14. Интересные факты
- Около 2–3 мкм. Клетка наннохлоропсиса относится к пикопланктону [13].
- Более 90 %. Такова эффективность передачи энергии от каротиноидов к хлорофиллу в VCP, хотя карбонильных групп в них нет [3].
- Как у растений. Наружный слой стенки по строению близок к кутану сосудистых растений [19].
- Вдвое больше масла. Ослабление работы одного регуляторного гена удвоило продукцию липидов почти без ущерба для роста [20].
- От 2700 до 38 000. Столько генов составляют общее ядро и полный набор в шести штаммах Nannochloropsis [7].
- Бактериальные гены в пластиде. В пластиде Vischeria и Monodopsis есть оперон из шести генов от бактерий [25].
- Риккетсия в водоросли. Внутри некоторых эустигматофитов живёт родственница возбудителей сыпного тифа [26].
- Термометр с меловых времён. Длинные диолы известны в отложениях вплоть до мелового периода [1].
- Неизвестные производители. Главные источники этих диолов, судя по всему, никто ещё не выращивал в культуре [1].
- Уникальные гены. В митохондриях эустигматофитов есть пять групп генов неизвестного назначения [6].
15. Частые вопросы
Чем эустигматофиты отличаются от зелёных водорослей?
У зелёных водорослей есть хлорофилл b и крахмал, а пластида окружена двумя мембранами. У эустигматофитов из хлорофиллов только a, крахмала нет, а пластида окружена четырьмя мембранами. Они относятся к разным большим ветвям эукариот.
Что такое «морская хлорелла»?
Так нередко называют наннохлоропсис из-за внешнего сходства: мелкие зелёные клетки. К настоящей хлорелле он не относится.
Можно ли их увидеть?
Только под микроскопом, и даже в него различить виды трудно. В природе и в культуре заметна лишь зелёная окраска воды при большой плотности клеток. Отсюда и трудности определения: без ДНК виды часто определить невозможно.
Правда ли, что это топливо будущего?
Пока это преувеличение. Гены и условия выращивания уже позволяют резко увеличить выход масла, но от лаборатории до дешёвого производства далеко [20][8]. Сейчас более реальным выглядит получение кормов и ценных кислот.
Почему масло не хранится в пластиде, как крахмал у зелёных водорослей?
Капли масла у таких водорослей лежат в цитоплазме, а пластида занята фотосинтезом. Масло хранится в виде капель, окружённых одним слоем липидов и белками. Такой запас не влияет на осмотическое давление клетки и содержит много энергии на единицу массы, поэтому он особенно удобен для мелких организмов.
Что такое оперон и почему он необычен для эукариот?
Оперон — это несколько генов, расположенных рядом и работающих вместе под одним управлением. Он типичен для бактерий. Пластида произошла от бактерии, и в её геноме опероны сохранились, поэтому чужой бактериальный оперон мог там работать [25]. В ядре эукариот такая организация генов встречается редко.
Есть ли опасные виды?
Токсичные цветения для этого класса не описаны как заметная проблема. Известных болезней человека они не вызывают. Но группа изучена слабо, и о большинстве её представителей мало что известно.
16. Что пока не решено
- Кто делает морские диолы. Группа определена по ДНК, но живых клеток в культуре нет, и её строение неизвестно [1].
- Что делает оперон из шести генов. Его продукт не выделен, и роль в заражении бактерией — пока гипотеза [25][26].
- Зачем нужны неизвестные гены митохондрий. Назначение пяти групп генов неясно [6].
- Откуда в геноме «зелёные» гены. Вывод о них зависит от выборки организмов [7].
- Как устроен механизм концентрирования CO₂. Известны отдельные компоненты, но вся схема ещё не собрана [13].
- Сколько на самом деле видов. Новые культуры и ДНК из природы показывают намного больше разнообразия, чем описано [6].
17. Что нужно знать для ЕГЭ
Эустигматофиты в школьной программе не встречаются. Но на их примере можно повторить несколько проверяемых тем.
- Фотосинтез. Хлорофилл a есть у всех организмов с кислородным фотосинтезом, а другие пигменты расширяют диапазон поглощаемого света.
- Эндосимбиоз. Пластиды произошли от симбионтов. Четыре мембраны указывают на вторичный эндосимбиоз.
- Цепи питания. Мелкие водоросли служат пищей коловраткам, а те — малькам рыб. Так полезные вещества переходят по цепи питания.
- Биотехнология. Водоросли выращивают в промышленных условиях. Генная инженерия позволяет менять работу отдельных генов.
- Липиды. Жиры — сложные эфиры глицерина и жирных кислот. Ненасыщенные кислоты содержат двойные связи и делают мембрану более жидкой.
- Систематика. Похожие организмы могут быть неродственными, поэтому современная систематика опирается на сравнение ДНК.
Ловушки. 1) «Все зелёные мелкие клетки — зелёные водоросли» — неверно. 2) «Хлорофилл a — единственный пигмент фотосинтеза» — неверно: каротиноиды участвуют в сборе света. 3) «Виолаксантин есть только у растений» — неверно. 4) «Масло в клетке всегда синтезируется при хороших условиях» — наоборот, запас часто растёт при нехватке азота.
18. Для олимпиад
Как отличить мелкую зелёную клетку
| Проверка | Что показывает |
|---|---|
| Реакция с раствором иода | синяя окраска указывает на крахмал (зелёные водоросли) |
| Анализ пигментов | хлорофилл b — зелёные; хлорофилл c — большинство охрофитов; только a и виолаксантин — эустигматофиты |
| Электронная микроскопия | число мембран пластиды, связь с ядром, опоясывающая ламелла |
| Последовательность генов 18S рРНК и rbcL | положение на древе, определение родов |
Количественные ориентиры
- N. gaditana: около 29 млн п. н., 9052 гена [21].
- Nannochloropsis: ядро около 2700 генов, весь набор более 38 000 [7].
- VCP: эффективность передачи энергии более 90 % [3].
- Стенка: целлюлоза около 75 % массы [19].
- Мутант Zn(II)₂Cys₆: 40–55 % углерода в липиды против 20 %; 5,0 г/(м²·сут) против 2,5 [20].
- Формула: LDI = 0,033 · T − 0,008; погрешность 2,4 °C [1].
На что обратить внимание
- Гипотеза о генах проверяется выключением. Если выключить ген и получить предсказанный результат, функция подтверждена [15][13].
- Регулятор и фермент. Изменение одного регуляторного гена может сильнее сместить поток углерода, чем работа с одним ферментом [20].
- Косвенный показатель требует проверки. Для палеотермометра нужно знать источник вещества и сезон его образования [1].
- Горизонтальный перенос в органоид. Обычно перенос идёт из органоида в ядро, но пример с опероном показывает и другое направление [25].
Задания с разбором
Задание 1
Назовите три признака, по которым эустигматофитов отличают от желтозелёных водорослей.
Ответ
1) Из хлорофиллов есть только хлорофилл a, нет хлорофилла c. 2) Главные каротиноиды — виолаксантин и вошериаксантин. 3) Пластида не связана с оболочкой ядра, и нет опоясывающей ламеллы. Кроме того, глазок подвижной клетки лежит вне пластиды, а положение на древе устанавливают сравнением генов.
Задание 2
Почему в клетках наннохлоропсиса при недостатке азота накапливается больше масла, но общая продуктивность производства при этом часто падает?
Ответ
Азот нужен для синтеза белков и нуклеиновых кислот, а в жирных кислотах его нет. Без азота рост и деление останавливаются, а углерод от фотосинтеза направляется в запас. Масла на клетку становится больше, но клетки перестают размножаться, и общего масла с единицы площади может получиться меньше.
Задание 3
Запишите в общем виде реакцию получения биодизеля из масла. Какая группа атомов отличает его от масла? Как называется эта реакция?
Ответ
Триацилглицерин + 3 CH₃OH → глицерин + 3 RCOOCH₃. Это переэтерификация. В масле остатки жирных кислот связаны с глицерином, а в биодизеле — с метанолом: образуются метиловые эфиры.
Задание 4
У мутанта Nannochloropsis выключен ген нитратредуктазы, а у другого — ген нитритредуктазы. Предскажите, как они будут расти на средах с нитратом, нитритом и солью аммония. Ответ поясните.
Ответ
Цепочка: нитрат → нитрит → аммоний. Первый мутант не растёт на нитрате, но растёт на нитрите и аммонии. Второй не растёт на нитрате и нитрите, но растёт на аммонии: аммоний усваивается после обоих этапов.
Задание 5
Почему в промышленности не всегда стремятся полностью выключить ген-регулятор, ограничивающий синтез масла?
Ответ
Регулятор управляет многими процессами, поэтому его полная утрата может вредить клетке. В опыте мутанты с выключенным геном давали больше масла на клетку, но плохо росли. При ослаблении работы гена выход масла удвоился, а рост почти не пострадал.
Задание 6
Объясните, почему считают, что у наннохлоропсиса действует механизм концентрирования CO₂, хотя пиреноида у него нет.
Ответ
Мутант с нарушенным геном карбоангидразы CAH1 плохо растёт и фотосинтезирует при обычном содержании CO₂. Значит, этот фермент нужен для снабжения рубиско углеродом. Количество фермента зависит от содержания неорганического углерода снаружи. Всё это характерно для механизма концентрирования CO₂.
Задание 7
Масса наружного слоя стенки наннохлоропсиса составляет меньшую часть массы всей стенки, но именно он мешает выделять масло. Почему? Как устроен этот слой?
Ответ
Это слой альгенана из длинных насыщенных углеводородных цепей, соединённых простыми эфирными связями. Он гидрофобен и очень устойчив к ферментам и растворителям, поэтому трудно разрушить клетку и извлечь масло. Внутренний целлюлозный слой разрушить намного проще.
Задание 8
В клетке эустигматофита нашли оперон из шести генов, близкий к оперону бактерий. Какие наблюдения указывают на горизонтальный перенос? Какое другое объяснение следует исключить?
Ответ
На перенос указывают близость к бактериальным генам, организация в виде оперона и неравномерное распространение среди родственников. Нужно исключить загрязнение бактериальной ДНК: оперон должен быть частью собранного генома пластиды. Также следует исключить унаследование от общего предка, для чего сравнивают родословную генов и организмов.
Задание 9
Рассчитайте молярную массу эйкозапентаеновой кислоты C₂₀H₃₀O₂ и найдите, какая масса иода может присоединиться к 1 г этой кислоты (считайте, что реагируют все пять двойных связей).
Ответ
M = 20 · 12,01 + 30 · 1,008 + 2 · 16,00 = 302,4 г/моль. 1 г кислоты — это 1 / 302,4 = 0,00331 моль. На пять двойных связей нужно 5 · 0,00331 = 0,01654 моль I₂. M(I₂) = 253,8 г/моль, поэтому масса иода равна 0,01654 · 253,8 ≈ 4,2 г.
Задание 10 (олимпиадное)
Выход липидов у исходного штамма составил 2,5 г/(м²·сут), а у улучшенного 5,0 г/(м²·сут). (а) Сколько липидов даст бассейн площадью 1 га за 100 суток в каждом случае? (б) Считая плотность масла равной 0,9 г/мл, рассчитайте объём масла в литрах для улучшенного штамма. (в) Почему оценка завышена?
Ответ
(а) 1 га = 10 000 м². Исходный штамм: 2,5 · 10 000 · 100 = 2,5 · 10⁶ г = 2,5 т. Улучшенный: 5,0 т.
(б) 5 · 10⁶ г / 0,9 г/мл ≈ 5,6 · 10⁶ мл ≈ 5600 л.
(в) Это условия опыта с постоянным поддержанием культуры. На больших площадях мешают погода, заражение и другие организмы. Кроме того, не все липиды — запасное масло, а при выделении и очистке есть потери.
Задание 11 (олимпиадное)
По формуле LDI = 0,033 · T − 0,008 рассчитайте температуру поверхности для образцов с LDI = 0,70 и LDI = 0,40. (а) Чему равна разница? (б) Какова относительная доля C₃₀ 1,15-диола при LDI = 0,70? (в) Какую именно температуру отражает полученное значение? (г) Почему разницу менее примерно 2,4 °C не следует считать надёжной?
Ответ
T = (LDI + 0,008) / 0,033. При LDI = 0,70: 0,708 / 0,033 ≈ 21,5 °C. При LDI = 0,40: 0,408 / 0,033 ≈ 12,4 °C.
(а) Разница около 9,1 °C.
(б) 70 % суммы трёх диолов, входящих в формулу.
(в) Температуру самого тёплого месяца, а не среднегодовую.
(г) Погрешность калибровки составляет 2,4 °C, поэтому разница такой величины может быть связана со случайными отклонениями.
Задание 12 (олимпиадное)
Почему долгое время считалось, что источник диолов не определён, если сами диолы находили и в культуре наннохлоропсиса? Перечислите проверки, которые позволили бы установить настоящего производителя.
Ответ
Наличие вещества в культуре не доказывает, что этот вид — главный источник в природе. У наннохлоропсиса состав диолов отличается от осадочного, а род слишком молод для меловых находок. Нужно одновременно измерять вещество и ДНК в природных пробах и искать связь их количества; сравнивать состав с составом осадка; получить чистую культуру предполагаемого производителя и показать, что она образует те же вещества в тех же соотношениях; изучить гены синтеза.
Задание 13 (олимпиадное)
У наннохлоропсиса гены одиннадцати DGAT, по данным авторов, происходят из трёх древних геномов. (а) Что это за геномы? (б) Какая другая гипотеза могла бы объяснить появление генов, похожих на гены зелёных водорослей? (в) Как проверить, какая гипотеза лучше?
Ответ
(а) Геном хозяина и геномы поглощённых зелёной и красной водорослей.
(б) Ошибка из-за неполной выборки красных водорослей; горизонтальный перенос от других организмов.
(в) Расширить выборку организмов, особенно красных водорослей и родственных страменопилов; оставить только деревья с надёжной поддержкой; посмотреть, связаны ли гены с одной областью и функцией.
Задание 14 (олимпиадное)
Геном бактерии Ca. Phycorickettsia лишён компонентов дыхательной цепи и пути синтеза гема, а оперон из шести генов встречается и у неё, и в пластидах некоторых эустигматофитов. (а) Что означает потеря таких генов? (б) Как вы объясните близость оперонов? (в) Почему нельзя утверждать, что симбионт полезен водоросли?
Ответ
(а) Бактерия получает часть необходимых веществ от клетки-хозяина и сильно от неё зависит.
(б) Гены передались между предками симбионта и водоросли (авторы считают такой перенос событием ранней эволюции класса).
(в) Сама по себе зависимость бактерии от клетки не показывает, какую пользу или вред получает хозяин. Нужно сравнить рост водоросли с симбионтом и без него в разных условиях.
Задание 15 (олимпиадное)
Считая клетки шарами, сравните наннохлоропсис (диаметр 2,5 мкм) и клетку диаметром 10 мкм. (а) Во сколько раз различается объём? (б) Во сколько раз различается отношение площади поверхности к объёму? (в) Назовите одно преимущество и один недостаток малого размера для организма и для производства.
Ответ
(а) Объём пропорционален кубу диаметра: (10 / 2,5)³ = 4³ = 64 раза.
(б) Отношение равно 6/d: 6 / 2,5 = 2,4 мкм⁻¹ и 6 / 10 = 0,6 мкм⁻¹, то есть в 4 раза больше у мелкой клетки.
(в) Преимущество: при малых концентрациях веществ клетка лучше снабжает себя, потому что на единицу объёма у неё больше поверхности. Недостаток для производства: мелкие клетки трудно отделить от воды, а в открытых бассейнах их легко поедают другие организмы.
Литература
- Rampen S. W., Friedl T., Rybalka N., Thiel V. The Long chain Diol Index: a marine palaeotemperature proxy based on eustigmatophyte lipids that records the warmest seasons // PNAS. 2022. Vol. 119. Art. e2116812119.
- Přibyl P., Eliáš M., Cepák V. et al. Zoosporogenesis, morphology, ultrastructure, pigment composition, and phylogenetic position of Trachydiscus minutus (Eustigmatophyceae, Heterokontophyta) // Journal of Phycology. 2012. Vol. 48. P. 231–242.
- Keşan G., Litvín R., Bína D. et al. Efficient light-harvesting using non-carbonyl carotenoids: energy transfer dynamics in the VCP complex from Nannochloropsis oceanica // Biochimica et Biophysica Acta. 2016. Vol. 1857. P. 370–379.
- Amaral R., Fawley K. P., Němcová Y. et al. Toward modern classification of eustigmatophytes, including the description of Neomonodaceae fam. nov. and three new genera // Journal of Phycology. 2020. Vol. 56. P. 630–648.
- Hibberd D. J., Leedale G. F. Eustigmatophyceae — a new algal class with unique organization of the motile cell // Nature. 1970. Vol. 225. P. 758–760.
- Richtář M., Klapuchová E., Yurchenko T. et al. Insights into the phylogeny and enigmatic mitochondrial biology of eustigmatophyte algae from over 50 newly sequenced organellar genomes // Genome Biology and Evolution. 2026. Vol. 18. Art. evag169.
- Wang D., Ning K., Li J. et al. Nannochloropsis genomes reveal evolution of microalgal oleaginous traits // PLoS Genetics. 2014. Vol. 10. Art. e1004094.
- Liu J. Microalgal synthetic biotechnology: from genetic models to deployable photosynthetic chassis // Research. 2026. Vol. 9. Art. 1449.
- Hibberd D. J. Notes on the taxonomy and nomenclature of the algal classes Eustigmatophyceae and Tribophyceae (synonym Xanthophyceae) // Botanical Journal of the Linnean Society. 1981. Vol. 82. P. 93–119.
- Ševčíková T., Horák A., Klimeš V. et al. Updating algal evolutionary relationships through plastid genome sequencing: did alveolate plastids emerge through endosymbiosis of an ochrophyte? // Scientific Reports. 2015. Vol. 5. Art. 10134.
- Fawley K. P., Eliáš M., Fawley M. W. The diversity and phylogeny of the commercially important algal class Eustigmatophyceae, including the new clade Goniochloridales // Journal of Applied Phycology. 2014. Vol. 26. P. 1773–1782.
- Fawley M. W., Jameson I., Fawley K. P. The phylogeny of the genus Nannochloropsis (Monodopsidaceae, Eustigmatophyceae), with descriptions of N. australis sp. nov. and Microchloropsis gen. nov. // Phycologia. 2015. Vol. 54. P. 545–552.
- Gee C. W., Niyogi K. K. The carbonic anhydrase CAH1 is an essential component of the carbon-concentrating mechanism in Nannochloropsis oceanica // PNAS. 2017. Vol. 114. P. 4537–4542.
- Eliáš M., Amaral R., Fawley K. P. et al. Eustigmatophyceae // Handbook of the Protists / Ed. J. M. Archibald et al. Cham: Springer, 2016. P. 1–39.
- Kilian O., Benemann C. S., Niyogi K. K., Vick B. High-efficiency homologous recombination in the oil-producing alga Nannochloropsis sp. // PNAS. 2011. Vol. 108. P. 21265–21269.
- Santin A., Mezzadrelli E., Perin G., Morosinotto T. Structure and regulation of violaxanthin de-epoxidase, a key enzyme in the photoprotection of photosynthesis // Plant Physiology. 2026. Vol. 201. Art. kiag224.
- Cao T., Bai X., You T. et al. An acetyltransferase family required for biosynthesis of diverse marine carotenoids // PNAS. 2026. Vol. 123. Art. e2525772123.
- Pan X., Qiu Y., Shang H. et al. Structural basis for energy transfer and electron transport in the photosystem I-ferredoxin-NADP⁺ reductase supercomplex from Nannochloropsis oceanica // Research Square. 2026. Препринт. DOI: 10.21203/rs.3.rs-8964687/v1.
- Scholz M. J., Weiss T. L., Jinkerson R. E. et al. Ultrastructure and composition of the Nannochloropsis gaditana cell wall // Eukaryotic Cell. 2014. Vol. 13. P. 1450–1464.
- Ajjawi I., Verruto J., Aqui M. et al. Lipid production in Nannochloropsis gaditana is doubled by decreasing expression of a single transcriptional regulator // Nature Biotechnology. 2017. Vol. 35. P. 647–652.
- Radakovits R., Jinkerson R. E., Fuerstenberg S. I. et al. Draft genome sequence and genetic transformation of the oleaginous alga Nannochloropis gaditana // Nature Communications. 2012. Vol. 3. Art. 686.
- Mandario M., Kozue N., Wassel M. et al. Single initial inoculation of bioflocs maintains water quality in the long-term culture collection of Brachionus plicatilis // Aquaculture International. 2025. Vol. 33. Art. 645.
- Yanes-Roca C., Štěrbová K., Mráz J. et al. Live feed enrichments using microalgae for pikeperch (Sander lucioperca) larval culture // Research Square. 2023. Препринт. DOI: 10.21203/rs.3.rs-3082073/v1.
- Rao X., Liu L., Yuan X. et al. The complete plastid genome sequence of Vischeria sp. WL1 and comparative analysis of plastid genomes among Vischeria strains // Mitochondrial DNA Part A. 2026. Vol. 36. P. 33–39.
- Yurchenko T., Ševčíková T., Strnad H. et al. The plastid genome of some eustigmatophyte algae harbours a bacteria-derived six-gene cluster for biosynthesis of a novel secondary metabolite // Open Biology. 2016. Vol. 6. Art. 160249.
- Yurchenko T., Ševčíková T., Přibyl P. et al. A gene transfer event suggests a long-term partnership between eustigmatophyte algae and a novel lineage of endosymbiotic bacteria // ISME Journal. 2018. Vol. 12. P. 2163–2175.
- Rampen S. W., Willmott V., Kim J.-H. et al. Long chain 1,13- and 1,15-diols as a potential proxy for palaeotemperature reconstruction // Geochimica et Cosmochimica Acta. 2012. Vol. 84. P. 204–216.
Обсуждение
Загружаем обсуждение…