
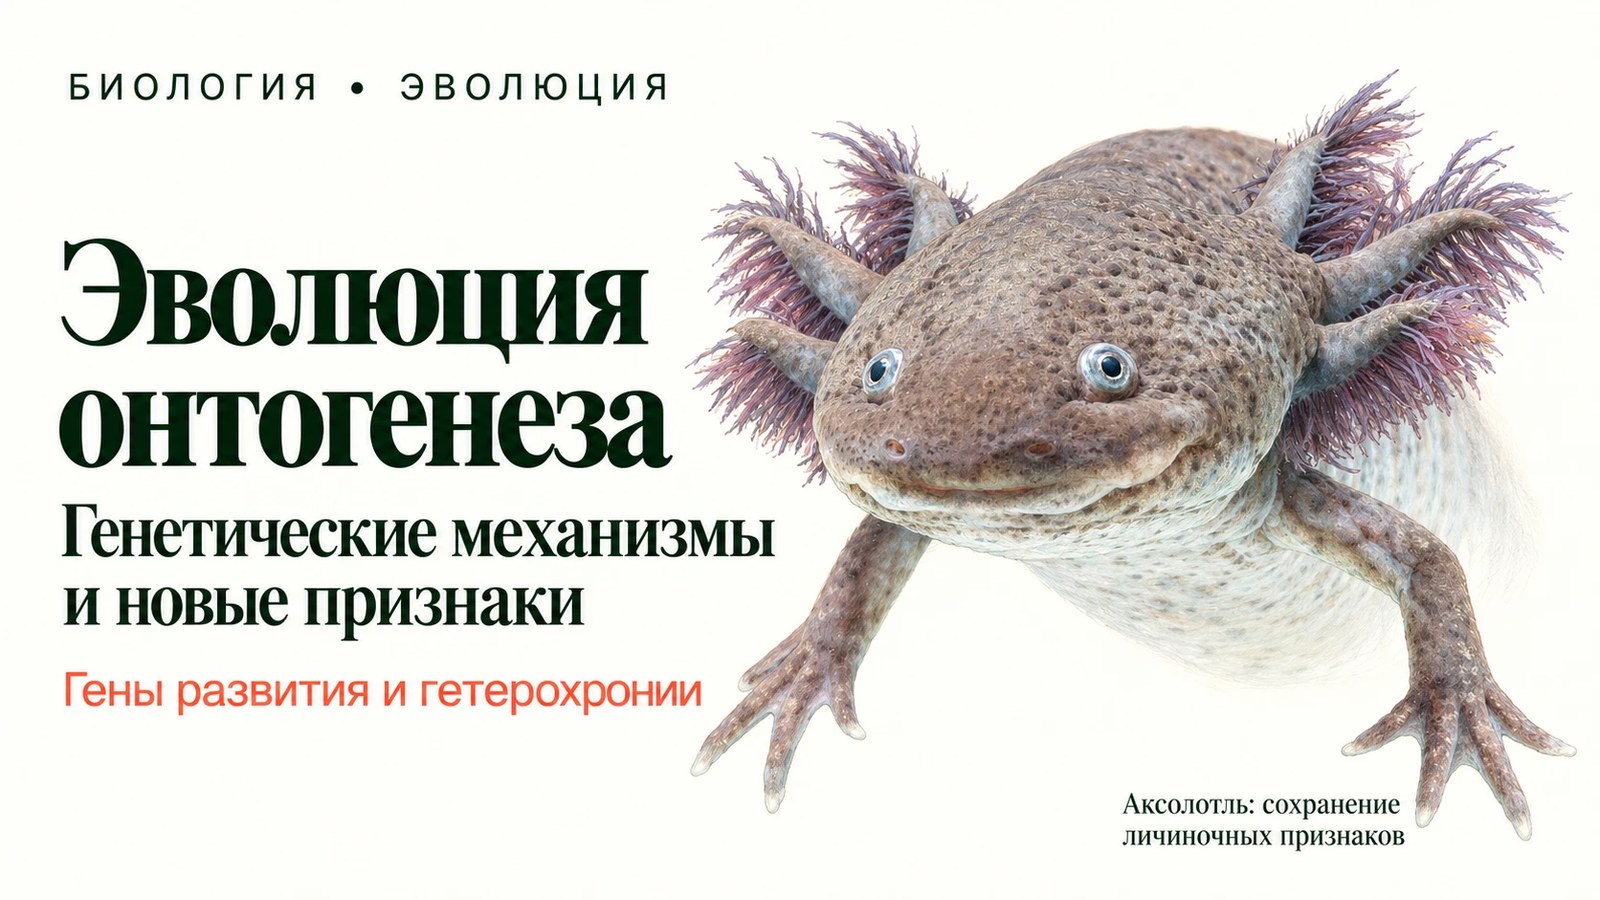
Набор генов у мухи, мыши и человека во многом общий. Родственные гены запускают рост ног у мухи и конечностей у мыши. Ген глаза мыши, перенесённый в муху, вызывает у неё на ноге лишний фасеточный глаз — мушиный, а не мышиный. Отсюда главный вопрос эволюционной биологии развития: если «детали» у животных почти одинаковые, откуда берётся разнообразие форм — от медузы до кита? И как возникает то, чего у предков не было совсем: перо, панцирь черепахи, цветок, крыло летучей мыши?
Ответ, полученный за последние полвека, оказался неожиданным. Новые формы чаще всего возникают не из-за новых генов и не из-за изменения белков, а из-за изменения того, где, когда и сколько работают старые гены. Эволюция переписывает не «детали», а «инструкцию по сборке». В статье — как устроен генетический набор инструментов развития, что такое гены Hox и колинеарность, почему эволюция предпочитает менять энхансеры, какие бывают изменения онтогенеза, как удвоение генов и кооптация создают новшества и как возникли конкретные новшества — от конечностей наземных позвоночных до утраты хвоста у человекообразных обезьян (работа 2024 года).
Это продолжение серии о разделе 6 кодификатора ЕГЭ-2027 (хаб серии). О законах Бэра, биогенетическом законе и эмбриологических доказательствах эволюции — статья «Сравнительно-анатомические, эмбриологические и молекулярные доказательства», о филэмбриогенезах, неотении и удвоениях генома — «Закономерности макроэволюции». В конце — что писать на ЕГЭ, раздел для олимпиад и 15 заданий с разбором.
- Что такое эволюция онтогенеза и эволюционное новшество
- От Бэра к эволюционной биологии развития
- Генетический набор инструментов развития
- Гены Hox и план строения тела
- Глубокая гомология
- Почему эволюция меняет регуляцию генов
- Как меняется онтогенез: время, место, количество, продукт
- Удвоение генов и геномов
- Кооптация: старые гены в новой роли
- Откуда берутся новые гены
- Как возникли известные новшества
- Эволюция развития растений
- Генные сети, ограничения и канализация
- Удивительные факты
- Что пока не решено
- Что писать на ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Что такое эволюция онтогенеза и эволюционное новшество
Онтогенез — индивидуальное развитие организма от зиготы до смерти. Взрослый организм не передаётся по наследству: потомкам передаются гены, а тело каждый раз заново строится в онтогенезе. Поэтому любое наследственное изменение строения — это изменение онтогенеза. Естественный отбор оценивает готовый организм, но материал для отбора поставляют изменения программы развития.
Определения. Эволюционная биология развития (эво-дево, от англ. evolutionary developmental biology) — область биологии, изучающая, как изменения генов, управляющих развитием, приводят к изменению строения организмов в эволюции. Эволюционное новшество — структура или признак, не гомологичный ни одной структуре предков, то есть не являющийся видоизменением уже существовавшего органа. Перо, панцирь черепахи, цветок, глазчатые пятна на крыльях бабочек, плацента — новшества; удлинённая шея жирафа или увеличенный мозг человека — изменения уже имевшихся органов.
Граница между новшеством и видоизменением не всегда резкая. Крыло летучей мыши — видоизменённая передняя конечность, но кожная перепонка между пальцами — новая для млекопитающих структура. Перо возникло из той же закладки кожи, что и чешуя, но устроено принципиально иначе. Поэтому биологи обычно говорят, что новшество — это новый индивидуализированный элемент строения, который развивается и меняется в эволюции как отдельная единица.
Генетика развития ответила на вопрос, из чего строятся новшества. Почти всегда — из старых генов, включённых в новом месте, в новое время или в новой комбинации. Эволюция, по выражению французского биолога Франсуа Жакоба, работает не как инженер, создающий машину по чертежу, а как мастер, который собирает новую вещь из того, что есть под рукой.
От Бэра к эволюционной биологии развития
- 1828К. Бэр: законы зародышевого сходства — общие признаки типа появляются у зародыша раньше частных
- 1866Э. Геккель: биогенетический закон — «онтогенез есть краткое повторение филогенеза»
- 1894У. Бэтсон: гомеозис — превращение одной части тела в другую
- 1939А. Н. Северцов: теория филэмбриогенезов — эволюция идёт через изменения онтогенеза
- 1942К. Уоддингтон: канализация развития и генетическая ассимиляция
- 1946И. И. Шмальгаузен: стабилизирующий отбор и целостность организма в развитии
- 1961Ф. Жакоб и Ж. Моно: регуляция работы генов (оперон)
- 1977С. Гулд: «Онтогенез и филогенез» — гетерохронии; Ф. Жакоб: эволюция собирает новое из готовых деталей
- 1978Э. Льюис: гены комплекса bithorax дрозофилы и их колинеарность
- 1980К. Нюсляйн-Фольхард и Э. Вишаус: гены, размечающие тело зародыша мухи
- 1984открыт гомеобокс — общий участок генов Hox мухи и позвоночных
- 1995ген Pax6 мыши вызывает лишний глаз на ноге мухи; Нобелевская премия Льюису, Нюсляйн-Фольхард и Вишаусу
- 1997Н. Шубин, К. Табин, Ш. Кэрролл: «глубокая гомология»
- 2010колюшки: утрата тазового пояса — удаление одного энхансера гена Pitx1
- 2016энхансер ZRS змей: почему у змей не развиваются конечности
- 2024утрата хвоста у человекообразных — вставка Alu в ген TBXT; геном миксины уточнил удвоения генома позвоночных
- классическая эмбриология
- эволюционная морфология и синтез
- генетика развития
- эволюционная биология развития
Связь развития и эволюции заметили задолго до генетики. В 1828 году Карл Эрнст фон Бэр сформулировал законы зародышевого сходства: у зародыша сначала появляются признаки типа, потом класса, отряда и лишь затем вида. Зародыши позвоночных на ранних стадиях очень похожи, а различия нарастают к концу развития. Эрнст Геккель в 1866 году истолковал это эволюционно: «онтогенез есть краткое и быстрое повторение филогенеза» (биогенетический закон). Сравнивая зародышей, эволюционисты XIX века восстанавливали родство групп.
Закон Геккеля оказался слишком прямолинейным: зародыш не проходит через взрослые стадии предков, а повторяет лишь некоторые черты зародышей предков. Уже в начале XX века английский зоолог Уолтер Гарстанг сформулировал обратную мысль: онтогенез не повторяет филогенез, а создаёт его. Русский морфолог Алексей Николаевич Северцов развил её в теорию филэмбриогенезов: эволюционные изменения возникают как изменения хода онтогенеза — надставки конечных стадий (анаболии), отклонения на средних стадиях (девиации) и изменения самых ранних зачатков (архаллаксисы). Иван Иванович Шмальгаузен (1946) показал, что стабилизирующий отбор поддерживает устойчивость развития, а англичанин Конрад Уоддингтон (1942) назвал это свойство канализацией.
Но в синтетической теории эволюции середины XX века развитие оставалось «чёрным ящиком»: популяционная генетика изучала частоты аллелей, не спрашивая, как гены строят тело. Положение изменилось, когда генетики занялись мутантами дрозофилы, у которых одна часть тела превращается в другую. В 1978 году Эдвард Льюис описал гены комплекса bithorax, определяющие особенности сегментов груди и брюшка мухи, и заметил, что порядок генов в хромосоме совпадает с порядком сегментов. В 1980 году Кристиана Нюсляйн-Фольхард и Эрик Вишаус нашли гены, размечающие тело зародыша мухи на сегменты. В 1984 году две группы обнаружили у генов Hox общий участок — гомеобокс — и сразу нашли такие же гены у лягушки, мыши и человека. Оказалось, что тело очень разных животных размечают родственные гены. В 1995 году Льюис, Нюсляйн-Фольхард и Вишаус получили Нобелевскую премию по физиологии и медицине.
С 1990-х годов эволюционная биология развития стала самостоятельной областью. Американский биолог Шон Кэрролл сформулировал её главную гипотезу: морфологическая эволюция идёт в основном через изменения регуляторных участков генов, а не самих белков. Новые методы — чтение геномов, редактирование генов системой CRISPR, анализ работы генов в отдельных клетках — позволили проверять эту гипотезу на десятках конкретных признаков, от брюшных шипов колюшки до хвоста человекообразных обезьян.
Генетический набор инструментов развития
Гены, управляющие развитием, делятся на две большие группы. Первая — гены транскрипционных факторов: белков, которые связываются с ДНК и включают или выключают другие гены. Вторая — гены сигнальных путей: белков, через которые клетки сообщают соседям, где они находятся и кем им стать. Вместе их называют генетическим набором инструментов развития. У всех двусторонне-симметричных животных этот набор удивительно сходен, хотя их общий предок жил более 550 млн лет назад.
| Ген или семейство | Что это за белок | Что определяет | Где сохранился |
|---|---|---|---|
| Hox | транскрипционные факторы с гомеодоменом | особенности участков тела вдоль оси «голова — хвост» | все двусторонне-симметричные животные; родственные гены у книдарий |
| Pax6 (eyeless у мухи) | транскрипционный фактор | развитие глаз | мухи, головоногие моллюски, позвоночные, планарии |
| Distal-less (Dlx) | транскрипционный фактор | вырост наружу: ноги насекомых, плавники и конечности, амбулакральные ножки морских ежей | почти все животные с выростами тела |
| tinman (Nkx2-5) | транскрипционный фактор | закладка сердца | муха (спинной сосуд), позвоночные |
| Sonic hedgehog (Shh) | сигнальный белок | передне-задняя ось конечности, нервная трубка, зачатки зубов, перьев и волос | двусторонне-симметричные животные |
| BMP (dpp у мухи) и их подавитель хордин (sog) | сигнальный белок и его антагонист | спинно-брюшная ось | двусторонне-симметричные животные |
| Wnt, Notch, FGF | сигнальные пути | рост, деление на сегменты, судьба клеток | все многоклеточные животные |
Почему такие разные животные пользуются одними и теми же генами? Потому что набор инструментов сложился у общего предка двусторонне-симметричных животных, и его потомки не изобретали новые инструменты, а по-разному использовали старые. Каждый из этих генов работает во многих местах и на многих стадиях развития. Ген Shh нужен и для нервной трубки, и для конечностей, и для зубов. Такое свойство называют плейотропией. Оно объясняет, почему эти гены почти не меняются: мутация в кодирующей части Shh нарушила бы сразу всё, что он делает.
Включается ли ген в данной клетке, определяют его регуляторные участки — энхансеры. Это короткие, обычно в несколько сотен нуклеотидов, участки ДНК, с которыми связываются транскрипционные факторы. У сложного гена развития может быть десяток энхансеров, и каждый включает ген в своём месте зародыша. Энхансер может лежать перед геном, после него, в интроне и даже в другом гене на расстоянии сотен тысяч нуклеотидов: ДНК образует петлю и приближает энхансер к началу гена.
Гены Hox и план строения тела
Гены Hox — самый известный пример генов набора инструментов. Каждый из них кодирует транскрипционный фактор, который сообщает клеткам «адрес» вдоль оси тела: в каком участке они находятся и что там должно вырасти. Сам ген не строит ногу или крыло — он включает каскады генов, которые строят структуры, характерные для данного участка.
Если ген Hox сломан или включается не на своём месте, одна часть тела превращается в другую. Такие мутации называют гомеозисными. У мутанта Antennapedia на голове мухи вместо усиков вырастают ноги: ген, работающий в груди, включился в голове. У мутантов по гену Ultrabithorax третий сегмент груди становится похож на второй, и вместо жужжалец — маленьких булавовидных органов равновесия — у мухи вырастает вторая пара крыльев. Четырёхкрылая муха, которую Льюис получил, сочетая три мутации, напоминает предков двукрылых, у которых было две пары крыльев.
- 1кластер генов Hox дрозофилы в хромосоме, слева направо: lab, pb, Dfd, Scr, Antp, Ubx, abd-A, Abd-B
- 2тело мухи от головы к концу брюшка: три участка головы, три сегмента груди, восемь сегментов брюшка; цвет — ген, который определяет особенности сегмента
- 3один из четырёх кластеров генов Hox мыши: группы 1–13
- 4позвоночник мыши: 7 шейных, 13 грудных, 6 поясничных, 4 крестцовых и хвостовые позвонки — на рисунке только начало хвоста (упрощённо: цвет самой «задней» из работающих в позвонке групп Hox)
Порядок генов в хромосоме совпадает с порядком участков тела, где они работают: гены у 3′-конца кластера включаются в голове, гены у 5′-конца — в хвостовой части. Это колинеарность. Она сохранилась у мухи и мыши, хотя их общий предок жил более 550 млн лет назад.
Гены Hox расположены в хромосоме группами — кластерами, и порядок генов в кластере совпадает с порядком участков тела, где они работают. Это свойство называют колинеарностью. У дрозофилы восемь генов Hox; гены, лежащие у одного конца кластера, работают в голове, а у другого — в конце брюшка. У позвоночных, как показало чтение геномов, четыре кластера Hox (у мыши и человека — 39 генов), и колинеарность сохраняется: гены первых групп включаются в задней части головы и шее, гены последних — в крестце и хвосте. Кроме того, гены у «заднего» конца кластера включаются позже — это временна́я колинеарность.
Эволюция планов строения часто связана с изменением областей работы генов Hox, а не их белков. Несколько примеров.
- Шесть ног насекомых. У ракообразных и многоножек ноги есть и на брюшке. У насекомых белки Hox Ubx и abd-A в брюшке подавляют ген Distal-less, необходимый для роста ноги. Любопытно, что здесь изменился и сам белок: у предков насекомых белок Ubx приобрёл короткий участок, который позволяет ему подавлять Distal-less, а у ракообразных Ubx такой способности не имеет. Это пример того, что меняются не только энхансеры.
- Ногочелюсти раков. У ракообразных передние грудные ноги часто превращены в ногочелюсти — ротовые конечности. Оказалось, что ногочелюсти развиваются именно в тех сегментах, где не работают гены Ubx и abd-A: область их работы у разных групп раков сдвигалась, и вместе с ней менялось число ногочелюстей.
- Шея и грудь позвоночных. Граница между шейными и грудными позвонками у разных позвоночных проходит в разных местах — у мыши после седьмого позвонка, у курицы после четырнадцатого, у гуся после семнадцатого, — и всегда совпадает с передней границей работы гена Hoxc6. Сдвиг этой границы в эволюции менял длину шеи.
- Тело змеи. У змей почти весь позвоночник состоит из грудных позвонков с рёбрами. По данным 1999 года, у зародыша питона гены Hox, определяющие грудь, работают почти по всей длине тела, а гены, определяющие шею и границу груди с поясницей, сдвинуты или выключены.
Глубокая гомология
Глаз мухи и глаз мыши устроены совершенно по-разному: у мухи — фасеточный глаз из сотен омматидиев, у мыши — камерный глаз с хрусталиком. Анатомы считали их классическим примером аналогичных органов, возникших независимо. Но развитие обоих запускает родственный ген: eyeless у мухи и Pax6 у мыши. Если включить ген Pax6 мыши в зачатке ноги дрозофилы, на ноге вырастает лишний глаз, причём фасеточный — мушиный. Это показала в 1995 году группа швейцарского генетика Вальтера Геринга. Ген мыши лишь отдал команду «здесь глаз», а строили глаз мушиные гены, подчинённые этой команде.
Такие случаи назвали глубокой гомологией: органы, которые не гомологичны как структуры, строятся с помощью гомологичных генов и генных сетей, унаследованных от общего предка. Скорее всего, у общего предка мухи и мыши уже были светочувствительные клетки, развитие которых запускал предшественник Pax6, и на этой основе в разных линиях независимо выросли разные глаза. Сердце мухи и сердце позвоночного закладываются под действием родственных генов tinman и Nkx2-5; ноги насекомых, конечности позвоночных и даже выросты тела морских ежей начинают расти, когда включается ген Distal-less.
Перевёрнутое животное. В 1822 году французский зоолог Этьен Жоффруа Сент-Илер заметил, что у членистоногих нервная цепочка лежит на брюшной стороне, а сердце — на спинной, а у позвоночных — наоборот, и предположил, что позвоночное — это «перевёрнутое» членистоногое. Над ним смеялись полтора века. В 1990-х годах выяснилось, что спинно-брюшную ось у мухи и лягушки задают одни и те же белки: сигнальный белок BMP (у мухи — Dpp) и его подавитель хордин (у мухи — Sog). Только у мухи BMP работает на спинной стороне, а у позвоночных — на брюшной, а нервная система закладывается там, где хордин подавляет BMP. Ось действительно перевёрнута.
Глубокая гомология меняет представление об аналогичных органах. Классическое противопоставление сохраняется: глаз мухи и глаз мыши — аналогичные органы, они не происходят от одного органа предка. Но генетические программы, которыми они построены, гомологичны. Поэтому при сходных потребностях эволюция в разных линиях часто «берёт» одни и те же гены.
Почему эволюция меняет регуляцию генов
Если гены набора инструментов почти одинаковы у разных животных, различия должны создаваться иначе. Главная гипотеза эволюционной биологии развития: морфология меняется в основном через мутации в энхансерах. Довод простой. Белок гена развития работает во многих тканях, и мутация в кодирующей части меняет его работу везде — скорее всего, во вред. А энхансеров у гена много, каждый отвечает за своё место. Мутация в одном энхансере меняет работу гена только в одной части тела и не трогает остальные. Энхансеры позволяют менять признаки по одному — модульно.
Лучший пример — трёхиглая колюшка. Морские колюшки носят костные пластины по бокам тела и тазовый пояс с острыми брюшными шипами — защиту от хищных рыб. После отступления ледника около 10–20 тысяч лет назад морские колюшки заселили тысячи озёр Северной Америки и Европы. Во многих озёрах, где нет хищных рыб, но есть хищные личинки стрекоз, хватающие рыбу за шипы, колюшки независимо утратили тазовый пояс.
- 1морская колюшка: работают все энхансеры, ген Pitx1 включается во всех трёх местах
- 2пресноводная колюшка: энхансер тазового пояса удалён — нет таза и брюшных шипов, а гипофиз и челюсти развиваются нормально
- энхансер, включающий ген: гипофиз
- энхансер, включающий ген: челюсти и зубы
- энхансер, включающий ген: зачаток тазового пояса
- сам ген Pitx1; стрелка — начало транскрипции
Белок Pitx1 у обеих форм одинаков. Изменился только один «выключатель» — участок ДНК, который включает ген в одном месте зародыша. Поэтому мутация убрала таз, не задев остальные функции гена.
Ген, отвечающий за утрату таза, нашли в 2004 году: это Pitx1, ген транскрипционного фактора. Белок Pitx1 у озёрных колюшек не изменён. В 2010 году выяснилось, что у них удалён небольшой участок ДНК перед геном — энхансер, включающий Pitx1 в зачатке тазового пояса. В других местах — в гипофизе, во рту — ген работает нормально. Полное выключение Pitx1 у мыши смертельно, а удаление одного энхансера убрало только таз. Удаление этого энхансера происходило независимо во многих озёрах: участок ДНК легко ломается, и каждый раз отбор подхватывал полезную потерю.
Похожие истории известны для многих признаков.
- Пятно на крыле мушки. У самцов Drosophila biarmipes на кончике крыла тёмное пятно, которое они показывают самкам. Пигмент синтезирует белок гена yellow, который есть у всех дрозофил. У этого вида в энхансере гена появились места связывания транскрипционных факторов, и ген включился в кончике крыла. У других видов дрозофил пятна возникали и терялись независимо — каждый раз через изменения энхансеров одних и тех же генов.
- Ноги змей. Ген Shh в зачатке конечности включает энхансер ZRS, лежащий почти за миллион нуклеотидов от гена. Точечные мутации в ZRS у человека вызывают многопалость. В 2016 году американские генетики заменили ZRS мыши на ZRS питона, и у мышей выросли лишь короткие остатки конечностей. У змей в ZRS накопились мутации, в том числе выпадение 17 нуклеотидов; когда их «вернули», энхансер змеи снова стал работать. Сам ген Shh у змей цел: он нужен для мозга, зубов и других органов.
- Ветвистость кукурузы. Дикий предок кукурузы — теосинте — сильно ветвится. У кукурузы ген teosinte branched1 (tb1), подавляющий рост боковых побегов, работает сильнее, и растение растёт одним стеблем с крупными початками. Причина — мобильный элемент, встроившийся в регуляторную область примерно за 60 тысяч нуклеотидов до гена. Он существовал в популяциях теосинте ещё до одомашнивания, и древние земледельцы, сами того не зная, отобрали растения с ним.
- Переваривание молока у взрослых. У большинства млекопитающих ген лактазы выключается после окончания молочного вскармливания. У многих европейцев замена одного нуклеотида в энхансере, лежащем внутри соседнего гена MCM6, оставляет ген включённым всю жизнь. Сам фермент лактаза не изменился.
Важно не преувеличивать. Изменения белков тоже участвуют в эволюции строения: пример — белок Ubx насекомых. Особенно часто меняются белки, работающие в одном месте: ферменты синтеза пигментов, рецепторы, белки мембран. Окраска шерсти мышей, живущих на светлом песке, связана с заменами аминокислот в рецепторе меланокортина MC1R. В 2007 году эволюционисты Хопи Хекстра и Джерри Койн собрали известные тогда случаи и показали, что изменения белков встречаются в адаптациях не реже изменений энхансеров, а доказательства ведущей роли энхансеров ещё скудны. С тех пор примеров с энхансерами накопилось много, особенно для формы тела, но спор о доле тех и других не закончен, но общее правило таково: чем плейотропнее ген, тем вероятнее, что его эволюция идёт через регуляторные участки.
Как меняется онтогенез: время, место, количество, продукт
Изменения онтогенеза удобно делить по тому, что именно изменилось в работе генов. Английский биолог Уоллес Артур предложил четыре категории.
| Тип изменения | Что меняется | Пример |
|---|---|---|
| Гетерохрония | время или скорость развития части тела | неотения аксолотля; долгий рост мозга у человека; опережающее развитие передних лап у сумчатых |
| Гетеротопия | место, где работает ген | перепонки между пальцами у утки и летучей мыши; рёбра черепахи растут не вниз, а в кожу спины |
| Гетерометрия | количество продукта гена | больше белка BMP4 в зачатке клюва — глубокий и широкий клюв вьюрков |
| Гетеротипия | сам продукт гена (белок) | белок Ubx насекомых подавляет рост ног на брюшке |
Гетерохронии. Этот термин ввёл ещё Геккель, а популярным его сделал Стивен Гулд. Неотения — размножение на личиночной стадии. Мексиканский аксолотль — личинка амбистомы, которая живёт в воде с наружными жабрами и размножается, не проходя метаморфоза. У него мало гормона щитовидной железы, тироксина, запускающего метаморфоз у земноводных. Если добавить в воду тироксин, аксолотль превращается в наземную амбистому. Обратный процесс — ускорение развития отдельных частей. У сумчатых новорождённый детёныш размером с фасолину должен сам доползти до сумки, и его передние лапы и челюсти развиваются намного раньше задних лап. У человека, по сравнению с шимпанзе, удлинён период роста мозга и всё детство в целом.
Гетеротопии. У зародышей птиц и млекопитающих пальцы сначала соединены перепонкой, которая затем разрушается: в ней работает сигнальный белок BMP, запускающий гибель клеток. У утки в перепонке задних лап включается ген Gremlin, подавляющий BMP, и перепонка сохраняется. Если подавить BMP в лапе зародыша курицы, у неё тоже будет перепончатая лапа. У летучих мышей тот же механизм сохраняет кожную перепонку между удлинёнными пальцами передних конечностей — основу крыла. Панцирь черепахи — тоже гетеротопия: у её зародыша рёбра растут не вниз, охватывая тело, а в стороны, в кожу спины, образуя вместе с кожными костями спинной щит. Поэтому лопатки черепахи оказываются внутри грудной клетки — единственный такой случай среди позвоночных.
Гетерометрия. Форму клюва дарвиновых вьюрков определяют несколько генов. В 2004 году американские биологи показали, что у видов с глубокими и широкими клювами в зачатке клюва больше белка BMP4. Если искусственно повысить количество BMP4 у зародыша курицы, клюв у неё становится глубже и шире. Длину клюва задаёт другой белок — кальмодулин, передающий внутри клетки сигналы ионов кальция. Позже по геномам вьюрков нашли гены ALX1 и HMGA2, варианты которых связаны с формой и размером клюва; аллель HMGA2, уменьшающий клюв, быстро распространился у среднего земляного вьюрка после засухи 2004–2005 годов.
Гетеротипия. Изменение самого белка — более редкий путь для генов развития, но он известен: белок Ubx насекомых, гены рецепторов и ферментов. О гетеротипии чаще говорят, когда новый белок возникает после удвоения гена.
Филэмбриогенезы Северцова получили генетическое объяснение. Анаболии — изменения на поздних стадиях — встречаются чаще всего, потому что поздно работающие гены влияют на меньшее число структур. Архаллаксисы — изменения самых ранних зачатков — редки: ранние стадии связывают всё развитие, и любое изменение в них затрагивает весь организм. Это согласуется с законом Бэра и с так называемой моделью песочных часов: в 2010 году две работы — на рыбе данио и на шести видах дрозофил — показали, что консервативнее всего средние стадии развития (у позвоночных — стадия хвостовой почки, когда закладываются органы), а ранние и поздние стадии меняются сильнее.
Удвоение генов и геномов
Удвоение гена создаёт запасную копию. Одна копия продолжает выполнять старую функцию, и отбор её поддерживает. Вторая копия свободна от этого груза: мутации в ней больше не вредны, и среди них может оказаться полезная. Японско-американский генетик Сусуму Оно в 1970 году предположил, что удвоения генов и целых геномов — главный источник нового генетического материала в эволюции.
- Псевдогенодна копия накапливает поломки и перестаёт работать — самый частый исход
- Примерпсевдогены в кластерах глобиновых генов человека
- Одна копия сохраняет старую работуи поддерживается отбором
- Другая приобретает новуюмутации в ней больше не вредны и могут оказаться полезны
- Примеропсины красного и зелёного цвета у приматов; антифриз рыб из гена трипсиногена
- Каждая копия теряет часть энхансероввместе копии делают то, что делал один ген
- Обе становятся обязательнымидальше каждая может специализироваться
- Примергены engrailed у рыбы данио
Идею, что удвоение генов — главный источник нового генетического материала, выдвинул Сусуму Оно (1970). Модель разделения функций предложили А. Форс и М. Линч с соавторами (1999).
Большинство удвоенных генов быстро превращается в псевдогены. Но многие копии сохраняются, и среди них — гены, без которых невозможно было бы появление новшеств.
- Цветное зрение приматов. У большинства млекопитающих два типа колбочек, у обезьян Старого Света и человека — три. Около 30–40 млн лет назад ген опсина длинноволновых колбочек на Х-хромосоме удвоился, и копии разошлись: одна стала «красной», другая «зелёной». Это позволило различать спелые плоды на фоне листьев. У ревунов — обезьян Нового Света — такое удвоение произошло независимо.
- Гемоглобины. Гены глобинов позвоночных возникли серией удвоений. Копии разошлись по функциям: миоглобин запасает кислород в мышцах, а гемоглобины плода и взрослого различаются сродством к кислороду, что позволяет плоду получать кислород из крови матери.
- Гены Hox. У ланцетника один кластер генов Hox, у человека — четыре, у рыбы данио — семь.
Удвоение целого генома — полиплоидия — особенно часто встречается у растений: около 15 % видообразований цветковых связано с полиплоидией, и в истории каждой линии цветковых растений было несколько удвоений генома. У позвоночных, как предположил Оно, геном удвоился дважды. В 2024 году чтение генома миксины уточнило эту картину. Первое удвоение произошло у общего предка всех позвоночных в кембрии, до разделения бесчелюстных и челюстноротых. Второе — только у предков челюстноротых, причём, по-видимому, путём гибридизации двух родственных видов. У предков миног и миксин независимо произошло своё умножение генома. У костистых рыб было третье удвоение, около 320 млн лет назад, а у лососевых — четвёртое. Удвоенные гены сигнальных путей и транскрипционных факторов, по-видимому, помогли появлению новшеств позвоночных — нервного гребня, челюстей, парных конечностей, сложного мозга.
Почему после удвоения сохраняются обе копии, если вторая не нужна? Модель разделения функций (субфункционализации), которую в 1999 году предложили Аллан Форс, Майкл Линч и их соавторы, объясняет это через энхансеры. Пусть у гена два энхансера, и он работает в двух органах. После удвоения каждая копия может потерять один энхансер — такая мутация безвредна, пока другая копия работает. Если одна копия потеряет энхансер первого органа, а другая — второго, обе станут обязательными: каждая отвечает за свой орган. Дальше каждая копия может приспосабливаться к своей работе, не мешая другой. Так, у рыбы данио два гена engrailed-1, и работа единственного гена мыши разделена между ними.
Кооптация: старые гены в новой роли
Кооптация — включение гена или целой генной сети в новую функцию, не связанную с прежней. Это главный путь появления новшеств: новый орган почти никогда не строится новыми генами, а собирается из готовых генных модулей, которые начали работать в новом месте.
- Кристаллины хрусталика. Хрусталик должен быть прозрачным и плотным, и его заполняют белки-кристаллины. Многие из них — обычные ферменты. У птиц и рептилий δ-кристаллин — это фермент аргининосукцинатлиаза, участвующий в образовании мочевины. У уток ε-кристаллин — фермент лактатдегидрогеназа. Ген стал работать в хрусталике с огромной силой, и фермент приобрёл вторую роль. Американский биолог Иорам Пятигорский назвал это совмещением функций одним геном.
- Глазчатые пятна бабочек. У многих бабочек на крыльях яркие «глаза», отпугивающие птиц. В центре будущего пятна у гусеницы включаются гены Distal-less, engrailed и другие, которые у всех насекомых участвуют в росте ног и делении крыла на отделы. Генная сеть, размечавшая крыло, была кооптирована для рисунка на нём.
- Рога жуков-навозников. Рога у самцов Onthophagus растут из головы и груди и не гомологичны никаким органам предков. В их зачатках работают гены роста ног — Distal-less, dachshund и другие, а различия самцов и самок задаёт ген doublesex.
- Плацента. Белок синцитин, сливающий клетки наружного слоя плаценты в единый слой, — бывший белок оболочки ретровируса: так вирус сливает свою оболочку с мембраной клетки. У приматов, грызунов, хищных и других групп млекопитающих синцитины произошли от разных ретровирусов, то есть кооптация происходила независимо. Кроме того, в 2011 году показали, что мобильные элементы, распространившиеся по геному у предков плацентарных млекопитающих, принесли энхансеры, которые включили около полутора тысяч генов в клетках слизистой матки во время беременности.
Кооптация объясняет, как сложный орган может появиться быстро: не нужно постепенно создавать сотни новых генов — достаточно, чтобы ключевой ген генной сети начал работать в новом месте, и за ним включится вся подчинённая ему программа. Опыт с глазом на ноге мухи показывает это нагляднее всего.
Откуда берутся новые гены
Совсем новые гены, у которых нет предков среди генов, тоже возникают, хотя и реже, чем изменяются старые. Основные пути таковы.
- Удвоение и расхождение копий — самый частый путь (см. выше).
- Ретрокопирование. мРНК гена переписывается обратно в ДНК и встраивается в геном без интронов. Так у некоторых пород собак возникла коротконогость: ретрокопия гена фактора роста FGF4 усилила его работу в растущих костях.
- Рождение гена из некодирующей ДНК (de novo). Участок «молчащей» ДНК случайно начинает транскрибироваться, и в нём появляется открытая рамка считывания. Такие гены найдены у дрожжей, дрозофил и человека. Яркий пример — антифриз арктической сайки: его ген возник из некодирующей ДНК. А у антарктических нототениевых рыб похожий белок-антифриз возник из гена фермента трипсиногена. Два одинаковых по действию белка возникли разными путями — пример конвергенции на молекулярном уровне.
- Горизонтальный перенос. У бактерий это обычный путь получения новых генов. У животных он редок, но известен: гены синтеза каротиноидов тли получили от грибов, и у некоторых тлей красная окраска появилась благодаря этим генам.
- Приручение мобильных элементов и вирусов. Синцитины плаценты; ферменты RAG1 и RAG2, разрезающие и сшивающие гены антител у позвоночных, произошли от фермента мобильного элемента.
Особенно интересны гены, появившиеся только у человека. Гены NOTCH2NL возникли 3–4 млн лет назад при частичном удвоении гена NOTCH2; они продлевают деление клеток-предшественников нейронов в коре мозга (работы 2018 года). Ген ARHGAP11B возник около 5 млн лет назад как неполная копия гена ARHGAP11A, а замена одного нуклеотида изменила вырезание интрона и дала белку новый конец. В 2020 году ген ARHGAP11B встроили в геном зародышей мартышки-игрунки, и их кора стала крупнее и складчатее. Ген SRGAP2C — тоже человеческая копия — увеличивает число синапсов на нейронах коры.
Кроме новых генов у человека есть новые регуляторные участки. Участки генома, очень консервативные у других млекопитающих, но быстро менявшиеся в линии человека, назвали ускоренными у человека участками (HAR). Многие из них — энхансеры, работающие в развивающемся мозге. Энхансер HACNS1 включает гены в зачатке кисти и запястья, а у шимпанзе его аналог такой активности почти не имеет — возможно, это связано с эволюцией руки. Важны и потери: в 2023 году исследовали около 10 тысяч участков, консервативных у других млекопитающих, но утраченных у человека (их назвали hCONDEL), и нашли среди них энхансеры генов нервной системы.
Как возникли известные новшества
Плавник и конечность
Конечность наземных позвоночных возникла из плавника кистепёрых рыб в девоне. Переходные формы — тиктаалик, акантостега, ихтиостега — показывают, как плавник постепенно превращался в лапу. Генетика развития добавила, откуда взялись пальцы. В зачатке конечности гены Hox работают в две фазы: в первую — в плече и предплечье, во вторую — гены Hoxa13 и Hoxd13 на самом конце зачатка, где формируются кисть и пальцы. У рыб вторая фаза работает в той части плавника, где растут костные плавниковые лучи. В 2016 году американские биологи пометили у рыбы данио клетки, в которых работали гены hox13, и оказалось, что из них вырастают плавниковые лучи. Когда гены hox13 выключили, лучи укоротились, а хрящевых косточек у основания плавника стало больше. Значит, пальцы и плавниковые лучи используют одну и ту же генную программу: у предков наземных позвоночных клетки «конца плавника» стали образовывать не лучи, а хрящевые кости — пальцы.
Перо
Перья — новшество динозавров: оперение, сначала нитевидное, было у многих хищных динозавров задолго до птиц. Перо, чешуя рептилий и волос млекопитающих развиваются из сходной закладки — утолщения кожи (плакоды), в которой работают одни и те же сигнальные пути: Shh, BMP, Wnt. Разница в том, как дальше растёт и ветвится закладка. Перо растёт трубкой, которая расщепляется на бородки, и узор ветвления задают те же гены, что размечают другие закладки. Усиление сигнального пути Wnt в коже зародыша курицы превращает чешуйки на лапах в перья.
Панцирь черепахи
Панцирь складывается из расширенных рёбер, позвонков и кожных костей. Ключевое изменение — гетеротопия: рёбра растут в стороны, в кожу спины. Их рост направляет особый валик на боку зародыша, в котором работают гены сигнального пути FGF и Wnt. Ископаемые помогли восстановить последовательность событий: у одонтохелиса (около 220 млн лет назад) уже был брюшной щит, но спинной ещё не сомкнулся, а у паппохелиса (240 млн лет) рёбра лишь расширены.
Утрата хвоста у человекообразных
Утраты — тоже эволюционные события. У человекообразных обезьян и человека нет хвоста, лишь несколько сросшихся позвонков копчика. В 2024 году американские генетики Бо Ся, Итай Янаи и их коллеги нашли, вероятно, одну из причин. Около 25 млн лет назад у предка человекообразных в интрон гена TBXT, необходимого для роста задней части зародыша, встроился мобильный элемент Alu. Он оказался рядом с другим, более древним Alu, направленным в противоположную сторону. При транскрипции две копии образуют в РНК «шпильку», и при сплайсинге один из экзонов вырезается вместе с интроном. Часть белка TBXT получается укороченной. У мышей, у которых создали такой же вариант сплайсинга, хвост был укорочен или отсутствовал. Любопытно, что у этих мышей чаще встречались дефекты нервной трубки: возможно, утрата хвоста имела свою цену. Авторы подчёркивают, что в утрате хвоста могли участвовать и другие гены.
Утрата глаз у пещерных рыб
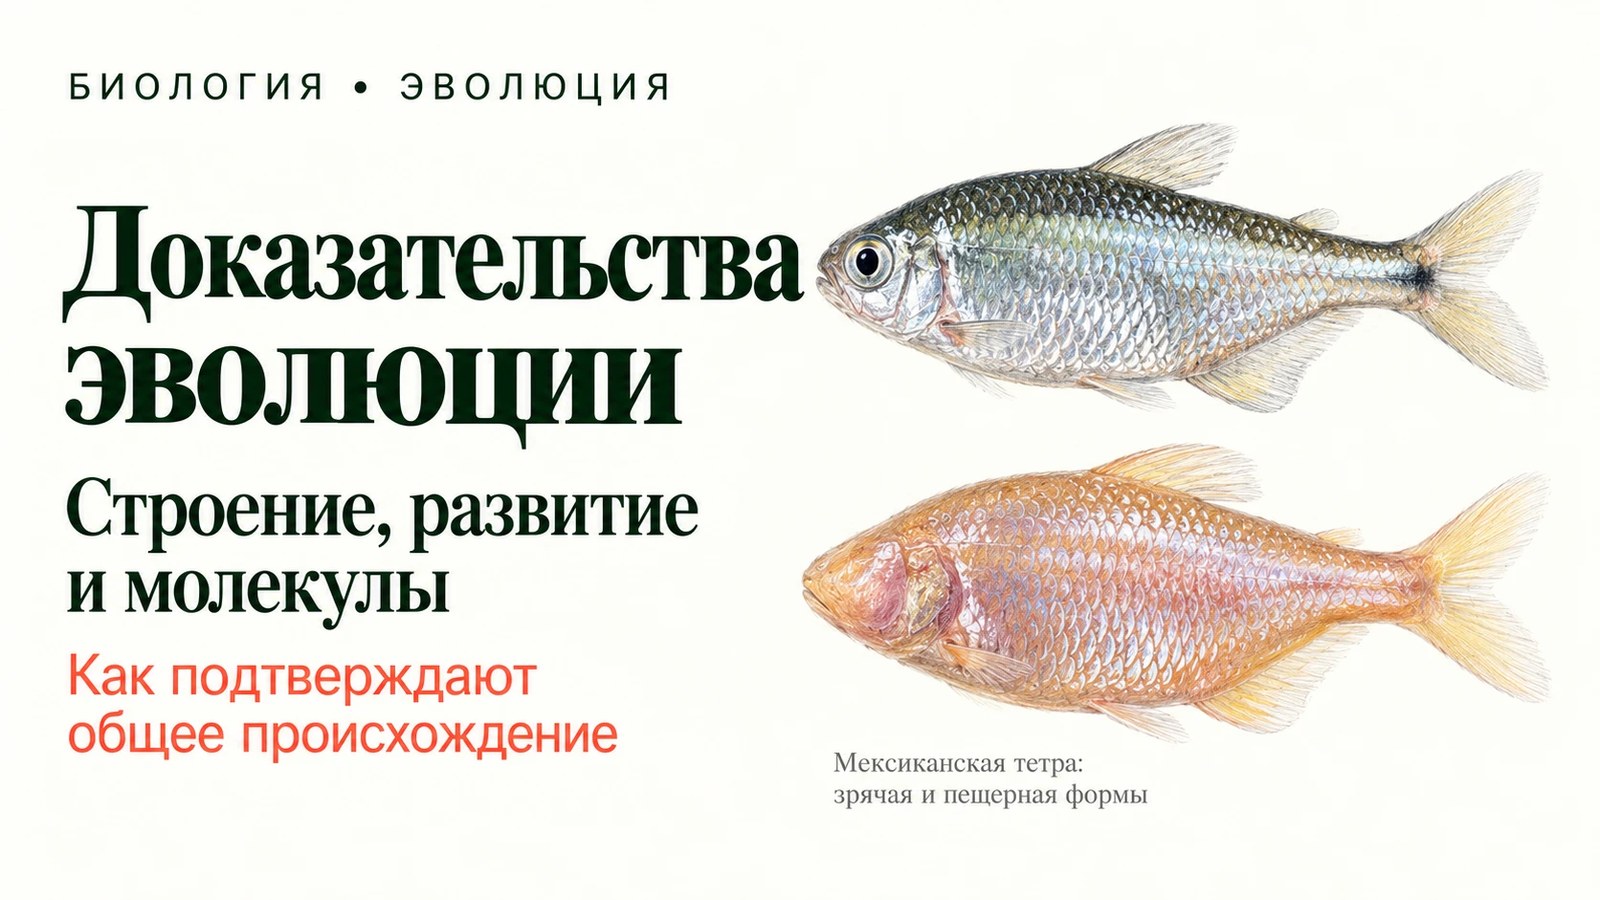
Мексиканская тетра Astyanax mexicanus живёт в реках и в тёмных пещерах. У пещерных форм глаза закладываются у зародыша, но затем хрусталик погибает, и глаз уходит под кожу. Причина — расширение области работы гена Shh по средней линии зародыша: избыток сигнала Shh вызывает гибель клеток хрусталика. Зато тот же сигнал увеличивает челюсти и число вкусовых почек — полезных в темноте. Возможно, глаза утратились не только потому, что стали бесполезны, но и как побочное следствие отбора на лучшее осязание и вкус.
Узоры на крыльях бабочек
У тропических бабочек геликониусов разные виды, ядовитые для птиц, подражают друг другу рисунком на крыльях — это взаимная мимикрия. Рисунки определяют всего несколько генов: optix — красные пятна, WntA — границы чёрных участков, cortex — жёлтые полосы. У разных видов сходные узоры возникли через изменения энхансеров одних и тех же генов, а иногда нужные варианты переходили от вида к виду при редкой гибридизации. Тот же ген cortex оказался причиной почернения берёзовой пяденицы в промышленной Англии: в 2016 году в его интроне нашли мобильный элемент, встроившийся, по расчётам, около 1819 года.
Эволюция развития растений
У растений свой набор инструментов. Вместо генов Hox развитием органов управляют гены семейства MADS-box, а основу плана строения задают меристемы — участки делящихся клеток на верхушках побега и корня. Самый известный пример — модель ABC развития цветка, которую в 1991 году предложили Энрико Коэн и Эллиот Мейеровиц по мутантам резуховидки и львиного зева.
- 1внешний круг: чашелистики — работают гены A
- 2лепестки — A и B
- 3тычинки — B и C
- 4центр цветка: плодолистики (пестик) — C
- гены класса A (у резуховидки APETALA1, APETALA2)
- гены класса B (APETALA3, PISTILLATA)
- гены класса C (AGAMOUS)
Гены A и C подавляют друг друга: где нет A, работает C, и наоборот. Поэтому у мутанта без гена C цветок состоит из повторяющихся кругов чашелистиков и лепестков, а у мутанта без B — только из чашелистиков и плодолистиков.
Цветок состоит из четырёх кругов органов, и в каждом работает своя комбинация генов трёх классов: в первом — A (чашелистики), во втором — A и B (лепестки), в третьем — B и C (тычинки), в четвёртом — C (плодолистики). Мутации генов цветка — гомеозисные, как у мухи: у мутанта без генов B вместо лепестков вырастают чашелистики, а вместо тычинок — плодолистики. Позже добавили гены класса E (SEPALLATA), необходимые во всех кругах: без генов A, B, C и E вместо цветка образуются листья. Это подтвердило догадку Гёте (1790), что органы цветка — видоизменённые листья. Цветок — эволюционное новшество покрытосеменных — возник, когда гены MADS-box, работавшие в шишках голосеменных, стали работать по-новому.
Другие примеры. Симметрию цветка определяет ген CYCLOIDEA: у львиного зева он работает на верхней стороне цветка и делает его двусторонне-симметричным. Карл Линней описал в 1744 году форму льнянки с правильным пятилучевым цветком и назвал её пелорией («чудовищем»). В 1999 году выяснилось, что у неё ген, родственный CYCLOIDEA, не мутирован, а выключен метилированием ДНК — это наследуемая эпигенетическая мутация. Форму листа определяют гены KNOX: в зачатках сложных листьев они работают, в зачатках простых — нет. У сердечника, родственника резуховидки, листья сложные из-за гена RCO, который у резуховидки утрачен.
Генные сети, ограничения и канализация
Гены развития работают не поодиночке, а сетями: одни транскрипционные факторы включают другие, те — третьи, и так до генов, белки которых строят клетку. Американские биологи Эрик Дэвидсон и Дуглас Эрвин (2006) предложили различать в таких сетях уровни. Ядро сети — несколько генов, связанных обратными связями и определяющих план строения целого типа; оно почти не меняется сотни миллионов лет, потому что любое его изменение смертельно. Периферия сети — гены, отвечающие за детали, — меняется легко. Это объясняет, почему новые типы животных после кембрия почти не появлялись, а разнообразие внутри типов продолжает расти.
Устройство развития ограничивает возможные изменения. Например, у почти всех млекопитающих семь шейных позвонков — и у мыши, и у жирафа, у которого каждый позвонок длиной около 25 см. Исключения — ленивцы и ламантины. У человека шейное ребро — признак сдвига границы шейного и грудного отделов — часто сопровождается тяжёлыми нарушениями развития и детскими опухолями (это показала нидерландский биолог Фрит Галис в 1999 году): изменения ранних этапов разметки тела затрагивают многие органы сразу, поэтому стабилизирующий отбор удерживает число семь. Такие ограничения развития объясняют, почему некоторые формы встречаются часто, а другие — никогда.
Канализация — устойчивость развития к мутациям и колебаниям среды: разные генотипы дают сходный нормальный фенотип. В 1953 году Уоддингтон воздействовал тепловым шоком на куколок дрозофилы, и у части мух на крыльях не развивалась поперечная жилка. Отбирая таких мух, он через несколько поколений получил линию, у которой жилка не развивалась и без теплового шока. Изменчивость была в популяции, но скрыта канализацией; тепловой шок её проявил, а отбор закрепил. Это назвали генетической ассимиляцией. В 1998 году Сьюзан Линдквист и Сюзанна Рутерфорд нашли один из механизмов канализации: белок теплового шока Hsp90 помогает сворачиваться многим белкам развития и «прячет» слабые мутации. Когда Hsp90 не хватает, например при стрессе, скрытая изменчивость проявляется. У пещерной тетры в 2013 году показали, что пониженная работа Hsp90 в бедной солями пещерной воде проявляет изменчивость размера глаз, на которую может действовать отбор.
Способность к эволюции (эволюционируемость) тоже зависит от устройства развития. Модульность — разделение организма на блоки, которые развиваются относительно независимо, — позволяет менять одну часть тела, не ломая остальные. Модульные энхансеры — генетическая основа этой модульности.
Удивительные факты
- Белок Hox мыши, включённый в зародыше дрозофилы не на своём месте, вызывает у мухи те же превращения частей тела, что и родственный белок самой мухи: за 550 млн лет его функция почти не изменилась.
- Энхансер ZRS, включающий ген Shh в конечности, лежит внутри другого гена (LMBR1) почти в миллионе нуклеотидов от Shh.
- У куриц-мутантов talpid2 на клюве у зародыша закладываются зубы, похожие на зубы крокодилов. Гены построения зубов у птиц частично сохранились, хотя зубов у их предков нет более 100 млн лет: изменилась регуляция.
- Колюшки в разных озёрах утратили тазовый пояс независимо, но через удаление одного и того же энхансера. Эволюция часто идёт по одним и тем же «легко ломающимся» участкам ДНК.
- У жирафа и мыши по семь шейных позвонков, а у ленивцев — от пяти до десяти, в зависимости от вида.
- Около 8 % генома человека — остатки ретровирусов, и некоторые из них стали необходимыми, как синцитины плаценты.
- Дефекты нервной трубки, по данным работы 2024 года, могли быть частью «платы» за утрату хвоста у предков человека.
- У морской звезды, как показало исследование 2023 года, почти по всей поверхности тела работают гены, которые у других животных размечают голову, а гены туловища почти не работают: по работе генов тело морской звезды похоже на голову без туловища.
Что пока не решено
- Какую долю эволюции строения дают энхансеры, а какую — белки. Для формы тела энхансеры явно важнее, но точных оценок нет.
- Как возникают совсем новые органы. Кооптация объясняет, откуда берутся гены, но как новый орган становится самостоятельной единицей со своей генной сетью, понятно гораздо хуже. Например, о происхождении крыльев насекомых спорят: работы 2010-х годов на мучном хрущаке поддерживают гипотезу, что крыло возникло слиянием выростов спинки и боковых частей сегмента.
- Можно ли предсказать, какие гены будет использовать эволюция. Повторяемость случаев с Pitx1, cortex и yellow показывает, что некоторые гены и энхансеры служат «горячими точками», но общей теории нет.
- Роль эпигенетики и пластичности развития. Сторонники «расширенного эволюционного синтеза» считают, что изменения развития в ответ на среду могут направлять эволюцию, а генетические изменения лишь закрепляют их. Большинство эволюционистов считают, что это укладывается в существующую теорию.
- Какие гены сделали человека человеком. Найдены десятки кандидатов — NOTCH2NL, ARHGAP11B, участки HAR, — но как они вместе меняют мозг и поведение, ещё предстоит понять.
Что писать на ЕГЭ
В кодификаторе ЕГЭ-2027 «генетические механизмы эволюции онтогенеза» входят в элемент 6.3 «Макроэволюция и её доказательства» и набраны курсивом: отдельными заданиями они не проверяются. Но эти знания помогают в линиях 17, 20 и 26, где спрашивают о гомологичных и аналогичных органах, рудиментах и атавизмах, эмбриологических доказательствах эволюции, закономерностях макроэволюции. Опорные формулировки:
- Онтогенез определяется генами; наследственные изменения строения — это изменения онтогенеза, вызванные мутациями генов, управляющих развитием.
- Гены, управляющие развитием (например, гены Hox), сходны у разных животных, что доказывает их родство и общее происхождение.
- Мутации генов Hox вызывают превращение одной части тела в другую (гомеозисные мутации), например ноги на месте усиков у дрозофилы.
- Атавизмы (хвост у человека, многососковость, зубы у зародышей птиц) объясняются тем, что гены, определявшие признаки предков, сохранились в геноме; изменилась регуляция их работы, и при её нарушении признак проявляется.
- Рудименты сохраняются, потому что в развитии их закладка ещё связана с другими структурами или выполняет второстепенную функцию.
- Сходство зародышей объясняется общими генами, управляющими ранним развитием; на ранних стадиях изменения затрагивают весь организм и поэтому редко сохраняются отбором.
- Новые признаки чаще возникают через изменения работы старых генов (где, когда и сколько ген работает), через удвоения генов и использование старых генов в новой функции.
Ловушки. 1) Глаз мухи и глаз человека — аналогичные органы, хотя запускаются гомологичными генами: глубокая гомология касается генов, а не органов. 2) Атавизм — не возврат мутацией к «утраченному гену»: гены не были утрачены, изменилась их регуляция. 3) Биогенетический закон не означает, что зародыш человека проходит стадию «взрослой рыбы»: зародыш повторяет черты зародышей предков. 4) Гомеозисная мутация меняет «адрес» участка тела, а не создаёт новый орган с нуля: на месте усиков вырастает нога, уже имевшаяся у мухи. 5) Неотения — размножение на личиночной стадии, а не просто замедленный рост.
Для тренировки — тема 6.3 в тренажёре ЕГЭ по биологии.
Для олимпиад
Задний ген главнее
Если в одном сегменте работают несколько генов Hox, особенности сегмента обычно определяет самый «задний» из них (ген, лежащий ближе к 5′-концу кластера), подавляя действие более передних. Это правило называют превосходством задних генов (posterior prevalence). Отсюда предсказания: при выключении заднего гена сегмент приобретает особенности более переднего (третий сегмент груди становится вторым у мутанта Ubx); при включении заднего гена в передних сегментах они становятся похожи на задние.
Цис или транс: опыт с гибридами
Различие в работе гена между двумя видами может быть вызвано изменением его собственного энхансера (цис-изменение) или изменением транскрипционных факторов, которые на него действуют (транс-изменение). Проверить это можно на гибридах. В клетках гибрида F1 обе аллели гена — от одного и от другого вида — находятся в одном ядре и в окружении одних и тех же транскрипционных факторов. Если аллели работают с разной силой, значит, различие заложено в них самих — в цис-участках. Если в гибриде аллели работают одинаково, а у родителей различались, различие вызвано транс-факторами. На логарифмической шкале доля цис-изменений равна log(отношения аллелей в гибриде) / log(отношения работы гена у родителей). Так в 2004 году американская исследовательница Патриция Витткопп показала, что различия между видами дрозофил чаще вызваны цис-изменениями, а в 2008 году — что внутри вида больше доля транс-изменений.
Тест на комплементацию
Если два мутантных фенотипа (например, слепота у пещерных рыб из двух пещер) вызваны рецессивными мутациями, их скрещивание показывает, затронут ли один и тот же ген. Если у гибридов F1 признак нормальный, мутации в разных генах (они комплементируют друг друга); если признак мутантный, ген один. Для пещерных тетр в 2008 году показали, что у гибридов рыб из разных пещер глаза развиты лучше, чем у родителей: глаза утрачивались независимо, разными мутациями.
Модель разделения функций в цифрах. Пусть у гена два энхансера, и все повреждения — поломка любого из энхансеров или кодирующей части — равновероятны; вредные повреждения отбор удаляет. После удвоения первая же поломка безвредна. С вероятностью 2/6 = 1/3 она попадает в кодирующую часть одной из копий — копия становится псевдогеном. С вероятностью 2/3 она выводит из строя энхансер одной копии. Из следующих безвредных поломок (их три: кодирующая часть той же копии, второй энхансер той же копии, «другой» энхансер второй копии) только последняя делает обе копии обязательными. Итого вероятность разделения функций 2/3 · 1/3 = 2/9, или около 22 %. Чем больше у гена независимых энхансеров, тем вероятнее сохранение обеих копий — это и объясняет, почему у позвоночных сохранилось так много копий генов развития после удвоений генома.
Задания с разбором
Задания 1–9 — в формате ЕГЭ (с элементами ответа для линии 26), 10–15 — олимпиадные.
Задание 1
Выберите три верных утверждения о генах Hox.
- Гены Hox кодируют транскрипционные факторы.
- Гены Hox есть только у членистоногих.
- Порядок генов Hox в хромосоме соответствует порядку участков тела, где они работают.
- Мутации генов Hox могут превратить одну часть тела в другую.
- Гены Hox кодируют структурные белки мышц и костей.
- У человека один кластер генов Hox.
Разбор
Ответ: 134. Гены Hox есть у всех двусторонне-симметричных животных, в том числе у позвоночных (2 неверно). Они кодируют не структурные белки, а транскрипционные факторы, включающие другие гены (5 неверно). У человека четыре кластера Hox (6 неверно).
Задание 2
Установите соответствие между примерами и типами изменения онтогенеза: 1 — изменение времени развития (гетерохрония), 2 — изменение места работы гена (гетеротопия).
- аксолотль размножается, сохраняя личиночные жабры
- у утки между пальцами задних лап сохраняется перепонка
- рёбра черепахи растут в кожу спины
- у человека удлинён период роста мозга
- передние лапы новорождённого кенгурёнка развиты гораздо лучше задних
- включение гена Pax6 в зачатке ноги вызывает развитие глаза на ноге мухи
Разбор
Ответ: 122112. Неотения аксолотля, долгий рост мозга человека и опережающее развитие передних лап сумчатых — изменения сроков развития. Перепонка утки (ген Gremlin работает в межпальцевой ткани), рёбра черепахи и глаз на ноге мухи — изменения места.
Задание 3
Установите последовательность событий в истории изучения связи развития и эволюции.
- открытие гомеобокса у генов мухи и позвоночных
- формулировка биогенетического закона Геккелем
- законы зародышевого сходства К. Бэра
- теория филэмбриогенезов А. Н. Северцова
- описание колинеарности генов комплекса bithorax Э. Льюисом
- обнаружение причины утраты хвоста у человекообразных в гене TBXT
Разбор
Ответ: 324516. Бэр — 1828 г., Геккель — 1866 г., Северцов — 1910–1930-е гг., Льюис — 1978 г., гомеобокс — 1984 г., TBXT — 2024 г.
Задание 4
Выберите три примера кооптации — использования старых генов в новой функции.
- ферменты, работающие как кристаллины хрусталика
- белок синцитин плаценты, произошедший от белка оболочки ретровируса
- утрата глаз у пещерных рыб
- гены роста ног, работающие в зачатках рогов жуков-навозников
- сходство строения крыла птицы и крыла бабочки
- уменьшение размеров тела островных слонов
Разбор
Ответ: 124. Во всех трёх случаях гены, работавшие в одной роли, стали использоваться в другой: ферменты — как белки хрусталика, вирусный белок — для слияния клеток плаценты, гены роста ног — для роста рогов. Утрата глаз и уменьшение размеров — изменения уже имевшихся признаков; сходство крыльев — аналогия.
Задание 5
Прочитайте текст и выберите три утверждения, которые можно сделать на его основе.
Морские трёхиглые колюшки имеют тазовый пояс с шипами. Во многих озёрах, куда колюшки проникли после отступления ледника, тазовый пояс утрачен. У озёрных рыб белок Pitx1 не изменён, но удалён участок ДНК перед геном, включающий его в зачатке таза. В гипофизе и челюстях ген работает нормально. В разных озёрах удаление этого участка произошло независимо.
- Утрата тазового пояса вызвана изменением регуляторного участка ДНК, а не белка.
- Ген Pitx1 работает в нескольких органах.
- Озёрные колюшки произошли от одной предковой популяции, утратившей таз однажды.
- Сходный признак может возникать параллельно в разных популяциях.
- Полное выключение гена Pitx1 полезно для озёрных рыб.
- Тазовый пояс у озёрных колюшек утрачен из-за модификационной изменчивости.
Разбор
Ответ: 124. По тексту белок не изменён, удалён регуляторный участок (1); ген работает в гипофизе и челюстях (2); удаление произошло независимо в разных озёрах — параллельная эволюция (4). Утверждение 3 противоречит тексту. О полном выключении гена в тексте ничего нет, и оно нарушило бы работу гипофиза и челюстей (5). Изменение наследственное — это мутация, а не модификация (6).
Задание 6
Установите соответствие между органами цветка и классами генов модели ABC, которые в них работают: 1 — только A, 2 — A и B, 3 — B и C, 4 — только C.
- лепестки
- тычинки
- чашелистики
- плодолистики
Разбор
Ответ: 2314. Чашелистики (первый круг) — A, лепестки — A и B, тычинки — B и C, плодолистики (центр) — C.
Задание 7
Гены, управляющие развитием, почти одинаковы у мухи и мыши, а строение этих животных совершенно различно. Объясните, за счёт каких изменений генов в основном возникают различия в строении. Почему мутации в регуляторных участках генов развития чаще сохраняются отбором, чем мутации в кодирующих участках?
Разбор
Элементы ответа: 1) различия возникают в основном за счёт изменения регуляции генов — того, где, когда и с какой силой работает ген; 2) регуляцию определяют энхансеры (регуляторные участки ДНК), и у гена развития их много — каждый включает ген в своей части тела; 3) белок гена развития работает во многих тканях (плейотропия), поэтому мутация в кодирующей части нарушает сразу многие процессы и обычно вредна; 4) мутация в одном энхансере меняет работу гена только в одном месте, не затрагивая остальных функций, и может оказаться полезной, поэтому сохраняется отбором.
Задание 8
У зародышей птиц иногда закладываются зачатки зубов, а у человека изредка рождаются дети с хвостовым придатком. Как называют такие признаки? Объясните их появление с позиций генетики развития. Почему эти признаки служат доказательством эволюции?
Разбор
Элементы ответа: 1) это атавизмы — признаки, которые были у далёких предков и проявляются у отдельных особей; 2) гены, определявшие эти признаки у предков (гены развития зубов, гены роста хвостового отдела), сохранились в геноме; 3) у современных видов изменилась регуляция работы этих генов: они выключены или работают иначе; 4) при нарушении регуляции (мутации, нарушения развития) старая программа развития проявляется; 5) сохранение в геноме генов признаков предков доказывает происхождение от этих предков (птиц — от зубастых рептилий, человека — от хвостатых предков).
Задание 9
У змей нет конечностей, но ген Sonic hedgehog, необходимый для их развития, у змей сохранился и работает в других органах. Объясните, какое изменение генома могло привести к утрате конечностей у змей и почему сам ген не утрачен. Какую форму естественного отбора иллюстрирует сохранение гена?
Разбор
Элементы ответа: 1) изменился энхансер — регуляторный участок, включающий ген Shh в зачатке конечности (энхансер ZRS); 2) в нём накопились мутации, и ген перестал включаться в зачатке конечности, поэтому конечность не развивается; 3) сам ген нужен в других органах (мозг, нервная трубка, зубы), поэтому мутации, нарушающие его белок, вредны и удаляются отбором; 4) сохранение гена — результат стабилизирующего отбора.
Задание 10
Используя модель ABC (гены A и C подавляют друг друга, без генов A и C развиваются листовидные органы), предскажите, какие органы будут в четырёх кругах цветка (от внешнего к центру) у мутантов: а) без генов B; б) без генов C; в) без генов A (тогда C работает во всех кругах); г) без генов B и C; д) без генов A, B и C.
Разбор
а) Остаются A в кругах 1–2 и C в кругах 3–4: чашелистики, чашелистики, плодолистики, плодолистики. б) A распространяется на все круги, B — в кругах 2–3: чашелистики, лепестки, лепестки, чашелистики (у настоящего мутанта agamous этот набор повторяется много раз: без гена C цветок не перестаёт расти). в) C во всех кругах: плодолистики, тычинки, тычинки, плодолистики. г) Только A во всех кругах: четыре круга чашелистиков. д) Ни одного гена органов цветка: листовидные органы во всех кругах — цветок превращается в укороченный побег с листьями.
Задание 11
Морскую колюшку с тазовым поясом скрестили с озёрной без тазового пояса. У всех рыб F1 тазовый пояс был. Среди 160 рыб F2 120 имели тазовый пояс, 40 — нет. Определите характер наследования и генотипы. Сколько рыб с тазовым поясом и без него ожидается среди 96 потомков от скрещивания рыбы F1 с озёрной? Почему у рыб без тазового пояса его остатки нередко сохраняются на левой стороне тела, а не на правой?
Разбор
1) Расщепление 120 : 40 = 3 : 1 — моногибридное, наличие таза доминирует: морская рыба PP, озёрная pp, F1 Pp. 2) Анализирующее скрещивание Pp × pp даёт 1 : 1 — 48 рыб с тазовым поясом и 48 без него. 3) Аллель p — это ген Pitx1 без энхансера таза. Остатки таза на левой стороне объясняются тем, что родственный ген Pitx2, работающий в зародыше преимущественно слева (он задаёт асимметрию внутренних органов), частично заменяет Pitx1. Такая асимметрия остатков — признак, по которому можно узнать, что утрата таза вызвана именно Pitx1.
Задание 12
У самцов Drosophila biarmipes на крыле тёмное пятно, у D. melanogaster — нет; ген yellow, кодирующий белок синтеза пигмента, есть у обоих видов. Участок ДНК перед геном yellow D. biarmipes соединили с геном зелёного флуоресцентного белка (GFP) и ввели в геном D. melanogaster. У полученных мух GFP светился в кончике крыла — там, где у D. biarmipes пятно. Какой вывод следует из опыта? Почему для проверки использовали GFP, а не сам ген yellow?
Разбор
1) Участок ДНК перед геном D. biarmipes — энхансер, способный включать ген в кончике крыла даже в клетках D. melanogaster. Значит, транскрипционные факторы, нужные для этого, есть и у D. melanogaster, а различие между видами — в самом энхансере (цис-изменение). 2) GFP — репортёрный ген: он показывает, где работает энхансер, и его белок не путается с собственным белком Yellow мухи; ген yellow у мух уже есть, и его продукт нельзя было бы отличить от введённого.
Задание 13
У гена два независимых энхансера, ген удвоился. Считайте, что любое повреждение — поломка одного из энхансеров или кодирующей части любой копии — равновероятно, а вредные повреждения удаляются отбором. Найдите вероятность того, что обе копии сохранятся благодаря разделению функций, и вероятность того, что одна из копий превратится в псевдоген.
Разбор
1) Первое повреждение безвредно; всего мест 6 (по три в каждой копии). С вероятностью 2/6 = 1/3 повреждена кодирующая часть — копия становится псевдогеном. 2) С вероятностью 2/3 поврежден энхансер одной копии (пусть первый энхансер копии 1). Теперь вредны поломки первого энхансера копии 2 и кодирующей части копии 2 — их удалит отбор. Безвредны три: кодирующая часть копии 1, второй энхансер копии 1 (в обоих случаях копия 1 бесполезна — псевдоген) и второй энхансер копии 2 (разделение функций). 3) Вероятность разделения функций 2/3 · 1/3 = 2/9 ≈ 0,22; вероятность псевдогена 1 − 2/9 = 7/9 ≈ 0,78.
Задание 14
Ген А в крыле вида 1 работает в 8 раз сильнее, чем в крыле вида 2. В гибриде F1 аллель вида 1 работает в 2 раза сильнее, чем аллель вида 2. Ген Б у вида 1 работает в 4 раза сильнее, и в гибриде отношение аллелей тоже 4. Какая доля различия в работе каждого гена вызвана цис-изменениями, а какая — транс-изменениями? Объясните логику опыта.
Разбор
1) В гибриде обе аллели находятся в одном ядре с одинаковыми транскрипционными факторами, поэтому различие аллелей в гибриде отражает только цис-различия. 2) Ген А: доля цис = log 2 / log 8 = 1/3, транс — 2/3: собственный энхансер усиливает работу в 2 раза, а транс-факторы вида 1 — ещё в 4 раза (2 · 4 = 8). 3) Ген Б: log 4 / log 4 = 1 — различие целиком вызвано изменениями в самом гене (энхансере), транс-факторы видов не различаются.
Задание 15
Слепых пещерных тетр из двух пещер скрестили. Все гибриды F1 оказались зрячими. Среди 112 рыб F2 63 были зрячими, 49 — слепыми. Объясните результаты и определите генотипы рыб каждой пещеры. Каким оказался бы F1, если бы слепоту в обеих пещерах вызывала мутация одного гена?
Разбор
1) Зрячий F1 — мутации комплементируют друг друга, значит, слепота в разных пещерах вызвана мутациями разных генов. 2) 63 : 49 = 9 : 7 — комплементарное взаимодействие двух генов: зрение есть только при наличии доминантных аллелей обоих генов (A_B_). 3) Рыбы одной пещеры aaBB, другой AAbb, F1 AaBb. 4) Если бы мутации были в одном гене (aa × aa), все гибриды F1 были бы слепыми. Вывод: глаза у рыб разных пещер утрачивались независимо, разными мутациями — пример параллельной эволюции.
Литература
- Северцов А. Н. Морфологические закономерности эволюции. М.; Л.: Изд-во АН СССР, 1939.
- Шмальгаузен И. И. Факторы эволюции (теория стабилизирующего отбора). М.; Л.: Изд-во АН СССР, 1946.
- Кэрролл Ш. Бесконечные формы прекрасного: новая наука эво-дево. М.: Corpus, 2015.
- Lewis E. B. A gene complex controlling segmentation in Drosophila // Nature. 1978. Vol. 276. P. 565–570.
- Halder G., Callaerts P., Gehring W. J. Induction of ectopic eyes by targeted expression of the eyeless gene in Drosophila // Science. 1995. Vol. 267. P. 1788–1792.
- Shubin N., Tabin C., Carroll S. Deep homology and the origins of evolutionary novelty // Nature. 2009. Vol. 457. P. 818–823.
- Carroll S. B. Evo-devo and an expanding evolutionary synthesis: a genetic theory of morphological evolution // Cell. 2008. Vol. 134. P. 25–36.
- Hoekstra H. E., Coyne J. A. The locus of evolution: evo devo and the genetics of adaptation // Evolution. 2007. Vol. 61. P. 995–1016.
- Chan Y. F. et al. Adaptive evolution of pelvic reduction in sticklebacks by recurrent deletion of a Pitx1 enhancer // Science. 2010. Vol. 327. P. 302–305.
- Gompel N. et al. Chance caught on the wing: cis-regulatory evolution and the origin of pigment patterns in Drosophila // Nature. 2005. Vol. 433. P. 481–487.
- Kvon E. Z. et al. Progressive loss of function in a limb enhancer during snake evolution // Cell. 2016. Vol. 167. P. 633–642.
- Nakamura T. et al. Digits and fin rays share common developmental histories // Nature. 2016. Vol. 537. P. 225–228.
- Force A. et al. Preservation of duplicate genes by complementary, degenerative mutations // Genetics. 1999. Vol. 151. P. 1531–1545.
- Xia B. et al. On the genetic basis of tail-loss evolution in humans and apes // Nature. 2024. Vol. 626. P. 1042–1048.
- Marlétaz F. et al. The hagfish genome and the evolution of vertebrates // Nature. 2024. Vol. 627. P. 811–820.
- Heide M. et al. Human-specific ARHGAP11B increases size and folding of primate neocortex in the fetal marmoset // Science. 2020. Vol. 369. P. 546–550.
- Coen E. S., Meyerowitz E. M. The war of the whorls: genetic interactions controlling flower development // Nature. 1991. Vol. 353. P. 31–37.
Обсуждение
Загружаем обсуждение…