
Японскому биохимику Рэйдзи Оказаки было четырнадцать лет, когда 6 августа 1945 года на его родной город Хиросиму сбросили атомную бомбу. Он выжил, стал учёным и в 1960-х годах вместе с женой Цунэко Оказаки занялся вопросом, который тогда казался неразрешимым: как ДНК-полимераза, умеющая наращивать цепь лишь в одном направлении, копирует обе антипараллельные цепи сразу. В 1968 году они нашли ответ — короткие фрагменты новой ДНК, которые сейчас называют фрагментами Оказаки [1]. Через семь лет Рэйдзи Оказаки умер от лейкоза, вероятно вызванного облучением, а Цунэко продолжила их общую работу.
Это третья статья серии о клеточном цикле и делении клетки. Принципы репликации — комплементарность, антипараллельность, полуконсервативность — разобраны в статье «Репликация ДНК: принципы». Здесь — как эти принципы воплощаются на практике: какие ферменты работают в репликативной вилке, почему одна новая цепь строится непрерывно, а другая — фрагментами, и как клетка добивается почти безошибочного копирования.
- 1. Что нужно сделать при репликации
- 2. Как разбирали машину репликации
- 3. С чего начинается: точки начала репликации
- 4. Расплетание: хеликаза, топоизомеразы и белки-«распорки»
- 5. Праймаза: как начать новую цепь
- 6. ДНК-полимеразы
- 7. Лидирующая и отстающая цепи
- 8. Как открыли фрагменты Оказаки
- 9. Удаление праймеров и сшивание фрагментов
- 10. Реплисома: как всё работает вместе
- 11. Точность: три ступени защиты от ошибок
- 12. Репарация: ремонт повреждённой ДНК
- 13. Ошибки оставляют следы
- 14. Лекарства, действующие на репликацию
- 15. Окончание репликации и проблема концов
- 16. Что происходит за вилкой: сборка хроматина
- 17. Когда вилка спотыкается
- 18. Репликация ДНК митохондрий
- 19. Репликация у прокариот и эукариот
- 20. Как возник аппарат репликации
- 21. Ферменты репликации в лаборатории
- 22. Итог: как устроена репликация
- 23. Частые ошибки
- 24. Интересные факты
- 25. Частые вопросы
- 26. ЕГЭ
- 27. Для олимпиад
- 28. Задания с разбором
- Литература
1. Что нужно сделать при репликации
Удвоить молекулу ДНК — значит выполнить сразу много действий, и каждое требует своего фермента или белка.
| Задача | Кто её решает |
|---|---|
| Найти место, откуда начать | белки, узнающие точку начала репликации |
| Разделить две цепи | хеликаза |
| Снять напряжение перед вилкой | топоизомеразы |
| Не дать разошедшимся цепям снова слипнуться | белки, связывающие одноцепочечную ДНК |
| Начать новую цепь | праймаза — синтезирует РНК-затравку |
| Нарастить цепь ДНК | ДНК-полимераза |
| Удержать полимеразу на матрице | «скользящий зажим» — кольцевой белок вокруг ДНК |
| Удалить затравки и заполнить промежутки | ферменты, разрушающие РНК, и ДНК-полимераза |
| Сшить фрагменты | ДНК-лигаза |
| Исправить ошибки | корректорская активность полимеразы и системы репарации |
Все эти белки работают не по отдельности, а собраны в единую машину — реплисому, которая движется вдоль ДНК, расплетая её впереди и оставляя позади две готовые двойные спирали. Реплисома кишечной палочки содержит больше десятка разных белков, реплисома эукариот — несколько десятков. Разберём её работу по порядку.
Определения. Точка начала репликации — участок ДНК, с которого начинается удвоение. Репликативная вилка — место, где двойная спираль расплетается и строятся новые цепи. Репликон — участок ДНК, реплицируемый от одной точки начала. Праймер — короткая РНК-затравка, от которой начинается синтез ДНК. Лидирующая цепь — новая цепь, синтезируемая непрерывно. Отстающая цепь — новая цепь, синтезируемая фрагментами Оказаки.
2. Как разбирали машину репликации
| Год | Открытие |
|---|---|
| 1958 | Корнберг выделяет первую ДНК-полимеразу; Мезельсон и Сталь доказывают полуконсервативную репликацию |
| 1963 | Кернс видит реплицирующуюся кольцевую хромосому; Жакоб, Бреннер и Кюзен вводят понятие о репликоне |
| 1968 | Оказаки открывают короткие фрагменты новой ДНК; Хьюберман и Риггс показывают множество точек начала у млекопитающих |
| 1969–1971 | мутант без фермента Корнберга; открытие главной репликативной ДНК-полимеразы III |
| 1976 | открыта ДНК-гираза |
| 1979 | найдены точки начала репликации у дрожжей |
| 1992 | выделен белковый комплекс, узнающий точки начала у эукариот |
| 2015 | репликация хромосомы дрожжей воссоздана в пробирке из очищенных белков |
3. С чего начинается: точки начала репликации
Удвоение ДНК не начинается с произвольного места. Оно идёт от особых участков — точек начала репликации. Их узнают специальные белки: садятся на ДНК, немного раздвигают цепи и привлекают хеликазу. От каждой точки в обе стороны расходятся две репликативные вилки. Участок между ними, где уже есть две пары цепей, на электронных микрофотографиях выглядит как «глазок» или «пузырь».
Понятие о репликоне — единице репликации, которая начинается с одной точки, — сформулировали в 1963 году Франсуа Жакоб, Сидней Бреннер и Франсуа Кюзен [2]. Они предположили, что каждая реплицирующаяся молекула должна иметь «стартовый» участок и белок, который его узнаёт. Это подтвердилось: у кишечной палочки точка начала называется oriC, это участок длиной около 250 пар нуклеотидов, а узнающий её белок — DnaA.
| Признак | Бактерии | Эукариоты |
|---|---|---|
| Хромосомы | одна кольцевая | несколько линейных |
| Точек начала | одна на хромосому | тысячи на каждой хромосоме |
| Как завершается | две вилки встречаются на противоположной стороне кольца | «глазки» соседних точек сливаются; концы хромосом достраивает теломераза |
| Когда начинается | когда клетка выросла до нужного размера; у быстро растущих — до окончания предыдущего раунда | только в S-периоде, каждая точка — один раз за цикл |
В 1968 году американские исследователи Джоэл Хьюберман и Артур Риггс поместили на фотоэмульсию длинные нити ДНК клеток млекопитающих, пометив их радиоактивным тимидином. На снимках были видны цепочки меченых участков, расположенных один за другим, — каждый участок начинался в своей точке и рос в обе стороны [3]. Так доказали, что хромосома эукариот реплицируется сразу от множества точек начала и что вилки движутся от каждой точки в двух направлениях.
У пекарских дрожжей точки начала — короткие участки длиной около ста пар нуклеотидов с характерной последовательностью; если вставить такой участок в кольцевую ДНК, она начинает самостоятельно размножаться в дрожжевой клетке [4]. У человека и других позвоночных особой последовательности у точек начала нет: их положение определяется скорее устройством хроматина, чем последовательностью нуклеотидов. Как это работает, до конца не ясно.
Как измеряют скорость вилки
Скорость движения вилок у человека измеряют красивым методом растянутых нитей. Клеткам на 20 минут дают один аналог тимидина, затем на 20 минут — другой. Потом ДНК осторожно выделяют и растягивают на стекле в длинные прямые нити, а два аналога окрашивают антителами в разные цвета, например красный и зелёный. На каждой нити видны участки «красный — зелёный», по которым шла вилка. Зная время мечения и длину окрашенного участка, вычисляют скорость: если зелёный участок длиной 40 тысяч нуклеотидов образовался за 20 минут, вилка шла со скоростью 2 тысячи нуклеотидов в минуту. Участок «зелёный — красный — зелёный» означает точку начала, от которой вилки разошлись в обе стороны, а по расстоянию между такими точками определяют, как часто расположены работающие точки начала.
Когда включается каждая точка
У человека на точки начала репликации загружается примерно в десять раз больше хеликаз, чем реально понадобится. В каждом S-периоде срабатывает лишь часть точек, причём в определённом порядке: одни — в начале S-периода, другие — в середине, третьи — в конце. Точки в активных, рыхло упакованных участках хроматина обычно срабатывают рано, а в плотном гетерохроматине — поздно. Остальные точки остаются «спящими», запасными: они включаются, если соседняя вилка остановилась на повреждении, и участок между ними иначе остался бы неудвоенным.
Простой расчёт показывает, зачем нужна такая система. Если соседние точки начала разделены в среднем 100 тысячами нуклеотидов, а вилка движется со скоростью около 2 тысяч нуклеотидов в минуту, то две вилки, идущие навстречу друг другу от соседних точек, встретятся через 100 000 / 2 / 2000 = 25 минут. Значит, весь S-период мог бы занять меньше получаса. На деле он длится 6–8 часов, потому что точки включаются не одновременно, а волнами — так клетка распределяет нагрузку на запасы нуклеотидов и ферментов.
4. Расплетание: хеликаза, топоизомеразы и белки-«распорки»
Хеликаза
Чтобы строить новые цепи, нужно сначала разделить старые. Это делает хеликаза — фермент в форме кольца из шести белковых субъединиц (у бактерий они одинаковые, у эукариот — шесть разных, но похожих друг на друга). Кольцо надевается на одну из цепей ДНК и движется вдоль неё, раздвигая цепи, как клин, и разрывая водородные связи между основаниями. Энергию для этого хеликаза получает, расщепляя АТФ: на каждую разделённую пару нуклеотидов уходит примерно одна-две молекулы АТФ.
У эукариот хеликазу собирают на точках начала репликации ещё в периоде G₁, но она остаётся неактивной: кольца надеты сразу на обе цепи и не могут двигаться. Только в S-периоде, после «команды» особых киназ, кольца перестраиваются, охватывают каждое по одной цепи и расходятся в противоположные стороны, открывая две вилки [5]. Так устроено «лицензирование», о котором шла речь в статье «Клеточный цикл и интерфаза».
Топоизомеразы
Расплетание создаёт проблему. Представьте две нити, свитые в верёвку. Если раздвигать их с одного конца, оставшаяся часть верёвки впереди закручивается всё туже, пока её нельзя будет раскручивать дальше. Перед вилкой репликации ДНК точно так же «перекручивается» — накапливается положительная сверхспирализация. Без помощи вилка вскоре остановилась бы: туго перекрученную ДНК хеликаза расплести уже не может.
Напряжение снимают топоизомеразы. Топоизомеразы I типа разрезают одну цепь ДНК, дают молекуле провернуться вокруг оставшейся цепи и сшивают разрыв. Топоизомеразы II типа разрезают сразу обе цепи, пропускают через разрыв другой участок двойной спирали и сшивают. У бактерий особая топоизомераза II типа — ДНК-гираза — умеет даже вводить в ДНК отрицательные супервитки, используя энергию АТФ; её открыли в 1976 году [6].
Медицина. Топоизомеразы — мишени важных лекарств. Антибиотики фторхинолоны «заклинивают» бактериальную гиразу в момент, когда она разрезала ДНК, и хромосома бактерии разваливается на куски. Некоторые противоопухолевые препараты точно так же действуют на топоизомеразы человека, что особенно опасно для быстро делящихся опухолевых клеток: репликация у них идёт постоянно, и разрывы ДНК возникают снова и снова.
Белки, связывающие одноцепочечную ДНК
Разошедшиеся цепи стремятся снова соединиться, а одноцепочечная ДНК легко повреждается и сворачивается в шпильки. Поэтому на неё сразу садятся многочисленные белки, связывающие одноцепочечную ДНК. Они покрывают цепь, как бусины нитку, и держат её расправленной, пока она служит матрицей. Эти белки не разрывают водородных связей и ничего не синтезируют — они лишь сохраняют состояние, которого достигла хеликаза.
| Белок | Что делает | Что будет без него |
|---|---|---|
| Хеликаза | разделяет цепи, разрывая водородные связи, с затратой АТФ | цепи не расходятся, вилка не образуется |
| Топоизомераза | снимает напряжение перед вилкой, временно разрезая ДНК | ДНК перекручивается, и вилка останавливается |
| Белки, связывающие одноцепочечную ДНК | удерживают разошедшиеся цепи расправленными | цепи снова слипаются или образуют шпильки; синтез нарушается |
5. Праймаза: как начать новую цепь
У ДНК-полимеразы есть принципиальное ограничение: она умеет только удлинять уже имеющуюся цепь — присоединять нуклеотиды к готовому 3′-концу. Начать цепь «с нуля», когда напротив матрицы ещё ничего нет, она не может.
Эту задачу решает праймаза — фермент, который синтезирует на матрице короткую цепочку РНК, РНК-праймер (затравку). Праймаза, как и РНК-полимераза, может начать цепь без готового 3′-конца. У человека праймер имеет длину около 10 нуклеотидов. К 3′-концу праймера ДНК-полимераза и присоединяет первые дезоксирибонуклеотиды. Позднее все праймеры удаляются, а освободившиеся места заполняются ДНК, так что в готовых молекулах РНК не остаётся.
Почему затравка из РНК?
Казалось бы, проще начинать цепь сразу из ДНК. Но здесь есть тонкость. Фермент, начинающий новую цепь, не может проверять свою работу: проверка, как мы увидим, требует готовой правильной пары на конце цепи, а у самого начала её нет. Поэтому первые нуклеотиды любой новой цепи синтезируются с большим числом ошибок. Если бы они были из ДНК, ошибки оставались бы в геноме. А РНК-затравку клетка легко узнаёт как «временную» и целиком удаляет, заменяя на ДНК, синтезированную точной полимеразой. Иными словами, затравка из РНК — способ сделать неизбежно небрежное начало цепи одноразовым.
У эукариот праймаза работает в паре с особой ДНК-полимеразой (её называют α). Праймаза синтезирует РНК-затравку, полимераза α продолжает её коротким отрезком ДНК, а дальше синтез передаётся другим, более точным и быстрым полимеразам.
6. ДНК-полимеразы
Основной фермент репликации — ДНК-полимераза. Она присоединяет нуклеотиды к 3′-концу растущей цепи, выбирая каждый по комплементарности нуклеотиду матрицы. Строительный материал — дезоксирибонуклеозидтрифосфаты; при включении в цепь от каждого отщепляются два концевых фосфата, и энергия этой реакции идёт на образование связи между соседними нуклеотидами.
У полимеразы форма, которую сравнивают с правой рукой: «ладонь» с активным центром, «большой палец» и «пальцы», которые охватывают матрицу и входящий нуклеотид. Когда правильный нуклеотид встаёт напротив матрицы, «пальцы» смыкаются, и происходит реакция. Неправильный нуклеотид не подходит по форме к паре, «пальцы» сомкнуться не могут, и он чаще всего уходит, так и не встроившись.
В клетке не одна полимераза, а несколько, и у каждой своя работа.
| Организм | Полимераза | Роль |
|---|---|---|
| Кишечная палочка | ДНК-полимераза III | главная репликативная: синтезирует обе новые цепи; очень быстрая и точная |
| Кишечная палочка | ДНК-полимераза I (фермент Корнберга) | удаляет РНК-затравки и заполняет образовавшиеся промежутки; участвует в репарации |
| Эукариоты | полимераза α (вместе с праймазой) | начинает каждую новую цепь и каждый фрагмент Оказаки |
| Эукариоты | полимераза ε | синтезирует лидирующую цепь |
| Эукариоты | полимераза δ | синтезирует отстающую цепь и достраивает фрагменты Оказаки |
То, что фермент Корнберга — не главная полимераза репликации, выяснилось в 1969 году, когда Паула Де Лучия и Джон Кернс нашли мутантную кишечную палочку почти без его активности [7]. Мутант нормально размножался, хотя был чувствителен к ультрафиолету. Значит, хромосому удваивает другой фермент — его и нашли вскоре: им оказалась ДНК-полимераза III.
Скользящий зажим
Сама по себе полимераза быстро «соскакивает» с матрицы: присоединит несколько десятков нуклеотидов — и отделяется. Для репликации, где нужно без перерыва построить цепь длиной в миллионы нуклеотидов, этого мало. Поэтому полимераза прикреплена к особому кольцевому белку — скользящему зажиму, который охватывает двойную спираль и скользит по ней, как бусина по нитке. Особый белковый комплекс раскрывает кольцо и надевает его на ДНК в месте, где начинается синтез. Благодаря зажиму полимераза III кишечной палочки, не отрываясь, присоединяет десятки тысяч нуклеотидов. Число нуклеотидов, которые полимераза присоединяет за одно «прикрепление» к матрице, называют её процессивностью.
7. Лидирующая и отстающая цепи
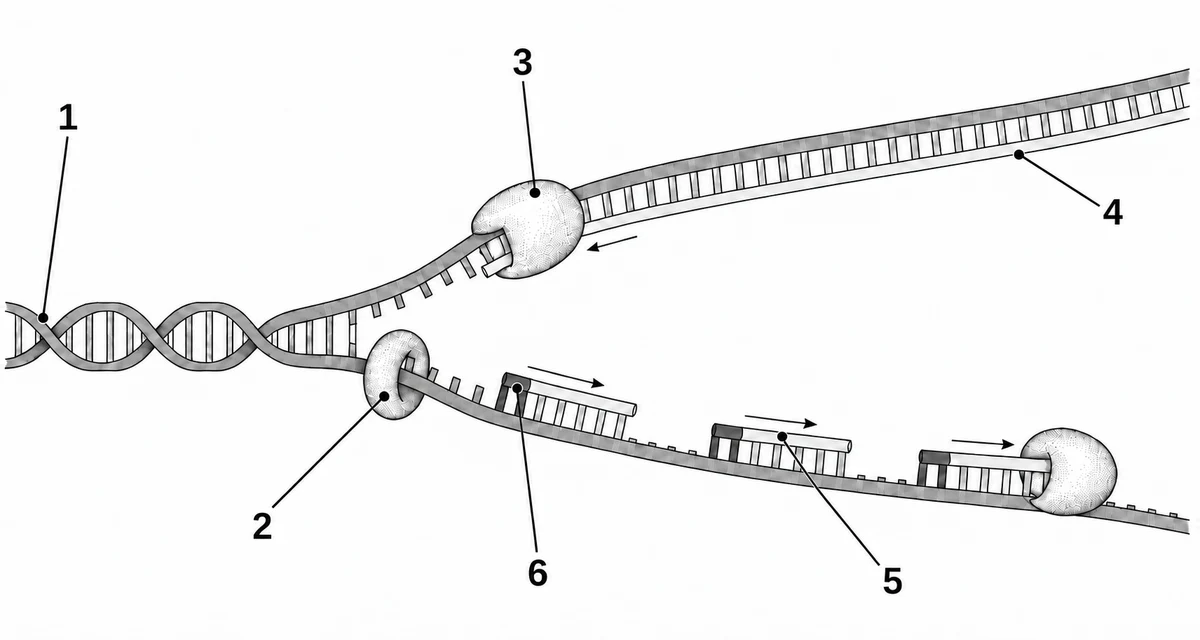
Теперь самое интересное. Две матричные цепи в вилке антипараллельны, а полимераза строит новую цепь только в направлении 5′ → 3′. Вилка движется в одну сторону — туда, где хеликаза расплетает ДНК. Значит, на двух матрицах синтез идёт по-разному.
- На одной матрице направление синтеза совпадает с движением вилки. Полимераза идёт следом за хеликазой и строит новую цепь непрерывно, начав её с одного-единственного праймера. Эту новую цепь называют лидирующей (ведущей).
- На другой матрице синтез должен идти в сторону, противоположную движению вилки. Полимераза может работать только на участке, уже открытом хеликазой, и строит цепь короткими отрезками: каждый начинается с нового праймера рядом с вилкой и растёт назад, к предыдущему отрезку. Такую цепь называют отстающей, а отрезки — фрагментами Оказаки.
| Признак | Лидирующая цепь | Отстающая цепь |
|---|---|---|
| Направление синтеза относительно движения вилки | по ходу вилки | против хода вилки |
| Характер синтеза | непрерывный | прерывистый, фрагментами |
| Число праймеров | один в начале | по одному на каждый фрагмент |
| Фрагменты Оказаки | не образуются | образуются; у бактерий 1000–2000 нуклеотидов, у эукариот 100–200 |
| Полимераза у эукариот | ε | δ |
Важно понимать: лидирующая и отстающая — это не свойства старых цепей, а свойства новых, и одна и та же старая цепь бывает матрицей для лидирующей цепи в одной вилке и для отстающей — в другой. От точки начала расходятся две вилки в противоположные стороны, и в левой вилке лидирующей будет одна новая цепь, а в правой — другая.
8. Как открыли фрагменты Оказаки
Мысль о прерывистом синтезе высказывали и раньше, но доказать её было непросто. Супруги Оказаки придумали, как «поймать» новую ДНК в момент синтеза. Они давали бактериям, заражённым фагом, или самим бактериям меченый тимидин всего на несколько секунд, а затем сразу останавливали реакцию и определяли размер меченых молекул [1].
- После самого короткого импульса метка оказывалась в коротких цепях длиной примерно в тысячу-две нуклеотидов.
- Если после импульса дать клеткам поработать ещё некоторое время без метки, метка переходила в длинные цепи: короткие фрагменты соединялись.
- У мутантов с дефектной ДНК-лигазой короткие фрагменты накапливались и не соединялись.
Это и было доказательство: часть новой ДНК синтезируется короткими кусками, которые затем сшивает лигаза. Позже выяснилось, что на одной из новых цепей фрагментов нет — она строится непрерывно, хотя и её, из-за случайных разрывов, иногда находили в виде кусков.
9. Удаление праймеров и сшивание фрагментов
Каждый фрагмент Оказаки начинается с РНК-праймера. Когда полимераза, строя следующий фрагмент, доходит до праймера предыдущего, работа ещё не закончена.
- Удаление праймера. У кишечной палочки ДНК-полимераза I, двигаясь вперёд, одновременно разрушает РНК праймера перед собой и заменяет её на ДНК. У эукариот полимераза δ «отодвигает» праймер, а особые ферменты отрезают его и разрушают РНК.
- Заполнение промежутка. На месте праймера полимераза достраивает ДНК.
- Сшивание. Между последним нуклеотидом одного фрагмента и первым нуклеотидом следующего остаётся разрыв в остове цепи — нет связи между сахаром и фосфатом. Его закрывает ДНК-лигаза, используя энергию АТФ (у бактерий — другого вещества, НАД⁺). Лигаза ничего не синтезирует, она только соединяет готовые концы. Если у бактерии лигаза не работает, отстающая цепь так и остаётся набором отдельных кусков, и бактерия погибает.
Посчитаем, какой объём работы это означает. При удвоении генома человека из 6,4 млрд пар нуклеотидов к каждой из старых цепей достраивается новая, то есть синтезируется около 12,8 млрд нуклеотидов новой ДНК, из них примерно половина — в отстающих цепях. Если фрагмент Оказаки длиной около 150 нуклеотидов, то за один S-период клетка синтезирует, обрабатывает и сшивает примерно 6,4·10⁹ / 150 ≈ 43 млн фрагментов.
10. Реплисома: как всё работает вместе
Если представить вилку как в учебнике, кажется, что две полимеразы — на лидирующей и отстающей цепях — работают независимо и движутся в противоположные стороны. На самом деле они собраны в одном комплексе вместе с хеликазой и праймазой и движутся вместе с вилкой.
Как может одна машина синтезировать обе цепи, если на отстающей цепи синтез идёт «назад»? Решение остроумно. Матрица отстающей цепи образует петлю: полимераза отстающей цепи тянет её за собой, и в петле синтезируется очередной фрагмент Оказаки в нужном направлении. Когда фрагмент дошёл до предыдущего, полимераза отпускает петлю, перескакивает на новый праймер у вилки, и образуется новая петля. Петля то растёт, то исчезает, как кулиса тромбона при игре; поэтому эту модель так и называют — «тромбонной».
| Показатель | Кишечная палочка | Клетки человека |
|---|---|---|
| Скорость вилки | около 1000 нуклеотидов в секунду | около 30–50 нуклеотидов в секунду |
| Длина фрагментов Оказаки | 1000–2000 нуклеотидов | 100–200 нуклеотидов (примерно по длине ДНК в одной нуклеосоме) |
| Праймер | около 10 нуклеотидов РНК | около 10 нуклеотидов РНК и около 20 нуклеотидов ДНК от полимеразы α |
| Скользящий зажим | кольцо из двух белков | кольцо из трёх белков |
Почему у эукариот вилка движется в 20–30 раз медленнее? Их ДНК упакована в нуклеосомы: перед вилкой хроматин нужно разобрать, а за ней — снова собрать. Короткие фрагменты Оказаки у эукариот как раз соответствуют длине ДНК на одной нуклеосоме. Медленную вилку эукариоты компенсируют огромным числом точек начала.
Репликация из очищенных белков
Долгое время было неясно, хватает ли известных белков, чтобы запустить репликацию эукариотической хромосомы. В 2015 году британские исследователи под руководством Джона Диффли собрали работающую систему репликации дрожжей в пробирке из 16 очищенных белковых комплексов — всего около 42 белков [8]. В такой смеси, как в клетке, хеликазы загружались на точки начала, затем активировались под действием киназ, вилки расходились, и синтезировались обе новые цепи. Так было доказано, что набор основных участников эукариотической репликации известен полностью.
11. Точность: три ступени защиты от ошибок
Итоговая частота ошибок репликации — около одной на 10⁹–10¹⁰ нуклеотидов [9]. Такая точность достигается не одним механизмом, а тремя последовательными ступенями, каждая из которых исправляет большую часть ошибок, пропущенных предыдущей.
| Ступень | Механизм | Ошибок на нуклеотид после неё |
|---|---|---|
| 1. Выбор нуклеотида | полимераза встраивает нуклеотид, подходящий к матрице по форме и водородным связям | 10⁻⁴–10⁻⁵ |
| 2. Корректура | полимераза распознаёт неправильный нуклеотид на 3′-конце, отщепляет его и повторяет попытку | около 10⁻⁷ |
| 3. Исправление неспаренных оснований | особые белки находят неправильные пары в готовой ДНК, вырезают участок новой цепи и синтезируют его заново | 10⁻⁹–10⁻¹⁰ |
Корректура
Многие ДНК-полимеразы имеют два активных центра. Один присоединяет нуклеотиды, другой — экзонуклеазный — отщепляет их с 3′-конца цепи, то есть в обратном направлении (3′ → 5′). Если на конце растущей цепи оказался неправильный нуклеотид, конец «болтается»: неправильная пара плохо держится, и цепь перескакивает в экзонуклеазный центр. Там ошибочный нуклеотид отрезается, цепь возвращается, и синтез продолжается. Так полимераза сама проверяет и исправляет свою работу — примерно в сто раз снижая число ошибок.
Вспомните объяснение из статьи о принципах репликации: именно синтез в направлении 5′ → 3′ позволяет отрезать ошибочный нуклеотид без потери энергии — следующий нуклеотид принесёт свой трифосфат.
Исправление неспаренных оснований
Ошибки, ускользнувшие от корректуры, находит система исправления неспаренных оснований. Её белки скользят вслед за вилкой, находят «неправильные» пары (например, Г напротив Т), определяют, какая из двух цепей новая, вырезают кусок новой цепи с ошибкой и поручают полимеразе синтезировать его заново. У кишечной палочки новую цепь узнают по отсутствию метильных групп в последовательностях ГАТЦ, у эукариот — по разрывам между фрагментами Оказаки и связи с белками вилки.
Значение этой системы для человека хорошо видно на примере наследственного синдрома Линча. В 1993 году было показано, что у людей с этим синдромом мутантен один из генов системы исправления неспаренных оснований [10]. В их клетках мутации накапливаются в сотни раз быстрее, и к 70 годам у многих из них развивается рак толстой кишки или других органов. Это один из самых частых наследственных раковых синдромов: он встречается примерно у одного человека из трёхсот.
12. Репарация: ремонт повреждённой ДНК
Ошибки репликации — не единственная угроза. ДНК постоянно повреждается и без всякого копирования. В 1993 году шведский биохимик Томас Линдаль подсчитал, что в каждой клетке человека за сутки из ДНК самопроизвольно выпадают тысячи азотистых оснований, сотни цитозинов теряют аминогруппу и превращаются в урацил, а ещё больше повреждений вызывают активные формы кислорода, образующиеся при дыхании [11]. Ультрафиолет солнечного света «склеивает» соседние тимины в одной цепи, ионизирующее излучение разрывает цепи. Без ремонта повреждения быстро накапливались бы, и клетка вскоре перестала бы правильно читать и копировать свои гены.
Поэтому в клетках работают системы репарации — ремонта ДНК. Почти все они используют один и тот же принцип: повреждённый участок одной цепи вырезается, а затем ДНК-полимераза заново синтезирует его, используя как матрицу вторую, целую цепь. Двойная спираль — это наследственная информация, записанная дважды; пока одна копия цела, вторую можно восстановить.
| Повреждение | Причина | Как исправляется |
|---|---|---|
| Неправильная пара оснований | ошибка репликации | исправление неспаренных оснований: вырезается участок новой цепи |
| Изменённое основание (урацил вместо цитозина, окисленный гуанин) | самопроизвольные химические реакции, активные формы кислорода | вырезается одно основание, затем нуклеотид, и пробел заполняется |
| Тиминовый димер | ультрафиолет | вырезается участок длиной около 30 нуклеотидов вокруг повреждения |
| Разрыв обеих цепей | ионизирующее излучение, остановка вилки | соединение концов или восстановление по сестринской хроматиде |
Особенно наглядно значение репарации у людей с пигментной ксеродермой — редкой наследственной болезнью. В 1968 году американский биофизик Джеймс Кливер показал, что клетки таких больных не могут вырезать повреждения, вызванные ультрафиолетом [12]. Кожа больных чрезвычайно чувствительна к солнцу, и рак кожи у них возникает в тысячи раз чаще, чем у других людей, нередко ещё в детстве. Им приходится всю жизнь защищаться от солнечного света.
Нарушение работы хеликаз тоже приводит к болезням. При синдроме Вернера мутантна одна из хеликаз, участвующих в репарации и в спасении остановившихся вилок [13]. Клетки таких больных быстрее исчерпывают способность делиться, и уже к 20–30 годам у людей появляются признаки старения: седина, катаракта, атеросклероз, повышен риск опухолей. При родственном синдроме Блума, связанном с мутацией другой хеликазы, в клетках резко учащены обмены участками между сестринскими хроматидами, а риск самых разных опухолей очень высок.
В 2015 году Нобелевскую премию по химии получили Томас Линдаль, Пол Модрич и Азиз Санджар — за изучение механизмов репарации ДНК: вырезания отдельных оснований, исправления неспаренных оснований и вырезания нуклеотидов.
13. Ошибки оставляют следы
Разные источники повреждений и ошибок оставляют в ДНК характерные следы. Ультрафиолет вызывает замены цитозина на тимин в местах, где рядом стоят два пиримидина, — именно там образуются димеры. Вещества табачного дыма чаще всего приводят к заменам гуанина на тимин. Нарушение исправления неспаренных оснований даёт много мелких вставок и выпадений в повторяющихся участках. Отсутствие корректуры у полимеразы ε — свою, особую картину замен.
Сегодня, прочитав геном опухоли, можно по набору мутаций, словно по почерку, определить, что их вызвало: солнце, курение, дефект репарации или ошибки репликации. Эти наборы называют мутационными подписями. Например, в меланоме кожи преобладает подпись ультрафиолета, а в раке лёгкого у курильщиков — подпись табачного дыма: курение буквально записывается в последовательности ДНК клеток лёгкого. Такой анализ помогает понять причины рака и подобрать лечение: опухоли с дефектом исправления неспаренных оснований, несущие тысячи мутаций, особенно хорошо отвечают на лекарства, усиливающие иммунный ответ на опухоль.
14. Лекарства, действующие на репликацию
Каждый фермент репликации — потенциальная мишень для лекарства. Если фермент бактерии или вируса устроен иначе, чем фермент человека, можно подобрать вещество, которое выключит именно его.
| Мишень | Вещества | Применение |
|---|---|---|
| Бактериальная ДНК-гираза и топоизомераза IV | фторхинолоны | антибиотики против многих бактерий |
| Вирусные ДНК-полимеразы | ацикловир и сходные вещества | герпес, ветряная оспа, опоясывающий лишай |
| Обратная транскриптаза | аналоги нуклеозидов, обрывающие цепь, и неконкурентные ингибиторы | лечение ВИЧ-инфекции |
| Топоизомераза I человека | производные камптотецина | противоопухолевые препараты |
| Топоизомераза II человека | этопозид, доксорубицин | противоопухолевые препараты |
| ДНК-полимеразы человека | цитарабин — аналог нуклеозида | лечение лейкозов |
Камптотецин был найден в коре китайского дерева камптотеки, а доксорубицин — в почвенных бактериях-стрептомицетах. Многие из этих веществ «заклинивают» топоизомеразу в момент, когда она разрезала ДНК: разрыв остаётся несшитым, и при подходе вилки он превращается в разрыв обеих цепей. Для быстро делящихся опухолевых клеток это смертельно.
15. Окончание репликации и проблема концов
У бактерий две вилки, разошедшиеся от единственной точки начала, встречаются на противоположной стороне кольцевой хромосомы, в особой области окончания. Там вилки останавливаются, последние промежутки заполняются, и получаются две кольцевые дочерние молекулы, продетые одна в другую. Разъединяет их топоизомераза, разрезающая обе цепи одной молекулы.
У эукариот хромосомы линейные, и это создаёт трудность, которую называют проблемой концевой недорепликации. На самом конце хромосомы последний фрагмент Оказаки отстающей цепи начинается с праймера. Когда праймер удаляют, на его месте должна встать ДНК, но достроить её нечем: полимеразе нужен 3′-конец впереди, а впереди уже конец молекулы. Поэтому при каждой репликации новые цепи оказываются немного короче матриц, и хромосомы постепенно укорачиваются.
Клетка защищается двумя способами. Во-первых, на концах хромосом находятся теломеры — тысячи повторов короткой последовательности, не содержащие генов; их укорочение долго ничему не вредит. Во-вторых, в некоторых клетках работает фермент теломераза, который достраивает теломеры, используя собственную РНК как матрицу. Подробнее — в статье «Теломеры и теломераза».
16. Что происходит за вилкой: сборка хроматина
У эукариот ДНК намотана на гистоны и образует нуклеосомы. Перед вилкой нуклеосомы приходится разбирать, а за вилкой — собирать заново на обеих дочерних молекулах. Старые гистоны распределяются между дочерними молекулами примерно поровну, а недостающие добавляются из только что синтезированных в S-периоде.
Это важно не только для упаковки. На старых гистонах есть химические метки — метильные и ацетильные группы, — которые отмечают, какие гены в клетке работают, а какие выключены. Когда старые гистоны с метками оказываются на дочерних молекулах, особые ферменты «копируют» метки на соседние новые гистоны. Так вместе с последовательностью ДНК передаётся и информация о том, какие гены должны работать в клетке этого типа. То же касается метильных групп на цитозинах самой ДНК: после репликации фермент метилирует новую цепь напротив метилированных участков старой. Поэтому клетка печени после деления даёт клетки печени, а не нейроны.
17. Когда вилка спотыкается
Репликация не всегда идёт гладко. Вилка может остановиться на повреждении матрицы, на плотно упакованном участке, на «столкновении» с РНК-полимеразой, транскрибирующей ген на той же ДНК. Такую ситуацию называют репликационным стрессом. Остановившаяся вилка уязвима: она может распасться, и в ДНК возникнет разрыв обеих цепей.
У клетки есть несколько способов спасти положение:
- включить запасные точки начала, чтобы участок удвоился от соседней вилки;
- использовать особые полимеразы, способные синтезировать ДНК прямо напротив повреждения, — они не очень точны, но позволяют вилке пройти «трудное место»;
- временно «развернуть» вилку и обойти повреждение, используя как матрицу уже готовую сестринскую молекулу;
- задержать клетку в G₂, пока не будут устранены все разрывы.
Особенно интересен пример с полимеразами, обходящими повреждения. Одна из них, полимераза η, умеет правильно ставить два аденина напротив тиминового димера — повреждения, вызванного ультрафиолетом. Её активный центр просторнее обычного и вмещает «склеенную» пару тиминов. У людей, у которых ген этой полимеразы мутантен, развивается особая форма пигментной ксеродермы: вырезание повреждений у них работает, но вилки на димерах вынуждены прибегать к менее точным полимеразам, и в коже накапливаются мутации.
Во многих опухолях клетки делятся слишком часто, вилки сталкиваются чаще, и репликационный стресс становится одним из главных источников новых мутаций и перестроек хромосом. Некоторые новые противоопухолевые лекарства как раз выключают системы спасения остановившихся вилок — для нормальных клеток это не так опасно, а опухолевые клетки погибают.
18. Репликация ДНК митохондрий
В митохондриях человека есть своя кольцевая ДНК длиной 16 569 пар нуклеотидов; в каждой клетке — от сотен до тысяч её копий. Её удваивает особая полимераза γ, ген которой находится в ядре. Репликация митохондриальной ДНК устроена необычно: по наиболее распространённой модели синтез одной новой цепи начинается в своей точке и долго идёт в одну сторону, вытесняя старую цепь в виде петли, а синтез второй цепи начинается позже, в другой точке, когда первая вилка прошла около двух третей кольца. Фрагментов Оказаки при этом почти нет.
Митохондриальная ДНК реплицируется независимо от клеточного цикла — и в делящихся, и в неделящихся клетках, например в нейронах и мышечных волокнах. Поэтому ошибки её репликации накапливаются в течение всей жизни. Насколько это важно, показал опыт шведских учёных в 2004 году. Они вывели мышей, у которых полимераза γ лишена корректорской активности: мутации в митохондриальной ДНК у таких мышей накапливались в несколько раз быстрее [14]. Животные выглядели нормально в молодости, но затем быстро старели: худели, теряли шерсть, слух и подвижность, их позвоночник искривлялся, и жили меньше года вместо обычных двух с лишним лет. Этот опыт стал важным доводом в пользу того, что ошибки репликации митохондриальной ДНК вносят вклад в старение.
19. Репликация у прокариот и эукариот
| Признак | Прокариоты (кишечная палочка) | Эукариоты (человек) |
|---|---|---|
| Где | в цитоплазме, в области нуклеоида | в ядре (а также в митохондриях и пластидах) |
| Когда | перед делением; раунды могут перекрываться | только в S-периоде, каждый участок один раз |
| Точки начала | одна | десятки тысяч |
| Главные полимеразы | III (синтез), I (удаление праймеров) | α (начало цепей), ε (лидирующая), δ (отстающая) |
| Скорость вилки | около 1000 нуклеотидов/с | около 30–50 нуклеотидов/с |
| Фрагменты Оказаки | 1000–2000 нуклеотидов | 100–200 нуклеотидов |
| Окончание | встреча вилок на кольце | слияние «глазков»; концы достраивает теломераза |
| Хроматин | нет нуклеосом | нуклеосомы разбираются перед вилкой и собираются за ней |
20. Как возник аппарат репликации
Принципы репликации одинаковы у всех клеточных организмов, но белки, которые её выполняют, — нет. И здесь биологов ждал сюрприз. Главные репликативные полимеразы бактерий и эукариот, а также их праймазы и хеликазы, оказались не родственными: у них разное строение, и они, по-видимому, произошли от разных предков. А вот белки репликации архей — одноклеточных организмов без ядра — удивительно похожи на эукариотические: у архей есть кольцевая хеликаза того же типа, что и у эукариот, похожие зажим, праймаза и полимеразы.
Это согласуется с представлением, что эукариоты произошли от архей, поглотивших бактерию, ставшую митохондрией (подробнее — в статье о геномах бактерий, архей и эукариот). Но откуда тогда у бактерий совсем другой набор белков? Одна из гипотез: у общего предка всех живых организмов наследственная информация хранилась в РНК или ДНК копировалась примитивно, а современные системы репликации ДНК возникли независимо дважды — у предков бактерий и у предков архей. Другие учёные считают, что у общего предка была ДНК, а один из наборов белков позже заменился на белки, «заимствованные» у вирусов. Вопрос остаётся открытым.
Интересно. При всём различии белков бактериальные и эукариотические системы решают одни и те же задачи одинаковыми способами: кольцевая хеликаза, кольцевой зажим, РНК-затравки, фрагменты Оказаки. Это пример конвергенции на молекулярном уровне — сходные решения возникли, потому что их диктует сама химия ДНК.
21. Ферменты репликации в лаборатории
Почти каждый фермент репликации стал инструментом биотехнологии.
| Фермент | Откуда | Для чего используют |
|---|---|---|
| Термостабильная ДНК-полимераза | бактерии горячих источников | ПЦР: многократное копирование участка ДНК |
| Полимераза с корректурой | термофильные археи | ПЦР с минимальным числом ошибок — для клонирования генов |
| Полимераза фага φ29 | бактериофаг | размножение всей ДНК из одной клетки: она очень процессивна и сама вытесняет цепь перед собой |
| Обратная транскриптаза | ретровирусы | получение ДНК-копий иРНК; диагностика РНК-вирусов |
| ДНК-лигаза | бактериофаг T4 | «вклеивание» генов в плазмиды при генной инженерии |
Например, при выделении гена для генной инженерии его копируют полимеразой с корректурой, чтобы не внести мутаций, затем вырезают ферментами рестрикции и сшивают лигазой с вектором (подробнее — в статье о синтезе гена и рекомбинантных ДНК). Так знание о том, как клетка копирует ДНК, стало основой целой отрасли.
22. Итог: как устроена репликация
- Репликация начинается в точках начала; от каждой в обе стороны расходятся две вилки.
- Хеликаза разделяет цепи, топоизомеразы снимают напряжение, белки, связывающие одноцепочечную ДНК, удерживают цепи расправленными.
- Праймаза синтезирует РНК-затравку; ДНК-полимераза удлиняет её, присоединяя нуклеотиды только к 3′-концу (синтез 5′ → 3′).
- Лидирующая цепь синтезируется непрерывно по ходу вилки, отстающая — фрагментами Оказаки против хода вилки.
- Праймеры удаляются, промежутки заполняются, ДНК-лигаза сшивает фрагменты.
- Точность обеспечивают три ступени: выбор нуклеотида, корректура полимеразой и исправление неспаренных оснований; итоговая частота ошибок — около 10⁻⁹–10⁻¹⁰.
- Повреждения ДНК, возникающие в течение всей жизни клетки, исправляют системы репарации, используя вторую цепь как матрицу.
- Концы линейных хромосом не могут быть полностью реплицированы обычным путём; их защищают теломеры, а достраивает теломераза.
- Ферменты репликации — мишени многих антибиотиков, противовирусных и противоопухолевых лекарств и инструменты биотехнологии.
23. Частые ошибки
- «Лидирующая и отстающая — это старые цепи ДНК». Это новые цепи. Матрица одной из них в одной вилке — та же старая цепь, что служит матрицей для другой в соседней вилке.
- «Отстающая цепь синтезируется в направлении 3′ → 5′». Обе новые цепи синтезируются только 5′ → 3′; отстающая — короткими фрагментами, каждый из которых растёт 5′ → 3′, но против хода вилки.
- «Хеликаза синтезирует новую цепь». Хеликаза только разделяет цепи; синтезирует ДНК-полимераза.
- «Лигаза присоединяет нуклеотиды». Лигаза соединяет готовые фрагменты, ничего не синтезируя.
- «Праймер состоит из ДНК». Праймер — короткий фрагмент РНК; в конце репликации он удаляется и заменяется ДНК.
- «Фрагменты Оказаки образуются на обеих новых цепях». Только на отстающей; лидирующая строится непрерывно.
- «Топоизомераза разрывает водородные связи». Водородные связи разрывает хеликаза; топоизомераза временно разрезает остов цепей, снимая напряжение.
- «ДНК-полимераза не ошибается». Ошибается примерно один раз на 10⁴–10⁵ нуклеотидов, но большинство ошибок исправляет сама и с помощью систем исправления.
- «Две полимеразы движутся в противоположные стороны». Обе полимеразы вилки собраны в одной реплисоме и движутся вместе с вилкой; матрица отстающей цепи образует петлю, и на ней фрагмент синтезируется против хода вилки.
- «Праймаза — разновидность ДНК-полимеразы». Праймаза синтезирует РНК, а не ДНК, и может начать цепь без готового 3′-конца.
- «В левой и правой вилках лидирующие цепи строятся на одной и той же матрице». Нет: в двух вилках, расходящихся от одной точки, лидирующие цепи строятся на разных матрицах.
- «Репарация идёт только в S-периоде». Ремонт повреждений ДНК идёт всю жизнь клетки, в том числе в клетках, которые больше не делятся.
24. Интересные факты
- Реплисома кишечной палочки движется по ДНК со скоростью около 1000 нуклеотидов в секунду. Если увеличить ДНК до толщины в метр, реплисома была бы размером с грузовик и мчалась бы по ней со скоростью около 600 км/ч, ошибаясь примерно один раз на миллион километров пути.
- В клетках человека работают больше десяти разных ДНК-полимераз. Часть из них — «небрежные» полимеразы, которые нужны, чтобы протащить вилку мимо повреждений.
- У человека в каждой клетке за сутки возникают десятки тысяч повреждений ДНК, и почти все они исправляются.
- Азиз Санджар, один из лауреатов Нобелевской премии 2015 года, вырос в турецкой деревне в семье, где родители не умели читать. Он стал врачом, а затем биохимиком и изучал, как клетка вырезает повреждения, вызванные ультрафиолетом.
- Кольцо хеликазы и кольцо скользящего зажима охватывают ДНК, как браслет руку. Чтобы надеть такое кольцо на длинную молекулу, особые белки временно раскрывают его, а затем закрывают вокруг ДНК.
- Супруги Оказаки работали в университете Нагои. После смерти мужа Цунэко Оказаки продолжила исследования; позже она, помимо прочего, изучала строение центромер хромосом человека и участвовала в создании искусственных хромосом человека.
- Артур Корнберг получил Нобелевскую премию 1959 года за ДНК-полимеразу, а его сын Роджер Корнберг — Нобелевскую премию по химии 2006 года за изучение транскрипции у эукариот. Это одна из немногих пар «отец — сын» среди нобелевских лауреатов.
- Бактерии-мутаторы с повреждённой системой исправления ошибок часто находят среди возбудителей хронических инфекций: при длительном лечении антибиотиками у них быстрее возникают мутации устойчивости. Так «небрежность» репликации иногда оказывается выгодной для микроба.
- Полимераза фага φ29 так процессивна, что, не отрываясь, синтезирует цепь длиной больше 70 тысяч нуклеотидов. Её используют, чтобы прочитать геном одной-единственной клетки.
- Мутации в гене полимеразы ε, лишающие её корректорской активности, найдены в некоторых опухолях кишечника и матки: в таких опухолях мутаций в десятки раз больше, чем в обычных.
25. Частые вопросы
Почему одна цепь синтезируется непрерывно, а другая — фрагментами?
Потому что цепи ДНК антипараллельны, а полимераза умеет строить цепь только в направлении 5′ → 3′. На одной матрице это направление совпадает с движением вилки, и синтез идёт непрерывно. На другой оно противоположно движению вилки, и полимеразе приходится строить цепь короткими отрезками, каждый раз возвращаясь к вилке за новым участком матрицы.
Сколько праймеров нужно для одной вилки?
Для лидирующей цепи — один, в самом начале. Для отстающей — по одному на каждый фрагмент Оказаки. Если вилка прошла 30 тысяч нуклеотидов, а фрагменты длиной около 150 нуклеотидов, на отстающей цепи понадобилось около 200 праймеров.
Чем хеликаза отличается от топоизомеразы?
Хеликаза разделяет две цепи, разрывая водородные связи между основаниями. Топоизомераза снимает перекручивание ДНК перед вилкой: временно разрезает остов одной или обеих цепей, даёт молекуле провернуться и снова сшивает разрыв. Обе работают вместе, но делают разное.
Зачем нужна ДНК-лигаза, если полимераза уже всё достроила?
Полимераза может заполнить промежуток до последнего нуклеотида, но не может соединить конец одного фрагмента с началом следующего: между ними остаётся разрыв в остове цепи. Эту единственную связь между сахаром и фосфатом образует лигаза. Без неё отстающая цепь состояла бы из миллионов отдельных кусков.
Почему у эукариот вилка движется медленнее, чем у бактерий?
ДНК эукариот упакована в нуклеосомы: перед вилкой их надо разобрать, а за ней — собрать снова на обеих дочерних молекулах. Кроме того, хроматин содержит много белков, которые мешают движению. Эукариоты компенсируют медленную вилку большим числом точек начала.
Может ли клетка удвоить ДНК без праймеров?
Нет, ДНК-полимераза всегда нуждается в готовом 3′-конце. Но затравкой не обязательно служит РНК: у некоторых вирусов цепь начинается от белка, к которому присоединён первый нуклеотид, а у ретровирусов — от молекулы тРНК клетки. Теломераза же удлиняет концы хромосом, используя как затравку сам 3′-конец ДНК.
Сколько времени занимает синтез одного фрагмента Оказаки?
У человека вилка проходит около 30–50 нуклеотидов в секунду, а фрагмент содержит 100–200 нуклеотидов. Значит, один фрагмент синтезируется за несколько секунд, и праймаза должна начинать новый фрагмент тоже раз в несколько секунд. У кишечной палочки фрагмент длиннее (1000–2000 нуклеотидов), но и вилка в 20–30 раз быстрее, так что новый фрагмент начинается примерно раз в одну-две секунды.
Почему праймеры удаляют, а не оставляют в ДНК?
Праймер — РНК, а ДНК с вкраплениями РНК была бы менее устойчивой: РНК легче разрушается, особенно в щелочной среде. К тому же праймер синтезирован без проверки, с ошибками. Поэтому все праймеры удаляются и заменяются ДНК, синтезированной точной полимеразой с корректурой.
Как реплисома «знает», что участок уже удвоен?
Сама реплисома этого не знает. Повторное удвоение предотвращается на уровне точек начала: хеликаза загружается на них только в G₁, а в S-периоде новые хеликазы загрузить нельзя. Сработавшая точка «разряжена» до следующего цикла, а вилки, дойдя до уже удвоенного участка, встречаются с вилками от соседних точек и заканчивают работу.
Как полимераза «узнаёт» правильный нуклеотид?
По форме пары. Правильные пары А — Т и Г — Ц имеют почти одинаковую форму и размер, и только такая пара точно помещается в активный центр полимеразы, когда «пальцы» фермента смыкаются. Неправильная пара имеет иную форму, «пальцы» не смыкаются, и нуклеотид обычно уходит, не встроившись.
Почему фрагменты Оказаки у бактерий длиннее, чем у эукариот?
У бактерий нет нуклеосом, вилка движется в десятки раз быстрее, и праймаза садится на матрицу реже — примерно раз на тысячу-две нуклеотидов. У эукариот длина фрагмента связана с размером ДНК, намотанной на одну нуклеосому, и составляет 100–200 нуклеотидов.
Что будет, если в клетке не работает корректура?
Число ошибок возрастает примерно в сто раз. Бактерии с такими мутациями называют мутаторами: мутации у них возникают очень часто. У человека мутации, выключающие корректуру полимеразы ε или δ, повышают риск некоторых опухолей.
26. ЕГЭ
Механизм репликации относится к элементу 2.6 кодификатора [15]. На экзамене проверяют знание ферментов и их функций, различия лидирующей и отстающей цепей, понимание того, почему синтез идёт фрагментами, и умение работать с рисунком репликативной вилки. В линии 27 встречаются задачи о направлении синтеза и о фрагментах Оказаки.
Разбор задачи о репликативной вилке
Участок ДНК расплетается в репликативной вилке, которая движется слева направо. Верхняя цепь записана в направлении 3′-ТАЦГГАТЦЦАГТ-5′, нижняя — 5′-АТГЦЦТАГГТЦА-3′. Какая из новых цепей — синтезируемая на верхней или на нижней матрице — будет лидирующей? Ответ поясните.
Решение.
- ДНК-полимераза строит новую цепь в направлении 5′ → 3′, а матрицу читает в направлении 3′ → 5′.
- Верхняя матрица записана слева направо от 3′ к 5′. Значит, новая цепь на ней растёт слева направо — в ту же сторону, куда движется вилка. Это лидирующая цепь, она синтезируется непрерывно.
- Нижняя матрица записана слева направо от 5′ к 3′. Новая цепь на ней должна расти справа налево — против хода вилки. Это отстающая цепь, она синтезируется фрагментами Оказаки.
Правило. Лидирующей будет новая цепь на той матрице, которая в направлении движения вилки читается от 3′ к 5′. Если вилка поменяет направление, поменяются и роли цепей.
Две вилки от одной точки начала
Частая ловушка: от точки начала расходятся две вилки — правая и левая. Пусть верхняя цепь записана слева направо от 3′ к 5′. В правой вилке, движущейся вправо, новая цепь на верхней матрице растёт вправо, по ходу вилки, — она лидирующая. А в левой вилке, движущейся влево, новая цепь на той же верхней матрице тоже растёт вправо, но теперь против хода вилки, — она отстающая. Поэтому вопрос «какая цепь лидирующая» без указания направления движения вилки не имеет ответа.
Работа с рисунком
На экзамене часто дают рисунок вилки, как в этой статье, и просят назвать структуры под цифрами или найти, какой цифрой обозначен фермент, расплетающий ДНК (хеликаза), цепь, которая синтезируется непрерывно (лидирующая), или короткая РНК, от которой начинается синтез (праймер). Полезно помнить: праймеры рисуют короткими тёмными или цветными отрезками в начале каждого фрагмента отстающей цепи, а стрелки синтеза на отстающей цепи направлены от вилки, на лидирующей — к вилке.
Как формулировать ответ
В ответах на вопросы о механизме репликации важно называть ферменты точно и связывать их функции с причиной: «хеликаза разрывает водородные связи между комплементарными основаниями, разделяя цепи»; «ДНК-полимераза присоединяет нуклеотиды только к 3′-концу, поэтому новая цепь растёт в направлении 5′ → 3′»; «на отстающей цепи синтез идёт против хода вилки, поэтому она строится фрагментами Оказаки, которые сшивает лигаза». Ответ «ферменты удваивают ДНК» без названий и функций баллов не принесёт.
Что обязательно знать к экзамену
- Ферменты репликации и их функции: хеликаза, топоизомераза, праймаза, ДНК-полимераза, ДНК-лигаза; белки, связывающие одноцепочечную ДНК.
- Почему полимеразе нужен праймер и почему праймер из РНК.
- Лидирующая и отстающая цепи: направление синтеза, фрагменты Оказаки, число праймеров.
- Три ступени точности репликации.
- Что такое репарация и почему она возможна (вторая цепь как матрица).
- Отличия репликации у прокариот и эукариот.
27. Для олимпиад
Объём работы на отстающей цепи
При удвоении генома человека синтезируется около 12,8 млрд новых нуклеотидов, из них на отстающих цепях — около 6,4 млрд. При длине фрагмента Оказаки около 150 нуклеотидов это около 4·10⁷ фрагментов, а значит, столько же праймеров. Если длина РНК-праймера около 10 нуклеотидов, клетка за один S-период синтезирует и затем удаляет около 4·10⁸ рибонуклеотидов в составе праймеров — это заметная доля всей новой цепи, и поэтому удаление праймеров должно быть очень быстрым и точным.
Процессивность и скорость
Если бы полимераза III кишечной палочки отсоединялась после каждых 10 нуклеотидов и тратила 1 секунду на повторное присоединение, при собственной скорости 1000 нуклеотидов в секунду средняя скорость синтеза упала бы до 10 / (0,01 + 1) ≈ 10 нуклеотидов в секунду — в сто раз меньше. Репликация хромосомы заняла бы не 40 минут, а больше двух суток. Именно поэтому скользящий зажим так важен: он делает полимеразу процессивной, и она остаётся на матрице на протяжении десятков тысяч нуклеотидов.
Почему фрагменты Оказаки у эукариот такие короткие
В 2012 году исследователи прочитали последовательности фрагментов Оказаки дрожжей и обнаружили, что их концы почти всегда совпадают с положением нуклеосом на ДНК. Полимераза δ, строя фрагмент, доходит до предыдущего фрагмента и немного «отодвигает» его начало, пока не упрётся в только что собранную нуклеосому. Так длина фрагмента оказывается связана с упаковкой хроматина: процессы репликации и сборки хроматина за вилкой тесно сопряжены.
Как лигаза сшивает цепь
Чтобы соединить два соседних фрагмента, нужно образовать связь между 3′-гидроксильной группой одного фрагмента и 5′-фосфатом другого. Сама по себе эта реакция энергетически невыгодна, поэтому лигаза «заряжает» фосфат. Сначала фермент присоединяет к себе остаток АМФ, отщепляя его от АТФ (у бактерий — от НАД⁺). Затем переносит АМФ на 5′-фосфат фрагмента, образуя активированный конец. Наконец 3′-гидроксильная группа соседнего фрагмента атакует активированный фосфат, АМФ уходит, и цепь замыкается. Лигазе нужен именно разрыв в одной цепи двойной спирали: если между фрагментами недостаёт хотя бы одного нуклеотида, она бессильна.
Сколько энергии стоит репликация
На каждый присоединённый нуклеотид отщепляются два фосфата, причём отщеплённый пирофосфат сразу расщепляется ферментами ещё на два остатка фосфорной кислоты, что делает реакцию необратимой. Это эквивалентно затрате примерно двух макроэргических связей на нуклеотид. Ещё около одной молекулы АТФ на пару нуклеотидов тратит хеликаза. Для генома человека из 6,4 млрд пар нуклеотидов это порядка десятков миллиардов макроэргических связей на одну репликацию, не считая синтеза самих нуклеотидов и затрат на праймеры, лигирование и сборку хроматина.
Правило Дрейка
В 1991 году американский генетик Джон Дрейк заметил удивительную закономерность: у очень разных микроорганизмов с ДНК-геномами — бактерий, фагов, дрожжей — число мутаций на весь геном за одну репликацию примерно одинаково, около 0,003, хотя размеры геномов различаются в тысячи раз. У кишечной палочки (4,6 млн пар нуклеотидов) это означает частоту около 7·10⁻¹⁰ на нуклеотид, у фага с геномом в 50 тысяч пар нуклеотидов — около 6·10⁻⁸. Значит, у организмов с большим геномом точность репликации выше. Объяснение ищут в естественном отборе: точность «подстраивается» так, чтобы вредных мутаций на геном было немного, но дальнейшее её повышение уже не даёт выгоды по сравнению с затратами.
Несимметричность двух цепей
Лидирующая и отстающая цепи копируются разными полимеразами, и их ошибки немного различаются. Кроме того, матрица отстающей цепи дольше остаётся одноцепочечной и чаще повреждается — например, цитозин в ней чаще теряет аминогруппу. Поэтому в бактериальных хромосомах состав двух цепей заметно различается по разные стороны от точки начала: в той цепи, которая синтезируется как лидирующая (её последовательность совпадает с матрицей отстающей цепи), Г обычно больше, чем Ц. По этому «перекосу» можно найти точку начала репликации в только что прочитанном геноме бактерии, ничего не зная о её белках.
- Фрагментов Оказаки за S-период у человекаоколо 4·10⁷
- Праймеровстолько же, плюс по одному на каждую лидирующую цепь
- Процессивность полимеразы III с зажимомдесятки тысяч нуклеотидов без отрыва
- Без зажимаоколо 10 нуклеотидов, затем отрыв
28. Задания с разбором
Задание 1
Установите соответствие между ферментами и их функциями при репликации. Ферменты: А) хеликаза; Б) топоизомераза; В) праймаза; Г) ДНК-полимераза; Д) ДНК-лигаза. Функции: 1) синтез РНК-затравки; 2) разделение цепей ДНК; 3) соединение фрагментов Оказаки; 4) снятие напряжения перед вилкой; 5) присоединение дезоксирибонуклеотидов к 3′-концу цепи.
Ответ
А2, Б4, В1, Г5, Д3.
Задание 2
Выберите три верных ответа. Для лидирующей цепи характерно: 1) непрерывный синтез; 2) синтез по ходу движения вилки; 3) один праймер в начале; 4) образование фрагментов Оказаки; 5) синтез в направлении 3′ → 5′; 6) участие лигазы в соединении многих фрагментов.
Ответ
1, 2, 3.
Задание 3
Установите последовательность событий при синтезе фрагмента Оказаки: А) удаление РНК-праймера; Б) расплетание участка ДНК хеликазой; В) синтез РНК-праймера праймазой; Г) сшивание фрагмента с предыдущим ДНК-лигазой; Д) удлинение праймера ДНК-полимеразой; Е) заполнение промежутка ДНК на месте праймера.
Ответ
Б, В, Д, А, Е, Г.
Задание 4
Найдите ошибки в тексте. (1) Репликация начинается в точках начала репликации. (2) Хеликаза синтезирует новые цепи ДНК. (3) ДНК-полимераза может начать синтез без затравки. (4) Отстающая цепь синтезируется фрагментами Оказаки. (5) Фрагменты Оказаки соединяет ДНК-лигаза.
Ответ
(2) Хеликаза разделяет цепи, разрывая водородные связи; синтезирует ДНК-полимераза. (3) ДНК-полимераза удлиняет только готовый 3′-конец; ей нужна затравка — праймер.
Задание 5
Рассмотрите рисунок репликативной вилки в статье. Какой цифрой обозначен фермент, расплетающий двойную спираль? Какой цифрой — короткая РНК, от 3′-конца которой начинается синтез ДНК? Какая новая цепь (под какой цифрой) синтезируется непрерывно?
Ответ
1) Хеликаза — 2. 2) РНК-праймер — 6. 3) Непрерывно синтезируется лидирующая цепь — 4.
Задание 6
Почему ДНК-полимеразе нужен праймер? Почему праймер состоит из РНК, а не из ДНК?
Ответ
1) ДНК-полимераза только присоединяет нуклеотиды к готовому 3′-концу цепи и не может начать цепь «с нуля». 2) Праймаза, синтезирующая РНК, может начать цепь без готового конца. 3) Начало цепи синтезируется без проверки и с ошибками; РНК-затравку клетка узнаёт как временную, удаляет и заменяет точно синтезированной ДНК.
Задание 7
Выберите три верных ответа. Точность репликации обеспечивают: 1) выбор комплементарного нуклеотида ДНК-полимеразой; 2) корректорская активность полимеразы; 3) исправление неспаренных оснований после репликации; 4) работа ДНК-лигазы; 5) синтез РНК-праймеров; 6) работа топоизомеразы.
Ответ
1, 2, 3.
Задание 8
Объясните, почему одна новая цепь ДНК синтезируется непрерывно, а другая — фрагментами.
Ответ
1) Цепи ДНК антипараллельны. 2) ДНК-полимераза строит цепь только в направлении 5′ → 3′. 3) На одной матрице это направление совпадает с движением вилки — синтез непрерывный (лидирующая цепь). 4) На другой — противоположно движению вилки, поэтому синтез идёт короткими фрагментами Оказаки, каждый со своим праймером (отстающая цепь).
Задание 9
Установите соответствие между признаками и организмами. Признаки: А) одна точка начала репликации на хромосоме; Б) тысячи точек начала на каждой хромосоме; В) фрагменты Оказаки длиной 100–200 нуклеотидов; Г) скорость вилки около 1000 нуклеотидов в секунду; Д) репликация концов хромосом с помощью теломеразы; Е) репликация идёт в цитоплазме. Организмы: 1) бактерии; 2) эукариоты.
Ответ
А1, Б2, В2, Г1, Д2, Е1.
Задание 10
Репликативная вилка движется слева направо. Верхняя матричная цепь записана как 3′-ГЦАТТАЦГГТАЦ-5′. Запишите новую цепь, синтезируемую на ней, и определите, лидирующая она или отстающая. Объясните.
Ответ
1) Новая цепь: 5′-ЦГТААТГЦЦАТГ-3′. 2) Матрица читается 3′ → 5′ слева направо, новая цепь растёт 5′ → 3′ слева направо — по ходу вилки. 3) Это лидирующая цепь, она синтезируется непрерывно.
Задание 11
Какие функции выполняет топоизомераза при репликации и почему без неё репликация остановится?
Ответ
1) При расплетании цепей перед вилкой ДНК перекручивается, накапливается напряжение (сверхспирализация). 2) Топоизомераза временно разрезает одну или обе цепи, даёт молекуле провернуться и сшивает разрыв, снимая напряжение. 3) Без неё перекрученную ДНК хеликаза расплести не сможет, и вилка остановится; кроме того, не разделятся сцепленные дочерние кольцевые молекулы.
Задание 12
Выберите три верных ответа. При пигментной ксеродерме: 1) нарушено вырезание повреждений ДНК, вызванных ультрафиолетом; 2) резко повышен риск рака кожи; 3) больным нужно защищаться от солнечного света; 4) нарушена работа ДНК-лигазы при репликации; 5) не синтезируются праймеры; 6) не работает хеликаза.
Ответ
1, 2, 3.
Задание 13
Как работает корректорская активность ДНК-полимеразы? Почему она возможна только при синтезе в направлении 5′ → 3′?
Ответ
1) Если на 3′-конце растущей цепи оказался неправильный нуклеотид, неправильная пара непрочна, и конец цепи перемещается в экзонуклеазный центр полимеразы. 2) Там нуклеотид отщепляется, и синтез продолжается. 3) При синтезе 5′ → 3′ энергию для присоединения приносит трифосфат входящего нуклеотида, поэтому после удаления ошибочного нуклеотида цепь можно продолжить; при синтезе 3′ → 5′ трифосфат был бы на конце цепи и терялся бы при исправлении.
Задание 14
Почему у людей с наследственным дефектом системы исправления неспаренных оснований повышен риск рака?
Ответ
1) Система исправляет ошибки репликации, пропущенные полимеразой. 2) При её дефекте ошибки не исправляются, и мутации в клетках накапливаются в десятки и сотни раз быстрее. 3) Мутации в генах, регулирующих клеточный цикл, могут приводить к неконтролируемому делению — к опухоли.
Задание 15
Вилка прошла участок длиной 45 тысяч нуклеотидов. Сколько праймеров потребовалось для синтеза лидирующей и отстающей цепей, если длина фрагмента Оказаки — 150 нуклеотидов?
Ответ
Лидирующая — 1 праймер. Отстающая — 45 000 / 150 = 300 праймеров.
Задание 16
Выберите три верных ответа. В репарации ДНК используется: 1) вырезание повреждённого участка одной цепи; 2) синтез нового участка ДНК-полимеразой по неповреждённой цепи; 3) соединение концов ДНК-лигазой; 4) синтез белка на рибосомах по матрице ДНК; 5) обратная транскрипция; 6) синтез РНК-праймера на всю длину хромосомы.
Ответ
1, 2, 3.
Задание 17
Почему у эукариот на каждой хромосоме много точек начала репликации, а у бактерий — одна?
Ответ
1) Хромосомы эукариот в сотни раз длиннее бактериальной, а вилка движется в 20–30 раз медленнее из-за упаковки ДНК в нуклеосомы. 2) От одной точки репликация самой длинной хромосомы человека заняла бы больше месяца. 3) Множество точек начала позволяет удвоить всю ДНК за несколько часов S-периода.
Задание 18
В чём заключается проблема концевой недорепликации и как клетка её решает?
Ответ
1) На конце линейной хромосомы после удаления последнего праймера отстающей цепи образуется пробел, который полимераза не может заполнить: ей нужен 3′-конец впереди. 2) Поэтому при каждой репликации хромосомы немного укорачиваются. 3) На концах находятся теломеры — некодирующие повторы, укорочение которых долго безвредно; теломераза достраивает их, используя собственную РНК как матрицу.
Задание 19 (олимпиадное)
У мутанта кишечной палочки ДНК-полимераза III присоединяет без скользящего зажима в среднем 10 нуклеотидов, после чего отсоединяется, а на повторное присоединение уходит 1 с. Скорость синтеза в присоединённом состоянии — 1000 нуклеотидов в секунду, хромосома содержит 4,6 млн пар нуклеотидов и реплицируется двумя вилками. Оцените время репликации хромосомы у мутанта и у нормальной бактерии. Объясните значение скользящего зажима.
Ответ
1) Нормальная бактерия: каждая вилка проходит 2,3 млн нуклеотидов со скоростью 1000 в секунду — около 2300 с, около 40 мин. 2) Мутант: на 10 нуклеотидов уходит 0,01 + 1 ≈ 1 с, средняя скорость около 10 нуклеотидов в секунду, время — около 230 тыс. секунд, больше 2,5 суток. 3) Зажим удерживает полимеразу на матрице, обеспечивая высокую процессивность — синтез без отрыва десятков тысяч нуклеотидов.
Задание 20 (олимпиадное)
В клетки на несколько секунд добавили меченый тимидин и сразу выделили ДНК. Половина метки оказалась в коротких молекулах длиной 100–200 нуклеотидов, половина — в длинных. Если же добавить метку клеткам с выключенной ДНК-лигазой, доля метки в коротких молекулах возрастает, а через несколько минут после отмены метки короткие молекулы не исчезают. Объясните результаты.
Ответ
1) Метку включают обе новые цепи. 2) Лидирующая цепь растёт непрерывно и сразу длинная — это длинные меченые молекулы. 3) Отстающая цепь синтезируется фрагментами Оказаки длиной 100–200 нуклеотидов — короткие меченые молекулы. 4) В норме лигаза быстро сшивает фрагменты, и они переходят в длинные цепи. 5) Без лигазы фрагменты не соединяются, поэтому короткие меченые молекулы накапливаются и сохраняются.
Литература
- Okazaki R., Okazaki T., Sakabe K., Sugimoto K., Sugino A. Mechanism of DNA chain growth. I. Possible discontinuity and unusual secondary structure of newly synthesized chains // Proceedings of the National Academy of Sciences of the USA. 1968. Vol. 59. P. 598–605.
- Jacob F., Brenner S., Cuzin F. On the regulation of DNA replication in bacteria // Cold Spring Harbor Symposia on Quantitative Biology. 1963. Vol. 28. P. 329–348.
- Huberman J. A., Riggs A. D. On the mechanism of DNA replication in mammalian chromosomes // Journal of Molecular Biology. 1968. Vol. 32. P. 327–341.
- Stinchcomb D. T., Struhl K., Davis R. W. Isolation and characterisation of a yeast chromosomal replicator // Nature. 1979. Vol. 282. P. 39–43.
- Bell S. P., Dutta A. DNA replication in eukaryotic cells // Annual Review of Biochemistry. 2002. Vol. 71. P. 333–374.
- Gellert M., Mizuuchi K., O’Dea M. H., Nash H. A. DNA gyrase: an enzyme that introduces superhelical turns into DNA // Proceedings of the National Academy of Sciences of the USA. 1976. Vol. 73. P. 3872–3876.
- De Lucia P., Cairns J. Isolation of an E. coli strain with a mutation affecting DNA polymerase // Nature. 1969. Vol. 224. P. 1164–1166.
- Yeeles J. T. P., Deegan T. D., Janska A., Early A., Diffley J. F. X. Regulated eukaryotic DNA replication origin firing with purified proteins // Nature. 2015. Vol. 519. P. 431–435.
- Kunkel T. A. DNA replication fidelity // Journal of Biological Chemistry. 2004. Vol. 279. P. 16895–16898.
- Fishel R., Lescoe M. K., Rao M. R. S. et al. The human mutator gene homolog MSH2 and its association with hereditary nonpolyposis colon cancer // Cell. 1993. Vol. 75. P. 1027–1038.
- Lindahl T. Instability and decay of the primary structure of DNA // Nature. 1993. Vol. 362. P. 709–715.
- Cleaver J. E. Defective repair replication of DNA in xeroderma pigmentosum // Nature. 1968. Vol. 218. P. 652–656.
- Yu C.-E., Oshima J., Fu Y.-H. et al. Positional cloning of the Werner’s syndrome gene // Science. 1996. Vol. 272. P. 258–262.
- Trifunovic A., Wredenberg A., Falkenberg M. et al. Premature ageing in mice expressing defective mitochondrial DNA polymerase // Nature. 2004. Vol. 429. P. 417–423.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…