
Рост человека не бывает просто «высоким» или «низким», как семена гороха бывают гладкими или морщинистыми. Люди бывают всех промежуточных размеров — от полутора метров до двух с лишним, и если построить график, получится плавная колоколообразная кривая. Так же плавно меняются масса тела, цвет кожи, урожайность пшеницы, удой коров. В начале XX века многим учёным казалось, что такие признаки законам Менделя не подчиняются. Ответ нашёл шведский селекционер Герман Нильсон-Эле: признак, который выглядит непрерывным, может определяться несколькими генами с одинаковым действием, каждый из которых наследуется строго по Менделю. Это явление назвали полимерией.
Это четырнадцатая статья серии о генетике (предыдущая — «Взаимодействие неаллельных генов: комплементарность и эпистаз»). В ней разобраны кумулятивная и некумулятивная полимерия, опыты Нильсон-Эле и Иста, расщепления 1 : 4 : 6 : 4 : 1 и 15 : 1, как определить число генов, наследование количественных признаков у человека и в селекции, роль среды и наследуемость, и все типы задач, которые встречаются на ЕГЭ.
- 1. Что такое полимерия
- 2. Спор о непрерывных признаках
- 3. Кумулятивная полимерия: окраска зерна пшеницы
- 4. Полимерия и неполное доминирование
- 5. Некумулятивная полимерия: пастушья сумка
- 6. От ступенек к колоколу
- 7. Как определить число полимерных генов
- 8. Количественные признаки у человека
- 9. Цвет кожи: полимерия и эволюция
- 10. Вариационный ряд и вариационная кривая
- 11. Опыт Иогансена: чистые линии и отбор
- 12. Как измеряют наследуемость у человека
- 13. Полимерия и среда: норма реакции и наследуемость
- 14. Полимерия в селекции
- 15. Пороговые признаки и полигенные болезни
- 16. Гены с большим и малым эффектом
- 17. Полимерия у домашних животных и растений
- 18. Количественные признаки и естественный отбор
- 19. Как решать задачи на полимерию
- 20. Разборы типовых задач
- 21. Итог: что важно знать
- 22. Частые ошибки
- 23. Интересные факты
- 24. Частые вопросы
- 25. ЕГЭ
- 26. Для олимпиад
- 27. Задания с разбором
- Литература
1. Что такое полимерия
Полимерия — однозначное (одинаковое) действие нескольких неаллельных генов на один и тот же признак. Такие гены называют полимерными.
Полимерные гены обозначают одной буквой с разными индексами: A1, A2, A3 — доминантные аллели, a1, a2, a3 — рецессивные. Одна буква подчёркивает, что гены влияют на признак одинаково, а индексы — что это разные гены, обычно в разных хромосомах. Генотип записывают, например, A1a1A2A2.
Полимерия — противоположность плейотропии. При плейотропии один ген влияет на много признаков, при полимерии на один признак влияют много генов.
| Явление | Число генов | Число признаков | Пример |
|---|---|---|---|
| плейотропия | один | много | синдром Марфана |
| полимерия | много | один | окраска зерна пшеницы, рост человека |
Полимерные гены лежат в разных хромосомах и наследуются независимо, поэтому все расчёты ведутся по правилам дигибридного или полигибридного скрещивания. Меняется только соответствие генотипов фенотипам: разные генотипы с одинаковым числом доминантных аллелей дают одинаковый фенотип.
Различают два вида полимерии.
- Кумулятивная (накопительная, аддитивная) — выраженность признака зависит от числа доминантных аллелей: чем их больше, тем сильнее признак. Действие аллелей суммируется.
- Некумулятивная — признак проявляется при наличии хотя бы одного доминантного аллеля любого из генов, а их число на выраженность не влияет. Признака нет только у рецессивной гомозиготы по всем генам.
2. Спор о непрерывных признаках
На рубеже XIX–XX веков генетики разделились на два лагеря. Менделисты (Бейтсон и его сторонники) изучали чёткие альтернативные признаки и находили расщепления 3 : 1. Биометрики (К. Пирсон, У. Уэлдон), последователи Фрэнсиса Гальтона, изучали признаки, меняющиеся плавно, — рост, массу, размеры органов. Гальтон в 1886 году измерил рост сотен родителей и детей и обнаружил, что дети очень высоких родителей в среднем ниже родителей, а дети очень низких — выше: рост детей «возвращается» к среднему по популяции [1]. Он назвал это регрессией. Биометрики считали, что такие признаки наследуются «слитно», и законы Менделя к ним неприменимы.
Примирение пришло из селекции. В 1908–1909 годах Нильсон-Эле в Швеции [2] и в 1910 году Э. Ист в США [3] показали, что «непрерывные» признаки определяются несколькими менделевскими генами с суммирующимся действием. Если таких генов много и каждый вносит небольшой вклад, а ещё влияет среда, распределение признака становится плавным, хотя каждый ген наследуется дискретно. Окончательно эту идею математически обосновал Р. Фишер в 1918 году: он показал, что сходство родственников по количественным признакам точно вытекает из законов Менделя для многих генов [4]. Так менделизм и биометрия объединились, и родилась количественная генетика.
Главная идея. Плавное распределение признака не означает «слитной» наследственности. Признак определяют многие гены, каждый из которых наследуется по Менделю; суммирование их вкладов и влияние среды сглаживают ступени.
3. Кумулятивная полимерия: окраска зерна пшеницы
Нильсон-Эле скрещивал сорта пшеницы с тёмно-красным и белым зерном [2]. Гибриды F1 имели зерно промежуточной, розовой окраски. В F2 появились зёрна пяти оттенков — от тёмно-красного до белого, — причём белых и тёмно-красных было примерно по 1/16, а больше всего — промежуточных. Нильсон-Эле объяснил это двумя полимерными генами.
Пусть окраску определяют гены A1 и A2, и каждый доминантный аллель добавляет одну «порцию» красного пигмента. Тёмно-красный сорт — A1A1A2A2 (четыре порции), белый — a1a1a2a2 (ни одной). Гибрид F1 A1a1A2a2 имеет две порции — промежуточная окраска.
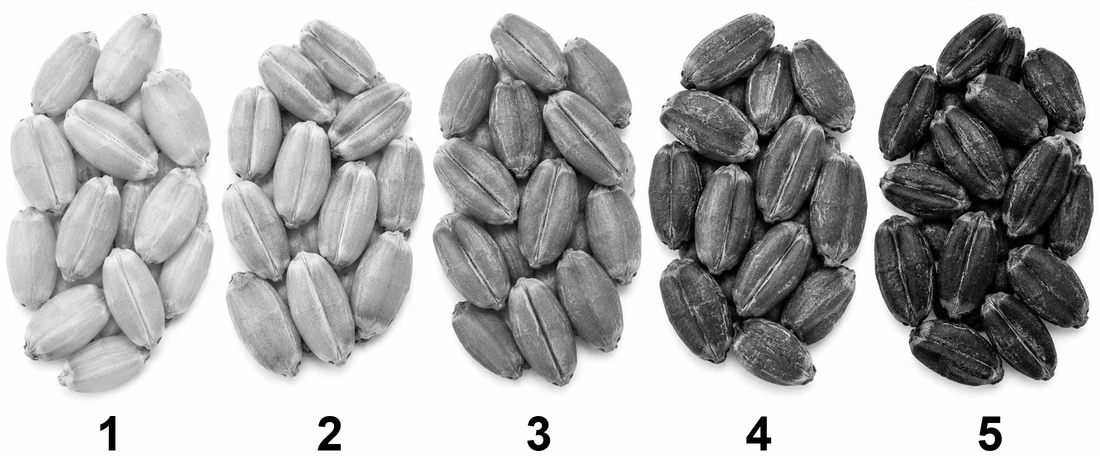
В F2 дигетерозиготы дают 16 сочетаний гамет. Генотипы группируются по числу доминантных аллелей.
| Доминантных аллелей | Генотипы | Доля в F2 | Окраска зерна |
|---|---|---|---|
| 4 | A1A1A2A2 | 1/16 | тёмно-красная |
| 3 | A1A1A2a2, A1a1A2A2 | 4/16 | красная |
| 2 | A1A1a2a2, a1a1A2A2, A1a1A2a2 | 6/16 | розовая (как F1) |
| 1 | A1a1a2a2, a1a1A2a2 | 4/16 | светло-розовая |
| 0 | a1a1a2a2 | 1/16 | белая |
Расщепление 1 : 4 : 6 : 4 : 1. Откуда эти числа? Каждая гамета дигетерозиготы несёт 0, 1 или 2 доминантных аллеля: A1A2 — 2, A1a2 и a1A2 — по 1, a1a2 — 0. При сочетании двух гамет число доминантных аллелей в зиготе от 0 до 4, и число способов получить каждое значение — 1, 4, 6, 4, 1. Это биномиальные коэффициенты — числа из треугольника Паскаля.
Нильсон-Эле нашёл и сорт пшеницы с тремя полимерными генами окраски. У него в F2 белых зёрен было примерно 1/64, и оттенков — семь. Это подтверждало правило: чем больше генов, тем мельче «ступени» и тем реже крайние классы.
Признаки кумулятивной полимерии в задаче. 1) F1 промежуточное. 2) В F2 много классов с плавной сменой признака. 3) Крайние классы (как у родителей) — редкие: 1/16, 1/64, 1/256. 4) Средний класс — самый многочисленный.
Нильсон-Эле: от овса к пшенице
Герман Нильсон-Эле (1873–1949) работал на селекционной станции в Свалёве на юге Швеции и выводил сорта зерновых. Изучая овёс, он заметил, что при скрещивании сортов с чёрными и белыми чешуями в F2 белых растений было не четверть, а всего около 1/16 — расщепление 15 : 1. Он объяснил это двумя генами, каждый из которых может дать чёрную окраску [2]. Затем у пшеницы он нашёл сорт, у которого белые зёрна в F2 появлялись с частотой около 1/64 (63 : 1), — значит, генов окраски три. А при скрещивании сортов с разной интенсивностью красной окраски он увидел целый ряд оттенков и понял, что гены не просто дублируют, а дополняют друг друга, складывая свои эффекты. Так в одной серии работ были открыты и некумулятивная, и кумулятивная полимерия.
Нильсон-Эле сделал из своих опытов практический вывод: признаки, которые кажутся непрерывными, складываются из многих менделевских генов, и их можно комбинировать в селекции. Его сорта пшеницы, устойчивые к суровым шведским зимам, были выведены именно на основе этой идеи.
Ист и табак: длина венчика
Американский генетик Эдвард Ист в 1910-х годах изучал длину венчика цветка у табака Nicotiana longiflora. Он скрестил две чистые линии с короткими (около 40 мм) и длинными (около 93 мм) венчиками. Гибриды F1 имели венчики промежуточной длины, а разброс у них был таким же небольшим, как у родительских линий, — он зависел только от среды. В F2 разброс резко увеличился: появились растения почти всех длин между родительскими, но крайние значения встречались редко. Отбирая в F2 короткоцветковые и длинноцветковые растения, Ист в следующих поколениях получил линии, приближавшиеся к исходным родителям.
Эти наблюдения — ровно то, что предсказывает полимерия. Однородность F1 — потому что все гибриды одинаковые гетерозиготы. Возросший разброс в F2 — потому что генотипы расщепились по многим генам. Действенность отбора в F2 и последующих поколениях — потому что различия в F2 отчасти генетические. А редкость крайних фенотипов — потому что их генотипы требуют, чтобы все гены оказались в «нужном» состоянии одновременно.
4. Полимерия и неполное доминирование
При кумулятивной полимерии F1 промежуточное — как при неполном доминировании. Как отличить одно от другого? По F2.
| Показатель | Неполное доминирование (один ген) | Кумулятивная полимерия (два гена) |
|---|---|---|
| F1 | промежуточное | промежуточное |
| число классов в F2 | 3 | 5 |
| расщепление в F2 | 1 : 2 : 1 | 1 : 4 : 6 : 4 : 1 |
| доля родительских фенотипов в F2 | по 1/4 | по 1/16 |
| анализирующее скрещивание F1 | 1 : 1 | 1 : 2 : 1 |
Если в F2 родительские фенотипы появились в четверти случаев каждый — это один ген с неполным доминированием. Если в 1/16 — два полимерных гена. Если родительских фенотипов почти нет (1/64 и меньше), генов три и больше.
5. Некумулятивная полимерия: пастушья сумка
При некумулятивной полимерии гены дублируют друг друга: для признака достаточно одного доминантного аллеля любого из генов. Классический пример — форма стручочка пастушьей сумки, изученная Дж. Шеллом [5]. Треугольные стручочки развиваются, если есть хотя бы один доминантный аллель гена A1 или гена A2; овальные — только у a1a1a2a2.
| Этап | Запись |
|---|---|
| P | A1A1A2A2 (треугольные) × a1a1a2a2 (овальные) |
| F1 | A1a1A2a2 — треугольные |
| F2 | 15 треугольных (все, у кого есть хотя бы один A) : 1 овальный (a1a1a2a2) |
Расщепление 15 : 1 — сумма частей 16, значит, два независимых гена. Классы 9 + 3 + 3 сливаются в один фенотип. В анализирующем скрещивании A1a1A2a2 × a1a1a2a2 получается 3 треугольных : 1 овальный.
Откуда берутся дублирующие гены? Чаще всего это результат удвоения генома или его участков в эволюции. Пастушья сумка — тетраплоид, возникший от гибридизации двух диплоидных видов, и у неё многие гены представлены двумя копиями, доставшимися от разных предков. Такие гены-«дубли» широко распространены у растений; у пшеницы, например, многие гены есть в трёх копиях — по числу геномов A, B и D.
| Признак сравнения | Кумулятивная полимерия | Некумулятивная полимерия |
|---|---|---|
| действие доминантных аллелей | суммируется: признак сильнее с ростом их числа | достаточно одного; число не важно |
| F1 (от крайних родителей) | промежуточное | доминантный признак |
| F2 при двух генах | 1 : 4 : 6 : 4 : 1 (пять классов) | 15 : 1 (два класса) |
| анализирующее скрещивание | 1 : 2 : 1 | 3 : 1 |
| примеры | окраска зерна пшеницы, цвет кожи, рост, удой | форма стручочка пастушьей сумки, оперённость ног кур |
6. От ступенек к колоколу
Если генов два, в F2 пять ступеней: 1 : 4 : 6 : 4 : 1. Если три — семь ступеней. Если десять — двадцать одна ступень, и средние классы гораздо многочисленнее крайних. Если нарисовать доли классов в виде столбиков, получится фигура, всё больше похожая на колокол. При очень многих генах и при добавлении изменчивости, вызванной средой (которая «размывает» каждый столбик), получается плавная колоколообразная кривая — нормальное распределение, которое статистики называют гауссовым.
| Число генов | Число классов | Доля среднего класса | Доля каждого крайнего класса |
|---|---|---|---|
| 1 | 3 | 1/2 | 1/4 |
| 2 | 5 | 6/16 ≈ 0,38 | 1/16 ≈ 0,06 |
| 3 | 7 | 20/64 ≈ 0,31 | 1/64 ≈ 0,016 |
| 5 | 11 | 252/1024 ≈ 0,25 | 1/1024 ≈ 0,001 |
| 10 | 21 | ≈ 0,18 | ≈ 10−6 |
Таблица показывает, почему у человека, например, рост в 2 метра 20 сантиметров так редок: для этого нужно, чтобы почти все «аллели роста» были «высокими», а вероятность такого совпадения при тысячах генов ничтожна. Именно поэтому большинство людей среднего роста, а великаны и очень низкие люди встречаются редко. Нормальное распределение — подпись полимерии.
Где граница между полимерией и эпистазом
Некумулятивная полимерия (15 : 1) формально похожа на эпистаз: классы 9, 3 и 3 сливаются, остаётся один «особый» класс 1/16. Но смысл разный. При эпистазе гены неравноправны: один подавляет другой, и их роли различаются (эпистатический и гипостатический). При полимерии гены взаимозаменяемы: каждый из них может обеспечить признак, и неважно, какой именно. Поэтому 15 : 1 относят к полимерии, а не к эпистазу. В некоторых учебниках это расщепление называют «дупликатным действием генов».
7. Как определить число полимерных генов
При n парах полимерных генов полигетерозигота образует 2n типов гамет, в F2 4n сочетаний. При кумулятивном действии число доминантных аллелей в генотипе — от 0 до 2n, поэтому фенотипических классов 2n + 1. Доля каждого крайнего класса — 1/4n.
| Пар генов n | Типов гамет 2n | Классов в F2 2n + 1 | Доля крайнего класса 1/4n | Расщепление в F2 |
|---|---|---|---|---|
| 1 | 2 | 3 | 1/4 | 1 : 2 : 1 |
| 2 | 4 | 5 | 1/16 | 1 : 4 : 6 : 4 : 1 |
| 3 | 8 | 7 | 1/64 | 1 : 6 : 15 : 20 : 15 : 6 : 1 |
| 4 | 16 | 9 | 1/256 | 1 : 8 : 28 : 56 : 70 : 56 : 28 : 8 : 1 |
Поэтому число генов определяют двумя способами: по числу фенотипических классов (n = (k − 1)/2, где k — число классов) или по доле крайнего класса. Например, если в F2 одно растение из 256 имеет такой же признак, как рецессивный родитель, генов четыре. Ист применил этот приём к длине венчика табака и к высоте кукурузы [3].
При некумулятивной полимерии считают по рецессивному классу: при двух генах — 1/16 (15 : 1), при трёх — 1/64 (63 : 1).
Треугольник Паскаля в генетике. Строки треугольника Паскаля дают расщепления при кумулятивной полимерии: 1 2 1 (одна пара), 1 4 6 4 1 (две), 1 6 15 20 15 6 1 (три). Каждое число — сумма двух чисел над ним. Это удобный способ быстро записать расщепление для любого числа генов.
8. Количественные признаки у человека
Цвет кожи. Классический школьный пример кумулятивной полимерии — цвет кожи человека. В начале XX века американский генетик Ч. Давенпорт, изучая семьи от смешанных браков, предложил модель двух пар генов: чем больше доминантных аллелей «тёмной» пигментации, тем темнее кожа. Модель хорошо объясняет, почему у двух родителей со средней пигментацией дети могут быть и светлее, и темнее обоих. Сегодня известно, что цвет кожи определяют не два, а десятки генов (главные из них — SLC24A5, SLC45A2, MC1R, OCA2, TYR и другие), и на него сильно влияет загар. Но принцип полимерии остаётся верным.
Рост. Рост человека — признак с высокой наследуемостью: в благополучных условиях около 80 % различий между людьми объясняются различиями в генах [6]. Но генов, влияющих на рост, оказалось невероятно много. В 2022 году международный консорциум, изучив геномы более пяти миллионов человек, нашёл около 12 тысяч вариантов ДНК, связанных с ростом, — каждый вносит в среднем доли миллиметра [7]. Это предельный случай полимерии: тысячи генов с крошечными суммирующимися эффектами.
Другие признаки. Масса тела, артериальное давление, уровень холестерина, интеллект, предрасположенность к диабету 2-го типа, многим формам рака и болезням сердца — всё это полигенные признаки, зависящие от многих генов и от образа жизни. Для них нет простых менделевских расщеплений, но есть закономерности: сходство родственников, наследуемость, регрессия к среднему.
| Признак | Генетическая основа | Влияние среды |
|---|---|---|
| цвет кожи | десятки генов (SLC24A5, SLC45A2, MC1R и др.) | загар |
| рост | тысячи вариантов ДНК, наследуемость около 0,8 | питание, болезни в детстве |
| масса тела | сотни генов | питание, физическая активность |
| артериальное давление | сотни генов | соль, стресс, вес |
| цвет глаз | несколько генов, главные — HERC2 и OCA2 | почти не влияет |
Регрессия Гальтона подробнее
Гальтон собрал данные о росте 928 взрослых детей из 205 семей. Он вычислил «средний рост родителей» (с поправкой на различие мужчин и женщин) и сравнил его с ростом детей. Оказалось, что если родители в среднем на 10 см выше среднего по популяции, их дети в среднем выше лишь примерно на 6–7 см [1]. То же — для низких родителей. Гальтон назвал это «регрессией к посредственности».
Теперь мы понимаем причину. Отклонение роста родителя от среднего складывается из генетической и средовой частей. Средовая часть детям не передаётся. Генетическая передаётся лишь наполовину от каждого родителя, причём случайно: ребёнок получает случайную половину аллелей. Поэтому дети в среднем «возвращаются» к среднему. Доля отклонения, которая передаётся, связана с наследуемостью: чем она выше, тем меньше регрессия. Это же явление объясняет, почему у выдающихся спортсменов или учёных дети в среднем менее выдающиеся — не потому, что «природа отдыхает», а из-за полимерии и влияния среды.
9. Цвет кожи: полимерия и эволюция
Цвет кожи человека — не только классический пример полимерии, но и пример того, как естественный отбор действует на количественный признак. Цвет кожи определяется в основном количеством и типом меланина в коже. Меланин защищает от ультрафиолетового излучения, которое разрушает фолиевую кислоту в крови и повреждает ДНК клеток кожи. Но ультрафиолет нужен и для синтеза витамина D в коже. Поэтому в тропиках, где ультрафиолета много, отбор благоприятствует тёмной коже, а в высоких широтах, где его мало, — светлой коже, лучше синтезирующей витамин D.
Генетика это подтверждает. Светлая кожа европейцев связана в основном с несколькими аллелями генов SLC24A5 и SLC45A2, которые распространились в Европе за последние несколько тысяч лет под действием отбора. У жителей Восточной Азии светлая кожа возникла независимо и связана с другими генами. А у разных народов Африки, при общей тёмной пигментации, генетическое разнообразие генов пигментации очень велико. Это показывает, что одинаковый фенотип количественного признака может достигаться разными сочетаниями генов — ещё одна черта полимерии.
Школьная модель «две пары генов» сильно упрощает картину, но правильно передаёт главное: у детей родителей с разной пигментацией кожа может быть любой промежуточной, а у двух родителей со средней пигментацией дети могут оказаться и светлее, и темнее каждого из них.
10. Вариационный ряд и вариационная кривая
Изменчивость количественного признака изучают статистически. Если измерить признак у многих особей (например, длину колосьев пшеницы одного сорта) и расположить значения по возрастанию, получится вариационный ряд. Подсчитав, сколько раз встречается каждое значение (частота), можно построить вариационную кривую — график зависимости частоты от значения признака. Для большинства количественных признаков она имеет форму колокола: чаще всего встречаются средние значения, реже — крайние.
| Длина колоса, см | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
|---|---|---|---|---|---|---|---|
| число колосьев | 2 | 8 | 20 | 32 | 22 | 12 | 4 |
Средняя величина признака вычисляется как сумма произведений значений на их частоты, делённая на общее число измерений: (6 × 2 + 7 × 8 + 8 × 20 + 9 × 32 + 10 × 22 + 11 × 12 + 12 × 4) / 100 = 9,16 см. Пределы изменчивости (от 6 до 12 см) отражают норму реакции генотипа в данных условиях, если все растения генетически одинаковы (один сорт-самоопылитель), или сумму генетической и средовой изменчивости, если растения разные.
Вариационный ряд и кривая — традиционная тема школьного курса (модификационная изменчивость). Связь с полимерией такая: в чистой линии вариационная кривая показывает только влияние среды, а в смешанной популяции — ещё и вклад многих генов. Поэтому кривая в F2 шире, чем у родительских линий и F1, как и наблюдал Ист на табаке.
11. Опыт Иогансена: чистые линии и отбор
Чтобы понять роль генов и среды в количественных признаках, важен опыт датского ботаника Вильгельма Иогансена с фасолью (1903). Фасоль — самоопылитель, и потомство одного растения представляет собой чистую линию — генетически одинаковые гомозиготные растения. Иогансен взвешивал тысячи семян. В смеси семян разных линий отбор работал: потомство крупных семян было в среднем крупнее, мелких — мельче. Но внутри одной чистой линии отбор не давал ничего: из самых крупных и самых мелких семян одной линии вырастали растения с семенами одинаковой средней массы [8].
Вывод Иогансена стал основой понятий «генотип» и «фенотип». Различия между линиями — генетические, и их можно отбирать. Различия внутри линии — средовые (одно семя в бобе лежало удачнее, другое получило меньше питания), и они не наследуются. Количественный признак в популяции всегда складывается из генетической и средовой составляющих, и отбор действует только на первую.
12. Как измеряют наследуемость у человека
У человека нельзя поставить скрещивания, поэтому наследуемость оценивают по сходству родственников, чаще всего — близнецов. Однояйцевые близнецы генетически почти одинаковы, разнояйцевые — имеют в среднем половину общих аллелей, как обычные братья и сёстры. Если признак сильнее зависит от генов, однояйцевые близнецы будут похожи друг на друга заметно больше, чем разнояйцевые. По разнице в сходстве можно приблизительно оценить наследуемость: удвоенная разность коэффициентов сходства (корреляций) однояйцевых и разнояйцевых близнецов.
| Признак | Сходство однояйцевых близнецов | Сходство разнояйцевых близнецов | Оценка наследуемости |
|---|---|---|---|
| рост | около 0,9 | около 0,5 | около 0,8 |
| масса тела | около 0,8 | около 0,45 | около 0,7 |
| артериальное давление | около 0,6 | около 0,35 | около 0,5 |
Цифры в таблице приблизительные и типичные для исследований благополучных стран; в других условиях они могут отличаться [6]. Подробнее о близнецовом методе — в статье «Методы генетики».
Сложные признаки и осторожность выводов
Многие признаки, интересные людям, — способности, черты характера, склонность к тем или иным заболеваниям — тоже количественные и зависят от тысяч генов и от среды. Исследования близнецов показывают у них умеренную наследуемость. Но из этого нельзя делать выводов о «генетической предопределённости» отдельного человека или о различиях между группами людей: наследуемость относится к изменчивости внутри популяции в конкретных условиях, а каждый отдельный вариант ДНК вносит крошечный вклад. Генетика количественных признаков учит осторожности: «много генов + среда» не сводится ни к «всё решают гены», ни к «гены не важны».
13. Полимерия и среда: норма реакции и наследуемость
Количественные признаки, как правило, сильно зависят от среды. Пшеница с «урожайным» генотипом на бедной почве даст меньше зерна, чем «средний» сорт на хорошей. Поэтому фенотип количественного признака складывается из двух составляющих: генетической (суммы вкладов полимерных генов) и средовой. Среда «размывает» ступени: даже при двух генах фенотипы соседних классов перекрываются, и распределение выглядит непрерывным.
Чтобы оценить, какая доля различий между особями объясняется генами, генетики используют понятие наследуемость (коэффициент наследуемости). Он показывает, какая часть изменчивости признака в данной популяции и в данных условиях обусловлена генетическими различиями. Наследуемость роста человека — около 0,8, удоя коров — 0,2–0,3, яйценоскости кур — около 0,2, массы тела у мышей — около 0,4.
Наследуемость — свойство популяции, а не особи. Наследуемость роста 0,8 не значит, что рост человека на 80 % «от генов» и на 20 % «от питания». Это значит, что в данной популяции 80 % различий в росте между людьми связаны с различиями в генотипах. В другой популяции или в других условиях наследуемость может быть иной [6].
От наследуемости зависит успех селекции. Если наследуемость высокая, отбор лучших особей быстро улучшает признак в следующих поколениях. Если низкая, отобранные «лучшие» животные или растения часто оказываются хороши не генотипом, а условиями, и их потомство не наследует превосходства. Поэтому для признаков с низкой наследуемостью (например, удой) селекционеры оценивают производителей по потомству.
Регрессия к среднему
Явление, которое обнаружил Гальтон, — дети очень высоких родителей в среднем ниже родителей, — объясняется полимерией и влиянием среды. Очень высокий рост родителя часто частично результат благоприятных условий или удачного сочетания аллелей, которое при образовании гамет «разбирается» на части. Дети получают лишь половину аллелей каждого родителя, к тому же в других условиях, поэтому в среднем их признак ближе к среднему по популяции [1].
14. Полимерия в селекции
Большинство хозяйственно важных признаков — урожайность, масса плодов, содержание белка в зерне, удой, настриг шерсти, скорость роста — количественные, и определяются многими генами. Это объясняет две важные особенности селекции.
Трансгрессия. Иногда в F2 появляются особи, превосходящие по признаку обоих родителей. Пусть один сорт имеет генотип A1A1a2a2A3A3 (4 доминантных аллеля), другой — a1a1A2A2a3a3 (2). В F2 может появиться A1A1A2A2A3A3 — 6 доминантных аллелей, больше, чем у любого родителя. Такое превышение называют трансгрессией. Селекционеры целенаправленно скрещивают сорта с разными «полезными» аллелями, чтобы найти трансгрессивные формы.
Постепенный отбор. Поскольку каждый ген вносит небольшой вклад, отбор лучших особей в каждом поколении постепенно накапливает полезные аллели. Знаменитый пример — опыт Иллинойсского университета на кукурузе: начиная с 1896 года растения отбирали на высокое и на низкое содержание масла в зерне. Более чем за сто поколений отбора содержание масла в «высокой» линии выросло примерно в четыре раза, а в «низкой» упало примерно до 1 % — и отбор продолжал давать результат, потому что в исходной популяции было много полимерных генов.
| Явление | Причина | Значение для селекции |
|---|---|---|
| трансгрессия | сочетание полезных аллелей разных родителей | получение форм, превосходящих родителей |
| длительный ответ на отбор | много генов с малым эффектом | признак можно улучшать много поколений |
| низкая наследуемость | сильное влияние среды | нужна оценка по потомству |
| геномная селекция | оценка суммы вкладов тысяч ДНК-меток | отбор молодых животных до появления потомства |
15. Пороговые признаки и полигенные болезни
Некоторые признаки выглядят как «есть или нет»: болезнь либо есть, либо нет. Но наследуются они как количественные. Пример — врождённые пороки развития (расщелина губы и нёба, пороки сердца, стеноз привратника желудка), сахарный диабет 2-го типа, ишемическая болезнь сердца. Генетики объясняют это моделью порога. У каждого человека есть «предрасположенность» к болезни — количественная величина, складывающаяся из многих генов и факторов среды и распределённая в популяции по колоколу. Болезнь развивается, если предрасположенность превышает определённый порог.
Из модели следуют проверяемые предсказания. Во-первых, у родственников больного риск выше, чем в популяции, но гораздо ниже, чем при менделевских болезнях (не 25 % или 50 %, а несколько процентов): родственники в среднем ближе к порогу. Во-вторых, чем больше больных в семье и чем тяжелее форма у больного, тем выше риск у остальных родственников: значит, у этой семьи предрасположенность особенно велика. В-третьих, если болезнь чаще бывает у одного пола (стеноз привратника — у мальчиков), то у родственников больных «редкого» пола (девочек) риск выше: чтобы девочка заболела, нужна особенно большая предрасположенность, и её родственники несут много «аллелей риска». Все эти закономерности действительно наблюдаются.
Полигенные шкалы риска
Сегодня, когда известны тысячи вариантов ДНК, связанных с болезнями, генетики научились складывать их эффекты в одно число — полигенную шкалу риска. Это прямое применение идеи кумулятивной полимерии: каждый «аллель риска» добавляет небольшой вклад, а сумма показывает, насколько выше или ниже среднего у человека генетическая предрасположенность. Такие шкалы помогают выделять группы высокого риска, например, ишемической болезни сердца или рака молочной железы, но предсказать судьбу отдельного человека не могут: болезнь зависит и от образа жизни, и от многих неучтённых факторов.
16. Гены с большим и малым эффектом
В школьной модели полимерии все гены вносят одинаковый вклад. В реальности вклады разные: у количественного признака обычно есть несколько генов с заметным эффектом и множество генов с очень малым. Участки генома, влияющие на количественный признак, генетики называют локусами количественных признаков (по-английски QTL).
Размер плодов томата. Дикие предки томата имеют ягоды размером с горошину, современные сорта — плоды в сотни граммов. Одним из главных генов, сделавших плоды крупнее, оказался локус fw2.2: его «культурный» аллель увеличивает массу плода примерно на треть, потому что ген в плоде работает слабее и меньше сдерживает деление клеток [9]. Это пример гена с крупным эффектом внутри полигенного признака.
Размер собак. Собаки различаются по размеру больше, чем любые другие млекопитающие одного вида: чихуахуа весит около 2 кг, мастиф — около 80. Оказалось, что значительную часть различий объясняет небольшое число генов, и один из главных — ген инсулиноподобного фактора роста IGF1: определённый его вариант есть почти у всех мелких пород [10]. Сочетание нескольких генов с крупным эффектом и многих с малым объясняет, как селекционеры за несколько веков получили такое разнообразие размеров.
Рост человека, напротив, — пример признака почти без генов с крупным эффектом: тысячи вариантов вносят каждый крошечный вклад [7]. Исключения — редкие мутации, вызывающие карликовость или гигантизм (например, мутации FGFR3 при ахондроплазии).
17. Полимерия у домашних животных и растений
| Объект | Признак | Особенность наследования |
|---|---|---|
| крупный рогатый скот | удой, жирность молока | сотни генов, наследуемость удоя 0,2–0,35; оценка быков по дочерям и по геному |
| куры | яйценоскость, масса яйца | многие гены, сильное влияние условий содержания |
| куры | оперённость ног | некумулятивная полимерия двух генов: 15 : 1 |
| пшеница | окраска зерна | кумулятивная полимерия двух-трёх генов |
| кукуруза | высота растения, длина початка, содержание масла | многие гены; длительный ответ на отбор |
| томат | масса плода | несколько генов с крупным эффектом (fw2.2 и др.) и много с малым |
Для всех этих признаков селекционеры используют методы количественной генетики: оценивают наследуемость, отбирают лучших по потомству, а в последние годы — по сумме эффектов тысяч ДНК-меток (геномная селекция). Это позволило, например, удвоить скорость генетического улучшения молочного скота.
18. Количественные признаки и естественный отбор
Количественные признаки — главный материал для эволюции. Естественный отбор действует на них тремя способами. Стабилизирующий отбор благоприятствует средним значениям: например, у новорождённых детей с очень малой и очень большой массой тела выживаемость в прошлом была ниже, чем у детей средней массы. Движущий (направленный) отбор сдвигает среднее значение: при похолодании выживают более крупные или более пушистые особи. Дизруптивный отбор благоприятствует крайним значениям и может разделить популяцию на две группы.
Полимерия объясняет, почему отбор может долго сдвигать количественный признак: в популяции много генов с малыми эффектами, и отбор постепенно накапливает «полезные» аллели. Это и видно в многолетних селекционных опытах, где признак меняется на протяжении десятков и сотен поколений.
19. Как решать задачи на полимерию
- Определите вид полимерии. Несколько классов с постепенной сменой признака — кумулятивная; два класса 15 : 1 (63 : 1) — некумулятивная.
- Определите число генов по числу классов (n = (k − 1)/2) или по доле крайнего класса (1/4n).
- Запишите соответствие «число доминантных аллелей — фенотип»: «4 — тёмно-красные, 3 — красные, 2 — розовые, 1 — светло-розовые, 0 — белые».
- Найдите генотипы родителей по числу доминантных аллелей и по расщеплению в потомстве.
- Запишите гаметы и сочетания, затем сгруппируйте потомков по числу доминантных аллелей.
- Объясните результат: «признак определяется двумя парами полимерных генов с кумулятивным действием, гены наследуются независимо».
Как выглядят задачи линии 28 на полимерию
| Подсказка в условии | Что она означает |
|---|---|
| «интенсивность окраски зависит от числа доминантных аллелей» | кумулятивная полимерия |
| «признак проявляется при наличии хотя бы одного доминантного аллеля любого из генов» | некумулятивная полимерия |
| «гибриды F1 имеют промежуточную окраску, в F2 пять классов» | кумулятивная полимерия двух генов |
| «в F2 15 : 1» или «только 1/16 растений с рецессивным признаком» | некумулятивная полимерия двух генов |
| «каждый доминантный аллель увеличивает массу на … г» | кумулятивная полимерия, счёт по числу аллелей |
При оформлении удобно рядом с каждым генотипом записывать число доминантных аллелей в скобках: «A1a1A2A2 (3) — красное зерно». Это помогает не ошибиться при группировке потомков.
20. Разборы типовых задач
Задача 1. Пшеница
Скрестили пшеницу с тёмно-красным зерном (A1A1A2A2) и с белым (a1a1a2a2). Определите окраску F1 и расщепление в F2. Какая доля F2 будет такой же окраски, как F1?
Решение. F1: A1a1A2a2 — два доминантных аллеля, розовая окраска. F2: 1 тёмно-красная : 4 красных : 6 розовых : 4 светло-розовых : 1 белая. Как F1 (два доминантных аллеля) — 6/16 = 3/8.
Задача 2. Анализирующее скрещивание
Розовозёрное растение A1a1A2a2 скрестили с белозёрным. Каким будет потомство?
Решение. Гаметы дигетерозиготы: A1A2 (2 доминантных), A1a2 и a1A2 (по 1), a1a2 (0); гаметы белого — a1a2. Потомство: 1/4 с двумя доминантными (розовые), 1/2 с одним (светло-розовые), 1/4 без (белые) — 1 : 2 : 1.
Задача 3. Число генов
При скрещивании двух сортов с разной длиной колоса в F2 из 640 растений 10 оказались с таким же коротким колосом, как у короткоколосого родителя. Сколько пар полимерных генов определяют признак?
Решение. 10/640 = 1/64 = 1/43 — три пары генов.
Задача 4. Пастушья сумка
Растение пастушьей сумки с треугольными стручочками (A1a1A2a2) скрестили с растением с овальными. Каким будет потомство?
Решение. Некумулятивная полимерия. Потомство: A1a1A2a2, A1a1a2a2, a1a1A2a2 — треугольные; a1a1a2a2 — овальные. 3 : 1.
Задача 5. Цвет кожи
По модели двух пар полимерных генов: у мулатов («средняя» пигментация) генотип A1a1A2a2. Какова вероятность у двух таких родителей ребёнка с очень тёмной кожей (4 доминантных аллеля)? С очень светлой (0)? Со средней?
Решение. Очень тёмная — 1/16, очень светлая — 1/16, средняя (2 аллеля) — 6/16 = 3/8.
Задача 6. Трансгрессия
Скрестили растения A1A1a2a2 и a1a1A2A2 (каждое по 2 доминантных аллеля, одинаковая высота). Какая доля F2 будет выше обоих родителей?
Решение. F1: A1a1A2a2. В F2 3 или 4 доминантных аллеля — 4/16 + 1/16 = 5/16 — выше родителей; столько же (5/16) ниже. Это трансгрессия.
Задача 7. Определение генотипов родителей по F1
Скрестили два растения пшеницы с розовым зерном (по два доминантных аллеля). Все потомки оказались розовыми. Каковы генотипы родителей?
Решение. Розовые — генотипы с двумя доминантными аллелями: A1A1a2a2, a1a1A2A2, A1a1A2a2. Все потомки розовые без расщепления только при скрещивании гомозигот: A1A1a2a2 × A1A1a2a2, a1a1A2A2 × a1a1A2A2 или A1A1a2a2 × a1a1A2A2 (в последнем случае все потомки A1a1A2a2 — тоже розовые).
Задача 8. Неизвестное число генов
В F2 получено 7 классов окраски зерна. Сколько пар генов, и какова доля растений с белым зерном?
Решение. 2n + 1 = 7, n = 3. Белых — 1/64.
Задача 9. Кумулятивная полимерия и вероятность
У родителей A1a1A2a2 и A1a1a2a2 какая доля потомков будет иметь ровно два доминантных аллеля?
Решение. Гаметы первого: 2, 1, 1, 0 доминантных аллелей (по 1/4); второго: A1a2 (1) и a1a2 (0) по 1/2. Два аллеля: (2 + 0) — 1/4 × 1/2 = 1/8; (1 + 1) — 1/2 × 1/2 = 1/4. Итого 3/8.
Задача 10. Средняя длина колоса
По вариационному ряду 6 см — 2, 7 — 8, 8 — 20, 9 — 32, 10 — 22, 11 — 12, 12 — 4 колоса найдите среднюю длину и объясните, почему в чистой линии колосья разной длины.
Решение. Средняя 9,16 см. В чистой линии все растения генетически одинаковы, и различия вызваны условиями среды (модификационная изменчивость в пределах нормы реакции).
Задача 11. Гаметы полимерной дигетерозиготы
Выпишите гаметы растения A1a1A2a2 и число доминантных аллелей в каждой. Какая доля гамет несёт ровно один доминантный аллель?
Решение. A1A2 (2), A1a2 (1), a1A2 (1), a1a2 (0). Ровно один — 1/2.
Задача 12. Цвет кожи у детей
По модели двух полимерных генов женщина с очень светлой кожей (a1a1a2a2) вышла замуж за мужчину со средней пигментацией (A1a1A2a2). Какие оттенки кожи возможны у детей и с какой вероятностью?
Решение. Это анализирующее скрещивание: дети со средней пигментацией (2 аллеля) — 1/4, светлее среднего (1 аллель) — 1/2, очень светлые (0) — 1/4. Темнее отца детей быть не может.
Задача 13. Некумулятивная полимерия в двух поколениях
Скрестили кур с оперёнными ногами (A1A1A2A2) с голоногими (a1a1a2a2). Определите F1 и F2. Какая доля оперённых кур F2 при скрещивании с голоногими даст только оперённое потомство?
Решение. F1 A1a1A2a2 — оперённые; F2 15 оперённых : 1 голоногий. При скрещивании с голоногими только оперённых потомков дадут куры, у которых в каждой гамете есть хотя бы один доминантный аллель: A1A1__ или __A2A2. Таких среди 15: A1A1 с любым вторым геном (4) + a1a1A2A2 (1) + A1a1A2A2 (2) = 7. Доля 7/15.
Задача 14. Количество потомков нужного класса
Сколько растений F2 нужно вырастить, чтобы получить в среднем 5 растений с самым тёмным зерном при трёх полимерных генах?
Решение. Доля самого тёмного класса 1/64; 5 × 64 = 320 растений.
Задача 15. Масса плодов
У растения масса плода определяется двумя парами полимерных генов с кумулятивным действием: у a1a1a2a2 — 60 г, каждый доминантный аллель добавляет 15 г. Какова масса плодов у A1a1A2A2? Какое расщепление по массе даст скрещивание A1a1A2a2 × a1a1a2a2?
Решение. 3 доминантных аллеля: 60 + 45 = 105 г. Анализирующее скрещивание: 1/4 — 90 г (2 аллеля), 1/2 — 75 г (1), 1/4 — 60 г (0).
Задача 16. Цвет кожи: может ли ребёнок быть темнее родителей
Оба родителя имеют светлую пигментацию с одним доминантным аллелем (A1a1a2a2 и a1a1A2a2). Может ли у них родиться ребёнок темнее обоих? С какой вероятностью?
Решение. Гаметы: A1a2, a1a2; a1A2, a1a2. Ребёнок A1a1A2a2 (2 аллеля, темнее родителей) — 1/4.
Задача 17. Два вида полимерии
В двух опытах получено: в первом — F2 301 : 19, во втором — 21 : 79 : 122 : 82 : 16. Определите вид полимерии и число генов в каждом опыте.
Решение. Первый: 320/16 = 20; 301/20 ≈ 15, 19/20 ≈ 1 — 15 : 1, некумулятивная полимерия двух генов. Второй: сумма 320, 1/16 = 20; 21 : 79 : 122 : 82 : 16 ≈ 1 : 4 : 6 : 4 : 1 — кумулятивная полимерия двух генов.
Задача 18. Генотипы по анализирующему скрещиванию
Растение с красным зерном скрестили с белозёрным. Получили 1/2 растений с розовым и 1/2 со светло-розовым зерном. Каков генотип красного растения (кумулятивная полимерия двух генов)?
Решение. Потомки с 2 и 1 доминантными аллелями — гаметы красного растения несли 2 и 1 доминантный аллель. Красное (3 аллеля) — A1A1A2a2 (гаметы A1A2 и A1a2) или A1a1A2A2.
Задача 19. Число генов по разнице родителей
Две чистые линии кукурузы различаются по высоте: 100 и 220 см. F1 — 160 см. В F2 встречаются растения всех высот от 100 до 220 см с шагом 20 см. Сколько генов и какой вклад каждого доминантного аллеля?
Решение. Классы через 20 см от 100 до 220: 100, 120, …, 220 — 7 классов. 2n + 1 = 7, n = 3. Разница 120 см на 6 доминантных аллелей — по 20 см.
Задача 20. Окраска овса
Нильсон-Эле скрестил овёс с чёрными и белыми чешуями. F1 — чёрные, F2 — 630 чёрных и 40 белых. Объясните результат.
Решение. 670/16 ≈ 42; 630/42 = 15, 40/42 ≈ 1 — 15 : 1, некумулятивная полимерия двух генов: чешуи чёрные при наличии хотя бы одного доминантного аллеля любого гена, белые — у a1a1a2a2.
Задача 21. Некумулятивная полимерия: генотипы родителей
При скрещивании двух растений пастушьей сумки с треугольными стручочками получили 3/4 треугольных и 1/4 овальных. Каковы возможные генотипы родителей?
Решение. Овальные (a1a1a2a2) — 1/4: оба родителя гетерозиготны по одному гену и рецессивные гомозиготы по другому, например A1a1a2a2 × A1a1a2a2 (или по второму гену), либо A1a1a2a2 × a1a1A2a2 (1/2 × 1/2 = 1/4).
Задача 22. Самый частый класс
Какой фенотип в F2 самый частый при кумулятивной полимерии двух генов и какова его доля? А при трёх генах?
Решение. При двух генах — два доминантных аллеля, 6/16 = 37,5 %. При трёх — три аллеля, 20/64 ≈ 31 %.
Задача 23. Сколько белозёрных растений
В F2 от скрещивания тёмно-красной (A1A1A2A2A3A3) и белой пшеницы выращено 1280 растений. Сколько из них ожидается с белым зерном и сколько — с такой же окраской, как у F1?
Решение. Белые — 1/64: 20 растений. Как F1 (3 доминантных аллеля) — 20/64: 400 растений.
21. Итог: что важно знать
- Полимерия — однозначное действие нескольких неаллельных генов на один признак; гены обозначают одной буквой с индексами (A1, A2).
- Полимерные гены наследуются независимо; меняется только соответствие генотипов и фенотипов.
- Кумулятивная полимерия: признак тем сильнее, чем больше доминантных аллелей; F1 промежуточное, F2 при двух генах 1 : 4 : 6 : 4 : 1, анализирующее 1 : 2 : 1 (окраска зерна пшеницы, цвет кожи, рост).
- Некумулятивная полимерия: достаточно одного доминантного аллеля любого гена; F2 15 : 1, анализирующее 3 : 1 (пастушья сумка).
- При n генах: 2n + 1 классов, доля крайнего класса 1/4n; числа расщепления — строка треугольника Паскаля.
- Количественные признаки определяются многими генами и средой; наследуемость показывает долю генетической изменчивости в популяции.
- Полимерия объясняет непрерывную изменчивость, регрессию к среднему, трансгрессию и длительный ответ на отбор.
Все расщепления на 16 частей — шпаргалка
| F2 | Анализирующее | Тип наследования | Пример |
|---|---|---|---|
| 9 : 3 : 3 : 1 | 1 : 1 : 1 : 1 | независимое наследование двух признаков; или комплементарность с новым признаком | горох (окраска и форма); гребень кур |
| 9 : 7 | 1 : 3 | комплементарность | душистый горошек |
| 9 : 6 : 1 | 1 : 2 : 1 | комплементарность | форма плодов тыквы |
| 9 : 3 : 4 | 1 : 1 : 2 | рецессивный эпистаз | мыши, лабрадоры, лошади |
| 13 : 3 | 3 : 1 | доминантный эпистаз | окраска кур |
| 12 : 3 : 1 | 2 : 1 : 1 | доминантный эпистаз | окраска плодов тыквы |
| 15 : 1 | 3 : 1 | некумулятивная полимерия | пастушья сумка, оперённость ног кур |
| 1 : 4 : 6 : 4 : 1 | 1 : 2 : 1 | кумулятивная полимерия | окраска зерна пшеницы |
| 3 : 6 : 3 : 1 : 2 : 1 | 1 : 1 : 1 : 1 | два признака, по одному неполное доминирование | ночная красавица и высота |
| 6 : 3 : 2 : 1 (12 частей) | 1 : 1 : 1 : 1 | два признака, по одному летальность гомозигот | жёлтые мыши |
22. Частые ошибки
- «Полимерия — один ген влияет на много признаков». Это плейотропия; полимерия — много генов на один признак.
- «1 : 4 : 6 : 4 : 1 — неполное доминирование». При неполном доминировании одного гена 1 : 2 : 1; пять классов — два полимерных гена.
- «15 : 1 — комплементарность». 15 : 1 — некумулятивная полимерия: признака нет только у рецессивной гомозиготы по обоим генам.
- «Генотипы A1A1a2a2 и A1a1A2a2 дают разный фенотип». При кумулятивной полимерии одинаковое число доминантных аллелей — одинаковый фенотип.
- «Непрерывные признаки не подчиняются законам Менделя». Подчиняются: каждый полимерный ген наследуется по Менделю, а плавность создают многие гены и среда.
- «Наследуемость 0,8 означает, что признак на 80 % определён генами у каждого человека». Наследуемость — доля генетической изменчивости в популяции, а не в особи.
- «Дети не могут быть выше обоих родителей по наследственным причинам». Могут — трансгрессия при сочетании полезных аллелей обоих родителей.
- «Число генов можно определить только по ДНК». По числу классов в F2 или доле крайнего класса его оценивают из скрещиваний.
- «Цвет кожи определяется точно двумя генами». Это школьная модель; на деле — десятки генов.
- «Отбор в чистой линии улучшит признак». В чистой линии различия средовые; отбор действует только на генетические различия между линиями.
- «Пороговая болезнь наследуется как рецессивный признак». Риск у родственников обычно несколько процентов, а не 25 %; болезнь определяется суммой многих генов и среды.
23. Интересные факты
- Опыты Нильсон-Эле с пшеницей и овсом 1908–1909 годов стали одной из основ количественной генетики; он же был видным шведским селекционером.
- Гальтон, родственник Ч. Дарвина (у них был общий дед — Эразм Дарвин), первым применил статистику к наследственности и придумал понятия регрессии и корреляции.
- Опыт по отбору кукурузы на содержание масла и белка в Иллинойсе идёт непрерывно с 1896 года — это самый длительный селекционный эксперимент в мире.
- Рост человека связан примерно с 12 тысячами вариантов ДНК — каждый из них меняет рост в среднем меньше чем на миллиметр.
- Средний рост людей во многих странах за XX век вырос на 10 сантиметров и больше — не из-за генов, а благодаря лучшему питанию и здоровью; это пример влияния среды на количественный признак.
- У мягкой пшеницы шесть наборов хромосом (три генома), и многие гены представлены тремя копиями — отсюда частые полимерные расщепления в её генетике.
- Р. Фишер в статье 1918 года ввёл понятие дисперсии, которое теперь используют во всех науках.
- Один вариант гена IGF1 есть почти у всех мелких пород собак — от чихуахуа до таксы — и почти отсутствует у крупных.
- Локус fw2.2 томата был одним из первых генов количественных признаков, выделенных и изученных на молекулярном уровне.
- Светлая кожа у европейцев и у жителей Восточной Азии возникла независимо и связана с разными генами — пример конвергентной эволюции количественного признака.
- Гальтон изобрёл не только регрессию, но и метод дактилоскопии, и одним из первых предложил изучать близнецов, чтобы отделить влияние наследственности от среды.
- Работы Нильсон-Эле с овсом показали полимерию раньше, чем с пшеницей: у овса он нашёл расщепление 15 : 1 по окраске чешуй.
- Треугольник Паскаля, который даёт расщепления при кумулятивной полимерии, описал французский математик Блез Паскаль в XVII веке — задолго до генетики.
- Слово «полимерия» происходит от греческих слов «много» и «часть»: признак складывается из многих частей-вкладов.
- Э. Ист изучал длину венчика табака и показал, что «непрерывная» изменчивость в F2 подчиняется менделевским законам для нескольких генов.
24. Частые вопросы
Чем полимерия отличается от плейотропии?
При полимерии несколько генов влияют на один признак, при плейотропии один ген влияет на несколько признаков. Это противоположные явления.
Почему полимерные гены обозначают одной буквой?
Чтобы подчеркнуть, что они одинаково влияют на признак. Индексы (A1, A2) показывают, что это разные гены, обычно в разных хромосомах.
Почему при кумулятивной полимерии F1 промежуточное?
У гибрида от родителей с 4 и 0 доминантными аллелями — 2 аллеля, ровно посередине. Признак пропорционален числу доминантных аллелей, поэтому и он промежуточный.
Как отличить кумулятивную полимерию от неполного доминирования?
По F2: при неполном доминировании одного гена три класса 1 : 2 : 1 и родительские фенотипы встречаются по 1/4; при полимерии двух генов — пять классов 1 : 4 : 6 : 4 : 1 и родительские фенотипы по 1/16.
Почему количественные признаки распределены плавно?
Их определяют многие гены с небольшими вкладами, а среда добавляет свою изменчивость. Ступени между генотипическими классами становятся мельче вариации, вызванной средой, и распределение выглядит непрерывным.
Что такое наследуемость?
Доля изменчивости признака в данной популяции, обусловленная генетическими различиями. Она бывает от 0 до 1, зависит от популяции и условий и не говорит о том, насколько признак «генетический» у отдельного человека.
Что такое трансгрессия?
Появление в потомстве особей, у которых признак выражен сильнее (или слабее), чем у обоих родителей. Это результат сочетания полезных аллелей, рассеянных у разных родителей.
Почему 15 : 1 называют полимерией, а не эпистазом?
Потому что оба гена действуют одинаково: любой из доминантных аллелей даёт признак, и гены взаимозаменяемы. При эпистазе один ген подавляет другой, и гены неравноправны.
Что такое вариационная кривая?
График, показывающий, как часто встречаются разные значения количественного признака. Обычно она колоколообразна: средние значения встречаются чаще, крайние — реже.
Почему отбор внутри чистой линии не действует?
Все растения чистой линии генетически одинаковы; различия между ними вызваны средой и не наследуются. Это показал Иогансен на фасоли.
Что такое пороговый признак?
Признак, который проявляется как «есть или нет», но определяется количественной предрасположенностью, складывающейся из многих генов и среды. Признак появляется, если предрасположенность превышает порог; так наследуются многие врождённые пороки и распространённые болезни.
Все ли полимерные гены вносят одинаковый вклад?
Нет. В школьных задачах вклады равны, но в реальности обычно есть несколько генов с крупным эффектом и множество с малым, как у массы плодов томата или размера собак.
Почему цвет кожи различается у народов разных широт?
Тёмная кожа защищает от избытка ультрафиолета в тропиках, светлая лучше синтезирует витамин D при недостатке ультрафиолета в высоких широтах. Отбор в разных условиях благоприятствовал разным сочетаниям аллелей полимерных генов пигментации.
Чем 15 : 1 отличается от эпистаза?
При 15 : 1 гены равноправны и взаимозаменяемы: любой доминантный аллель даёт признак. При эпистазе один ген подавляет другой, и их роли различны.
Почему дети очень высоких родителей обычно ниже их?
Это регрессия к среднему. Часть отклонения роста родителей вызвана средой и не наследуется, а генетическую часть ребёнок получает лишь наполовину и случайно. Поэтому в среднем дети ближе к среднему по популяции, чем родители.
Почему в задачах полимерные гены всегда в разных хромосомах?
Чтобы можно было применять правило произведения и решётку Пеннета. В реальности полимерные гены могут лежать и в одной хромосоме, и тогда наследуются сцепленно, но в школьных задачах это не рассматривается.
Как отличить в задаче полимерию от комплементарности, если в F1 промежуточный признак?
При комплементарности у F1 обычно новый признак (окраска у белых родителей), а в F2 9 : 7 или 9 : 6 : 1. При кумулятивной полимерии F1 промежуточное между родителями, а в F2 ряд из пяти и более классов с плавной сменой признака.
Может ли признак при полимерии быть у потомков выраженнее, чем у обоих родителей?
Да, это трансгрессия: потомок может получить больше доминантных аллелей, чем было у каждого родителя, если «полезные» аллели у родителей были в разных генах.
Почему в F1 разброс признака такой же маленький, как у родителей, а в F2 — большой?
Все растения F1 генетически одинаковы (гетерозиготы по всем генам), и их различия вызваны только средой. В F2 к средовой изменчивости добавляется генетическая — расщепление по многим генам.
Зачем нужна количественная генетика, если есть законы Менделя?
Законы Менделя описывают отдельные гены. Количественная генетика описывает суммарный эффект многих генов и среды на признак в популяции — наследуемость, ответ на отбор, сходство родственников. Это основа селекции и изучения распространённых болезней.
Почему при полимерии F1 похоже на среднее, а не на одного из родителей?
Каждый доминантный аллель вносит одинаковый вклад, а у гибрида от крайних родителей их ровно половина от максимума. Поэтому признак у F1 посередине между родительскими.
Можно ли по фенотипу определить генотип при кумулятивной полимерии?
Только число доминантных аллелей, но не их распределение по генам. Например, розовое зерно могут иметь A1A1a2a2, a1a1A2A2 и A1a1A2a2. Различить их можно по потомству: гомозиготы при самоопылении не расщепляются, дигетерозигота даёт 1 : 4 : 6 : 4 : 1.
Как связаны полимерия и модификационная изменчивость?
Обе дают плавную изменчивость количественного признака. Полимерия — генетическая составляющая (разные генотипы), модификационная изменчивость — средовая (разные условия при одном генотипе). В популяции они складываются.
Почему крайние классы при полимерии так редки?
Чтобы получить крайний фенотип, нужно, чтобы все гены одновременно оказались в одинаковом состоянии — все доминантные или все рецессивные. Вероятность этого 1/4n: при двух генах 1/16, при трёх 1/64, при десяти — около одного на миллион.
Можно ли вывести сорт с «максимальной» выраженностью признака?
Да — гомозиготу по всем доминантным полимерным аллелям. Но при многих генах такие особи редки (1/4n в F2), поэтому их ищут в больших популяциях или накапливают аллели постепенным отбором.
25. ЕГЭ
Тема входит в элемент 3.3 кодификатора [11]: «Взаимодействие неаллельных генов… Полимерия». В части 1 встречаются задания на определение полимерии, на расщепления 15 : 1 и 1 : 4 : 6 : 4 : 1, на число генов и долю потомков определённого фенотипа. В части 2 — задачи линии 28 на окраску зерна, цвет кожи, длину колоса или массу плодов, вопросы по рисункам (зёрна пшеницы разной окраски).
Что обязательно знать к экзамену
- Определение полимерии, её виды и обозначения генов.
- Расщепления в F2 и в анализирующем скрещивании для кумулятивной и некумулятивной полимерии.
- Как определить число генов по числу классов или доле крайнего класса.
- Примеры: окраска зерна пшеницы, цвет кожи, форма стручочка пастушьей сумки.
- Отличие полимерии от плейотропии и неполного доминирования.
Разбор задания части 1
Задание. Какое расщепление по фенотипу в F2 при некумулятивной полимерии двух генов? Ответ запишите последовательностью цифр в порядке убывания. Ответ: 151.
Задание. Какова доля (%) растений с белым зерном в F2 при кумулятивной полимерии двух генов? Ответ: 6,25.
Разбор задачи части 2
Задача. Окраска зерна пшеницы определяется двумя парами полимерных генов с кумулятивным действием. Растение с красным зерном (три доминантных аллеля) скрестили с растением со светло-розовым зерном (один доминантный аллель). Составьте схему скрещивания. Определите возможные генотипы родителей, генотипы и фенотипы потомков и их соотношение.
Решение. Пусть родители A1A1A2a2 (3) и a1a1A2a2 (1). Гаметы: A1A2, A1a2; a1A2, a1a2. Потомство: A1a1A2A2 (3 — красные), A1a1A2a2 (2 — розовые, две комбинации), A1a1a2a2 (1 — светло-розовые). Соотношение 1 красный : 2 розовых : 1 светло-розовый. (Другие варианты генотипов родителей, например A1a1A2A2 и A1a1a2a2, дают иное расщепление — его тоже можно рассчитать тем же способом.)
Как формулировать ответ. Укажите вид полимерии и соответствие «число доминантных аллелей — фенотип». Для каждого потомка запишите генотип и число доминантных аллелей. В пояснении скажите, что гены наследуются независимо, а их действие суммируется.
Связь с другими темами
Взаимодействие неаллельных генов — в статье «Комплементарность и эпистаз»; плейотропия — в статье «Плейотропия и летальные гены»; неполное доминирование — в статье «Взаимодействие аллельных генов»; норма реакции и модификационная изменчивость — в статьях серии об изменчивости; короткий конспект — в статье «Полимерия генов».
26. Для олимпиад
Среднее и разброс в F2
При кумулятивной полимерии двух генов каждый доминантный аллель добавляет 5 см к росту растения, у рецессивной гомозиготы рост 40 см. Каковы средний рост в F2 от дигетерозигот и доля растений выше 55 см? Ответ: среднее число доминантных аллелей — 2, средний рост 40 + 2 × 5 = 50 см. Выше 55 см — растения с 4 доминантными аллелями (60 см): 1/16; ровно 55 см — 3 аллеля (4/16).
Сколько генов по дисперсии
Ист и последователи оценивали число генов по формуле, связывающей разницу между родительскими линиями и разброс в F2. Если родители различаются на D единиц признака, а все различия определяются n равными генами с аддитивным действием, то генетическая дисперсия в F2 равна D2/(8n). При D = 40 см и генетической дисперсии F2 50 см2 сколько генов? Ответ: n = D2/(8 × 50) = 1600/400 = 4 гена (оценка минимального числа, так как реальные гены неравны).
Некумулятивная полимерия трёх генов
Признак отсутствует только у a1a1a2a2a3a3. Каким будет расщепление в F2 от тригетерозигот и в их анализирующем скрещивании? Ответ: F2 — 63 : 1; анализирующее — 7 : 1.
Ответ на отбор
Наследуемость признака 0,3. Отобранные родители превосходят среднее популяции на 10 единиц. На сколько в среднем потомство превзойдёт среднее? Ответ: по «уравнению селекционера» R = h2 × S = 0,3 × 10 = 3 единицы. Чем ниже наследуемость, тем меньше отбор сдвигает признак за одно поколение.
Риск у родственников при пороговом признаке
Почему риск полигенной болезни у брата больного ребёнка обычно несколько процентов, а не 25 %, как при рецессивной менделевской болезни? Ответ: брат получает в среднем половину «аллелей риска» каждого родителя, но не все сразу; его предрасположенность смещена к порогу, но обычно не превышает его. При менделевской болезни у сибса ровно 1/4 шанса получить два мутантных аллеля, и этого достаточно для болезни.
Сколько генотипов в F2
При кумулятивной полимерии трёх генов сколько разных генотипов и фенотипов в F2? Ответ: генотипов 33 = 27, фенотипов (по числу доминантных аллелей) 7.
Трансгрессия при трёх генах
Скрещены A1A1A2A2a3a3 и a1a1a2a2A3A3 (4 и 2 доминантных аллеля). Какая доля F2 превзойдёт лучшего родителя? Ответ: F1 — тригетерозигота; в F2 5 или 6 доминантных аллелей — (6 + 1)/64 = 7/64 ≈ 11 %.
Регрессия и наследуемость
Наследуемость роста 0,8. Родители в среднем на 10 см выше среднего по популяции. На сколько в среднем выше среднего будут их дети? Ответ: по уравнению селекционера R = h2 × S = 0,8 × 10 = 8 см (при условии, что дети растут в тех же условиях). Регрессия составит 2 см.
Число генотипов с заданным фенотипом
При кумулятивной полимерии трёх генов сколько разных генотипов дают фенотип с тремя доминантными аллелями? Ответ: перечислим: три гетерозиготы A1a1A2a2A3a3 (1 генотип), сочетания «одна гомозигота доминантная + одна гетерозигота + одна гомозигота рецессивная» — 3 × 2 = 6 генотипов. Итого 7 генотипов.
Сколько шагов отбора
Наследуемость признака 0,5, в каждом поколении отбирают родителей, превосходящих среднее на 4 единицы. Насколько изменится среднее за 5 поколений (если наследуемость не меняется)? Ответ: за поколение R = 0,5 × 4 = 2; за 5 поколений — около 10 единиц. На практике ответ постепенно замедляется: полезные аллели фиксируются, и генетическая изменчивость уменьшается.
27. Задания с разбором
Задание 1
Выберите три верных ответа. Полимерия: 1) действие нескольких генов на один признак; 2) действие одного гена на несколько признаков; 3) пример — окраска зерна пшеницы; 4) бывает кумулятивной и некумулятивной; 5) пример — синдром Марфана; 6) полимерные гены наследуются сцепленно.
Ответ
1, 3, 4.
Задание 2
Какое расщепление в F2 при кумулятивной полимерии двух генов? Ответ запишите последовательностью цифр.
Ответ
14641.
Задание 3
Сколько фенотипических классов в F2 при кумулятивной полимерии трёх генов?
Ответ
Семь (2 × 3 + 1).
Задание 4
Установите соответствие между расщеплениями и видами взаимодействия. Расщепления: А) 15 : 1; Б) 1 : 4 : 6 : 4 : 1; В) 9 : 7; Г) 13 : 3; Д) 63 : 1. Виды: 1) кумулятивная полимерия; 2) некумулятивная полимерия; 3) комплементарность; 4) эпистаз.
Ответ
А2, Б1, В3, Г4, Д2.
Задание 5
Какова доля (%) растений с овальными стручочками в F2 пастушьей сумки?
Ответ
6,25 (1/16).
Задание 6
Сколько доминантных аллелей у растения A1a1A2A2A3a3? Сколько типов гамет оно образует?
Ответ
Четыре доминантных аллеля; гетерозиготно по двум генам — 4 типа гамет.
Задание 7
Найдите ошибки в тексте и исправьте их. 1) Полимерия — однозначное действие нескольких генов на один признак. 2) При кумулятивной полимерии F1 имеет доминантный признак. 3) При некумулятивной полимерии двух генов F2 15 : 1. 4) Полимерия — то же, что плейотропия. 5) Цвет кожи человека — пример полимерии.
Ответ
Ошибки в 2 и 4. 2) F1 промежуточное. 4) Плейотропия — противоположное явление.
Задание 8
Розовозёрное растение A1A1a2a2 самоопылили. Каким будет потомство?
Ответ
Все A1A1a2a2 — розовые, расщепления нет (гомозигота).
Задание 9
Почему у двух родителей со средней пигментацией кожи (A1a1A2a2) могут родиться дети и светлее, и темнее их?
Ответ
Каждый родитель образует гаметы с 0, 1 или 2 доминантными аллелями; у детей может оказаться от 0 до 4 доминантных аллелей — от очень светлой до очень тёмной кожи (по 1/16), хотя чаще всего средняя (6/16).
Задание 10
В F2 из 1000 растений 4 оказались с самыми короткими колосьями, как у родителя. Сколько генов?
Ответ
4/1000 ≈ 1/256 = 1/44 — четыре гена.
Задание 11
Выберите три верных ответа. Количественные признаки: 1) определяются многими генами; 2) сильно зависят от среды; 3) имеют чёткие альтернативные варианты; 4) примеры — рост, масса, удой; 5) не подчиняются законам Менделя; 6) всегда наследуются сцепленно.
Ответ
1, 2, 4.
Задание 12
Анализирующее скрещивание тригетерозиготы при кумулятивной полимерии. Сколько классов и в каком соотношении?
Ответ
Четыре класса (0–3 доминантных аллеля): 1 : 3 : 3 : 1.
Задание 13
Объясните, почему средний рост людей вырос за XX век, хотя гены за это время почти не изменились.
Ответ
Рост — количественный признак с широкой нормой реакции. Улучшение питания и здоровья в детстве позволило генотипам полнее реализовать свой потенциал — изменилась среда, а не генотип.
Задание 14
Пастушью сумку a1a1A2a2 (треугольные стручочки) самоопылили. Каким будет потомство?
Ответ
По A2: 3/4 A2_, 1/4 a2a2; по A1 все a1a1. Треугольные 3/4, овальные 1/4 (3 : 1).
Задание 15
Что такое трансгрессия? Приведите генотипы родителей, при которых она возможна.
Ответ
Появление потомков, превосходящих обоих родителей по признаку. Например, A1A1a2a2 × a1a1A2A2: в F2 возможен A1A1A2A2.
Задание 16
Какова вероятность, что у родителей A1a1A2a2 × a1a1a2a2 ребёнок будет иметь ровно один доминантный аллель?
Ответ
1/2 (гаметы A1a2 и a1A2 дигетерозиготы — 2 из 4).
Задание 17
Установите последовательность рассуждений при определении числа полимерных генов: 1) вывод о числе генов; 2) подсчёт доли крайнего класса в F2; 3) сравнение доли с 1/4n; 4) получение F2 от гибридов.
Ответ
4231.
Задание 18
Чем наследуемость отличается от наследственности?
Ответ
Наследственность — свойство организмов передавать признаки потомкам. Наследуемость — численная характеристика популяции: доля изменчивости признака, обусловленная генетическими различиями.
Задание 19 (олимпиадное)
При кумулятивной полимерии трёх генов какая доля F2 имеет ровно три доминантных аллеля?
Ответ
20/64 = 5/16 (средний член ряда 1 : 6 : 15 : 20 : 15 : 6 : 1).
Задание 20 (олимпиадное)
Растения двух чистых линий имеют массу плода 100 и 180 г; F1 — 140 г; в F2 одно растение из 256 весит 100 г и одно из 256 — 180 г. Сколько генов и какой вклад каждого доминантного аллеля?
Ответ
1/256 = 1/44 — четыре гена; 8 доминантных аллелей дают разницу 80 г, по 10 г на аллель.
Литература
- Galton F. Regression towards mediocrity in hereditary stature // The Journal of the Anthropological Institute of Great Britain and Ireland. 1886. Vol. 15. P. 246–263.
- Nilsson-Ehle H. Kreuzungsuntersuchungen an Hafer und Weizen // Lunds Universitets Årsskrift. N. F. Afd. 2. 1909. Bd. 5, Nr. 2. S. 1–122.
- East E. M. A Mendelian interpretation of variation that is apparently continuous // The American Naturalist. 1910. Vol. 44. P. 65–82.
- Fisher R. A. The correlation between relatives on the supposition of Mendelian inheritance // Transactions of the Royal Society of Edinburgh. 1919. Vol. 52. P. 399–433.
- Shull G. H. Duplicate genes for capsule-form in Bursa bursa-pastoris // Zeitschrift für induktive Abstammungs- und Vererbungslehre. 1914. Bd. 12. S. 97–149.
- Visscher P. M., Hill W. G., Wray N. R. Heritability in the genomics era — concepts and misconceptions // Nature Reviews Genetics. 2008. Vol. 9. P. 255–266.
- Yengo L., Vedantam S., Marouli E. et al. A saturated map of common genetic variants associated with human height // Nature. 2022. Vol. 610. P. 704–712.
- Johannsen W. The genotype conception of heredity // The American Naturalist. 1911. Vol. 45. P. 129–159.
- Frary A., Nesbitt T. C., Frary A. et al. fw2.2: a quantitative trait locus key to the evolution of tomato fruit size // Science. 2000. Vol. 289. P. 85–88.
- Sutter N. B., Bustamante C. D., Chase K. et al. A single IGF1 allele is a major determinant of small size in dogs // Science. 2007. Vol. 316. P. 112–115.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…