
Если собрать сотню колосьев с одного поля пшеницы и разложить их по длине, обнаружится простая закономерность: колосьев средней длины больше всего, а самых коротких и самых длинных — единицы. То же получится с семенами фасоли, листьями лавровишни, ростом новобранцев или массой новорождённых. Модификационная изменчивость не хаотична: её можно описать числами и графиком. Этот способ — вариационный ряд и вариационная кривая — придумали статистики XIX века, а датский биолог Вильгельм Иогансен превратил его в инструмент, который позволил отделить наследственные различия от ненаследственных и обосновать понятия «генотип» и «фенотип».
Это третья статья серии «Изменчивость: генотип, среда и мутации» (предыдущая — «Модификационная изменчивость и норма реакции»). В ней разобраны понятия варианты, частоты и выборки, построение вариационного ряда и кривой, среднее, мода, медиана, размах, стандартное отклонение, нормальное распределение, опыты Иогансена с чистыми линиями фасоли, практическая работа «как на ЕГЭ» и типичные задачи на расчёт.
- 1. Зачем биологии статистика
- 2. Биометрики и менделисты: спор, который помог генетике
- 3. Основные понятия: варианта, частота, выборка
- 4. Как построить вариационный ряд и кривую
- 5. Вариационная кривая и что она показывает
- 6. Числовые характеристики ряда
- 7. Вариационная кривая и норма реакции
- 8. Кривая популяции — сумма кривых чистых линий
- 9. Связь между признаками: корреляция
- 10. Формы вариационных кривых
- 11. Кто такой Вильгельм Иогансен
- 12. Опыты Иогансена с фасолью
- 13. Чистые линии у одноклеточных: опыты Дженнингса
- 14. Вариационные кривые полигенных признаков: опыт Иста
- 15. Возврат к среднему и наследуемость
- 16. Практическая работа: «Построение вариационного ряда и вариационной кривой»
- 17. Счётные признаки в лаборатории: щетинки дрозофилы
- 18. Как решать расчётные задачи по вариационному ряду
- 19. Точность измерений и ошибки опыта
- 20. Чистые линии и лысенковщина
- 21. Где используют вариационные ряды
- 22. Итог: что важно знать
- 23. Частые ошибки
- 24. Интересные факты
- 25. Частые вопросы
- 26. ЕГЭ
- 27. Для олимпиад
- 28. Задания с разбором
- Литература
1. Зачем биологии статистика
Качественные признаки удобно считать: из 100 растений гороха 75 с жёлтыми семенами, 25 с зелёными. С количественными признаками так не получится. Длина колоса меняется плавно: 7,1 см, 7,4 см, 8,0 см, 9,3 см… Описать такой признак одним словом невозможно, а перечислять все значения бессмысленно. Нужен способ коротко и точно описать множество измерений: где находится их «центр», насколько они разбросаны, какие значения встречаются чаще.
Первым это понял бельгийский астроном и статистик Адольф Кетле. В 1835 г. он обработал данные об обхвате груди тысяч шотландских солдат и о росте французских новобранцев и показал, что их распределение описывается той же «кривой ошибок», что и ошибки астрономических измерений [1]. Кетле ввёл образ «среднего человека» и положил начало антропометрии. Английский учёный Фрэнсис Гальтон через полвека применил те же методы к наследованию роста и других признаков и построил прибор, наглядно показывающий, откуда берётся колоколообразная кривая [2].
Отрасль биологии, которая применяет методы математической статистики к живым объектам, называют биометрией (биологической статистикой). Без неё сегодня не обходятся ни генетика, ни селекция, ни медицина, ни экология: любое утверждение вида «новый сорт урожайнее» или «лекарство снижает давление» требует сравнения выборок с учётом изменчивости.
2. Биометрики и менделисты: спор, который помог генетике
В начале XX века вокруг количественных признаков разгорелся один из самых острых споров в истории биологии. С одной стороны стояли биометрики — Карл Пирсон и зоолог Уолтер Уэлдон, ученики и последователи Гальтона. Они измеряли тысячи крабов, улиток, людей, строили вариационные кривые и считали, что эволюция идёт за счёт отбора мелких непрерывных различий. С другой стороны стояли менделисты во главе с Уильямом Бейтсоном. Они изучали чёткие альтернативные признаки, расщепляющиеся в отношении 3 : 1, и считали главным источником эволюции скачкообразные изменения.
Каждая сторона была права в своём. Биометрики верно описывали изменчивость количественных признаков, но не знали её причин. Менделисты знали законы наследования, но их законы, казалось, не подходили к плавным кривым. Спор длился почти двадцать лет и сопровождался резкой полемикой в научных журналах.
Примирили стороны две работы. Опыты Иогансена показали, что плавная кривая в популяции складывается из наследственной и модификационной изменчивости, а внутри чистой линии остаётся только модификационная. В 1918 г. английский статистик и генетик Рональд Фишер математически доказал, что если признак определяется многими менделевскими генами с малым действием и на него влияет среда, то в популяции получится как раз та непрерывная изменчивость и те корреляции между родственниками, которые измеряли биометрики [3]. С этой статьи началась количественная генетика, а методы биометрии стали обычным инструментом генетиков.
3. Основные понятия: варианта, частота, выборка
Чтобы описать изменчивость признака, исследуют выборку — группу особей, выбранных из всей совокупности (популяции, сорта, линии). Число особей в выборке называют объёмом выборки и обозначают n.
Варианта (v) — отдельное значение признака: например, длина колоса 9 см или 13 зёрен в колосе.
Частота встречаемости (p) — число особей в выборке, имеющих данное значение признака.
Вариационный ряд — ряд модификационной изменчивости признака, состоящий из вариант, расположенных в порядке возрастания (или убывания) их значений, с указанием частоты каждой варианты.
Вариационная кривая — графическое выражение вариационного ряда: по горизонтальной оси откладывают значения вариант, по вертикальной — частоты их встречаемости.
Сумма всех частот равна объёму выборки: Σp = n. Если частоты выразить в процентах или долях от n, получится относительная частота; её удобно использовать, чтобы сравнивать выборки разного объёма.
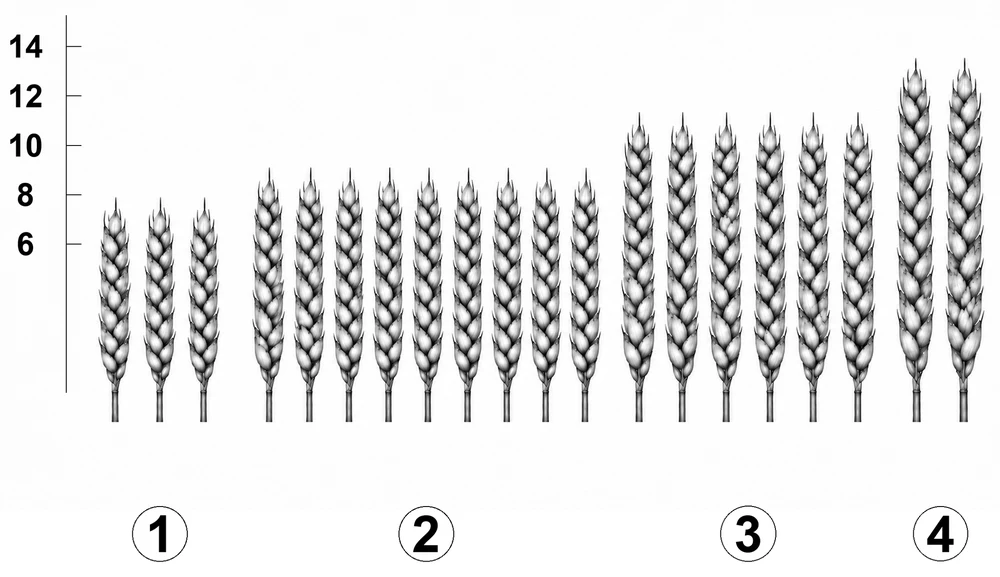
На рисунке 20 колосьев пшеницы одного сорта, разложенных в пучки по длине: 3 колоса длиной около 7 см, 9 колосьев — около 9 см, 6 колосьев — около 11 см и 2 колоса — около 13 см. Это и есть вариационный ряд, только «живой». Запишем его в виде таблицы.
| Варианта v (длина колоса, см) | 7 | 9 | 11 | 13 |
|---|---|---|---|---|
| Частота p (число колосьев) | 3 | 9 | 6 | 2 |
| Относительная частота, % | 15 | 45 | 30 | 10 |
Объём выборки n = 3 + 9 + 6 + 2 = 20. Чаще всего встречаются колосья длиной 9 см (9 из 20, то есть 45 %) — это мода ряда. Крайние варианты — 7 и 13 см — встречаются реже всего. Средняя длина колоса: M = (7 × 3 + 9 × 9 + 11 × 6 + 13 × 2) / 20 = (21 + 81 + 66 + 26) / 20 = 194 / 20 = 9,7 см. Размах изменчивости: 13 − 7 = 6 см.
4. Как построить вариационный ряд и кривую
Построение вариационного ряда — стандартная практическая работа школьного курса биологии, и её логику полезно знать к экзамену. Порядок такой.
- Выбрать объект и признак. Например, длину листьев лавровишни, число колосков в колосе пшеницы, длину семян фасоли, рост учащихся класса. Объекты должны быть по возможности одного генотипа (одного сорта, одной линии) и выращены в сходных условиях, если мы хотим изучить модификационную изменчивость.
- Взять выборку достаточного объёма. Для учебной работы — не менее 30–50 объектов; чем больше выборка, тем правильнее и плавнее кривая.
- Измерить признак у каждого объекта с одинаковой точностью (до миллиметра, до одного колоска).
- Расположить варианты по возрастанию и подсчитать частоту каждой. Если признак непрерывный и измерен точно, почти все значения окажутся разными; тогда их объединяют в классы (интервалы) одинаковой ширины — например, 8,0–8,9 см, 9,0–9,9 см и так далее, — и считают число объектов в каждом классе. Удобно иметь 5–12 классов.
- Записать вариационный ряд в виде таблицы: варианта (или класс) — частота.
- Построить вариационную кривую: по горизонтальной оси — значения вариант, по вертикальной — частоты; отметить точки и соединить их отрезками. Получается ломаная, которую называют полигоном частот. Вместо неё можно построить гистограмму — столбики, высота которых пропорциональна частоте.
- Рассчитать среднее значение признака и сделать выводы о характере изменчивости.
Пример с группировкой. У 30 листьев лавровишни измерили длину (см): 9,2; 10,1; 11,5; 10,8; 9,7; 12,3; 10,4; 10,9; 11,2; 8,6; 10,5; 11,8; 10,2; 9,9; 10,7; 11,1; 12,9; 10,3; 9,4; 10,6; 11,4; 10,0; 10,8; 9,6; 11,0; 10,5; 8,9; 11,7; 10,2; 10,4. Сгруппируем значения в классы шириной 1 см.
| Класс, см | 8,0–8,9 | 9,0–9,9 | 10,0–10,9 | 11,0–11,9 | 12,0–12,9 |
|---|---|---|---|---|---|
| Частота | 2 | 5 | 14 | 7 | 2 |
Сумма частот 2 + 5 + 14 + 7 + 2 = 30. Модальный класс — 10,0–10,9 см. Ряд почти симметричен: по обе стороны от середины частоты убывают одинаково. Вариационная кривая будет иметь форму колокола с вершиной над классом 10–11 см.
Если нужно приблизительно найти среднее по сгруппированному ряду, за значение каждого класса берут его середину (8,5; 9,5; 10,5; 11,5; 12,5): M ≈ (8,5 × 2 + 9,5 × 5 + 10,5 × 14 + 11,5 × 7 + 12,5 × 2) / 30 = 317 / 30 ≈ 10,6 см. Точное среднее по 30 исходным значениям — 10,55 см; группировка почти не исказила результат.
5. Вариационная кривая и что она показывает
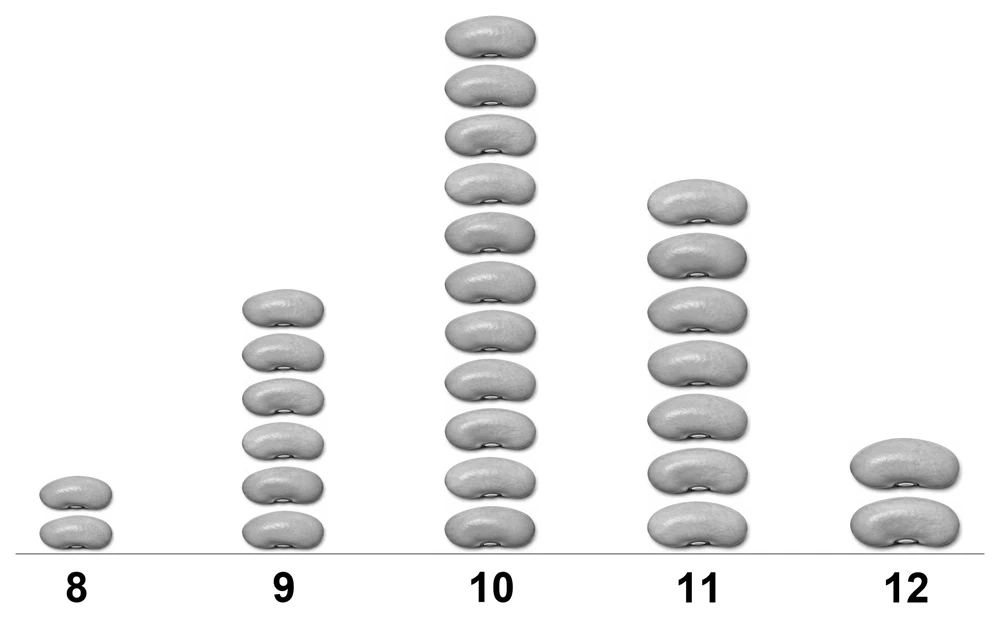
На рисунке семена фасоли одного сорта, выращенные в одинаковых условиях и разложенные в столбики по длине: 8 мм — 2 семени, 9 мм — 6, 10 мм — 11, 11 мм — 7, 12 мм — 2. Столбики сами образуют гистограмму, а если соединить их вершины, получится вариационная кривая. Объём выборки n = 28, мода — 10 мм, средняя длина M = (8 × 2 + 9 × 6 + 10 × 11 + 11 × 7 + 12 × 2) / 28 = 281 / 28 ≈ 10,0 мм, размах 12 − 8 = 4 мм.
Вариационная кривая модификационной изменчивости имеет характерную форму: она одновершинна, почти симметрична и спадает к краям. Это отражает главную закономерность модификаций.
Закономерность. Чаще всего встречаются особи со средним значением признака, а чем сильнее значение отклоняется от среднего в ту или другую сторону, тем реже оно встречается.
Почему так? Признак у каждой особи формируется под действием множества мелких независимых факторов: одно семя получило чуть больше воды, другое — чуть больше света, третье развивалось в середине боба, четвёртое — на краю. Каждый фактор немного увеличивает или уменьшает признак. У большинства особей благоприятные и неблагоприятные влияния примерно уравновешиваются, и признак оказывается близким к среднему. Чтобы получилось очень крупное семя, все или почти все факторы должны сложиться благоприятно, а это маловероятно. То же для очень мелкого семени.
Отсюда следует, что форма кривой зависит от объёма выборки. На малой выборке кривая угловатая и может быть несимметричной из-за случайности. С увеличением выборки до сотен и тысяч объектов кривая становится плавной, симметричной и колоколообразной, а крайние значения — всё более редкими относительно общего числа. Именно поэтому ЕГЭ иногда спрашивает: «Как изменится вид кривой, если выборку увеличить до 1000 семян?» Ответ: кривая станет более плавной и симметричной, максимум останется около среднего значения.
Как правильно нарисовать кривую
На экзамене и в практической работе за график снимают баллы чаще всего из-за оформления. Проверьте себя по списку.
- Оси подписаны: по горизонтали — признак с единицами измерения («длина колоса, см»), по вертикали — «частота» или «число колосьев».
- Масштаб равномерный: деления на оси откладываются через равные промежутки, даже если какой-то варианты нет (тогда её частота равна нулю).
- Точки ставят над значениями вариант (или над серединами классов) на высоте, равной частоте, и соединяют прямыми отрезками.
- Кривую не «дорисовывают» плавной линией по воображению: при малой выборке ломаная честнее.
- Если сравнивают две выборки разного объёма, по вертикали откладывают относительные частоты (проценты), иначе кривая большей выборки окажется «выше» только из-за объёма.
Нормальное распределение
Идеальная колоколообразная кривая, к которой стремится распределение при очень большой выборке и многих мелких независимых причинах, называется кривой нормального распределения, или кривой Гаусса (по имени немецкого математика К. Ф. Гаусса, изучавшего распределение ошибок измерений). Она симметрична относительно среднего, а ширина её определяется стандартным отклонением (о нём — ниже).
Гальтон показал происхождение нормальной кривой на приборе, который называют доской Гальтона [2]. Это наклонная доска с рядами гвоздиков, расположенных в шахматном порядке, и ячейками внизу. Шарики, падающие сверху, на каждом гвоздике отскакивают влево или вправо с равной вероятностью. Чтобы попасть в крайнюю ячейку, шарик должен отскочить в одну и ту же сторону на всех гвоздиках подряд — это редкость. Большинство шариков отскакивает то вправо, то влево и попадает в средние ячейки. Внизу шарики складываются в колокол. Так и признак, на который действуют много мелких случайных влияний, распределяется по нормальной кривой.
6. Числовые характеристики ряда
Вариационный ряд описывают несколькими числами. Одни показывают «центр» распределения, другие — насколько широко разбросаны значения.
Показатели центра
- Среднее арифметическое (M, или x̄) — сумма произведений вариант на их частоты, делённая на объём выборки: M = Σ(v · p) / n. Это главный показатель, который требуют рассчитать на экзамене.
- Мода (Mo) — варианта с наибольшей частотой, то есть самое частое значение признака.
- Медиана (Me) — значение, которое делит упорядоченный ряд пополам: половина объектов имеет значение меньше медианы, половина — больше.
В симметричном ряду среднее, мода и медиана совпадают или почти совпадают. Если ряд несимметричен, они расходятся. Например, у распределения доходов людей длинный «хвост» в сторону больших значений, и среднее оказывается намного выше медианы: несколько очень богатых людей «тянут» среднее вверх. Поэтому для несимметричных рядов медиана часто полезнее.
Показатели разброса
- Размах изменчивости (лимиты) — разность между наибольшей и наименьшей вариантами: R = vmax − vmin. Прост, но зависит от двух случайных крайних значений и растёт с объёмом выборки.
- Дисперсия (σ2) — средний квадрат отклонения вариант от среднего: σ2 = Σp(v − M)2 / (n − 1). Деление на n − 1 вместо n делает оценку точнее для выборки.
- Стандартное (среднее квадратическое) отклонение (σ) — корень из дисперсии. Оно выражается в тех же единицах, что и признак, и показывает, насколько в среднем значения отклоняются от среднего.
- Коэффициент вариации (CV) — стандартное отклонение в процентах от среднего: CV = σ / M × 100 %. Он позволяет сравнивать изменчивость признаков, измеренных в разных единицах или сильно различающихся по величине.
Рассчитаем стандартное отклонение для колосьев с рисунка (M = 9,7 см, n = 20). Отклонения: 7 − 9,7 = −2,7; 9 − 9,7 = −0,7; 11 − 9,7 = 1,3; 13 − 9,7 = 3,3. Сумма квадратов с учётом частот: 3 × 7,29 + 9 × 0,49 + 6 × 1,69 + 2 × 10,89 = 21,87 + 4,41 + 10,14 + 21,78 = 58,2. Дисперсия σ2 = 58,2 / 19 ≈ 3,06 см2, стандартное отклонение σ ≈ 1,75 см, коэффициент вариации CV ≈ 1,75 / 9,7 × 100 % ≈ 18 %.
Коэффициент вариации помогает сравнить признаки. Пусть у коров одного стада средний удой 6000 кг при σ = 900 кг (CV = 15 %), а средняя жирность молока 4,0 % при σ = 0,2 % (CV = 5 %). Удой изменчив втрое сильнее жирности — это количественное выражение того, что у удоя широкая норма реакции, а у жирности узкая.
Правило трёх сигм
Для нормального распределения известно, какая доля значений попадает в пределы, отсчитанные от среднего на целое число стандартных отклонений:
| Интервал | Доля значений |
|---|---|
| M ± 1σ | около 68 % |
| M ± 2σ | около 95 % |
| M ± 3σ | около 99,7 % |
Значит, если средний рост юношей 18 лет 176 см при σ = 7 см, то примерно 68 % из них имеют рост от 169 до 183 см, 95 % — от 162 до 190 см, а выше 197 см — лишь около 0,15 %. На этом правиле построены медицинские «нормы»: значение показателя, выходящее за пределы M ± 2σ здоровых людей, считают поводом для обследования. Таблицы роста и массы детей разного возраста, которыми пользуются педиатры, построены по данным о сотнях тысяч детей из разных стран [4].
7. Вариационная кривая и норма реакции
Вариационный ряд и норма реакции описывают одно и то же явление с разных сторон, но путать их нельзя.
- Вариационный ряд показывает, как распределён признак у группы генетически одинаковых особей в данных условиях, где каждая особь всё равно оказалась в чуть разной микросреде (одно семя ближе к краю боба, другое в середине). Это изменчивость «в одном месте».
- Норма реакции — пределы, в которых может измениться признак у данного генотипа во всём диапазоне возможных условий. Чтобы её оценить, нужно вырастить одинаковые генотипы в разных условиях — например, на бедной и богатой почве, в засуху и при поливе.
Если вырастить один сорт пшеницы на трёх полях с разным плодородием и построить три вариационные кривые, они будут сдвинуты друг относительно друга: средняя длина колоса на богатом поле больше. Пределы, которые охватывают все три кривые (и кривые в других возможных условиях), характеризуют норму реакции. Размах одного ряда — лишь часть нормы реакции, «увиденная» в данных условиях.
Поэтому в выводе практической работы правильно писать: «пределы изменчивости признака в данных условиях составили…», а норма реакции у сорта может быть шире.
8. Кривая популяции — сумма кривых чистых линий
Одна из самых наглядных иллюстраций Иогансена — сравнение кривой всей популяции фасоли с кривыми отдельных линий. Кривая популяции оказалась широкой и плавной. Кривые линий — уже, и каждая имела свою вершину: у «тяжёлых» линий справа, у «лёгких» — слева. Сложив кривые всех линий с учётом численности, Иогансен получил кривую популяции. Значит, внешне единое плавное распределение в популяции скрывает несколько генетически разных групп, каждая из которых варьирует в своих пределах.
Отсюда понятно, почему отбор в популяции сначала эффективен, а потом прекращается. Отбирая самые крупные семена, мы отбираем преимущественно семена «тяжёлых» линий, и среднее потомства сдвигается. Когда в отобранной группе остаётся одна самая «тяжёлая» линия, дальнейший отбор ничего не даёт — до появления новых мутаций.
Такая же картина у человека: кривая роста всех людей страны складывается из кривых людей с разными генотипами и разными условиями жизни. Отдельная семья — не чистая линия, но и здесь видно, что дети одних родителей варьируют вокруг своего «семейного» среднего.
9. Связь между признаками: корреляция
Гальтон ввёл ещё одно важное понятие биометрии — корреляцию, то есть согласованное изменение двух признаков [2]. Например, длинные семена фасоли обычно и тяжелее; у людей более высокие в среднем имеют больший размер стопы. Силу связи выражают коэффициентом корреляции r, который принимает значения от −1 до +1: при r около +1 один признак почти строго растёт вместе с другим, при r около −1 — уменьшается, при r около 0 связи нет.
Корреляция бывает и между родственниками. Коэффициент корреляции роста родителей и детей, однояйцевых и разнояйцевых близнецов, родных братьев позволяет оценить наследуемость. Именно корреляции между родственниками Фишер в 1918 г. объяснил с помощью законов Менделя.
Важное предупреждение: корреляция не означает причинной связи. Число аистов и рождаемость в деревнях Европы когда-то коррелировали, потому что в сельской местности больше и аистов, и детей, а не потому, что аисты приносят детей. В биологии корреляцию между признаками часто вызывает общая причина — общий ген (плейотропия) или общий фактор среды.
10. Формы вариационных кривых
Не каждая кривая — правильный колокол. Форма кривой несёт информацию о природе изменчивости.
- Симметричная одновершинная — типична для модификационной изменчивости количественного признака в однородной группе (одна линия, один сорт, одинаковые условия), а также для признаков, определяемых многими генами со сходным действием.
- Асимметричная (скошенная) — одна ветвь длиннее другой. Так бывает, если признак ограничен с одной стороны (не может быть меньше нуля, как число паразитов), если на него действует сильный фактор, сдвигающий часть особей, или если признак измеряют в неудобной шкале. Масса тела людей распределена с хвостом в сторону больших значений.
- Двувершинная (бимодальная) — две вершины. Обычно это значит, что в выборке смешаны две разные группы. Если измерить рост всех взрослых в городе, получится кривая с «плечами» или двумя вершинами, соответствующими мужчинам и женщинам. Если смешать семена двух сортов, вершины будут соответствовать сортам. Бимодальная кривая — сигнал, что в выборке есть наследственно или иначе различающиеся группы.
- Очень узкая и высокая — признак с узкой нормой реакции; низкая и широкая — с широкой.
Сравнивая кривые двух выборок, можно получить важные выводы. Если у двух сортов, выращенных на одном поле, кривые сдвинуты относительно друг друга, различие сортов наследственное. Если у одного сорта на двух полях кривые сдвинуты, различие модификационное. При этом кривые часто перекрываются: самые длинные колосья худшего сорта могут быть длиннее самых коротких колосьев лучшего. Поэтому сравнивать сорта, породы, группы больных нужно по средним значениям и разбросу, а не по отдельным особям.
11. Кто такой Вильгельм Иогансен
Биография Иогансена необычна для классика науки. Он родился в 1857 г. в Копенгагене в семье военного и не получил университетского образования: после школы стал учеником аптекаря и несколько лет работал фармацевтом в Дании и Норвегии, самостоятельно изучая химию и ботанику. Затем он работал ассистентом в химическом отделе Карлсбергской лаборатории в Копенгагене, где изучал обмен веществ в прорастающих семенах.
Первую известность Иогансену принесли работы по физиологии покоя растений. Он предложил выводить почки и луковицы из состояния покоя парами эфира — «эфирный метод» выгонки, которым садоводы пользовались для получения цветущей сирени и ландышей зимой. В 1892 г. он стал профессором ботаники и физиологии растений в Королевской ветеринарной и сельскохозяйственной высшей школе, а в 1905 г. — профессором физиологии растений Копенгагенского университета, позже был его ректором.
Интерес к наследственности возник у Иогансена из работ Гальтона. Он хотел проверить, действует ли «закон регрессии» в материале, где точно известно происхождение каждого организма. Так появились опыты с фасолью, книга «О наследовании в популяциях и чистых линиях» (1903) и учебник «Элементы точного учения о наследственности» (1909), где были введены слова «ген», «генотип» и «фенотип». Иогансен был сторонником строгих количественных методов и скептически относился к любым умозрительным теориям наследственности, включая, поначалу, хромосомную. Он умер в 1927 г., успев увидеть, как его понятия стали основой всей генетики.
12. Опыты Иогансена с фасолью
Вильгельм Людвиг Иогансен (1857–1927) был профессором физиологии растений в Копенгагенском сельскохозяйственном институте. В начале XX века в биологии шёл спор: может ли отбор особей с крупными признаками бесконечно сдвигать признак в нужную сторону? Ученики Гальтона, изучавшие наследование роста у людей, видели, что дети высоких родителей в среднем выше остальных, но ниже самих родителей, — «возврат к среднему». Объяснение было неясным. Иогансен решил проверить вопрос на объекте, где можно точно знать происхождение каждого организма.
Он выбрал фасоль обыкновенную сорта «Принцесса». Фасоль — строгий самоопылитель: цветок опыляется собственной пыльцой ещё до раскрытия. Поэтому потомство одного растения, размножающегося самоопылением в течение многих поколений, генетически однородно, — это чистая линия.
Чистая линия — потомство одной самоопыляющейся особи (или полученное при близкородственном скрещивании), гомозиготное по большинству генов и потому генетически однородное.
Популяция (в опытах Иогансена — исходный сорт) — смесь генетически разных особей.
Первый этап: отбор в популяции
Иогансен взял из торговой партии фасоли семена и взвесил их — признаком служила масса семени. Масса распределялась по обычной колоколообразной кривой. Затем он высеял самые тяжёлые и самые лёгкие семена отдельно. Потомство тяжёлых семян в среднем оказалось тяжелее, чем потомство лёгких. Отбор в смешанной популяции был эффективен: признак наследовался, хотя и не полностью.
Второй этап: отбор внутри чистых линий
Затем Иогансен вырастил отдельно потомство каждого из отобранных растений и получил 19 чистых линий [5]. Линии сильно различались по средней массе семени: у самой «тяжёлой» линии она составляла около 64 сантиграммов (0,64 г), у самой «лёгкой» — около 35 сантиграммов. Внутри каждой линии масса семян тоже изменялась, и кривые соседних линий перекрывались.
Главный опыт: внутри каждой линии Иогансен снова отбирал самые тяжёлые и самые лёгкие семена и высевал их. Результат оказался принципиально иным. Потомство тяжёлых и лёгких семян одной линии имело одинаковую среднюю массу семени — ту самую, что была характерна для линии. Отбор повторяли шесть лет подряд, но ни в одной линии средняя масса не сдвинулась.
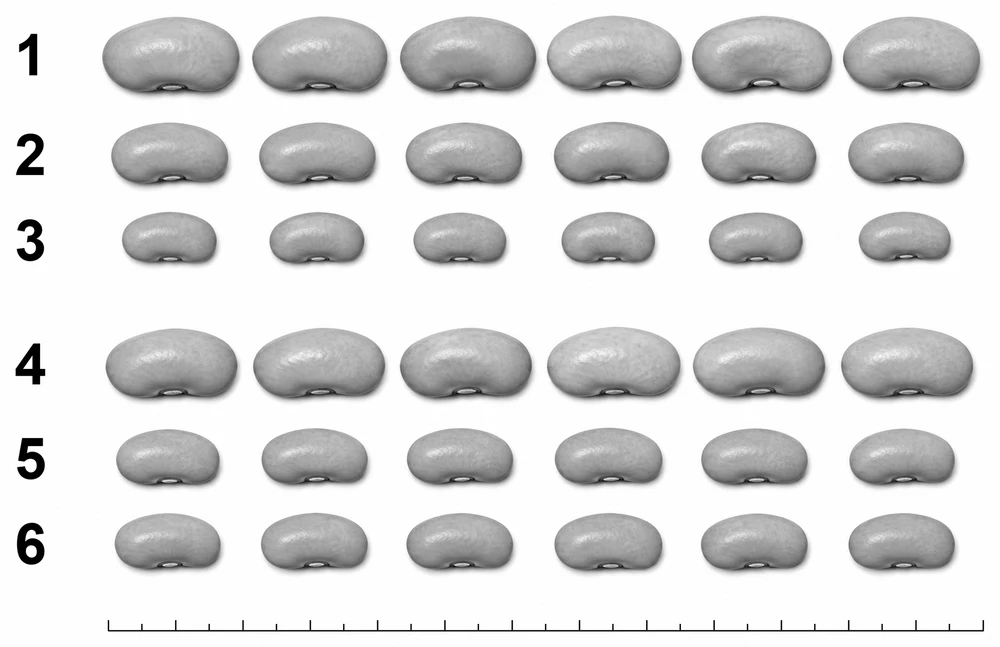
Рисунок показывает логику опыта. Ряд 1 — крупные семена, отобранные из популяции сорта; ряд 2 — семена потомства этих растений: они мельче отобранных, но крупнее, чем у потомства мелких семян популяции (ряд 3). Ряд 4 — крупные семена, отобранные внутри чистой линии; ряды 5 и 6 — семена потомства растений из крупных и из мелких семян этой линии: они одинаковы. Семена в ряду 5 мельче, чем в ряду 4, потому что крупный размер родительских семян был модификацией, вызванной хорошими условиями развития.
Объяснение
Иогансен объяснил результат так. В популяции различия в массе семян складываются из двух частей: наследственной (растения различаются генотипами) и модификационной (условия развития каждого семени различны). Отбирая крупные семена популяции, мы вместе с удачными модификациями отбираем и генотипы, определяющие крупные семена, поэтому потомство в среднем крупнее. В чистой линии генотипы одинаковы, и все различия — модификации. Отбирая крупные семена линии, мы отбираем только удачные условия развития, а они не наследуются. Поэтому отбор в чистой линии неэффективен.
Выводы Иогансена. 1) Изменчивость в популяции складывается из наследственной и ненаследственной (модификационной). 2) Модификационная изменчивость не наследуется, и отбор по модификациям бесполезен. 3) Отбор эффективен только при наличии наследственных различий. 4) Каждой чистой линии свойствен свой генотип, который определяет среднее значение признака и пределы его изменчивости — норму реакции.
Из этих опытов выросли понятия «генотип» и «фенотип», которые Иогансен ввёл в 1909 г. [6]. Фенотипически два семени могут быть одинаковыми, а генотипически — разными (принадлежать разным линиям), и наоборот: семена одной линии генотипически одинаковы, но фенотипически различаются.
Что изменилось с тех пор
Опыты Иогансена иногда пересказывают как «отбор не работает». Это неверно. Отбор не работает в генетически однородном материале, но очень хорошо работает при наличии наследственной изменчивости. Самый известный пример — опыт, начатый в Иллинойсском университете в 1896 г.: кукурузу отбирали на высокое и низкое содержание масла и белка в зерне более ста поколений подряд [7]. Содержание масла в «высокой» линии выросло примерно с 5 до 20 % и продолжало расти, а в «низкой» упало почти до нуля. Исходный сорт был генетически разнообразным, и в каждом поколении отбор собирал всё больше благоприятных аллелей; к тому же в ходе опыта возникали новые мутации.
И в чистых линиях со временем появляются мутации, поэтому через много поколений отбор в линии снова становится возможным. Иогансен понимал это: он подчёркивал, что чистая линия однородна лишь до тех пор, пока в ней не возникнет новое наследственное изменение. Современный историк науки Нильс Ролл-Хансен отмечает, что именно понятие генотипа как устойчивой целостной системы, а не набора отдельных частиц, было главным вкладом Иогансена в генетику [8].
13. Чистые линии у одноклеточных: опыты Дженнингса
Почти одновременно с Иогансеном американский зоолог Герберт Дженнингс проверил тот же вопрос на инфузориях-туфельках [9]. Туфелька долго размножается делением, и потомство одной клетки — клон — генетически однородно. Дженнингс измерил длину тысяч туфелек и обнаружил, что смешанная культура состоит из нескольких «рас» (клонов) с разной средней длиной тела, а внутри каждого клона длина тоже варьирует.
Затем он отбирал внутри клона самых крупных и самых мелких особей и следил за их потомством. Как и у Иогансена, потомство крупных и мелких туфелек одного клона оказалось одинаковым по средней длине: различия внутри клона зависели от возраста клетки, питания, температуры и не наследовались. А вот различия между клонами сохранялись в любых условиях на протяжении сотен поколений.
Два независимых опыта на таких непохожих организмах — растении-самоопылителе и одноклеточном животном — дали одинаковый результат. Это убедило биологов, что разделение изменчивости на наследственную и модификационную — общий закон живого, а не особенность фасоли.
14. Вариационные кривые полигенных признаков: опыт Иста
Вариационный ряд позволяет изучать не только модификации, но и наследственную изменчивость количественных признаков. Классический опыт поставил американский генетик Эдвард Ист в 1910-х гг. на табаке [10]. Он скрестил две чистые линии табака, резко различавшиеся по длине венчика цветка: у одной около 40 мм, у другой около 93 мм.
- В каждой родительской линии длина венчика немного варьировала — это модификационная изменчивость; кривые были узкими.
- В F1 длина венчика оказалась промежуточной, а кривая — такой же узкой, как у родителей: все гибриды F1 генетически одинаковы (гетерозиготы), их изменчивость тоже модификационная.
- В F2 средняя длина осталась промежуточной, но кривая стала гораздо шире: к модификационной изменчивости добавилось расщепление по многим генам. Растений с длиной, как у родителей, почти не было.
- Растения F2 с разной длиной венчика дали в F3 потомство с разными средними значениями — то есть различия в F2 были в основном наследственными.
Сравнивая ширину кривых, можно оценить, какая часть изменчивости F2 наследственная: дисперсия родителей и F1 — это средовая изменчивость, а превышение дисперсии F2 над ней — генетическая. Подробно наследование таких признаков разобрано в статье «Полимерия: наследование количественных признаков».
15. Возврат к среднему и наследуемость
Гальтон заметил, что у очень высоких родителей дети в среднем высокие, но ниже родителей, а у очень низких — низкие, но выше родителей [2]. Он назвал это «регрессией к посредственности» — отсюда пошёл статистический термин «регрессия». Опыты Иогансена объяснили это явление. Рост очень высокого человека — это сумма благоприятного генотипа и благоприятных условий. Детям передаётся только генотип, а условия у них будут обычными. Поэтому дети в среднем отклоняются от среднего популяции в ту же сторону, что и родители, но слабее.
Насколько слабее — зависит от того, какая доля различий наследственная. Это выражает простое и очень важное для селекции соотношение, называемое уравнением селекционера:
R = h2 · S, где S — дифференциал отбора (насколько среднее отобранных родителей превышает среднее популяции), R — ответ на отбор (насколько среднее потомства превысит среднее популяции), h2 — коэффициент наследуемости (доля наследственной, точнее аддитивной генетической, изменчивости в общей) [11].
Пример. Средняя масса семени в популяции 50 сг; для посева отобрали семена со средней массой 70 сг, то есть S = 20 сг. Если h2 = 0,4, потомство будет иметь среднюю массу 50 + 0,4 × 20 = 58 сг. В чистой линии h2 = 0 (наследственных различий нет), и R = 0 при любом S — это и есть результат Иогансена. Если бы вся изменчивость была наследственной (h2 = 1), потомство было бы таким же, как отобранные родители.
Уравнение работает и в обратную сторону: проведя отбор и измерив ответ, можно оценить наследуемость: h2 = R / S. Именно так селекционеры узнают, стоит ли отбирать по признаку или выгоднее улучшать условия.
16. Практическая работа: «Построение вариационного ряда и вариационной кривой»
Эта работа входит в школьную программу, а её этапы и выводы нужно уметь описать на экзамене. Приводим образец оформления.
Цель: изучить модификационную изменчивость признака, построить вариационный ряд и кривую, выявить закономерность модификационной изменчивости.
Материал: 40–50 колосьев пшеницы одного сорта (или листьев лавровишни, семян фасоли одной партии), линейка.
Ход работы.
- Подсчитать число колосков в каждом колосе (или измерить длину листа).
- Записать значения в порядке возрастания и подсчитать частоту каждой варианты.
- Записать вариационный ряд в таблицу.
- Построить вариационную кривую: варианты — по горизонтали, частоты — по вертикали.
- Рассчитать среднее значение признака по формуле M = Σ(v · p) / n.
- Сделать выводы.
Пример результатов. Число колосков в 40 колосьях одного сорта:
| v (колосков) | 14 | 15 | 16 | 17 | 18 | 19 | 20 |
|---|---|---|---|---|---|---|---|
| p | 1 | 4 | 8 | 14 | 8 | 4 | 1 |
n = 40; M = (14 + 60 + 128 + 238 + 144 + 76 + 20) / 40 = 680 / 40 = 17 колосков; мода — 17; размах — 6 колосков.
Выводы. 1) Число колосков у растений одного сорта варьирует от 14 до 20 — это модификационная изменчивость, так как генотипы растений одного сорта (почти) одинаковы, а условия роста каждого растения немного различались. 2) Чаще всего встречаются колосья со средним числом колосков, крайние варианты редки. 3) Кривая симметрична и одновершинна. 4) Пределы изменчивости (14–20) характеризуют норму реакции признака у этого сорта в данных условиях.
Частая ошибка в этой работе — брать для анализа колосья разных сортов или с разных полей и делать вывод о модификационной изменчивости. Если генотипы различаются, изменчивость окажется смешанной, и вывод будет неверным.
17. Счётные признаки в лаборатории: щетинки дрозофилы
Любимый объект количественной генетики — число щетинок на брюшке или груди дрозофилы. Признак счётный, легко определяется под бинокулярной лупой у сотен мух, мало зависит от питания и довольно сильно — от генотипа. Вариационная кривая числа щетинок в лабораторной популяции почти нормальна.
В опытах по отбору на большое или малое число щетинок, которые начиная с 1940-х гг. проводили английские генетики Кеннет Мазер и Алан Робертсон, среднее число щетинок за несколько десятков поколений удавалось сдвинуть далеко за пределы исходной изменчивости. Затем ответ на отбор обычно замедлялся и останавливался: в отобранной линии исчерпывались различия, как в чистой линии Иогансена. Если же отбор прекращали, число щетинок нередко частично возвращалось к исходному — сказывался естественный отбор против крайних значений, которые снижали плодовитость мух.
Эти опыты стали лабораторной моделью того, что происходит при селекции культурных растений и домашних животных: быстрые успехи в начале, замедление по мере исчерпания наследственной изменчивости, необходимость вводить новый материал (скрещивать с другими породами и сортами) или ждать новых мутаций.
18. Как решать расчётные задачи по вариационному ряду
На ЕГЭ расчётные задания по вариационному ряду короткие, но в них легко ошибиться из-за невнимательности. Удобно действовать по одному алгоритму.
- Выписать ряд в таблицу «варианта — частота», даже если данные даны рисунком или текстом. Проверить, что варианты расположены по возрастанию.
- Найти объём выборки — сложить все частоты.
- Найти моду — варианту с наибольшей частотой. Если наибольшая частота у двух соседних вариант, ряд имеет две моды или модальный интервал.
- Рассчитать среднее: перемножить каждую варианту на её частоту, сложить произведения и разделить на объём выборки. Округлить так, как требует условие.
- Найти долю или процент какой-либо группы: частоту группы разделить на объём выборки и умножить на 100.
- Найти размах: из наибольшей варианты вычесть наименьшую.
- Проверить результат здравым смыслом: среднее должно лежать между крайними вариантами и обычно близко к моде.
Пример 1. Масса яиц (г): 50 — 4, 55 — 10, 60 — 18, 65 — 6, 70 — 2. n = 40; мода — 60 г; M = (200 + 550 + 1080 + 390 + 140) / 40 = 2360 / 40 = 59 г; доля яиц массой не менее 65 г — 8 / 40 = 20 %; размах — 20 г.
Пример 2. Медиана. По тем же данным медиана — значение, которое делит 40 упорядоченных яиц пополам, то есть лежит между 20-м и 21-м яйцом. Первые 4 + 10 = 14 яиц имеют массу 50–55 г, следующие 18 (с 15-го по 32-е) — 60 г. 20-е и 21-е яйца попадают в эту группу, поэтому медиана равна 60 г.
Пример 3. Сравнение двух рядов. У сорта А средняя длина колоса 9 см, размах 4 см; у сорта Б на соседней делянке — 11 см и 4 см. Различие средних (2 см) при одинаковых условиях — наследственное; одинаковый размах говорит о сходной ширине модификационной изменчивости в этих условиях.
19. Точность измерений и ошибки опыта
В любом вариационном ряду есть доля изменчивости, которая не относится ни к генотипу, ни к среде, — ошибки измерения. Если длину колоса измеряют на глаз с точностью до сантиметра, а разные люди прикладывают линейку по-разному, разброс значений увеличится. Поэтому в научных работах измерения проводят одним прибором, по единой методике, а часть объектов измеряют повторно, чтобы оценить ошибку измерения.
Другой источник ошибок — неслучайная выборка. Если для измерения брать только самые заметные колосья с края поля, среднее окажется смещённым: на краю растения лучше освещены. Правильная выборка — случайная: каждый объект совокупности должен иметь одинаковую вероятность попасть в неё. В практической работе для этого колосья собирают в разных частях поля подряд, а не выбирают «понравившиеся».
Наконец, малая выборка даёт случайные отклонения. Если подбросить монету 10 раз, «орёл» может выпасть 7 раз, хотя вероятность 1/2; при 1000 бросков доля будет очень близка к половине. Так и вариационная кривая, построенная по 10 листьям, может быть «кривой» без всякой биологической причины.
20. Чистые линии и лысенковщина
Учение Иогансена о чистых линиях стало одной из главных мишеней Т. Д. Лысенко и его сторонников в СССР. Они утверждали, что чистых линий не существует, что внутривидовые различия создаются условиями воспитания и что внутрисортовое скрещивание и «воспитание» улучшают сорта. В 1930–1950-е гг. эти взгляды привели к отказу от строгой работы с чистыми линиями в семеноводстве и селекции самоопыляющихся культур, к массовым мероприятиям, не дававшим обещанного эффекта. Позже, когда генетика была восстановлена в правах, методы Иогансена снова стали основой работы с сортами самоопылителей — пшеницы, ячменя, гороха, фасоли.
Этот исторический эпизод полезен и для экзамена: он показывает, почему так важно понимать различие между модификацией и наследственным изменением. Сорт, сохраняемый как чистая линия, остаётся постоянным при правильном семеноводстве; его фенотип в разных условиях меняется в пределах нормы реакции, но генотип не «перевоспитывается».
21. Где используют вариационные ряды
- Медицина. Нормы роста и массы детей, артериального давления, показателей крови — это границы, в которые укладывается большинство здоровых людей, найденные по вариационным рядам. Центильные таблицы роста показывают, какой процент детей данного возраста ниже определённого роста [4].
- Селекция. Сравнение сортов и пород по средним значениям признаков с учётом разброса; оценка наследуемости и ожидаемого эффекта отбора.
- Сельское хозяйство. Стандарты на семена, плоды, яйца; выравненность партии — важный показатель качества: узкий разброс значит, что почти все плоды одинакового размера.
- Экология. Сравнение размеров особей из разных местообитаний, оценка влияния загрязнения на развитие организмов.
- Систематика. Близкие виды и подвиды часто различаются только по средним значениям признаков с перекрывающимися кривыми; их описывают с указанием среднего и разброса.
22. Итог: что важно знать
- Модификационная изменчивость количественных признаков описывается методами биометрии.
- Варианта — отдельное значение признака; частота — число особей с этим значением; объём выборки n — сумма частот.
- Вариационный ряд — ряд вариант, расположенных по возрастанию или убыванию, с указанием частоты каждой.
- Вариационная кривая — график ряда: варианты по горизонтали, частоты по вертикали.
- Среднее арифметическое M = Σ(v · p) / n; мода — самая частая варианта; размах — разность крайних вариант.
- Стандартное отклонение σ показывает разброс; в пределах M ± 2σ лежит около 95 % значений нормального распределения.
- Закономерность модификационной изменчивости: чаще всего встречаются средние значения признака, крайние — редко. Причина — совместное действие многих мелких факторов.
- С увеличением выборки кривая становится плавной, симметричной, колоколообразной.
- Иогансен (1903) на фасоли показал: в популяции отбор эффективен, в чистой линии — нет, потому что различия внутри линии модификационные.
- Отбор действует только при наличии наследственной изменчивости; ответ на отбор R = h2 · S.
- Двувершинная кривая говорит о смеси двух разных групп в выборке.
23. Частые ошибки
- «Вариационный ряд — это ряд особей». Это ряд значений признака (вариант) с их частотами.
- «Мода — это среднее значение». Мода — самое частое значение; среднее рассчитывают по формуле, и в несимметричном ряду они различаются.
- «Среднее арифметическое — сумма вариант, делённая на их число». Нужно учитывать частоты: сумму произведений вариант на частоты делят на объём выборки, а не на число разных вариант.
- «По горизонтальной оси откладывают частоты». По горизонтали — значения признака, по вертикали — частоты.
- «Иогансен доказал, что отбор бесполезен». Он доказал, что отбор бесполезен внутри чистой линии, где нет наследственной изменчивости; в популяции отбор эффективен.
- «Крупные семена чистой линии дают крупное потомство». Крупный размер внутри линии — модификация; потомство будет со средним для линии размером семян.
- «Вариационная кривая всегда симметрична». Это верно лишь приблизительно и для больших однородных выборок; бывают асимметричные и двувершинные кривые.
- «Чем больше выборка, тем больше размах — значит, изменчивость растёт». Размах растёт за счёт редких крайних значений, а стандартное отклонение при этом остаётся почти постоянным.
- «Вариационный ряд строят для качественных признаков». Его строят для количественных (измеряемых или счётных) признаков; для качественных считают соотношения классов.
- «Чистая линия — это потомство чистопородных родителей». Чистая линия — генетически однородное потомство одной самоопыляющейся особи (или полученное длительным близкородственным скрещиванием).
- «Если F1 от двух чистых линий изменчиво, значит, гибриды генетически разные». Гибриды F1 от двух чистых линий генетически одинаковы; их изменчивость модификационная. Наследственная изменчивость проявляется в F2.
- «По форме кривой можно определить, наследственная изменчивость или нет». Нормальную кривую дают и модификации, и полигенная наследственная изменчивость; природу изменчивости устанавливают опытом.
24. Интересные факты
- Адольф Кетле, изучая обхват груди 5738 шотландских солдат, нашёл, что распределение совпадает с теоретической кривой ошибок, и заключил, что природа как будто «целится» в среднего человека и промахивается то в одну, то в другую сторону.
- Гальтон построил свою доску в 1873–1874 гг. и называл её «квинканкс» — по расположению гвоздиков в шахматном порядке, как пять точек на игральной кости.
- Понятие «стандартное отклонение» и его обозначение σ ввёл английский статистик Карл Пирсон в 1893–1894 гг.; он же основал журнал «Биометрика», выходящий до сих пор.
- Опыт по отбору кукурузы на содержание масла и белка в Иллинойсе идёт с 1896 г. — это один из самых длинных непрерывных биологических экспериментов в мире.
- Слово «ген» появилось в книге Иогансена 1909 г. как сокращение от «пангена» — термина де Фриза, а слова «генотип» и «фенотип» Иогансен придумал, чтобы описать результаты своих опытов с фасолью.
- Рост — один из немногих признаков человека, по которому кривая очень близка к нормальной. Однако, если смешать мужчин и женщин, распределение становится шире, а при большой разнице средних — с двумя вершинами.
- В опыте Иогансена масса семени в одной линии менялась почти вдвое, и самые тяжёлые семена «лёгкой» линии были тяжелее самых лёгких семян «тяжёлой». По одному семени нельзя было сказать, к какой линии оно относится, — только по потомству.
- Чарлз Дарвин, ничего не знавший о генах, тоже различал изменчивость, которая «исчезает» у потомков, и изменчивость, которая «закрепляется». Опыты Иогансена дали этому различию количественную основу.
- Уолтер Уэлдон, один из основателей биометрии, измерял лобную ширину тысяч крабов из Плимутской гавани и показал, что за несколько лет среднее значение признака сдвинулось, — одно из первых количественных наблюдений естественного отбора в природе.
- Иогансен не окончил университета: он начинал учеником аптекаря, а стал профессором и ректором Копенгагенского университета.
- «Эфирный метод» Иогансена позволял выгонять цветущую сирень к Рождеству: ветки или кусты выдерживали в парах эфира, после чего почки выходили из покоя.
- Слово «биометрия» сегодня чаще связывают с распознаванием людей по отпечаткам пальцев и лицу, но первоначально оно означало именно статистику живого: так назвали журнал «Биометрика», основанный в 1901 г. Пирсоном, Уэлдоном и Гальтоном для публикации количественных исследований изменчивости и наследственности.
25. Частые вопросы
Сколько объектов нужно для вариационного ряда?
Для учебной работы обычно берут 30–50, для научного исследования — сотни и тысячи. Чем больше выборка, тем точнее оценки среднего и разброса и тем плавнее кривая. На малой выборке кривая может быть случайно асимметричной.
Почему у модификаций средние значения встречаются чаще крайних?
Признак формируется под действием многих мелких факторов, одни из которых увеличивают его, другие уменьшают. У большинства особей эти влияния уравновешиваются; крайние значения получаются, только если почти все факторы действуют в одну сторону, а это маловероятно.
Чем мода отличается от медианы?
Мода — самое частое значение; медиана — значение, которое делит упорядоченный ряд пополам. В симметричном ряду они совпадают со средним.
Почему Иогансен взял именно фасоль?
Фасоль — строгий самоопылитель, поэтому потомство одного растения генетически однородно (чистая линия), а масса семени — удобный количественный признак, который легко измерить у тысяч семян.
Можно ли построить вариационный ряд для смешанной популяции?
Можно, но он будет отражать и наследственную, и модификационную изменчивость вместе. Чтобы изучить только модификационную изменчивость, нужен генетически однородный материал — клон или чистая линия.
Что такое класс в вариационном ряду?
Интервал значений, в который объединяют близкие варианты непрерывного признака (например, 9,0–9,9 см). Классы делают ряд обозримым, когда почти все измеренные значения различаются.
Как по кривой отличить узкую норму реакции от широкой?
Узкая норма реакции даёт высокую узкую кривую с малым размахом и малым стандартным отклонением; широкая — низкую растянутую кривую.
Почему потомство крупных семян популяции мельче самих отобранных семян?
Крупность отобранных семян объясняется отчасти генотипом, отчасти благоприятными условиями. Генотип передаётся потомкам, а условия — нет. Поэтому потомство крупнее среднего, но мельче отобранных родителей («возврат к среднему»).
Почему в F1 от двух чистых линий кривая узкая, а в F2 широкая?
Все гибриды F1 одинаковы по генотипу (гетерозиготны по всем различающимся генам), и их изменчивость только модификационная. В F2 идёт расщепление по многим генам, и к модификационной изменчивости добавляется наследственная.
Как найти медиану?
Расположить все значения по возрастанию и найти то, которое стоит посередине. При чётном числе значений медиана — среднее двух центральных значений. По таблице частот нужно накопленно складывать частоты, пока не дойдёте до середины выборки.
Что такое биометрия?
Раздел биологии, применяющий методы математической статистики к изучению живых объектов: описанию изменчивости, сравнению групп, оценке наследуемости и связей между признаками.
Чем стандартное отклонение лучше размаха?
Размах зависит только от двух крайних, часто случайных значений и растёт с увеличением выборки. Стандартное отклонение учитывает все значения и почти не зависит от объёма выборки, поэтому лучше характеризует разброс.
Почему отбор в популяции со временем перестаёт действовать?
Отбор постепенно отбирает генотипы с нужными аллелями, и наследственная изменчивость в отобранной группе уменьшается. Когда она исчерпана, остаются только модификационные различия, и дальнейший отбор неэффективен, пока не появятся новые мутации или не будет привлечён новый материал скрещиванием.
Зачем в практической работе брать растения одного сорта?
Чтобы изучить именно модификационную изменчивость: у растений одного сорта генотипы практически одинаковы, и различия между ними вызваны условиями. В смеси сортов к модификационной изменчивости добавится наследственная.
Можно ли по вариационному ряду одного растения изучать изменчивость?
Да, если признак повторяется у одного организма много раз: длина листьев одного дерева, число семян в бобах одного растения, длина колосков в колосе. Все листья дерева имеют одинаковый генотип, поэтому их изменчивость — чисто модификационная (зависит от положения в кроне, освещённости, времени закладки). Такой материал удобен для школьной работы.
Что значит «выравненность» сорта или партии?
Это малый разброс признака: почти все плоды или семена близки к среднему значению. Выравненность выражают стандартным отклонением или коэффициентом вариации; для торговли и машинной обработки она бывает не менее важна, чем среднее значение.
26. ЕГЭ
Тема входит в элемент 3.4 кодификатора [12]: «Модификационная изменчивость… Норма реакции признака. Вариационный ряд и вариационная кривая (В. Иогансен). Свойства модификационной изменчивости». В части 1 — задания на определения (варианта, вариационный ряд, вариационная кривая), на расчёт среднего значения, моды и объёма выборки, на чтение таблицы или рисунка; в части 2 — анализ опытов с отбором в популяции и чистой линии, вопросы о форме кривой и объяснение закономерности модификационной изменчивости.
Что обязательно знать к экзамену
- Определения варианты, частоты, вариационного ряда и кривой.
- Формулу среднего арифметического и умение считать по ней.
- Закономерность: средние значения часты, крайние редки — и её объяснение.
- Опыт Иогансена: популяция, чистая линия, результат отбора, выводы.
- Как изменится кривая при увеличении выборки.
Разбор заданий части 1
Задание. Длина колосьев пшеницы одного сорта: 7 см — 3 колоса, 9 см — 9, 11 см — 6, 13 см — 2. Какова средняя длина колоса (см)? Ответ: 9,7.
Задание. Какой процент выборки составляют колосья длиной 11 см (по тем же данным)? Ответ: 30.
Задание. Выберите три верных утверждения о вариационной кривой: 1) отражает модификационную изменчивость признака; 2) по горизонтальной оси откладывают частоты; 3) крайние варианты встречаются редко; 4) строится для качественных признаков; 5) при увеличении выборки становится более плавной; 6) её вершина соответствует самой редкой варианте. Ответ: 135.
Разбор задачи части 2
Задание. Семена фасоли одного сорта, выращенные в одинаковых условиях, разложили по длине: 8 мм — 2 семени, 9 мм — 6, 10 мм — 11, 11 мм — 7, 12 мм — 2. Как называют полученный ряд? Определите объём выборки, моду, среднюю длину семени и размах. Как изменится вид кривой, если выборку увеличить до 1000 семян?
Ответ. 1) Вариационный ряд длины семян. 2) n = 28; мода — 10 мм. 3) M = 281 / 28 ≈ 10,0 мм; размах 12 − 8 = 4 мм. 4) Кривая станет более плавной, симметричной и колоколообразной; максимум останется около средней длины, крайние варианты будут редкими, так как сочетание только благоприятных или только неблагоприятных условий маловероятно.
Задание. Почему Иогансену не удалось изменить массу семян фасоли отбором внутри чистой линии? Ответ. 1) Растения чистой линии гомозиготны и генетически одинаковы. 2) Различия в массе семян внутри линии — модификации, вызванные условиями развития. 3) Модификации не наследуются, поэтому потомство крупных и мелких семян линии одинаково. 4) Отбор эффективен только при наличии наследственных различий.
Задание. Растения одного сорта томатов выращены на двух участках — с поливом и без полива. На первом средняя масса плода 120 г, на втором — 80 г; на каждом участке масса плодов варьирует в пределах 40 г. Какой вид изменчивости проявляется внутри участка и между участками? Можно ли по этим данным судить о норме реакции массы плода у сорта? Ответ. 1) Внутри участка и между участками проявляется модификационная изменчивость: генотип растений одного сорта одинаков. 2) Различия между участками вызваны поливом, внутри участка — микроусловиями каждого растения. 3) Данные позволяют лишь частично судить о норме реакции: она охватывает значения от минимальных на сухом до максимальных на поливном участке, а при других условиях может оказаться ещё шире.
Задание. Объясните, почему вариационная кривая массы семян в популяции сорта шире, чем в чистой линии этого сорта. Ответ. В популяции к модификационной изменчивости добавляется наследственная: растения различаются генотипами. В чистой линии все растения генетически одинаковы, и изменчивость только модификационная.
27. Для олимпиад
Ошибка среднего и сравнение двух выборок
Среднее, рассчитанное по выборке, — лишь оценка среднего всей совокупности. Её точность характеризует стандартная ошибка среднего: m = σ / √n. Чем больше выборка, тем точнее среднее. Например, при σ = 2 см и n = 100 ошибка среднего равна 0,2 см, а при n = 25 — 0,4 см. Примерно с вероятностью 95 % истинное среднее лежит в пределах M ± 2m.
Чтобы решить, различаются ли два сорта по признаку, сравнивают разность их средних с ошибкой этой разности: t = (M1 − M2) / √(m12 + m22). При больших выборках различие считают достоверным, если t больше примерно 2 (уровень значимости 5 %). Пример: M1 = 10,4 см, m1 = 0,15; M2 = 9,8 см, m2 = 0,20. t = 0,6 / √(0,0225 + 0,04) = 0,6 / 0,25 = 2,4 — различие достоверно.
Разложение изменчивости в опыте Иогансена
Общая (фенотипическая) дисперсия популяции равна сумме генотипической и средовой: VP = VG + VE. Внутри чистой линии VG = 0, поэтому дисперсия линии оценивает VE. Если средняя дисперсия массы семени внутри линий 16 сг2, а в исходной популяции 40 сг2, то VG = 40 − 16 = 24 сг2, а наследуемость в широком смысле H2 = 24 / 40 = 0,6.
Наследуемость по ответу на отбор
В популяции мышей средняя масса в 6 недель 25 г. Для размножения отобрали самцов и самок со средней массой 31 г. Средняя масса потомства — 27,4 г. Дифференциал отбора S = 31 − 25 = 6 г, ответ R = 27,4 − 25 = 2,4 г, реализованная наследуемость h2 = R / S = 0,4. Если отбор продолжать, ответ будет постепенно уменьшаться по мере того, как в популяции исчерпывается наследственная изменчивость, и останавливается, когда отобранная группа становится генетически однородной, — как в чистой линии Иогансена.
Почему нормальная кривая: центральная предельная теорема
Математическое объяснение колокола даёт центральная предельная теорема: сумма большого числа независимых случайных величин, каждая из которых вносит малый вклад, распределена приблизительно нормально, каково бы ни было распределение отдельных слагаемых. Признак, складывающийся из вкладов многих генов (полимерия) и многих факторов среды, — именно такая сумма. Поэтому нормальное распределение одинаково описывает и модификационную изменчивость в чистой линии, и наследственную изменчивость полигенного признака в популяции. По виду кривой нельзя определить природу изменчивости — для этого нужен опыт.
Процентили и центильные таблицы
Процентиль (центиль) — значение признака, ниже которого лежит заданный процент выборки. Медиана — 50-й процентиль. В педиатрии рост ребёнка оценивают по центильным таблицам: рост ниже 3-го или выше 97-го центиля для данного возраста и пола требует внимания врача. Для нормального распределения 3-й и 97-й центили приблизительно соответствуют M − 1,9σ и M + 1,9σ. Если средний рост мальчиков 10 лет 140 см при σ = 6 см, то 3-й центиль ≈ 140 − 11,4 ≈ 128,6 см, а 97-й ≈ 151,4 см.
Логарифмическое преобразование
Если факторы действуют не складываясь, а умножаясь (например, каждый условно увеличивает массу на несколько процентов), распределение получается скошенным вправо, а нормальным оказывается распределение логарифмов признака. Поэтому массу организмов, размеры клеток, концентрации веществ в крови часто анализируют в логарифмической шкале.
Коэффициент корреляции на простом примере
У пяти растений измерили длину (x, см) и массу (y, г) семени: (10; 30), (11; 33), (12; 35), (13; 38), (14; 39). Средние: x̄ = 12, ȳ = 35. Отклонения x: −2, −1, 0, 1, 2; отклонения y: −5, −2, 0, 3, 4. Сумма произведений отклонений: 10 + 2 + 0 + 3 + 8 = 23; сумма квадратов отклонений x: 10, y: 25 + 4 + 0 + 9 + 16 = 54. r = 23 / √(10 × 54) = 23 / 23,24 ≈ 0,99. Связь очень сильная и положительная. Коэффициент линейной регрессии массы на длину b = 23 / 10 = 2,3 г на 1 см.
Связь с наследуемостью: если отложить по горизонтали средний признак родителей, а по вертикали — средний признак их детей, наклон линии регрессии равен наследуемости h2. Это ещё один способ, кроме ответа на отбор и сравнения близнецов, оценить долю наследственной изменчивости.
28. Задания с разбором
Задание 1
Выберите три верных ответа. Вариационный ряд: 1) отражает изменчивость количественного признака; 2) состоит из вариант, расположенных в порядке возрастания или убывания; 3) строится для качественных признаков; 4) включает частоты вариант; 5) характеризует мутационную изменчивость; 6) всегда содержит не более пяти вариант.
Ответ
1, 2, 4.
Задание 2
Число зёрен в колосьях: 20 — 2 колоса, 22 — 5, 24 — 10, 26 — 6, 28 — 2. Найдите объём выборки, моду и среднее.
Ответ
n = 25; мода — 24; M = (40 + 110 + 240 + 156 + 56) / 25 = 602 / 25 = 24,08 ≈ 24,1.
Задание 3
Какой процент выборки (по данным задания 2) составляют колосья с 26 зёрнами?
Ответ
24 (6 из 25).
Задание 4
Как называют графическое выражение вариационного ряда? Что откладывают по осям?
Ответ
Вариационная кривая; по горизонтальной оси — значения признака (варианты), по вертикальной — частоты их встречаемости.
Задание 5
Объясните, почему в вариационном ряду длины листьев одного дерева чаще встречаются листья средней длины.
Ответ
Длина листа зависит от многих факторов (освещённость, положение в кроне, снабжение водой и питательными веществами, время закладки). У большинства листьев влияния этих факторов уравновешиваются, и длина близка к средней; очень длинные или очень короткие листья получаются лишь при сочетании только благоприятных или только неблагоприятных условий, что редко.
Задание 6
Найдите ошибки и исправьте. 1) Вариационный ряд отражает модификационную изменчивость. 2) Вариантой называют число особей с данным значением признака. 3) Среднее значение равно сумме вариант, делённой на их число. 4) Крайние варианты встречаются редко. 5) С увеличением выборки кривая становится более угловатой.
Ответ
Ошибки в 2, 3, 5. 2) Варианта — значение признака; число особей — частота. 3) Среднее равно сумме произведений вариант на частоты, делённой на объём выборки. 5) Кривая становится более плавной.
Задание 7
Что такое чистая линия? Почему Иогансен работал с фасолью?
Ответ
Чистая линия — генетически однородное (гомозиготное) потомство одной самоопыляющейся особи. Фасоль — строгий самоопылитель, поэтому из одного растения легко получить чистую линию, а масса семени — удобный количественный признак.
Задание 8
В опыте отобрали самые крупные семена чистой линии фасоли и высеяли. Какими будут семена потомства по сравнению со средними семенами линии? Ответ поясните.
Ответ
В среднем такими же, как у линии в целом. Крупность отобранных семян — модификация, вызванная условиями развития; генотип у всех растений линии одинаков, а модификации не наследуются.
Задание 9
Почему отбор крупных семян в смешанной популяции эффективен, хотя потомство мельче отобранных семян?
Ответ
В популяции различия частично наследственные; отбирая крупные семена, отбирают и генотипы, определяющие крупные семена, поэтому потомство в среднем крупнее. Но часть крупности отобранных семян была модификацией, которая не передаётся, поэтому потомство мельче родительских семян.
Задание 10
Установите соответствие: А) самое частое значение признака; Б) разность наибольшей и наименьшей вариант; В) число особей в выборке; Г) отдельное значение признака; Д) число особей с данным значением признака. 1) варианта; 2) частота; 3) мода; 4) размах; 5) объём выборки.
Ответ
А3, Б4, В5, Г1, Д2.
Задание 11
Рост 20 учащихся (см): 160 — 2, 165 — 4, 170 — 8, 175 — 4, 180 — 2. Рассчитайте средний рост. Какую форму имеет кривая?
Ответ
M = (320 + 660 + 1360 + 700 + 360) / 20 = 3400 / 20 = 170 см; кривая симметричная, одновершинная.
Задание 12
При измерении роста всех взрослых жителей посёлка вариационная кривая оказалась двувершинной. Как это объяснить?
Ответ
В выборке смешаны две группы с разным средним ростом — мужчины и женщины (половой диморфизм). Каждая группа даёт свою одновершинную кривую, а их сумма — кривую с двумя вершинами.
Задание 13
Ученик построил вариационный ряд длины колоса для колосьев трёх разных сортов, собранных с разных полей, и сделал вывод о модификационной изменчивости. В чём ошибка?
Ответ
Колосья разных сортов различаются генотипами, а растения с разных полей росли в разных условиях; изменчивость в такой выборке смешанная (наследственная и модификационная). Для изучения модификационной изменчивости нужно брать растения одного сорта.
Задание 14
Сформулируйте три вывода из опытов Иогансена.
Ответ
1) Изменчивость в популяции складывается из наследственной и модификационной. 2) Отбор внутри чистой линии неэффективен, так как различия внутри линии модификационные. 3) Отбор эффективен только при наличии наследственной изменчивости; генотип определяет норму реакции признака.
Задание 15
Средняя длина колоса 9 см, стандартное отклонение 1 см, распределение нормальное. Какая примерно доля колосьев имеет длину от 7 до 11 см?
Ответ
Около 95 % (M ± 2σ).
Задание 16
У двух сортов томатов средняя масса плода одинакова — 100 г, но у первого σ = 5 г, у второго σ = 25 г. Какой сорт удобнее для механизированной уборки и консервирования целыми плодами? Почему?
Ответ
Первый: у него плоды выравненнее по массе (меньше разброс), что важно для машин и стандартной упаковки.
Задание 17
Средняя масса семени в популяции 40 сг; для посева отобрали семена со средней массой 60 сг; потомство имело среднюю массу 46 сг. Определите наследуемость массы семени.
Ответ
S = 20 сг; R = 6 сг; h2 = R / S = 0,3.
Задание 18
Как изменится ответ на отбор в задании 17, если отбор проводить внутри чистой линии? Почему?
Ответ
Ответ будет равен нулю: в чистой линии нет наследственной изменчивости (h2 = 0), различия модификационные.
Задание 19 (олимпиадное)
Для 20 колосьев (7 см — 3, 9 см — 9, 11 см — 6, 13 см — 2) рассчитайте стандартное отклонение и коэффициент вариации.
Ответ
M = 9,7 см; Σp(v − M)2 = 58,2; σ2 = 58,2 / 19 ≈ 3,06; σ ≈ 1,75 см; CV ≈ 18 %.
Задание 20 (олимпиадное)
Средняя дисперсия массы семени внутри нескольких чистых линий 9 сг2, дисперсия в исходной популяции 36 сг2. Оцените наследуемость в широком смысле. Каким будет ответ на отбор при дифференциале отбора 10 сг, если считать всю генетическую изменчивость аддитивной?
Ответ
VG = 36 − 9 = 27; H2 = 27 / 36 = 0,75; R = 0,75 × 10 = 7,5 сг.
Литература
- Quetelet A. Sur l’homme et le développement de ses facultés, ou Essai de physique sociale. Paris: Bachelier, 1835. T. 1–2.
- Galton F. Natural inheritance. London: Macmillan, 1889.
- Fisher R. A. The correlation between relatives on the supposition of Mendelian inheritance // Transactions of the Royal Society of Edinburgh. 1919. Vol. 52. P. 399–433.
- WHO Multicentre Growth Reference Study Group. WHO Child Growth Standards based on length/height, weight and age // Acta Paediatrica. 2006. Vol. 95, suppl. 450. P. 76–85. DOI: 10.1111/j.1651-2227.2006.tb02378.x.
- Johannsen W. Über Erblichkeit in Populationen und in reinen Linien. Jena: Gustav Fischer, 1903. 68 S.
- Johannsen W. The genotype conception of heredity // The American Naturalist. 1911. Vol. 45, № 531. P. 129–159. DOI: 10.1086/279202.
- Dudley J. W., Lambert R. J. 100 generations of selection for oil and protein in corn // Plant Breeding Reviews. 2003. Vol. 24, pt. 1. P. 79–110. DOI: 10.1002/9780470650240.ch5.
- Roll-Hansen N. The holist tradition in twentieth century genetics. Wilhelm Johannsen’s genotype concept // The Journal of Physiology. 2014. Vol. 592. P. 2431–2438. DOI: 10.1113/jphysiol.2014.272120.
- Jennings H. S. Heredity, variation and evolution in Protozoa. II. Heredity and variation of size and form in Paramecium, with studies of growth, environmental action and selection // Proceedings of the American Philosophical Society. 1908. Vol. 47. P. 393–546.
- East E. M. Studies on size inheritance in Nicotiana // Genetics. 1916. Vol. 1. P. 164–176. DOI: 10.1093/genetics/1.2.164.
- Falconer D. S., Mackay T. F. C. Introduction to quantitative genetics. 4th ed. Harlow: Longman, 1996.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…