
В 1997 году журнал Nature напечатал статью о пресноводном жгутиконосце, которого знали немногие специалисты. Клетка мельче 15 микрометров питается бактериями и внешне ничем не выделяется. Но в её митохондриях нашли 97 генов — почти втрое больше, чем у человека. Среди них оказались четыре гена настоящей бактериальной РНК-полимеразы: такого фермента в митохондриях других эукариот нет. Авторы назвали этот геном похожим на геном эубактерии в миниатюре [1].
Жгутиконосец назывался Reclinomonas americana и принадлежал к якобидам (Jakobida) — небольшой группе свободноживущих одноклеточных. С тех пор якобиды стали главным источником сведений о том, как выглядел геном предка митохондрий и что с ним произошло за миллиарды лет. Сами они при этом не древние организмы и не «живые ископаемые», и понять это отличие не менее важно, чем запомнить число генов.
- 1. Что такое якобиды
- 2. Как их открывали
- 3. Как устроена клетка
- 4. Где они живут
- 5. Место на древе и система
- 6. Куда делись гены предка митохондрии
- 7. Что записано в митохондриальной ДНК якобид
- 8. Бактериальная РНК-полимераза
- 9. Опероны и последовательность Шайна — Дальгарно
- 10. РНКаза P, тмРНК и транспортёры
- 11. Что у якобид не древнее
- 12. Ядро андалузии и 930 белков митохондрии
- 13. Стигиеллы: жизнь почти без кислорода
- 14. Кем был предок митохондрии
- 15. Интересные факты
- 16. Частые вопросы
- 17. Что пока не решено
- 18. Что нужно знать для ЕГЭ
- 19. Для олимпиад
- Задания с разбором
- Литература
1. Что такое якобиды
Определение. Якобиды (Jakobida) — группа свободноживущих гетеротрофных жгутиконосцев из супергруппы дискоб. Клетка мельче 15 мкм несёт два жгутика и брюшную бороздку для захвата пищи; задний жгутик лежит в бороздке и несёт одну лопасть на спинной стороне. Митохондриальная ДНК якобид содержит больше генов и больше бактериальных черт, чем у любых других изученных эукариот [2][3][4].
Якобид мало: к 2015 году было описано всего девять видов [5], и с тех пор добавилось лишь несколько новых родов. Зато встречаются они в самых разных местах: в пресной и морской воде, в почве и в морских осадках, где почти нет кислорода [2][5]. Все известные якобиды — свободноживущие организмы, которые питаются бактериями и другими мелкими частицами; паразиты среди описанных видов неизвестны [2].
Три особенности делают эту группу важной для биологии.
- Строение клетки. Якобиды — так называемые типичные экскаваты: у них есть брюшная бороздка с лопастью на заднем жгутике и сложный набор микротрубочковых корешков. По современным данным такая клетка, возможно, была уже у общего предка всех эукариот [6].
- Митохондриальный геном. В нём сохранилось больше всего генов и больше всего черт бактериального генома [4].
- Положение на древе. Якобиды — ранняя ветвь дискоб, родственная гетеролобозеям и эвгленозоям [7][4].
Важно. Якобиды не древнее человека или дуба. Линия якобид прошла от общего предка всех эукариот столько же времени, сколько и наша. Древней у них можно назвать только отдельную черту: митохондриальная ДНК потеряла меньше генов, чем у других. Правильно говорить «сохранили больше исходных черт», а не «примитивные организмы».
2. Как их открывали
- 1938Я. Рёйнен описывает жгутиконосца, позже названного Jakoba libera
- 1963М. и С. Насс находят в митохондриях нити ДНК
- 1967Л. Саган (Маргулис): митохондрии произошли от симбиотических бактерий
- 1981прочитан геном митохондрии человека: 16 569 пар нуклеотидов
- 1990Д. Паттерсон выделяет род Jakoba
- 1993описана реклиномонада; Ч. О’Келли рассматривает якобид как группу
- 1997Б. Ф. Ланг и соавторы: 97 генов и бактериальная РНК-полимераза в митохондрии реклиномонады
- 2006описана андалузия — самая ранняя ветвь якобид
- 2013сравнение девяти геномов: у андалузии ровно 100 митохондриальных генов
- 2015выделено семейство анаэробных якобид Stygiellidae
- 2016морамонас из почвы Марокко: митохондриальный геном больше 264 тысяч пар нуклеотидов
- 2018описана офирина — сестринская к якобидам ветвь
- 2020прочитан ядерный геном андалузии: около 930 белков митохондрии
- 2021бактериеподобная рРНК и сложная рибосома митохондрии андалузии
- 2026новый род целатомонас найден в почве для комнатных растений
- организмы
- происхождение митохондрий
- геномы
Жгутиконосец с чужим именем
История группы начинается в 1938 году: нидерландский ботаник Якоба Рёйнен описывает морского жгутиконосца и относит его к роду Cryptobia под названием Cryptobia libera. Больше полувека на него почти не обращали внимания. В 1990 году Дэвид Паттерсон изучил его под электронным микроскопом, показал, что к криптобиям этот организм не относится, и выделил для него новый род, названный в честь первоописателя, — Jakoba [8]. От этого рода получила имя и вся группа.
В 1993 году произошли сразу два события. Из пресной воды описали новый вид и род — Reclinomonas americana [9]. В том же году Ч. О’Келли сравнил строение Jakoba, Reclinomonas и Histiona и заключил, что они родственны и важны для понимания ранней диверсификации эукариот [10]. Интерес к ним объяснялся так: по строению клетки якобид сближали с ретортамонадами — группой без настоящих митохондрий, которую тогда считали особенно древней [1].
Поиск «наименее изменённой» митохондрии
Чтобы понять открытие 1997 года, надо вернуться назад. В 1963 году Маргит и Сильван Насс обнаружили в митохондриях куриных зародышей нити, которые разрушались ферментом ДНКазой [11]. Так стало ясно, что у митохондрий есть собственная ДНК. В 1967 году вышла работа Линн Саган (позже Маргулис), заставившая биологов всерьёз обсуждать симбиотическое происхождение органоидов [12]. В 1981 году группа Фредерика Сэнгера прочитала митохондриальный геном человека: 16 569 пар нуклеотидов, причём гены расположены почти без промежутков [13].
Такой геном плохо подходит для поиска предка. Он настолько сокращён и изменён, что по нему трудно судить, с чего всё начиналось. Поэтому в 1990-е годы Майкл Грей, Бернд Франц Ланг и их коллеги стали целенаправленно читать митохондриальные геномы протистов [14]. Логика была простой: если в разных линиях гены терялись независимо, то где-то могла сохраниться наименее изменённая версия. Её и нашли у реклиномонады [1].
Дальше группа пополнялась медленно. В 2006 году из почвы описали андалузию (Andalucia godoyi) — клетку размером всего 3–5 мкм, оказавшуюся самой ранней ветвью якобид [15]. В 2013 году сравнение девяти митохондриальных геномов из пяти родов показало: всё, что удивило в реклиномонаде, характерно для якобид в целом, а у андалузии генов ещё больше [4].
3. Как устроена клетка
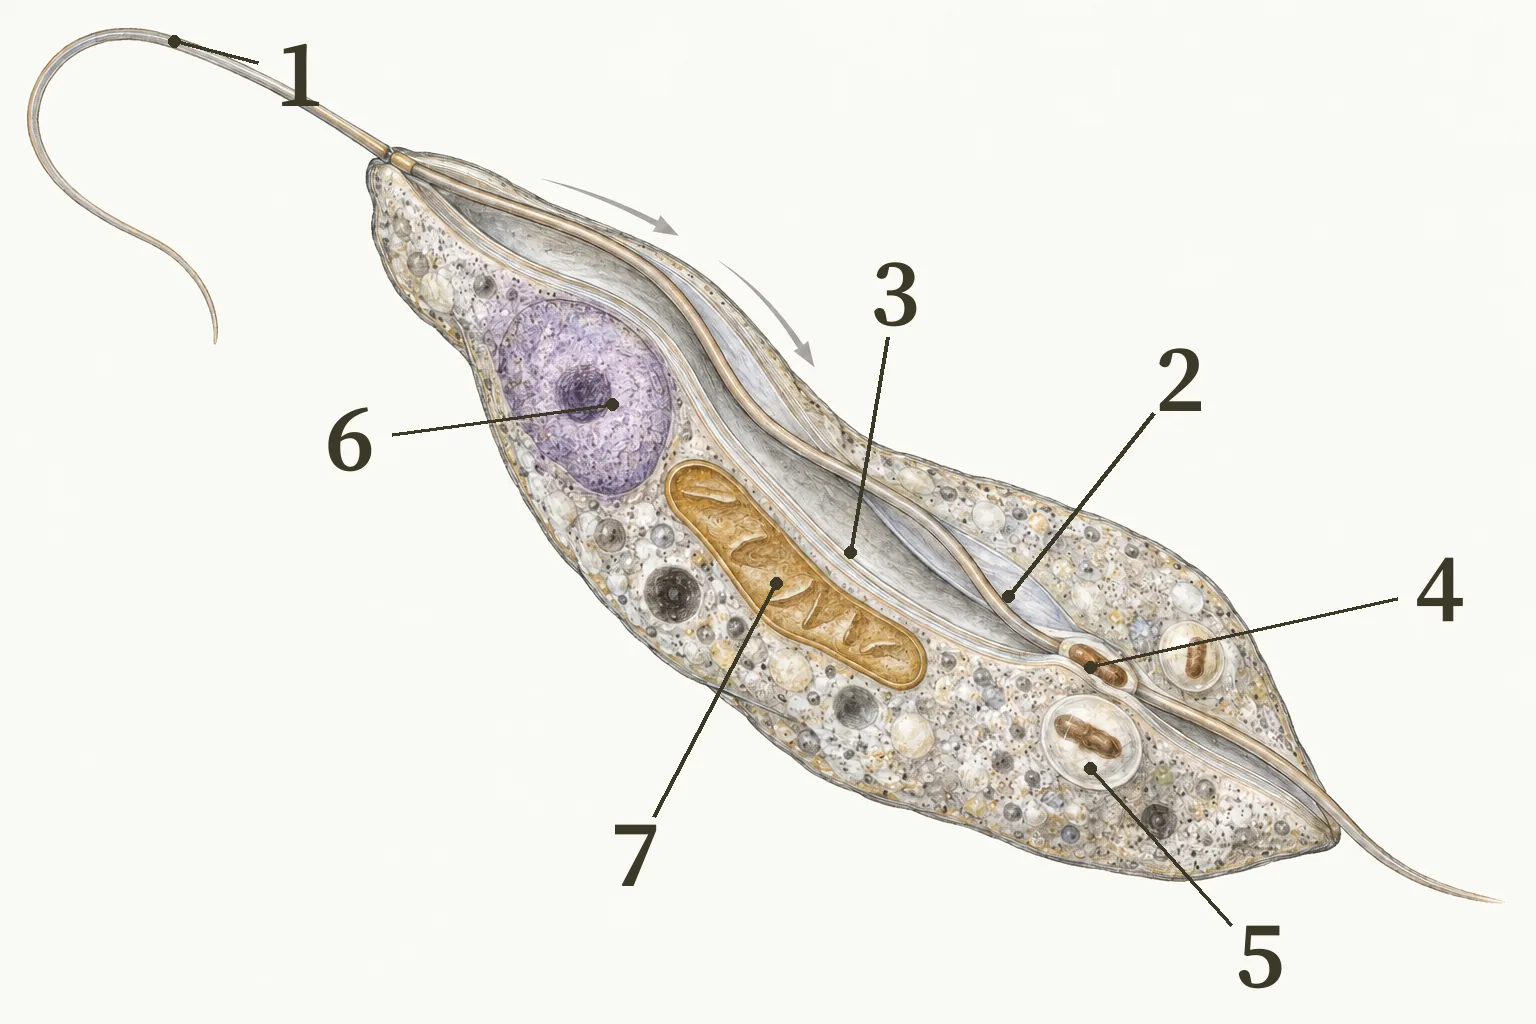
Клетка якобиды вытянутая, длиной от 3–5 мкм у андалузии до 7–13 мкм у морамонаса [15][2]. Спереди отходят два жгутика. Передний направлен вперёд, а задний проходит вдоль брюшной стороны по глубокой продольной бороздке [2][3]. Биение заднего жгутика гонит воду через бороздку, и бактерии, принесённые этим током, захватываются в её задней части; там образуется пищеварительная вакуоль.
Зачем жгутику лопасть
Главный признак якобид — лопасть (вейн) на заднем жгутике. Это тонкая плёнка, идущая вдоль жгутика. У якобид она одна и расположена только на спинной стороне: именно этот признак А. Симпсон и Д. Паттерсон выделили как общий для группы [3].
Смысл лопасти становится понятен, если оценить, как движется вода вокруг такой мелкой клетки. Соотношение сил инерции и вязкости задаёт число Рейнольдса Re = vL/ν, где v — скорость, L — размер, ν — кинематическая вязкость. Для воды ν ≈ 10−6 м²/с. Если взять скорость 50 мкм/с и размер 10 мкм (порядок величин для такой клетки), получим Re = (50·10−6 · 10·10−6) / 10−6 = 5·10−4. При таких значениях инерции практически нет: как только жгутик останавливается, останавливается и вода [16]. Поэтому поток приходится создавать непрерывно, а широкая лопасть, по-видимому, позволяет жгутику перемещать больше воды, чем тонкая нить.
Цитоскелет и митохондрии
Края бороздки поддерживают два основных корешка из микротрубочек, левый и правый, и отдельная одиночная микротрубочка. С ними связаны немикротрубочковые волокна, которые обозначают буквами A, B, I и C. Волокно C у якобид многослойное [3][15]. Такой набор деталей отличает типичных экскават и служит важным признаком родства. Для сравнения: у гетеролобозей бороздка есть не у всех, а лопасти на заднем жгутике, как правило, нет; исключение нашли лишь в 2025 году [17].
А вот форма крист у якобид не постоянна. У андалузии они трубчатые [15], у близкой к якобидам офирины — от плоских до дисковидных [18], а у анаэробной стигиеллы, судя по всему, крист нет совсем [3]. Кстати, якобид не включают в группу дискристат, объединяющую эвгленозоев и гетеролобозей: дисковидные кристы для них не характерны.
Некоторые пресноводные якобиды, например гистиона и реклиномонада, живут в лорике — домике, прикреплённом к субстрату [10]. Другие виды плавают свободно. Морамонас из пустынной почвы переживает неблагоприятное время в виде шаровидных цист диаметром 5–6 мкм, которые появляются в культуре уже через 3–4 дня [2].
4. Где они живут
Описанных видов мало, но анализ средовой ДНК показывает, что в природе якобид больше: их просто редко выделяют в культуру.
Пресная вода. Большинство описанных до 2015 года видов — пресноводные [5].
Море и осадки без кислорода. Томаш Панек и соавторы в 2015 году получили 21 новую культуру и 712 средовых последовательностей анаэробных якобид. Эти организмы встречаются в морских и солоноватых прибрежных осадках по всему миру, и их относительно много в бескислородных местообитаниях [5]. Jakoba libera описана из глубоководных океанских осадков [8].
Почва. Андалузия выделена из почвы [15]. Морамонаса нашли в образце пустынной почвы, собранном в марте 2007 года близ города Загора в Марокко, в долине, отделённой от Сахары горным хребтом [2]. А в 2026 году Г. Созонов и соавторы описали новый род Celatomonas из обычного покупного грунта для комнатных растений. При делении клетки этого вида принимают необычную изогнутую треугольную форму; видовое название quasimodo, по-видимому, связано именно с этим. Поиск в базах средовой ДНК выявил в почвах ещё несколько неизвестных линий якобид [19]. Значит, новые виды могут встретиться и на подоконнике.
Тропические лагуны. Близкая к якобидам офирина выделена из мелководной лагуны на Соломоновых островах [18].
5. Место на древе и система
Якобиды входят в супергруппу дискоб (Discoba) вместе с цукубамонадой, гетеролобозеями и эвгленозоями [7][20]. Подробнее о супергруппе рассказано в статье «Дискобы», а об их ближайших соседях — в статье «Гетеролобозеи». В 2025 году на большом наборе митохондриальных белков корень древа эукариот был помещён между двумя крупными объединениями, Opimoda+ и Diphoda+. Дискобы попали в Diphoda+, а другие типичные экскаваты, метамонады и малавимонады, — в Opimoda+. Отсюда следует вывод: сложное экскаватное строение могло быть уже у общего предка всех эукариот [6]. Положение корня остаётся спорным: в других работах получены другие варианты [21].
- Гистионины (Histionina) — порядок отделения трёх групп (якоба, гистиониды (Histionidae) и морамонадиды (Moramonadidae)) не установлен
- Гистиониды (Histionidae) — порядок отделения трёх групп (гистиона, реклиномонада и секуламонас) не установлен
- Офирина — Ophirina amphinema из лагуны на Соломоновых островах; сестринская к якобидам ветвь, поддержка умеренная.
- Андалузия — Andalucia godoyi из почвы, клетка 3–5 мкм, 100 митохондриальных генов.
- Стигиеллы — семейство Stygiellidae: морские якобиды, живущие почти без кислорода.
- Якоба — Jakoba libera: у неё единственной среди изученных якобид линейная митохондриальная ДНК.
- Гистиона и реклиномонада — пресноводные формы; секуламонас редактирует концы своих тРНК.
- Морамонас — из пустынной почвы Марокко, раздутый митохондриальный геном.
- Целатомонас — Celatomonas quasimodo из почвы для комнатных растений.
- Порядок ветвей внутри гистионин на схеме упрощён.
Внутри якобид первыми расходятся две большие ветви. К андалуцинам относятся андалузия и анаэробные стигиеллы. К гистионинам относятся якоба, гистиона, реклиномонада, секуламонас и почвенные морамонадиды [5][4][19]. Анализ белков, закодированных в митохондриальной ДНК, надёжно подтверждает единство якобид и раннее обособление андалузии [4].
Интересна судьба названий. Вид, который сейчас называется Stygiella incarcerata, в 2000 году описали как Jakoba incarcerata [3], в 2006 году перенесли в род Andalucia [15], а в 2015 году выделили в отдельный род и семейство [5]. Такие перемещения обычны для плохо изученных групп: новые данные меняют представление о границах родов.
В 2018 году рядом с якобидами обнаружился ещё один организм — Ophirina amphinema, клетка длиной около 4 мкм. В дереве из 156 белков офирина сестринская к якобидам, хотя поддержка этого положения умеренная. Её признаки мозаичны. Как у якобид, в митохондриальной ДНК есть гены rpoA–rpoD. Но лопастей на жгутике две, как у экскават из других групп, а не одна [18]. Именно такие организмы помогают понять, как выглядел предок всех этих ветвей.
Название другой экскаваты само напоминает об этой истории: малавимонада Malawimonas jakobiformis получила видовое название за сходство с якобидами, но к ним не относится [22][6].
6. Куда делись гены предка митохондрии
Прежде чем рассматривать геном якобид, разберёмся, с чем его сравнивать.
Митохондрии произошли от бактерии из группы альфапротеобактерий, поселившейся в клетке-хозяине, родственной асгард-археям [23]. Свободноживущая альфапротеобактерия несёт тысячи генов. Даже у внутриклеточного паразита Rickettsia prowazekii, чей геном сильно сокращён, 834 белковых гена на 1 111 523 пары нуклеотидов [24]. В митохондриальной ДНК современных эукариот белковых генов гораздо меньше — от 3 до 67 [25].
- Что этогены, ставшие ненужными внутри клетки-хозяина
- Примермногие гены синтеза аминокислот и нуклеозидов
- Что этогены, перешедшие в ядро; белок синтезируется в цитозоле и ввозится в митохондрию
- Масштабподавляющее большинство белков митохондрии
- Что этогены, оставшиеся в митохондриальной ДНК
- Сколько белкову человека 13, у реклиномонады 65, у андалузии 66
Гены предка пошли тремя путями. Одни просто исчезли, потому что их работу взяла на себя клетка-хозяин: например, у риккетсии и в митохондриях отсутствуют многие гены синтеза аминокислот и нуклеозидов [24]. Другие перешли в ядро. Такой ген приобретает сигналы, позволяющие ему работать в ядре, его мРНК транслируется на рибосомах в цитозоле, а готовый белок ввозится в митохондрию или работает в другой части клетки [26]. Третьи остались в митохондриальной ДНК.
Перенос в ядро — не только дело далёкого прошлого. Он идёт и сейчас, причём с разной скоростью в разных линиях: одни группы, например все животные, давно сохраняют постоянный набор генов, а у других гены теряются довольно часто [25]. Именно поэтому сравнение современных геномов и даёт картину прошлого: если ген есть у якобид и у бактерий, но отсутствует у человека, то, скорее всего, он был у предка и потерян в нашей линии, а не приобретён якобидами заново.
Почему в митохондрии вообще остаются гены
Этот вопрос до сих пор обсуждают. Во многих линиях ген в ядре лучше защищён от накопления мутаций, чем ген в митохондрии. Почему же перенос не завершился полностью? Предложено несколько объяснений, и они не исключают друг друга.
- Гидрофобность. Сильно гидрофобный белок трудно провести через мембраны из цитозоля, поэтому выгоднее синтезировать его на месте [27].
- Важность белка в комплексе. Остаются гены белков, занимающих центральное положение в дыхательных комплексах: их сборку клетке выгодно начинать прямо в органоиде. На выборке геномов разных эукариот такие закономерности были показаны статистически [27].
- Управление на месте. Джон Аллен предположил, что гены сохраняются там, где их работу нужно быстро подстраивать под окислительно-восстановительное состояние дыхательной цепи конкретного органоида [28].
Якобиды дают для этого спора важный материал. Набор их генов показывает, какие гены могут оставаться в митохондрии и работать там, даже если в других линиях они давно перешли в ядро.
7. Что записано в митохондриальной ДНК якобид
Митохондриальные геномы якобид среднего размера: большинство занимает от 65 до 100 тысяч пар нуклеотидов. Участки, кодирующие гены, составляют 80–93 % длины, то есть геном очень плотный, а доля пар А и Т умеренная, 64–74 % [4]. Все изученные, кроме одного, картируются как кольцевые [4].
| Организм | Длина мтДНК | Генов | Из них белковых |
|---|---|---|---|
| Человек | 16 569 п. н. | 37 | 13 |
| Цукубамонада (дискобы) | 48 463 п. н. | 81 | 52 |
| Офирина | 59 094 п. н. | — | — |
| Реклиномонада | 69 034 п. н. | 97 (при уточнении 96) | 65 |
| Андалузия | в пределах 65–100 тыс. п. н. | 100 | 66 |
| Морамонас | больше 264 тыс. п. н. | близко к другим якобидам | — |
| Бактерия Rickettsia prowazekii | 1 111 523 п. н. (геном клетки) | — | 834 |
Числа в таблице взяты из работ о геномах этих организмов [13][29][18][1][4][26][2][24]. У реклиномонады в 2013 году уточнённый подсчёт дал 96 генов с установленной функцией и две открытые рамки считывания [4], а у андалузии генов ровно 100 — больше, чем у любого другого изученного эукариота [4].
Посмотрим, чем эти гены отличаются от наших. В митохондриальной ДНК человека записаны 13 белков дыхательной цепи и АТФ-синтазы, 22 тРНК и 2 рРНК [13]. У якобид, кроме них, есть:
| Группа генов | Что они делают | У человека |
|---|---|---|
| Гены РНК-полимеразы rpoA–rpoD | транскрипция митохондриальных генов | фермент другого типа, ген в ядре |
| Гены многих белков рибосомы | белки митохондриальной рибосомы | все в ядре |
| 5S рРНК | компонент большой субъединицы рибосомы | в мтДНК гена нет |
| Субъединицы NADH-дегидрогеназы nad7–nad11 и сукцинатдегидрогеназы | дыхательная цепь | все в ядре |
| РНК РНКазы P | созревание тРНК | фермент только из белков |
| ssrA (тмРНК) | контроль качества трансляции у бактерий | нет |
| secY, tatA, tatC, переносчики ABC | транспорт белков и других веществ через мембрану | нет в мтДНК |
| ccm | созревание цитохрома c | нет в мтДНК |
Сводка составлена по работам о геномах якобид [1][4][30]. Не все эти гены есть у каждой якобиды. Например, secY есть у реклиномонады, но отсутствует у андалузии, а гены rpl35 и cox15 есть только у андалузии: у всех остальных эукариот они перешли в ядро [4]. Кроме того, только у андалузии среди якобид в мтДНК есть ген тРНК треонина. Остальные якобиды, вероятно, ввозят эту тРНК из цитозоля [4].
8. Бактериальная РНК-полимераза
Самая необычная находка — гены РНК-полимеразы. Чтобы оценить её значение, сравним два фермента.
| Признак | РНК-полимераза митохондрий почти всех эукариот | РНК-полимераза митохондрий якобид |
|---|---|---|
| Строение | одна белковая цепь | несколько субъединиц: α₂ββ′σ |
| Родство | как у бактериофагов Т3 и Т7 | как у бактерий |
| Где записан ген | в ядре | в митохондриальной ДНК: rpoA, rpoB, rpoC, rpoD |
Вот что здесь неожиданно. Согласно симбиотической теории, митохондрии должны были унаследовать бактериальный фермент. Но у человека, дрожжей и растений работает совсем другой — похожий на фермент бактериофагов. Т. Шатт и М. Грей предложили такое объяснение: ещё при возникновении митохондрии клетка приобрела от бактериофага гены, связанные с репликацией, а однокомпонентная РНК-полимераза сначала служила для репликации ДНК и лишь позже стала вести транскрипцию [31].
Якобиды показывают, что бактериальный фермент, скорее всего, был исходным и сохранился по крайней мере в одной линии. Но как именно произошла замена? Можно было ожидать, что у общего предка эукариот были оба фермента, а якобиды просто потеряли фаговый. Прочитав ядерный геном андалузии, М. Грей и соавторы не нашли в нём никаких следов гена фаговой полимеразы [26]. Это не отменяет сценария: ген могли потерять полностью. Но прямых следов такого гена у якобид нет, и вопрос остаётся открытым.
Похожий набор генов rpoA–rpoD нашли и у офирины [18]. Значит, бактериальная полимераза сохранялась и в этой близкой ветви. Сколько раз её заменял фаговый фермент, один или несколько, пока неизвестно: ответ зависит от положения корня древа эукариот.
9. Опероны и последовательность Шайна — Дальгарно
Гены у якобид не только похожи на бактериальные — они и расположены по-бактериальному.
Опероны
У бактерий гены с родственными функциями часто образуют опероны: несколько генов идут подряд и считываются в одну общую мРНК. Рибосомные белки у альфапротеобактерий закодированы в длинном ряду таких оперонов, которые называют L11, L10, β, Str, S10, Spc и α [4].
В митохондриальной ДНК якобид сохранились длинные группы генов рибосомных белков, идущих в том же порядке. Кроме того, такими группами расположены гены субъединиц NADH-дегидрогеназы, созревания цитохрома c и сукцинатдегидрогеназы. Гены в группах плотно упакованы, иногда даже перекрываются, поэтому они, скорее всего, считываются как единые транскрипты [4]. У человека ничего подобного нет, хотя митохондриальная ДНК человека тоже транскрибируется длинными молекулами РНК: порядок генов там совсем другой.
Как рибосома находит начало гена
Бактериальная рибосома находит начало гена с помощью короткого участка мРНК перед стартовым кодоном. Он комплементарен концу малой рибосомной РНК. В 1974 году Дж. Шайн и Л. Дальгарно установили, что конец 16S рРНК кишечной палочки может спариваться с таким участком мРНК [32]. Этот участок и назвали последовательностью Шайна — Дальгарно.
В ядерном геноме эукариот такого механизма нет: рибосома связывается с кэпом мРНК и движется к первому кодону AUG. Но у якобид перед генами митохондрий нашлись участки, способные спариваться с концом митохондриальной рРНК (5′-CUCCUUU-3′) [4]. Из эукариот такие участки известны лишь у немногих линий, включая якобид [18]. В работах их называют потенциальными: это вывод из последовательности, а не прямой опыт на митохондриальных рибосомах якобид [4].
10. РНКаза P, тмРНК и транспортёры
РНКаза P: фермент из РНК
Предшественники тРНК при созревании укорачиваются с 5′-конца. Это делает фермент РНКаза P. У бактерий её каталитическая часть — молекула РНК: это показали в 1983 году С. Геррье-Такада, С. Олтмен и соавторы [33], а Нобелевская премия 1989 года присуждена за каталитические РНК Олтмену и Томасу Чеку. В митохондриях человека РНКаза P состоит только из белков, что само по себе стало сюрпризом в 2008 году [30]. А у реклиномонады ген РНК РНКазы P записан в митохондриальной ДНК [1]. Значит, в этой линии сохранилась исходная, бактериальная форма фермента.
тмРНК: спасатель рибосом
У бактерий рибосома иногда доходит до конца повреждённой мРНК, на которой нет стоп-кодона, и останавливается. На этот случай есть транспортно-матричная РНК (тмРНК). Она действует одновременно как тРНК и как мРНК: присоединяет к растущему белку короткую метку, по которой повреждённый белок затем разрушается, и освобождает рибосому [34].
Ген такой молекулы (ssrA) есть в митохондриях шести изученных якобид. Но их тмРНК необычна: она сохранила часть, похожую на тРНК аланина, а участка, похожего на мРНК, по-видимому, лишена [35]. Такая молекула не может работать точно так же, как бактериальная, и её роль в митохондрии пока неясна. Это хороший пример того, что «бактериальный» ген не обязательно выполняет бактериальную функцию.
Транспортёры
Большинство белков митохондрии приходит извне: их ввозят особые белковые комплексы TOM и TIM. У бактерий есть другие системы для транспорта белков через мембрану: Sec и Tat. Часть из них у якобид записана в самой митохондриальной ДНК. В 2011 году Тонг и соавторы показали, что у реклиномонады действуют обе системы: закодированный в митохондрии бактериальный транспортёр SecY и обычный для эукариот транспортёр внутренней мембраны TIM. Белок Cox11, по-видимому, встраивается при помощи SecY, но, если перенести его ген в ядро дрожжей, белок нормально ввозится в митохондрию [36]. Этот опыт показывает, что такой белок может сменить путь доставки, а значит, новая система импорта могла постепенно занять место старой.
11. Что у якобид не древнее
Было бы ошибкой считать, что якобиды сохранили всё. Это обычные современные организмы, и у них хватает собственных приобретений.
- Редактирование тРНК. У секуламонаса в двух митохондриальных тРНК в первых трёх положениях акцепторного стебля есть нуклеотиды, не образующие пар; они исправляются после транскрипции. Это редактирование подтверждено экспериментально и оказалось новым механизмом [37][4].
- Линейная ДНК. Митохондриальная ДНК Jakoba libera — линейная молекула [4]. На её концах лежат тандемные повторы и несколько открытых рамок считывания, в том числе ген, похожий на гены ДНК-полимераз семейства B. По-видимому, все они появились при встраивании подвижной плазмиды [4]. Кроме того, у этого вида меньше всего митохондриальных генов среди якобид [4].
- Раздутый геном. Митохондриальный геном морамонаса длиннее 264 тысяч пар нуклеотидов, то есть в три-четыре раза больше, чем у других изученных якобид. При этом генов в нём примерно столько же: рост произошёл за счёт некодирующей ДНК, как у митохондрий растений [2]. Для сравнения: у растений рода смолёвка такие геномы достигают миллионов пар нуклеотидов и разбиты на много хромосом [38].
- Потери генов. Сравнение геномов якобид и офирины показывает, что одни и те же гены терялись в разных ветвях параллельно [18]. Такие потери — один из источников разнообразия митохондриальных геномов.
Простая рРНК и сложная рибосома
Самый показательный пример относится к рибосоме. Митохондриальные рибосомы человека и дрожжей сильно отличаются от бактериальных: рРНК в них укорочена, зато появилось множество дополнительных белков. Обычно это объясняли так: белки появились, чтобы стабилизировать рРНК, которая упростилась [39].
Если это верно, то у якобид, чья рРНК почти не отличается от бактериальной, дополнительных белков быть не должно. Опыт дал обратный результат. В 2021 году М. Валах и соавторы нашли в митохондриальной рибосоме андалузии не менее 31 белка малой субъединицы и 44 белков большой — примерно столько же, сколько у животных и грибов. Сама рРНК при этом почти бактериальная [39].
Отсюда следует важный вывод. Сложная рибосома, по-видимому, появилась очень рано, уже у общего предка эукариот, и только потом рРНК в разных линиях пошла по разным путям: где-то сильно сократилась, где-то обрела новые участки, а где-то почти не изменилась [39]. Простая рРНК у якобид не означает простую рибосому.
12. Ядро андалузии и 930 белков митохондрии
Митохондриальная ДНК — лишь малая часть данных о митохондрии. Основная часть её белков закодирована в ядре, поэтому в 2020 году была опубликована работа о ядерном геноме андалузии [26].
Ядерный геном оказался маленьким, около 20 млн пар нуклеотидов. Его гены очень плотно упакованы, и большинство из них не прервано интронами [26]. Сравним это с другой якобидой. Ещё в 2002 году у реклиномонады в ядерных генах шаперонина нашли очень много сплайсосомных интронов, как у позвоночных [22]. Значит, даже внутри одной небольшой группы устройство ядерных генов сильно различается, и малое число интронов у андалузии, по-видимому, результат их потери.
Анализ всех генов предсказал 864 белка, которые кодируются в ядре и работают в митохондрии. Вместе с 66 белками самой мтДНК получается 930 белков [26]. То есть в собственном геноме митохондрии закодировано около 7 % её белков. Для сравнения: у человека, где таких белков больше тысячи, собственный геном кодирует всего 13, то есть около 1 % [40]. Но и 7 % — мало: основной перенос генов в ядро произошёл и у якобид, о чём сказано в разделе 6.
Сложность митохондрии андалузии не уступает сложности митохондрии других эукариот. У неё полный набор окислительного фосфорилирования [26]. В ней сохранилось много черт, потерянных именно заднежгутиковыми — животными и грибами [26]. Это важное предостережение: мы привыкли считать митохондрию человека «обычной», но по многим признакам особенными оказываются как раз животные.
Кроме того, у андалузии нет обычных ферментов анаэробного обмена с выделением водорода — пируват:ферредоксин-оксидоредуктазы и [FeFe]-гидрогеназы. Но есть фермент ацетат:сукцинат-КоА-трансфераза, который мог бы обеспечить некоторое брожение с образованием ацетата [26].
Ещё одна любопытная находка связана с маркерными генами. Ген α-тубулина у андалузии на дереве оказывается рядом с дипломонадами, хотя по другим генам она стоит среди якобид. По-видимому, этот ген получен горизонтальным переносом от родственников дипломонад. Поэтому α-тубулин, долгое время считавшийся надёжным маркером для построения древа, нужно использовать с осторожностью [41].
13. Стигиеллы: жизнь почти без кислорода
Якобиды со своим «эталонным» геномом митохондрий могут показаться образцом аэробной жизни. Тем интереснее, что среди них есть обитатели бескислородной среды.
Семейство стигиелл (Stygiellidae) выделено в 2015 году. К тому времени из бескислородных местообитаний культивировали лишь два штамма одного вида, а сами последовательности якобид часто обнаруживались в таких местах методом ПЦР [5]. Панек и соавторы получили 21 новую культуру со всего мира и 712 средовых последовательностей. В сумме они отнесли их не менее чем к десяти видам, четыре из которых пока не выделены в культуру. Морфологически эти организмы похожи, но генетически и экологически различаются [5].
Интересна и методическая сторона этой работы. Культивирование выявило 60 % видов, а анализ средовых последовательностей — 80 %. Два вида вообще не были найдены средовыми методами [5]. Значит, ни один метод не даёт полной картины, и их нужно сочетать (см. задание 9).
Органоид вместо обычной митохондрии
Митохондрии Stygiella incarcerata лишены крист [3]. В 2016 году М. Леже и соавторы восстановили её набор органельных белков по данным РНК-секвенирования. Оказалось, что этот организм использует органоид типа гидрогеносомы. Пути обмена пирувата и защиты от окислительного стресса в нём очень похожи на соответствующие пути трихомонады и другого анаэроба — пигсуи (Pygsuia). Авторы считают это примером конвергентной эволюции и предполагают, что готовый биохимический «модуль» прокариотного происхождения передавался горизонтально между эукариотами [42].
При этом органоид стигиеллы проще обычной митохондрии, но сложнее гидрогеносомы трихомонады. В нём сохранились компоненты импорта белков, ферменты обмена аминокислот и биосинтеза кардиолипина. По этим чертам он ближе к органоидам других свободноживущих анаэробов, чем к органоидам паразитов [42]. Значит, важен не только недостаток кислорода, но и образ жизни: паразиту проще получать вещества от хозяина.
Получается необычная пара: в одной группе есть организм с самым богатым генами митохондриальным геномом (андалузия) и его родственник с сильно упрощённым органоидом (стигиелла).
14. Кем был предок митохондрии
Раз митохондриальные геномы якобид так похожи на бактериальные, нельзя ли по ним определить, от какой именно бактерии произошли митохондрии?
В 1998 году, после прочтения генома риккетсии, основной считалась такая версия: ближайшие родственники митохондрий — внутриклеточные паразиты из порядка Rickettsiales [24]. Геномы якобид дали повод в этом усомниться. Порядок генов в длинной группе рибосомных белков у них ближе к свободноживущим альфапротеобактериям, чем к риккетсиям. А ген cox15 андалузии сильнее всего похож на ген свободноживущей альфапротеобактерии Tistrella mobilis: 38 % идентичности при менее чем 28 % с другими бактериями и эукариотами, а также три общие вставки или выпадения [4]. Сами авторы при этом указали, что ближайшую группу альфапротеобактерий определить не удаётся [4].
Дальнейшие работы только усилили осторожность. В 2018 году Й. Мартейн и соавторы, добавив геномы, собранные из океанских метагеномов, получили, что митохондрии отделились раньше всех известных альфапротеобактерий [43]. В 2022 году С. Муньос-Гомес и соавторы на большем наборе данных и с более сложной моделью эволюции белков поместили митохондрии рядом с альфапротеобактериями как сестринскую к ним группу [44]. Эти результаты сближаются в главном: по новым данным митохондрии не происходят от риккетсий, а их ближайший родственник среди известных бактерий пока не определён.
Здесь важно понимать ограничение. Сходство одного гена или порядка генов не доказывает родства: перенос генов и разная скорость эволюции могут исказить картину. Поэтому якобиды дают ценные сведения о том, как был устроен геном предка, но не указывают прямо на его современных родственников.
15. Интересные факты
- Ровно 100 генов. У андалузии больше всего митохондриальных генов среди эукариот: 66 белковых и 34 гена РНК [4][26].
- Род в честь ботаника. Род Jakoba, а по нему и вся группа названы в честь Якобы Рёйнен, описавшей первого представителя в 1938 году [8].
- Гены, которые есть только здесь. У всех остальных эукариот гены rpl35 и cox15 находятся в ядре, а у андалузии — в митохондрии [4].
- Два способа транспорта. У реклиномонады рядом работают бактериальный транспортёр SecY и эукариотная система TIM [36].
- Плазмида в геноме. Линейная митохондриальная ДНК Jakoba libera, по-видимому, получила концевые участки от подвижной плазмиды [4].
- Геном вырос в четыре раза. У морамонаса из пустыни генов столько же, сколько у других якобид, а митохондриальная ДНК в три-четыре раза длиннее [2].
- Гость с подоконника. Новый род Celatomonas описан в 2026 году из покупного грунта для комнатных растений [19].
- Рибосома сложнее, чем кажется. Почти бактериальная рРНК андалузии соседствует с 75 рибосомными белками, как у животных и грибов [39].
- Чужой тубулин. Ген α-тубулина андалузии, судя по всему, получен горизонтальным переносом из линии дипломонад [41].
- Метод не видит всего. При изучении стигиелл культуры выявили 60 % видов, а средовые последовательности — 80 %; часть видов нашлась только одним из способов [5].
16. Частые вопросы
Якобиды — предки митохондрий?
Нет. Предком митохондрий была бактерия, а якобиды — эукариоты, у которых митохондрии уже есть. Их митохондриальная ДНК просто сохранила больше черт бактериального предка.
Значит, якобиды — самые древние эукариоты?
Нет. Все современные эукариоты одинаково далеки во времени от общего предка. Положение корня древа спорно, но даже самая ранняя ветвь не означает самый древний организм: её современные представители эволюционировали столько же времени, сколько и все остальные [6][21]. Более того, якобиды прошли и собственную эволюцию: в их геномах есть линейная ДНК, редактирование тРНК и раздутые участки [4][2].
Почему тогда их гены так похожи на бактериальные?
Эволюция разных частей генома идёт с разной скоростью. В линии якобид митохондриальные гены чаще оставались на месте и меняли порядок реже, чем у животных. Причина такого различия точно неизвестна, но то же видно и внутри других групп: число генов в митохондриях меняется очень неравномерно [25].
Опасны ли якобиды?
Нет. Это свободноживущие жгутиконосцы, питающиеся бактериями и другими мелкими частицами [2]. Сведений о том, что они вызывают болезни, нет.
Можно ли их увидеть самому?
Клетки размером 3–15 мкм различимы в обычный световой микроскоп при большом увеличении, но отличить якобиду от других мелких жгутиконосцев без специальной подготовки трудно. Лопасть на жгутике и строение бороздки исследуют с помощью электронного микроскопа.
Если в митохондрии есть своя ДНК, может ли она жить отдельно от клетки?
Нет. Даже у андалузии, чей митохондриальный геном богаче всех, он кодирует только около 7 % белков митохондрии. Остальные 864 предсказанных белка приходят из цитозоля и закодированы в ядре [26].
17. Что пока не решено
- Роль бактериальной РНК-полимеразы. Ген сигма-субъединицы rpoD есть, но как именно идёт транскрипция в митохондриях якобид и какие участки служат промоторами, известно мало [4].
- Откуда взялся фаговый фермент. В ядерном геноме андалузии его следов нет. Был ли он у общего предка эукариот, неизвестно [26][31].
- Зачем нужна укороченная тмРНК. Участка, похожего на мРНК, в ней, по-видимому, нет, поэтому бактериальный механизм к ней прямо не подходит [35].
- Работают ли участки Шайна — Дальгарно. Вывод о них сделан по последовательностям [4].
- Положение офирины и корень древа. Поддержка сестринского положения офирины умеренная [18], а положение корня эукариот остаётся спорным [6][21].
- Ближайший родственник предка митохондрий. Среди известных бактерий он пока не определён [4][43][44].
- Реальное разнообразие. Описано мало видов, а в почвах и морских осадках найдено много неизвестных линий [5][19].
18. Что нужно знать для ЕГЭ
Якобид в школьной программе нет, но на их примере хорошо видны проверяемые положения о клетке и эволюции.
- Доказательства симбиотического происхождения митохондрий. Две мембраны, собственная ДНК, собственные рибосомы и синтез части белков, деление независимо от деления клетки, родство генов с генами альфапротеобактерий.
- Митохондрии — полуавтономные органоиды. Большинство их белков закодировано в ядре и синтезируется в цитозоле. У человека в митохондриальной ДНК только 37 генов.
- РНК-полимеразы и трансляция. Транскрипция — синтез РНК на матрице ДНК, её ведёт РНК-полимераза. Трансляция идёт на рибосомах. Эти процессы есть и в митохондриях.
- Опероны. Группа генов с общей мРНК — типичная черта прокариот. Поэтому оперонный порядок генов в митохондрии — довод в пользу её бактериального происхождения.
- Сходство ещё не родство. Внешнее сходство организмов может быть результатом конвергенции, поэтому родство устанавливают по совокупности признаков и генов.
Ловушки. 1) «Митохондрия синтезирует все свои белки сама» — неверно. 2) «ДНК митохондрий всегда кольцевая» — неверно: у Jakoba libera она линейная. Для экзамена достаточно формулировки «ДНК митохондрий у большинства эукариот кольцевая». 3) «Организм с бактериальными чертами митохондрии — примитивный» — неверно: такой организм не древнее других. 4) «Все эукариоты дышат кислородом» — неверно: стигиеллы живут почти без него.
19. Для олимпиад
Сравнение ветвей
| Признак | Андалузия | Реклиномонада | Стигиелла | Человек |
|---|---|---|---|---|
| Кислородное дыхание | есть | есть | органоид типа гидрогеносомы | есть |
| РНК-полимераза митохондрии | бактериальная, гены в мтДНК | бактериальная, гены в мтДНК | — | фаговая, ген в ядре |
| Число генов в мтДНК | 100 | 97 | — | 37 |
| Местообитание | почва | пресная вода | морские осадки с низким содержанием кислорода | — |
Как рассуждать о древности признака
На олимпиадах часто спрашивают, как отличить исходный признак от приобретённого. Ход рассуждения можно показать на примере РНК-полимеразы.
- Признак есть у бактерий и якобид, а у остальных эукариот его нет. Самое простое объяснение: он был у предка и потерян в других линиях.
- Альтернатива: якобиды получили гены от бактерии горизонтальным переносом. Её нужно проверить: гены должны группироваться на дереве с альфапротеобактериями и встраиваться в общий порядок митохондриальных генов. Именно поэтому важны порядок генов и сравнение с другими геномами [4].
- Наконец, с отсутствием признака нужно обращаться осторожно. Отсутствие гена в ядерном геноме андалузии говорит о том, что мы его не нашли, а не о том, что его никогда не было [26].
Количественные ориентиры
- Реклиномонада: 69 034 п. н., 97 генов [1]; андалузия: 100 генов, из них 66 белковых [4][26].
- Человек: 16 569 п. н., 37 генов, 13 белков [13].
- Морамонас: больше 264 тыс. п. н. [2]; большинство якобид: 65–100 тыс. п. н. [4].
- Белки митохондрии андалузии: 864 из ядра и 66 из мтДНК [26]; рибосомные белки митохондрии: не менее 31 и 44 [39].
- Ядерный геном андалузии: около 20 млн п. н. [26].
- Риккетсия Rickettsia prowazekii: 1 111 523 п. н., 834 белковых гена [24].
Задания с разбором
Задание 1
Ученик написал: «Якобиды — самые примитивные и древние эукариоты, потому что у них в митохондриях много бактериальных генов». Найдите ошибку и исправьте утверждение.
Ответ
Современные организмы прошли от общего предка эукариот одно и то же время, поэтому нельзя назвать одну группу более древней. Много бактериальных генов говорит только о том, что в этой линии митохондриальная ДНК потеряла меньше генов. Верно: «Митохондриальная ДНК якобид сохранила больше исходных бактериальных черт, чем у других изученных эукариот». При этом якобиды имеют и собственные новые черты, например линейную ДНК у Jakoba libera.
Задание 2
Назовите не менее четырёх признаков митохондриальной ДНК якобид, которые сближают её с геномами бактерий.
Ответ
Гены многосубъединичной бактериальной РНК-полимеразы rpoA–rpoD; гены рибосомных белков, идущие группами в порядке бактериальных оперонов; потенциальные последовательности Шайна — Дальгарно перед генами; ген РНК РНКазы P; ген тмРНК ssrA; бактериальные гены транспорта белков secY, tatA, tatC (набор зависит от вида).
Задание 3
В митохондрии человека работает РНК-полимераза, похожая на фермент бактериофагов, а не на бактериальный. Опровергает ли это симбиотическое происхождение митохондрий? Ответ поясните, используя данные о якобидах.
Ответ
Не опровергает. У якобид в митохондриальной ДНК записаны гены бактериальной РНК-полимеразы, и это показывает, что бактериальный фермент действительно мог быть исходным. Значит, в других линиях он был заменён ферментом другого происхождения. Симбиотическая теория не требует, чтобы все компоненты митохондрии оставались бактериальными: за миллиарды лет часть их заменилась.
Задание 4
В митохондрии андалузии работает 930 белков, из них 66 закодированы в её собственной ДНК. Какая это доля? Какой вывод можно сделать о способности митохондрии существовать самостоятельно?
Ответ
66 / 930 · 100 % = 7,1 %. Даже у эукариота с самым богатым митохондриальным геномом подавляющее большинство белков митохондрии закодировано в ядре и синтезируется в цитозоле, поэтому самостоятельно митохондрия существовать не может.
Задание 5
Конец малой рибосомной РНК митохондрий якобид имеет последовательность 5′-CUCCUUU-3′. Запишите комплементарный ей участок мРНК в направлении 5′→3′. Какую роль он может выполнять?
Ответ
5′-AAAGGAG-3′. Комплементарную цепь записывают в обратном порядке: прочитаем рРНК от 3′-конца (UUUCCUC) и заменим каждый нуклеотид парным: A, A, A, G, G, A, G. Такой участок перед стартовым кодоном может служить последовательностью Шайна — Дальгарно: спариваясь с концом рРНК, он помогает рибосоме найти начало гена.
Задание 6
Митохондриальная ДНК реклиномонады содержит 97 генов на 69 034 пары нуклеотидов, а человека — 37 генов на 16 569 пар нуклеотидов. Рассчитайте среднее число пар нуклеотидов на один ген. Верно ли, что геном с большим числом генов всегда плотнее упакован?
Ответ
Реклиномонада: 69 034 / 97 ≈ 712 п. н. на ген. Человек: 16 569 / 37 ≈ 448 п. н. на ген. Неверно: у человека генов меньше, но на единицу длины их приходится больше. Причина в составе генов: среди генов человека больше доля коротких генов тРНК, а у реклиномонады много длинных белковых генов.
Задание 7
Митохондриальный геном морамонаса длиннее 264 тысяч пар нуклеотидов, а кодирующая часть примерно равна той, что у других якобид. Примем её за 60 тысяч пар нуклеотидов. Какая доля генома приходится на некодирующую ДНК? Во сколько раз этот геном больше генома реклиномонады (69 тысяч)?
Ответ
Некодирующая часть: 264 − 60 = 204 тысячи пар нуклеотидов; доля 204 / 264 · 100 % ≈ 77 %. Размер больше в 264 / 69 ≈ 3,8 раза. Число генов при этом почти не изменилось, значит, геном вырос не за счёт новых функций. Похожие «раздутые» геномы известны у митохондрий растений.
Задание 8
Обилие дополнительных белков в митохондриальных рибосомах животных долго объясняли упрощением рРНК. Как данные об андалузии заставили пересмотреть это объяснение?
Ответ
Рассуждали так: рРНК животных сильно укорочена, поэтому новые белки нужны, чтобы восполнить утраченные участки и поддержать структуру. Но у андалузии рРНК почти бактериальная, а белков в рибосоме столько же, сколько у животных и грибов: не менее 31 и 44. Значит, белки появились не в ответ на упрощение рРНК. По-видимому, они возникли ещё у общего предка эукариот, а рРНК потом менялась в разных линиях по-разному.
Задание 9
При изучении анаэробных якобид нашли не менее десяти видов. Культивирование выявило 60 % из них, а анализ средовых последовательностей — 80 %. Сколько видов выявлено обоими методами? Сколько только культивированием и сколько только по средовым последовательностям? Какой общий вывод можно сделать?
Ответ
Культивированием найдено 6 видов, средовым анализом — 8. Обоими методами: 6 + 8 − 10 = 4 вида. Только культивированием: 6 − 4 = 2; только по средовым последовательностям: 8 − 4 = 4. Это совпадает с данными работы: два вида не обнаружены средовыми методами, четыре не выделены в культуру. Вывод: ни один метод не показывает всего разнообразия, и их нужно сочетать.
Задание 10
Известно, что белки дыхательной цепи, закодированные в митохондриальной ДНК, как правило, гидрофобны. Как это может объяснять сохранение части генов в митохондрии?
Ответ
Сильно гидрофобный белок трудно синтезировать в цитозоле и провести через мембраны митохондрии, потому что он склонен к слипанию и встраиванию в ненужные мембраны. Если же ген остаётся в митохондрии, белок синтезируется рядом с местом работы и сразу встраивается во внутреннюю мембрану.
Задание 11 (олимпиадное)
Клетка якобиды гонит воду со скоростью около 50 мкм/с, характерный размер клетки 10 мкм, кинематическая вязкость воды 10−6 м²/с. (а) Рассчитайте число Рейнольдса. (б) Для сравнения рассчитайте его для пловца, плывущего со скоростью 1 м/с при длине тела 2 м. (в) Что будет с током воды, если жгутик внезапно остановится? Как это связано со строением заднего жгутика?
Ответ
(а) Re = vL/ν = (50·10−6 · 10·10−6) / 10−6 = 5·10−4.
(б) Re = (1 · 2) / 10−6 = 2·106; различие составляет примерно девять с половиной порядков.
(в) При столь малом Re силы инерции ничтожны, поэтому движение воды прекратится практически сразу. Ток нужно поддерживать непрерывно, а толкать воду тонкой нитью малоэффективно. Лопасть увеличивает поверхность жгутика, и за счёт этого он может перемещать больше воды через бороздку.
Задание 12 (олимпиадное)
Гены rpoA–rpoD обнаружены в митохондриальной ДНК всех изученных якобид и офирины, но не обнаружены в митохондриях других эукариот. Ген rpl35 в митохондриях есть только у андалузии, а у всех остальных эукариот находится в ядре. (а) Какое из двух событий — приобретение или сохранение — лучше объясняет каждый из этих фактов? (б) Какие наблюдения могли бы показать, что гены rpoA–rpoD получены якобидами горизонтальным переносом от бактерий уже после возникновения митохондрии? (в) Почему отсутствие гена фаговой РНК-полимеразы у андалузии не доказывает, что его не было у общего предка эукариот?
Ответ
(а) Оба факта лучше объясняются сохранением: иначе пришлось бы допустить, что один и тот же ген независимо вернулся из ядра в митохондрию или был приобретён заново. У андалузии, самой ранней ветви якобид, rpl35, вероятно, просто остался на прежнем месте, а в других линиях перешёл в ядро.
(б) На дереве такие гены группировались бы с какой-то конкретной группой бактерий, далёкой от предка митохондрий, отличались бы по составу нуклеотидов и использованию кодонов от остальных митохондриальных генов и располагались бы вне их обычных групп.
(в) Ген мог быть утрачен в линии якобид полностью, не оставив следов. Отсутствие гена у одного организма не говорит о его предках, для этого нужны данные о других линиях и положении корня древа.
Литература
- Lang B. F., Burger G., O’Kelly C. J. et al. An ancestral mitochondrial DNA resembling a eubacterial genome in miniature // Nature. 1997. Vol. 387. P. 493–497.
- Strassert J. F., Tikhonenkov D. V., Pombert J.-F. et al. Moramonas marocensis gen. nov., sp. nov.: a jakobid flagellate isolated from desert soil with a bacteria-like, but bloated mitochondrial genome // Open Biology. 2016. Vol. 6. Art. 150239.
- Simpson A. G. B., Patterson D. J. On core jakobids and excavate taxa: the ultrastructure of Jakoba incarcerata // Journal of Eukaryotic Microbiology. 2001. Vol. 48. P. 480–492.
- Burger G., Gray M. W., Forget L., Lang B. F. Strikingly bacteria-like and gene-rich mitochondrial genomes throughout jakobid protists // Genome Biology and Evolution. 2013. Vol. 5. P. 418–438.
- Pánek T., Táborský P., Pachiadaki M. G. et al. Combined culture-based and culture-independent approaches provide insights into diversity of jakobids, an extremely plesiomorphic eukaryotic lineage // Frontiers in Microbiology. 2015. Vol. 6. Art. 1288.
- Williamson K., Eme L., Baños H. et al. A robustly rooted tree of eukaryotes reveals their excavate ancestry // Nature. 2025. Vol. 640. P. 974–981.
- Hampl V., Hug L., Leigh J. W. et al. Phylogenomic analyses support the monophyly of Excavata and resolve relationships among eukaryotic “supergroups” // PNAS. 2009. Vol. 106. P. 3859–3864.
- Patterson D. J. Jakoba libera (Ruinen, 1938), a heterotrophic flagellate from deep oceanic sediments // Journal of the Marine Biological Association of the United Kingdom. 1990. Vol. 70. P. 381–393.
- Flavin M., Nerad T. A. Reclinomonas americana n. g., n. sp., a new freshwater heterotrophic flagellate // Journal of Eukaryotic Microbiology. 1993. Vol. 40. P. 172–179.
- O’Kelly C. J. The jakobid flagellates: structural features of Jakoba, Reclinomonas and Histiona and implications for the early diversification of eukaryotes // Journal of Eukaryotic Microbiology. 1993. Vol. 40. P. 627–636.
- Nass S., Nass M. M. K. Intramitochondrial fibers with DNA characteristics. II. Enzymatic and other hydrolytic treatments // Journal of Cell Biology. 1963. Vol. 19. P. 613–629.
- Martin W. F. Physiology, anaerobes, and the origin of mitosing cells 50 years on // Journal of Theoretical Biology. 2017. Vol. 434. P. 2–10.
- Anderson S., Bankier A. T., Barrell B. G. et al. Sequence and organization of the human mitochondrial genome // Nature. 1981. Vol. 290. P. 457–465.
- Gray M. W., Lang B. F., Cedergren R. et al. Genome structure and gene content in protist mitochondrial DNAs // Nucleic Acids Research. 1998. Vol. 26. P. 865–878.
- Lara E., Chatzinotas A., Simpson A. G. B. Andalucia (n. gen.) — the deepest branch within jakobids (Jakobida; Excavata), based on morphological and molecular study of a new flagellate from soil // Journal of Eukaryotic Microbiology. 2006. Vol. 53. P. 112–120.
- Purcell E. M. Life at low Reynolds number // American Journal of Physics. 1977. Vol. 45. P. 3–11.
- Prokina K. I., Yubuki N., Galindo L. J. et al. A deeply branching lineage in Heterolobosea (Discoba) with multiflagellated and multigrooved life stages // Journal of Eukaryotic Microbiology. 2025. Vol. 72. Art. e70037.
- Yabuki A., Gyaltshen Y., Heiss A. A. et al. Ophirina amphinema n. gen., n. sp., a new deeply branching discobid with phylogenetic affinity to jakobids // Scientific Reports. 2018. Vol. 8. Art. 16219.
- Sozonov G. A., Borodina A., Gerasimova E. A., Tikhonenkov D. V. A novel jakobid genus from the soil of an indoor plant // European Journal of Protistology. 2026. Vol. 105. Art. 126221.
- Burki F., Roger A. J., Brown M. W., Simpson A. G. B. The new tree of eukaryotes // Trends in Ecology & Evolution. 2020. Vol. 35. P. 43–55.
- Al Jewari C., Baldauf S. L. An excavate root for the eukaryote tree of life // Science Advances. 2023. Vol. 9. Art. eade4973.
- Archibald J. M., O’Kelly C. J., Doolittle W. F. The chaperonin genes of jakobid and jakobid-like flagellates: implications for eukaryotic evolution // Molecular Biology and Evolution. 2002. Vol. 19. P. 422–431.
- Roger A. J., Muñoz-Gómez S. A., Kamikawa R. The origin and diversification of mitochondria // Current Biology. 2017. Vol. 27. P. R1177–R1192.
- Andersson S. G. E., Zomorodipour A., Andersson J. O. et al. The genome sequence of Rickettsia prowazekii and the origin of mitochondria // Nature. 1998. Vol. 396. P. 133–140.
- Adams K. L., Palmer J. D. Evolution of mitochondrial gene content: gene loss and transfer to the nucleus // Molecular Phylogenetics and Evolution. 2003. Vol. 29. P. 380–395.
- Gray M. W., Burger G., Derelle R. et al. The draft nuclear genome sequence and predicted mitochondrial proteome of Andalucia godoyi, a protist with the most gene-rich and bacteria-like mitochondrial genome // BMC Biology. 2020. Vol. 18. Art. 22.
- Johnston I. G., Williams B. P. Evolutionary inference across eukaryotes identifies specific pressures favor mitochondrial gene retention // Cell Systems. 2016. Vol. 2. P. 101–111.
- Allen J. F. Why chloroplasts and mitochondria retain their own genomes and genetic systems: colocation for redox regulation of gene expression // PNAS. 2015. Vol. 112. P. 10231–10238.
- Kamikawa R., Kolisko M., Nishimura Y. et al. Gene content evolution in discobid mitochondria deduced from the phylogenetic position and complete mitochondrial genome of Tsukubamonas globosa // Genome Biology and Evolution. 2014. Vol. 6. P. 306–315.
- Holzmann J., Frank P., Löffler E. et al. RNase P without RNA: identification and functional reconstitution of the human mitochondrial tRNA processing enzyme // Cell. 2008. Vol. 135. P. 462–474.
- Shutt T. E., Gray M. W. Bacteriophage origins of mitochondrial replication and transcription proteins // Trends in Genetics. 2006. Vol. 22. P. 90–95.
- Shine J., Dalgarno L. The 3′-terminal sequence of Escherichia coli 16S ribosomal RNA: complementarity to nonsense triplets and ribosome binding sites // PNAS. 1974. Vol. 71. P. 1342–1346.
- Guerrier-Takada C., Gardiner K., Marsh T. et al. The RNA moiety of ribonuclease P is the catalytic subunit of the enzyme // Cell. 1983. Vol. 35. P. 849–857.
- Keiler K. C., Waller P. R. H., Sauer R. T. Role of a peptide tagging system in degradation of proteins synthesized from damaged messenger RNA // Science. 1996. Vol. 271. P. 990–993.
- Jacob Y., Seif E., Paquet P.-O., Lang B. F. Loss of the mRNA-like region in mitochondrial tmRNAs of jakobids // RNA. 2004. Vol. 10. P. 605–614.
- Tong J., Dolezal P., Selkrig J. et al. Ancestral and derived protein import pathways in the mitochondrion of Reclinomonas americana // Molecular Biology and Evolution. 2011. Vol. 28. P. 1581–1591.
- Leigh J., Lang B. F. Mitochondrial 3′ tRNA editing in the jakobid Seculamonas ecuadoriensis: a novel mechanism and implications for tRNA processing // RNA. 2004. Vol. 10. P. 615–621.
- Sloan D. B., Alverson A. J., Chuckalovcak J. P. et al. Rapid evolution of enormous, multichromosomal genomes in flowering plant mitochondria with exceptionally high mutation rates // PLoS Biology. 2012. Vol. 10. Art. e1001241.
- Valach M., Gonzalez Alcazar J. A., Sarrasin M. et al. An unexpectedly complex mitoribosome in Andalucia godoyi, a protist with the most bacteria-like mitochondrial genome // Molecular Biology and Evolution. 2021. Vol. 38. P. 788–804.
- Rath S., Sharma R., Gupta R. et al. MitoCarta3.0: an updated mitochondrial proteome now with sub-organelle localization and pathway annotations // Nucleic Acids Research. 2021. Vol. 49. P. D1541–D1547.
- Simpson A. G. B., Perley T. A., Lara E. Lateral transfer of the gene for a widely used marker, α-tubulin, indicated by a multi-protein study of the phylogenetic position of Andalucia (Excavata) // Molecular Phylogenetics and Evolution. 2008. Vol. 47. P. 366–377.
- Leger M. M., Eme L., Hug L. A., Roger A. J. Novel hydrogenosomes in the microaerophilic jakobid Stygiella incarcerata // Molecular Biology and Evolution. 2016. Vol. 33. P. 2318–2336.
- Martijn J., Vosseberg J., Guy L. et al. Deep mitochondrial origin outside the sampled alphaproteobacteria // Nature. 2018. Vol. 557. P. 101–105.
- Muñoz-Gómez S. A., Susko E., Williamson K. et al. Site-and-branch-heterogeneous analyses of an expanded dataset favour mitochondria as sister to known Alphaproteobacteria // Nature Ecology & Evolution. 2022. Vol. 6. P. 253–262.
Обсуждение
Загружаем обсуждение…