
В 1943 г. итальянский микробиолог Сальвадор Лурия, эмигрировавший в США, смотрел, как его коллега выигрывает в игровом автомате на университетских танцах. Автомат большую часть времени ничего не давал, а изредка выплёвывал целую горсть монет. Лурия вдруг понял, как решить спор, мучивший микробиологов: возникают ли у бактерий мутации устойчивости к вирусу под действием самого вируса — или случайно, ещё до встречи с ним? Если случайно, то в разных культурах число устойчивых бактерий должно распределяться как выигрыши автомата: в большинстве — мало, а в редких — «джекпот». Вместе с физиком Максом Дельбрюком он поставил опыт, и ответ оказался однозначным: мутации возникают случайно и ненаправленно. Этот опыт — одна из основ того, что называют закономерностями мутационного процесса.
Это одиннадцатая статья серии «Изменчивость: генотип, среда и мутации» (предыдущая — «Причины мутаций: мутагены и их действие»). В ней разобраны закономерности мутационного процесса — частота мутаций, их ненаправленность и повторяемость, соотношение прямых и обратных мутаций, мутационное давление, — опыты Лурии — Дельбрюка и Ледербергов, системы репарации ДНК и их нарушения, мутаторы и антимутаторы, эволюционная роль мутаций и спор об «адаптивных» мутациях.
- 1. Закономерности мутационного процесса: обзор
- 2. Как менялись представления о мутационном процессе
- 3. Частота мутаций
- 4. Почему одни гены мутируют чаще других
- 5. Мутации, возраст и пол
- 6. Сколько мутаций возникает в человечестве
- 7. Опыт Лурии и Дельбрюка: мутации ненаправленны
- 8. Что опыт Лурии и Дельбрюка дал медицине
- 9. Как измеряют частоту мутаций
- 10. Метод отпечатков Ледербергов
- 11. Репарация ДНК: почему мутаций так мало
- 12. Почему ДНК-полимераза ошибается так редко
- 13. Репарация у разных организмов
- 14. Эксцизионная репарация шаг за шагом
- 15. Когда репарация не работает
- 16. Белок p53 — «страж генома»
- 17. Теломеры и нестабильность хромосом
- 18. Когда клетка мутирует нарочно: иммунитет
- 19. Парадокс Пето: почему киты не болеют раком чаще мышей
- 20. Мутаторы и антимутаторы у бактерий
- 21. Прямые и обратные мутации, мутационное давление
- 22. Равновесие мутаций и отбора
- 23. Почему отбор меняет популяцию быстрее мутаций
- 24. Четвериков: популяции «впитывают» мутации
- 25. Мутационный процесс в эволюции
- 26. Почему частота мутаций у разных видов разная
- 27. Мутации у вирусов: «облако» вариантов и предел ошибок
- 28. Соотношение разных типов мутаций
- 29. Спор об «адаптивных» мутациях
- 30. Повторяемость мутаций
- 31. Мутации и модификации: сравнение закономерностей
- 32. Как живые организмы защищены от мутаций: сводка
- 33. Итог: что важно знать
- 34. Частые ошибки
- 35. Интересные факты
- 36. Частые вопросы
- 37. ЕГЭ
- 38. Для олимпиад
- 39. Задания с разбором
- Литература
1. Закономерности мутационного процесса: обзор
Мутации возникают случайно, но в целом мутационный процесс подчиняется определённым закономерностям. Основные из них:
- Мутации возникают постоянно во всех организмах, в каждом поколении, в любых генах.
- Каждый ген мутирует с определённой, характерной для него частотой, которая у разных генов и разных организмов различается в сотни и тысячи раз.
- Мутации ненаправленны: они не возникают «в ответ» на условия как приспособление; условия лишь отбирают уже возникшие мутации.
- Мутации повторяемы: одни и те же мутации возникают снова и снова у разных особей.
- Прямые мутации происходят чаще обратных.
- Большинство мутаций рецессивны и вредны или нейтральны; полезные мутации редки.
- Частота мутаций зависит от внешних и внутренних факторов: мутагенов, работы систем репарации, возраста, состояния организма, генотипа (гены-мутаторы).
- Сходные мутации возникают у родственных видов — эту закономерность Н. И. Вавилов сформулировал как закон гомологических рядов (о нём — следующая статья серии).
Рассмотрим эти закономерности подробнее, а затем — механизмы, которые сдерживают мутационный процесс.
2. Как менялись представления о мутационном процессе
- 1901–1903 гг. Де Фриз формулирует мутационную теорию: мутации внезапны, ненаправленны, повторяемы.
- 1910–1920-е гг. Морган и его ученики находят у дрозофилы сотни мутаций, оценивают их частоты и показывают, что разные гены мутируют с разной частотой.
- 1926 г. Четвериков показывает, что природные популяции насыщены рецессивными мутациями.
- 1927 г. Мёллер доказывает, что частоту мутаций можно повысить облучением.
- 1943 г. Лурия и Дельбрюк доказывают случайность мутаций у бактерий; в 1952 г. Ледерберги подтверждают это методом отпечатков.
- 1953 г. После открытия двойной спирали Уотсон и Крик предлагают объяснение спонтанных замен через таутомерные формы оснований.
- 1960–1970-е гг. Открыты системы репарации: фотореактивация, эксцизионная репарация, мисматч-репарация; Кимура формулирует нейтральную теорию.
- 1990-е гг. Найдены гены репарации человека, мутации в которых вызывают наследственные формы рака.
- XXI век. Чтение геномов родителей и детей позволяет прямо сосчитать новые мутации; анализ геномов опухолей выявляет «подписи» мутагенных процессов.
3. Частота мутаций
Частоту мутаций выражают числом мутаций на ген (или на нуклеотид) за поколение или за одно деление клетки.
| Организм | Частота на нуклеотид за поколение (деление) | Число новых мутаций на геном за поколение |
|---|---|---|
| РНК-вирусы (грипп, ВИЧ) | 10−4–10−5 | около 0,1–1 |
| кишечная палочка | около 2 × 10⁻¹⁰ | около 0,001 |
| пекарские дрожжи | около 2 × 10⁻¹⁰ | около 0,003 |
| дрозофила | около 3 × 10⁻⁹ | около 1 |
| человек | около 1,2 × 10⁻⁸ | около 60–70 |
Интересную закономерность обнаружил американский генетик Джон Дрейк: у микроорганизмов с геномом из ДНК число мутаций на весь геном за одно копирование примерно одинаково — около 0,003, хотя размеры геномов различаются в тысячи раз [1]. Получается, что чем больше геном, тем точнее его копирование. Это наводит на мысль, что частота мутаций сама регулируется отбором: слишком частые мутации губительны, а слишком редкие замедляют приспособление, и поддержание сверхточного копирования требует затрат.
Для отдельных генов частоту мутаций у человека оценивают по частоте новых случаев доминантных болезней. Она обычно составляет 10−5–10−6 на ген за поколение, то есть один мутантный аллель на 100 тысяч — миллион гамет. Крупные гены с большим числом мишеней (ген дистрофина, ген нейрофиброматоза) мутируют чаще.
Почему у человека за поколение так много новых мутаций по сравнению с бактерией? Не потому, что копирование ДНК у человека хуже: на одно деление оно даже точнее. Но геном человека в тысячу раз больше генома кишечной палочки, а между зиготой и сперматозоидом отца проходят сотни делений клеток — и каждое добавляет свои ошибки.
4. Почему одни гены мутируют чаще других
Частота мутаций у разных генов человека различается в сотни раз. На это влияют несколько факторов.
- Размер гена. Чем длиннее ген, тем больше в нём мест, где мутация может нарушить работу. Ген дистрофина длиной около 2,2 миллиона пар нуклеотидов — один из самых часто мутирующих: около трети случаев миодистрофии Дюшенна вызвано новыми мутациями.
- Состав последовательности. Участки CG, повторы, места, склонные к образованию необычных структур ДНК, мутируют чаще.
- Окружение в геноме. Гены в плотно упакованном хроматине и в участках, реплицирующихся поздно, накапливают больше мутаций; активно работающие гены лучше защищены репарацией, сопряжённой с транскрипцией.
- Повторы вокруг гена. Если ген окружён похожими повторами, в нём чаще происходят делеции и дупликации из-за неравного кроссинговера.
Поэтому у каждого гена своя, характерная частота мутаций — одна из закономерностей мутационного процесса, сформулированная ещё по опытам с дрозофилой.
5. Мутации, возраст и пол
Частота мутаций зависит от возраста и пола родителя, и для разных типов мутаций — по-разному.
- Генные мутации и возраст отца. Клетки-предшественники сперматозоидов делятся непрерывно, к 20 годам — около 150 раз, к 40 годам — около 600 раз. Каждое деление добавляет ошибки, поэтому число новых генных мутаций у ребёнка растёт примерно на 1–2 с каждым годом возраста отца. Некоторые доминантные болезни (ахондроплазия, синдром Апера) у детей пожилых отцов встречаются заметно чаще.
- Геномные мутации и возраст матери. Яйцеклетки формируются до рождения девочки и долго находятся в профазе мейоза; с возрастом растёт частота нерасхождения хромосом и трисомий.
- Соматические мутации накапливаются в клетках всех тканей с возрастом — примерно линейно, по несколько десятков в год на клетку, что связывают со старением и ростом частоты рака.
У растений картина иная: у них нет рано обособленной зародышевой линии, и половые клетки образуются из клеток побега, которые до этого долго делились. Можно было бы ожидать, что у старых деревьев в верхних ветвях накопится масса мутаций. Однако чтение геномов разных ветвей одного дуба возрастом более 200 лет выявило лишь десятки различий: клетки верхушечной меристемы делятся редко и, по-видимому, хорошо защищены.
6. Сколько мутаций возникает в человечестве
Каждый ребёнок несёт около 70 новых мутаций. На Земле ежегодно рождается около 130 миллионов детей — значит, за один год в человечестве возникает порядка 1010 новых мутаций. Геном человека содержит около 3 × 10⁹ пар нуклеотидов, и на каждую позицию возможны три замены. Получается, что почти каждая возможная одиночная замена нуклеотида в геноме человека возникает заново где-то в мире каждый год, а многие — по нескольку раз.
Этот расчёт объясняет, почему одни и те же наследственные болезни, вызванные новыми мутациями, появляются по всему миру с постоянной частотой, и почему в больших популяциях мутационный процесс не ограничивает приспособление: материал для отбора есть всегда. Ограничивает другое — то, что полезные мутации редки, а судьба каждой новой мутации в первых поколениях во многом определяется случаем.
7. Опыт Лурии и Дельбрюка: мутации ненаправленны
В 1930-е гг. многие микробиологи считали, что бактерии «приспосабливаются» к неблагоприятным условиям: если на культуру кишечной палочки подействовать бактериофагом, часть бактерий «научится» сопротивляться и станет устойчивой. Другие полагали, что устойчивые мутанты возникают случайно, ещё до встречи с фагом, а фаг лишь убивает чувствительных и оставляет устойчивых. Как различить эти гипотезы?
Лурия и Дельбрюк рассуждали так [2]. Возьмём много маленьких культур, каждую из немногих клеток, и вырастим их до одинаковой численности. Затем каждую целиком высеем на чашку с фагом и подсчитаем устойчивые колонии.
- Если устойчивость возникает под действием фага при встрече с ним, у каждой клетки одинаковая небольшая вероятность «приспособиться». Тогда число устойчивых колоний во всех культурах будет примерно одинаковым, с небольшим случайным разбросом (дисперсия примерно равна среднему).
- Если мутации возникают случайно во время роста культуры, до встречи с фагом, всё зависит от того, когда возникла мутация. Если рано — мутантная клетка успеет дать много потомков, и в этой культуре окажутся сотни устойчивых бактерий («джекпот»). Если поздно — единицы. Если вовсе не возникла — ноль. Разброс между культурами будет огромным, во много раз больше среднего.
Опыт показал именно второй результат: в большинстве культур было 0–10 устойчивых колоний, а в нескольких — сотни. Для контроля из одной большой культуры брали много проб: в них число устойчивых было примерно одинаковым — значит, огромный разброс между независимыми культурами не был ошибкой метода. Отсюда следовал вывод: мутации устойчивости возникают случайно, до контакта с фагом, а фаг лишь отбирает их. Лурия и Дельбрюк, а также Альфред Херши получили за работы по генетике бактерий и фагов Нобелевскую премию 1969 г.
Вывод опыта. Мутации ненаправленны: они возникают случайно и независимо от того, полезны ли они в данный момент. Среда (фаг, антибиотик) не вызывает нужную мутацию, а отбирает уже существующих мутантов. Это та же логика, что лежит в основе дарвиновского естественного отбора.
8. Что опыт Лурии и Дельбрюка дал медицине
Вывод о том, что устойчивые мутанты возникают заранее и случайно, имеет прямые медицинские следствия. Если частота мутации устойчивости к одному лекарству 10−8, а в организме больного 109–1010 бактерий (как в каверне лёгкого при туберкулёзе), то в нём почти наверняка уже есть десятки устойчивых клеток — и лечение одним препаратом их отберёт. Но вероятность того, что одна клетка заранее устойчива сразу к двум препаратам с независимыми механизмами, — 10−8 × 10−8 = 10−16, а к трём — ещё меньше. Поэтому туберкулёз лечат одновременно несколькими препаратами, а ВИЧ-инфекцию — комбинацией из трёх лекарств. Такая комбинированная терапия резко снижает шанс появления устойчивости.
Тот же принцип применяют в онкологии: опухоль из миллиардов клеток почти наверняка содержит клетки, устойчивые к одному препарату, поэтому часто используют сочетания лекарств с разными мишенями. И та же логика объясняет, почему нельзя прерывать курс антибиотиков: уцелевшие клетки — с большей вероятностью устойчивые — дадут новую популяцию.
9. Как измеряют частоту мутаций
- По фенотипу в больших выборках. Подсчитывают особей с новым признаком среди потомков родителей без него — например, частоту новых случаев доминантных болезней у людей или мутантов по определённым генам у мышей (проект «мегамышь» Расселлов).
- Флуктуационный тест Лурии и Дельбрюка у микроорганизмов: по распределению числа мутантов в параллельных культурах рассчитывают частоту мутаций на клетку за деление.
- Линии накопления мутаций. Много линий дрозофил, нематод или дрожжей десятки и сотни поколений размножают через узкое «горлышко» (по одной особи), чтобы отбор почти не действовал, а затем читают их геномы и считают накопившиеся мутации.
- Чтение геномов семей «отец — мать — ребёнок». Сравнивают ДНК ребёнка с ДНК родителей и находят варианты, которых нет у родителей. Так установлена частота у человека — около 1,2 × 10⁻⁸ на нуклеотид за поколение.
- Сравнение видов. По различиям в ДНК видов и времени их расхождения по палеонтологическим данным оценивают скорость накопления нейтральных замен, равную частоте мутаций.
10. Метод отпечатков Ледербергов
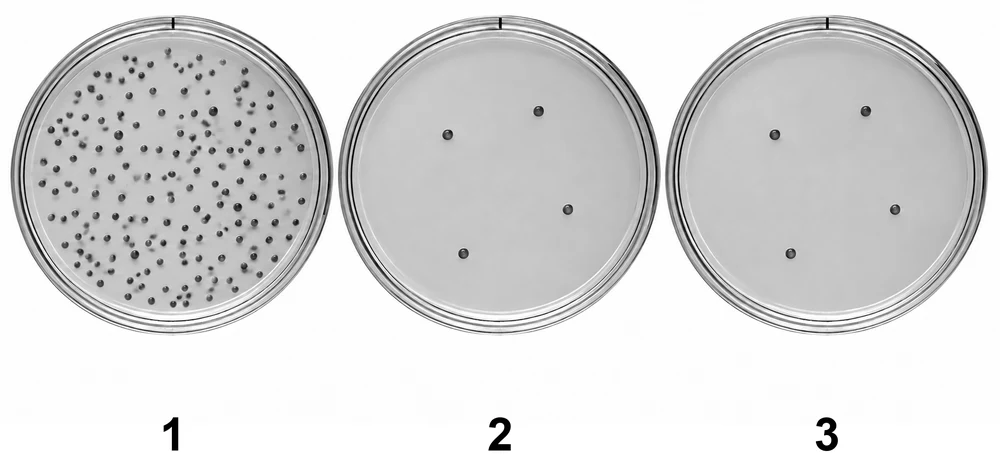
Расчёт Лурии и Дельбрюка был статистическим. В 1952 г. Джошуа и Эстер Ледерберг придумали опыт, позволяющий увидеть то же самое прямо [3]. На чашку с обычной средой (на рисунке чашка 1) высевали много бактерий и получали сотни колоний. Затем к поверхности чашки прикладывали стерильный бархат, натянутый на круглую колодку: ворсинки захватывали клетки от каждой колонии. Этим «штампом» делали отпечатки на чашки со средой, содержащей бактериофаг или антибиотик (чашки 2 и 3), строго сохраняя ориентацию по метке на краю.
На отпечатках вырастали лишь немногие колонии — устойчивые мутанты. И на всех отпечатках они вырастали в одних и тех же местах, соответствующих определённым колониям исходной чашки. Значит, устойчивые клетки уже были в этих колониях исходной чашки, никогда не встречавшейся с фагом или антибиотиком. Более того, если взять с исходной чашки клетки именно из этих колоний и вырастить их, все они оказывались устойчивыми, хотя ни разу не контактировали с антибиотиком. Это наглядно доказало, что мутации устойчивости возникают до отбора.
Опыт Ледербергов убедил даже тех, кого не убедила статистика Лурии и Дельбрюка: в нём не нужно было ничего считать — достаточно было посмотреть на чашки. Метод отпечатков стал одним из главных инструментов микробной генетики: им отбирают ауксотрофных мутантов, которые не растут на среде без определённого вещества, — для этого с полной среды делают отпечаток на бедную и ищут колонии, которые на бедной не выросли.
11. Репарация ДНК: почему мутаций так мало
ДНК постоянно повреждается — в каждой клетке человека ежедневно десятки тысяч повреждений [4]. Если бы все они превращались в мутации, жизнь была бы невозможна. Мутаций мало потому, что в клетках работают системы репарации — исправления повреждений ДНК. В 2015 г. Нобелевскую премию по химии получили Томас Линдаль, Пол Модрич и Азиз Санджар — за изучение механизмов репарации.
Репарация ДНК — совокупность процессов, с помощью которых клетка обнаруживает и исправляет повреждения и ошибки в молекуле ДНК.
Почти все системы репарации используют одно свойство ДНК — её двуцепочечность. Если повреждена одна цепь, правильную информацию можно восстановить по комплементарной цепи. Главные системы репарации:
| Система | Что исправляет | Как работает |
|---|---|---|
| корректорская активность ДНК-полимеразы | ошибки при самой репликации | полимераза «оглядывается» на только что вставленный нуклеотид; если он не комплементарен, удаляет его и вставляет правильный |
| прямая репарация | некоторые повреждения оснований (например, метильные группы на гуанине, пиримидиновые димеры у многих организмов) | фермент просто «снимает» повреждение, не разрезая ДНК; у бактерий и растений фермент фотолиаза расщепляет пиримидиновые димеры, используя энергию видимого света (фотореактивация) |
| эксцизионная репарация оснований | отдельные повреждённые основания (урацил в ДНК, окисленный гуанин) | фермент вырезает повреждённое основание, затем удаляется нуклеотид, и брешь заполняется по комплементарной цепи |
| эксцизионная репарация нуклеотидов | крупные повреждения, искажающие спираль (пиримидиновые димеры, аддукты бензпирена) | вырезается участок цепи из 25–30 нуклеотидов вокруг повреждения, брешь заполняется ДНК-полимеразой и сшивается лигазой |
| репарация неспаренных оснований (мисматч-репарация) | ошибки репликации, пропущенные полимеразой | белки находят неправильную пару, определяют новую цепь и вырезают в ней участок с ошибкой |
| репарация двунитевых разрывов | разрывы обеих цепей | гомологичная рекомбинация (по образцу сестринской хроматиды — точно) или негомологичное соединение концов (быстро, но с потерей нескольких нуклеотидов) |
Многоступенчатая защита даёт поразительную точность. ДНК-полимераза сама ошибается примерно один раз на 104–105 нуклеотидов; корректорская активность снижает частоту ошибок в 100–1000 раз, мисматч-репарация — ещё в 100–1000 раз [5]. Итог — около одной ошибки на 109–1010 нуклеотидов за деление.
Как мисматч-репарация «узнаёт», какая цепь новая, а какая старая, — ведь в неправильной паре оба нуклеотида нормальные? У кишечной палочки старая цепь помечена метильными группами на аденине, а новая какое-то время остаётся неметилированной: ферменты репарации вырезают нуклеотид из неметилированной цепи. У эукариот признаком новой цепи служат разрывы между фрагментами, которые ещё не сшиты.
12. Почему ДНК-полимераза ошибается так редко
Точность ДНК-полимеразы обеспечивается несколькими механизмами. Во-первых, комплементарные пары А–Т и Г–Ц имеют одинаковую форму и размер, а неправильные пары (например, Г–Т) искажены; активный центр полимеразы «примеряет» входящий нуклеотид к матрице и встраивает его быстро, только если пара правильной формы. Во-вторых, неправильно встроенный нуклеотид плохо сидит на конце цепи, полимераза «спотыкается», конец цепи переходит в соседний активный центр, где фермент-экзонуклеаза отрезает ошибочный нуклеотид (корректорская активность). В-третьих, после репликации работает мисматч-репарация.
Важна и точность «снабжения». Если в клетке нарушен баланс четырёх нуклеотидов (например, одного слишком много), полимераза чаще встраивает избыточный нуклеотид неправильно. Поэтому ферменты синтеза нуклеотидов строго регулируются, а некоторые противоопухолевые и противовирусные препараты действуют, нарушая этот баланс.
У РНК-вирусов (вирус гриппа, ВИЧ) фермент копирования не имеет корректорской активности, и частота ошибок в тысячи раз выше, чем у клеточных ДНК-полимераз. У коронавирусов есть собственная экзонуклеаза-корректор, поэтому они мутируют медленнее других РНК-вирусов, хотя их геном — один из самых длинных среди РНК-вирусов.
13. Репарация у разных организмов
Основные системы репарации есть у всех клеточных организмов — от бактерий до человека, и белки, выполняющие их, родственны. Это говорит о том, что репарация возникла очень рано в истории жизни. Но есть и различия.
- Фотолиаза, расщепляющая пиримидиновые димеры за счёт энергии видимого света, есть у бактерий, грибов, растений и многих животных (рыб, земноводных, сумчатых), но отсутствует у плацентарных млекопитающих, в том числе у человека. У нас пиримидиновые димеры удаляются только эксцизионной репарацией. Возможно, предки млекопитающих, ведя ночной образ жизни, утратили ненужный фермент.
- Растения, неподвижные и постоянно освещённые солнцем, имеют особенно мощные системы защиты от ультрафиолета; в сухих семенах ДНК медленно повреждается, и при прорастании в первые часы клетки интенсивно её репарируют, прежде чем начать деления. Старые семена прорастают хуже отчасти из-за накопленных повреждений.
- Экстремофилы — бактерии горячих источников, радиоустойчивые бактерии и тихоходки — сочетают мощную репарацию с защитой ДНК белками и накоплением антиоксидантов.
- Митохондрии имеют ограниченный набор систем репарации, а их ДНК расположена рядом с дыхательной цепью, источником активных форм кислорода; поэтому митохондриальная ДНК человека мутирует примерно в 10 раз чаще ядерной.
14. Эксцизионная репарация шаг за шагом
Удобно разобрать, как исправляется пиримидиновый димер, образованный ультрафиолетом.
- Белки-«разведчики» двигаются вдоль ДНК и находят место, где спираль искажена.
- Ферменты-нуклеазы надрезают повреждённую цепь с двух сторон от димера.
- Участок цепи с повреждением (у человека около 25–30 нуклеотидов) удаляется, вторая цепь остаётся целой.
- ДНК-полимераза достраивает брешь, используя неповреждённую цепь как матрицу, по принципу комплементарности.
- ДНК-лигаза сшивает новый участок с остальной цепью.
Если повреждение находится в работающем гене, его исправляют особенно быстро: РНК-полимераза, наткнувшись на повреждение, останавливается и привлекает ферменты репарации. Это защищает прежде всего те гены, которые клетка использует.
Отсюда понятно, почему у больных пигментной ксеродермой, о которой рассказано в предыдущей статье серии, не работает именно этот механизм: мутации в генах белков-«разведчиков» или нуклеаз оставляют пиримидиновые димеры неисправленными.
15. Когда репарация не работает
Гены белков репарации — сами объекты мутаций. Если такой ген сломан, частота мутаций во всех остальных генах резко растёт. Такие гены называют генами-мутаторами, а мутации в них — мутаторными.
- Наследственный неполипозный рак толстой кишки (синдром Линча). Мутации генов мисматч-репарации (MSH2, MLH1 и др.). В 1993 г. американские исследователи обнаружили, что человеческий ген MSH2 — родственник бактериального гена мутатора, и что именно он нарушен у многих семей с наследственным раком кишки [6]. Носители получают одну мутантную копию от родителя; если вторая копия сломается в клетке кишки, клетка быстро накапливает тысячи ошибок, особенно в коротких повторах ДНК, и превращается в опухолевую. Риск рака кишки у носителей многократно повышен и, по разным оценкам, достигает 50 % и более за жизнь.
- Пигментная ксеродерма — нарушение эксцизионной репарации нуклеотидов; множественные опухоли кожи от солнца.
- Мутации генов BRCA1 и BRCA2 нарушают точную репарацию двунитевых разрывов гомологичной рекомбинацией; повышают риск рака молочной железы и яичников.
- Синдромы Вернера, Блума, анемия Фанкони — разные нарушения репарации и поддержания ДНК; характерны преждевременное старение, нестабильность хромосом, повышенный риск опухолей.
- Атаксия-телеангиэктазия — нарушение белка, «замечающего» двунитевые разрывы и останавливающего деление повреждённой клетки; больные чрезвычайно чувствительны к ионизирующему излучению.
Знание о нарушениях репарации используют в лечении. Опухоли с нарушенной мисматч-репарацией несут так много мутантных белков, что иммунная система хорошо их «видит», и такие опухоли особенно хорошо отвечают на иммунотерапию. Опухоли с поломанными BRCA1/BRCA2 уязвимы к препаратам, выключающим другой путь репарации: клетка, лишённая двух путей сразу, погибает, а нормальные клетки с работающим BRCA выживают.
16. Белок p53 — «страж генома»
Репарация исправляет повреждения, но что делать клетке, если повреждений слишком много? Здесь вступает в работу белок p53, который называют «стражем генома». В нормальной клетке его мало: он постоянно разрушается. При повреждении ДНК белки-«датчики» (в том числе белок, нарушенный при атаксии-телеангиэктазии) активируют p53, и он накапливается в ядре.
- p53 включает гены, останавливающие клеточный цикл: клетка не вступает в синтез ДНК или в митоз, пока повреждения не исправлены. Это не даёт повреждениям превратиться в мутации при копировании.
- p53 включает гены репарации.
- Если повреждения слишком тяжелы, p53 запускает апоптоз — программируемую гибель клетки. Лучше потерять одну клетку, чем получить клетку с множеством мутаций, способную стать опухолевой.
Ген p53 (TP53) мутирован примерно в половине всех опухолей человека: без «стража» клетки продолжают делиться с повреждённой ДНК и быстро накапливают мутации. Люди, унаследовавшие одну мутантную копию TP53 (синдром Ли — Фраумени), болеют разными видами рака уже в молодом возрасте. Подробнее о гибели клеток — в статье «Апоптоз: программируемая гибель клетки».
17. Теломеры и нестабильность хромосом
Концы линейных хромосом защищены теломерами — повторами ТТАГГГ, связанными с особыми белками. Без защиты клетка принимала бы концы хромосом за двунитевые разрывы и «чинила» бы их, сшивая хромосомы друг с другом. При каждом делении соматической клетки теломеры немного укорачиваются; когда они становятся слишком короткими, клетка перестаёт делиться. Если же она продолжает делиться (например, из-за поломки p53), незащищённые концы хромосом сливаются, образуются дицентрические хромосомы, которые рвутся в митозе, и возникает лавина хромосомных перестроек. Такой «кризис теломер» — один из путей возникновения хромосомной нестабильности в опухолях. Подробнее — в статье о теломерах и теломеразе.
18. Когда клетка мутирует нарочно: иммунитет
Есть клетки, в которых мутации полезны и даже «запланированы». Когда B-лимфоцит встречает чужой антиген и начинает делиться, в его генах антител работает фермент AID (активационно-индуцированная цитидиндезаминаза). Он превращает цитозины в урацил прямо в генах вариабельных участков антител, и при репарации и копировании там возникают мутации с частотой примерно в миллион раз выше обычной. Это соматический гипермутагенез. Среди лимфоцитов с мутациями отбираются те, чьи антитела крепче связывают антиген, — и за несколько недель иммунный ответ становится всё точнее.
Этот процесс — дарвиновская эволюция внутри организма: случайные мутации плюс отбор. Мутации здесь направлены только в том смысле, что сосредоточены в определённых генах; какие именно замены возникнут, по-прежнему случайно. Иногда фермент AID ошибочно действует на другие гены, и это одна из причин лимфом.
19. Парадокс Пето: почему киты не болеют раком чаще мышей
Если каждая клетка с некоторой вероятностью может получить мутации, ведущие к раку, то крупные долгоживущие животные с огромным числом клеток должны болеть раком гораздо чаще мелких. Синий кит содержит в тысячи раз больше клеток, чем человек, и живёт около 90 лет, — а раком болеет не чаще. Это противоречие назвали парадоксом Пето — по имени английского эпидемиолога Ричарда Пето, обратившего на него внимание в 1970-е гг.
Объяснение — в отборе на более эффективную защиту. У слонов около 20 копий гена p53, и их клетки при повреждении ДНК быстрее погибают. У гренландского кита, живущего больше 200 лет, найдены особенности генов репарации и контроля деления клеток. У голых землекопов — необычные молекулы межклеточного вещества, препятствующие неконтролируемому делению. Эволюция крупного размера и долгой жизни требовала усиления защиты генома.
20. Мутаторы и антимутаторы у бактерий
У бактерий, кроме мутаторов, известны и антимутаторы — мутации, повышающие точность репликации (например, в гене ДНК-полимеразы). Почему же бактерии не стали все сверхточными? Потому что повышенная точность требует затрат: полимераза-антимутатор работает медленнее и тратит больше энергии на «перепроверку».
В природе и в больницах среди бактерий нередко встречаются штаммы-мутаторы с частотой мутаций в 100–1000 раз выше обычной. При хронических инфекциях лёгких у больных муковисцидозом синегнойная палочка часто становится мутатором: в условиях постоянного действия антибиотиков и иммунитета повышенная частота мутаций позволяет ей быстрее находить устойчивые варианты. Но в спокойных условиях мутаторы проигрывают: они накапливают слишком много вредных мутаций. Так отбор поддерживает «компромиссную» частоту мутаций, зависящую от условий. В лабораторных опытах популяции кишечной палочки, долго живущие в неизменной среде, нередко сами превращаются в мутаторов, а затем снова «чинят» репарацию.
То же наблюдается в опухолях: клетки-мутаторы быстрее приобретают мутации, позволяющие опухоли расти и уходить от лечения, но и сами чаще гибнут от вредных мутаций.
21. Прямые и обратные мутации, мутационное давление
Прямые мутации (от аллеля дикого типа к мутантному, A → a) происходят чаще обратных (a → A), обычно в 10 и более раз. Причина простая: испортить работающий ген можно сотнями разных замен, вставок и выпадений, а восстановить — обычно лишь одним точным изменением (или редкой компенсирующей мутацией).
Постоянное возникновение мутаций создаёт мутационное давление — тенденцию к изменению частот аллелей в популяции в направлении мутаций. Если бы в популяции действовали только мутации, частота аллеля a росла бы, пока не установилось бы равновесие, при котором число прямых и обратных мутаций уравнивается. Но мутационное давление очень слабое: при частоте мутаций 10−5 на ген за поколение потребовались бы сотни тысяч поколений, чтобы заметно изменить частоту аллеля. Поэтому мутационный процесс сам по себе изменяет генофонд медленно, а главное его значение — поставлять материал, частоты которого меняют отбор и дрейф генов.
22. Равновесие мутаций и отбора
Вредные мутации постоянно возникают и постоянно удаляются отбором. В итоге в популяции устанавливается равновесная частота вредного аллеля, при которой число новых мутантных аллелей, возникающих за поколение, равно числу аллелей, удаляемых отбором.
- Для доминантной вредной мутации, сильно снижающей плодовитость, почти каждый носитель — результат новой мутации; равновесная частота аллеля примерно равна частоте мутации μ (точнее, μ / s, где s — снижение приспособленности).
- Для рецессивной вредной мутации отбор действует только на гомозигот, которые редки, и аллель накапливается в гетерозиготах; равновесная частота аллеля q ≈ √(μ / s). При μ = 10−6 и полной летальности гомозигот q ≈ 0,001, а гетерозиготных носителей около 0,2 %.
Поэтому популяции несут большой запас скрытых рецессивных мутаций — генетический груз. Каждый человек, по современным оценкам, гетерозиготен по нескольким мутациям, которые в гомозиготе вызвали бы тяжёлую болезнь или гибель зародыша.
23. Почему отбор меняет популяцию быстрее мутаций
Сравним скорости. Пусть частота мутации A → a 10−5 за поколение. Если начальная частота аллеля a равна нулю, то только за счёт мутаций она достигнет 1 % через примерно тысячу поколений, а 50 % — через десятки тысяч. Теперь пусть аллель a уже есть в популяции с частотой 1 % и даёт носителям преимущество в 10 % (s = 0,1). Отбор поднимет его частоту до 50 % за несколько десятков поколений, а до 99 % — примерно за сотню-другую.
Поэтому эволюция «на коротких отрезках» — например, распространение устойчивости к инсектицидам у насекомых за десятилетия — идёт в основном за счёт отбора уже имеющихся аллелей или редких полезных мутаций, возникших у отдельных особей и быстро подхваченных отбором. Мутации поставляют материал, отбор — скорость и направление.
24. Четвериков: популяции «впитывают» мутации
В 1926 г. советский генетик Сергей Сергеевич Четвериков опубликовал работу «О некоторых моментах эволюционного процесса с точки зрения современной генетики» — одну из основ синтетической теории эволюции. Он предположил, что природные популяции, подобно губке, «впитывают» рецессивные мутации: в гетерозиготном состоянии они не проявляются и не отсекаются отбором, поэтому накапливаются. Ученики Четверикова проверили это на природных популяциях дрозофил, собранных под Москвой и на Кавказе: скрещивая мух «в себе» и выводя мутации в гомозиготное состояние, они обнаружили, что почти каждая муха несёт несколько скрытых рецессивных мутаций.
Отсюда два важных вывода. Во-первых, популяции обладают огромным скрытым резервом наследственной изменчивости. Во-вторых, при изменении условий часть этого резерва может стать полезной — и тогда отбору есть из чего выбирать, не дожидаясь новых мутаций. Этот «мобилизационный резерв», по выражению И. И. Шмальгаузена, объясняет, почему популяции могут быстро приспосабливаться.
25. Мутационный процесс в эволюции
Мутационный процесс — один из элементарных факторов эволюции. Его роль можно сформулировать так:
- мутации — единственный источник новых аллелей, первичный материал эволюции;
- мутационный процесс ненаправлен, поэтому сам по себе не создаёт приспособлений; направление эволюции задаёт естественный отбор;
- мутационное давление слабое: без отбора и дрейфа частоты аллелей менялись бы очень медленно;
- большинство мутаций, закрепившихся в эволюции на молекулярном уровне, нейтральны и распространились случайно (нейтральная теория Кимуры), но приспособительные признаки формируются отбором полезных мутаций;
- равномерность накопления нейтральных мутаций лежит в основе молекулярных часов.
Подробно элементарные факторы эволюции разобраны в статье «Элементарные факторы эволюции».
26. Почему частота мутаций у разных видов разная
Если мутации в основном вредны, почему отбор не снизил их частоту до нуля? Американский генетик Майкл Линч предложил объяснение, получившее название гипотезы «дрейфового барьера». Каждое дополнительное повышение точности репликации даёт организму всё меньший выигрыш: если мутаций и так мало, ещё немного меньше — почти незаметное преимущество. Когда это преимущество становится меньше, чем влияние случайных колебаний частот аллелей (дрейфа), отбор перестаёт его «замечать». В больших популяциях дрейф слабее, и отбор может довести точность до более высокого уровня. Поэтому у бактерий с огромными популяциями частота мутаций на нуклеотид ниже, чем у многоклеточных с небольшими популяциями, таких как человек.
Это объяснение согласуется с наблюдениями: частота мутаций на нуклеотид у разных видов обратно связана с эффективной численностью их популяций. Иными словами, не только мутации влияют на эволюцию, но и эволюция определяет частоту мутаций.
27. Мутации у вирусов: «облако» вариантов и предел ошибок
У РНК-вирусов частота мутаций так высока, что в организме заражённого человека вирус существует не как один генотип, а как «облако» близких вариантов — квазивид. Каждый новый вирусный геном отличается от родительского в среднем на одну-две замены. Это даёт вирусу огромную изменчивость: при появлении антител или лекарства в «облаке» почти наверняка уже есть устойчивые варианты, и отбор быстро делает их преобладающими.
Но и у вирусов частота мутаций не может расти бесконечно. Если ошибок становится слишком много, почти все потомки оказываются нежизнеспособными, и вирусная популяция вырождается — это «катастрофа ошибок». На этом принципе основаны некоторые противовирусные препараты: они встраиваются в вирусную РНК как аналоги нуклеотидов и вызывают при её копировании множество ошибок. Например, молнупиравир, применявшийся против COVID-19, увеличивает частоту мутаций вируса выше предела, совместимого с его размножением. Это пример того, как знание закономерностей мутационного процесса превращается в лекарство.
28. Соотношение разных типов мутаций
Среди спонтанных мутаций у человека на каждого ребёнка приходится:
- около 60–70 замен одиночных нуклеотидов;
- несколько коротких вставок и выпадений;
- примерно одна крупная структурная перестройка (делеция, дупликация, вставка мобильного элемента) на несколько детей;
- геномные мутации (анеуплоидии) — около 0,3 % живорождённых, но гораздо чаще среди зачатий и выкидышей.
Самые частые замены — транзиции Ц → Т в динуклеотидах CG. Около 80 % новых генных мутаций приходит от отца, а геномные мутации (трисомии) — в основном от матери. Это пример того, что разные типы мутаций имеют разные механизмы и, соответственно, разные закономерности.
29. Спор об «адаптивных» мутациях
Опыты Лурии — Дельбрюка и Ледербергов казались окончательным доказательством ненаправленности мутаций. Но в 1988 г. английский биолог Джон Кэрнс с коллегами опубликовал статью «Происхождение мутантов» [7], в которой сообщил, что у кишечной палочки, не способной расщеплять лактозу и посеянной на среду, где лактоза — единственный источник пищи, мутанты, способные её расщеплять, появляются через несколько дней после посева, причём чаще, чем другие мутации. Кэрнс задал провокационный вопрос: не могут ли клетки «выбирать», какие мутации совершать?
Многолетние исследования показали, что ламаркизма здесь нет, но картина сложнее, чем думали. В голодающих клетках включаются стрессовые реакции: синтезируются неточные ДНК-полимеразы, ослабевает мисматч-репарация, и частота мутаций во всём геноме временно повышается. Кроме того, в опыте Кэрнса мутантный ген находился на плазмиде с множеством копий, и его «полезные» изменения легче возникали и отбирались. Мутации по-прежнему не направлены на нужный ген, но клетки в стрессе «повышают ставки», увеличивая общую частоту мутаций. Это явление называют стресс-индуцированным мутагенезом. Оно важно для понимания того, как бактерии быстро приобретают устойчивость к антибиотикам и как опухоли уходят от химиотерапии.
30. Повторяемость мутаций
Одни и те же мутации возникают снова и снова. Это хорошо видно на людях: мутация ахондроплазии (одна и та же замена в гене FGFR3) возникает заново примерно у одного из 25–30 тысяч новорождённых по всему миру; мутации гемофилии, нейрофиброматоза, миодистрофии Дюшенна регулярно появляются в семьях, где их никогда не было. У дрозофилы мутации белых глаз, жёлтого тела, зачаточных крыльев возникали независимо в сотнях лабораторий.
Повторяемость имеет несколько причин: в генах есть «горячие точки» мутаций (например, динуклеотиды CG), число возможных изменений в каждом гене ограничено, а функционально важных — ещё меньше, и одни и те же нарушения функции дают одинаковые фенотипы. Повторяемость мутаций у родственных видов, у которых гены сходны, — основа закона гомологических рядов Вавилова, которому посвящена следующая статья серии.
Ещё одно проявление повторяемости — параллельная эволюция. Например, светлая окраска у пустынных мышей и у ящериц на белых песках возникала независимо в разных популяциях за счёт мутаций одних и тех же генов пигментации. Независимо возникшие мутации гена рецептора меланокортина MC1R дали рыжую или светлую окраску у самых разных животных — от мамонтов до людей.
31. Мутации и модификации: сравнение закономерностей
| Закономерность | Мутации | Модификации |
|---|---|---|
| как возникают | случайно, у отдельных особей, независимо от пользы | закономерно, у всех особей в данных условиях |
| связь с условиями | условия (мутагены) меняют лишь частоту, но не направление | условия определяют направление изменения |
| повторяемость | одни и те же мутации возникают повторно с характерной частотой | одинаковые условия всегда вызывают одинаковые модификации |
| статистика | редкие события, распределение «с джекпотами» (опыт Лурии — Дельбрюка) | непрерывная изменчивость, нормальное распределение (вариационная кривая) |
| судьба в поколениях | сохраняются, частоту меняют отбор и дрейф | не передаются, возникают заново |
32. Как живые организмы защищены от мутаций: сводка
Удобно собрать вместе все уровни защиты генетической информации — от молекулы до популяции.
- Двуцепочечность ДНК — информация записана дважды, и повреждённую цепь можно восстановить по второй.
- Точность ДНК-полимеразы и её корректорская активность.
- Системы репарации повреждений и ошибок.
- Вырожденность генетического кода — многие замены не меняют аминокислоту.
- Диплоидность — рецессивная мутация «прикрыта» нормальным аллелем.
- Дублирование генов — у многих генов есть «запасные» копии.
- Остановка деления и гибель клеток с сильно повреждённой ДНК (контрольные точки клеточного цикла, апоптоз, белок p53 — «страж генома»).
- Иммунный надзор — уничтожение клеток, несущих изменённые белки.
- Естественный отбор — удаление вредных мутаций из популяции.
Ни одна из этих систем не абсолютна, и это хорошо: полное отсутствие мутаций лишило бы виды возможности приспосабливаться к меняющимся условиям. Жизнь существует благодаря балансу между точностью передачи наследственной информации и её изменчивостью. Слишком точная передача сделала бы виды неспособными к приспособлению, слишком неточная — разрушила бы накопленную за миллионы лет информацию. Реальная частота мутаций у каждого вида — результат долгой эволюции этого компромисса.
33. Итог: что важно знать
- Закономерности мутационного процесса: мутации возникают постоянно; каждый ген мутирует с характерной частотой; мутации ненаправленны и повторяемы; прямые мутации чаще обратных; большинство мутаций рецессивны и вредны или нейтральны; частота мутаций зависит от мутагенов, репарации и генотипа; у родственных видов возникают сходные мутации.
- Частота мутаций у человека — около 1,2 × 10⁻⁸ на нуклеотид за поколение (60–70 новых мутаций на ребёнка), для отдельного гена — 10−5–10−6.
- Опыт Лурии и Дельбрюка (флуктуационный тест) и метод отпечатков Ледербергов доказали, что мутации возникают случайно, до действия отбирающего фактора.
- Репарация ДНК — исправление повреждений и ошибок: корректорская активность полимеразы, прямая репарация, эксцизионная репарация оснований и нуклеотидов, мисматч-репарация, репарация двунитевых разрывов.
- Нарушения репарации (пигментная ксеродерма, синдром Линча, мутации BRCA1/2) повышают частоту мутаций и риск опухолей; гены репарации — гены-мутаторы.
- Мутационное давление слабое; равновесие мутаций и отбора создаёт генетический груз; популяции насыщены рецессивными мутациями (Четвериков).
- Мутации — первичный материал эволюции; направление эволюции определяет отбор.
34. Частые ошибки
- «Бактерии становятся устойчивыми к антибиотику, потому что антибиотик вызывает у них нужную мутацию». Устойчивые мутанты возникают случайно ещё до встречи с антибиотиком; антибиотик их отбирает.
- «Репарация исправляет все повреждения». Не все: часть повреждений остаётся и при репликации превращается в мутации.
- «Обратные мутации происходят так же часто, как прямые». Значительно реже.
- «Мутационный процесс направляет эволюцию». Мутации ненаправленны и поставляют материал; направление задаёт естественный отбор.
- «У человека мутаций мало, потому что ДНК устойчива». ДНК повреждается десятки тысяч раз в сутки в каждой клетке; мутаций мало благодаря репарации.
- «Мисматч-репарация исправляет повреждения от ультрафиолета». Повреждения от ультрафиолета исправляет эксцизионная репарация нуклеотидов (и у многих организмов — фотолиаза); мисматч-репарация исправляет ошибки репликации.
- «Чем выше частота мутаций, тем лучше для вида». Слишком высокая частота мутаций накапливает вредные изменения; отбор поддерживает компромиссную частоту.
- «Опыт Кэрнса доказал направленные мутации». Последующие работы показали, что в стрессе повышается общая частота мутаций во всём геноме, а не направленная мутация нужного гена.
- «У человека есть фотолиаза, как у растений». У плацентарных млекопитающих фотолиазы нет; пиримидиновые димеры удаляются эксцизионной репарацией.
- «Курс антибиотиков можно прервать, как только стало лучше». Уцелевшие бактерии с большей вероятностью устойчивы, и прерывание лечения способствует их отбору.
35. Интересные факты
- Макс Дельбрюк, соавтор знаменитого опыта, был физиком-теоретиком, учеником Нильса Бора, и пришёл в биологию, заинтересовавшись природой гена; в 1935 г. он участвовал в работе с Тимофеевым-Ресовским о размере гена.
- Для метода отпечатков Эстер Ледерберг использовала обычный бархат, натянутый на деревянную колодку; простота метода сделала его стандартом всех микробиологических лабораторий мира.
- Томас Линдаль, один из нобелевских лауреатов 2015 г., начал изучать репарацию, когда заметил, что ДНК разрушается в пробирке гораздо быстрее, чем считалось: если бы клетки не исправляли повреждения, жизнь на основе ДНК была бы невозможна.
- Бактерия Deinococcus radiodurans собирает свой геном из сотен обломков после чудовищных доз облучения за несколько часов — используя то, что у неё несколько копий генома в каждой клетке.
- У слонов около 20 копий гена белка-«стража генома» p53 (у человека одна пара), и их клетки при повреждении ДНК гораздо охотнее погибают; возможно, поэтому слоны, несмотря на огромное число клеток, болеют раком реже, чем ожидалось бы.
- Тихоходки выдерживают облучение отчасти благодаря особому белку, который «укрывает» их ДНК; если ввести ген этого белка в клетки человека в культуре, они тоже становятся устойчивее к рентгеновским лучам.
- Голые землекопы живут больше 30 лет — рекорд для грызунов — и почти не болеют раком; у них обнаружены особенности репарации ДНК и контроля деления клеток.
- Сальвадор Лурия, эмигрировавший из Италии во время войны, — учитель Джеймса Уотсона: Уотсон защитил под его руководством диссертацию по бактериофагам, прежде чем отправиться в Кембридж и открыть с Криком двойную спираль.
- Митохондриальная ДНК человека мутирует примерно в 10 раз быстрее ядерной; поэтому по ней удобно прослеживать родство и миграции людей на сравнительно коротких отрезках времени.
- Гренландский кит — самое долгоживущее млекопитающее: возраст некоторых особей, определённый по аминокислотам хрусталика глаза, превышал 200 лет; в одном из добытых в XX веке китов нашли наконечник гарпуна, изготовленного в XIX веке.
- Самая высокая из известных частот мутаций у клеточных организмов — у некоторых паразитических бактерий-эндосимбионтов насекомых с крошечными популяциями внутри хозяина: их геномы быстро теряют гены и накапливают мутации — пример действия дрейфа при малой численности.
- Аллель, дающий устойчивость к стрептомицину у кишечной палочки, — замена одной аминокислоты в белке рибосомы S12; при отборе на чашках с антибиотиком такие мутанты находятся с частотой примерно 1 на 10 миллиардов клеток.
- Азиз Санджар, нобелевский лауреат 2015 г., вырос в турецкой деревне и начинал как врач; заинтересовавшись, как бактерии восстанавливаются после облучения ультрафиолетом, он выделил фермент фотолиазу и описал эксцизионную репарацию нуклеотидов.
36. Частые вопросы
Что доказал опыт Лурии и Дельбрюка?
Что мутации устойчивости у бактерий возникают случайно, ещё до контакта с бактериофагом, а не вызываются им. Число устойчивых бактерий в независимых культурах колебалось очень сильно — как и ожидается, если мутация в одних культурах возникла рано (и дала много потомков), в других поздно или вовсе не возникла.
Почему метод отпечатков Ледербергов называют прямым доказательством ненаправленности мутаций?
Устойчивые колонии на всех отпечатках появлялись в одних и тех же местах, а клетки соответствующих колоний исходной чашки, никогда не встречавшиеся с антибиотиком, оказывались устойчивыми. Значит, мутации возникли до действия антибиотика.
Почему у одних генов частота мутаций выше, чем у других?
Крупные гены дают больше «мишеней» для мутаций; в некоторых генах много горячих точек (CG-участков, повторов); одни участки генома лучше защищены репарацией, чем другие; ген может находиться в часто реплицируемом или активно транскрибируемом районе.
Как клетка определяет, какой нуклеотид в неправильной паре ошибочный?
Системы мисматч-репарации распознают новую цепь: у кишечной палочки она ещё не метилирована, у эукариот в ней есть несшитые разрывы между фрагментами. Ошибочным считается нуклеотид новой цепи, его вырезают и заменяют.
Почему нарушения репарации ведут к раку?
Без репарации повреждения ДНК чаще превращаются в мутации, и в клетках быстрее накапливаются мутации в протоонкогенах и генах-супрессорах опухолей, необходимые для злокачественного перерождения.
Что такое генетический груз?
Совокупность вредных мутаций, которые несёт популяция, в основном в гетерозиготном состоянии. Он поддерживается равновесием между постоянным возникновением мутаций и их удалением отбором.
Почему мутационный процесс считают элементарным фактором эволюции, если мутационное давление слабое?
Потому что он единственный создаёт новые аллели. Без мутаций отбору и дрейфу нечего было бы изменять. Слабость давления означает лишь, что сами мутации медленно меняют частоты аллелей; главную работу по изменению частот выполняют отбор и дрейф.
Что делает белок p53?
При повреждении ДНК он останавливает клеточный цикл, включает гены репарации, а если повреждения слишком велики — запускает апоптоз. Поэтому его называют «стражем генома»; мутации гена TP53 есть примерно в половине опухолей.
Почему вирусы гриппа и ВИЧ мутируют так быстро?
Их ферменты копирования РНК не имеют корректорской активности и ошибаются примерно один раз на 10 тысяч — 100 тысяч нуклеотидов; при огромной численности вирусов это даёт множество вариантов, среди которых отбор быстро находит устойчивые к иммунитету и лекарствам.
Почему отбор меняет частоты аллелей быстрее, чем мутации?
Мутационное давление очень слабое (порядка 10−5–10−6 на ген за поколение), а отбор при преимуществе даже в несколько процентов меняет частоту аллеля за десятки и сотни поколений.
Что такое соматический гипермутагенез?
Резкое повышение частоты мутаций в генах антител в делящихся B-лимфоцитах под действием фермента AID. Среди мутантных лимфоцитов отбираются те, чьи антитела лучше связывают антиген, — иммунный ответ становится точнее.
Почему крупные животные не болеют раком чаще мелких?
У них в ходе эволюции усилились механизмы защиты генома и контроля деления клеток: например, у слонов около 20 копий гена p53. Это противоречие ожиданиям называют парадоксом Пето.
Почему туберкулёз лечат сразу несколькими препаратами?
В организме больного миллиарды бактерий, и среди них почти наверняка есть мутанты, устойчивые к одному препарату. Вероятность, что одна бактерия устойчива сразу к двум-трём препаратам с разными механизмами, ничтожна, поэтому комбинация уничтожает всю популяцию и предотвращает отбор устойчивых.
Почему у детей пожилых отцов больше новых генных мутаций?
Клетки-предшественники сперматозоидов делятся всю жизнь, и к старшему возрасту проходят сотни делений; при каждом копировании ДНК возможны ошибки, поэтому их накапливается больше.
Почему у бактерий частота мутаций на нуклеотид ниже, чем у человека?
Возможное объяснение — гипотеза дрейфового барьера: в огромных популяциях бактерий отбор «замечает» даже малые преимущества более точного копирования и доводит точность до высокого уровня; в небольших популяциях многоклеточных случайный дрейф маскирует такие малые преимущества.
Почему миодистрофия Дюшенна так часто возникает у детей здоровых родителей?
Ген дистрофина — один из самых длинных генов человека, и в нём очень много мест, где мутация может нарушить его работу. Поэтому новые мутации в нём возникают часто: около трети случаев болезни — результат мутаций, возникших впервые.
37. ЕГЭ
Тема входит в элемент 3.4 кодификатора [8]: «…Причины возникновения мутаций. Мутагены и их влияние на организмы. Закономерности мутационного процесса…». Вопросы о закономерностях мутационного процесса и репарации встречаются в части 1 (свойства мутаций, примеры, частота) и в части 2 — при объяснении, почему бактерии становятся устойчивыми к антибиотикам, какую роль играет репарация в защите от мутаций, почему мутации служат материалом эволюции. Опыт с отпечатками встречается в заданиях с рисунками.
Что обязательно знать к экзамену
- Основные закономерности мутационного процесса.
- Ненаправленность мутаций и роль отбора; пример с устойчивостью бактерий.
- Что такое репарация и почему она возможна (двуцепочечность ДНК, комплементарность).
- Значение мутационного процесса для эволюции.
Разбор заданий части 1
Задание. Выберите три закономерности мутационного процесса: 1) мутации возникают ненаправленно; 2) мутации возникают у всех особей одновременно; 3) одни и те же мутации могут возникать повторно; 4) обратные мутации происходят чаще прямых; 5) частота мутаций зависит от действия мутагенов; 6) мутации всегда приспособительны. Ответ: 135.
Задание. Какое свойство ДНК позволяет клетке исправлять повреждения одной из цепей? Ответ: двуцепочечность (комплементарность цепей).
Разбор заданий части 2
Задание. Бактерии высеяли на чашку с обычной средой, получили сотни колоний и сделали отпечатки на две чашки со средой, содержащей антибиотик. На отпечатках выросли четыре колонии, расположенные одинаково. Объясните результат. Возникли ли мутации устойчивости под действием антибиотика? Какое значение имеет этот опыт для понимания эволюции?
Ответ. 1) Устойчивые колонии на обоих отпечатках выросли в одних и тех же местах, соответствующих определённым колониям исходной чашки. 2) Значит, устойчивые клетки уже были в этих колониях до контакта с антибиотиком: мутации возникли случайно и заранее, антибиотик лишь отобрал устойчивых. 3) Опыт доказывает ненаправленность мутаций и подтверждает, что приспособления возникают путём отбора случайных наследственных изменений.
Задание. У мухи дрозофилы в природной популяции почти каждая особь несёт несколько скрытых рецессивных мутаций. Как это доказали? Какое значение это имеет для эволюции? Ответ. 1) Мух из природной популяции скрещивали между родственниками (близкородственное скрещивание), и в потомстве проявлялись рецессивные мутации, переходившие в гомозиготное состояние. 2) Рецессивные мутации не проявляются в гетерозиготах и потому не отсекаются отбором, накапливаясь в популяции (вывод Четверикова). 3) Это скрытый резерв наследственной изменчивости, который при изменении условий может стать материалом для отбора.
Задание. Почему для лечения ВИЧ-инфекции применяют сочетание трёх препаратов, а не один? Ответ. 1) Вирус очень быстро мутирует, и в организме больного существуют миллиарды вирусных частиц с разными мутациями. 2) Среди них почти наверняка есть варианты, случайно устойчивые к одному препарату; при лечении одним препаратом они отбираются и размножаются. 3) Вероятность одновременной устойчивости к трём препаратам с разными механизмами ничтожна, поэтому комбинация подавляет вирус и предотвращает появление устойчивости.
Задание. Почему повреждения ДНК, возникающие ежедневно в каждой клетке десятками тысяч, редко приводят к мутациям? Ответ. 1) Большинство повреждений обнаруживается и исправляется системами репарации до репликации. 2) Репарация возможна благодаря двуцепочечности ДНК: повреждённый участок одной цепи восстанавливается по комплементарной цепи. 3) Ошибки репликации исправляются корректорской активностью ДНК-полимеразы и мисматч-репарацией. 4) Клетки с тяжёлыми повреждениями останавливают деление или погибают.
38. Для олимпиад
Флуктуационный тест количественно
Если устойчивость возникает в момент контакта с фагом с вероятностью p на клетку, а в культуре N клеток, число устойчивых в каждой культуре распределено по Пуассону со средним m = pN, и дисперсия равна среднему. Если мутации возникают при делениях до контакта, распределение «джекпотное»: дисперсия многократно больше среднего. В опытах Лурии и Дельбрюка среднее число устойчивых бактерий в культуре составляло около десятка, а дисперсия была в десятки раз больше среднего.
Простейший способ оценить частоту мутаций по такому опыту — метод нулевых культур. Доля культур без единого мутанта P0 = e−m, где m — среднее число мутационных событий в культуре. Если из 100 культур в 37 нет мутантов, m = −ln 0,37 ≈ 1. Если в каждой культуре в конце было 108 клеток, частота мутаций на клетку за деление ≈ m / N ≈ 10−8 (за время роста культуры произошло около N делений).
Почему мисматч-репарации нужна метка цепи
Пусть при репликации напротив А встал Ц (ошибка). Если клетка заменит Ц на Т, восстановится исходная пара А–Т. Если же заменит А на Г, получится пара Г–Ц — мутация закрепится. Без метки, указывающей, какая цепь новая, клетка в половине случаев выбирала бы неправильно, и репарация не уменьшала бы, а лишь «замораживала» ошибки. Поэтому у кишечной палочки мутанты по гену метилазы Dam (без метки) имеют повышенную частоту мутаций.
Равновесная частота рецессивной летали
При частоте мутаций μ = 4 × 10⁻⁶ на ген за поколение и полной летальности гомозигот равновесная частота аллеля q ≈ √μ = 2 × 10⁻³. Частота больных (гомозигот) q2 = 4 × 10⁻⁶: гибель этих гомозигот удаляет из популяции за поколение столько мутантных аллелей, сколько их возникает заново. Частота носителей 2q ≈ 0,4 % — каждый 250-й человек.
Сколько поколений нужно мутационному давлению
Если прямая мутация A → a идёт с частотой u, а обратная a → A — с частотой v, то частота аллеля a стремится к равновесию q* = u / (u + v). При u = 10−5 и v = 10−6 q* ≈ 0,91. Но приближение к равновесию очень медленное: отклонение от равновесия уменьшается в e раз за 1 / (u + v) ≈ 90 000 поколений. Для человека с поколением 25 лет это более двух миллионов лет. Поэтому реальные частоты аллелей определяются в основном отбором и дрейфом, а не балансом прямых и обратных мутаций.
Устойчивость к двум препаратам
Частота мутации устойчивости к препарату A у бактерии — 10−8, к препарату B — 10−7 на клетку. Сколько клеток в среднем устойчиво сразу к обоим в популяции из 1010? Если мутации независимы, доля двойных мутантов 10−15, и ожидаемое число таких клеток 1010 × 10−15 = 10−5, то есть практически ни одной. А устойчивых к A — около 100, к B — около 1000. При лечении одним препаратом A популяция восстановится из сотни устойчивых клеток; при одновременном лечении двумя — нет.
Скорость молекулярных часов
Если нейтральные мутации возникают с частотой μ на нуклеотид за поколение, то скорость их закрепления в эволюции (замены между видами) тоже равна μ — независимо от размера популяции: в большой популяции мутаций возникает больше, но каждая с меньшей вероятностью закрепляется (1/2N). Это следствие нейтральной теории Кимуры объясняет постоянство молекулярных часов. При μ ≈ 10−8 и поколении 25 лет различие между двумя видами за t лет составит около 2 × (t / 25) × 10−8 на нуклеотид. Для человека и шимпанзе (различие ~1,2 %) t ≈ 0,012 × 25 / (2 × 10⁻⁸) ≈ 15 миллионов лет — больше, чем по палеонтологическим данным; несоответствие объясняют более коротким поколением предков и неточностью оценок, и это предмет активных исследований.
39. Задания с разбором
Задание 1
Выберите три верных утверждения о мутационном процессе: 1) мутации возникают постоянно; 2) мутации направлены на приспособление; 3) прямые мутации происходят чаще обратных; 4) все мутации доминантны; 5) частота мутаций у разных генов различна; 6) мутации возникают только под действием мутагенов.
Ответ
1, 3, 5.
Задание 2
Что такое репарация ДНК? Благодаря какому свойству ДНК она возможна?
Ответ
Исправление повреждений и ошибок в ДНК; возможна благодаря двуцепочечности ДНК и комплементарности цепей: повреждённая цепь восстанавливается по неповреждённой.
Задание 3
Установите соответствие между системой репарации и тем, что она исправляет: А) мисматч-репарация; Б) эксцизионная репарация нуклеотидов; В) корректорская активность ДНК-полимеразы; Г) гомологичная рекомбинация. 1) ошибки, пропущенные при репликации; 2) пиримидиновые димеры; 3) неправильный нуклеотид в момент встраивания; 4) двунитевые разрывы.
Ответ
А1, Б2, В3, Г4.
Задание 4
Найдите ошибки и исправьте. 1) Мутации возникают ненаправленно. 2) Антибиотик вызывает у бактерий мутации устойчивости. 3) Репарация исправляет большинство повреждений ДНК. 4) Обратные мутации происходят чаще прямых. 5) Мутационный процесс — элементарный фактор эволюции.
Ответ
Ошибки в 2 и 4. 2) Мутации устойчивости возникают случайно до действия антибиотика, антибиотик их отбирает. 4) Обратные мутации происходят реже прямых.
Задание 5
Объясните логику опыта Лурии и Дельбрюка. Какой результат ожидался бы, если бы мутации вызывались фагом?
Ответ
Если бы фаг вызывал устойчивость, во всех культурах число устойчивых было бы примерно одинаковым (небольшой разброс). При случайных мутациях до контакта с фагом разброс огромный: в одних культурах мутация возникла рано и дала много потомков, в других — поздно или нет. Наблюдался большой разброс, что доказывает случайность мутаций.
Задание 6
Почему обратные мутации происходят реже прямых?
Ответ
Нарушить работу гена можно многими разными изменениями, а восстановить исходную последовательность — обычно только одним точным изменением.
Задание 7
Как наследственное нарушение репарации проявляется у людей? Приведите два примера.
Ответ
Повышенной частотой мутаций и опухолей: пигментная ксеродерма (нарушена эксцизионная репарация, множественный рак кожи от солнца), синдром Линча (нарушена мисматч-репарация, наследственный рак кишки), мутации BRCA1/2.
Задание 8
Почему популяции насыщены рецессивными мутациями?
Ответ
Рецессивные мутации не проявляются у гетерозигот и не отсекаются отбором; они постоянно возникают и накапливаются в гетерозиготном состоянии (вывод С. С. Четверикова).
Задание 9
Как проходит эксцизионная репарация нуклеотидов? Перечислите этапы.
Ответ
1) Обнаружение искажения спирали. 2) Надрезы цепи по обе стороны от повреждения. 3) Удаление повреждённого участка. 4) Достройка бреши ДНК-полимеразой по комплементарной цепи. 5) Сшивание лигазой.
Задание 10
Почему при частом применении одного антибиотика в больнице появляются устойчивые бактерии?
Ответ
Среди огромного числа бактерий всегда есть случайно возникшие устойчивые мутанты; антибиотик убивает чувствительных, и устойчивые размножаются (действует отбор). Гены устойчивости могут ещё и передаваться между бактериями на плазмидах.
Задание 11
Что такое гены-мутаторы?
Ответ
Гены, мутации которых повышают частоту мутаций во всём геноме; обычно это гены белков репарации или ДНК-полимеразы.
Задание 12
Почему мутационный процесс сам по себе не может создать приспособления?
Ответ
Мутации ненаправленны и чаще вредны или нейтральны; приспособление возникает, когда естественный отбор сохраняет и накапливает редкие полезные мутации.
Задание 13
Как метод отпечатков позволяет отобрать ауксотрофных мутантов?
Ответ
С чашки с полной средой делают отпечаток на чашку с минимальной средой; колонии, которые выросли на полной среде, но не выросли на минимальной, — ауксотрофы; их берут с исходной чашки.
Задание 14
Почему у человека за поколение возникает больше новых мутаций на геном, чем у бактерии за одно деление, хотя копирование ДНК у человека точнее?
Ответ
Геном человека в тысячу раз больше, а между зиготой и гаметой проходят десятки и сотни клеточных делений, каждое из которых добавляет ошибки.
Задание 15
Что изменится в частоте мутаций у бактерий, у которых не работает корректорская активность ДНК-полимеразы? Почему?
Ответ
Частота мутаций резко возрастёт (в сотни раз): неправильно вставленные нуклеотиды не будут сразу удаляться, и большую часть ошибок не сможет исправить одна мисматч-репарация.
Задание 16
Как связаны повторяемость мутаций и закон гомологических рядов Вавилова?
Ответ
У родственных видов сходные гены, поэтому в них возникают сходные мутации с похожими проявлениями; Вавилов обобщил это как закон гомологических рядов в наследственной изменчивости.
Задание 17
Объясните, почему клеткам выгодно не исправлять мутации абсолютно точно.
Ответ
Сверхточное копирование требует затрат энергии и времени; кроме того, некоторый уровень мутаций необходим популяции для приспособления к меняющимся условиям. Отбор поддерживает компромиссную частоту мутаций.
Задание 18
Сравните спонтанные мутации и повреждения ДНК. Всегда ли повреждение становится мутацией?
Ответ
Повреждение — химическое изменение ДНК; мутация — изменение последовательности, закреплённое при репликации. Повреждение становится мутацией, только если не исправлено до копирования ДНК или исправлено неправильно.
Задание 19 (олимпиадное)
Из 200 параллельных культур по 2 × 10⁸ клеток в 27 не нашлось ни одного мутанта. Оцените частоту мутаций на клетку за деление.
Ответ
P0 = 27 / 200 = 0,135; m = −ln 0,135 ≈ 2; частота ≈ 2 / (2 × 10⁸) = 10−8.
Задание 20 (олимпиадное)
Частота мутации гена, вызывающего рецессивную летальную болезнь, 10−6 за поколение. Оцените равновесную частоту аллеля и долю носителей в популяции.
Ответ
q ≈ √μ = 10−3; носители 2pq ≈ 2 × 10−3 = 0,2 % (каждый 500-й человек).
Литература
- Drake J. W. A constant rate of spontaneous mutation in DNA-based microbes // Proceedings of the National Academy of Sciences of the USA. 1991. Vol. 88. P. 7160–7164. DOI: 10.1073/pnas.88.16.7160.
- Luria S. E., Delbrück M. Mutations of bacteria from virus sensitivity to virus resistance // Genetics. 1943. Vol. 28. P. 491–511. DOI: 10.1093/genetics/28.6.491.
- Lederberg J., Lederberg E. M. Replica plating and indirect selection of bacterial mutants // Journal of Bacteriology. 1952. Vol. 63. P. 399–406. DOI: 10.1128/jb.63.3.399-406.1952.
- Lindahl T. Instability and decay of the primary structure of DNA // Nature. 1993. Vol. 362. P. 709–715. DOI: 10.1038/362709a0.
- Kunkel T. A. DNA replication fidelity // Journal of Biological Chemistry. 2004. Vol. 279. P. 16895–16898. DOI: 10.1074/jbc.R400006200.
- Fishel R., Lescoe M. K., Rao M. R. S. et al. The human mutator gene homolog MSH2 and its association with hereditary nonpolyposis colon cancer // Cell. 1993. Vol. 75. P. 1027–1038. DOI: 10.1016/0092-8674(93)90546-3.
- Cairns J., Overbaugh J., Miller S. The origin of mutants // Nature. 1988. Vol. 335. P. 142–145. DOI: 10.1038/335142a0.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…