
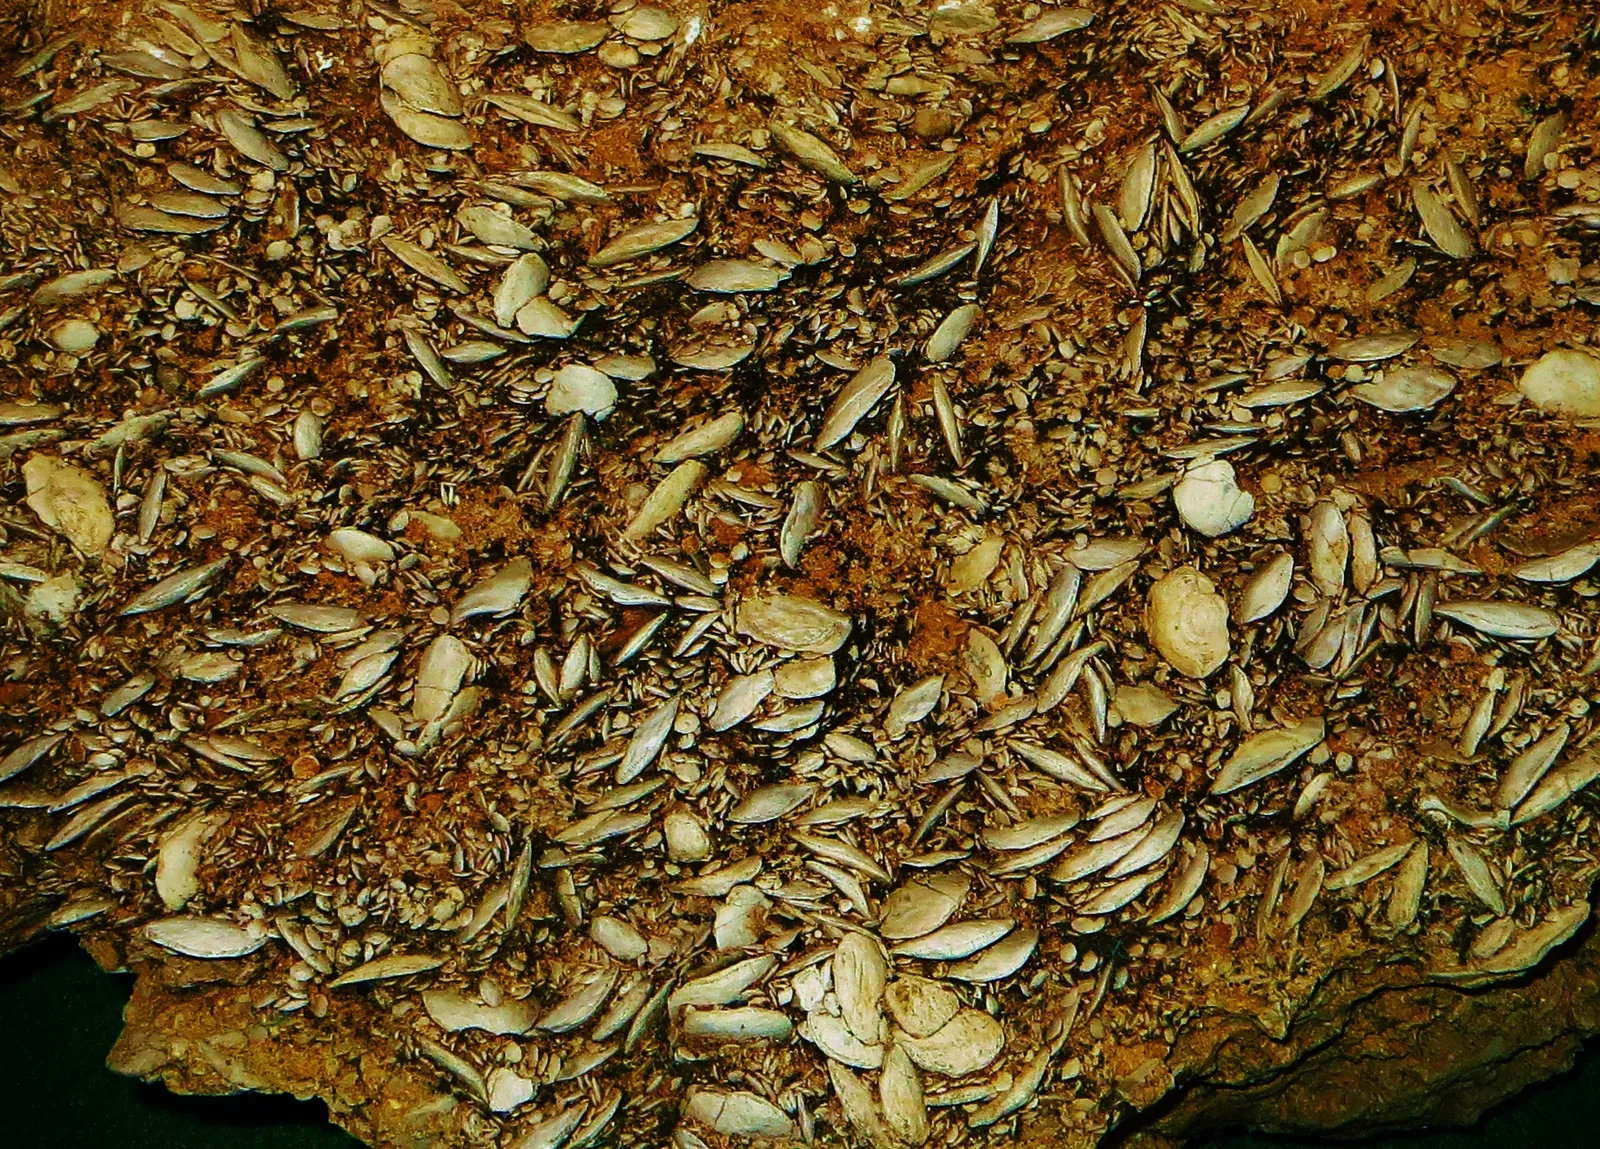
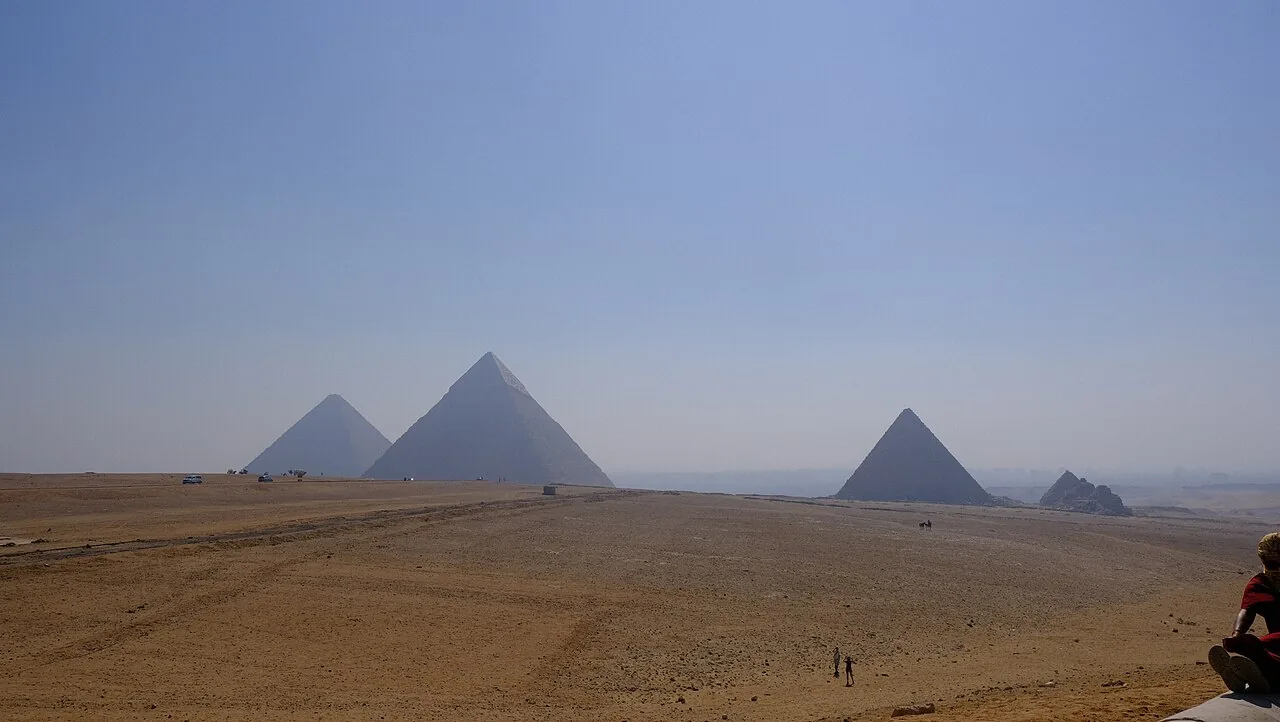
Пирамиды Гизы сложены из известняка, в котором видны тысячи плоских «монеток» размером с чечевицу. Греческий географ Страбон, побывавший в Египте около 25 года до н. э., записал рассказ местных жителей: это окаменевшая чечевица, которой кормили строителей [1]. На самом деле «монетки» — раковины нуммулитов, одноклеточных организмов из группы фораминифер, живших в тёплом море около 45 миллионов лет назад. Одна клетка строила раковину диаметром в несколько сантиметров, с сотнями камер, — и таких раковин хватило на горные хребты.
Фораминиферы — одни из самых многочисленных организмов океана и самые полезные для геологов ископаемые. По их раковинам находят нефть, определяют возраст пластов и восстанавливают температуру океана за сотню миллионов лет. А их клетки устроены так необычно, что до сих пор приносят сюрпризы: в одной клетке бывают ядра двух разных типов, а ядро может содержать тысячи копий генома.
В статье разобраны:
- место фораминифер в системе эукариот и устройство их клетки;
- строение однокамерных и многокамерных раковин, типы стенки и расположения камер;
- жизненный цикл с чередованием поколений и диморфизм раковин;
- гетероморфизм ядер — соматические и генеративные ядра в одной клетке;
- геологическое значение: горные породы, стратиграфия, поиск нефти, палеоклимат.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором.
- Как изучали фораминифер
- Кто такие фораминиферы
- Клетка и ретикулоподии
- Раковина: стенка, камеры, устье
- Однокамерные фораминиферы
- Многокамерные фораминиферы
- Жизненный цикл
- Диморфизм раковин
- Гетероморфизм ядер
- Где живут и чем питаются
- Геологическое значение
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали фораминифер
Раковины фораминифер видели задолго до микроскопа, но понять, что это такое, удалось только в XIX веке. Француз Альсид д’Орбиньи в 1826 году дал группе название Foraminifera — «несущие отверстия» (лат. foramen — отверстие, fero — несу): камеры раковины сообщаются через отверстия [2]. Многокамерные спиральные раковины так напоминали раковины наутилуса, что д’Орбиньи отнёс их к головоногим моллюскам. Через девять лет Феликс Дюжарден рассмотрел живых фораминифер и не нашёл у них ни органов, ни тканей — только однородное студенистое вещество, которое вытекало из устья раковины тончайшими нитями. Он назвал его саркодой; позже это слово заменили «протоплазмой». Так фораминиферы помогли открыть одноклеточность целой группы организмов [3].
- 1826А. д’Орбиньи называет группу Foraminifera и считает её микроскопическими головоногими моллюсками
- 1835Ф. Дюжарден: фораминиферы — одноклеточные; их живое вещество он называет «саркодой»
- 1883Мюнье-Шальма и Шлюмберже: у одного вида две формы раковин — с крупной и с мелкой начальной камерой
- 1895Дж. Листер: две формы раковин — два поколения, половое и бесполое
- 1925Э. Эпплин, А. Эллисор и Х. Кникер сопоставляют нефтеносные пласты по фораминиферам из буровых скважин
- 1954К. Грелль: у ротальеллы в одной клетке ядра двух типов — соматическое и генеративные
- 1955Ч. Эмилиани восстанавливает температуру океанов ледникового периода по изотопам кислорода в раковинах
- 1991Дж. Кеннетт и Л. Стотт: массовое вымирание донных фораминифер на границе палеоцена и эоцена
- 2003Гены показывают, что гигантские ксенофиофоры — фораминиферы
- 2005Мягкостенные фораминиферы найдены на дне Бездны Челленджера (10 896 м)
- 2013Я. Павловски и соавторы: новая система — однокамерные, Tubothalamea и Globothalamea
- 2024Ядро аллогромии содержит до 12 тысяч копий генома; мейоз идёт в многоядерной клетке
- первые описания
- клетка
- жизненный цикл и ядра
- геология
- молекулярные методы
Кто такие фораминиферы
Фораминиферы — одноклеточные эукариоты с раковиной и сетью тонких ветвящихся ложноножек. Описано около 10 тысяч современных видов и несколько десятков тысяч ископаемых [4, 5]. Почти все живут в море, от приливной зоны до самых глубоких желобов; несколько видов встречаются в солоноватой и пресной воде. Большинство — донные организмы, и только около 50 видов парят в толще воды (планктонные фораминиферы) [6].
Размеры обычно — от 0,1 до 1 мм: раковины фораминифер похожи на песчинки, и в морском песке их бывает больше, чем минеральных зёрен. Крупные донные формы достигают нескольких сантиметров, а гигантские глубоководные ксенофиофоры — 20 см. Это одни из самых крупных клеток на Земле.
В школьных учебниках фораминиферы стоят в типе Саркодовые вместе с амёбами и радиоляриями — по общему признаку, ложноножкам. Молекулярная систематика показала, что ложноножки возникали независимо много раз, и саркодовые не являются родственной группой. Сегодня фораминиферы входят в супергруппу ризарий (Rhizaria), а внутри неё — в группу ретарий (Retaria) вместе с радиоляриями [7, 8]. Ризарии, в свою очередь, — одна из ветвей супергруппы TSAR, о которой подробно рассказано в статье «TSAR: супергруппа эукариот».
- Ризарии — одноклеточные с тонкими нитевидными или сетевидными ложноножками; группа выделена по генам
- Церкозои — эуглифы, хлорарахниофиты
- Эндомиксы — плазмодиофора
- Ретарии — фораминиферы и радиолярии: сетевидные или лучевидные ложноножки, сложный скелет
- Фораминиферы — гранулоретикулоподии с двусторонним током цитоплазмы, раковина с устьем
- Однокамерные — аллогромия, сакаммина, ксенофиофоры
- Многокамерные — раковина из камер или из свёрнутой трубки; однокамерные не образуют единой группы, это ранние ветви
- Tubothalamea — милиолиды, спириллины, соритесы
- Globothalamea — текстулярии, роталииды, глобигерины, нуммулиты
- Радиолярии — акантарии, полицистины
- Положение эндомикс и порядок ранних ветвей фораминифер уточняются
Внутреннюю систему фораминифер тоже перестроили по данным генов. Я. Павловски с соавторами в 2013 году предложил делить их на три группы [5]:
- однокамерные (моноталамиды) — с органической или агглютинированной раковиной из одной камеры; это не единая группа, а набор ранних ветвей;
- Tubothalamea — начальная камера и трубчатая вторая камера, свёрнутая или поделённая на отделы (милиолиды, спириллины);
- Globothalamea — начальная камера шаровидная, следующие камеры тоже округлые (текстулярии, роталииды, планктонные глобигерины, нуммулиты).
Деление на однокамерных и многокамерных, о котором речь пойдёт ниже, — это деление по строению раковины. Оно удобно для описания, но родство отражает лишь отчасти.
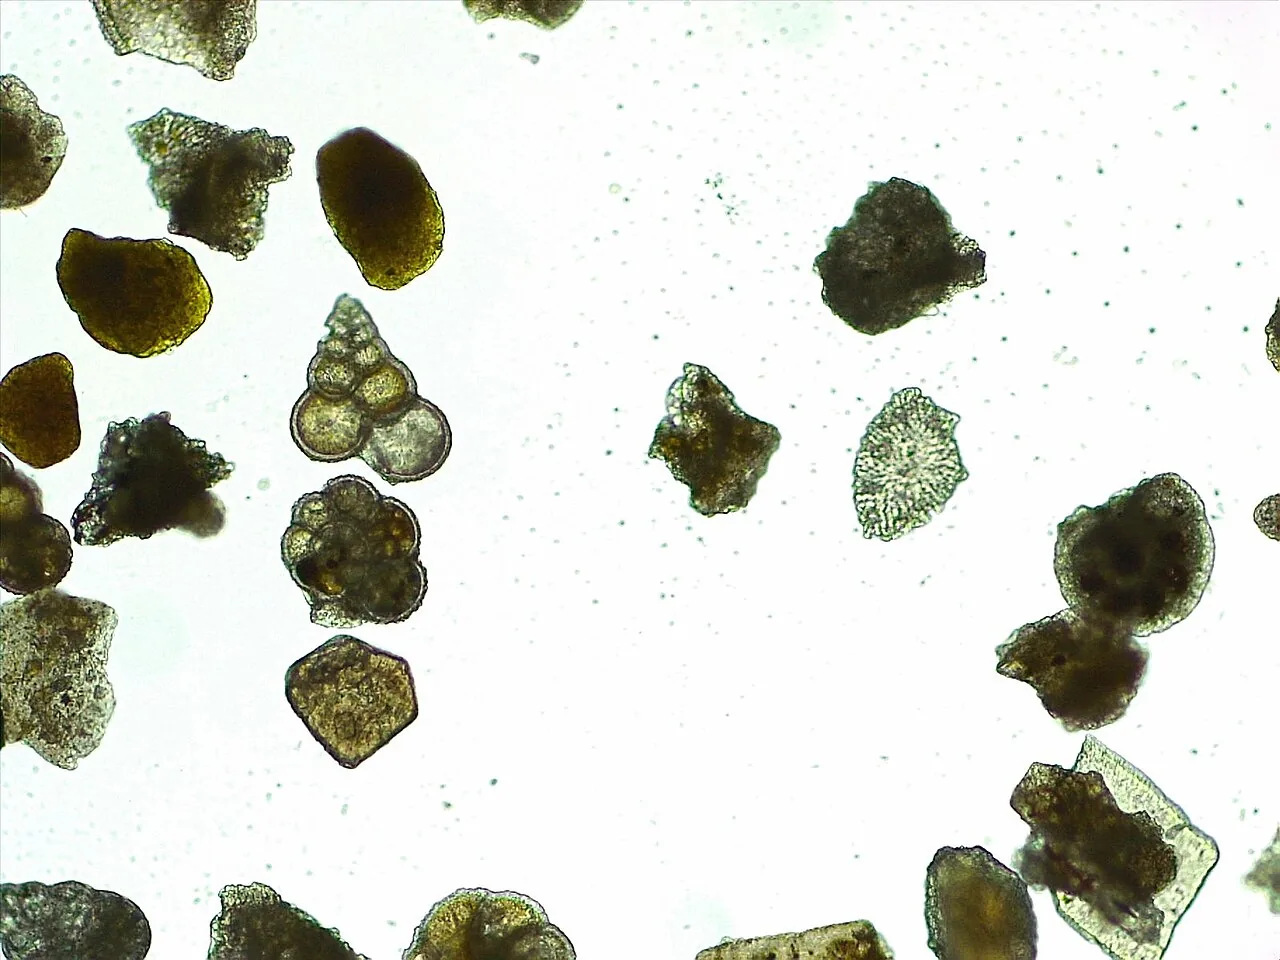
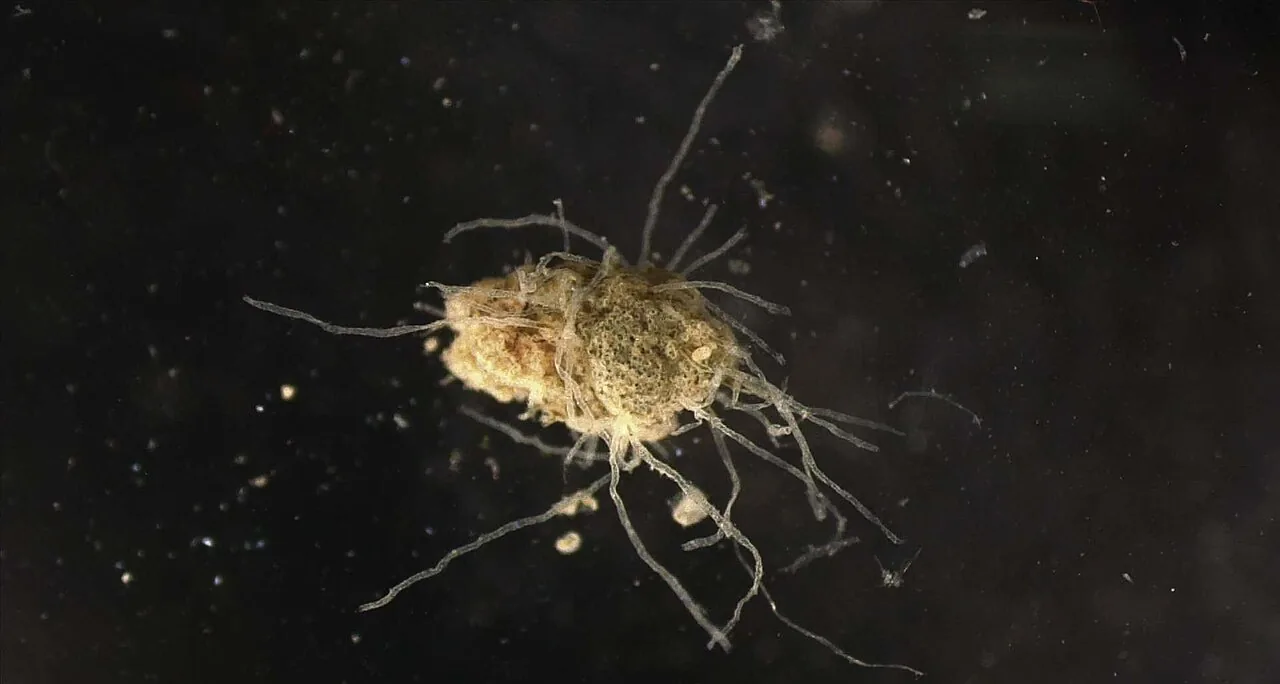
Клетка и ретикулоподии
Главный признак фораминифер — не раковина (есть фораминиферы и без неё), а особые ложноножки — гранулоретикулоподии, или просто ретикулоподии. Это тончайшие (меньше микрометра) нити цитоплазмы, которые ветвятся и сливаются друг с другом в сеть. Сеть одной клетки может раскинуться на площадь в несколько раз больше раковины [9].
Внутри каждой нити лежит пучок микротрубочек, и по ним в обе стороны одновременно движутся гранулы: митохондрии, пузырьки, частицы пищи. Скорость тока доходит до 10 мкм/с. Двусторонний ток гранул — отличительный признак фораминифер: у амёб ложноножки толстые, а ток цитоплазмы в них односторонний. Микротрубочки фораминифер собираются и разбираются необычно быстро и упаковываются в спиральные пучки — так ложноножка за секунды удлиняется или втягивается [9].
Ретикулоподии выполняют сразу несколько работ:
- ловят пищу: к липкой сети прилипают бактерии, диатомеи, частицы детрита, у крупных видов — мелкие ракообразные; пища переваривается прямо в сети или переносится током к раковине;
- передвигают клетку: донные виды ползают со скоростью до нескольких сантиметров в час;
- прикрепляют к водорослям и камням;
- строят раковину: собирают песчинки, выстилают форму для новой камеры;
- служат «теплицей» для водорослей-симбионтов, которых клетка выносит на свет.
Цитоплазма у фораминифер не только внутри раковины. Наружу через устье и поры выходит тонкий слой, который покрывает раковину снаружи, — поэтому раковина, строго говоря, лежит внутри клетки, как внутренний скелет. Внутри раковины находятся одно или много ядер, пищеварительные вакуоли, у многих видов — симбионты.
Интересный факт. Некоторые донные фораминиферы, например Elphidium и Haynesina, переваривают диатомей не целиком: хлоропласты они сохраняют и держат в цитоплазме неделями. Похищенные пластиды продолжают фотосинтез и кормят хозяина. Такая «кража пластид» (клептопластия) позволяет некоторым видам жить даже в осадках, бедных кислородом [10]. Подробнее о клептопластии — в статье «Клептопластия».
Раковина: стенка, камеры, устье
Раковина фораминифер защищает клетку от хищников и механических повреждений, служит опорой, а у планктонных видов помогает держаться в воде (у многих из них есть длинные иглы). Раковина состоит из одной или многих полостей — камер. Через отверстие — устье — наружу выходят ретикулоподии. В многокамерной раковине устье каждой предыдущей камеры становится внутренним отверстием, фораменом, которое соединяет её со следующей. Перегородки между камерами называют септами, линии их прикрепления на поверхности раковины — швами. Самая первая камера, с которой начинается раковина, называется начальной, или пролокулюсом.
Материал стенки — главный признак, по которому различают крупные группы фораминифер [11, 5].
- Белки и полисахаридыгибкая оболочка; аллогромия, глубоководные однокамерные
- Агглютинированнаяпесчинки, спикулы губок, раковинки других протистов на органическом или известковом цементе; текстулярия, ксенофиофоры
- Фарфоровиднаябеспористая, из иголочек высокомагнезиального кальцита; милиолиды, соритесы
- Стекловиднаяпористая, из кристаллов кальцита, ориентированных поперёк стенки; роталииды, глобигерины, нуммулиты
- Арагонитоваяробертиниды
- Органическая стенка — тонкая гибкая оболочка из белков и полисахаридов (у аллогромии). Она легко разрушается, поэтому в ископаемом состоянии почти не сохраняется.
- Агглютинированная стенка — из чужих частиц: песчинок, игл губок, раковинок кокколитофорид, — склеенных органическим или известковым цементом. Многие виды тщательно выбирают материал: одни строят только из зёрен определённого размера, другие — только из игл губок или из чешуек слюды. Как одна клетка без глаз и нервной системы «сортирует» частицы, до конца не понятно [4].
- Фарфоровидная стенка — без пор, из мельчайших беспорядочно расположенных иголочек кальцита с большой примесью магния. Свет она рассеивает, поэтому похожа на фарфор: белая и непрозрачная. Так устроены раковины милиолид.
- Стекловидная (гиалиновая) стенка — из кристаллов кальцита, ориентированных поперёк стенки, пронизанная порами. Она прозрачна, как стекло. Это раковины роталиид, нуммулитов, планктонных глобигерин — большей части известковых фораминифер.
Известь фораминиферы осаждают из морской воды. Клетка захватывает воду в пузырьки, удаляет из неё лишний магний, повышает pH — и в пузырьке растёт кальцит, который затем выводится к месту строительства. Поэтому состав раковины несёт отпечаток воды, в которой она росла: на этом основаны палеотермометры, о которых ниже.
Однокамерные фораминиферы
У однокамерных фораминифер раковина — одна полость. Она растёт не скачками, а постепенно: клетка достраивает стенку по краю устья или растягивает гибкую оболочку. Форма раковины:
- шар или мешочек с одним или несколькими устьями — у аллогромии (органическая стенка), у сакаммины (агглютинированная стенка из песчинок);
- трубка, открытая с одного или обоих концов, — у батисифона, у гиперраммины; такие трубки длиной в несколько сантиметров торчат из ила на дне;
- ветвящаяся трубка — у рабдаммины;
- начальная камера и длинная неразделённая трубка, свёрнутая в спираль, — у аммодискуса (агглютинированная) и спириллины (известковая). Строго говоря, это уже две камеры; по системе Павловски такие формы относятся к Tubothalamea.
Однокамерные фораминиферы с органической стенкой долго считали малозначительной группой: в ископаемом состоянии их почти нет, а под микроскопом они выглядят невзрачными капельками. Изучение ДНК из проб грунта показало, что их видов гораздо больше, чем думали, и именно они — древнейшие ветви фораминифер. Молекулярные часы относят происхождение группы к неопротерозою, раньше первых раковин в кембрии; первые фораминиферы, видимо, были мягкими [5, 12].
В 2005 году японские и британские исследователи изучили пробы ила, поднятые аппаратом «Кайко» со дна Бездны Челленджера в Марианском желобе, с глубины 10 896 м. Там оказались сотни живых фораминифер, и 85 % из них были мягкостенными однокамерными формами — с органической стенкой, без извести [13]. На такой глубине карбонат кальция растворяется, и известковая раковина бесполезна, а простые органические оболочки работают и под давлением в тысячу атмосфер.
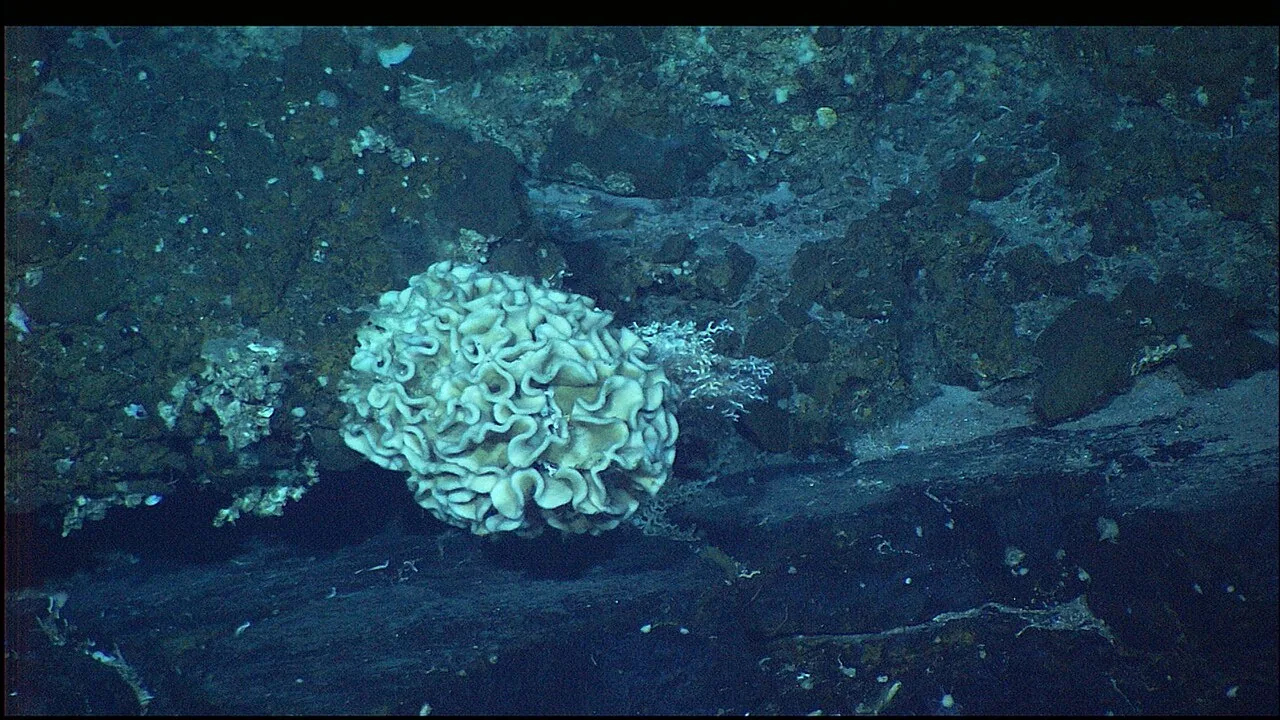
К однокамерным относятся и ксенофиофоры — глубоководные клетки размером до 20 см с хрупким агглютинированным каркасом из ила, раковин и минеральных зёрен. Их долго считали отдельной группой, губками или даже не организмами, пока анализ ДНК в 2003 году не показал: это гигантские фораминиферы [14]. Внутри одной такой «клетки» — множество ядер, тяжи цитоплазмы и комочки собственных экскрементов, которые занимают большую часть объёма.
Многокамерные фораминиферы
У многокамерных фораминифер раковина растёт ступенчато. Пока клетка растёт, цитоплазма заполняет последнюю камеру; когда места не хватает, клетка строит новую камеру — обычно чуть больше предыдущей. Камера появляется за несколько часов [12]:
- ретикулоподии собирают вокруг устья частицы грунта и строят временный защитный чехол (у многих донных видов);
- цитоплазма выходит из устья и принимает форму будущей камеры;
- на её поверхности выстилается тонкая органическая плёнка — шаблон новой стенки;
- на шаблон осаждается кальцит (или приклеиваются песчинки), и стенка твердеет;
- цитоплазма перетекает в новую камеру, а старое устье становится фораменом.
Поскольку каждая камера крупнее предыдущей, раковина растёт по законам геометрической прогрессии и часто закручивается в логарифмическую спираль — как раковина наутилуса, из-за чего д’Орбиньи и ошибся. Камерное строение выгодно: раковина прочнее, повреждение одной камеры не губит всю клетку, а планктонные виды могут менять плавучесть.
По тому, как камеры располагаются друг относительно друга, раковины делят на несколько типов.
- Шар или мешоксакаммина, аллогромия
- Трубкабатисифон, гиперраммина
- Ветвящаяся трубкарабдаммина
- Начальная камера и неразделённая трубкааммодискус, спириллина (свёрнутая трубка)
- Одноряднаякамеры в ряд; нодозария
- Двуряднаякамеры попеременно в два ряда; текстулярия
- Трёхряднаяпо три камеры на оборот; булимина
- Плоская спиральвсе обороты в одной плоскости; эльфидиум, нуммулит
- Винтовая спиральс одной стороны видны все обороты, с другой — последний; глобигерина, аммония
- Милиолиднаякамеры длиной в пол-оборота навиваются в разных плоскостях; квинквелокулина
- Кольцеваякамеры кольцами вокруг центра — раковина-диск; соритес
- одна полость, рост непрерывный
- камеры добавляются по одной
| Тип раковины | Как расположены камеры | Примеры |
|---|---|---|
| Однорядная | Камеры нанизаны в прямой или слегка изогнутый ряд, как бусы | Нодозария |
| Двурядная | Камеры попеременно в два ряда, раковина похожа на колос | Текстулярия, болевина |
| Трёхрядная | По три камеры на оборот низкой спирали | Булимина |
| Плоскоспиральная | Все обороты в одной плоскости; если последний оборот закрывает предыдущие — раковина объемлющая | Эльфидиум, нуммулит |
| Винтовая (трохоидная) | Спираль вытянута, как у улитки: на одной стороне видны все обороты, на другой — только последний | Глобигерина, аммония, розалина |
| Милиолидная (клубковидная) | Удлинённые камеры длиной в пол-оборота навиваются в разных плоскостях, как нитки на клубок | Квинквелокулина, трилокулина |
| Кольцевая (циклическая) | Камеры образуют концентрические кольца, раковина — плоский диск | Соритес, маргинопора |
| Смешанная | Начало раковины навито спирально, затем камеры идут в ряд | Спироплектаммина |
Тип навивания помогает и в практике: у планктонных глобигерин направление закручивания спирали (правое или левое) зависит от температуры воды. У вида Neogloboquadrina pachyderma в холодной полярной воде преобладают левозавитые раковины, в тёплой — правозавитые, и смена преобладающего направления в колонке осадков отмечает потепления и похолодания. Позже выяснилось, что «левые» и «правые» формы — это в значительной мере разные генетические виды [6].
Крупные донные фораминиферы. У некоторых групп раковины достигают сантиметров, а их внутреннее строение невероятно сложно. Камеры делятся на сотни камерок, пронизаны системой каналов, по которой цитоплазма распределяется по всей раковине. Каждый оборот спирали нуммулита покрывает предыдущие, и раковина становится линзой, в разрезе похожей на спил дерева. Крупнейшие нуммулиты эоцена достигали больше 10 см в диаметре. Фузулиниды карбона и перми строили веретеновидные раковины, навитые вокруг длинной оси, со сложными складчатыми перегородками. Почти все крупные донные фораминиферы живут на освещённом мелководье тропиков в симбиозе с водорослями: размер и сложность раковины связаны с тем, что раковина работает как оранжерея для симбионтов [15].
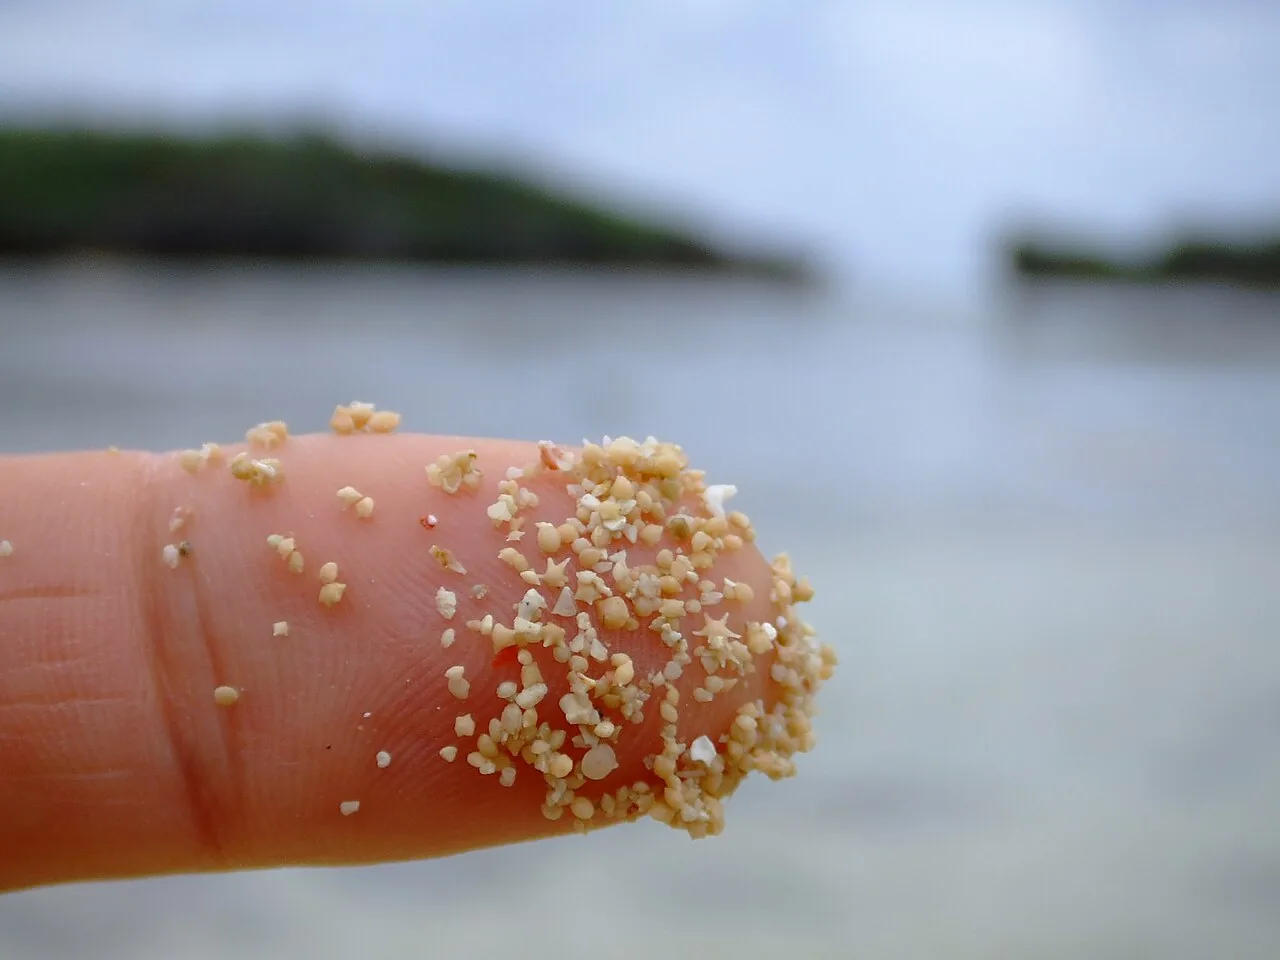
Интересный факт. На пляжах японских островов Яэяма (Окинава) песок состоит из крошечных звёздочек. Это раковины фораминифер Baculogypsina sphaerulata с несколькими лучами-выростами. По местной легенде, это дети звёзд, погибшие при падении в море, и туристы увозят «звёздный песок» в бутылочках на память.
Жизненный цикл
У большинства изученных фораминифер чередуются два поколения: бесполое диплоидное и половое гаплоидное. Такой цикл называют гетерофазным: фазы с разным набором хромосом сменяют друг друга, и каждая представлена самостоятельной, свободноживущей особью со своей раковиной [12, 16].
Агамонт — диплоидное поколение (2n), размножается бесполым путём. В зрелом агамонте много ядер. Перед размножением ядра делятся мейозом, и каждая особь распадается на десятки или сотни одноядерных гаплоидных зародышей. Цитоплазма агамонта уходит в них целиком, пустая раковина остаётся на дне. Зародыши выползают из устья, уже имея начальную камеру и одну-две следующие.
Гамонт — гаплоидное поколение (n), размножается половым путём. Обычно гамонт одноядерный, с крупным ядром. Когда гамонт созревает, ядро многократно делится, и образуются тысячи гамет. У большинства видов гаметы снабжены двумя жгутиками и выходят в воду; у некоторых гаметы амёбоидные. Слияние гамет даёт диплоидную зиготу, из которой вырастает новый агамонт.
Половой процесс у фораминифер бывает трёх типов:
- свободное слияние гамет в воде: гамонты выпускают жгутиковые гаметы наружу (эльфидиум, многие роталииды, планктонные виды);
- гамонтогамия: два или несколько гамонтов прижимаются друг к другу устьями, вокруг них образуется общая оболочка, и гаметы сливаются в этой «брачной камере»;
- автогамия: гаметы одной особи сливаются друг с другом внутри её раковины.
Главное отличие от животных — время мейоза. У животных мейоз происходит при образовании гамет, и все клетки тела диплоидны. У фораминифер, как у растений, мейоз отделяет диплоидное поколение от гаплоидного, а гаметы образуются из гаплоидной клетки митозом. Такой мейоз называют промежуточным, или споровым.
Отклонения от схемы. Цикл с правильным чередованием двух поколений изучен у небольшого числа видов, в основном выращенных в лаборатории. У многих фораминифер схема сложнее:
- у крупных донных фораминифер (амфистегины, гетеростегины) между агамонтом и гамонтом бывает ещё одно поколение — шизонт, диплоидная особь, которая размножается бесполым путём без мейоза. Такой цикл называют триморфным [17];
- многие виды в культуре годами размножаются только бесполым путём, без полового поколения;
- у планктонных фораминифер в природе почти всегда находят гамонтов. Размножение многих из них привязано к фазам Луны: у Hastigerina pelagica гаметы выходят через несколько дней после полнолуния, и вся популяция обновляется за месяц [18]. Перед размножением раковина покрывается толстой коркой кальцита и опускается на глубину — там гаметы и выходят.
Продолжительность жизни разная: у мелких донных фораминифер — недели или месяцы, у планктонных — около месяца, у крупных донных — до одного-двух лет.
Диморфизм раковин
Ещё в XIX веке палеонтологи заметили, что раковины одного вида бывают двух типов. У одних начальная камера крупная, у других мелкая. В 1883 году Э. Мюнье-Шальма и Ш. Шлюмберже назвали их мегалосферической и микросферической формами. Сначала предполагали, что это самки и самцы. В 1895 году британский зоолог Джозеф Джексон Листер, наблюдая живых эльфидиумов, доказал: это два поколения жизненного цикла [19].
| Признак | Мегалосферическая форма (A) | Микросферическая форма (B) |
|---|---|---|
| Поколение | Гамонт (n), половое | Агамонт (2n), бесполое |
| Начальная камера | Крупная: зародыш получил от агамонта долю цитоплазмы с одним ядром и сразу строит большую камеру | Мелкая: развивается из зиготы, которая гораздо меньше зародыша гамонта |
| Число камер и размер раковины | Меньше камер, раковина мельче | Больше камер, раковина крупнее |
| Ядра | Обычно одно крупное ядро | Много ядер |
| Чем размножается | Гаметами | Гаплоидными зародышами после мейоза |
| Встречаемость | Обычно намного чаще | Реже |
У нуммулитов различие доходит до крайности: микросферические раковины в несколько раз крупнее мегалосферических, и палеонтологи долго описывали две формы одного вида как два разных вида. У триморфных видов шизонты тоже мегалосферические, поэтому по одной начальной камере нельзя отличить шизонта от гамонта.
Гетероморфизм ядер
Ядра фораминифер устроены необычно, и это видно даже без особых методов. Ядра гамонта и агамонта различаются: у гамонта обычно одно огромное ядро с множеством ядрышек, у агамонта — много мелких ядер. Но ещё удивительнее, что у некоторых видов ядра двух разных типов есть в одной клетке. Это явление называют гетероморфизмом ядер, ядерным дуализмом или гетерокариотичностью [20].
Ядра двух типов различаются строением и судьбой:
| Признак | Соматическое (вегетативное) ядро | Генеративное ядро |
|---|---|---|
| Размер и вид | Крупное, рыхлое, с большими ядрышками | Мелкое, с плотным хроматином |
| Работа генов | Активно синтезирует РНК, управляет ростом и обменом веществ | Почти неактивно |
| Деление | Не делится | Делится митозом и мейозом |
| Судьба при размножении | Разрушается и не передаётся потомкам | Дает ядра потомков |
| Аналог у инфузорий | Макронуклеус | Микронуклеус |
Классический пример описал немецкий протистолог Карл Грелль в 1954 году у мелкой донной фораминиферы Rotaliella heterocaryotica [21]. В её агамонте четыре ядра: одно крупное соматическое и три мелких генеративных. Пока агамонт растёт, работает соматическое ядро. Когда приходит время размножаться, оно набухает, затем сжимается (пикноз) и растворяется в цитоплазме. Генеративные ядра делятся мейозом, и из трёх диплоидных ядер получается двенадцать гаплоидных. Агамонт распадается на двенадцать одноядерных зародышей-гамонтов. Каждый гамонт образует от 10 до 24 амёбоидных гамет, и гаметы одной особи сливаются друг с другом (автогамия) [16].
Похожие разные ядра в одной клетке найдены у Rotaliella elatiana (одно соматическое и два-три генеративных ядра) и у крупных фораминифер Sorites orbiculus и Amphisorus hemprichii [22]. Это не близкие родственники: ротальеллы относятся к Globothalamea, соритесы — к Tubothalamea. Значит, разделение ядер на соматические и генеративные возникало в истории фораминифер несколько раз.
Зачем клетке два типа ядер. Идея та же, что у многоклеточного организма с его телом и половыми клетками. Соматическое ядро работает на износ: оно многократно копирует свою ДНК, чтобы обеспечить рост огромной клетки, и в нём накапливаются повреждения. Генеративные ядра почти не работают, хранят «чистовую» копию генома и передают её потомкам. В одной клетке совмещены «тело» и «зародышевая линия». У инфузорий макронуклеус и микронуклеус возникли независимо от фораминифер — это пример конвергенции на уровне клетки. Как устроен ядерный аппарат инфузорий — в статье «Инфузории: строение клетки, ядерный аппарат и половой процесс».
Современные данные. Методы флуоресцентной микроскопии и секвенирования отдельных клеток показали, что ядра фораминифер ещё необычнее, чем думал Грелль. У однокамерной аллогромии (Allogromia laticollaris) крупное ядро многократно удваивает ДНК без деления (эндорепликация) и содержит до 12 тысяч копий гаплоидного генома. Объём ядер в течение цикла меняется в 144 тысячи раз. Мейоз идёт асинхронно в многоядерной клетке, а перед размножением огромное ядро распадается: его оболочка разрушается, и хроматин рассыпается в цитоплазме на тысячи мелких комочков, из которых формируются ядра потомков. Этот процесс называют Zerfall («распад»). Авторы предполагают, что у аллогромии «тело» и «зародышевая линия» разделены не между разными ядрами, а внутри одного ядра — во времени и в пространстве [22, 23].
Почему это важно. Учебная схема «гаплоидные гаметы — диплоидное тело» описывает животных и растения, но не всё разнообразие эукариот. Фораминиферы показывают, как сильно может меняться количество ДНК в клетке и как по-разному можно разделить наследственную и рабочую функции генома. Поэтому их предлагают как модель для изучения того, как устроен и меняется геном эукариот [23].
Где живут и чем питаются
Донные фораминиферы живут на поверхности и в толще ила (до глубины 10–20 см), на камнях, водорослях и морских травах. Их плотность огромна: в горсти морского грунта — сотни и тысячи особей. Одни виды питаются диатомеями и бактериями, другие — детритом, третьи растворёнными органическими веществами. Некоторые выдерживают почти полное отсутствие кислорода: они дышат нитратом вместо кислорода, восстанавливая его до азота, — до 2006 года считалось, что так умеют только бактерии и археи [24].
Планктонные фораминиферы держатся в толще воды благодаря иглам, пузырькам жира и сети ретикулоподий. Виды с иглами — хищники: ловят веслоногих рачков и других мелких животных. Многие поверхностные виды несут водорослей-симбионтов (динофлагеллят или хризофитов) [6].
Симбиоз с водорослями характерен для крупных донных фораминифер тёплых мелководий: у амфистегин симбионты — диатомеи, у соритесов — динофлагелляты (те же, что живут в кораллах), у пенероплисов — красные водоросли, у архаясов — зелёные. Как и кораллы, такие фораминиферы при перегреве воды теряют симбионтов и обесцвечиваются. Поэтому их используют для оценки состояния коралловых рифов: соотношение групп фораминифер в пробе песка показывает, пригоден ли риф для роста кораллов (индекс FORAM) [15].
Фораминиферы — важная часть пищевых сетей: их едят морские ежи, моллюски, черви, рыбы. И они — главные производители известкового «снега», который оседает на дно океана. По оценке Р. Шибеля, раковины планктонных фораминифер дают от трети до 80 % карбоната кальция, который ежегодно оседает на дно открытого океана [25].
Геологическое значение
Для геолога фораминиферы почти идеальные ископаемые. Их много, они мелкие, раковины хорошо сохраняются, виды быстро сменяют друг друга во времени и широко распространены. Из одного образца породы размером с напёрсток можно извлечь сотни раковин.
- 541кембрий: первые достоверные раковины — органические и агглютинированные трубки
- 400девон: первые известковые многокамерные фораминиферы
- 330карбон и пермь: фузулиниды — веретеновидные раковины до нескольких сантиметров, целые толщи известняков
- 252конец перми: фузулиниды вымирают вместе с большей частью морских видов
- 170юра: первые планктонные фораминиферы
- 66граница мела и палеогена: вымирает более 90 % видов планктонных фораминифер
- 56граница палеоцена и эоцена: потепление, донные фораминиферы теряют от трети до половины видов
- 45эоцен: расцвет нуммулитов, известняки пирамид Гизы
- 0сегодня: около 10 тысяч видов, известковые илы покрывают почти половину дна океана
- млн лет назад
- ранние группы
- крупные донные
- планктон
- вымирания
Породообразующая роль
Раковины фораминифер, накапливаясь на дне, образуют осадки, а затем горные породы.
- Известковые илы. Глобигериновый ил, состоящий в основном из раковин планктонных фораминифер, вместе с кокколитовым илом покрывает почти половину дна Мирового океана. На больших глубинах, где карбонат растворяется (ниже 4–5 км), известковые илы сменяются красными глинами.
- Нуммулитовые известняки эоцена тянутся от Испании через Альпы, Крым и Египет до Индонезии. Из них сложены пирамиды Гизы и Сфинкс.
- Милиолидовые известняки. Парижский строительный камень эпохи эоцена, из которого построены Лувр и многие дома Парижа, состоит в основном из раковин милиолид. Лютетский ярус эоцена назван по латинскому имени Парижа — Лютеция.
- Фузулинидовые известняки карбона и перми — мощные толщи на Русской платформе, на Урале, в Тетисе. Международные ярусы карбона — московский, касимовский, гжельский — названы по местам в России, и их расчленяют в том числе по фузулинидам.
- Писчий мел — порода, которую часто называют «породой из раковин фораминифер». На самом деле основную массу мела образуют кокколиты — пластинки одноклеточных водорослей кокколитофорид, а раковины фораминифер составляют лишь заметную примесь.
Стратиграфия и поиск нефти
Виды фораминифер существовали ограниченное время, и каждая толща содержит свой набор видов. По ним определяют относительный возраст пород и сопоставляют слои в разных районах. Для мела и кайнозоя по планктонным фораминиферам построена шкала зон, многие из которых длятся меньше миллиона лет.
Особенно ценны фораминиферы для бурения. Буровой инструмент дробит породу, и крупные ископаемые — раковины моллюсков, кости — превращаются в крошку. Миллиметровые раковины фораминифер выходят из скважины целыми вместе с буровым шламом. В 1925 году три сотрудницы нефтяных компаний Техаса — Эстер Эпплин, Альва Эллисор и Хедвиг Кникер — опубликовали работу, в которой сопоставили пласты Мексиканского залива по фораминиферам из скважин [26]. С этого началась микропалеонтология как прикладная наука: в нефтяных компаниях появились лаборатории, и по раковинам фораминифер до сих пор ведут бурение, определяя, в каком пласте находится долото.
Палеоклимат
Раковина фораминиферы — запись условий, в которых она росла. Самый известный «термометр» — изотопы кислорода.
В 1947 году Гарольд Юри показал, что соотношение изотопов кислорода ¹⁸O и ¹⁶O в карбонате, выпавшем из воды, зависит от температуры [27]. В 1955 году сотрудник его лаборатории Чезаре Эмилиани измерил это отношение в раковинах планктонных фораминифер из колонок глубоководных осадков и получил кривую, на которой ледниковые и межледниковые эпохи сменяли друг друга много раз [28]. Позже выяснилось, что большая часть изменений отражает не температуру, а объём льда на суше, и это сделало кривую ещё ценнее. В 1976 году Джеймс Хейс, Джон Имбри и Николас Шеклтон по этим данным доказали, что ледниковые периоды наступают в ритме колебаний земной орбиты с периодами около 100, 41 и 23 тысяч лет [29].
Сегодня изотопная кривая донных фораминифер прослежена на 66 миллионов лет назад и дальше [30]. По ней видно, как Земля перешла от «теплицы» эоцена с лесами в Арктике к оледенению Антарктиды около 34 миллионов лет назад и к ледниковым циклам последних 2,6 миллиона лет. Другие «приборы» дополняют изотопы кислорода:
- отношение Mg/Ca в кальците растёт с температурой и позволяет отделить температуру от объёма льда [31];
- изотопы бора показывают pH морской воды и, через него, содержание CO2 в атмосфере прошлого;
- изотопы углерода — продуктивность океана и выбросы углерода;
- набор видов в пробе — температуру и солёность воды по современным аналогам.
Вымирания и современный океан
Фораминиферы сохранили следы катастроф. В конце перми вымерли фузулиниды. На границе мела и палеогена, когда упал астероид Чикшулуб, исчезло более 90 % видов планктонных фораминифер; выжили мелкие простые формы, от которых произошли все современные планктонные виды [32]. Около 56 миллионов лет назад, на границе палеоцена и эоцена, в атмосферу за несколько тысяч лет попали тысячи гигатонн углерода. Температура глубинных вод выросла на 5–6 °C, океан закислился, и донные фораминиферы потеряли от трети до половины видов [33]. Это событие изучают как аналог нынешнего потепления.
И нынешнее закисление океана тоже видно по фораминиферам. Раковины планктонного вида Globigerina bulloides из Южного океана сегодня на 30–35 % легче, чем раковины того же вида из осадков доиндустриальной эпохи [34].
Из истории. Слова «нуммулит» и «фузулина» придуманы по форме раковин: nummulus по-латыни — монетка, fusus — веретено. Нуммулиты местные жители в Египте называли «деньгами ангелов» и «чечевицей рабов». А «чечевичная» версия Страбона была опровергнута только тогда, когда в XVIII–XIX веках натуралисты увидели под микроскопом камеры и спираль внутри «чечевиц».
Что нужно знать к ЕГЭ
В заданиях ЕГЭ фораминиферы встречаются как пример одноклеточных эукариот с раковиной и ложноножками и как организмы, участвующие в образовании осадочных пород. Полезно помнить:
- фораминиферы — одноклеточные эукариоты; в школьной системе — тип Саркодовые, класс Корненожки; в современной — ризарии;
- раковина у большинства известковая (CaCO3), реже из песчинок или органическая; бывает однокамерной и многокамерной;
- ложноножки тонкие, ветвятся и сливаются в сеть, служат для захвата пищи и передвижения;
- питаются гетеротрофно, у многих есть водоросли-симбионты;
- в жизненном цикле чередуются бесполое диплоидное поколение (агамонт) и половое гаплоидное (гамонт);
- раковины фораминифер образуют известняки и известковые илы, участвуют в образовании мела (основа мела — кокколитофориды);
- фораминиферы используют для определения возраста пород и поиска нефти;
- радиолярии, в отличие от большинства фораминифер, имеют скелет из кремнезёма (SiO2) и образуют кремнистые породы (радиоляриты, яшмы).
Ловушка. «Мел образован раковинами фораминифер» — утверждение неточное: основа писчего мела — кокколиты. «Известняки могут быть образованы раковинами фораминифер» — верно. «Фораминиферы — многоклеточные животные» — неверно: даже 10-сантиметровый нуммулит — одна клетка.
Подробнее о системе одноклеточных эукариот — статья «Современная систематика эукариот», о геологических эрах — статья «История Земли и геохронология».
Для олимпиад
Плоидность и тип мейоза. По месту мейоза в цикле различают зиготную редукцию (мейоз сразу после образования зиготы, взрослая особь гаплоидна — хламидомонада, многие грибы), гаметную (мейоз при образовании гамет, взрослая особь диплоидна — животные, диатомеи) и промежуточную, или споровую (мейоз разделяет диплоидное и гаплоидное поколения — растения, фораминиферы). У фораминифер оба поколения — свободноживущие особи с раковинами, и это делает их цикл удобным для сравнения с циклом растений.
Гетерокариотичность в разных группах. Разделение ядер на соматические и генеративные известно у всех инфузорий (макро- и микронуклеус; у кариореликтовых инфузорий макронуклеусы даже не делятся и каждый раз заново образуются из микронуклеусов) и у некоторых фораминифер. В многоядерной гифе гриба тоже бывают генетически разные ядра (гетерокарион), но там разница в генотипе, а не в функции. Это разные явления, и путать их не стоит [20].
Изотопная палеотермометрия. Для кальцита фораминифер приближённо T = 16,9 − 4,2 · (δк − δв), где δк — δ¹⁸O карбоната, δв — δ¹⁸O воды (в промилле относительно стандартов), T — в °C. Повышение δ¹⁸O раковины на 1 ‰ при той же воде означает похолодание примерно на 4 °C. В ледниковую эпоху δв всего океана выросла примерно на 1 ‰ из-за накопления лёгкой воды в ледниках, и эту поправку нужно вычесть, прежде чем считать температуру.
Рост раковины. Если объём каждой следующей камеры больше предыдущего в q раз, объём раковины растёт как геометрическая прогрессия: Vn = V1 · (qⁿ − 1)/(q − 1). При постоянном q камеры навиваются в логарифмическую спираль, и форма раковины в процессе роста не меняется — только масштаб. Это свойство изучал ещё Д’Арси Томпсон в книге «О росте и форме» (1917).
Карбонатный компенсационный уровень. Растворимость кальцита растёт с давлением и при понижении температуры, а глубинные воды богаче CO2. Ниже определённой глубины (в Тихом океане — около 4–5 км) скорость растворения превышает скорость поступления раковин, и известковых илов там нет. Положение этого уровня в прошлом восстанавливают по распределению известковых осадков, и оно отражает изменения углеродного цикла.
Задания с разбором
Задание 1
Назовите не менее трёх признаков, по которым фораминиферу можно отличить от амёбы протея.
Разбор
1) Ложноножки тонкие, ветвятся и сливаются в сеть (ретикулоподии), а не толстые лопастные; 2) в ложноножках ток гранул идёт в обе стороны одновременно; 3) есть раковина с устьем (у большинства видов); 4) у многих видов в цикле чередуются бесполое диплоидное и половое гаплоидное поколения, а амёба протей размножается только делением надвое; 5) фораминиферы — морские, амёба протей — пресноводная.
Задание 2
Объясните термины: устье, форамен, септа, шов, начальная камера (пролокулюс). Какие из этих структур есть у однокамерной раковины?
Разбор
Устье — отверстие, через которое ретикулоподии выходят наружу. Форамен — отверстие между соседними камерами (бывшее устье предыдущей камеры). Септа — перегородка между камерами. Шов — линия прикрепления септы на поверхности раковины. Начальная камера — первая камера, с которой начинается раковина. У однокамерной раковины есть только устье (одно или несколько); фораменов, септ и швов нет. Если раковина состоит из начальной камеры и трубки (аммодискус), есть ещё начальная камера.
Задание 3
Установите соответствие между фораминиферой и типом стенки её раковины.
А) аллогромия; Б) текстулярия; В) квинквелокулина (милиолида); Г) глобигерина; Д) ксенофиофора.
1) органическая; 2) агглютинированная; 3) известковая фарфоровидная; 4) известковая стекловидная.
Разбор
А — 1, Б — 2, В — 3, Г — 4, Д — 2. Ответ: 12342.
Задание 4
Чем различается рост однокамерной и многокамерной раковины? Какие преимущества даёт камерное строение?
Разбор
Однокамерная раковина растёт постепенно: клетка достраивает край устья или растягивает гибкую оболочку. Многокамерная растёт ступенчато: клетка периодически за несколько часов строит новую, обычно более крупную камеру, а старое устье становится фораменом. Преимущества камерного строения: прочность (перегородки работают как рёбра жёсткости), повреждение одной камеры не губит всю клетку, раковина может достигать большого размера, у планктонных видов — регулировать плавучесть, у крупных донных — разместить симбионтов в отдельных камерках.
Задание 5
Определите тип раковины по описанию: а) камеры попеременно в два ряда; б) все обороты спирали лежат в одной плоскости; в) удлинённые камеры длиной в пол-оборота навиты в разных плоскостях; г) на одной стороне видны все обороты, на другой — только последний.
Разбор
а) Двурядная (текстулярия); б) плоскоспиральная (эльфидиум, нуммулит); в) милиолидная (квинквелокулина); г) винтовая, или трохоидная (глобигерина, аммония).
Задание 6
Укажите набор хромосом (n или 2n) у агамонта, у зародышей, образующихся при его размножении, у гамонта, у гамет и у зиготы. Где в цикле происходит мейоз?
Разбор
Агамонт — 2n; зародыши — n; гамонт — n; гаметы — n (образуются митозом); зигота — 2n. Мейоз происходит при размножении агамонта, перед образованием зародышей гамонтов, то есть на границе диплоидного и гаплоидного поколений (промежуточная, или споровая, редукция — как у растений).
Задание 7
Почему у гамонта начальная камера крупная, а у агамонта мелкая? Почему микросферические раковины обычно крупнее?
Разбор
Зародыш гамонта получает при множественном делении агамонта заметную долю его цитоплазмы и сразу строит крупную начальную камеру. Агамонт развивается из зиготы — продукта слияния двух мелких гамет, поэтому его начальная камера мала. Агамонт до размножения проходит больше циклов роста, строит больше камер и накапливает много ядер, которые потом дадут десятки и сотни зародышей; поэтому его раковина крупнее.
Задание 8
У Rotaliella heterocaryotica агамонт содержит одно соматическое и три генеративных ядра, а каждый гамонт образует от 10 до 24 гамет, которые сливаются попарно внутри раковины. Сколько гамонтов даёт один агамонт? Какое наименьшее и наибольшее число гамет может получиться от всех потомков одного агамонта? Сколько при этом может образоваться зигот?
Разбор
Соматическое ядро разрушается, три генеративных делятся мейозом: 3 × 4 = 12 гаплоидных ядер — 12 гамонтов. Гамет: от 12 × 10 = 120 до 12 × 24 = 288. Зигот вдвое меньше: от 60 до 144. Значит, из одного агамонта может вырасти до 144 агамонтов следующего поколения.
Задание 9
Сравните гетероморфизм ядер у фораминифер и ядерный дуализм инфузорий. Что общего и чем они различаются?
Разбор
Общее: в одной клетке есть ядра двух типов; соматическое (у инфузорий — макронуклеус) активно работает и управляет жизнью клетки, но не передаётся потомкам; генеративные (микронуклеус) почти неактивны, делятся мейозом и дают ядра потомков. Различия: у инфузорий ядерный дуализм есть у всех видов и на всех стадиях, макронуклеус заново образуется из микронуклеуса после полового процесса и делится при бесполом размножении; у фораминифер гетерокариотичность встречается лишь у немногих видов, соматическое ядро не делится и разрушается при размножении. Эти системы возникли независимо — пример конвергенции.
Задание 10
Выберите три верных утверждения о фораминиферах.
1) Фораминиферы — многоклеточные организмы с известковым скелетом. 2) Ложноножки фораминифер ветвятся и сливаются в сеть. 3) Основную массу писчего мела образуют раковины фораминифер. 4) В жизненном цикле многих фораминифер чередуются гаплоидное и диплоидное поколения. 5) Раковины фораминифер используют для определения возраста осадочных пород. 6) Все фораминиферы — планктонные организмы.
Разбор
Ответ: 245. Фораминиферы одноклеточные (1 — неверно); основа мела — кокколиты (3 — неверно); большинство фораминифер донные, планктонных около 50 видов (6 — неверно).
Задание 11
Почему фораминиферы особенно удобны для определения возраста пород при бурении нефтяных скважин?
Разбор
1) Раковины мелкие и не разрушаются при бурении, выходят целыми с буровым шламом; 2) их очень много — сотни в маленьком образце; 3) виды быстро сменялись во времени, и каждый пласт содержит характерный набор видов; 4) многие виды были широко распространены, что позволяет сопоставлять пласты в разных районах; 5) раковины хорошо сохраняются в ископаемом состоянии.
Задание 12
Объём начальной камеры мегалосферической раковины 1000 мкм³, каждая следующая камера больше предыдущей в 1,5 раза. Сколько камер нужно, чтобы объём раковины впервые превысил 1 000 000 мкм³? Сколько камер потребуется при том же росте микросферической раковине с начальной камерой 100 мкм³?
Разбор
Объём раковины из n камер — сумма геометрической прогрессии: V = V1 · (1,5ⁿ − 1)/0,5. Для мегалосферической раковины 1,5ⁿ > 1 + 10⁶ · 0,5/1000 = 501; n > ln 501 / ln 1,5 ≈ 15,3; нужно 16 камер. Для микросферической 1,5ⁿ > 1 + 10⁶ · 0,5/100 = 5001; n > ln 5001 / ln 1,5 ≈ 21,006; нужно 22 камеры. Агамонт при тех же размерах строит заметно больше камер — это и видно на раковинах.
Задание 13 (олимпиадное)
В колонке глубоководных осадков δ¹⁸O раковин донных фораминифер в слое последнего ледникового максимума равно 4,9 ‰, а в современном слое — 3,1 ‰. Известно, что из-за накопления льда на суше δ¹⁸O океанской воды в ледниковье было выше на 1,0 ‰. Оцените, на сколько градусов была холоднее глубинная вода, если повышение δ¹⁸O карбоната на 1 ‰ при неизменной воде соответствует похолоданию на 4,2 °C.
Разбор
Общее изменение 4,9 − 3,1 = 1,8 ‰. Из них 1,0 ‰ — изменение состава воды (лёд), на температуру приходится 0,8 ‰. ΔT ≈ 0,8 · 4,2 ≈ 3,4 °C. Глубинная вода была холоднее примерно на 3–4 °C, а большая часть изотопного сигнала отражает объём ледников, как и показал Н. Шеклтон.
Задание 14
Глобигериновый ил накапливается со скоростью около 2 см за 1000 лет. За сколько лет образуется слой толщиной 100 м? Почему на глубине 6 км такого ила нет?
Разбор
100 м = 10 000 см; 10 000 / 2 = 5000 тысяч лет, то есть около 5 млн лет (без учёта уплотнения осадка). На глубине 6 км вода холодная, богата CO2 и находится под высоким давлением — карбонат кальция растворяется быстрее, чем раковины поступают на дно (ниже уровня карбонатной компенсации), поэтому там накапливаются красные глины.
Задание 15
Почему в Бездне Челленджера (около 11 км) почти все фораминиферы имеют органическую стенку, а не известковую?
Разбор
На такой глубине карбонат кальция растворяется: вода холодная, давление огромно, растворённого CO2 много. Строить и сохранять известковую раковину там невыгодно или невозможно. Органическая (или агглютинированная) стенка не растворяется. Кроме того, мягкостенные однокамерные формы — древняя группа, которая могла сохраниться в глубоких желобах как в убежищах.
Задание 16 (олимпиадное)
В многоядерной фораминифере обнаружены ядра двух типов — крупные и мелкие. Предложите эксперименты, которые позволили бы доказать, что крупное ядро соматическое, а мелкие — генеративные.
Разбор
1) Проследить судьбу ядер при размножении (покадровая съёмка, окраска ДНК): соматическое ядро должно разрушиться, генеративные — делиться и попадать в потомков. 2) Ввести меченый предшественник РНК (уридин с меткой) и проверить, какие ядра синтезируют РНК: ожидается активное включение в крупное ядро. 3) Измерить количество ДНК в ядрах (интенсивность флуоресценции): крупное ядро может быть полиплоидным. 4) Найти в генеративных ядрах признаки мейоза — синаптонемный комплекс, «букет» хромосом, — и их отсутствие в крупном ядре. 5) Сравнить последовательности ДНК ядер: если в соматическом ядре часть генома утрачена или амплифицирована, это подтвердит его особую функцию.
Литература
- Strabo. The Geography / transl. H. L. Jones. Vol. VIII. Book XVII, 1.34. Cambridge (Mass.): Harvard University Press (Loeb Classical Library), 1932.
- d’Orbigny A. Tableau méthodique de la classe des Céphalopodes // Annales des Sciences Naturelles. 1826. T. 7. P. 245–314.
- Dujardin F. Observations sur les Rhizopodes // Annales des Sciences Naturelles. Zoologie. 2e sér. 1835. T. 3. P. 312 et suiv.
- Murray J. W. Ecology and Applications of Benthic Foraminifera. Cambridge: Cambridge University Press, 2006.
- Pawlowski J., Holzmann M., Tyszka J. New supraordinal classification of Foraminifera: molecules meet morphology // Marine Micropaleontology. 2013. Vol. 100. P. 1–10.
- Schiebel R., Hemleben C. Planktic Foraminifers in the Modern Ocean. Berlin: Springer, 2017.
- Adl S. M., Bass D., Lane C. E. et al. Revisions to the classification, nomenclature, and diversity of eukaryotes // Journal of Eukaryotic Microbiology. 2019. Vol. 66. P. 4–119.
- Burki F., Roger A. J., Brown M. W., Simpson A. G. B. The new tree of eukaryotes // Trends in Ecology and Evolution. 2020. Vol. 35. P. 43–55.
- Bowser S. S., Travis J. L. Reticulopodia: structural and behavioral basis for the suprageneric placement of granuloreticulosan protists // Journal of Foraminiferal Research. 2002. Vol. 32. P. 440–447.
- Bernhard J. M., Bowser S. S. Benthic foraminifera of dysoxic sediments: chloroplast sequestration and functional morphology // Earth-Science Reviews. 1999. Vol. 46. P. 149–165.
- Loeblich A. R., Tappan H. Foraminiferal Genera and Their Classification. New York: Van Nostrand Reinhold, 1988.
- Goldstein S. T. Foraminifera: a biological overview // Sen Gupta B. K. (ed.) Modern Foraminifera. Dordrecht: Kluwer, 1999. P. 37–55.
- Todo Y., Kitazato H., Hashimoto J., Gooday A. J. Simple foraminifera flourish at the ocean’s deepest point // Science. 2005. Vol. 307. P. 689.
- Pawlowski J., Holzmann M., Fahrni J., Richardson S. L. Small subunit ribosomal DNA suggests that the xenophyophorean Syringammina corbicula is a foraminiferan // Journal of Eukaryotic Microbiology. 2003. Vol. 50. P. 483–487.
- Hallock P., Lidz B. H., Cockey-Burkhard E. M., Donnelly K. B. Foraminifera as bioindicators in coral reef assessment and monitoring: the FORAM Index // Environmental Monitoring and Assessment. 2003. Vol. 81. P. 221–238.
- Grell K. G. Protozoology. Berlin; Heidelberg: Springer, 1973.
- Dettmering C., Röttger R., Hohenegger J., Schmaljohann R. The trimorphic life cycle in foraminifera: observations from cultures allow new evaluation // European Journal of Protistology. 1998. Vol. 34. P. 363–368.
- Spindler M., Hemleben C., Bayer U., Bé A. W. H., Anderson O. R. Lunar periodicity of reproduction in the planktonic foraminifer Hastigerina pelagica // Marine Ecology Progress Series. 1979. Vol. 1. P. 61–64.
- Lister J. J. Contributions to the life-history of the Foraminifera // Philosophical Transactions of the Royal Society of London B. 1895. Vol. 186. P. 401–453.
- Raikov I. B. The Protozoan Nucleus: Morphology and Evolution. Wien; New York: Springer, 1982.
- Grell K. G. Der Generationswechsel der polythalamen Foraminifere Rotaliella heterocaryotica // Archiv für Protistenkunde. 1954. Bd. 100. S. 268–286.
- Timmons C., Le K., Rappaport H. B., Sterner E. G., Maurer-Alcalá X. X., Goldstein S. T., Katz L. A. Foraminifera as a model of eukaryotic genome dynamism // mBio. 2024. Vol. 15, № 3. e03379-23.
- Goetz E. J., Greco M., Rappaport H. B., Weiner A. K. M., Walker L. M., Bowser S., Goldstein S., Katz L. A. Foraminifera as a model of the extensive variability in genome dynamics among eukaryotes // BioEssays. 2022. Vol. 44, № 10. e2100267.
- Risgaard-Petersen N., Langezaal A. M., Ingvardsen S. et al. Evidence for complete denitrification in a benthic foraminifer // Nature. 2006. Vol. 443. P. 93–96.
- Schiebel R. Planktic foraminiferal sedimentation and the marine calcite budget // Global Biogeochemical Cycles. 2002. Vol. 16, № 4. 1065.
- Applin E. R., Ellisor A. C., Kniker H. T. Subsurface stratigraphy of the coastal plain of Texas and Louisiana // AAPG Bulletin. 1925. Vol. 9, № 1. P. 79–122.
- Urey H. C. The thermodynamic properties of isotopic substances // Journal of the Chemical Society. 1947. P. 562–581.
- Emiliani C. Pleistocene temperatures // Journal of Geology. 1955. Vol. 63. P. 538–578.
- Hays J. D., Imbrie J., Shackleton N. J. Variations in the Earth’s orbit: pacemaker of the ice ages // Science. 1976. Vol. 194. P. 1121–1132.
- Zachos J., Pagani M., Sloan L., Thomas E., Billups K. Trends, rhythms, and aberrations in global climate 65 Ma to present // Science. 2001. Vol. 292. P. 686–693.
- Elderfield H., Ganssen G. Past temperature and δ18O of surface ocean waters inferred from foraminiferal Mg/Ca ratios // Nature. 2000. Vol. 405. P. 442–445.
- D’Hondt S. Consequences of the Cretaceous/Paleogene mass extinction for marine ecosystems // Annual Review of Ecology, Evolution, and Systematics. 2005. Vol. 36. P. 295–317.
- Kennett J. P., Stott L. D. Abrupt deep-sea warming, palaeoceanographic changes and benthic extinctions at the end of the Palaeocene // Nature. 1991. Vol. 353. P. 225–229.
- Moy A. D., Howard W. R., Bray S. G., Trull T. W. Reduced calcification in modern Southern Ocean planktonic foraminifera // Nature Geoscience. 2009. Vol. 2. P. 276–280.
Обсуждение
Загружаем обсуждение…