
Инфузория-туфелька — первый одноклеточный организм, которого видит в микроскоп школьник, и один из самых сложных одноклеточных на Земле. В её клетке тысячи ресничек, рот и глотка, «порошица», насосы для откачки воды, стреляющие капсулы. В ней два разных ядра: одно хранит гены для потомков, второе работает. А половой процесс у инфузорий не увеличивает число особей: две клетки обмениваются ядрами и расходятся.
Инфузории (тип Ciliophora, ресничные) подарили биологии непропорционально много открытий. На инфузории тетрахимене открыли теломеры и теломеразу, рибозимы, моторный белок ресничек динеин и первый фермент, меняющий гистоны. За теломеразу и рибозимы дали две Нобелевские премии. На туфельке открыли типы спаривания и наследование строения клетки без участия генов.
В статье разобраны:
- строение клетки: пелликула, реснички, цирры и мембранеллы, инфрацилиатура, трихоцисты, ротовой аппарат, вакуоли;
- питание и пищеварение;
- ядерный аппарат: микронуклеус и макронуклеусы разных типов, их деление;
- половой процесс: поведение ядер при конъюгации, восстановление ядерного аппарата, автогамия;
- макронуклеус как «мешок с генами» и современные данные о его геноме;
- сингены и типы спаривания;
- основные группы инфузорий и их значение в природе.
В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором.
- Как изучали инфузорий
- Общая характеристика
- Пелликула и кортекс
- Реснички, цирры, мембранеллы
- Инфрацилиатура
- Трихоцисты и другие экструсомы
- Питание и пищеварение
- Сократительные вакуоли
- Ядерный аппарат
- Деление микро- и макронуклеуса
- Конъюгация
- Восстановление ядерного аппарата
- Макронуклеус как «мешок с генами»
- Автогамия
- Сингены и типы спаривания
- Основные группы инфузорий
- Значение инфузорий в природе
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали инфузорий
В 1676 году Антони ван Левенгук сообщил Лондонскому королевскому обществу, что в настое перца кишат «зверьки», в тысячи раз мельче вши. Так люди впервые увидели инфузорий. Название пришло позже: латинское infusoria означает «обитатели настоев» — сено или листья заливали водой, и через несколько дней в настое появлялись мириады подвижных существ. В XIX веке Христиан Эренберг описал сотни видов и считал их «совершенными организмами» с желудками и кишечником. Только с клеточной теорией стало ясно, что вся эта сложность умещается в одной клетке [1].
- 1676А. ван Левенгук видит в настое перца «зверьков» — среди них инфузорий
- 1838Х. Эренберг описывает сотни видов в книге «Инфузории как совершенные организмы»
- 1889Э. Мопа: без конъюгации клон туфелек стареет и вымирает
- 1906Г. Дженнингс: реакция избегания и «поведение низших организмов»
- 1926Б. Кляйн: импрегнация серебром выявляет сеть базальных тел — инфрацилиатуру
- 1936У. Диллер открывает автогамию у туфельки
- 1937Т. Соннеборн открывает типы спаривания
- 1965Ж. Бейссон и Т. Соннеборн: перевёрнутые ряды ресничек наследуются без участия генов
- 1965Я. Гиббонс выделяет из ресничек тетрахимены моторный белок динеин
- 1978Э. Блэкберн и Дж. Голл: повторы на концах хромосом макронуклеуса — теломеры
- 1982Т. Чек: РНК тетрахимены сама вырезает свой интрон — рибозим
- 1985К. Грейдер и Э. Блэкберн открывают теломеразу
- 1996Д. Эллис: первый фермент ацетилирования гистонов — из тетрахимены
- 2002К. Мотидзуки и М. Горовски: малые РНК указывают, какую ДНК удалить из нового макронуклеуса
- 2013Геном окситрихи: 16 тысяч хромосом, почти каждая — один ген
- 2016У двух инфузорий все три стоп-кодона кодируют аминокислоты
- первые описания
- клетка и поведение
- половой процесс
- открытия общей биологии
- геном макронуклеуса
Общая характеристика
Инфузории — одноклеточные эукариоты с тремя главными признаками [1, 2]:
- реснички хотя бы на одной стадии жизненного цикла; их базальные тела с отходящими волокнами выстроены в ряды (кинеты) и образуют инфрацилиатуру;
- два типа ядер — генеративный микронуклеус и соматический макронуклеус (ядерный дуализм);
- конъюгация — половой процесс, при котором клетки обмениваются гаплоидными ядрами.
Описано около 8 тысяч видов, а оценки реального разнообразия в несколько раз выше. Размеры — от 10 мкм до 2–4 мм (крупные спиростомумы и стенторы видны невооружённым глазом). Инфузории живут в пресных водах, морях, почве, во мху, в кишечнике и рубце животных; есть паразиты рыб и даже человека. По современной системе инфузории вместе с динофлагеллятами и споровиками (апикомплексами) входят в группу альвеолят, а та — в супергруппу TSAR [3]. Подробнее — статья «TSAR: супергруппа эукариот».
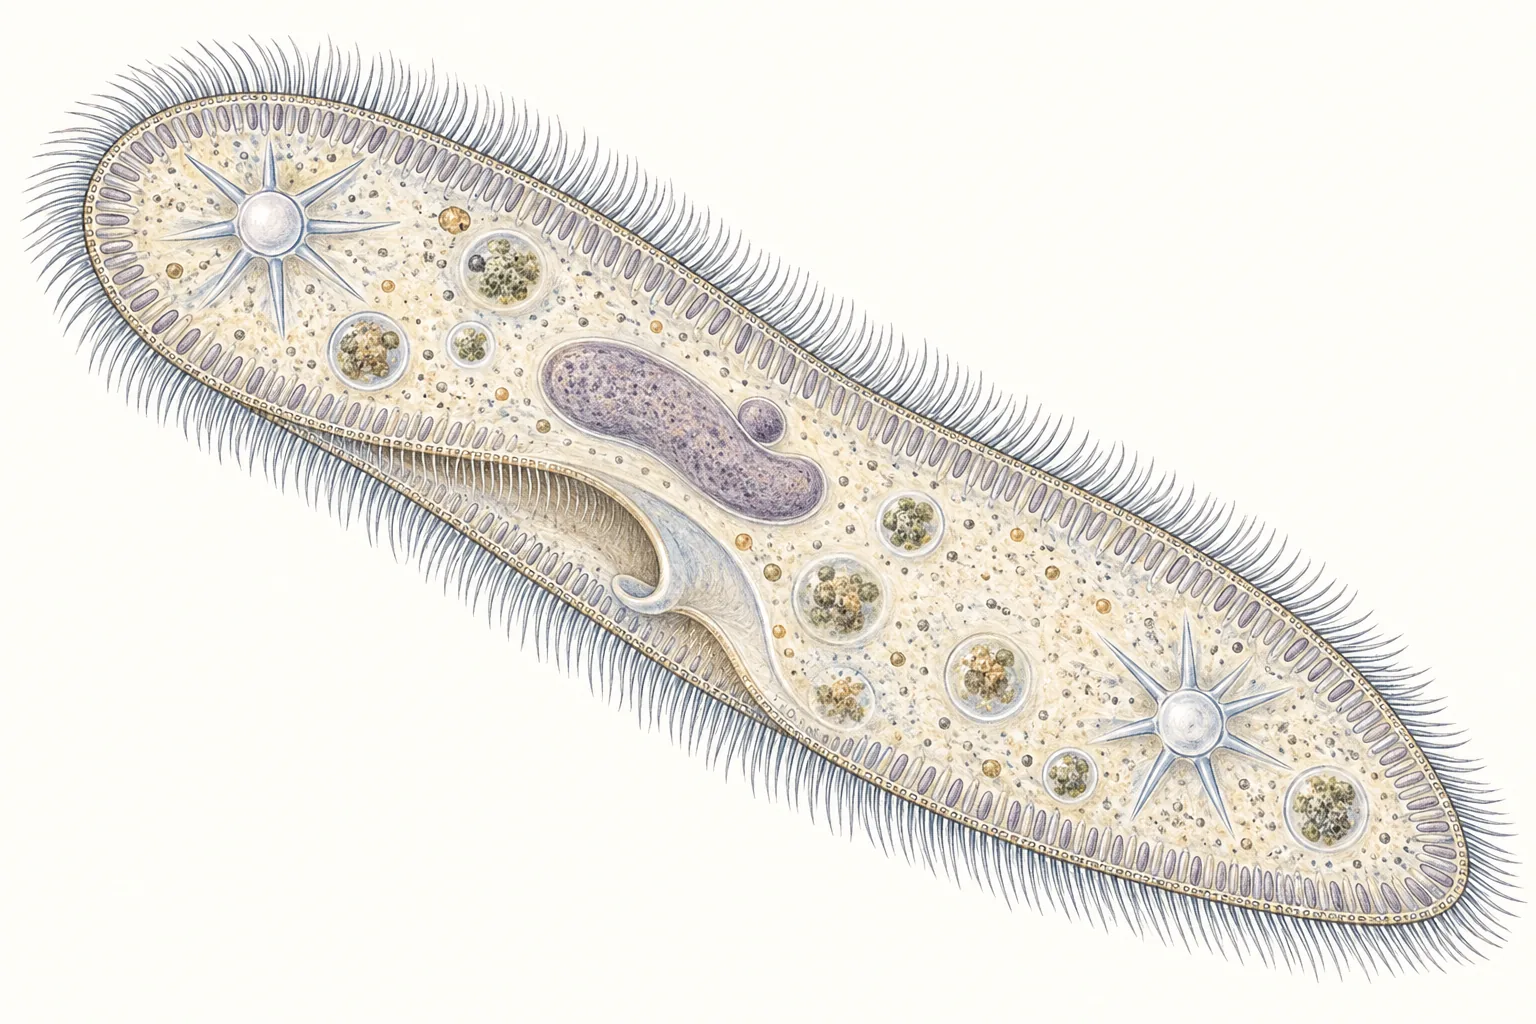
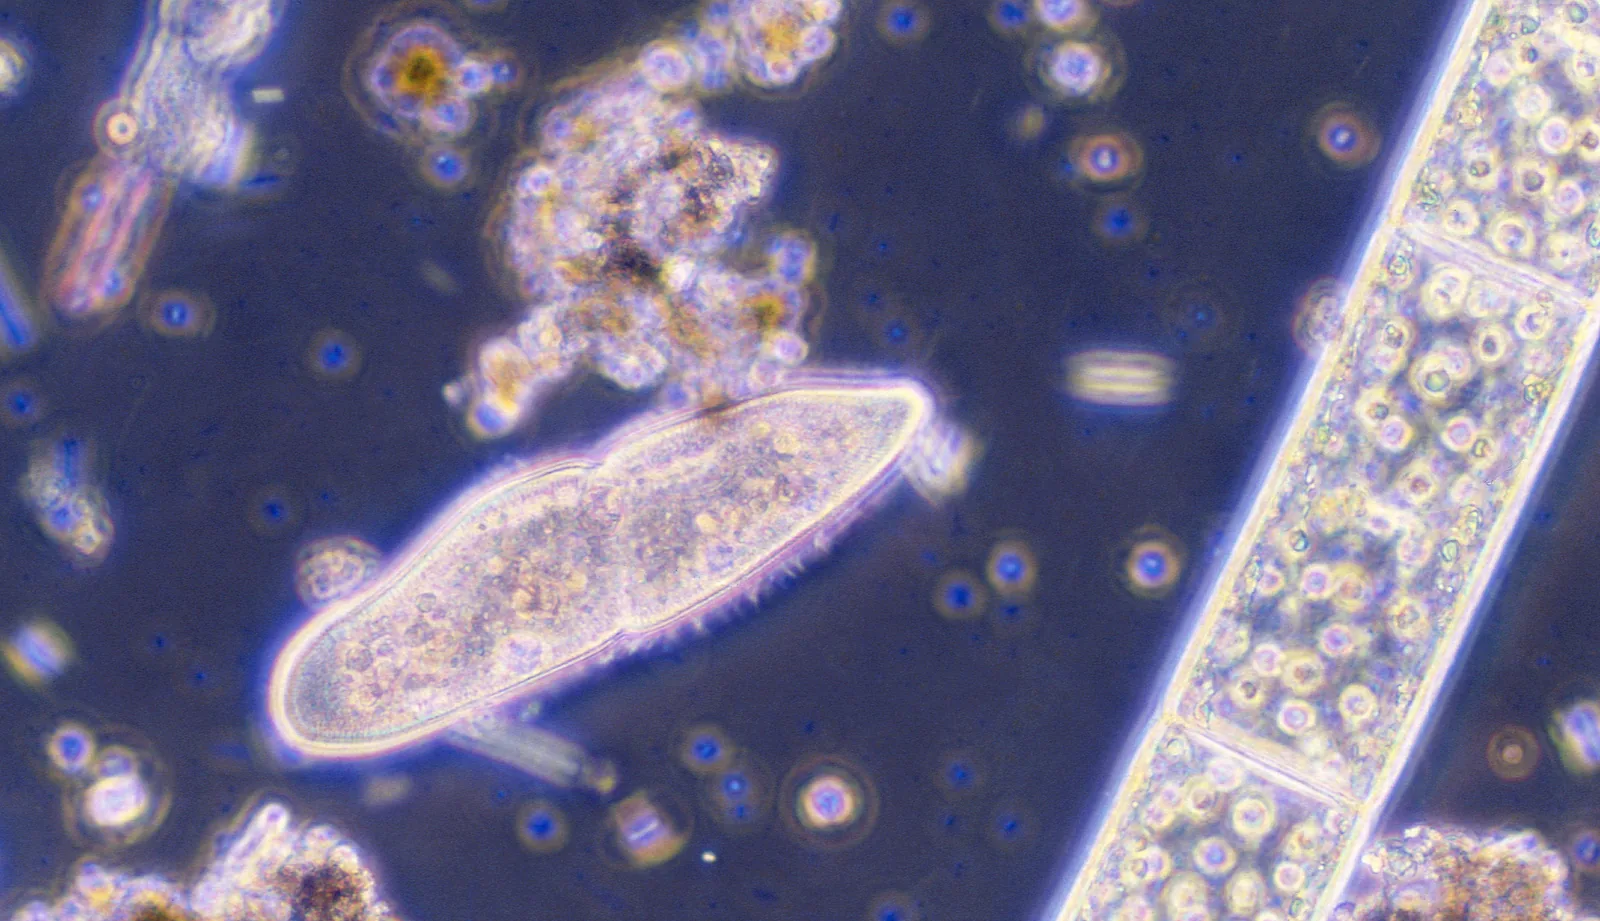
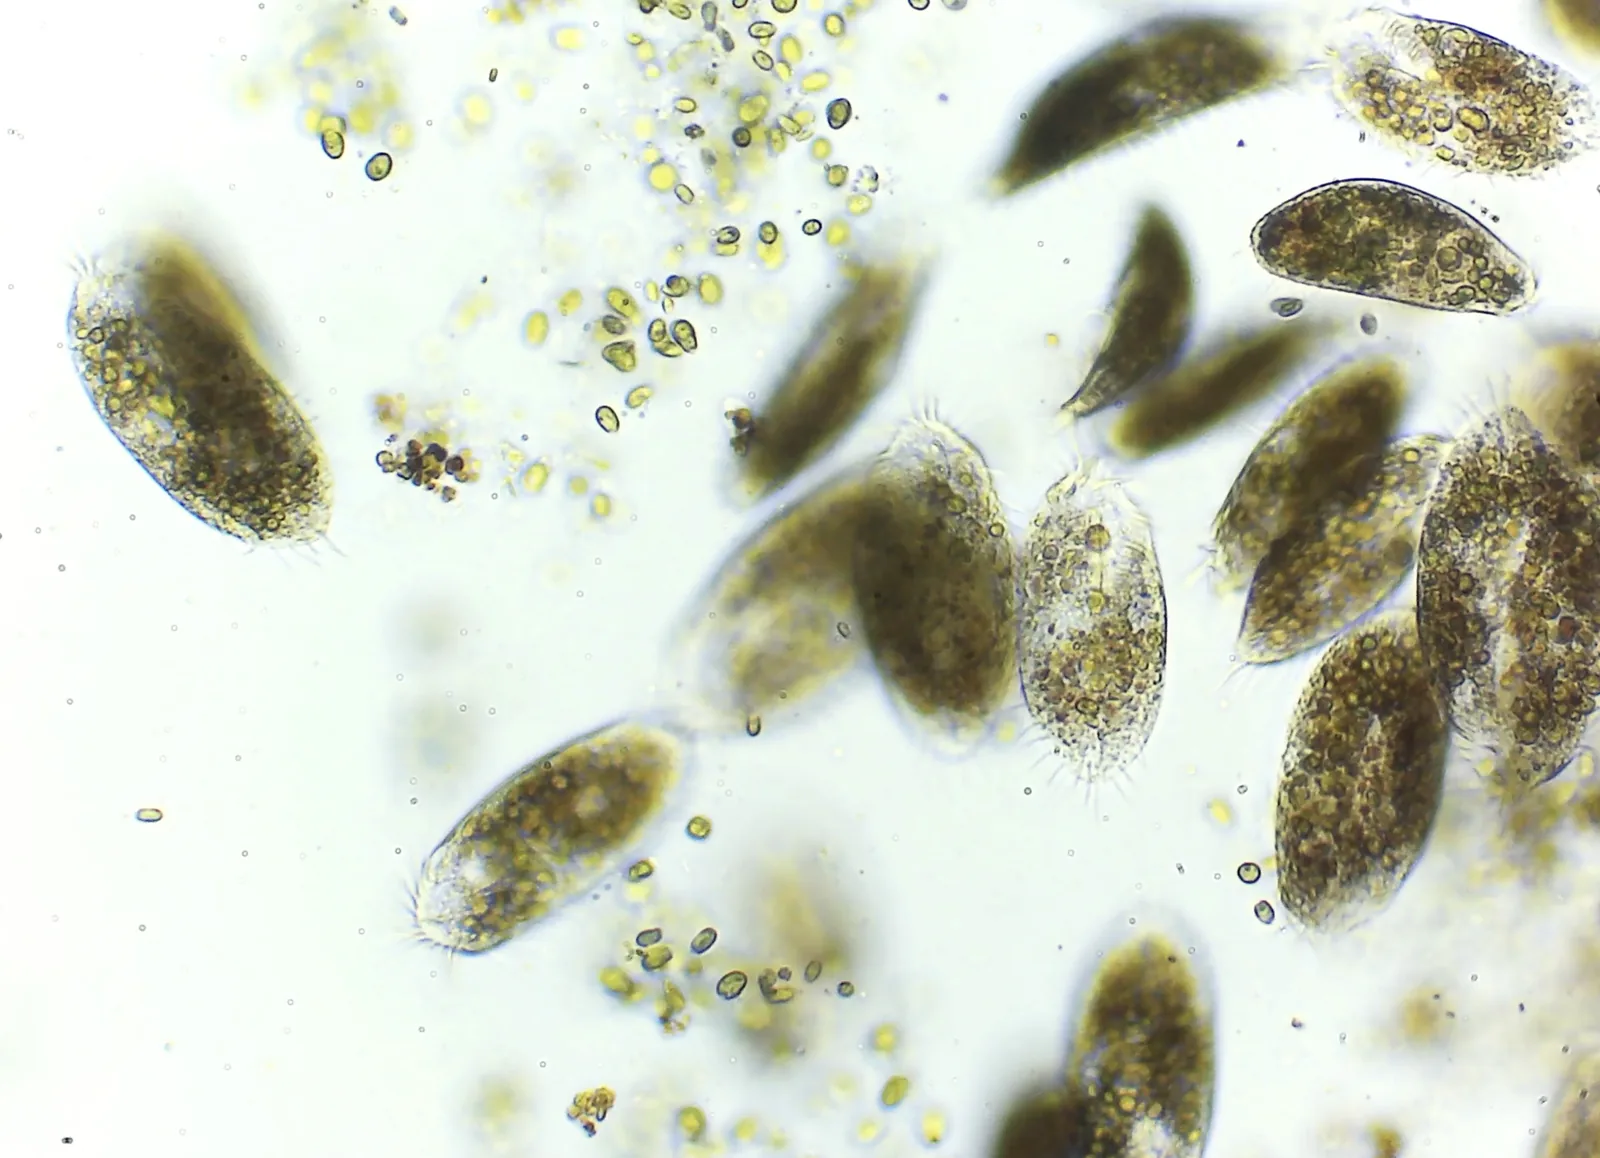
Строение клетки удобнее всего разбирать на туфельке хвостатой (Paramecium caudatum) длиной 180–300 мкм. У неё постоянная форма тела, напоминающая подошву туфли, ротовая впадина на брюшной стороне, тысячи ресничек, две сократительные вакуоли, крупный макронуклеус и маленький микронуклеус рядом с ним.
Пелликула и кортекс
Постоянную форму клетки поддерживает пелликула — сложная многослойная оболочка. Это не жёсткий панцирь, а гибкий упругий «корсет»: туфелька протискивается между водорослями, изгибаясь, и сразу восстанавливает форму. Пелликула вместе с лежащими под ней базальными телами ресничек и экструсомами образует кортекс — наружный слой клетки толщиной 1–2 мкм [1, 4].
Под плазматической мембраной лежат альвеолы — уплощённые мембранные мешочки, которые мозаикой покрывают всю клетку. Каждая ресничка выходит наружу между альвеолами. В альвеолах накапливается кальций, а кальций управляет биением ресничек и сокращением клетки. Альвеолы — общий признак трёх групп: инфузорий, динофлагеллят и апикомплексов. По этому признаку их и объединили в альвеоляты, а потом данные генов подтвердили родство. Под альвеолами — эпиплазма, белковый слой, к которому крепятся базальные тела.
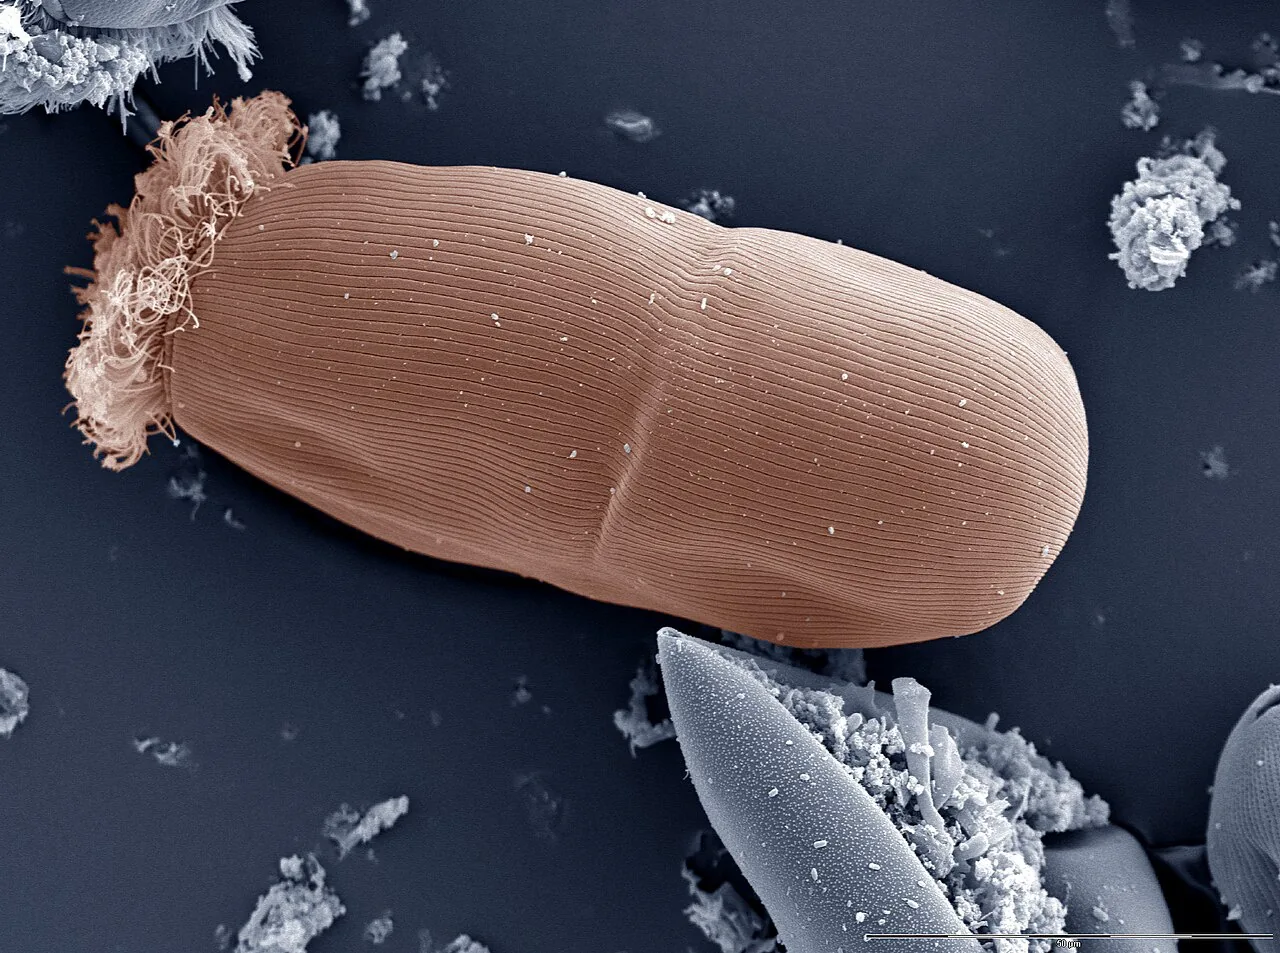
У туфельки поверхность расчерчена на шестиугольные ямки. В центре каждой — одна или две реснички, по краям — трихоцисты. Этот узор хорошо виден в сканирующем электронном микроскопе и после импрегнации серебром.
Интересный факт. В 1965 году Жанин Бейссон и Трейси Соннеборн микрохирургически вырезали у туфельки участок кортекса и вставили его повёрнутым на 180°. Ряды ресничек в этом участке били «против течения». Удивительно, что перевёрнутые ряды передавались потомкам сотни поколений, хотя гены клетки не менялись и при конъюгации новый ядерный аппарат не исправлял дефект. Строение кортекса наследуется через сам кортекс: новые базальные тела собираются рядом со старыми и копируют их ориентацию. Это классический пример наследования, не связанного с ДНК [5].
Реснички, цирры, мембранеллы
Реснички устроены как жгутики эукариот: внутри — аксонема из девяти пар микротрубочек по окружности и двух в центре (9 + 2), у основания — базальное тело (кинетосома). Изгибают ресничку моторные белки динеины, которые шагают по соседним парам микротрубочек; впервые динеин выделили именно из ресничек тетрахимены [6]. Ресничка совершает рабочий удар в выпрямленном состоянии и возвратный — изогнувшись, у самой поверхности. Соседние реснички бьют с небольшим сдвигом во времени, и по поверхности клетки бегут волны, как ветер по полю пшеницы. Такое согласованное биение называют метахронным. Туфелька плывёт со скоростью около 1 мм/с — это 3–5 длин тела в секунду, — вращаясь вокруг продольной оси.
Реснички бывают соматическими (покрывают тело, служат для движения) и ротовыми (подгоняют пищу). У многих инфузорий реснички объединены в сложные органоиды.
- Одна ресничкааксонема 9 + 2, базальное тело
- Гдепо всему телу рядами (соматические) и у рта
- Работабьют волнами — метахронно; плавание, подгон пищи
- Пучок ресничекдесятки ресничек, сидящих тесно и бьющих вместе
- Гдебрюшная сторона брюхоресничных
- Работакак ножки: «шагание» по субстрату, прыжки
- Пластинка2–4 ряда тесно сидящих ресничек
- Гдеу рта; ряд мембранелл — адоральная зона
- Работагонят воду с пищей к цитостому, у одних видов — плавание
- Цирры — толстые пучки из десятков ресничек, которые бьют вместе, как одно целое. Они есть у брюхоресничных инфузорий (стилонихия, эуплотес) на брюшной стороне. Опираясь на цирры, инфузория бегает по субстрату, как на ножках, и резко отпрыгивает назад.
- Мембранеллы — пластинки из двух-четырёх рядов тесно сидящих ресничек. Ряд мембранелл вдоль ротового поля образует адоральную зону мембранелл: она закручена спиралью и создаёт водоворот, который приносит пищу ко рту. Мембранеллы характерны для гетеротрих (стентор, спиростомум) и спиротрих.
- Ундулирующая (паророральная) мембрана — однорядная полоса ресничек вдоль правого края рта; у туфельки и тетрахимены она вместе с тремя мембранеллами образует ротовой аппарат.
Реснички управляются электрическими сигналами мембраны. Когда туфелька натыкается на препятствие, мембрана на переднем конце деполяризуется, открываются кальциевые каналы в мембране ресничек, кальций входит внутрь, и реснички меняют направление удара. Туфелька отплывает назад, поворачивается и снова плывёт вперёд, уже в другую сторону. Эту реакцию избегания описал в 1906 году Герберт Дженнингс [7], а её электрическую природу — Роджер Экерт в 1970-х [8]. Мутанты, у которых кальциевые каналы не работают, не умеют плыть назад; их назвали pawn — «пешка», потому что пешка в шахматах ходит только вперёд.
Интересный факт. В 1902 году Дженнингс наблюдал, как стентор, прикреплённый ко дну, реагирует на струйку частиц краски: сначала изгибается в сторону, затем меняет направление биения ресничек, потом сокращается и, наконец, отрывается и уплывает. Это выглядело как выбор стратегии одной клеткой. Опыты долго не удавалось повторить, и их считали недоразумением. В 2019 году их повторили с современной видеосъёмкой: стенторы действительно переходят от одной реакции к другой по определённой иерархии [9].
Инфрацилиатура
Базальное тело реснички вместе с отходящими от него волокнами называют кинетидой. Кинетиды выстроены в продольные ряды — кинеты. Вся система базальных тел и волокон под поверхностью клетки — инфрацилиатура [1]. От каждого базального тела отходят:
- кинетодесмальное волокно — исчерченный тяж, направленный вперёд и вправо вдоль кинеты; волокна соседних базальных тел перекрываются, как черепица;
- поперечная лента микротрубочек — влево, поперёк кинеты;
- постцилиарная лента микротрубочек — назад.
Расположение этих волокон постоянно у каждой группы и служит главным признаком в систематике. Инфрацилиатуру выявляют импрегнацией серебром или протарголом: в 1926 году Бруно Кляйн, обработав инфузорий нитратом серебра, увидел на них тонкую сеть линий, повторяющую ряды ресничек. Позже Эдуар Шаттон и Андре Львов сделали серебрение основой классификации инфузорий. Ротовая инфрацилиатура закладывается при каждом делении заново и проходит сложный морфогенез; по тому, как строится новый рот, судят о родстве групп.
Инфрацилиатура — не просто «корни» ресничек. Она удерживает реснички в нужной ориентации, передаёт усилие, служит каркасом для органоидов и при делении клетки определяет, где закладываются новые структуры. Из-за этого её называют «скелетом» кортекса.
Трихоцисты и другие экструсомы
Экструсомы — мембранные органоиды, которые при раздражении выбрасывают содержимое наружу. У инфузорий их несколько типов.
- Трихоцисты туфельки — веретеновидные тельца длиной 3–4 мкм, лежащие под пелликулой между базальными телами; их тысячи. При раздражении трихоциста за миллисекунды выстреливает наружу и вытягивается в исчерченную нить длиной 20–40 мкм — белковый кристалл мгновенно перестраивается. Долго спорили, зачем они нужны. Опыты показали: трихоцисты защищают туфельку от хищных инфузорий. Хищник дилептус, коснувшись туфельки, получает залп нитей и часто отпускает добычу, а туфелька успевает уплыть [10].
- Токсицисты хищных инфузорий (дидиниум, дилептус) — трубочки с ядом. Выстрелив в добычу, они парализуют её. Дидиниум, который вдвое-втрое меньше туфельки, целиком заглатывает её за минуту.
- Мукоцисты выделяют слизь: из неё строятся оболочки цист и домики.
- Гаптоцисты на кончиках щупалец сосущих инфузорий прикрепляются к добыче и вскрывают её мембрану.
Питание и пищеварение
Ротовой аппарат инфузорий устроен по общему плану. Реснички ротового поля собирают пищу и гонят её к цитостому — клеточному рту, участку мембраны, не покрытому альвеолами. Цитостом ведёт в цитофаринкс — клеточную глотку, трубку, стенки которой укреплены лентами микротрубочек. У туфельки перед цитостомом есть ещё ротовая впадина (вестибулум) и предротовая полость — буккальная, где работают мембранеллы и ундулирующая мембрана [1].
По способу добывания пищи инфузорий делят на несколько групп:
- фильтраторы — туфелька, тетрахимена, сувойка: ротовые реснички создают ток воды, из которого отцеживаются бактерии и мелкие водоросли; туфелька съедает за сутки тысячи бактерий;
- хищники — дидиниум, дилептус, хищные гетеротрихи: заглатывают других инфузорий, жгутиконосцев, коловраток; рот у них может сильно растягиваться;
- инфузории с «корзинкой» из палочек (немадесмами) у глотки — хилодонелла: они соскабливают диатомей и нитчатые водоросли;
- сосущие инфузории — без рта, высасывают добычу через щупальца;
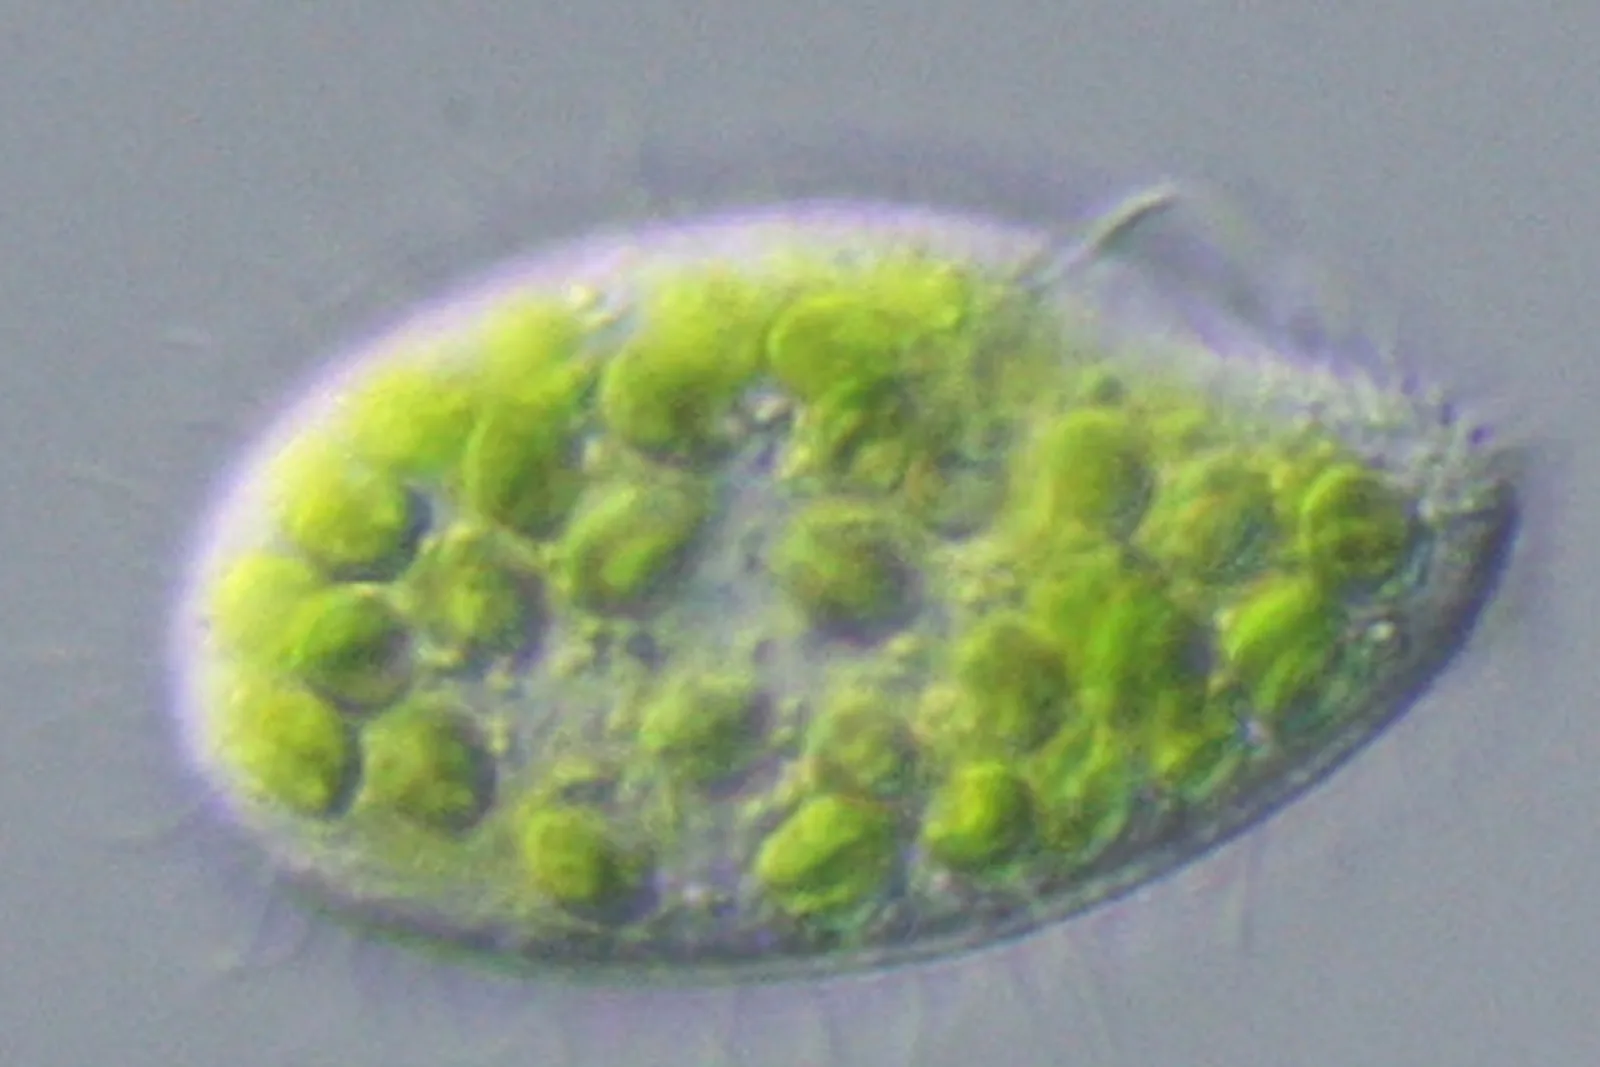
- симбиотрофы — туфелька зелёная (Paramecium bursaria) с сотнями клеток хлореллы, которые снабжают её сахарами;
- паразиты и симбионты животных — питаются содержимым кишечника и тканями хозяина.
На дне цитофаринкса пища собирается в пузырёк, который отрывается и становится пищеварительной вакуолью. У туфельки новая вакуоль образуется каждые несколько минут. Содержимое вакуоли сначала резко закисляется — в мембрану встраиваются протонные насосы, — и добыча погибает. Затем с вакуолью сливаются лизосомы, pH повышается до значений, оптимальных для ферментов, и начинается переваривание. Продукты расщепления выходят в цитоплазму, мембрана вакуоли уменьшается за счёт отшнуровывающихся пузырьков. Вакуоль движется по клетке с током цитоплазмы по определённому пути и наконец подходит к цитопрокту (порошице) — постоянному месту на пелликуле, где сливается с мембраной и выбрасывает непереваренные остатки. Весь цикл занимает от получаса до нескольких часов. Мембраны опустевших вакуолей возвращаются к глотке в виде пузырьков и снова используются для новых вакуолей [11].
Как это увидеть. Если дать туфелькам съесть частицы, окрашенные индикатором (конго красным или нейтральным красным), видно, как меняется цвет вакуолей при закислении и последующем ощелачивании. Этот классический опыт показывает этапы пищеварения в одной клетке.
Сократительные вакуоли
Цитоплазма пресноводной инфузории концентрированнее окружающей воды, поэтому вода постоянно входит в клетку осмосом. Без откачки клетка раздулась бы и лопнула. Эту работу выполняют сократительные вакуоли. У туфельки их две — у переднего и заднего концов. Вокруг каждой — пять-десять приводящих каналов, которые собирают воду из цитоплазмы через сеть тончайших трубочек (спонгиом). Каналы наполняются, затем вода изливается в центральный резервуар, и он, сокращаясь, выбрасывает её наружу через постоянную пору в пелликуле. Каналы и резервуар работают поочерёдно, поэтому при наблюдении видна «звёздочка», которая то появляется, то исчезает. В пресной воде вакуоль сокращается каждые несколько секунд и за десятки минут откачивает объём воды, равный объёму всей клетки [12].
Вода накачивается в спонгиом не мышечной силой: мембраны трубочек усеяны протонными насосами (V-АТФазами), которые создают градиент, и вода идёт вслед за ионами. Сокращение резервуара — результат натяжения мембраны и цитоскелета вокруг. У морских инфузорий, живущих в изотонической среде, сократительные вакуоли работают медленно или их нет. Если перенести туфелек в более солёную воду, вакуоли сокращаются реже — это любимый школьный опыт. Подробнее об осморегуляции — статья «Осморегуляция».
Ядерный аппарат
У каждой инфузории ядра двух типов, и они делят между собой работу, которую у других эукариот выполняет одно ядро [13, 14].
| Признак | Микронуклеус | Макронуклеус |
|---|---|---|
| Функция | Генеративная: хранит наследственную информацию для потомков | Соматическая: управляет жизнью клетки, на нём синтезируется почти вся РНК |
| Размер | Мелкий, 1–5 мкм | Крупный, у туфельки 30–40 мкм |
| Набор хромосом | Диплоидный, обычные хромосомы с центромерами | Полиплоидный: сотни и тысячи копий генов на мелких «хромосомах» без центромер |
| Транскрипция | Почти не идёт | Идёт активно, ядрышек много |
| Деление | Митоз (закрытый, веретено внутри ядра); при половом процессе — мейоз | Амитоз — без конденсации хромосом и веретена |
| Судьба при половом процессе | Даёт пронуклеусы, затем новые микро- и макронуклеусы | Разрушается; новый развивается из продукта деления синкариона |
| Если удалить | Клетка живёт и делится, но не может конъюгировать (бывают природные безмикронуклеусные линии) | Клетка погибает |
Число ядер у разных видов разное. У туфельки хвостатой один макронуклеус и один микронуклеус, у туфельки золотистой — один макронуклеус и два микронуклеуса, у стентора — чётковидный макронуклеус и десятки микронуклеусов, у кариореликтовых инфузорий — множество мелких ядер обоих типов.
Микронуклеус
Микронуклеус — обычное диплоидное ядро с плотно упакованным хроматином. В период роста клетки он почти не транскрибируется; гены, которые в нём записаны, «включаются» только в виде макронуклеуса следующего поколения. Перед делением клетки микронуклеус делится митозом. Митоз у инфузорий закрытый: ядерная оболочка не разрушается, а веретено деления образуется внутри ядра.
Макронуклеусы различных типов
Макронуклеусы разных инфузорий различаются формой, числом и внутренним строением [13].
- Компактныйокруглый или колбасовидный; туфелька, тетрахимена
- Лентовидныйподковообразный; сувойка, эуплотес
- Ветвистыйсосущие инфузории (эфелота)
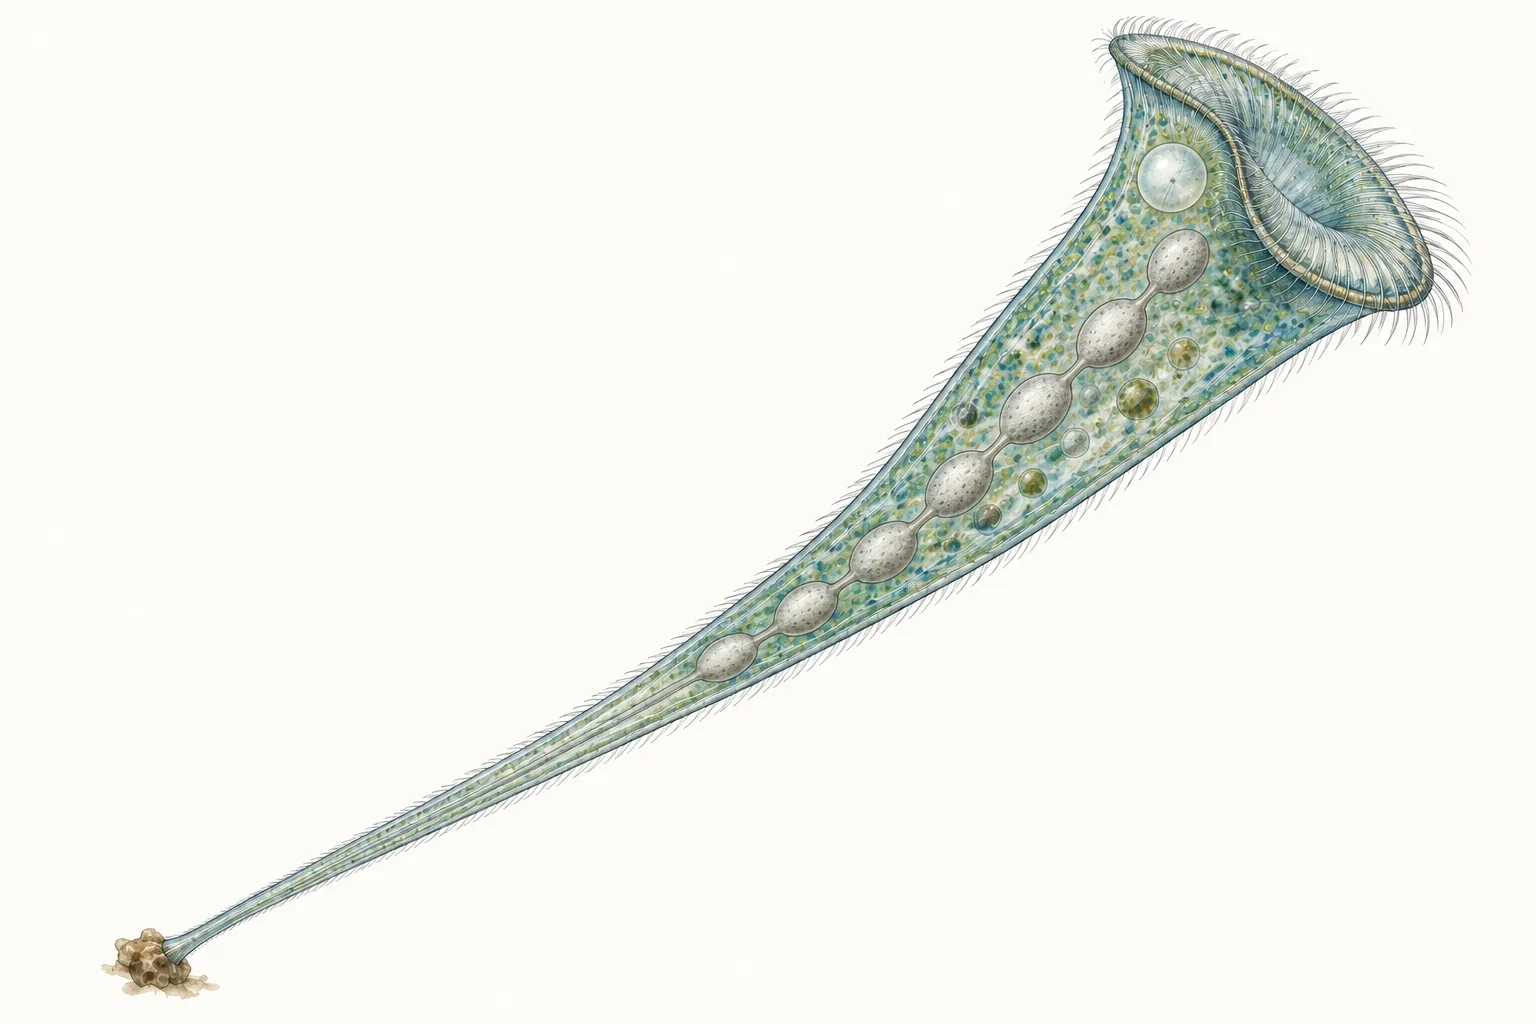
- Чётковидныйбусины соединены перемычками; стентор, спиростомум
- Из нескольких частейстилонихия — два, уростила — десятки
- Неделящиесямного почти диплоидных макронуклеусов; кариореликтовые
- Гомомерныйхроматин однороден — большинство инфузорий
- Гетеромерныйдве зоны: с ДНК и с ядрышками; хилодонелла
- С полосами репликацииДНК удваивается волной, бегущей вдоль ядра; брюхоресничные
- По форме: компактный округлый или колбасовидный (туфелька, тетрахимена), лентовидный подковообразный (сувойка, эуплотес), чётковидный — цепочка бусин, соединённых тонкими перемычками (стентор, спиростомум), ветвистый (некоторые сосущие инфузории), разделённый на несколько частей (у стилонихии два, у уростилы — десятки).
- По внутреннему строению: гомомерный — хроматин распределён равномерно, с множеством ядрышек (большинство инфузорий); гетеромерный — ядро разделено на две зоны, одна содержит основную массу ДНК, вторая — ядрышки (хилодонелла и другие филлофаринги).
- По способу репликации: у брюхоресничных инфузорий ДНК удваивается не одновременно во всём ядре, а в узкой зоне — полосе репликации, которая, как волна, проходит от конца к концу макронуклеуса.
- Неделящиеся макронуклеусы кариореликтовых инфузорий (локсодес, трахелорафис) — особый тип. Они почти диплоидны, никогда не делятся и при каждом делении клетки заново образуются из делящихся микронуклеусов. И. Б. Райков считал это древним состоянием ядерного дуализма — отсюда и название группы («реликтовые по ядрам»). Молекулярные данные показали, что кариореликтовые — действительно одна из ранних ветвей, но неделящийся макронуклеус мог возникнуть у них и вторично [13, 1].
Интересный факт. Стентор — рекордсмен регенерации. Если разрезать его на части, каждая часть, содержащая хотя бы одну «бусину» макронуклеуса, восстанавливает целую клетку со ртом, мембранеллами и сократительной вакуолью. В опытах конца XIX века клетку восстанавливали фрагменты объёмом всего около 1/27 исходной. Без макронуклеуса фрагмент живёт несколько дней, но не регенерирует [15].
Деление микро- и макронуклеуса
Инфузории размножаются поперечным делением надвое. Перед делением удваиваются все органоиды: закладывается новый ротовой аппарат, образуются новые базальные тела, сократительные вакуоли. Ядра делятся каждое по-своему.
Микронуклеус делится митозом. Хромосомы конденсируются и расходятся по веретену внутри ядерной оболочки, ядро вытягивается и перешнуровывается. Каждая дочерняя клетка получает точную копию диплоидного набора.
Макронуклеус делится амитозом. ДНК предварительно удваивается, затем ядро вытягивается и перетягивается пополам. Хромосомы при этом не конденсируются и веретена нет: десятки или сотни копий каждой хромосомы распределяются между дочерними ядрами случайно. Внутри ядра работают микротрубочки, которые растягивают его, но к хромосомам они не прикрепляются. У тетрахимены и туфельки при делении часть хроматина может выбрасываться из ядра в виде отдельных телец — так клетка регулирует количество ДНК [14].
Одни инфузории делят макронуклеус при помощи микротрубочек внутри ядра (интрамакронуклеаты — большинство групп), другие — микротрубочками, лежащими снаружи ядра (гетеротрихи), а у кариореликтовых макронуклеусы вовсе не делятся. Этот признак лёг в основу деления типа на два подтипа [1].
Конъюгация
Половой процесс инфузорий — конъюгация. Две особи соединяются, обмениваются гаплоидными ядрами и расходятся. Число особей при этом не меняется: это половой процесс без размножения. Его смысл — не в увеличении числа потомков, а в перекомбинации генов и обновлении макронуклеуса [1, 13].
Конъюгация начинается, когда клетки голодают и встречают партнёра другого типа спаривания (о типах — ниже). Партнёры слипаются ротовыми сторонами, в месте контакта пелликула разрушается, и между клетками образуется цитоплазматический мостик. Дальше события идут с ядрами. Разберём их на туфельке хвостатой.
- Мейоз. Микронуклеус каждой особи увеличивается, вытягивается в «полумесяц» и делится мейозом. Получаются четыре гаплоидных ядра.
- Отбор одного ядра. Три ядра разрушаются. Остаётся одно — обычно то, которое оказалось у ротового конуса возле мостика.
- Образование пронуклеусов. Оставшееся ядро делится митозом. Получаются два генетически одинаковых гаплоидных пронуклеуса: стационарный (остаётся в клетке) и мигрирующий (переходит в партнёра).
- Перекрёстное оплодотворение. Мигрирующие пронуклеусы одновременно переходят по мостику в партнёров и сливаются с их стационарными пронуклеусами. В каждой особи образуется диплоидное ядро — синкарион.
- Расхождение. Особи расходятся. Их теперь называют эксконъюгантами. Синкарионы у обоих одинаковы по генотипу: каждый получил половину генов «от себя» и половину от партнёра, причём одни и те же половины.
Пока идёт обмен ядрами, старый макронуклеус вытягивается в извитую ленту, распадается на десятки фрагментов, и они постепенно разрушаются в цитоплазме. Фрагменты продолжают транскрибироваться и обеспечивают клетку белками до тех пор, пока не заработает новый макронуклеус. Разрушение старого макронуклеуса — запрограммированная гибель ядра, похожая на апоптоз [1].
У туфельки золотистой два микронуклеуса, оба делятся мейозом, и из восьми гаплоидных ядер семь разрушаются. У сувоек и других кругоресничных конъюгация неравная: от колонии отделяется маленький подвижный микроконъюгант, полностью сливается с прикреплённым макроконъюгантом, и из пары получается одна особь. У сосущих инфузорий и некоторых других групп тоже бывает полное слияние партнёров.
Восстановление нормального ядерного аппарата
После конъюгации у эксконъюганта есть только синкарион, а для жизни нужны макронуклеус и микронуклеус. Нормальный ядерный аппарат восстанавливается в несколько делений, и у разных видов по-разному [1].
- Синкарион делится трижды8 ядер
- 4 ядразачатки новых макронуклеусов
- 3 ядраразрушаются
- 1 ядростановится микронуклеусом и делится при каждом делении клетки
- Два деления клетки4 особи, в каждой 1 макронуклеус и 1 микронуклеус
- Синкарион делится дважды4 ядра
- 2 ядразачатки макронуклеусов
- 2 ядрамикронуклеусы, каждый делится митозом
- Одно деление клетки2 особи, в каждой 1 макронуклеус и 2 микронуклеуса
Туфелька хвостатая. Синкарион делится митозом три раза подряд, и в клетке оказывается восемь диплоидных ядер. Четыре из них набухают и превращаются в зачатки макронуклеусов, три разрушаются, одно становится микронуклеусом. Затем клетка делится дважды. При каждом делении микронуклеус делится митозом, а зачатки макронуклеусов распределяются между дочерними клетками, не делясь. После двух делений получаются четыре особи, и у каждой — один макронуклеус и один микронуклеус. Так восстанавливается нормальный ядерный аппарат.
Туфелька золотистая. Синкарион делится дважды; два ядра становятся зачатками макронуклеусов, два — микронуклеусами. Микронуклеусы делятся ещё раз, и при первом делении клетки каждая дочерняя клетка получает один зачаток макронуклеуса и два микронуклеуса.
Пока новый макронуклеус развивается, в клетке работают фрагменты старого. Само превращение диплоидного ядра в макронуклеус — сложнейший процесс перестройки генома, о нём — в следующем разделе.
Макронуклеус как «мешок с генами»
Макронуклеус называют «мешком с генами», и это выражение точно передаёт его устройство. В нём нет обычных хромосом с центромерами, нет пар гомологов, нет митоза. Гены лежат на множестве мелких молекул ДНК, каждая из которых представлена десятками, сотнями или тысячами копий. При делении макронуклеуса копии распределяются случайно, как горошины из мешка [14, 16].
Как это получается? При развитии нового макронуклеуса из диплоидного ядра происходят перестройки, которых нет больше нигде в мире эукариот:
- удаление ДНК. Из генома вырезается вся повторяющаяся ДНК и тысячи коротких вставок внутри генов (у туфельки — около 45 тысяч таких вставок); у тетрахимены теряется около трети ДНК микронуклеуса, у окситрихи — более 90 % [17, 18, 19];
- фрагментация. Хромосомы рвутся на куски. У тетрахимены из пяти хромосом микронуклеуса получается около 180 хромосом макронуклеуса, у окситрихи — около 16 тысяч «нанохромосом» длиной в среднем около 3 тысяч пар нуклеотидов, большинство из которых несёт всего один ген [16];
- достройка теломер на концах каждого фрагмента;
- амплификация — каждая молекула копируется много раз.
Как клетка «знает», какую ДНК выбросить? В 2002 году К. Мотидзуки и коллеги показали, что во время конъюгации весь геном микронуклеуса транскрибируется и нарезается на короткие РНК (scnRNA, «сканирующие» РНК). Эти РНК сравниваются с ДНК старого макронуклеуса. Те, что находят себе пару, выбывают из игры; оставшиеся — комплементарные только ДНК, которой нет в старом макронуклеусе, — направляют удаление этих участков в новом [20]. Получается, что старый макронуклеус служит образцом для нового. Это объясняет загадочные опыты с наследованием через цитоплазму: если искусственно ввести в старый макронуклеус участок, который обычно удаляется, он сохранится и в новом.
У окситрихи всё ещё удивительнее. Гены в её микронуклеусе разорваны на фрагменты, и в нескольких тысячах генов эти фрагменты перемешаны и даже перевёрнуты. При развитии макронуклеуса их собирают в правильном порядке, и шаблоном служат длинные РНК, считанные со старого макронуклеуса [21, 19].
У «мешка с генами» есть интересное следствие. Если в микронуклеусе две разные аллели гена (гетерозигота), в молодом макронуклеусе их копий примерно поровну. Но при каждом амитотическом делении копии распределяются случайно, и через несколько десятков делений в некоторых клонах остаются копии только одной аллели. Клон, генетически гетерозиготный по микронуклеусу, становится фенотипически «гомозиготным». Это явление у тетрахимены называют фенотипическим расхождением (phenotypic assortment) [14].
Интересный факт. Мелкие хромосомы макронуклеуса тетрахимены оказались идеальным объектом для изучения концов хромосом: на каждую клетку их тысячи копий. В 1978 году Элизабет Блэкберн и Джозеф Голл нашли на концах молекул рибосомной ДНК тетрахимены повторы TTGGGG [22]. В 1985 году Блэкберн и её аспирантка Кэрол Грейдер открыли фермент теломеразу, который достраивает эти повторы [23]. Нобелевская премия 2009 года. А в 1982 году Томас Чек обнаружил, что предшественник рибосомной РНК тетрахимены сам вырезает из себя интрон без участия белков: РНК может быть ферментом [24]. Нобелевская премия 1989 года.
Автогамия
Автогамия — самооплодотворение внутри одной клетки. Её открыл в 1936 году Уильям Диллер у туфельки золотистой [25]. Голодающая особь без партнёра проходит те же этапы, что при конъюгации, но в одиночку:
- оба микронуклеуса делятся мейозом, из восьми гаплоидных ядер семь разрушаются;
- оставшееся ядро делится митозом на два одинаковых пронуклеуса;
- пронуклеусы сливаются друг с другом — образуется синкарион;
- старый макронуклеус распадается, ядерный аппарат восстанавливается так же, как после конъюгации.
Поскольку оба пронуклеуса — копии одного гаплоидного ядра, синкарион оказывается полностью гомозиготным по всем генам за одно поколение. У растений и животных для этого нужны десятки поколений близкородственного скрещивания. Генетики туфельки этим пользуются: после автогамии рецессивные мутации сразу проявляются.
Конъюгация и автогамия нужны инфузории не только для перекомбинации генов. Макронуклеус при амитотических делениях постепенно «изнашивается»: накапливаются нарушения в числе копий генов. Ещё в 1889 году Эмиль Мопа заметил, что клоны инфузорий, которых не допускают к конъюгации, стареют и вымирают [26]. У туфельки золотистой клон без автогамии и конъюгации погибает примерно через 200 делений. Половой процесс заменяет изношенный макронуклеус новым — это «омоложение» клона [1].
Сингены и типы спаривания
Туфельки конъюгируют не с любым партнёром. В 1937 году Трейси Соннеборн обнаружил, что внутри вида туфелька золотистая есть группы клонов, которые не конъюгируют внутри себя, а конъюгируют только с клонами другой группы. Он назвал эти группы типами спаривания [27]. Это аналог полов, но без отличий в строении: оба партнёра одновременно отдают и получают пронуклеус.
Дальнейшие опыты показали, что «вид» туфелька золотистая состоит из групп, между которыми конъюгация невозможна или даёт нежизнеспособное потомство. Каждая такая группа включает два типа спаривания, которые скрещиваются только между собой. Группы назвали сингенами (от греч. «происходящие вместе»). Сингены не отличались внешне, но были репродуктивно изолированы — по сути, это виды-двойники. В 1975 году Соннеборн дал им видовые названия: Paramecium primaurelia, P. biaurelia, P. tetraurelia и так далее — комплекс из 14 видов (позже описаны ещё) [28].
Число типов спаривания у разных инфузорий разное: у видов комплекса туфельки золотистой — по два, у тетрахимены Tetrahymena thermophila — семь, у эуплотесов и блефаризм — много, и партнёры узнают друг друга по выделяемым белкам-феромонам.
Как определяется тип спаривания, выяснили только недавно, и это снова история о перестройках генома.
- У тетрахимены в микронуклеусе записаны неполные копии генов всех семи типов. При развитии нового макронуклеуса случайно сохраняется одна пара сегментов, остальные вырезаются. Поэтому потомки одной пары могут получить разные типы спаривания [29].
- У туфельки P. tetraurelia тип спаривания наследуется по цитоплазме: эксконъюганты обычно получают тип того родителя, чья цитоплазма у них осталась. Причина — в механизме сканирующих РНК: если в старом макронуклеусе ген типа спаривания был удалён, РНК направят его удаление и в новом [30].
Не путать. Типы спаривания — это не пол и не «мужские» и «женские» особи. При конъюгации мигрирующий пронуклеус условно называют «мужским», а стационарный — «женским», но каждая особь имеет оба и одновременно передаёт и получает генетический материал.
Основные группы инфузорий
В учебниках зоологии инфузорий традиционно делят на группы по характеру ресничного покрова и ротового аппарата: равноресничные, спиральноресничные, брюхоресничные, кругоресничные, сосущие. Эта система наглядна, но не вполне отражает родство. Современная система построена на строении инфрацилиатуры, морфогенезе ротового аппарата и данных генов [1, 31].
- Инфузории — реснички в рядах-кинетах, два типа ядер, конъюгация
- Постцилиодесматофоры — макронуклеус делится с участием микротрубочек снаружи ядра или не делится
- Кариореликтовые — локсодес, трахелорафис
- Гетеротрихи — стентор, спиростомум, блефаризма
- Интрамакронуклеаты — макронуклеус делится с помощью микротрубочек внутри ядра
- Спиротрихи — стилонихия, эуплотес, тинтинниды
- Литостоматы — дидиниум, балантидий, инфузории рубца
- Филлофаринги — хилодонелла, сосущие инфузории
- Олигогименофоры — туфелька, тетрахимена, сувойка, ихтиофтириус
- Показаны 6 из более чем десяти классов; спиротрихи и литостоматы — одна крупная ветвь интрамакронуклеат, филлофаринги и олигогименофоры — другая
| Группа | Признаки | Примеры | Место в современной системе |
|---|---|---|---|
| Кариореликтовые (Karyorelictida) | Длинные червеобразные инфузории морского песка; неделящиеся почти диплоидные макронуклеусы | Локсодес, трахелорафис, трахелоцерка | Класс Karyorelictea, ранняя ветвь (подтип Postciliodesmatophora) |
| Равноресничные (Holotricha) | Реснички равномерно покрывают тело, ротовые реснички не образуют выраженной адоральной зоны | Дидиниум, колепс, колпода, балантидий, хилодонелла | Искусственная группа: её представители распределены по разным классам (литостоматы, колподеи, простоматы, филлофаринги) |
| Олигогименофоры (Oligohymenophora) | Ротовой аппарат из ундулирующей мембраны и трёх мембранелл (у тетрахимены — «тетрагимениум»); соматические реснички равномерные | Туфелька, тетрахимена, ихтиофтириус | Класс Oligohymenophorea; к нему же относятся кругоресничные |
| Спиральноресничные (Spirotricha) | Мощная адоральная зона мембранелл, закрученная по часовой стрелке к цитостому | Стентор, спиростомум, блефаризма, бурсария, тинтинниды | Стентор и спиростомум — класс Heterotrichea; тинтинниды и олиготрихи — класс Spirotrichea |
| Брюхоресничные (Hypotricha) | Тело уплощено, на брюшной стороне — цирры, на спинной — короткие осязательные реснички; адоральная зона мембранелл | Стилонихия, окситриха, эуплотес | Входят в класс Spirotrichea |
| Кругоресничные (Peritricha) | Сидячие, на стебельке или в домике; реснички только вокруг ротового диска, закручены против часовой стрелки; расселяются подвижной бродяжкой | Сувойка, кархезиум, зоотамниум, триходина (подвижная, на рыбах) | Подкласс Peritrichia класса Oligohymenophorea |
| Сосущие (Suctoria) | Взрослые без ресничек и рта, со щупальцами; размножаются почкованием, расселяются ресничными бродяжками | Токофрия, акинета, эфелота, сферофрия | Подкласс Suctoria класса Phyllopharyngea |
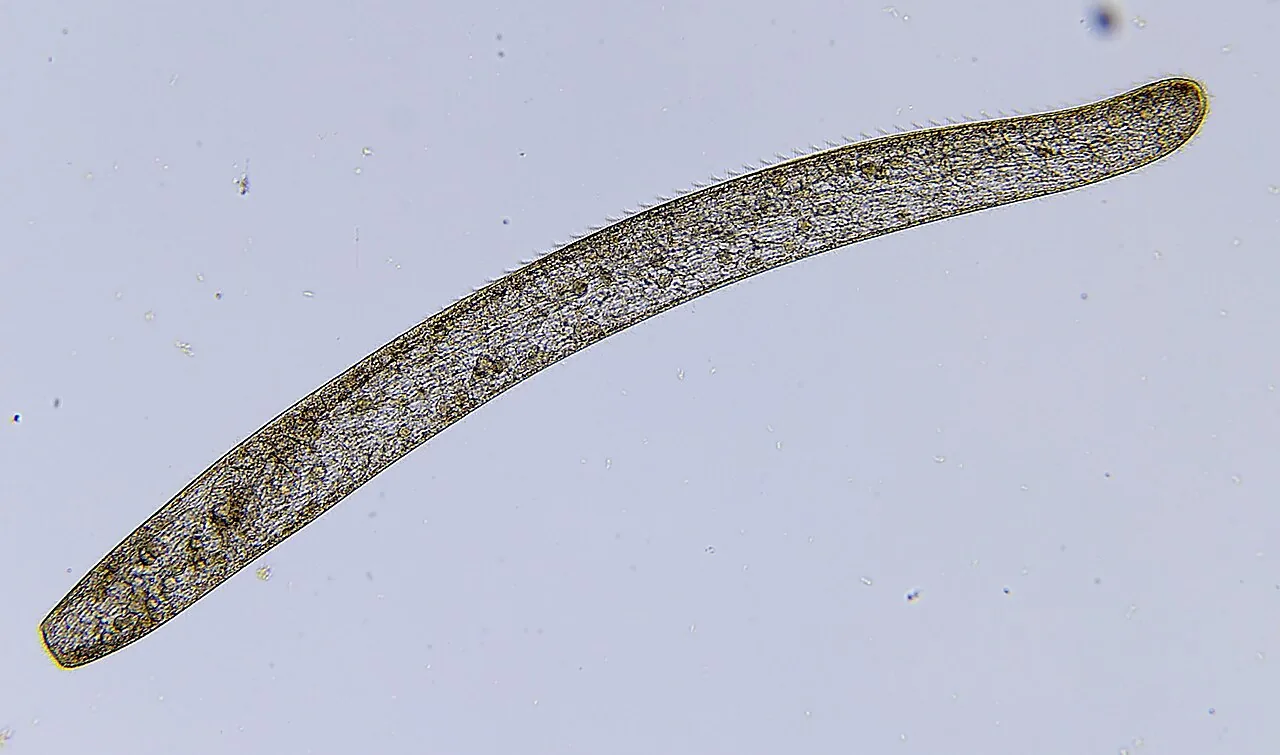
Кариореликтовые. Живут в промежутках между песчинками морских пляжей и в бедных кислородом осадках. Тело длинное, гибкое, сильно сократимое. Многочисленные макронуклеусы почти диплоидны и не делятся. Пресноводный локсодес чувствует гравитацию благодаря особым тельцам с кристаллами бария — так он держится в слое воды с нужным содержанием кислорода.
Равноресничные — сборная группа. Сюда относили хищного дидиниума с ротовым хоботком и токсицистами, колепса в панцире из известковых пластинок, почвенную колподу, которая при высыхании за минуты превращается в цисту, и единственного паразита человека среди инфузорий — балантидия (Balantidium coli). Балантидий обычно живёт в кишечнике свиней, а у человека может вызывать язвенное поражение толстой кишки (балантидиаз).
Олигогименофоры. Туфелька и тетрахимена — главные «лабораторные» инфузории. Тетрахимену легко выращивать на питательной среде без бактерий, она быстро делится (около двух часов), её геном расшифрован. К этому же классу относится ихтиофтириус — паразит кожи рыб, вызывающий «манку» (белые точки), бич рыбоводных хозяйств и аквариумов.
Спиральноресничные. Стентор — синий или зелёный «рупор» длиной до 2 мм — прикрепляется к водорослям, раскрывает околоротовую воронку и при опасности мгновенно сжимается в комочек. Сокращение обеспечивают пучки сократимых фибрилл (мионем). Спиростомум длиной до 3–4 мм сокращается вдвое за несколько миллисекунд — одно из самых быстрых движений в живой природе. Тинтинниды строят домики-лорики из белка с налипшими частицами; их пустые лорики хорошо сохраняются в осадках.
Брюхоресничные. Стилонихия и эуплотес бегают по дну и водорослям на циррах. По цирре можно узнать вид: число и расположение цирр постоянны. Окситриха прославилась макронуклеусом из 16 тысяч нанохромосом. У эуплотеса генетический код изменён: кодон UGA, обычно стоп-кодон, означает цистеин.
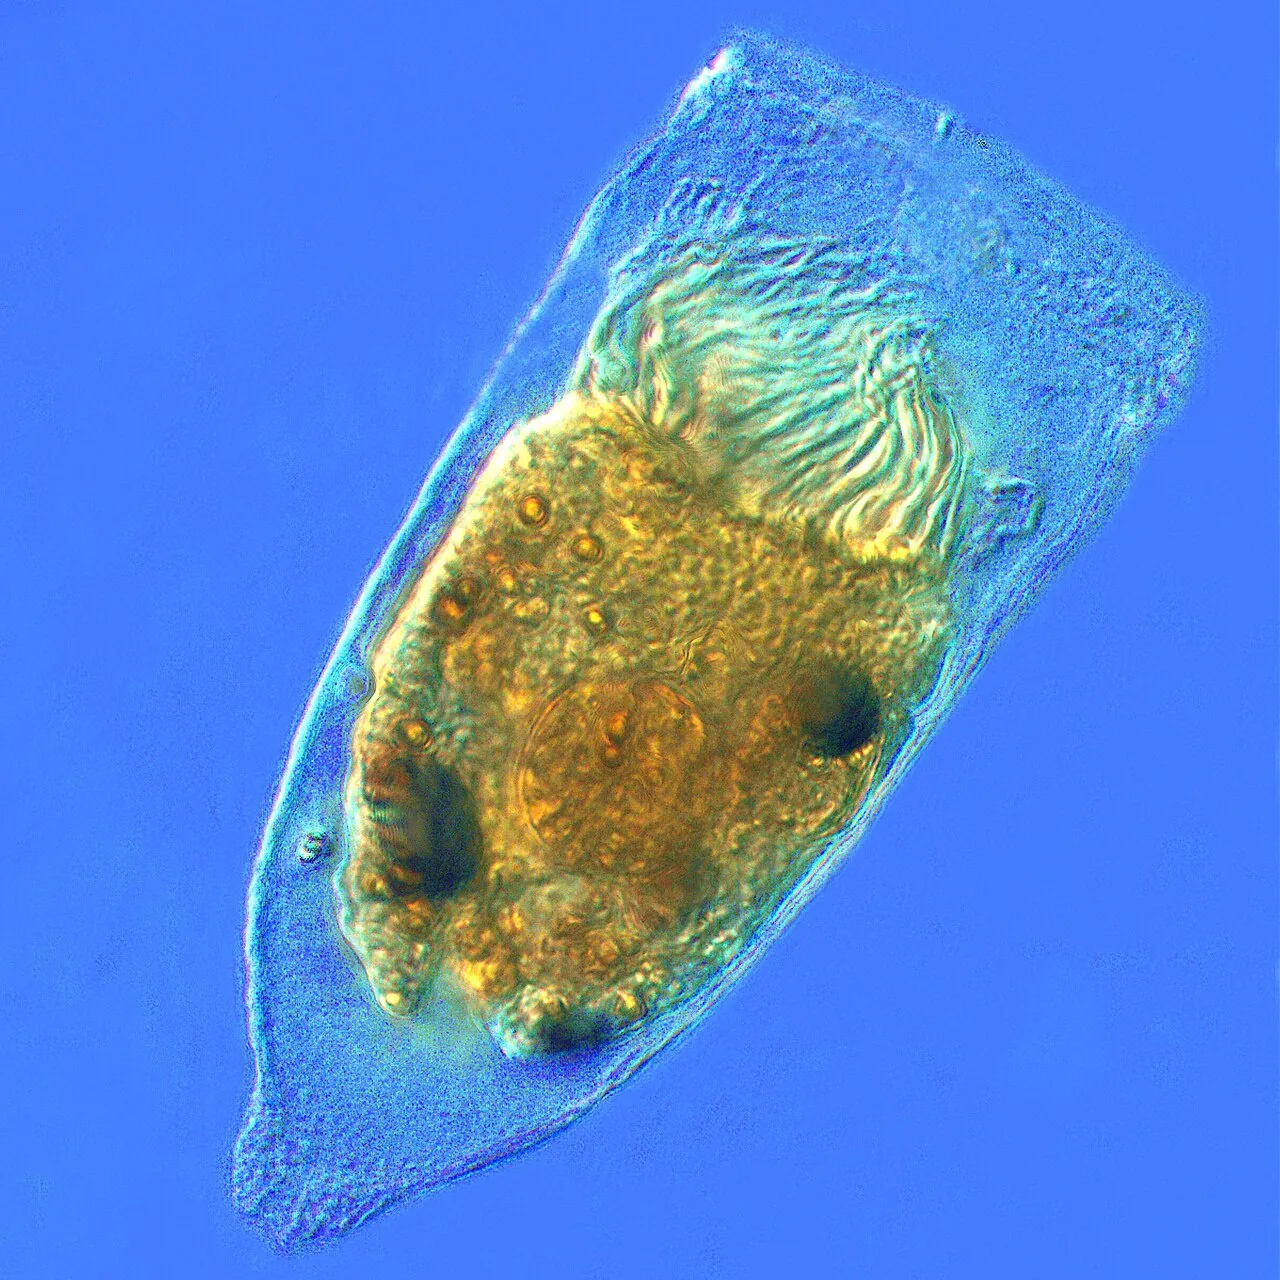
Кругоресничные. Сувойка (Vorticella) — колокольчик на тонком стебельке. В стебельке проходит спиральная сократимая нить — спазмонема из белка спазмина. При раздражении ион кальция заставляет спазмонему сжаться, и стебелёк за миллисекунды закручивается штопором, втягивая колокольчик к опоре. По скорости относительно длины тела это одно из самых быстрых движений в живом мире [32]. Кархезиум и зоотамниум образуют ветвистые колонии. Триходина — подвижная кругоресничная инфузория с зубчатым диском, ползающая по коже и жабрам рыб.
Сосущие. Взрослые сосущие инфузории похожи на маленькие шарики на стебельке с пучками щупалец. Щупальце касается проплывающей инфузории, гаптоцисты прикрепляются к ней, и содержимое добычи перетекает по каналу щупальца в хищника. Ресничек у взрослых нет, но размножаются сосущие почкованием, и бродяжки покрыты ресничками — именно это и показывает, что они инфузории. Некоторые сосущие живут внутри других инфузорий.
Значение инфузорий в природе
- Пищевые цепи водоёмов. Инфузории — главные потребители бактерий и мелких жгутиконосцев. Через них энергия и вещество бактерий, питающихся растворённой органикой, возвращаются в пищевые цепи — в зоопланктон, мальков рыб. Этот путь называют микробной петлёй [33]. Морские тинтинниды и олиготрихи — важная пища веслоногих рачков.
- Очистка воды. В аэротенках очистных сооружений инфузории поедают бактерии и взвешенные частицы, вода светлеет. Сувойки, кархезиумы, эуплотесы — показатели того, как работает активный ил: по составу инфузорий технологи судят о качестве очистки [34].
- Биоиндикация. По видовому составу инфузорий определяют степень загрязнения воды органическими веществами (сапробность).
- Симбионты жвачных. В рубце коров и овец живут инфузории (энтодиниумы, офриосколексы) — до миллиона клеток в миллилитре содержимого. Они переваривают крахмал и клетчатку, поедают бактерии, а сами потом перевариваются в желудке хозяина. На них приходится заметная часть микробной массы рубца. С инфузориями связаны и метаногенные археи, поэтому их изучают в связи с выбросами метана [35].
- Паразиты. Балантидий у человека и свиней, ихтиофтириус и триходины у рыб приносят ощутимый ущерб.
- Модельные организмы. Тетрахимена и туфелька дали биологии теломеры и теломеразу, рибозимы, динеин, ферменты модификации гистонов, понимание малых РНК и эпигенетического наследования. На брюхоресничных изучают перестройки генома, на кариореликтовых и Condylostoma — пределы гибкости генетического кода [36].
- Опыты в школе. Туфелька в капле воды — классический объект для изучения таксисов (хемотаксиса, термотаксиса, гальванотаксиса) и работы сократительной вакуоли.
Что нужно знать к ЕГЭ
Инфузория-туфелька регулярно встречается в заданиях ЕГЭ по биологии, особенно в линиях на строение одноклеточных и на половой процесс. Нужно помнить:
- туфелька передвигается с помощью ресничек; форма тела постоянная благодаря пелликуле;
- у туфельки два ядра: большое (макронуклеус) отвечает за обмен веществ и жизнедеятельность, малое (микронуклеус) — за половой процесс и хранение наследственной информации;
- пища попадает через клеточный рот (цитостом) и глотку в пищеварительную вакуоль; непереваренные остатки выбрасываются через порошицу;
- две сократительные вакуоли с приводящими каналами удаляют излишки воды и часть продуктов обмена;
- трихоцисты — органоиды защиты;
- размножение бесполое — поперечное деление надвое; половой процесс — конъюгация, при которой особи обмениваются ядрами, а число особей не увеличивается;
- инфузории — гетеротрофы (туфелька зелёная содержит симбиотические водоросли);
- при неблагоприятных условиях многие инфузории образуют цисты.
Ловушки. «Конъюгация — способ размножения инфузорий» — неверно: это половой процесс без размножения. «Макронуклеус участвует в половом процессе» — неверно: он разрушается, а в процессе участвует микронуклеус. «Сократительная вакуоль служит для пищеварения» — неверно: для удаления воды (осморегуляции). «При конъюгации инфузории сливаются» — неверно: у туфельки особи только обмениваются ядрами и расходятся.
Подробнее об одноклеточных эукариотах — статья «Современная систематика эукариот», о формах полового процесса — статья «Формы размножения организмов».
Для олимпиад
Генетика конъюгации. Если скрестить конъюганты AA и aa, оба эксконъюганта получат синкарион Aa, то есть потомки обоих партнёров генетически одинаковы. При автогамии гетерозиготы Aa потомки становятся AA или aa с вероятностью 1/2 каждый: синкарион образуется из двух копий одного гаплоидного ядра. Эти правила лежат в основе классических задач по генетике инфузорий.
Цитоплазматическое и кортикальное наследование. Признаки, которые передаются по линии цитоплазмы, а не ядер, распознают по тому, что после конъюгации каждый эксконъюгант сохраняет свой фенотип, хотя синкарионы одинаковы. Так у туфельки наследуются тип спаривания у P. tetraurelia (через старый макронуклеус и малые РНК), признак «киллер» (через бактерий-симбионтов каппа — Caedibacter) и расположение рядов ресничек (через кортекс). Если между конъюгантами затягивается широкий мостик и цитоплазма перемешивается, фенотипы выравниваются.
Количество ДНК. Если гаплоидный геном макронуклеуса составляет G пар нуклеотидов, а плоидность — p, то ДНК макронуклеуса ≈ p · G. Для P. tetraurelia (около 72 млн пар нуклеотидов в макронуклеарном геноме, плоидность около 800) это около 58 млрд пар нуклеотидов — в 9 раз больше, чем в диплоидной клетке человека (около 3,2 млрд × 2 ≈ 6,4 млрд пар) [37]. Неудивительно, что макронуклеус синтезирует столько РНК, сколько нужно клетке размером с маленькое многоклеточное животное.
Генетический код. Инфузории — чемпионы по изменениям кода. У тетрахимены и туфельки кодоны UAA и UAG означают глутамин, у эуплотеса UGA — цистеин. А у Condylostoma magnum все три стоп-кодона означают аминокислоты, и окончание белка определяется близостью кодона к концу мРНК [36].
Морфогенез и поле. При делении новый рот закладывается в строго определённом месте кортекса, а при регенерации стентора — в месте, где сходятся полосы разной ширины. Эти опыты (В. Тартар) показывают, что у одной клетки есть «позиционная информация» — аналог эмбрионального поля у многоклеточных [15].
Задания с разбором
Задание 1
Перечислите слои кортекса инфузории от поверхности вглубь. Какой слой объединяет инфузорий с динофлагеллятами и споровиками?
Разбор
Плазматическая мембрана → альвеолы (мембранные мешочки) → эпиплазма → базальные тела ресничек с волокнами (инфрацилиатура) и экструсомы. Альвеолы есть у инфузорий, динофлагеллят и апикомплексов (споровиков) — отсюда название группы альвеоляты.
Задание 2
Чем различаются ресничка, цирр и мембранелла? У каких инфузорий есть цирры?
Разбор
Ресничка — одиночный органоид с аксонемой 9 + 2 и базальным телом. Цирр — толстый пучок из десятков ресничек, которые бьют вместе; служит для «шагания» по субстрату. Мембранелла — пластинка из 2–4 рядов тесно сидящих ресничек, обычно в околоротовой зоне; гонит воду с пищей ко рту. Цирры есть у брюхоресничных инфузорий (стилонихия, окситриха, эуплотес).
Задание 3
Что такое инфрацилиатура и почему её строение используют в систематике?
Разбор
Инфрацилиатура — система базальных тел ресничек с отходящими от них волокнами (кинетодесмальным, поперечной и постцилиарной лентами микротрубочек), расположенная под поверхностью клетки рядами-кинетами. Её строение постоянно у каждой группы, не зависит от условий среды, а ротовая инфрацилиатура закладывается при делении по определённому для группы плану. Поэтому она отражает родство лучше, чем форма тела или размер.
Задание 4
Какова функция трихоцист туфельки? Как это доказали?
Разбор
Трихоцисты — защитные органоиды. При раздражении они выстреливают длинными белковыми нитями. Опыты с хищником дилептусом показали: туфельки с трихоцистами чаще ускользают от хищника, чем мутанты без способности выстреливать трихоцисты (Т. Харумото и А. Мияке, 1991).
Задание 5
Опишите путь пищеварительной вакуоли у туфельки от образования до выброса остатков. Почему содержимое вакуоли сначала закисляется?
Разбор
Реснички ротовой впадины гонят бактерии к цитостому → на дне цитофаринкса образуется пищеварительная вакуоль → она отрывается и движется с током цитоплазмы → содержимое закисляется → с вакуолью сливаются лизосомы, pH повышается, идёт переваривание, продукты всасываются в цитоплазму → вакуоль с остатками подходит к порошице и выбрасывает их. Закисление убивает добычу и готовит её к перевариванию (денатурирует белки).
Задание 6
Туфелек перенесли из пресной воды в слабый раствор соли. Как изменится частота сокращения сократительных вакуолей? Объясните.
Разбор
Частота уменьшится. В солёной воде разница концентраций между цитоплазмой и средой меньше, поэтому в клетку осмосом поступает меньше воды, и вакуолям нужно откачивать меньше. В изотоническом растворе вакуоли почти перестают работать, в гипертоническом клетка теряет воду и сморщивается.
Задание 7
Сравните микронуклеус и макронуклеус по набору хромосом, способу деления, функции и судьбе при конъюгации.
Разбор
Микронуклеус — диплоидный, делится митозом (при половом процессе — мейозом), генеративный: хранит информацию для потомков, почти не транскрибируется; при конъюгации даёт пронуклеусы, а потом из продуктов синкариона образуются новые микро- и макронуклеусы. Макронуклеус — полиплоидный, делится амитозом, соматический: на нём синтезируется почти вся РНК клетки; при конъюгации разрушается.
Задание 8
Сколько ядер разрушается в одной туфельке хвостатой: а) при мейозе во время конъюгации; б) при восстановлении ядерного аппарата после неё? Сколько особей с нормальным ядерным аппаратом получается из одного эксконъюганта?
Разбор
а) Из четырёх продуктов мейоза разрушаются три. б) Синкарион делится трижды — 8 ядер: 4 становятся макронуклеусами, 3 разрушаются, 1 остаётся микронуклеусом. Ещё разрушается старый макронуклеус (распадаясь на фрагменты). Из одного эксконъюганта после двух делений получаются 4 особи, у каждой один макро- и один микронуклеус; из пары конъюгантов — 8 особей.
Задание 9
Почему макронуклеус называют «мешком с генами»? Какое следствие это имеет для гетерозиготного клона?
Разбор
В макронуклеусе нет обычных хромосом с центромерами и пар гомологов: гены лежат на множестве мелких молекул ДНК в десятках-тысячах копий, и при амитотическом делении копии распределяются между дочерними ядрами случайно. В гетерозиготном клоне доли копий двух аллелей постепенно расходятся, и через несколько десятков делений появляются субклоны с копиями только одной аллели — фенотипически «гомозиготные» (фенотипическое расхождение).
Задание 10
Чем автогамия отличается от конъюгации по процессу и по генетическому результату?
Разбор
При автогамии участвует одна особь: после мейоза оставшееся гаплоидное ядро делится на два пронуклеуса, и они сливаются друг с другом. При конъюгации две особи обмениваются мигрирующими пронуклеусами. Результат автогамии — полная гомозиготность по всем генам за одно поколение; результат конъюгации — синкарион с половиной генов от каждого партнёра, одинаковый у обоих эксконъюгантов.
Задание 11 (генетическая задача)
Клон туфельки золотистой гетерозиготен по гену Aa. Каким будет генотип потомков: а) после автогамии; б) после конъюгации с клоном aa? С какой вероятностью каждый генотип?
Разбор
а) После автогамии синкарион образуется из двух копий одного гаплоидного продукта мейоза: AA с вероятностью 1/2 или aa с вероятностью 1/2 (гетерозигот нет). б) При конъюгации Aa × aa оставшийся гаплоидный продукт мейоза первой особи несёт A или a (по 1/2), вторая всегда даёт a. Оба эксконъюганта получат одинаковый синкарион: Aa с вероятностью 1/2 или aa с вероятностью 1/2.
Задание 12
Что такое сингены? Почему комплекс туфельки золотистой в 1975 году разделили на 14 видов, хотя они не отличаются внешне?
Разбор
Синген — группа клонов внутри морфологического вида, состоящая из двух (или нескольких) типов спаривания, которые конъюгируют только друг с другом; клоны разных сингенов не скрещиваются или дают нежизнеспособное потомство. Сингены репродуктивно изолированы, а это главный критерий биологического вида. Поэтому их признали видами-двойниками и дали им отдельные названия.
Задание 13
Установите соответствие между инфузорией и группой.
А) стилонихия; Б) сувойка; В) стентор; Г) токофрия; Д) локсодес.
1) брюхоресничные; 2) кругоресничные; 3) спиральноресничные (гетеротрихи); 4) сосущие; 5) кариореликтовые.
Разбор
А — 1, Б — 2, В — 3, Г — 4, Д — 5. Ответ: 12345.
Задание 14
Выберите три верных утверждения.
1) Конъюгация увеличивает численность инфузорий. 2) Макронуклеус инфузорий полиплоидный. 3) Сократительные вакуоли туфельки откачивают избыток воды. 4) При конъюгации обмениваются макронуклеусами. 5) Трихоцисты служат для защиты. 6) Сосущие инфузории покрыты ресничками на всех стадиях.
Разбор
Ответ: 235. Конъюгация — половой процесс без размножения (1 — неверно); обмениваются гаплоидными пронуклеусами — продуктами микронуклеусов (4 — неверно); взрослые сосущие инфузории ресничек не имеют, реснички есть у бродяжек (6 — неверно).
Задание 15 (олимпиадное)
Макронуклеус тетрахимены содержит около 45 копий генома размером около 103 млн пар нуклеотидов, а клетка делится каждые 2 часа. Сколько пар нуклеотидов в среднем синтезируется в макронуклеусе за одну минуту клеточного цикла? Сравните объём ДНК макронуклеуса с диплоидным геномом микронуклеуса (около 157 млн пар нуклеотидов в гаплоидном наборе).
Разбор
ДНК макронуклеуса: 45 × 103 млн ≈ 4,6 млрд пар нуклеотидов. За клеточный цикл (120 мин) она удваивается: в среднем 4,6 млрд / 120 ≈ 39 млн пар в минуту (на самом деле репликация идёт только в S-фазе, то есть ещё быстрее). Диплоидный микронуклеус: 2 × 157 ≈ 314 млн пар — примерно в 15 раз меньше ДНК, чем в макронуклеусе. При этом макронуклеарный геном на треть короче микронуклеарного: часть ДНК удалена при развитии макронуклеуса.
Задание 16 (олимпиадное)
Две туфельки, у одной из которых в цитоплазме живут бактерии-симбионты, выделяющие токсин (признак «киллер»), а у другой нет, конъюгировали обычным образом с узким мостиком. Оба эксконъюганта получили одинаковые синкарионы с аллелью K, необходимой для поддержания симбионтов. Какие фенотипы будут у их потомков? Что изменится, если мостик был широким и цитоплазма перемешалась?
Разбор
При узком мостике цитоплазма не обменивается: потомки эксконъюганта с симбионтами останутся киллерами, потомки второго — чувствительными, хотя генотип у них одинаковый (KK или Kk). Для поддержания симбионтов нужна аллель K, но сами симбионты передаются только с цитоплазмой. При широком мостике бактерии перейдут и во вторую особь, и оба клона станут киллерами. Так Соннеборн различил ядерное и цитоплазматическое наследование.
Литература
- Lynn D. H. The Ciliated Protozoa: Characterization, Classification, and Guide to the Literature. 3rd ed. Dordrecht: Springer, 2008.
- Adl S. M., Bass D., Lane C. E. et al. Revisions to the classification, nomenclature, and diversity of eukaryotes // Journal of Eukaryotic Microbiology. 2019. Vol. 66. P. 4–119.
- Burki F., Roger A. J., Brown M. W., Simpson A. G. B. The new tree of eukaryotes // Trends in Ecology and Evolution. 2020. Vol. 35. P. 43–55.
- Hausmann K., Hülsmann N., Radek R. Protistology. 3rd ed. Stuttgart: Schweizerbart, 2003.
- Beisson J., Sonneborn T. M. Cytoplasmic inheritance of the organization of the cell cortex in Paramecium aurelia // Proceedings of the National Academy of Sciences USA. 1965. Vol. 53. P. 275–282.
- Gibbons I. R., Rowe A. J. Dynein: a protein with adenosine triphosphatase activity from cilia // Science. 1965. Vol. 149. P. 424–426.
- Jennings H. S. Behavior of the Lower Organisms. New York: Columbia University Press, 1906.
- Eckert R. Bioelectric control of ciliary activity // Science. 1972. Vol. 176. P. 473–481.
- Dexter J. P., Prabakaran S., Gunawardena J. A complex hierarchy of avoidance behaviors in a single-cell eukaryote // Current Biology. 2019. Vol. 29. P. 4323–4329.
- Harumoto T., Miyake A. Defensive function of trichocysts in Paramecium // Journal of Experimental Zoology. 1991. Vol. 260. P. 84–92.
- Allen R. D., Fok A. K. Membrane trafficking and processing in Paramecium // International Review of Cytology. 2000. Vol. 198. P. 277–318.
- Allen R. D. The contractile vacuole and its membrane dynamics // BioEssays. 2000. Vol. 22. P. 1035–1042.
- Raikov I. B. The Protozoan Nucleus: Morphology and Evolution. Wien; New York: Springer, 1982.
- Prescott D. M. The DNA of ciliated protozoa // Microbiological Reviews. 1994. Vol. 58. P. 233–267.
- Tartar V. The Biology of Stentor. Oxford: Pergamon Press, 1961.
- Swart E. C., Bracht J. R., Magrini V. et al. The Oxytricha trifallax macronuclear genome: a complex eukaryotic genome with 16,000 tiny chromosomes // PLoS Biology. 2013. Vol. 11. e1001473.
- Arnaiz O., Mathy N., Baudry C. et al. The Paramecium germline genome provides a niche for intragenic parasitic DNA: evolutionary dynamics of internal eliminated sequences // PLoS Genetics. 2012. Vol. 8. e1002984.
- Hamilton E. P., Kapusta A., Huvos P. E. et al. Structure of the germline genome of Tetrahymena thermophila and relationship to the massively rearranged somatic genome // eLife. 2016. Vol. 5. e19090.
- Chen X., Bracht J. R., Goldman A. D. et al. The architecture of a scrambled genome reveals massive levels of genomic rearrangement during development // Cell. 2014. Vol. 158. P. 1187–1198.
- Mochizuki K., Fine N. A., Fujisawa T., Gorovsky M. A. Analysis of a piwi-related gene implicates small RNAs in genome rearrangement in Tetrahymena // Cell. 2002. Vol. 110. P. 689–699.
- Nowacki M., Vijayan V., Zhou Y., Schotanus K., Doak T. G., Landweber L. F. RNA-mediated epigenetic programming of a genome-rearrangement pathway // Nature. 2008. Vol. 451. P. 153–158.
- Blackburn E. H., Gall J. G. A tandemly repeated sequence at the termini of the extrachromosomal ribosomal RNA genes in Tetrahymena // Journal of Molecular Biology. 1978. Vol. 120. P. 33–53.
- Greider C. W., Blackburn E. H. Identification of a specific telomere terminal transferase activity in Tetrahymena extracts // Cell. 1985. Vol. 43. P. 405–413.
- Kruger K., Grabowski P. J., Zaug A. J., Sands J., Gottschling D. E., Cech T. R. Self-splicing RNA: autoexcision and autocyclization of the ribosomal RNA intervening sequence of Tetrahymena // Cell. 1982. Vol. 31. P. 147–157.
- Diller W. F. Nuclear reorganization processes in Paramecium aurelia, with descriptions of autogamy and ‘hemixis’ // Journal of Morphology. 1936. Vol. 59. P. 11–67.
- Maupas E. Le rajeunissement karyogamique chez les Ciliés // Archives de Zoologie Expérimentale et Générale. 2e sér. 1889. T. 7. P. 149–517.
- Sonneborn T. M. Sex, sex inheritance and sex determination in Paramecium aurelia // Proceedings of the National Academy of Sciences USA. 1937. Vol. 23. P. 378–385.
- Sonneborn T. M. The Paramecium aurelia complex of fourteen sibling species // Transactions of the American Microscopical Society. 1975. Vol. 94. P. 155–178.
- Cervantes M. D., Hamilton E. P., Xiong J. et al. Selecting one of several mating types through gene segment joining and deletion in Tetrahymena thermophila // PLoS Biology. 2013. Vol. 11. e1001518.
- Singh D. P., Saudemont B., Guglielmi G. et al. Genome-defence small RNAs exapted for epigenetic mating-type inheritance // Nature. 2014. Vol. 509. P. 447–452.
- Gao F., Warren A., Zhang Q. et al. The all-data-based evolutionary hypothesis of ciliated protists with a revised classification of the phylum Ciliophora (Eukaryota, Alveolata) // Scientific Reports. 2016. Vol. 6. 24874.
- Moriyama Y., Hiyama S., Asai H. High-speed video cinematographic demonstration of stalk and zooid contraction of Vorticella convallaria // Biophysical Journal. 1998. Vol. 74. P. 487–491.
- Azam F., Fenchel T., Field J. G., Gray J. S., Meyer-Reil L. A., Thingstad F. The ecological role of water-column microbes in the sea // Marine Ecology Progress Series. 1983. Vol. 10. P. 257–263.
- Curds C. R. The ecology and role of protozoa in aerobic sewage treatment processes // Annual Review of Microbiology. 1982. Vol. 36. P. 27–46.
- Williams A. G., Coleman G. S. The Rumen Protozoa. New York: Springer, 1992.
- Swart E. C., Serra V., Petroni G., Nowacki M. Genetic codes with no dedicated stop codon: context-dependent translation termination // Cell. 2016. Vol. 166. P. 691–702.
- Aury J.-M., Jaillon O., Duret L. et al. Global trends of whole-genome duplications revealed by the ciliate Paramecium tetraurelia // Nature. 2006. Vol. 444. P. 171–178.
Обсуждение
Загружаем обсуждение…