
Зимой 1940–1941 года в оккупированном Париже молодой микробиолог Жак Моно, участник Сопротивления, выращивал кишечную палочку на смеси двух сахаров — глюкозы и лактозы — и каждые полчаса измерял мутность культуры. Кривая роста получилась странной: бактерии сначала быстро размножались, потом почти на час останавливались, а затем снова начинали расти. Моно назвал это явление диауксией — «двойным ростом». Учитель Моно, микробиолог Андре Львов, на вопрос, что бы это значило, ответил: возможно, это «адаптация ферментов». Двадцать лет спустя разгадка этой кривой привела к одному из главных открытий молекулярной биологии — гипотезе оперона.
Это пятая статья серии о реализации наследственной информации (начало — «Матричный синтез и реализация наследственной информации»). В ней разобрано, как бактерии включают и выключают гены, что такое оперон, как работают лактозный и триптофановый опероны и как была доказана гипотеза Жакоба и Моно.
- 1. Зачем клетке регулировать работу генов
- 2. Индукция и репрессия
- 3. Загадка двойного роста
- 4. Почему именно кишечная палочка
- 5. От «адаптивных ферментов» к регуляции генов
- 6. Жакоб и Моно: «ночная наука»
- 7. Опыт «ПаЖаМо»
- 8. Гипотеза оперона
- 9. Лактозный оперон: как он работает
- 10. Полицистронная иРНК в задачах
- 11. Глюкоза и лактоза: катаболитная репрессия
- 12. Мутанты, которые доказали модель
- 13. Как выделили репрессор
- 14. Триптофановый оперон
- 15. Аттенуация: как рибосома управляет транскрипцией
- 16. Уровни регуляции у бактерий
- 17. Торможение конечным продуктом
- 18. Негативная и позитивная регуляция
- 19. Рибопереключатели: когда регулятором служит сама РНК
- 20. Чувство кворума: гены, которые включаются «всем миром»
- 21. Всё или ничего
- 22. Глобальные ответы: как бактерия переживает стресс
- 23. Как увидеть работу гена: гены-репортёры
- 24. Откуда взялись опероны
- 25. Генетический переключатель бактериофага
- 26. Оперон в руках биотехнологов
- 27. Есть ли опероны у эукариот
- 28. А у человека: почему одни люди пьют молоко, а другие нет
- 29. Что происходит с «неправильными» мутантами в природе
- 30. Регуляция генов бактерий и медицина
- 31. Жакоб и Моно после оперона
- 32. Итог: что нужно знать об опероне
- 33. Частые ошибки
- 34. Интересные факты
- 35. Частые вопросы
- 36. ЕГЭ
- 37. Для олимпиад
- 38. Задания с разбором
- Литература
1. Зачем клетке регулировать работу генов
В геноме кишечной палочки около 4300 генов, но одновременно работает лишь часть из них. Синтез белка обходится дорого: на каждую аминокислоту расходуется не меньше четырёх макроэргических связей, а ещё нужны рибосомы и аминокислоты (подробнее — в статье «Трансляция»). Бактерия, которая синтезирует ферменты для расщепления лактозы, когда лактозы нет, тратит ресурсы впустую и проигрывает соседям в росте. Поэтому в ходе эволюции у бактерий возникли механизмы, позволяющие включать гены, когда их продукт нужен, и выключать, когда не нужен.
Не все гены регулируются. Гены, которые работают постоянно, при любых условиях, называют конститутивными: к ним относятся гены ферментов гликолиза, рибосомных белков, РНК-полимеразы. Остальные гены — регулируемые: их активность зависит от условий.
У бактерий работу генов регулируют главным образом на уровне транскрипции — решается, будет ли РНК-полимераза переписывать ген. Это самый экономный способ: если иРНК не синтезирована, не тратятся ни нуклеотиды, ни аминокислоты, ни рибосомы. А поскольку иРНК бактерий живёт всего несколько минут, выключение транскрипции быстро останавливает и синтез белка.
Определения. Оперон — группа структурных генов с общим промотором и оператором, транскрибируемых в одну иРНК. Промотор — участок ДНК, к которому присоединяется РНК-полимераза. Оператор — участок ДНК, с которым связывается белок-репрессор. Ген-регулятор — ген, кодирующий белок-репрессор. Индуктор — вещество, которое, связываясь с репрессором, включает транскрипцию. Корепрессор — вещество, которое, связываясь с репрессором, выключает транскрипцию.
2. Индукция и репрессия
У бактерий есть два основных способа отвечать на изменения среды.
- Индукция — синтез ферментов включается при появлении в среде их субстрата. Так регулируются ферменты расщепления питательных веществ: если в среде появилась лактоза, бактерия начинает синтезировать ферменты, расщепляющие лактозу; если лактозы нет, их не синтезирует. Вещество-сигнал называют индуктором.
- Репрессия — синтез ферментов выключается, когда в клетке накопился продукт, который они синтезируют. Так регулируются ферменты синтеза: если в среде много триптофана, бактерия перестаёт синтезировать ферменты синтеза триптофана и берёт готовую аминокислоту из среды.
| Признак | Индукция | Репрессия |
|---|---|---|
| Сигнал | в среде появился субстрат (индуктор) | накопился конечный продукт (корепрессор) |
| Исходное состояние генов | выключены | включены |
| Действие сигнала | синтез ферментов включается | синтез ферментов выключается |
| Какие ферменты так регулируются | ферменты расщепления (катаболизма) | ферменты синтеза (анаболизма) |
| Пример | лактозный оперон | триптофановый оперон |
| Смысл | ферменты синтезируются, когда есть что расщеплять | ферменты не синтезируются, когда продукт уже есть |
Логика обоих механизмов одна: клетка синтезирует ферменты только тогда, когда они действительно нужны. Это пример общего принципа экономии, который пронизывает всю регуляцию обмена веществ (подробнее — в статье «Обмен веществ клетки»).
3. Загадка двойного роста
Вернёмся к опыту Моно. Почему бактерии на смеси глюкозы и лактозы растут в две фазы? Моно выяснил: сначала бактерии используют только глюкозу, а лактозу не трогают. Когда глюкоза кончается, наступает пауза, во время которой бактерии начинают синтезировать ферменты расщепления лактозы, и лишь после этого рост возобновляется — уже за счёт лактозы [1].
Отсюда два вопроса, на которые ушло двадцать лет. Как клетка «узнаёт», что появилась лактоза, и включает нужные гены? И почему, пока есть глюкоза, ферменты для лактозы не синтезируются, даже если лактоза в среде тоже есть? Ответ на первый вопрос дала гипотеза оперона, на второй — открытие катаболитной репрессии.
4. Почему именно кишечная палочка
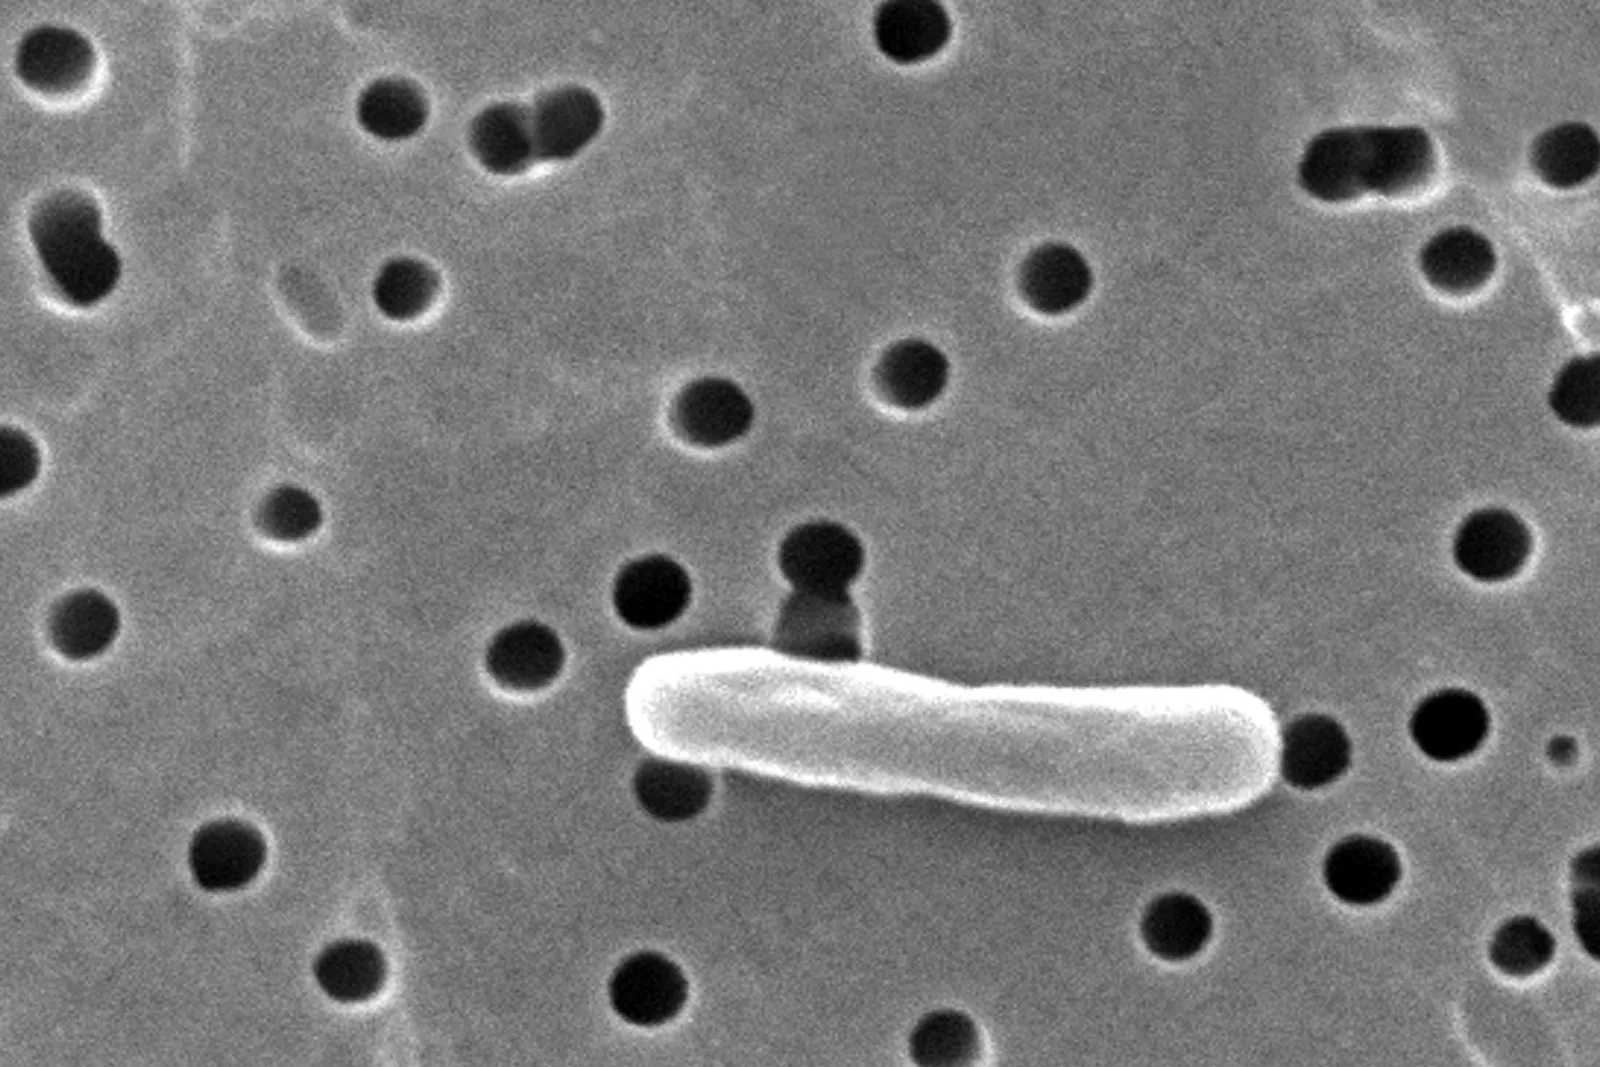
Почти все открытия этой статьи сделаны на одном организме — кишечной палочке. Её описал в 1885 году немецкий педиатр Теодор Эшерих, изучая кишечную флору младенцев, отсюда и латинское название Escherichia coli. Обычные штаммы этой бактерии безвредны и живут в кишечнике человека и животных, а лабораторные штаммы давно утратили способность заселять кишечник.
Кишечная палочка стала главным объектом молекулярной биологии благодаря удобству: она растёт на простой среде из солей и сахара, делится каждые 20–30 минут, имеет небольшой геном, легко даёт мутантов и умеет обмениваться ДНК с другими бактериями и фагами. В опыте Моно за день сменялось несколько десятков поколений бактерий, — на мышах или растениях такие эксперименты заняли бы годы. Не случайно говорили, что «всё, что верно для кишечной палочки, верно и для слона»: многое из того, что открыли на этой бактерии, — генетический код, механизмы репликации, транскрипции и трансляции — оказалось общим для всего живого. Но регуляция генов как раз из тех областей, где у слона всё гораздо сложнее.
5. От «адаптивных ферментов» к регуляции генов
Что бактерии синтезируют некоторые ферменты только в присутствии их субстрата, заметили задолго до Моно. В 1930-х годах финский биохимик Хеннинг Карстрём разделил ферменты бактерий на «конститутивные», которые есть всегда, и «адаптивные», которые появляются при выращивании на определённом субстрате. Долгое время считали, что субстрат сам каким-то образом «лепит» фермент из предшественника, подгоняя его форму под себя, как ключ подгоняют под замок.
Моно и его сотрудники в начале 1950-х годов опровергли эту идею. Используя аминокислоты с радиоактивной меткой, они показали, что при индукции фермент синтезируется заново из аминокислот, а не переделывается из готового белка. Кроме того, оказалось, что синтез β-галактозидазы вызывают и такие вещества, которые сам фермент не расщепляет. Значит, индуктор действует не как «форма для отливки» фермента, а как сигнал, включающий его синтез. В 1953 году Моно с коллегами предложил заменить расплывчатое слово «адаптация» точным термином «индукция ферментов». Оставалось понять, на кого действует этот сигнал, — и ответ дала модель оперона.
6. Жакоб и Моно: «ночная наука»
В 1950-х годах в Институте Пастера в Париже, на чердаке, где располагались лаборатории Андре Львова, работали две группы: Жак Моно изучал синтез фермента β-галактозидазы, расщепляющего лактозу, а Франсуа Жакоб — бактериофаги и способ, которым они встраиваются в хромосому бактерии. Жакоб, хирург по образованию, тяжело раненный во время войны в рядах «Свободной Франции», пришёл в науку поздно, почти в тридцать лет. Сам Львов в 1950 году сделал открытие, ставшее отправной точкой для Жакоба: бактерии, несущие в хромосоме «спящий» фаг, после облучения ультрафиолетом массово начинали производить фаговые частицы и разрушались. Значит, гены фага в такой бактерии не исчезают, а лишь выключены, и их можно включить. Позже Жакоб вспоминал о «ночной науке» — блуждании наугад, догадках и сомнениях, из которых рождаются открытия, — в отличие от «дневной науки» строгих доказательств.
Жакоб и Моно заметили, что их задачи похожи. Бактериофаг, встроившийся в хромосому, «молчит» — его гены выключены каким-то веществом, которое синтезирует сам фаг. Гены лактозы бактерии тоже молчат, пока нет лактозы. Нет ли общего механизма выключения генов? Чтобы это проверить, они вместе с американским биохимиком Артуром Пардее поставили опыт, который по первым слогам фамилий назвали «ПаЖаМо» (в англоязычных учебниках — PaJaMo, что созвучно слову «пижама», поэтому его часто называют «пижамным опытом»).
7. Опыт «ПаЖаМо»
У кишечной палочки бывают мутанты, синтезирующие β-галактозидазу постоянно, даже без лактозы, — их назвали конститутивными. Мутация у них лежала не в гене фермента, а в соседнем гене, который Жакоб и Моно обозначили буквой i (от «индуцибельность»). Что делает нормальный ген i? Возможно, он кодирует вещество, которое подавляет синтез фермента?
Опыт был основан на половом процессе бактерий — конъюгации, при которой одна бактерия передаёт другой часть своей хромосомы. Пардее, Жакоб и Моно передавали нормальный ген i и ген фермента бактериям-реципиентам, у которых ген i был мутантным [2]. Сразу после передачи фермент начинал синтезироваться, а через час-два синтез без лактозы прекращался: в клетке накапливалось вещество, синтезированное по нормальному гену i, которое и выключало ген фермента. Вывод: ген i кодирует репрессор — вещество, которое действует в цитоплазме и выключает другие гены. А нормальный аллель i доминирует над мутантным, потому что даже одного «рабочего» гена хватает, чтобы синтезировать репрессор.
8. Гипотеза оперона
В 1961 году Жакоб и Моно опубликовали большую статью «Генетические механизмы регуляции синтеза белков», в которой изложили модель оперона [3]. В той же статье они предсказали существование короткоживущей информационной РНК, — её как раз в эти месяцы обнаружили Бреннер, Жакоб и Мезельсон (подробнее — в статье «Транскрипция»). В 1965 году Жакоб, Моно и Львов получили Нобелевскую премию.
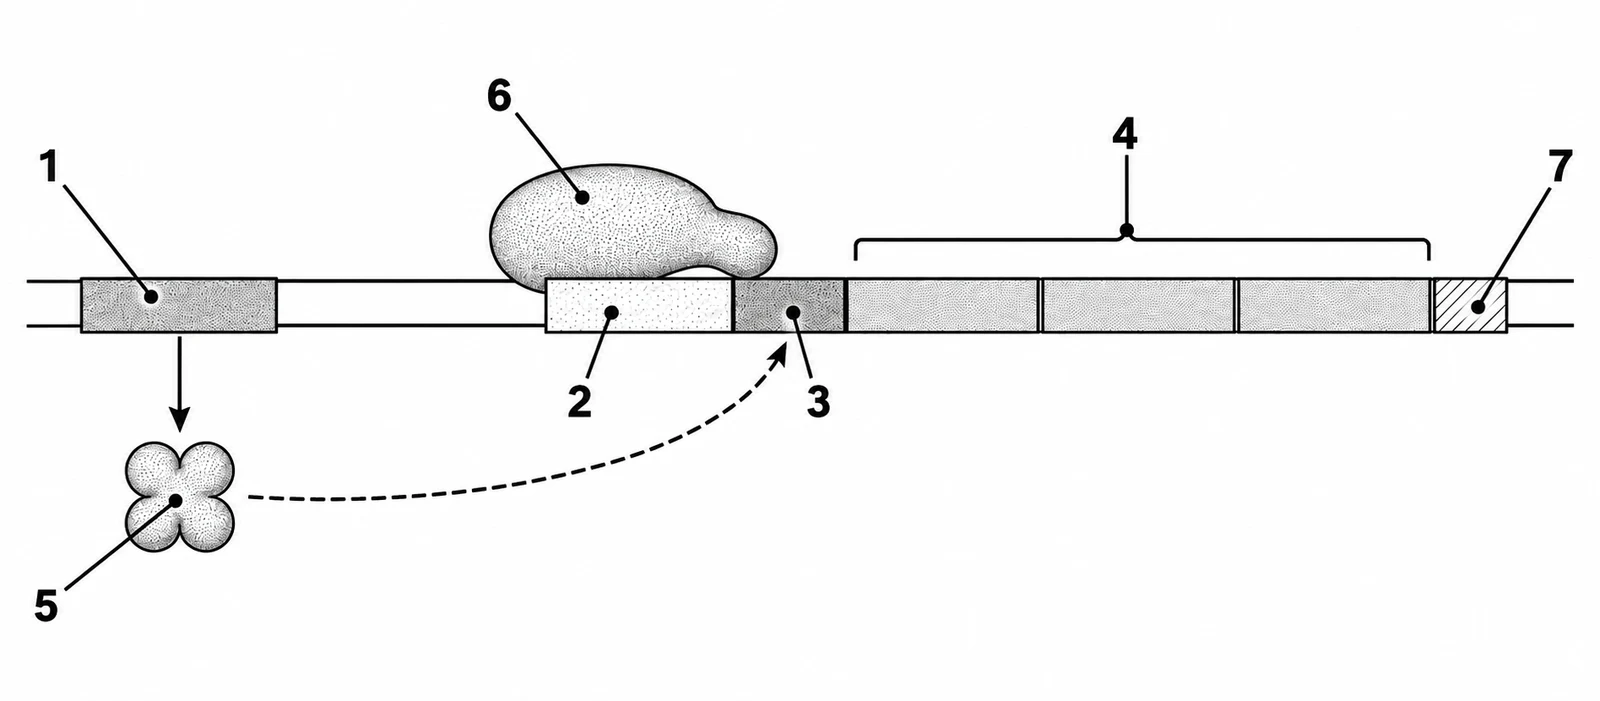
По модели Жакоба и Моно, гены бактерии, участвующие в одном процессе, объединены в оперон, который включает:
- промотор — участок, к которому присоединяется РНК-полимераза;
- оператор — участок рядом с промотором (частично перекрывается с ним), с которым связывается белок-репрессор;
- структурные гены — гены ферментов; они транскрибируются в одну общую (полицистронную) иРНК;
- терминатор — участок окончания транскрипции.
Вне оперона, обычно рядом с ним, находится ген-регулятор со своим промотором. Он кодирует белок-репрессор, который может связываться с оператором. Если репрессор сидит на операторе, РНК-полимераза не может пройти к структурным генам, и они не транскрибируются. Если репрессор отошёл — гены работают.
Ключевая идея в том, что регулируются сразу все гены оперона. Ферменты одного пути нужны клетке одновременно, и общий «выключатель» гарантирует, что они синтезируются вместе и в нужных соотношениях.
| Участок | Функция | Что с ним связывается |
|---|---|---|
| Ген-регулятор | кодирует белок-репрессор; лежит вне оперона | РНК-полимераза у собственного промотора |
| Промотор | место начала транскрипции | РНК-полимераза |
| Оператор | «выключатель» структурных генов | белок-репрессор |
| Структурные гены | кодируют ферменты; транскрибируются в одну иРНК | считываются РНК-полимеразой |
| Терминатор | место окончания транскрипции | РНК-полимераза отделяется |
9. Лактозный оперон: как он работает
Лактозный оперон кишечной палочки содержит три структурных гена: ген β-галактозидазы (расщепляет лактозу на глюкозу и галактозу), ген пермеазы (белка-переносчика, закачивающего лактозу в клетку) и ген трансацетилазы. Рядом лежит ген-регулятор, кодирующий лактозный репрессор.
Лактозы нет. Ген-регулятор работает постоянно, и в клетке всегда есть немного репрессора. Репрессор связан с оператором и закрывает дорогу РНК-полимеразе. Структурные гены не транскрибируются, ферменты почти не синтезируются. Почти — потому что репрессор иногда ненадолго отходит от оператора, и в клетке всегда есть несколько молекул пермеазы и β-галактозидазы. Это важно: без них лактоза не могла бы даже попасть в клетку и подать сигнал.
Лактоза появилась. Немного лактозы проникает в клетку через имеющиеся молекулы пермеазы, и β-галактозидаза превращает часть её в изомер — аллолактозу. Аллолактоза служит индуктором: она присоединяется к репрессору и изменяет его форму, так что он теряет сродство к оператору и отходит от него. РНК-полимераза транскрибирует структурные гены, синтезируется много ферментов, и бактерия начинает питаться лактозой.
Лактоза кончилась. Индуктора больше нет, свободный репрессор снова садится на оператор, и транскрипция прекращается. иРНК ферментов разрушаются за несколько минут, и синтез ферментов останавливается.
- Репрессорсвязан с оператором
- РНК-полимеразане может транскрибировать структурные гены
- Результатферменты лактозы не синтезируются
- Индукторпроизводное лактозы присоединяется к репрессору
- Репрессорменяет форму и отходит от оператора
- Результатгены транскрибируются, ферменты расщепляют лактозу
Как потерять балл. Написать, что «лактоза присоединяется к оператору» или «лактоза разрушает репрессор». Индуктор присоединяется к белку-репрессору и изменяет его форму, после чего репрессор отходит от оператора. Сам репрессор при этом не разрушается.
10. Полицистронная иРНК в задачах
Поскольку структурные гены оперона транскрибируются вместе, одна иРНК содержит несколько рамок считывания, каждая — со своим старт-кодоном АУГ и своим стоп-кодоном. Пример: фрагмент иРНК оперона 5ʹ-ГАУГГААГЦУУАГЦУАУГАЦЦЦАУУАА-3ʹ. Первая рамка начинается с АУГ в положении 2 и кодирует пептид Мет-Глу-Ала; после стоп-кодона рибосома может снова начать синтез со следующего АУГ (положение 16) — второй пептид Мет-Тре-Гис. Задачи такого типа встречаются в линии 27, их алгоритм разобран в статье «Задачи на биосинтез белка».
У бактерий рибосома находит каждый старт-кодон по участку посадки, комплементарному концу рРНК малой субъединицы. Поэтому трансляция разных белков с одной полицистронной иРНК может идти с разной эффективностью: бактерия получает ферменты оперона в нужных соотношениях, хотя транскрибируются они вместе.
11. Глюкоза и лактоза: катаболитная репрессия
Теперь ясно, почему ферменты синтезируются только при наличии лактозы. Но почему их нет, пока в среде есть глюкоза, даже если лактоза тоже есть? Глюкоза — самый выгодный сахар: её расщепление не требует дополнительных ферментов. Поэтому у бактерии есть второй механизм, который включает гены «запасных» сахаров только при нехватке глюкозы.
Когда глюкозы мало, в клетке накапливается сигнальное вещество — циклический АМФ (цАМФ). Он связывается с особым белком-активатором (его называют белком-активатором катаболитных генов). Комплекс активатора с цАМФ садится на ДНК рядом с промотором лактозного оперона и помогает РНК-полимеразе присоединиться к промотору. Без этой помощи промотор работает слабо. Когда глюкозы много, цАМФ мало, активатор не связывается с ДНК, и даже при наличии лактозы оперон работает едва-едва. Кроме того, при транспорте глюкозы в клетку подавляется работа пермеазы лактозы, и индуктор почти не попадает внутрь.
В итоге лактозный оперон включается в полную силу только при двух условиях одновременно: лактоза есть (репрессор снят) и глюкозы нет (активатор помогает полимеразе). Это и объясняет диауксию Моно: пока есть глюкоза, оперон почти выключен; глюкоза кончилась — включается активатор, и после паузы, нужной для синтеза ферментов, начинается рост на лактозе.
| Глюкоза | Лактоза | Репрессор | Активатор с цАМФ | Транскрипция генов лактозы |
|---|---|---|---|---|
| есть | нет | на операторе | не связан | нет |
| нет | нет | на операторе | связан | нет |
| есть | есть | снят индуктором | не связан | очень слабая |
| нет | есть | снят индуктором | связан | сильная |
12. Мутанты, которые доказали модель
Модель оперона была выведена «на кончике пера», задолго до того, как удалось увидеть сам репрессор. Её главным доказательством стали мутанты кишечной палочки, у которых ферменты лактозы синтезировались постоянно.
- Мутации гена-регулятора. Если ген-регулятор повреждён и репрессор не синтезируется или не может связаться с оператором, ферменты синтезируются постоянно. Если в клетку внести нормальный ген-регулятор на дополнительной молекуле ДНК, синтезированный по нему репрессор сядет на оператор, и регуляция восстановится: репрессор действует «на расстоянии», через цитоплазму.
- Мутации оператора. Если изменён сам оператор, репрессор его не узнаёт, и гены этого оперона работают постоянно. Внесение нормального гена-регулятора не помогает: дело не в репрессоре, а в участке, с которым он должен связываться. Причём такой оператор влияет только на соседние, «свои» гены, лежащие на той же молекуле ДНК.
- Мутации, при которых репрессор не узнаёт индуктор. Тогда репрессор никогда не отходит от оператора, и ферменты не синтезируются даже в присутствии лактозы. Бактерия не может питаться лактозой. Такой «сверхрепрессор» доминирует над нормальным.
Сочетание этих типов мутаций и их поведение в клетках с двумя копиями генов позволили Жакобу и Моно отличить белок-регулятор, действующий через цитоплазму, от участка ДНК, действующего только на «свои» гены. Это различие — одно из основных понятий генетики регуляции.
| Мутация | Без лактозы | С лактозой | Помогает ли нормальный ген-регулятор |
|---|---|---|---|
| Нет мутаций | ферментов нет | ферменты есть | — |
| Репрессор не работает | ферменты есть | ферменты есть | да |
| Оператор изменён | ферменты есть | ферменты есть | нет |
| Репрессор не узнаёт индуктор | ферментов нет | ферментов нет | нет (мутантный репрессор доминирует) |
13. Как выделили репрессор
Модель предсказывала белок-репрессор, но никто его не видел. Трудность была в том, что в клетке всего около десяти молекул лактозного репрессора — ничтожно мало по сравнению с тысячами молекул других белков. В 1966 году американский биохимик Уолтер Гилберт и немецкий генетик Бенно Мюллер-Хилл нашли его по способности связывать искусственный индуктор, меченный радиоактивным изотопом [4]. Они использовали мутантов, у которых репрессора было больше обычного, и измеряли, какая фракция белков клетки удерживает меченый индуктор. В том же году Марк Птэшни выделил репрессор бактериофага лямбда, выключающий гены этого фага в заражённой клетке [5].
Вскоре Гилберт показал, что выделенный лактозный репрессор прочно связывается с ДНК, содержащей оператор, а при добавлении индуктора отходит от неё, — ровно как предсказывала модель. Позже Гилберт стал одним из создателей метода чтения последовательностей ДНК и получил Нобелевскую премию по химии 1980 года.
Пространственную структуру лактозного репрессора, связанного с ДНК, расшифровали в 1996 году [6]. Оказалось, что репрессор — четыре одинаковые белковые цепи, которые могут связаться сразу с двумя участками-операторами и выгнуть между ними петлю ДНК. Индуктор, присоединяясь к репрессору, изменяет положение его «рук», связывающих ДНК, и они теряют сродство к оператору.
14. Триптофановый оперон
Если лактозный оперон — пример индукции, то триптофановый оперон кишечной палочки — пример репрессии. Его пять структурных генов кодируют ферменты, которые за несколько реакций строят аминокислоту триптофан из веществ, образующихся при обмене углеводов. Триптофан — самая «дорогая» для синтеза аминокислота, поэтому клетке особенно выгодно не синтезировать его зря.
Триптофана мало. Белок-репрессор синтезируется в неактивной форме и сам с оператором не связывается. Оператор свободен, РНК-полимераза транскрибирует гены, и бактерия синтезирует триптофан.
Триптофана много (например, в питательной среде). Триптофан присоединяется к репрессору как корепрессор. Комплекс «репрессор — триптофан» становится активным, связывается с оператором, и транскрипция прекращается. Бактерия перестаёт тратить ресурсы на синтез аминокислоты, которую можно взять готовой.
Принцип тот же, что у лактозного оперона: малая молекула меняет форму репрессора. Но результат противоположный: индуктор снимает репрессор с оператора, корепрессор — сажает на оператор.
| Признак | Лактозный оперон | Триптофановый оперон |
|---|---|---|
| Тип регуляции | индукция | репрессия |
| Гены кодируют | ферменты расщепления лактозы | ферменты синтеза триптофана |
| Репрессор без малой молекулы | активен, связан с оператором | неактивен, не связан с оператором |
| Малая молекула | индуктор (аллолактоза) | корепрессор (триптофан) |
| Действие малой молекулы | репрессор отходит от оператора | репрессор садится на оператор |
| Транскрипция идёт | при наличии лактозы | при недостатке триптофана |
- Репрессорнеактивен, с оператором не связан
- Результатгены транскрибируются, триптофан синтезируется
- Корепрессортриптофан присоединяется к репрессору
- Репрессорстановится активным и садится на оператор
- Результатсинтез ферментов прекращается
15. Аттенуация: как рибосома управляет транскрипцией
У триптофанового оперона есть и второй, удивительно остроумный механизм регуляции, открытый американским генетиком Чарлзом Яновским [7]. Перед первым структурным геном находится короткий лидерный участок. Он кодирует крошечный пептид из 14 аминокислот, в котором подряд стоят два остатка триптофана, а иРНК этого участка может сворачиваться в шпильки двумя способами.
Поскольку у бактерий транскрипция сопряжена с трансляцией, рибосома начинает транслировать лидерный участок, пока РНК-полимераза ещё транскрибирует его. Дальше всё зависит от количества триптофана.
- Триптофана много. В клетке много тРНК, нагруженных триптофаном, и рибосома быстро проходит два триптофановых кодона. Она закрывает собой один участок иРНК, и оставшиеся участки сворачиваются в шпильку-терминатор. РНК-полимераза останавливается, не дойдя до структурных генов.
- Триптофана мало. Нагруженных тРНК не хватает, и рибосома «застревает» на триптофановых кодонах. В этом случае иРНК сворачивается в другую шпильку, которая не даёт образоваться терминатору, и РНК-полимераза продолжает транскрибировать структурные гены.
Так рибосома «измеряет» содержание триптофана в клетке и сообщает об этом РНК-полимеразе. Репрессия снижает транскрипцию оперона примерно в 70 раз, аттенуация — ещё примерно в 10 раз, а вместе они позволяют изменять синтез ферментов в сотни раз. Механизм возможен только у прокариот: у эукариот транскрипция в ядре и трансляция в цитоплазме разделены, и рибосома не может влиять на РНК-полимеразу.
16. Уровни регуляции у бактерий
Оперон — главный, но не единственный способ, которым бактерия управляет обменом веществ. Количество продукта метаболического пути можно изменить на нескольких уровнях.
| Уровень | Механизм | Скорость ответа | Пример |
|---|---|---|---|
| Транскрипция | репрессоры, активаторы, сигма-факторы, аттенуация | минуты | лактозный и триптофановый опероны |
| Трансляция | белки и малые РНК, связывающиеся с иРНК; рибопереключатели | минуты | рибопереключатели витаминов |
| Активность ферментов | аллостерическое торможение конечным продуктом | секунды | торможение синтеза изолейцина изолейцином |
| Распад белков | протеазы разрушают ненужные ферменты и регуляторы | минуты | разрушение регуляторов стресса после его окончания |
Быстрые и медленные механизмы дополняют друг друга. Если в среду внезапно добавить триптофан, первым делом триптофан тормозит активность уже имеющегося первого фермента своего синтеза — за секунды. А затем, за минуты, через репрессор и аттенуацию прекращается синтез новых молекул ферментов. Уже синтезированные ферменты постепенно «разбавляются» при делении клеток.
17. Торможение конечным продуктом
В 1956 году американский биохимик Эдвин Умбаргер изучал синтез аминокислоты изолейцина у кишечной палочки. Изолейцин синтезируется из треонина в пять реакций, каждую из которых катализирует свой фермент. Умбаргер обнаружил, что изолейцин тормозит активность первого фермента этой цепи — и только его [8]. Когда изолейцина много, первая реакция замедляется, и вся цепочка «простаивает»; когда изолейцин израсходован, торможение снимается.
Это явление назвали торможением конечным продуктом (ретроингибированием). Конечный продукт присоединяется не к активному центру фермента, а к особому регуляторному (аллостерическому) центру и изменяет форму фермента. Остроумие механизма в том, что тормозится именно первый фермент пути: так клетка не тратит исходное вещество и не накапливает ненужные промежуточные продукты. Регуляция активности ферментов подробно разобрана в статье «Скорость ферментативных реакций».
Торможение конечным продуктом и репрессия оперона — два уровня одной логики: продукт сообщает клетке, что его достаточно. Первый механизм быстро выключает работу уже готовых ферментов, второй экономно прекращает их синтез.
18. Негативная и позитивная регуляция
В механизмах регуляции генов различают два принципа.
- Негативная регуляция — белок-регулятор (репрессор) выключает гены, связываясь с ДНК. Примеры — лактозный и триптофановый репрессоры.
- Позитивная регуляция — белок-регулятор (активатор) включает гены, помогая РНК-полимеразе присоединиться к промотору. Пример — белок-активатор с цАМФ, включающий лактозный и другие опероны «запасных» сахаров при нехватке глюкозы.
Сочетание обоих принципов с индукцией и репрессией даёт четыре варианта, и все они встречаются у бактерий. Лактозный оперон регулируется сразу двумя способами: негативно — репрессором, позитивно — активатором. Такой «двойной контроль» работает как логический элемент «И»: гены включаются, только когда лактоза есть И глюкозы нет.
| Регуляция | Регулятор | Без сигнального вещества | С сигнальным веществом |
|---|---|---|---|
| Негативная индуцибельная | репрессор | гены выключены | индуктор снимает репрессор — гены включены |
| Негативная репрессибельная | репрессор | гены включены | корепрессор активирует репрессор — гены выключены |
| Позитивная | активатор | гены работают слабо | активатор, связанный с сигналом, усиливает транскрипцию |
19. Рибопереключатели: когда регулятором служит сама РНК
Долгое время считали, что гены регулируют только белки. В 2002 году американский биохимик Рональд Брейкер с коллегами обнаружил, что у бактерий некоторые иРНК умеют сами «чувствовать» вещества [9]. В начале иРНК генов синтеза витамина B1 (тиамина) находится участок, который сворачивается в сложную пространственную структуру и прочно связывает производное тиамина. Связав его, иРНК меняет форму: закрывается участок, к которому должна присоединиться рибосома, или образуется шпилька-терминатор. Синтез ферментов прекращается, когда витамина и так достаточно.
Такие участки назвали рибопереключателями. Сегодня известны десятки их типов — для аминокислот, нуклеотидов, коферментов, ионов металлов. Они особенно распространены у бактерий, но встречаются и у грибов и растений. Рибопереключатели — ещё один аргумент в пользу мира РНК: возможно, регуляция генов с помощью РНК древнее регуляции белками.
20. Чувство кворума: гены, которые включаются «всем миром»
Бактерии регулируют гены не только по составу пищи, но и по числу соседей. В 1970 году американские микробиологи Кеннет Нилсон, Терри Платт и Вудленд Хастингс изучали морскую светящуюся бактерию Vibrio fischeri и заметили странность: в жидкой культуре бактерии начинали светиться не сразу, а лишь когда их становилось очень много [10]. Если же в свежую культуру добавить среду, в которой уже росли бактерии, свечение включалось раньше. Значит, бактерии выделяют вещество-сигнал, и когда его концентрация достигает порога, включаются гены свечения.
Механизм оказался похож на оперон. Гены свечения объединены в оперон, а белок-регулятор, связавший сигнальное вещество (его называют аутоиндуктором), садится на ДНК и включает транскрипцию. Пока бактерий мало, сигнал рассеивается, и гены молчат: светиться в одиночку бессмысленно и расточительно. Когда бактерий много — например, в светящемся органе гавайского кальмара, где вибрионы живут в огромной плотности, — сигнал накапливается, и все бактерии одновременно начинают светиться. Кальмар использует этот свет, чтобы в лунную ночь не отбрасывать тень вниз и быть незаметным для хищников.
Явление назвали чувством кворума — по аналогии с кворумом собрания, при котором решение можно принимать, только если собралось достаточно участников. Позже выяснилось, что так же многие болезнетворные бактерии включают гены ядов и образование биоплёнок: они «затаиваются», пока их мало, и атакуют, когда их достаточно, чтобы справиться с защитой организма. Вещества, мешающие бактериям «общаться», изучают как возможные лекарства нового типа.
21. Всё или ничего
В 1957 году американские биологи Аарон Новик и Милтон Вайнер обнаружили неожиданное свойство лактозного оперона [11]. При низкой концентрации индуктора одни бактерии в культуре синтезировали фермент в полную силу, а другие не синтезировали вовсе. Промежуточных клеток почти не было. Причём «включённые» клетки и их потомки оставались включёнными, даже когда концентрацию индуктора снижали.
Объяснение — в положительной обратной связи. Пермеаза, закодированная в самом лактозном опероне, закачивает индуктор в клетку. Если оперон включился, пермеазы становится много, внутрь поступает ещё больше индуктора, и оперон остаётся включённым. Если не включился, пермеазы мало, индуктор почти не проникает, и оперон остаётся выключенным. Так система с двумя устойчивыми состояниями работает как переключатель с памятью. Это было одно из первых описаний клеточной «памяти» без изменения ДНК, и сегодня подобные переключатели изучают в связи с тем, как клетки многоклеточного организма «запоминают» свой тип.
22. Глобальные ответы: как бактерия переживает стресс
Опероны часто объединяются в большие группы — регулоны, — которыми управляет общий регулятор. Особенно важны регулоны, включающиеся при стрессе.
- Ответ на тепловой шок. При резком повышении температуры белки клетки начинают разворачиваться. В бактерии накапливается особый сигма-фактор, который направляет РНК-полимеразу к промоторам генов шаперонов и протеаз. Шапероны помогают белкам восстановить форму, протеазы разрушают безнадёжно повреждённые. Через несколько минут после перегрева синтез этих белков возрастает многократно.
- SOS-ответ. Гены репарации ДНК у кишечной палочки выключены репрессором. Когда ДНК сильно повреждена, например ультрафиолетом или некоторыми антибиотиками, белок-«датчик» повреждений активирует расщепление репрессора, и включаются десятки генов репарации. Среди них есть гены ДНК-полимераз, которые копируют повреждённую ДНК с ошибками: клетка спасается ценой мутаций. Поэтому некоторые антибиотики, повреждающие ДНК, могут ускорять появление устойчивых мутантов.
- Строгий ответ. При нехватке аминокислот рибосомы останавливаются на кодонах, для которых нет нагруженных тРНК. Это запускает синтез сигнальных молекул, которые перестраивают работу РНК-полимеразы: синтез рибосом и рРНК резко падает, а гены синтеза аминокислот включаются. Бактерия переходит от роста к выживанию.
- Спорообразование. У сенной палочки при голодании запускается каскад сигма-факторов: каждый новый сигма-фактор включает гены следующего этапа, и клетка шаг за шагом превращается в спору, способную пережить годы неблагоприятных условий.
23. Как увидеть работу гена: гены-репортёры
Чтобы изучать регуляцию, нужно измерять, насколько активен ген. Удобный приём — присоединить к регуляторным участкам изучаемого гена ген-«репортёр», продукт которого легко обнаружить. Классический репортёр — ген β-галактозидазы из того же лактозного оперона: её активность легко измерить по окрашиванию раствора искусственным субстратом. Сегодня чаще используют гены светящихся белков — зелёного флуоресцентного белка медузы или фермента светлячка. По силе свечения можно прямо в живой клетке увидеть, когда и насколько включается промотор.
Именно так изучали «всё или ничего» у лактозного оперона на уровне отдельных клеток: в одних бактериях зелёный свет горел ярко, в других не горел вовсе. Гены-репортёры позволили увидеть, что даже генетически одинаковые клетки в одинаковых условиях могут по-разному включать гены — из-за случайных колебаний числа молекул регуляторов.
24. Откуда взялись опероны
Почему гены одного пути у бактерий лежат рядом? Самое очевидное объяснение — так их удобно регулировать вместе. Но американские генетики Джеффри Лоуренс и Джон Рот в 1996 году предложили дополнительную гипотезу «эгоистичного оперона» [12]. Бактерии часто обмениваются кусками ДНК — путём горизонтального переноса генов. Если все гены, нужные для использования какого-нибудь вещества, лежат рядом, они могут перейти к другой бактерии одним куском и сразу заработать. Разбросанные по хромосоме гены так не перенесёшь. Значит, опероны могли возникнуть и сохраниться потому, что «выгодны» самим генам, облегчая их распространение между видами.
Эта гипотеза хорошо объясняет, почему опероны генов, используемых редко (например, для расщепления необычных сахаров), особенно часто передаются горизонтально. Так же, целыми кластерами, распространяются гены устойчивости к антибиотикам и гены болезнетворности.
25. Генетический переключатель бактериофага
Бактериофаг лямбда, заразив кишечную палочку, может пойти двумя путями. Либо он сразу размножается и разрушает клетку, либо встраивает свою ДНК в хромосому бактерии и «засыпает», передаваясь потомкам бактерии вместе с её хромосомой. Выбор пути определяет «генетический переключатель» — система из двух белков-регуляторов, каждый из которых выключает ген другого. Если побеждает один репрессор, гены размножения фага выключены, и фаг «спит»; если другой — включаются гены размножения.
Марк Птэшни, выделивший репрессор фага лямбда, посвятил этому переключателю десятилетия исследований и знаменитую книгу. Переключатель срабатывает, например, когда ДНК бактерии повреждена ультрафиолетом: репрессор разрушается, и «спящий» фаг пробуждается, чтобы покинуть обречённую клетку. Подробнее о жизни бактериофагов — в статье «Бактериофаги и ретровирусы».
26. Оперон в руках биотехнологов
Лактозный оперон давно стал рабочим инструментом лабораторий.
- Включение генов по команде. Если нужный ген, например ген человеческого белка, поставить в бактерии под промотор и оператор лактозного оперона, он будет молчать, пока бактерии растут. Когда культура наберёт массу, в неё добавляют искусственный индуктор — вещество, которое снимает репрессор, но само бактерией не расщепляется, — и бактерии начинают массово синтезировать белок. Так получают многие лекарственные белки.
- «Синие и белые» колонии. Ген β-галактозидазы используют как метку. Если в среду добавить бесцветное вещество, которое β-галактозидаза расщепляет до синего красителя, колонии с работающим ферментом становятся синими. При встраивании чужого гена внутрь гена фермента фермент перестаёт работать, и колонии остаются белыми. По цвету отбирают бактерии, получившие встроенный ген.
- Искусственные генные сети. В 2000 году американские физики и биологи Майкл Эловиц и Станислас Лейблер собрали в кишечной палочке «репрессилятор» — кольцо из трёх генов, каждый из которых кодирует репрессор следующего, а последний — репрессор первого [13]. Встроив в систему ген светящегося белка, они получили бактерии, которые ритмично мигали. В том же номере журнала описали и искусственный «переключатель» из двух взаимно выключающих генов. С этих работ началась синтетическая биология — конструирование клеток с заранее заданным поведением.
27. Есть ли опероны у эукариот
У эукариот опероны — редкость. Каждый ген белка обычно имеет собственный промотор и регуляторные участки, а иРНК, как правило, кодирует один белок. Отчасти это связано с тем, что эукариотическая рибосома начинает трансляцию с кэпа на 5′-конце иРНК и обычно не умеет начинать синтез с середины молекулы.
Интересное исключение — круглые черви нематоды: около пятой части их генов собраны в опероны и транскрибируются вместе, а затем общая РНК разрезается на отдельные иРНК, и к каждой присоединяется короткий «чужой» начальный участок с кэпом. У эукариот согласованную работу генов одного пути обеспечивают не опероны, а общие регуляторные участки и белки-регуляторы, которые одновременно включают разбросанные по геному гены (подробнее — в статье «Регуляция генов у эукариот и клеточный гомеостаз»).
Строение оперонов в геноме бактерий подробнее разобрано в статьях «Кодирующие и регуляторные последовательности» и «Геномы бактерий, архей и эукариот».
28. А у человека: почему одни люди пьют молоко, а другие нет
Лактоза — сахар молока — интересна не только бактериям. У человека её расщепляет фермент лактаза в тонком кишечнике. У младенцев ген лактазы работает в полную силу, а у большинства людей мира после окончания грудного вскармливания его активность резко падает: взрослые плохо переваривают молоко, и непереваренная лактоза, попав в толстую кишку, сбраживается бактериями, вызывая вздутие и боль.
Но у многих жителей Северной Европы, части Африки и Ближнего Востока ген лактазы продолжает работать всю жизнь. В 2002 году финские генетики выяснили, что у европейцев это связано с заменой одного нуклеотида — не в самом гене лактазы, а в регуляторном участке, лежащем почти в 14 тысячах пар нуклеотидов перед ним, внутри соседнего гена [14]. Изменённый регуляторный участок лучше связывает белок-активатор, и ген не выключается у взрослых.
Это наглядный пример того, что наследственные различия часто касаются не самих белков, а регуляции их генов. Такие варианты распространились за последние несколько тысяч лет у народов, разводивших молочный скот: способность пить молоко во взрослом возрасте давала преимущество (подробнее — в статье «Эволюция современного человека»). Лактаза человека и лактозный оперон бактерии решают одну задачу — расщепить молочный сахар, — но регулируются совсем по-разному.
29. Что происходит с «неправильными» мутантами в природе
Мутанты, которые синтезируют ферменты лактозы постоянно, в лаборатории живут вполне благополучно. Но если смешать их с нормальными бактериями и долго выращивать на среде без лактозы, нормальные бактерии постепенно вытесняют мутантов: те тратят часть ресурсов на ненужные белки и растут чуть медленнее. Опыты показали, что синтез бесполезного белка, составляющего несколько процентов всех белков клетки, замедляет рост бактерии на те же несколько процентов. Для организма, который делится несколько раз в час, это огромная разница: за сотню поколений даже однопроцентное преимущество меняет состав популяции. Поэтому регуляция генов — не тонкость, а условие выживания в конкуренции.
30. Регуляция генов бактерий и медицина
Способность бактерий включать гены «по требованию» имеет прямое отношение к болезням и их лечению. Многие бактерии включают гены устойчивости к антибиотикам только в присутствии антибиотика: например, некоторые бактерии начинают синтезировать фермент, разрушающий пенициллины, лишь когда антибиотик появляется в среде. Холерный вибрион включает гены токсина, когда попадает в кишечник человека, ориентируясь на температуру и состав среды. Возбудители туберкулёза и чумы «переключают» гены при переходе из внешней среды в организм. Понимание этих переключателей помогает искать лекарства, которые не убивают бактерию, а мешают ей включить гены нападения, — против таких лекарств устойчивость развивается медленнее.
31. Жакоб и Моно после оперона
Оба учёных стали не только классиками молекулярной биологии, но и известными авторами. В 1970 году Моно выпустил книгу «Случайность и необходимость», в которой рассуждал о том, как случайные мутации и естественный отбор создают сложные живые системы, и о месте человека в мире без заранее заданной цели. Книга стала бестселлером и вызвала горячие споры философов. В том же году Жакоб издал «Логику живого» — историю представлений о наследственности от античности до молекулярной биологии. Позже он предложил знаменитое сравнение: эволюция работает не как инженер, создающий конструкцию с нуля по плану, а как мастер-самоучка, собирающий новое из того, что оказалось под рукой.
Идея о генах-регуляторах, управляющих другими генами, оказалась гораздо шире бактерий. Она легла в основу понимания того, как из одной оплодотворённой яйцеклетки развивается организм с сотнями типов клеток, как возникают опухоли, когда регуляция нарушается, и как эволюция создаёт новые формы, «перенастраивая» включение старых генов.
32. Итог: что нужно знать об опероне
- У прокариот работа генов регулируется главным образом на уровне транскрипции.
- Оперон — группа структурных генов с общим промотором и оператором, транскрибируемых в одну иРНК; ген-регулятор лежит вне оперона и кодирует белок-репрессор.
- Репрессор, связанный с оператором, не даёт РНК-полимеразе транскрибировать структурные гены.
- Лактозный оперон — индуцибельный: индуктор (производное лактозы) снимает репрессор с оператора, и ферменты расщепления лактозы синтезируются.
- Триптофановый оперон — репрессибельный: корепрессор (триптофан) активирует репрессор, тот садится на оператор, и синтез ферментов триптофана прекращается.
- Кроме репрессоров, гены регулируют активаторы (позитивная регуляция), аттенуация, рибопереключатели, сигналы плотности популяции.
- Гипотезу оперона предложили Ф. Жакоб и Ж. Моно в 1961 году; Нобелевская премия 1965 года.
33. Частые ошибки
- «Ген-регулятор входит в оперон». Ген-регулятор лежит вне оперона и имеет собственный промотор.
- «Репрессор связывается с промотором». Репрессор связывается с оператором; с промотором связывается РНК-полимераза.
- «Лактоза присоединяется к оператору». Индуктор присоединяется к белку-репрессору, а не к ДНК.
- «В лактозном опероне репрессор активен только при наличии лактозы». Наоборот: без лактозы репрессор активен и связан с оператором, а индуктор его инактивирует.
- «Триптофан выключает гены, связываясь с оператором». Триптофан связывается с репрессором (как корепрессор), и уже комплекс садится на оператор.
- «Каждый структурный ген оперона имеет свою иРНК». Структурные гены оперона транскрибируются в одну общую (полицистронную) иРНК.
- «Опероны есть у всех организмов». Опероны характерны для прокариот; у эукариот они редки.
- «Регуляция у бактерий идёт на уровне трансляции». Главный уровень — транскрипция; регуляция трансляции у бактерий тоже бывает, но играет меньшую роль.
34. Интересные факты
- Диауксию Жак Моно открыл в оккупированном Париже, одновременно участвуя в Сопротивлении.
- Опыт «ПаЖаМо» назван по первым слогам фамилий Пардее, Жакоба и Моно.
- В клетке кишечной палочки всего около десяти молекул лактозного репрессора — поэтому его так долго не могли выделить.
- Франсуа Жакоб пришёл в науку почти в тридцать лет, после тяжёлого ранения на войне.
- Гавайский кальмар светится с помощью бактерий, которые включают гены свечения только тогда, когда их много.
- Первые искусственные генные сети, собранные в 2000 году, заставили бактерии ритмично мигать.
- Синие колонии на чашках с бактериями — следствие работы гена β-галактозидазы из лактозного оперона.
- Около пятой части генов червя нематоды объединены в опероны — редкий случай у эукариот.
- Слово «индукция ферментов» вместо расплывчатой «адаптации» Моно с коллегами предложил в 1953 году.
- Книга Моно «Случайность и необходимость» (1970) стала философским бестселлером.
- Изолейцин тормозит первый фермент своего синтеза — этот пример обратной связи описал Умбаргер в 1956 году.
- Опыт Пардее, Жакоба и Моно в англоязычной литературе называют «пижамным» — из-за созвучия сокращения PaJaMo со словом «пижама».
- Кишечную палочку описал в 1885 году педиатр Теодор Эшерих, изучая кишечную флору младенцев.
- Способность взрослых людей пить молоко связана с заменой одного нуклеотида в регуляторном участке, а не в самом гене лактазы.
35. Частые вопросы
Почему ген-регулятор работает постоянно, если его продукт выключает гены?
Репрессор нужен всё время, пока гены должны быть выключены, а выключены они большую часть времени. К тому же репрессора нужно совсем немного: около десяти молекул на клетку. Поэтому ген-регулятор транскрибируется постоянно, но очень слабо.
Как лактоза попадает в клетку, если ферменты лактозного оперона не синтезируются?
Репрессор время от времени ненадолго отходит от оператора, и в клетке всегда есть несколько молекул пермеазы и β-галактозидазы. Их хватает, чтобы небольшое количество лактозы проникло в клетку и превратилось в индуктор, а дальше система включается сама.
Чем оператор отличается от промотора?
Промотор — участок, к которому присоединяется РНК-полимераза, начиная транскрипцию. Оператор — участок, к которому присоединяется репрессор. Они лежат рядом и частично перекрываются: репрессор, сидящий на операторе, мешает полимеразе связаться с промотором или двинуться дальше.
Почему ферменты синтеза триптофана регулируются репрессией, а ферменты расщепления лактозы — индукцией?
Ферменты расщепления нужны только тогда, когда есть что расщеплять, поэтому их гены по умолчанию выключены и включаются субстратом. Ферменты синтеза нужны всегда, кроме случаев, когда продукт уже есть, поэтому их гены по умолчанию включены и выключаются продуктом.
Почему у эукариот почти нет оперонов?
Эукариотическая рибосома обычно начинает трансляцию с кэпа на 5′-конце иРНК и не может начать синтез с середины, поэтому одна иРНК, как правило, кодирует один белок. Согласованную работу генов у эукариот обеспечивают общие белки-регуляторы, одновременно включающие много разных генов.
Что такое полицистронная иРНК?
иРНК, содержащая информацию о нескольких белках: у каждого свой старт-кодон и свой стоп-кодон. Её образуют опероны бактерий; рибосома может начать трансляцию с каждого старт-кодона.
Сколько оперонов у кишечной палочки?
По современным оценкам, несколько сотен оперонов из двух и более генов; ещё больше генов транскрибируются по одному. Опероны часто объединяются в более крупные группы, управляемые общим регулятором, — например, все гены использования «запасных» сахаров зависят от белка-активатора с цАМФ.
Можно ли «выключить» ген, не изменяя его последовательность?
Да, именно это и делает репрессор: ген остаётся целым, но не транскрибируется. Регуляция работы генов без изменения их последовательности — основа приспособления клетки к условиям, а у многоклеточных — и основа различий между клетками разных тканей.
Как бактерия узнаёт, что в среде мало глюкозы?
При транспорте глюкозы в клетку меняется состояние белков системы переноса сахаров, и это влияет на синтез цАМФ: при нехватке глюкозы цАМФ становится больше. цАМФ связывается с белком-активатором, и тот включает опероны «запасных» сахаров.
Что будет, если ген-регулятор лактозного оперона перестанет работать?
Репрессор не будет синтезироваться, оператор окажется всегда свободен, и ферменты расщепления лактозы будут синтезироваться постоянно, даже без лактозы. Такой мутант тратит ресурсы впустую и в природе проигрывает нормальным бактериям.
Чем регуляция генов у бактерий отличается от регуляции у человека?
У бактерий регуляция быстрая и экономная: опероны, репрессоры и активаторы, сопряжение транскрипции с трансляцией. У человека гены регулируются на многих уровнях: укладкой хроматина, многочисленными белками-регуляторами, сплайсингом, малыми РНК, сроком жизни иРНК. Зато клетки человека «помнят» свой тип десятилетиями.
Можно ли использовать регуляцию генов бактерий против болезней?
Да: разрабатываются вещества, мешающие бактериям «общаться» (подавляющие чувство кворума) или включать гены болезнетворности. Такие вещества не убивают бактерию, поэтому устойчивость к ним, по-видимому, развивается медленнее, чем к обычным антибиотикам.
Есть ли опероны у архей?
Да. Как и бактерии, археи — прокариоты, их гены часто собраны в опероны и транскрибируются в полицистронные иРНК. Но сама РНК-полимераза и белки, узнающие промотор, у архей похожи на эукариотические, а регуляторы — на бактериальные. Архейная регуляция — смесь черт двух других доменов жизни.
Почему лактоза — индуктор, а триптофан — корепрессор, если оба просто присоединяются к репрессору?
Дело в том, как они меняют репрессор. Индуктор переводит репрессор в форму, которая не связывается с оператором, — гены включаются. Корепрессор, наоборот, переводит репрессор в форму, которая связывается с оператором, — гены выключаются. Названия отражают результат, а не способ связывания.
Почему индуктором служит не сама лактоза, а её изомер?
Индуктор лактозного оперона — аллолактоза, которая образуется из лактозы при участии той же β-галактозидазы. Это делает систему чувствительной: пока ферментов почти нет, индуктора образуется мало; как только оперон включается, индуктора становится больше. В лабораториях используют искусственные индукторы, которые не расщепляются ферментом и поэтому действуют стабильно.
Может ли один репрессор регулировать несколько оперонов?
Да. Некоторые репрессоры и активаторы управляют сразу многими оперонами, разбросанными по хромосоме, — такую группу называют регулоном. Например, репрессор генов репарации выключает десятки генов SOS-ответа, а белок-активатор с цАМФ включает опероны многих «запасных» сахаров.
Почему бактерии регулируют гены в основном на уровне транскрипции?
Это самый ранний и потому самый экономный этап: если иРНК не синтезирована, не тратятся ни нуклеотиды, ни аминокислоты, ни работа рибосом. А поскольку иРНК бактерий живёт лишь несколько минут, прекращение транскрипции быстро останавливает и синтез белка.
36. ЕГЭ
Что нужно уметь. Объяснять необходимость регуляции активности генов; описывать строение оперона (промотор, оператор, структурные гены, ген-регулятор, репрессор) и работу лактозного оперона по гипотезе Ф. Жакоба и Ж. Моно; различать индукцию и репрессию; распознавать элементы оперона на схеме; решать задачи на полицистронную иРНК [15].
Гипотеза оперона в кодификаторе выделена как элемент, который проверяется на повышенном уровне. В части 1 встречаются задания на соответствие «участок оперона — функция», на выбор утверждений о регуляции генов у прокариот, на распознавание элементов схемы оперона; во второй части — вопросы на объяснение работы лактозного оперона и задачи линии 27 с полицистронной иРНК (подробнее — в статье «Задачи на биосинтез белка»).
Разбор типичного задания второй части
Задание: «Объясните, как регулируется синтез ферментов расщепления лактозы у кишечной палочки при отсутствии и при наличии лактозы в среде». Полный ответ: 1) гены ферментов расщепления лактозы объединены в оперон и транскрибируются вместе; 2) при отсутствии лактозы белок-репрессор, синтезируемый по гену-регулятору, связан с оператором и мешает РНК-полимеразе транскрибировать структурные гены — ферменты не синтезируются; 3) при появлении лактозы её производное (индуктор) присоединяется к репрессору, изменяет его структуру, и репрессор отходит от оператора; 4) РНК-полимераза транскрибирует структурные гены, синтезируются ферменты, и лактоза расщепляется; когда лактоза кончается, репрессор снова связывается с оператором.
Как читать схему оперона в заданиях
В заданиях с рисунком оперона обычно изображены: отрезок ДНК с несколькими прямоугольниками-участками, белок-репрессор (часто — фигура, «сидящая» на ДНК или отдельно), РНК-полимераза и иногда молекула индуктора. Чтобы не ошибиться, ищите опорные признаки. Ген-регулятор — отдельный ген слева, от которого стрелка ведёт к белку-репрессору. Промотор — участок, на котором изображена РНК-полимераза. Оператор — участок рядом с промотором, на котором сидит репрессор. Структурные гены — несколько одинаково оформленных участков подряд, от которых отходит одна общая иРНК. Если на рисунке индуктор присоединён к репрессору, а репрессор не сидит на ДНК, — гены включены.
Как потерять балл. Не упомянуть оператор или РНК-полимеразу и написать просто «лактоза включает гены». Эксперт ждёт механизма: кто с чем связывается и что из этого следует.
37. Для олимпиад
Генетика оперона. В клетках с двумя копиями лактозного оперона (одна — на хромосоме, другая — на дополнительной молекуле ДНК) можно проверить, действует мутация через продукт или только на «свою» молекулу. Мутантный ген-регулятор, не кодирующий работающий репрессор, рецессивен: нормальный репрессор из второй копии выключит обе. Изменённый оператор действует только на свои, соседние структурные гены (на той же молекуле), и вторая копия его не исправит. Это основа понятий действия «в цис» (на той же молекуле) и «в транс» (через диффундирующий продукт).
Сила регуляции. Если без индуктора в клетке около 3 молекул β-галактозидазы, а с индуктором — около 3000, оперон включается примерно в тысячу раз. Если репрессия триптофанового оперона снижает транскрипцию в 70 раз, а аттенуация — ещё в 10, общий диапазон регуляции около 700 раз.
Почему регуляторы так немногочисленны. Если в клетке объёмом около 1 мкм³ всего одна молекула репрессора, её концентрация — около 1,7 наномоль на литр, а десять молекул дают около 17 наномоль на литр. Лактозный репрессор связывается с оператором так прочно, что и такой концентрации хватает, чтобы почти всё время держать оператор закрытым. Зато небольшое число молекул делает систему чувствительной к случайным колебаниям — отсюда «шум» включения генов в отдельных клетках.
Задача на логику. Каким будет синтез ферментов лактозного оперона у мутанта без белка-активатора, связывающего цАМФ, при выращивании на одной лактозе? Ответ: очень слабым, хотя репрессор снят, — без активатора промотор работает плохо, и такой мутант медленно растёт на лактозе.
38. Задания с разбором
Задание 1
Выберите три верных ответа. В состав лактозного оперона кишечной палочки входят: 1) промотор; 2) оператор; 3) структурные гены ферментов расщепления лактозы; 4) ген-регулятор; 5) ген РНК-полимеразы; 6) рибосома.
Ответ
1, 2, 3 (ген-регулятор лежит вне оперона).
Задание 2
Установите соответствие между участками ДНК и их функциями. Функции: А) к нему присоединяется РНК-полимераза; Б) с ним связывается белок-репрессор; В) кодирует белок-репрессор; Г) кодирует ферменты; Д) место окончания транскрипции. Участки: 1) промотор; 2) оператор; 3) ген-регулятор; 4) структурные гены; 5) терминатор.
Ответ
А1, Б2, В3, Г4, Д5.
Задание 3
Установите последовательность событий при включении лактозного оперона: А) синтез ферментов расщепления лактозы; Б) присоединение индуктора к репрессору; В) появление лактозы в среде; Г) отделение репрессора от оператора; Д) транскрипция структурных генов.
Ответ
В, Б, Г, Д, А.
Задание 4
Найдите ошибки в тексте. (1) Оперон — группа структурных генов с общим промотором. (2) Ген-регулятор входит в состав оперона. (3) Белок-репрессор связывается с промотором. (4) В отсутствие лактозы ферменты лактозного оперона не синтезируются. (5) Структурные гены оперона транскрибируются в одну иРНК.
Ответ
(2) Ген-регулятор лежит вне оперона. (3) Репрессор связывается с оператором.
Задание 5
Выберите три верных ответа. Для триптофанового оперона характерно: 1) гены кодируют ферменты синтеза триптофана; 2) триптофан служит корепрессором; 3) при избытке триптофана транскрипция прекращается; 4) гены кодируют ферменты расщепления лактозы; 5) индуктор снимает репрессор; 6) транскрипция идёт только при избытке триптофана.
Ответ
1, 2, 3.
Задание 6
Установите соответствие между характеристиками и оперонами. Характеристики: А) индуцибельный; Б) репрессибельный; В) малая молекула снимает репрессор с оператора; Г) малая молекула помогает репрессору связаться с оператором; Д) гены кодируют ферменты катаболизма; Е) гены кодируют ферменты анаболизма. Опероны: 1) лактозный; 2) триптофановый.
Ответ
А1, Б2, В1, Г2, Д1, Е2.
Задание 7
Почему бактериям выгодно объединять гены ферментов одного метаболического пути в оперон?
Ответ
1) Все ферменты одного пути нужны одновременно. 2) Гены оперона включаются и выключаются вместе одним регулятором. 3) Они транскрибируются в одну иРНК, поэтому ферменты синтезируются согласованно и в нужных соотношениях, без лишних затрат на отдельную регуляцию каждого гена.
Задание 8
Выберите три верных ответа. Белок-репрессор лактозного оперона: 1) кодируется геном-регулятором; 2) связывается с оператором; 3) теряет сродство к оператору, присоединив индуктор; 4) связывается с промотором; 5) расщепляет лактозу; 6) входит в состав рибосомы.
Ответ
1, 2, 3.
Задание 9
У мутантной кишечной палочки ферменты расщепления лактозы синтезируются постоянно, даже без лактозы. Назовите две возможные причины.
Ответ
1) Мутация гена-регулятора: репрессор не синтезируется или не может связаться с оператором. 2) Мутация оператора: репрессор не узнаёт изменённый оператор. 3) В обоих случаях оператор свободен, и РНК-полимераза постоянно транскрибирует структурные гены.
Задание 10
Установите соответствие между условиями и состоянием лактозного оперона. Условия: А) есть глюкоза, нет лактозы; Б) нет глюкозы, есть лактоза; В) есть глюкоза и лактоза; Г) нет ни глюкозы, ни лактозы. Состояние: 1) сильная транскрипция; 2) слабая транскрипция; 3) транскрипции нет.
Ответ
А3, Б1, В2, Г3.
Задание 11
Объясните явление диауксии: почему кишечная палочка на смеси глюкозы и лактозы растёт в две фазы с паузой между ними?
Ответ
1) Пока есть глюкоза, лактозный оперон почти выключен (мало цАМФ, белок-активатор не помогает РНК-полимеразе, индуктор плохо проникает в клетку), и бактерии используют только глюкозу. 2) Когда глюкоза кончается, накапливается цАМФ, активатор и индуктор включают оперон. 3) Пауза нужна для синтеза ферментов расщепления лактозы. 4) Затем начинается вторая фаза роста — на лактозе.
Задание 12
Выберите три верных ответа. Регуляция работы генов у прокариот: 1) осуществляется в основном на уровне транскрипции; 2) включает индукцию и репрессию; 3) может осуществляться белками-активаторами; 4) обязательно требует сплайсинга; 5) идёт только в ядре; 6) невозможна без интронов.
Ответ
1, 2, 3.
Задание 13
Какое значение имела работа Пардее, Жакоба и Моно (опыт «ПаЖаМо») для гипотезы оперона?
Ответ
1) Опыт показал, что нормальный ген-регулятор кодирует вещество, которое выключает синтез β-галактозидазы через цитоплазму, — репрессор. 2) Нормальный аллель гена-регулятора доминирует над мутантным, потому что даже одна копия синтезирует достаточно репрессора. 3) Это стало основой модели, в которой ген-регулятор управляет структурными генами через белок-репрессор.
Задание 14
Установите соответствие между примерами и способами регуляции. Примеры: А) лактозный репрессор выключает гены; Б) белок-активатор с цАМФ помогает РНК-полимеразе; В) триптофан вместе с репрессором выключает гены; Г) иРНК связывает витамин и меняет форму; Д) светящиеся бактерии включают гены при высокой плотности. Способы: 1) негативная регуляция белком; 2) позитивная регуляция белком; 3) рибопереключатель; 4) чувство кворума.
Ответ
А1, Б2, В1, Г3, Д4.
Задание 15
Почему механизм аттенуации возможен у бактерий, но невозможен у эукариот?
Ответ
1) При аттенуации рибосома, транслирующая лидерный участок иРНК, влияет на образование шпилек в этой же иРНК, которую ещё синтезирует РНК-полимераза. 2) Для этого транскрипция и трансляция должны идти одновременно в одном месте. 3) У бактерий они сопряжены, а у эукариот разделены ядерной оболочкой: транскрипция идёт в ядре, трансляция — в цитоплазме.
Задание 16
Выберите три верных ответа. Полицистронная иРНК: 1) характерна для оперонов бактерий; 2) содержит несколько старт-кодонов; 3) кодирует несколько белков; 4) характерна для большинства генов человека; 5) обязательно содержит интроны; 6) транслируется только в ядре.
Ответ
1, 2, 3.
Задание 17
Какое значение имеет регуляция работы генов для бактериальной клетки? Приведите не менее трёх положений.
Ответ
1) Экономия веществ и энергии: ферменты синтезируются только тогда, когда нужны. 2) Быстрое приспособление к изменению состава среды (появлению новых питательных веществ). 3) Согласованная работа ферментов одного пути. 4) Преимущество в росте перед конкурентами, не тратящими ресурсы впустую.
Задание 18
Рассмотрите схему лактозного оперона (рисунок в статье). Какими цифрами обозначены участок, к которому присоединяется РНК-полимераза, и белок, связывающийся с оператором?
Ответ
1) Промотор — цифра 2. 2) Белок-репрессор — цифра 5.
Задание 19 (олимпиадное)
В клетке кишечной палочки две копии лактозного оперона: на хромосоме — нормальный ген-регулятор, нормальный оператор и мутантный (неработающий) ген β-галактозидазы; на дополнительной молекуле ДНК — мутантный ген-регулятор (репрессор не синтезируется), изменённый оператор (репрессор его не узнаёт) и нормальный ген β-галактозидазы. Будет ли синтезироваться работающая β-галактозидаза без лактозы? А с лактозой? Объясните.
Ответ
1) Работающий фермент кодирует только ген на дополнительной молекуле. 2) Его оператор изменён, и репрессор (синтезируемый нормальным геном-регулятором хромосомы) с ним не связывается. 3) Поэтому ген фермента на дополнительной молекуле транскрибируется постоянно: фермент синтезируется и без лактозы, и с лактозой. 4) Мутация оператора действует только на гены своей молекулы (в цис), и нормальный репрессор её не исправляет.
Задание 20 (олимпиадное)
Бактерии с лактозным опероном выращивали при промежуточной концентрации индуктора. Оказалось, что одни клетки синтезируют β-галактозидазу в полную силу, а другие не синтезируют совсем, причём это состояние передаётся потомкам. Объясните этот результат.
Ответ
1) Оперон кодирует пермеазу, которая закачивает индуктор в клетку. 2) Если в клетке оперон случайно включился, пермеазы становится много, индуктора поступает больше, и оперон остаётся включённым — положительная обратная связь. 3) В клетках, где оперон не включился, пермеазы мало, индуктор почти не проникает, и оперон остаётся выключенным. 4) Так возникают два устойчивых состояния («всё или ничего»), и пермеаза с индуктором передаются дочерним клеткам при делении, сохраняя состояние в поколениях.
Литература
- Monod J. The growth of bacterial cultures // Annual Review of Microbiology. 1949. Vol. 3. P. 371–394.
- Pardee A. B., Jacob F., Monod J. The genetic control and cytoplasmic expression of «inducibility» in the synthesis of β-galactosidase by E. coli // Journal of Molecular Biology. 1959. Vol. 1. P. 165–178.
- Jacob F., Monod J. Genetic regulatory mechanisms in the synthesis of proteins // Journal of Molecular Biology. 1961. Vol. 3. P. 318–356.
- Gilbert W., Müller-Hill B. Isolation of the lac repressor // Proceedings of the National Academy of Sciences of the USA. 1966. Vol. 56. P. 1891–1898.
- Ptashne M. Isolation of the λ phage repressor // Proceedings of the National Academy of Sciences of the USA. 1967. Vol. 57. P. 306–313.
- Lewis M., Chang G., Horton N. C. et al. Crystal structure of the lactose operon repressor and its complexes with DNA and inducer // Science. 1996. Vol. 271. P. 1247–1254.
- Yanofsky C. Attenuation in the control of expression of bacterial operons // Nature. 1981. Vol. 289. P. 751–758.
- Umbarger H. E. Evidence for a negative-feedback mechanism in the biosynthesis of isoleucine // Science. 1956. Vol. 123. P. 848.
- Winkler W., Nahvi A., Breaker R. R. Thiamine derivatives bind messenger RNAs directly to regulate bacterial gene expression // Nature. 2002. Vol. 419. P. 952–956.
- Nealson K. H., Platt T., Hastings J. W. Cellular control of the synthesis and activity of the bacterial luminescent system // Journal of Bacteriology. 1970. Vol. 104. P. 313–322.
- Novick A., Weiner M. Enzyme induction as an all-or-none phenomenon // Proceedings of the National Academy of Sciences of the USA. 1957. Vol. 43. P. 553–566.
- Lawrence J. G., Roth J. R. Selfish operons: horizontal transfer may drive the evolution of gene clusters // Genetics. 1996. Vol. 143. P. 1843–1860.
- Elowitz M. B., Leibler S. A synthetic oscillatory network of transcriptional regulators // Nature. 2000. Vol. 403. P. 335–338.
- Enattah N. S., Sahi T., Savilahti E., Terwilliger J. D., Peltonen L., Järvelä I. Identification of a variant associated with adult-type hypolactasia // Nature Genetics. 2002. Vol. 30. P. 233–237.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…