
В 1955 году Фрэнсис Крик разослал друзьям по «Клубу галстуков РНК» — неформальному кружку из двадцати учёных, каждому из которых полагался галстук с узором из нуклеотидов, — короткую заметку. Он рассуждал так: аминокислоты не могут сами «узнать» нуклеотиды иРНК — у них нет для этого подходящих химических групп. Значит, должна существовать молекула-переходник, адаптер, которая одним концом несёт аминокислоту, а другим узнаёт участок нуклеиновой кислоты по принципу комплементарности. Крик даже предположил, что адаптеров будет двадцать — по числу аминокислот, и что к адаптеру аминокислоту будут присоединять особые ферменты. Через три года такой адаптер нашли: это транспортная РНК. Редкий случай в биологии, когда молекулу сначала «вычислили», а потом открыли.
Это третья статья серии о реализации наследственной информации (начало — «Матричный синтез и реализация наследственной информации», предыдущая — «Транскрипция»). Она посвящена второму этапу реализации информации гена — трансляции: строению и роли тРНК и рибосом, этапам и условиям биосинтеза белка.
- 1. Что такое трансляция
- 2. Условия биосинтеза белка
- 3. Открытие транспортной РНК
- 4. Строение транспортной РНК
- 5. Кодон и антикодон: как их записывать
- 6. Неоднозначное спаривание: почему тРНК меньше, чем кодонов
- 7. Активация аминокислот: «второй генетический код»
- 8. Рибосома: строение
- 9. Рибосома — это рибозим
- 10. Функциональный центр рибосомы
- 11. Инициация: начало синтеза
- 12. Элонгация: цикл присоединения аминокислоты
- 13. Терминация: окончание синтеза
- 14. Полисомы
- 15. Скорость, точность и цена синтеза белка
- 16. Свободные и связанные рибосомы: куда отправляется белок
- 17. Путь белка: опыт Джеймисона и Паладе
- 18. Экономика рибосом
- 19. Сворачивание белка и шапероны
- 20. После трансляции: созревание белка
- 21. Трансляция в митохондриях и пластидах
- 22. Синтез белка в пробирке и расшифровка кода
- 23. Рибосома как летопись эволюции
- 24. Как вирусы используют рибосомы клетки
- 25. Болезни трансляционного аппарата
- 26. Антибиотики и яды, действующие на трансляцию
- 27. Как клетка управляет трансляцией
- 28. Частые и редкие кодоны
- 29. Белковые фабрики: человеческий инсулин из бактерий
- 30. Расширение генетического кода
- 31. 21-я и 22-я аминокислоты
- 32. Итог: биосинтез белка по шагам
- 33. Частые ошибки
- 34. Интересные факты
- 35. Частые вопросы
- 36. ЕГЭ
- 37. Для олимпиад
- 38. Задания с разбором
- Литература
1. Что такое трансляция
Трансляция (от латинского translatio — перевод) — синтез полипептида на рибосоме по матрице иРНК. Это завершающий этап реализации наследственной информации: последовательность кодонов иРНК переводится в последовательность аминокислот белка. Если при репликации и транскрипции матрица и продукт написаны одним «алфавитом» нуклеотидов, то при трансляции происходит перевод с четырёхбуквенного языка нуклеотидов на двадцатибуквенный язык аминокислот. Правила перевода задаёт генетический код [1, 2].
Рибосома движется по иРНК от 5′-конца к 3′-концу, считывая кодон за кодоном. Белок при этом растёт от аминокислоты со свободной аминогруппой (N-конца) к аминокислоте со свободной карбоксильной группой (C-конца). Поэтому порядок аминокислот в белке, записанный от N- к C-концу, соответствует порядку кодонов в иРНК, записанной от 5′- к 3′-концу.
Трансляция идёт на рибосомах: у прокариот — в цитоплазме, у эукариот — на свободных рибосомах цитоплазмы и на рибосомах шероховатой ЭПС, а также на собственных рибосомах митохондрий и пластид. Ни в ядре, ни в других органоидах клетки трансляция не идёт: белки синтезируют только рибосомы.
Определения. Трансляция — синтез полипептида на рибосоме по матрице иРНК. Кодон — триплет нуклеотидов иРНК, кодирующий аминокислоту или сигнал окончания синтеза. Антикодон — триплет тРНК, комплементарный кодону. Аминоацил-тРНК — тРНК с присоединённой аминокислотой. Полисома — иРНК с несколькими одновременно транслирующими её рибосомами. Рамка считывания — способ деления иРНК на триплеты, заданный стартовым кодоном.
2. Условия биосинтеза белка
Чтобы в пробирке пошёл синтез белка, нужно собрать много компонентов. Именно так в 1950–1960-х годах изучали трансляцию: из разрушенных клеток получали «бесклеточную систему» и проверяли, без чего синтез прекращается.
| Компонент | Роль |
|---|---|
| иРНК | матрица: определяет порядок аминокислот |
| Рибосомы | место сборки цепи; рРНК большой субъединицы образует пептидную связь |
| тРНК | доставляют аминокислоты и узнают кодоны антикодонами |
| 20 видов аминокислот | строительный материал белка |
| Ферменты аминоацил-тРНК-синтетазы | присоединяют каждую аминокислоту к «своим» тРНК |
| Белковые факторы | факторы инициации, элонгации и освобождения управляют этапами трансляции |
| АТФ и ГТФ | энергия для активации аминокислот, входа тРНК в рибосому и движения рибосомы |
| Ионы магния | поддерживают структуру рибосомы и соединение её субъединиц |
Роль ионов магния заслуживает внимания. Рибосомная РНК — длинная молекула с множеством отрицательно заряженных фосфатных групп, которые отталкиваются друг от друга. Ионы магния нейтрализуют эти заряды и позволяют рРНК свернуться в компактную структуру. Если удалить магний из раствора, рибосомы распадаются на субъединицы, и синтез белка прекращается. Так биологи и узнали, что рибосома состоит из двух частей.
Сегодня бесклеточные системы собирают и из полностью очищенных компонентов: около сотни белков, рибосомы, тРНК, аминокислоты, АТФ и ГТФ смешивают в пробирке, добавляют нужную иРНК — и получают белок. Такие системы позволяют за несколько часов синтезировать белок, ядовитый для живых клеток, или включить в него необычные аминокислоты. Они наглядно доказывают, что для трансляции не нужно ничего, кроме перечисленных в таблице компонентов.
3. Открытие транспортной РНК
Американский биохимик Пол Замечник с сотрудниками в Бостоне в середине 1950-х годов создал первую бесклеточную систему синтеза белка из клеток печени крысы. В 1958 году его сотрудник Малон Хогланд обнаружил, что аминокислоты, меченные радиоактивным углеродом, сначала связываются с небольшими растворимыми молекулами РНК, а уже потом оказываются в белке на рибосомах [3]. Это и был адаптер Крика. Сначала его назвали «растворимой РНК», потом — транспортной.
Предсказание Крика подтвердилось почти во всех деталях: тРНК действительно несут аминокислоты, узнают кодоны по комплементарности, а присоединяют к ним аминокислоты особые ферменты. Ошибся Крик только в числе: тРНК оказалось не двадцать, а больше — у человека около полусотни разных видов по антикодонам.
4. Строение транспортной РНК
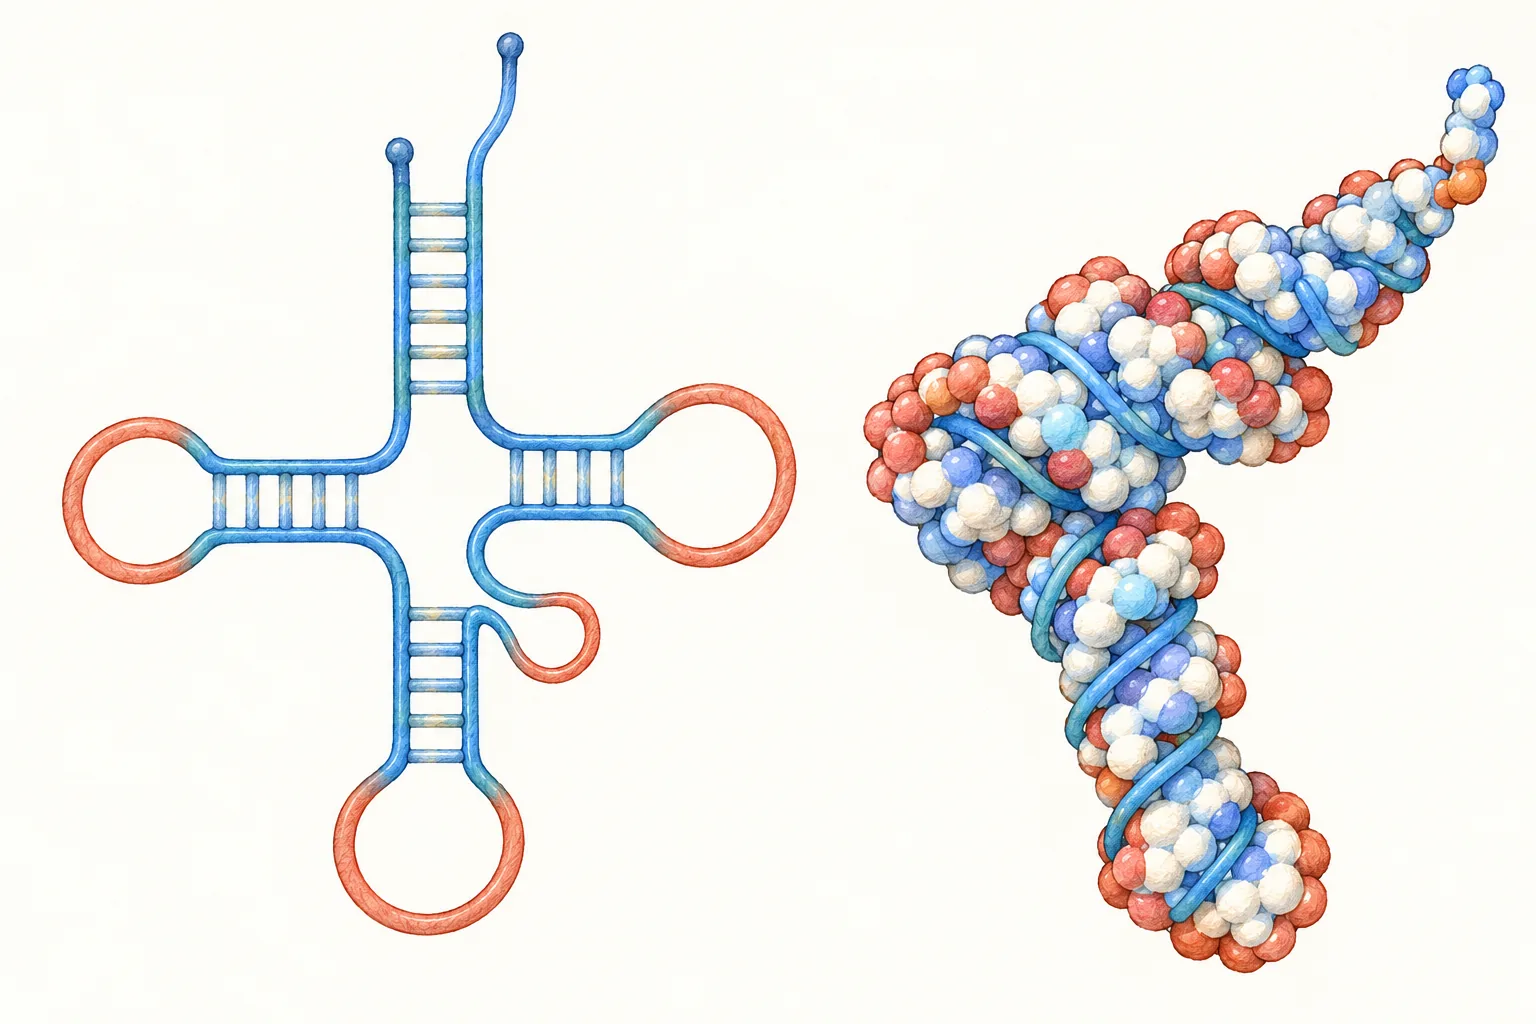
тРНК — небольшие молекулы из 70–90 нуклеотидов. Цепь тРНК местами спаривается сама с собой по принципу комплементарности, образуя короткие двуцепочечные участки, а между ними остаются одноцепочечные петли. На плоском рисунке эта вторичная структура похожа на лист клевера, поэтому её называют «клеверным листом». В пространстве молекула складывается дальше и приобретает форму буквы «Г».
Впервые полную последовательность нуклеотидов тРНК определил в 1965 году американский биохимик Роберт Холли. Его группа три года выделяла из 140 кг дрожжей около грамма чистой тРНК, переносящей аланин, и кусок за куском расшифровала все её 77 нуклеотидов [4]. Это была первая в истории прочитанная последовательность нуклеиновой кислоты. В 1968 году Холли получил Нобелевскую премию вместе с Маршаллом Ниренбергом и Харом Гобиндом Кораной, расшифровавшими генетический код.
В тРНК важны два участка:
- Акцепторный конец (3′-конец) всегда заканчивается тремя нуклеотидами ЦЦА; к последнему из них, аденозину, присоединяется аминокислота.
- Антикодон — три нуклеотида в центральной петле на противоположном конце молекулы. Он комплементарен кодону иРНК и спаривается с ним в рибосоме.
Акцепторный конец и антикодон находятся на противоположных концах «буквы Г», на расстоянии около 7 нм. Это значит, что тРНК никак не «проверяет», какую аминокислоту несёт: аминокислота и антикодон слишком далеко друг от друга. Правильное соответствие обеспечивает фермент, присоединяющий аминокислоту (об этом — ниже).
В тРНК много изменённых нуклеотидов: дигидроуридин, псевдоуридин, инозин, метилированные основания. Некоторые петли тРНК даже названы по ним. Эти изменения помогают молекуле правильно свернуться и точно спариваться с кодоном.

5. Кодон и антикодон: как их записывать
Кодон и антикодон спариваются антипараллельно, как две цепи ДНК. Если кодон записан от 5′- к 3′-концу, то комплементарный ему антикодон, записанный под ним, идёт от 3′- к 5′-концу.
| Кодон иРНК (5′ → 3′) | Антикодон тРНК (3′ → 5′) | Аминокислота |
|---|---|---|
| АУГ | УАЦ | метионин |
| УУУ | ААА | фенилаланин |
| ГЦУ | ЦГА | аланин |
| ЦУГ | ГАЦ | лейцин |
| УГГ | АЦЦ | триптофан |
В задачах ЕГЭ важно внимательно читать, в каком направлении записаны антикодоны. Если антикодон дан от 3′- к 5′-концу, кодон получается простой заменой каждого нуклеотида на комплементарный. Если же антикодон записан от 5′- к 3′-концу (так его пишут в научной литературе), то для получения кодона его нужно сначала «перевернуть». Например, антикодон 5′-ЦАУ-3′ — это тот же антикодон 3′-УАЦ-5′, и он соответствует кодону 5′-АУГ-3′.
Как потерять балл. Определять аминокислоту по антикодону, подставляя его в таблицу генетического кода. Таблица составлена для кодонов иРНК: сначала нужно найти кодон, комплементарный антикодону, и только потом искать аминокислоту.
6. Неоднозначное спаривание: почему тРНК меньше, чем кодонов
Смысловых кодонов 61, а видов тРНК в клетке меньше: у бактерий — около 40, у человека — около 50 по антикодонам. Значит, некоторые тРНК узнают сразу несколько кодонов. Как это возможно?
В 1966 году Крик предложил объяснение — гипотезу «качания» (неоднозначного спаривания) [5]. Первые два нуклеотида кодона спариваются с антикодоном строго по правилам комплементарности, а третий нуклеотид кодона спаривается с первым (5′-концевым) нуклеотидом антикодона менее строго: допускаются «неправильные» пары, например Г–У. Особенно универсален изменённый нуклеотид инозин в антикодоне: он может спариваться с У, Ц и А. Поэтому одна тРНК с инозином в «качающемся» положении узнаёт три кодона одной аминокислоты.
Это хорошо согласуется со строением генетического кода: кодоны одной аминокислоты обычно различаются именно третьим нуклеотидом (ГЦУ, ГЦЦ, ГЦА, ГЦГ — все кодируют аланин). Поэтому замены в третьем положении кодона часто не меняют аминокислоту, и такие мутации оказываются «молчащими».
7. Активация аминокислот: «второй генетический код»
Присоединять к каждой тРНК «свою» аминокислоту — задача ферментов аминоацил-тРНК-синтетаз. Их в клетке 20 видов — по одному на каждую аминокислоту. Каждый фермент узнаёт одну аминокислоту и все тРНК, которые должны её переносить. Процесс называют активацией аминокислоты, и он идёт в цитоплазме в два этапа:
- аминокислота реагирует с АТФ, образуется активированная аминокислота, связанная с АМФ, и отщепляется пирофосфат (два фосфата);
- активированная аминокислота переносится на 3′-конец тРНК, образуется аминоацил-тРНК; энергия сохраняется в связи между аминокислотой и тРНК и позже идёт на образование пептидной связи.
Точность синтетаз — ключ к точности всего синтеза белка. Рибосома проверяет только соответствие антикодона кодону, а не саму аминокислоту. Если синтетаза ошибётся и присоединит к тРНК чужую аминокислоту, она будет включена в белок там, где её быть не должно. Поэтому многие синтетазы имеют второй, «корректирующий» активный центр. Например, изолейцин и валин различаются всего одной группой CH2, и синтетаза изолейцина иногда по ошибке активирует валин. Но затем валин попадает в корректирующий центр, куда более крупный изолейцин не помещается, и там отщепляется. Ошибки при этом случаются примерно в одном случае из десятков тысяч.
Как синтетаза узнаёт «свою» тРНК? Часто по антикодону, но не всегда. Например, синтетаза аланина узнаёт тРНК по единственной необычной паре Г–У в акцепторном стебле. Если ввести такую пару в другую тРНК, к ней начинает присоединяться аланин. Правила, по которым синтетазы узнают тРНК, называют «вторым генетическим кодом».
8. Рибосома: строение
Рибосомы впервые увидел в электронный микроскоп в начале 1950-х годов румынско-американский цитолог Джордж Паладе. В 1955 году он описал «мелкий зернистый компонент цитоплазмы» — частицы диаметром 10–15 нм, лежащие свободно в цитоплазме или прикреплённые к мембранам ЭПС [6]. Позже выяснилось, что эти частицы богаты РНК и именно на них синтезируется белок. В 1974 году Паладе получил Нобелевскую премию.
Рибосома — немембранный органоид из двух субъединиц, малой и большой. Каждая построена из рибосомной РНК и белков, причём рРНК составляет большую часть массы: у бактерий около двух третей. Размеры рибосом выражают в единицах Сведберга (S), отражающих скорость оседания частицы при ультрацентрифугировании. Эти единицы не складываются: рибосома 70S состоит из субъединиц 30S и 50S, потому что скорость оседания зависит не только от массы, но и от формы частицы.
| Признак | Прокариоты | Эукариоты (цитоплазма) |
|---|---|---|
| Целая рибосома | 70S | 80S |
| Малая субъединица | 30S: одна рРНК и около 20 белков | 40S: одна рРНК и около 33 белков |
| Большая субъединица | 50S: две рРНК и около 33 белков | 60S: три рРНК и около 47 белков |
| Где собираются субъединицы | в цитоплазме | в ядрышке |
У эукариот субъединицы собираются в ядрышке и по отдельности выходят через ядерные поры в цитоплазму. Целая рибосома образуется только на иРНК, в начале трансляции, а после её окончания снова распадается на субъединицы. Рибосомы митохондрий и пластид мельче цитоплазматических и похожи на бактериальные (у пластид — 70S).
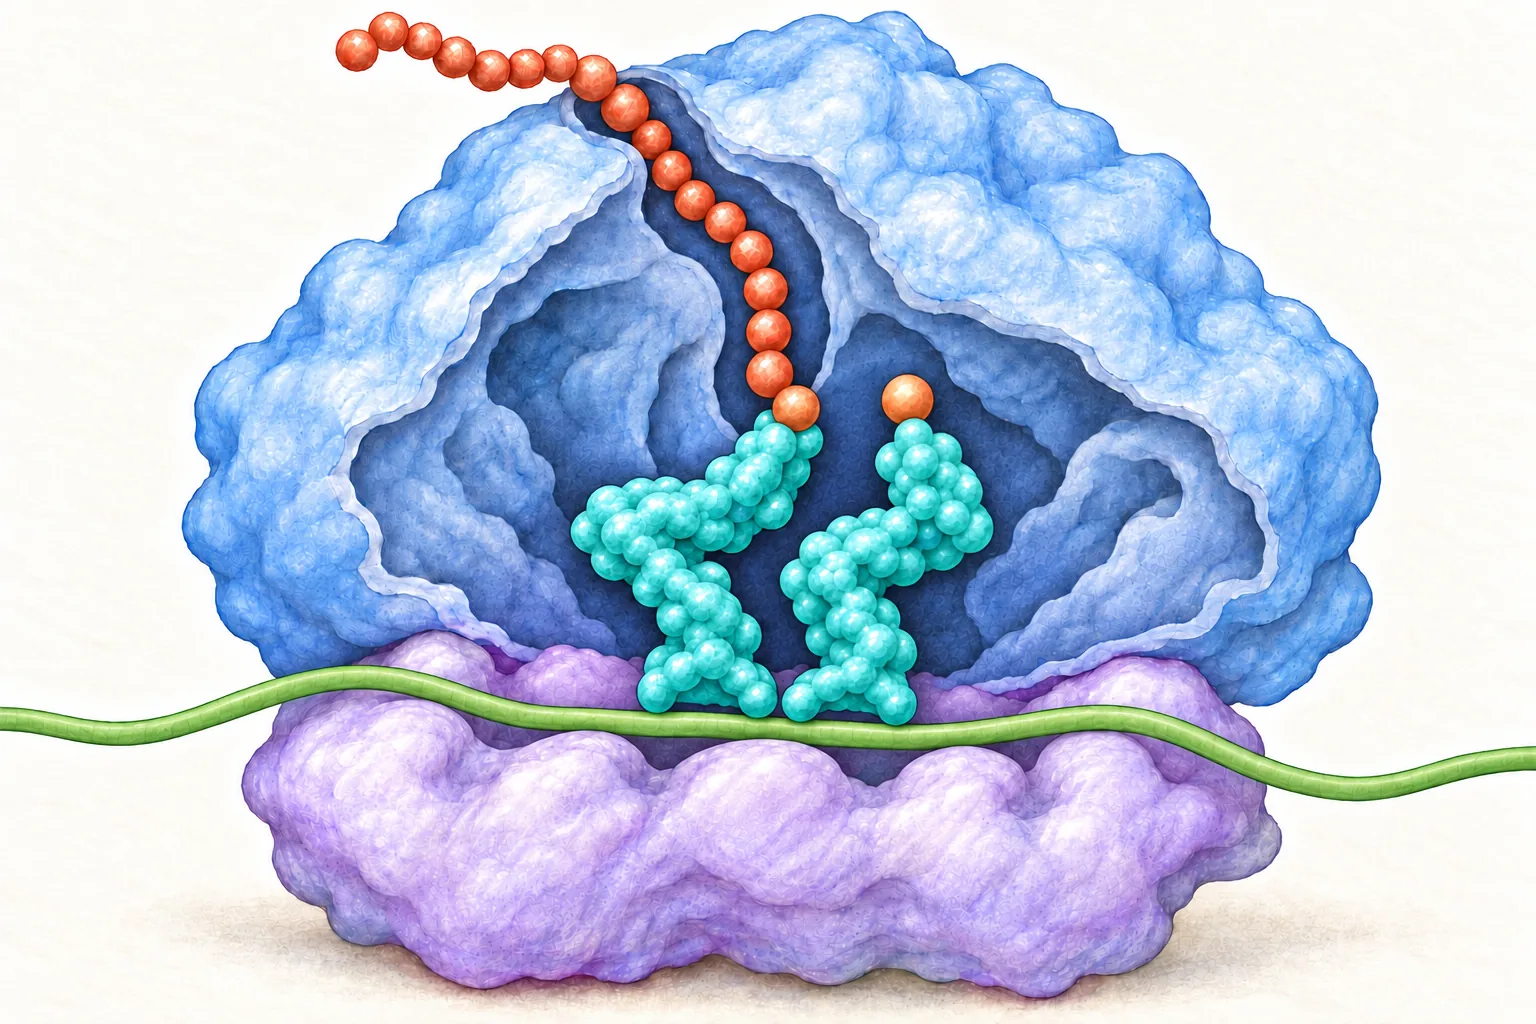
Функции субъединиц различны. Малая субъединица связывает иРНК и следит за правильностью спаривания кодона с антикодоном. Большая субъединица катализирует образование пептидной связи; в ней же проходит туннель длиной около 10 нм, через который растущая белковая цепь выходит из рибосомы.
9. Рибосома — это рибозим
Долгое время считали, что пептидную связь в рибосоме образует какой-то из рибосомных белков. Но опыты показывали странное: если удалить из большой субъединицы почти все белки, она сохраняет способность образовывать пептидную связь. Окончательный ответ дала рентгеноструктурная расшифровка рибосомы.
Получить кристаллы такой огромной молекулярной машины — из трёх РНК и полусотни белков — казалось невозможным. Израильский кристаллограф Ада Йонат упорно занималась этим с конца 1970-х годов. Она брала рибосомы бактерий, живущих в экстремальных условиях — в горячих источниках и солёной воде Мёртвого моря, — потому что они особенно прочны. Идею ей подсказали медведи: она прочла, что у впадающих в спячку медведей рибосомы в клетках плотно упаковываются в упорядоченные массивы, и решила, что рибосомы способны образовывать кристаллы.
В 2000 году группа американского биохимика Томаса Стейца опубликовала структуру большой субъединицы с точностью до атома [7]. В активном центре, где образуется пептидная связь, не оказалось ни одного белка ближе чем на 1,8 нм: его образуют только нуклеотиды рРНК. Рибосома оказалась рибозимом — РНК-ферментом, а её белки служат лишь каркасом. В 2009 году Йонат, Стейц и Венкатраман Рамакришнан, расшифровавший малую субъединицу, получили Нобелевскую премию по химии.
Этот результат — один из сильнейших доводов в пользу гипотезы мира РНК: самая древняя и важная машина клетки, синтезирующая все белки, сама построена вокруг РНК-катализатора (подробнее — в статьях «Рибозимы и гипотеза мира РНК» и «Рибосома: строение, работа и происхождение»).
10. Функциональный центр рибосомы
Когда субъединицы объединяются на иРНК, между ними образуется функциональный центр рибосомы. В школьном описании он вмещает два кодона иРНК (шесть нуклеотидов) и включает два участка для тРНК:
- аминоацильный (А-участок) — сюда входит тРНК с аминокислотой (аминоацил-тРНК), антикодон которой комплементарен кодону в этом участке;
- пептидильный (П-участок) — здесь находится тРНК, удерживающая растущую полипептидную цепь.
На самом деле участков три: есть ещё выходной (Е-участок), через который освободившаяся от аминокислоты тРНК покидает рибосому. В заданиях ЕГЭ обычно используют двухучастковую модель, а о Е-участке полезно знать для олимпиад.
| Участок | Что в нём находится | Что происходит |
|---|---|---|
| А (аминоацильный) | очередной кодон иРНК и входящая аминоацил-тРНК | антикодон спаривается с кодоном; к аминокислоте присоединяется цепь |
| П (пептидильный) | предыдущий кодон и тРНК с растущей цепью | цепь переносится с этой тРНК на аминокислоту в А-участке |
| Е (выходной) | тРНК, уже отдавшая цепь | тРНК покидает рибосому |

11. Инициация: начало синтеза
Трансляция, как и транскрипция, делится на три стадии: инициацию, элонгацию и терминацию. Задача инициации — собрать рибосому на иРНК точно у стартового кодона АУГ. От этого кодона иРНК будет читаться триплет за триплетом, без пропусков, поэтому старт-кодон задаёт рамку считывания: ошибка на один нуклеотид исказила бы весь белок.
У бактерий малая субъединица находит старт-кодон по особому участку иРНК, лежащему примерно за 8 нуклеотидов до АУГ. В 1974 году австралийские биохимики Джон Шайн и Линн Дальгарно обнаружили, что этот участок комплементарен концу рРНК малой субъединицы [8]. Рибосома буквально «садится» на иРНК по принципу комплементарности. Поскольку таких участков в полицистронной иРНК бактерий несколько, рибосомы могут начинать синтез с середины молекулы, и каждый белок оперона синтезируется со своего старт-кодона.
У эукариот малая субъединица вместе с факторами инициации присоединяется к кэпу на 5′-конце иРНК и движется вдоль неё, «просматривая» последовательность, пока не встретит первый подходящий кодон АУГ. Американский биолог Мэрилин Козак в 1980-х годах показала, что рибосома предпочитает АУГ в определённом окружении нуклеотидов [9]. Если окружение «плохое», часть рибосом проходит мимо и начинает синтез со следующего АУГ.
У старт-кодона малая субъединица связывает особую инициаторную тРНК с метионином (у бактерий — с изменённым метионином, формилметионином). Её антикодон 3′-УАЦ-5′ комплементарен кодону АУГ. Поэтому почти все белки при синтезе начинаются с метионина, хотя у многих зрелых белков он затем отщепляется. Затем присоединяется большая субъединица, и инициаторная тРНК оказывается в П-участке, а А-участок свободен и готов принять следующую тРНК. Энергию для сборки дают молекулы ГТФ.
12. Элонгация: цикл присоединения аминокислоты
Удлинение цепи — элонгация — состоит из повторяющихся циклов. В каждом цикле к белку присоединяется одна аминокислота, а рибосома продвигается по иРНК на один кодон. Цикл включает три шага.
- Вход аминоацил-тРНК. В свободный А-участок входит аминоацил-тРНК, доставленная белковым фактором элонгации вместе с молекулой ГТФ. Если антикодон комплементарен кодону, тРНК остаётся; если нет — уходит, и пробуется следующая. Перебор идёт очень быстро: в клетке десятки видов тРНК, и рибосома «примеряет» их одну за другой, пока не найдёт подходящую.
- Образование пептидной связи. рРНК большой субъединицы переносит растущую цепь с тРНК П-участка на аминокислоту тРНК А-участка. Образуется пептидная связь, и цепь, удлинившаяся на одну аминокислоту, оказывается на тРНК в А-участке, а тРНК в П-участке остаётся без аминокислоты.
- Транслокация. Другой фактор элонгации за счёт энергии ГТФ сдвигает рибосому по иРНК на один триплет к 3′-концу. тРНК с цепью переходит из А-участка в П-участок, освободившаяся тРНК уходит (через Е-участок), а в А-участке оказывается следующий кодон.
| Шаг | А-участок | П-участок | Затраты |
|---|---|---|---|
| Вход аминоацил-тРНК | входит тРНК с антикодоном, комплементарным кодону | тРНК с растущей цепью | ГТФ |
| Пептидная связь | тРНК с цепью, удлинённой на одну аминокислоту | тРНК без аминокислоты | энергия связи аминокислоты с тРНК |
| Транслокация | свободен, напротив следующего кодона | тРНК с цепью | ГТФ |
Обратите внимание: цепь не «нанизывается» на последнюю аминокислоту, а, наоборот, вся растущая цепь каждый раз переносится на вновь пришедшую аминокислоту. Поэтому новая аминокислота всегда оказывается на том конце цепи, который связан с тРНК, — на её C-конце, а первой синтезированной аминокислотой остаётся N-концевой метионин.
13. Терминация: окончание синтеза
Синтез продолжается, пока в А-участок не попадёт один из трёх стоп-кодонов: УАА, УАГ или УГА. Для них нет тРНК с комплементарным антикодоном. Вместо тРНК в А-участок входит белок — фактор освобождения, — по форме удивительно похожий на тРНК: он как бы «подделывается» под неё. Фактор заставляет рибосому присоединить к концу цепи не аминокислоту, а молекулу воды. Связь между белком и последней тРНК разрывается, готовая цепь выходит из рибосомы, а субъединицы расходятся и могут начать новый цикл трансляции на другой иРНК.
Стоп-кодоны поэтому называют ещё «бессмысленными» — они не кодируют аминокислот. Если мутация превращает кодон аминокислоты в стоп-кодон, синтез белка обрывается раньше времени — так возникают нонсенс-мутации, вызывающие, например, некоторые формы муковисцидоза и мышечной дистрофии.
| Стадия | Что происходит | Участники |
|---|---|---|
| Инициация | сборка рибосомы на иРНК у старт-кодона АУГ, инициаторная тРНК с метионином в П-участке | иРНК, субъединицы, инициаторная тРНК, факторы инициации, ГТФ |
| Элонгация | вход аминоацил-тРНК, образование пептидной связи, транслокация — снова и снова | аминоацил-тРНК, рРНК большой субъединицы, факторы элонгации, ГТФ |
| Терминация | стоп-кодон в А-участке, освобождение цепи, распад рибосомы на субъединицы | факторы освобождения |
14. Полисомы
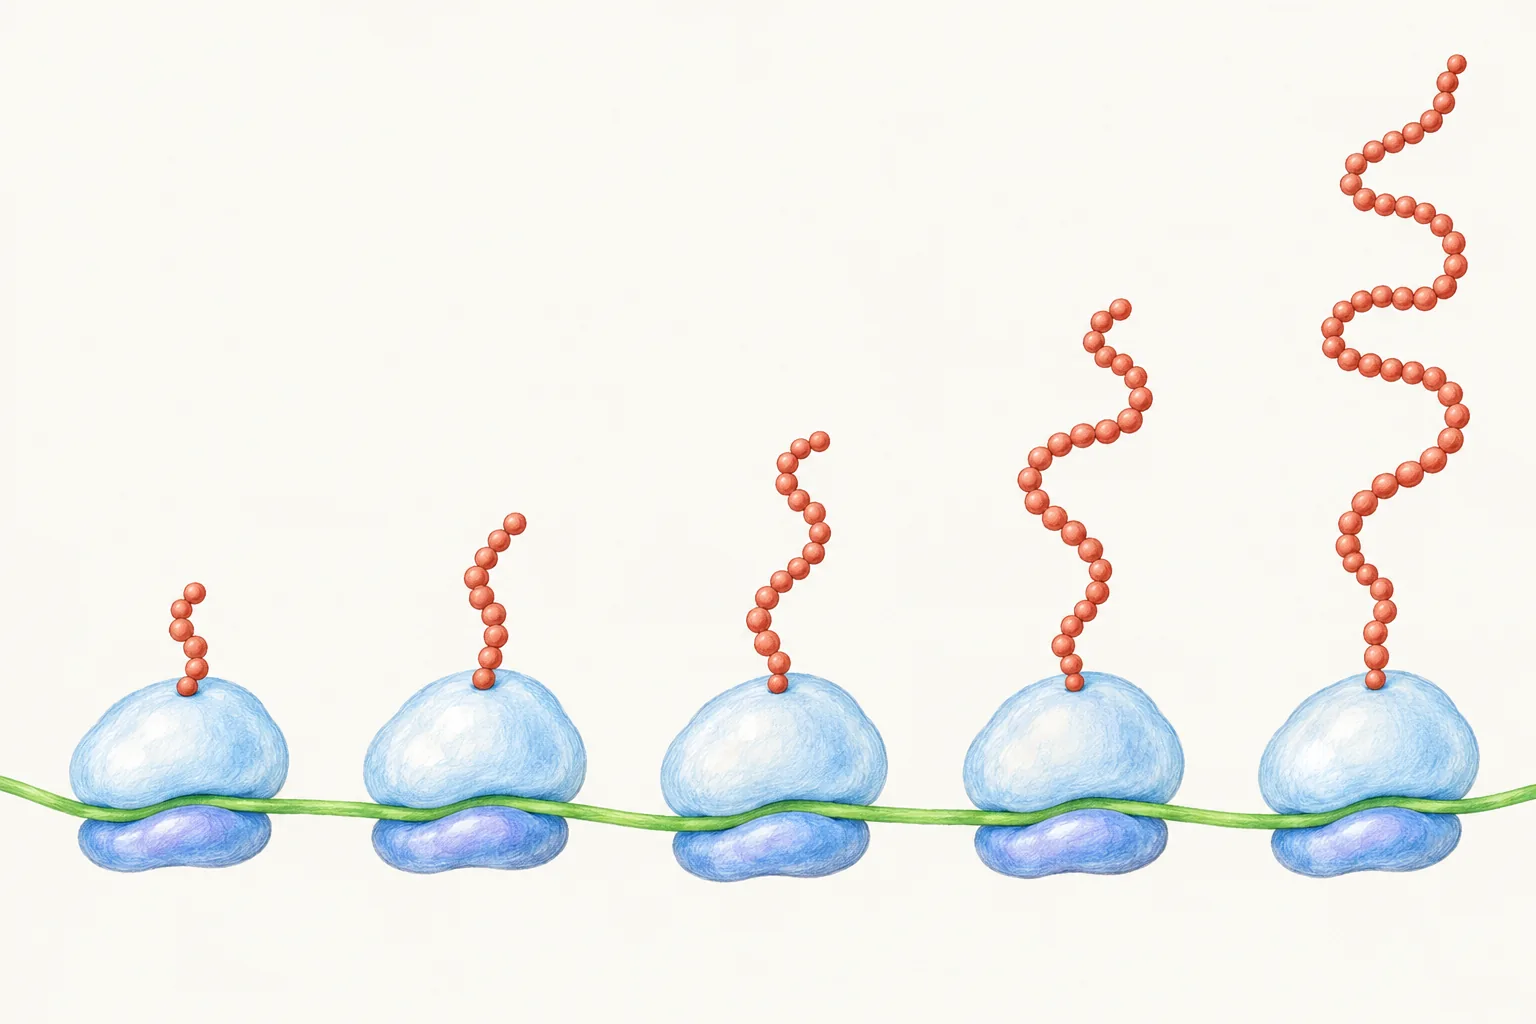
На одной иРНК одновременно работает много рибосом: как только первая рибосома отойдёт от старт-кодона на несколько десятков нуклеотидов, на её место садится следующая. Комплекс иРНК с несколькими рибосомами называют полисомой (полирибосомой). Рибосомы, расположенные ближе к 5′-концу, только начали синтез и несут короткие цепи, а рибосомы у 3′-конца — почти готовые белки. В электронный микроскоп полисомы видны как цепочки или спирали из рибосом, от которых отходят белковые нити.
Полисомы многократно увеличивают выход белка: если трансляция одной молекулы занимает около минуты, а на иРНК работают двадцать рибосом, то каждые три секунды с неё сходит готовый белок. У бактерий полисомы образуются ещё на недостроенной иРНК, сразу за РНК-полимеразой. В клетках, синтезирующих много белка на экспорт, — в клетках поджелудочной железы, плазматических клетках, вырабатывающих антитела, — полисомы густо покрывают мембраны шероховатой ЭПС, и вся цитоплазма бывает заполнена её плоскими цистернами.
15. Скорость, точность и цена синтеза белка
Рибосома бактерии присоединяет 15–20 аминокислот в секунду, рибосома эукариот — 5–6. Белок из 300 аминокислот бактерия синтезирует за 15–20 секунд, клетка человека — примерно за минуту. Самый длинный белок человека — титин, придающий упругость мышцам, — состоит примерно из 34 тысяч аминокислот, и при скорости 5 аминокислот в секунду на синтез одной его молекулы уходит около двух часов.
Ошибки при трансляции случаются примерно один раз на 103–104 аминокислот. Значит, заметная доля длинных белков содержит хотя бы одну ошибку. Клетка это терпит: ошибочные молекулы — меньшинство, а повреждённые белки находит и разрушает система контроля качества.
Цена синтеза высока. На каждую аминокислоту клетка расходует не менее четырёх «макроэргических» фосфатных связей: две — на активацию аминокислоты (АТФ расщепляется до АМФ и пирофосфата), одну (ГТФ) — на вход аминоацил-тРНК в А-участок и одну (ГТФ) — на транслокацию. Добавьте затраты на инициацию, терминацию и исправление ошибок. Синтез белка — самый энергоёмкий процесс растущей клетки: у быстро делящихся бактерий на него уходит большая часть всей АТФ (подробнее — в статье «АТФ и энергетика клетки»).
Расчёт. Белок из 300 аминокислот: 300 · 4 = 1200 макроэргических связей. Это больше, чем запасается в АТФ при полном окислении 30 молекул глюкозы (30 · 38 = 1140 АТФ по школьному счёту).
16. Свободные и связанные рибосомы: куда отправляется белок
Все рибосомы эукариотической клетки одинаковы, но работают в двух местах. Свободные рибосомы цитоплазмы синтезируют белки, которые остаются в цитоплазме или отправляются в ядро, митохондрии, пероксисомы. Рибосомы шероховатой ЭПС синтезируют белки, которые будут выведены из клетки (гормоны, пищеварительные ферменты, антитела), встроены в мембраны или отправлены в лизосомы.
Как рибосома «узнаёт», куда ей садиться? Это объяснил американский биолог немецкого происхождения Гюнтер Блобел. В 1975 году он показал, что белки, предназначенные для выведения из клетки, начинаются с короткого участка из гидрофобных аминокислот — сигнального пептида [10]. Как только этот участок выходит из туннеля рибосомы, его узнаёт особая частица, останавливает трансляцию и «привозит» рибосому к мембране ЭПС. Там рибосома садится на белковый канал, и растущая цепь проходит сквозь мембрану прямо в полость ЭПС. Сигнальный пептид затем отрезается. Это работает как почтовый индекс: адрес назначения записан в самом белке. Блобел получил за это открытие Нобелевскую премию 1999 года.
Из полости ЭПС белки в пузырьках переходят в комплекс Гольджи, где созревают и сортируются, а оттуда отправляются к плазматической мембране, в лизосомы или наружу (подробнее — в статье «Одномембранные органоиды: ЭПС, комплекс Гольджи, лизосомы»).
17. Путь белка: опыт Джеймисона и Паладе
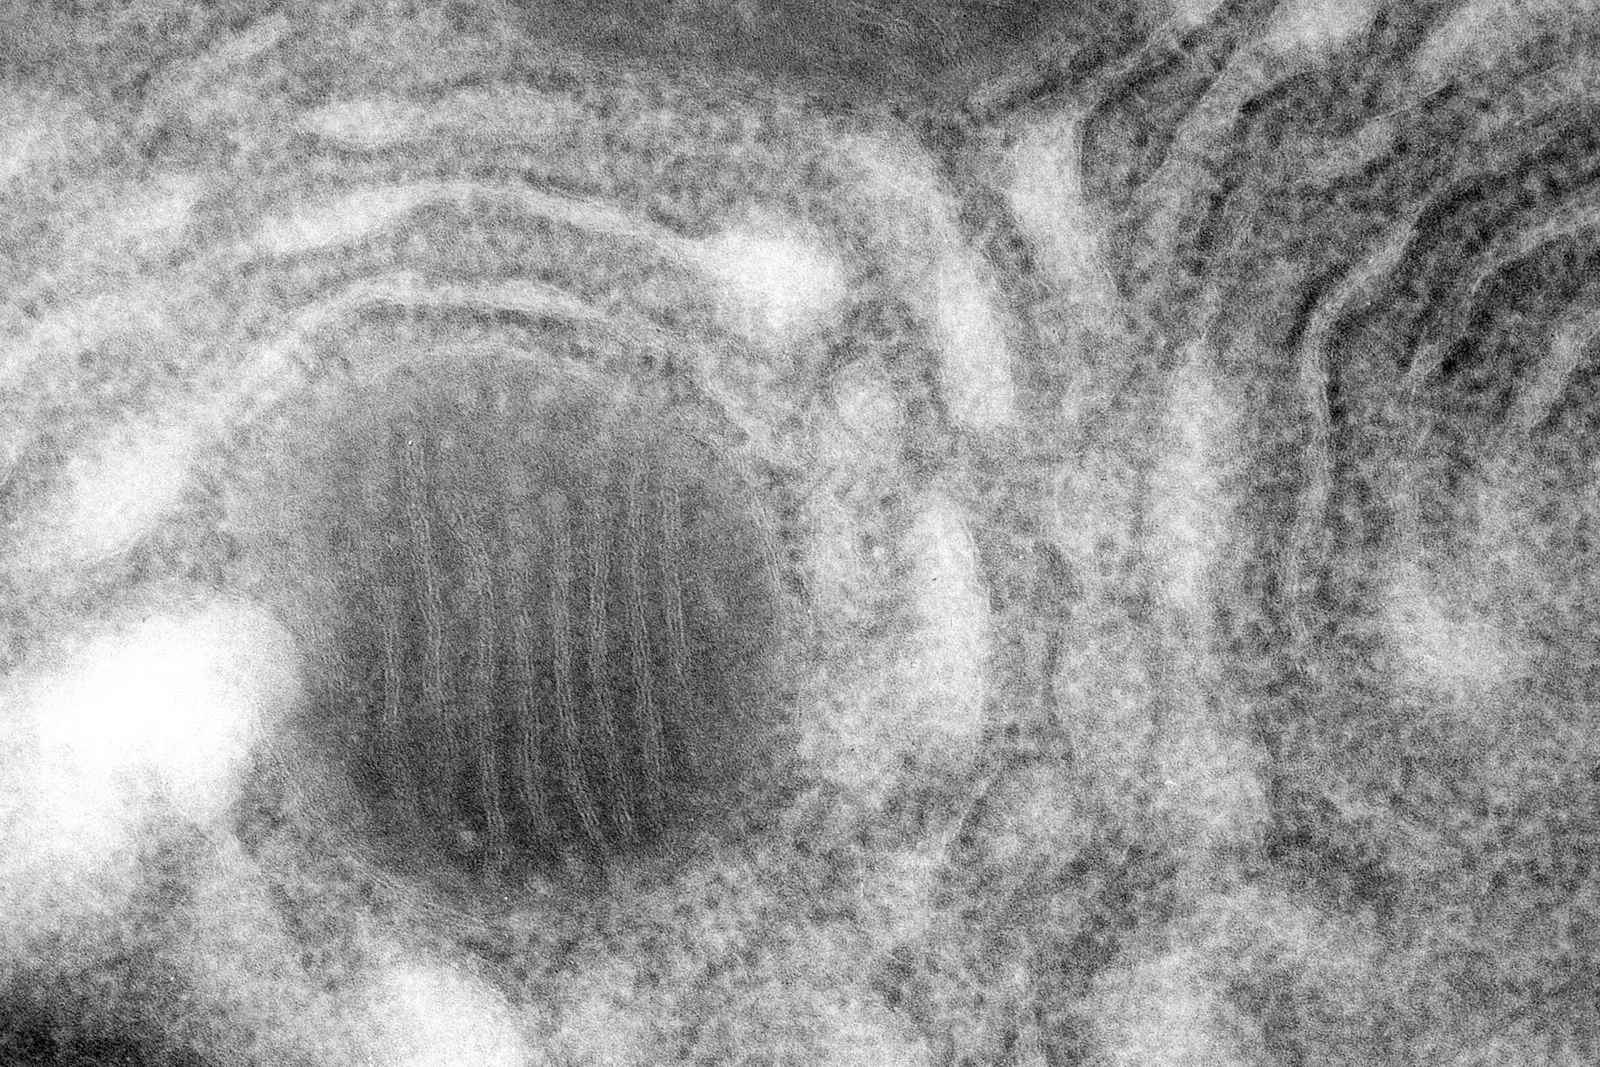
Как узнали, что секретируемые белки синтезируются на ЭПС и проходят через комплекс Гольджи? В 1960-х годах Джордж Паладе и его сотрудник Джеймс Джеймисон взяли срезы поджелудочной железы морской свинки — органа, клетки которого почти только и делают, что синтезируют и выводят пищеварительные ферменты. Срезы на три минуты помещали в раствор с аминокислотой, меченной радиоактивным изотопом, а затем переносили в раствор с обычной аминокислотой и через разные промежутки времени фиксировали [11].
Авторадиография показала путь метки как в кино. Через 3 минуты она находилась в шероховатой ЭПС, через 7–17 минут — в пузырьках у комплекса Гольджи и в нём самом, через 37 минут — в секреторных гранулах (зимогенных гранулах), а позже — в просвете протока железы, куда клетки выделили ферменты. Так был впервые прослежен секреторный путь: рибосомы ЭПС → полость ЭПС → комплекс Гольджи → секреторные пузырьки → выход из клетки. Этот опыт стал классическим и вошёл во все учебники цитологии.
18. Экономика рибосом
Рибосома — одна из самых крупных молекулярных машин клетки: бактериальная весит около 2,5 миллиона дальтон, эукариотическая — больше 4 миллионов. И таких машин клетке нужно очень много. Американский биолог Джонатан Уорнер подсчитал, во что обходится их производство быстро растущей клетке пекарских дрожжей [12]. В такой клетке около 200 тысяч рибосом, и чтобы к делению удвоить их число, она должна выпускать примерно 2000 новых рибосом в минуту. На транскрипцию генов рРНК приходится около 60 % всей транскрипции клетки, а около половины всех случаев начала транскрипции РНК-полимеразой II — это транскрипция генов рибосомных белков.
Поэтому синтез рибосом жёстко связан с условиями жизни. Когда питательных веществ много, клетка наращивает производство рибосом и растёт; когда пищи мало или наступает стресс, синтез рибосом сворачивается одним из первых. Неудивительно, что у бактерий скорость роста почти прямо пропорциональна числу рибосом в клетке: больше рибосом — больше белка — быстрее рост и деление. Многие противоопухолевые препараты, наоборот, подавляют образование рибосом в быстро растущих раковых клетках.
19. Сворачивание белка и шапероны
Только что синтезированная цепь — ещё не работающий белок. Чтобы выполнять свою функцию, она должна свернуться в определённую пространственную структуру. Откуда цепь «знает», как сворачиваться?
Ответ дал американский биохимик Кристиан Анфинсен. В 1950–1960-х годах он обрабатывал фермент рибонуклеазу веществами, которые разрывают дисульфидные мостики и разворачивают цепь. Фермент терял активность. Но если эти вещества медленно удаляли, цепь сама сворачивалась обратно, мостики восстанавливались правильно, и фермент снова работал [13]. Вывод: вся информация о пространственной структуре белка записана в последовательности его аминокислот, то есть в конечном счёте — в гене. В 1972 году Анфинсен получил Нобелевскую премию по химии.
В тесной цитоплазме, где белков очень много, растущие цепи легко могут слипаться друг с другом гидрофобными участками, ещё не успев свернуться. Поэтому сворачиванию помогают особые белки — шапероны (от французского слова, обозначающего пожилую даму, сопровождающую юную девушку на балу и оберегающую её от неподходящих знакомств). Одни шапероны связываются с цепью, выходящей из рибосомы, и прикрывают её гидрофобные участки; другие образуют полые бочонки, внутри которых белок сворачивается в изоляции. Многие шапероны были открыты как «белки теплового шока»: их синтез резко усиливается при перегреве клетки, когда белки начинают разворачиваться.
Если белок всё же свернулся неправильно и не может быть исправлен, он помечается и разрушается в протеасоме — бочкообразном комплексе ферментов. Нарушение этой системы контроля приводит к накоплению неправильно свёрнутых белков, которые слипаются в нерастворимые скопления. Такие скопления характерны для болезней Альцгеймера, Паркинсона, а также для прионных болезней.
20. После трансляции: созревание белка
Многие белки после синтеза изменяются — это называют посттрансляционными изменениями.
- Отщепление участков цепи. Начальный метионин часто отщепляется. Сигнальный пептид секреторных белков отрезается в ЭПС. Гормон инсулин синтезируется в виде длинного предшественника, из середины которого затем вырезается соединительный участок, и остаются две цепи, связанные дисульфидными мостиками.
- Образование дисульфидных мостиков между остатками цистеина — в полости ЭПС.
- Присоединение углеводов (гликозилирование) — в ЭПС и комплексе Гольджи; так образуются гликопротеины мембран и многих секретируемых белков.
- Присоединение фосфатных групп (фосфорилирование) — обратимый способ включать и выключать ферменты.
- Сборка из нескольких цепей. Гемоглобин собирается из двух α- и двух β-цепей и четырёх гемов, синтезированных разными путями.
Отщепляемый при созревании инсулина соединительный участок попадает в кровь вместе с гормоном. По его концентрации врачи оценивают, сколько инсулина вырабатывает поджелудочная железа больного диабетом, даже если человек получает инсулин в уколах.
21. Трансляция в митохондриях и пластидах
Митохондрии и пластиды имеют собственные рибосомы, похожие на бактериальные, и синтезируют часть своих белков сами по собственным иРНК. У человека митохондриальные рибосомы синтезируют всего 13 белков — все они входят в состав дыхательной цепи и АТФ-синтазы. Остальные сотни белков митохондрий кодируются ядром, синтезируются на свободных рибосомах цитоплазмы и затем импортируются в органоид по «адресным» сигналам.
Сходство митохондриальных рибосом с бактериальными имеет медицинское следствие. Некоторые антибиотики, подавляющие бактериальные рибосомы, в высоких дозах или при наследственных особенностях митохондриальной рРНК поражают и митохондрии. Например, антибиотики группы аминогликозидов у людей с определённой мутацией в митохондриальной рРНК могут вызвать глухоту (подробнее — в статье «Антибиотики и митохондрии»).
22. Синтез белка в пробирке и расшифровка кода
Бесклеточные системы синтеза белка дали в руки учёным ключ к генетическому коду. В мае 1961 года в Национальных институтах здоровья США Маршалл Ниренберг и его сотрудник, немецкий биохимик Генрих Маттеи, добавили в бесклеточную систему из кишечной палочки искусственную РНК, состоявшую только из урацилов (поли-У). Синтезировался белок, состоявший только из фенилаланина [14]. Значит, кодон УУУ кодирует фенилаланин. Это был первый «прочитанный» кодон.
Дальше дело пошло быстро. Индийско-американский химик Хар Гобинд Корана синтезировал РНК с повторяющимися последовательностями (например, УГУГУГ…) и смотрел, какие аминокислоты включаются. Ниренберг и Филип Ледер в 1964 году придумали ещё более прямой метод: короткий триплет нуклеотидов сам по себе заставлял рибосомы связывать «свою» аминоацил-тРНК, и по этому связыванию определяли значение каждого из 64 кодонов. К 1966 году код был расшифрован целиком. Так изучение трансляции «в пробирке» позволило прочитать словарь, по которому работает каждая живая клетка.
23. Рибосома как летопись эволюции
Рибосомы есть у всех клеточных организмов, их рРНК выполняет одну и ту же древнейшую функцию, и меняется очень медленно. Американский микробиолог Карл Вёзе в 1970-х годах решил использовать рРНК малой субъединицы как «молекулярные часы» для сравнения самых далёких организмов. Он годами расщеплял рРНК разных микробов и сравнивал фрагменты.
В 1977 году Вёзе и Джордж Фокс опубликовали неожиданный результат: метанообразующие микробы, которых считали обычными бактериями, по рРНК отличаются от бактерий так же сильно, как и от эукариот [15]. Так были открыты археи — третий домен жизни наряду с бактериями и эукариотами. Сегодня последовательности генов рРНК — основа систематики микроорганизмов: по ним определяют микробы, которые невозможно вырастить в лаборатории, и изучают состав микрофлоры кишечника, почвы, океана (подробнее — в статье «Прокариоты и эукариоты»).
24. Как вирусы используют рибосомы клетки
Вирусы не имеют собственных рибосом и полностью зависят от трансляционного аппарата клетки-хозяина. Многие из них научились перехватывать его в свою пользу.
- Вирус полиомиелита разрезает один из белковых факторов инициации, необходимый для посадки рибосомы на кэп. Синтез белков клетки на иРНК с кэпом прекращается. Сама же иРНК вируса кэпа не имеет: у неё есть особая сложно свёрнутая область, к которой рибосома присоединяется напрямую, минуя кэп. В итоге рибосомы клетки синтезируют почти только вирусные белки.
- Коронавирусы и ВИЧ используют «программируемый сдвиг рамки»: в определённом месте их иРНК есть шпилька и «скользкая» последовательность, на которой часть рибосом смещается на один нуклеотид назад и продолжает читать иРНК в другой рамке. Так с одной иРНК в нужном соотношении получаются два разных белка.
- Вирусы гриппа «крадут» кэпы у иРНК клетки: отрезают их начальный участок и используют как затравку для синтеза своих иРНК, которые затем транслируются как клеточные.
Борьба за рибосомы — один из главных фронтов в войне вирусов и клеток. Клетки, заметив вирусную инфекцию, сами останавливают трансляцию, жертвуя собой, чтобы вирус не размножился (подробнее о вирусах — в статьях «Бактериофаги и ретровирусы» и «Вирусные болезни»).
25. Болезни трансляционного аппарата
Поскольку трансляция нужна каждой клетке, тяжёлые нарушения её аппарата несовместимы с жизнью, а мягкие вызывают своеобразные болезни.
- Митохондриальные болезни из-за мутаций тРНК. Замена одного нуклеотида в митохондриальном гене тРНК лейцина вызывает синдром MELAS: инсультоподобные приступы, мышечную слабость, накопление молочной кислоты. Митохондрии хуже синтезируют белки дыхательной цепи, и страдают органы с наибольшей потребностью в энергии.
- Рибосомопатии. Мутации в генах рибосомных белков вызывают, например, анемию Даймонда — Блекфана: у ребёнка резко снижено образование эритроцитов. Интересно, что нехватка рибосом сильнее всего бьёт по клеткам, которые должны очень быстро синтезировать один белок, — предшественникам эритроцитов с их гемоглобином.
- Мутации синтетаз. Нарушения работы некоторых аминоацил-тРНК-синтетаз приводят к поражению периферических нервов: длинным отросткам нейронов особенно трудно обеспечивать себя белками.
26. Антибиотики и яды, действующие на трансляцию
Рибосома — самая популярная мишень антибиотиков: около половины применяемых в медицине антибиотиков действуют именно на неё. Избирательность основана на различиях между бактериальными рибосомами 70S и рибосомами 80S цитоплазмы человека.
| Вещество | Мишень | Что нарушает |
|---|---|---|
| Стрептомицин | малая субъединица бактерий | вызывает ошибки считывания кодонов |
| Тетрациклины | малая субъединица бактерий | мешают аминоацил-тРНК войти в А-участок |
| Левомицетин (хлорамфеникол) | большая субъединица бактерий | подавляет образование пептидной связи |
| Эритромицин | большая субъединица бактерий | закупоривает туннель, через который выходит цепь |
| Пуромицин | рибосомы всех организмов | похож на конец аминоацил-тРНК, присоединяется к цепи и обрывает её |
| Циклогексимид | рибосомы эукариот | останавливает транслокацию |
| Рицин (семена клещевины) | большая субъединица эукариот | повреждает рРНК; одна молекула выводит из строя тысячи рибосом |
| Дифтерийный токсин | фактор элонгации эукариот | останавливает транслокацию |
Пуромицин интересен как инструмент исследований: благодаря ему выяснили, что растущая цепь переносится на аминокислоту в А-участке. Рицин — один из самых ядовитых белков растений: попав в клетку, его ферментная часть удаляет один-единственный аденин из рРНК большой субъединицы, и рибосома перестаёт связывать фактор элонгации. Поскольку фермент действует многократно, для гибели клетки достаточно очень малого количества яда.
27. Как клетка управляет трансляцией
Количество белка зависит не только от того, сколько иРНК синтезировано, но и от того, насколько активно её транслируют рибосомы. Клетка регулирует трансляцию несколькими способами.
- Общее торможение. При стрессе — нехватке аминокислот, перегреве, вирусной инфекции — клетка изменяет один из белковых факторов инициации, присоединяя к нему фосфат. Инициация на большинстве иРНК замедляется, и клетка экономит энергию и аминокислоты. Одновременно продолжают транслироваться иРНК белков, помогающих пережить стресс.
- Белки, связывающиеся с иРНК. Классический пример — белок ферритин, запасающий железо. У 5′-конца его иРНК есть шпилька, к которой при недостатке железа присоединяется белок-регулятор и не даёт рибосоме начать трансляцию. Когда железа становится много, оно связывается с регулятором, тот отходит, и синтез ферритина идёт: клетка начинает запасать избыточное железо.
- Малые регуляторные РНК. Короткие молекулы микроРНК присоединяются по принципу комплементарности к иРНК и подавляют их трансляцию или ускоряют разрушение. В геноме человека сотни генов микроРНК, и они регулируют большую часть генов белков (подробнее — в статье «Регуляция генов у эукариот и клеточный гомеостаз»).
- Запасённые иРНК. В яйцеклетках многих животных накоплены иРНК, которые «молчат» до оплодотворения, а затем начинают транслироваться. Первые часы развития зародыш живёт почти целиком на материнских иРНК.
Регуляция трансляции работает быстрее регуляции транскрипции: клетке не нужно ждать, пока синтезируется и созреет новая иРНК. Поэтому она особенно важна при быстрых реакциях на изменение условий.
28. Частые и редкие кодоны
Вырожденность кода позволяет кодировать одну аминокислоту несколькими кодонами, но организмы используют их неодинаково. У каждого вида есть «любимые» кодоны, для которых в клетке много соответствующих тРНК, и «редкие», для которых тРНК мало. На редких кодонах рибосома задерживается в ожидании подходящей тРНК.
Это имеет практическое значение. Когда ген человека вводят в кишечную палочку, чтобы получить нужный белок, синтез нередко идёт плохо: ген содержит кодоны, редкие для бактерии. Поэтому биотехнологи часто «переписывают» ген, заменяя кодоны на синонимичные, привычные для клетки-хозяина. Последовательность аминокислот при этом не меняется, а выход белка может вырасти в десятки раз. Так же подбирают кодоны в иРНК вакцин, чтобы она эффективно транслировалась в клетках человека.
Медленные участки бывают и полезны. Паузы рибосомы на редких кодонах дают время уже синтезированной части белка свернуться, прежде чем выйдет следующая. Поэтому даже «молчащие» замены синонимичных кодонов иногда влияют на свойства белка.
29. Белковые фабрики: человеческий инсулин из бактерий
До конца 1970-х годов больных диабетом лечили инсулином из поджелудочных желёз свиней и коров. Он отличается от человеческого одной-тремя аминокислотами и иногда вызывал аллергию, а сырья не хватало. В 1978 году в американской компании «Генентек» химически синтезировали гены двух цепей человеческого инсулина, ввели их в кишечную палочку и получили бактерий, синтезирующих человеческий белок [16]. В 1982 году бактериальный инсулин стал первым в мире лекарством, полученным методами генной инженерии.
Этот пример хорошо показывает различия трансляции у про- и эукариот. Бактерия не умеет вырезать интроны, поэтому ей вводят не ген из хромосомы человека, а его «очищенную» копию без интронов — синтезированную химически или полученную обратной транскрипцией с иРНК. Бактерия не может присоединить к белку углеводы и плохо образует некоторые дисульфидные мостики, поэтому сложные белки человека — например, антитела и многие гормоны — получают в клетках дрожжей или в культурах клеток млекопитающих, где есть ЭПС и комплекс Гольджи (подробнее — в статье «Искусственный синтез гена и рекомбинантные ДНК»).
30. Расширение генетического кода
Если код записан в тРНК и синтетазах, можно ли научить клетку включать в белки новые аминокислоты, которых нет в природе? В 2001 году группа американского химика Питера Шульца сделала это: в кишечную палочку ввели пару «тРНК — синтетаза», взятую у археи и изменённую так, что синтетаза присоединяла к тРНК искусственную аминокислоту, а тРНК узнавала стоп-кодон УАГ [17]. Клетка стала включать новую аминокислоту в белок там, где в гене стоял этот кодон. Сегодня таким способом в белки вводят сотни искусственных аминокислот — с флуоресцентными метками, химически активными группами, фотопереключателями.
В 2019 году британские исследователи пошли дальше: они полностью синтезировали геном кишечной палочки, в котором заменили все 18 тысяч с лишним случаев использования двух кодонов серина и одного стоп-кодона на синонимичные [18]. Бактерия с «сокращённым» кодом из 61 кодона вместо 64 оказалась жизнеспособной. Освободившиеся кодоны можно отдать искусственным аминокислотам, а такая бактерия к тому же устойчива к вирусам, которым нужны «пропавшие» кодоны.
31. 21-я и 22-я аминокислоты
В учебниках говорят о 20 аминокислотах, которые кодирует генетический код. Но у многих организмов, в том числе у человека, в белки включается и 21-я — селеноцистеин, аналог цистеина, в котором атом серы заменён селеном. Он входит в активный центр нескольких ферментов, защищающих клетку от окисления. Для селеноцистеина нет «своего» кодона: он кодируется стоп-кодоном УГА, который в особых иРНК благодаря шпильке-сигналу прочитывается не как стоп, а как селеноцистеин. Для него есть своя тРНК, и аминокислота строится прямо на ней из серина.
22-я аминокислота — пирролизин — найдена у некоторых архей, образующих метан, и бактерий. Она кодируется стоп-кодоном УАГ. Эти примеры показывают, что генетический код не застыл окончательно и может расширяться за счёт «перепрограммирования» стоп-кодонов (подробнее — в статье «Генетический код и его свойства»).
32. Итог: биосинтез белка по шагам
- В ядре на матричной цепи гена синтезируется пре-иРНК; она созревает и выходит через ядерную пору в цитоплазму (подробнее — в статье «Транскрипция»).
- В цитоплазме аминоацил-тРНК-синтетазы с затратой АТФ присоединяют аминокислоты к «своим» тРНК.
- Малая субъединица рибосомы связывается с иРНК и находит старт-кодон АУГ; к нему присоединяется инициаторная тРНК с метионином; присоединяется большая субъединица.
- В А-участок входит аминоацил-тРНК, антикодон которой комплементарен кодону.
- рРНК большой субъединицы переносит цепь из П-участка на аминокислоту в А-участке — образуется пептидная связь.
- Рибосома сдвигается на один кодон (транслокация), освободившаяся тРНК уходит; шаги 4–6 повторяются.
- На стоп-кодоне фактор освобождения отделяет готовую цепь; рибосома распадается на субъединицы.
- Цепь сворачивается при участии шаперонов и созревает: отщепляются участки, присоединяются углеводы и другие группы.
- Транскрипцияпре-иРНК в ядре, созревание, выход через пору
- Активациясинтетазы присоединяют аминокислоты к тРНК (АТФ)
- Инициациярибосома собирается у АУГ, метионин-тРНК в П-участке
- Элонгациявход тРНК → пептидная связь → транслокация
- Терминациястоп-кодон, фактор освобождения, распад рибосомы
33. Частые ошибки
- «Антикодон находится в иРНК». Антикодон — участок тРНК; в иРНК находятся кодоны.
- «Аминокислоту к тРНК присоединяет рибосома». Её присоединяют ферменты аминоацил-тРНК-синтетазы в цитоплазме, до трансляции.
- «Пептидную связь образует белок рибосомы». Её образует рРНК большой субъединицы — рибосома является рибозимом.
- «Стоп-кодонам соответствуют особые тРНК». Для стоп-кодонов нет тРНК; их узнают белковые факторы освобождения.
- «Рибосома движется по иРНК от 3′-конца к 5′-концу». Рибосома движется от 5′- к 3′-концу иРНК.
- «Одна тРНК может переносить разные аминокислоты». Каждая тРНК переносит только одну определённую аминокислоту; но одну аминокислоту могут переносить разные тРНК.
- «Трансляция у эукариот идёт в ядре». Трансляция идёт в цитоплазме, на свободных рибосомах и рибосомах ЭПС, а также в митохондриях и пластидах.
- «Число тРНК равно числу кодонов». Благодаря неоднозначному спариванию одна тРНК может узнавать несколько кодонов, поэтому тРНК меньше, чем смысловых кодонов.
34. Интересные факты
- Существование тРНК предсказал Крик в 1955 году — за три года до её открытия.
- Членам «Клуба галстуков РНК» полагался галстук с вышитой цепочкой нуклеотидов; придумал его физик Георгий Гамов.
- Чтобы прочитать 77 нуклеотидов одной тРНК, группе Холли понадобилось 140 кг дрожжей и три года работы.
- Активный центр рибосомы, где образуется пептидная связь, построен только из РНК — без единой молекулы белка.
- Ада Йонат придумала кристаллизовать рибосомы, прочитав о рибосомах впадающих в спячку медведей.
- Титин — самый длинный белок человека: около 34 тысяч аминокислот; синтез одной его молекулы занимает около двух часов.
- Около половины антибиотиков, применяемых в медицине, действуют на бактериальные рибосомы.
- Одна молекула рицина может вывести из строя тысячи рибосом.
- Бактериальный инсулин 1982 года — первое в мире лекарство, полученное методами генной инженерии.
- Создана кишечная палочка, обходящаяся 61 кодоном вместо 64.
- Археи — третий домен жизни — были открыты по сравнению рибосомных РНК.
- Быстро растущая клетка дрожжей выпускает около 2000 новых рибосом в минуту.
- Вирус полиомиелита отключает синтез белков клетки, разрезая один-единственный фактор инициации.
35. Частые вопросы
Сколько видов тРНК в клетке?
Больше двадцати, но меньше шестидесяти одного. У бактерий — около сорока, у человека — около пятидесяти видов по антикодонам. Многие аминокислоты переносят несколько разных тРНК, а одна тРНК благодаря неоднозначному спариванию может узнавать несколько кодонов.
Почему все белки начинаются с метионина?
Потому что старт-кодон АУГ кодирует метионин, а инициаторная тРНК несёт именно его. Но у многих зрелых белков метионин потом отщепляется, поэтому первая аминокислота готового белка часто другая.
Что будет, если в иРНК нет стоп-кодона?
Рибосома дойдёт до конца иРНК и застрянет. У бактерий для таких случаев есть особая «спасательная» РНК, которая доставляет рибосоме недостающий кодон, метку на разрушение белка и стоп-кодон; у эукариот такие иРНК и белки узнаются и разрушаются.
Чем трансляция у прокариот отличается от трансляции у эукариот?
У прокариот рибосомы 70S, трансляция идёт одновременно с транскрипцией, рибосома находит старт-кодон по комплементарности рРНК участку иРНК перед ним, и на одной иРНК часто синтезируется несколько белков. У эукариот рибосомы 80S, трансляция идёт в цитоплазме после выхода иРНК из ядра, рибосома садится на кэп и ищет первый АУГ, а иРНК обычно кодирует один белок.
Почему антибиотики не вредят человеку, если у нас тоже есть рибосомы?
Рибосомы бактерий (70S) отличаются от рибосом цитоплазмы человека (80S) составом рРНК и белков, и многие антибиотики связываются только с бактериальными. Однако рибосомы митохондрий похожи на бактериальные, поэтому некоторые антибиотики в больших дозах дают побочные эффекты.
Где синтезируется инсулин и почему на ЭПС?
Инсулин выделяется из клетки, поэтому его предшественник начинается с сигнального пептида. По этому сигналу рибосома в начале синтеза прикрепляется к мембране шероховатой ЭПС, и цепь поступает в её полость. Дальше инсулин созревает в комплексе Гольджи и выводится из клетки в пузырьках.
Может ли рибосома синтезировать белок без тРНК?
Нет. Рибосома не умеет узнавать аминокислоты: она сопоставляет кодон с антикодоном. Без тРНК аминокислоты не попадут в рибосому и не будут «прочитаны».
Зачем нужна энергия ГТФ, если пептидная связь образуется за счёт энергии аминоацил-тРНК?
Энергия ГТФ идёт не на саму связь, а на точность и движение: на проверку правильности тРНК при её входе в А-участок и на перемещение рибосомы по иРНК. Без этих затрат рибосома ошибалась бы гораздо чаще и двигалась бы медленно.
Зачем белкам сигнальный пептид, если его потом отрезают?
Он служит «адресом»: по нему рибосома в начале синтеза направляется к мембране ЭПС, а цепь проходит в её полость. Когда белок уже внутри ЭПС, адрес не нужен, и его отрезает особый фермент.
Почему ген человека нельзя просто ввести в бактерию, чтобы она синтезировала белок?
Ген человека содержит интроны, а бактерия не умеет их вырезать. Кроме того, у бактерии иначе устроены промоторы и сигналы начала трансляции, а некоторые кодоны человека для неё редкие. Поэтому в бактерию вводят копию гена без интронов с бактериальными регуляторными участками.
Сколько белков синтезирует клетка за секунду?
Очень много. В клетке млекопитающего около 10 миллионов рибосом, и если большая их часть работает со скоростью 5–6 аминокислот в секунду, клетка ежесекундно присоединяет десятки миллионов аминокислот, то есть заканчивает синтез десятков тысяч белковых молекул каждую секунду.
Почему трансляцию назвали «переводом», а транскрипцию — «переписыванием»?
При транскрипции информация остаётся на «языке» нуклеотидов: РНК — почти точная копия цепи ДНК. При трансляции язык меняется: последовательность нуклеотидов превращается в последовательность аминокислот по правилам генетического кода — как перевод текста с одного языка на другой по словарю.
Можно ли по белку восстановить последовательность гена?
Однозначно — нет. Из-за вырожденности кода большинство аминокислот кодируются несколькими кодонами, и по аминокислоте нельзя точно узнать, какой кодон стоял в гене. Кроме того, белок не содержит информации об интронах и регуляторных участках гена. Это ещё одно проявление того, что информация не передаётся обратно от белка к нуклеиновым кислотам.
Что такое рамка считывания и почему она важна?
Рамка считывания — способ деления иРНК на триплеты. Её задаёт старт-кодон: от него рибосома читает иРНК по три нуклеотида без пропусков. Если вставить или удалить один нуклеотид, все следующие триплеты изменятся, и белок после этого места будет совершенно другим — обычно с преждевременным стоп-кодоном.
Почему мышцы растут от тренировок, если синтез белка так дорог?
Нагрузка и поступление аминокислот после еды включают в мышечных волокнах сигнальные пути, которые усиливают инициацию трансляции и синтез новых рибосом. Синтез белка в мышце начинает преобладать над его распадом, и волокна постепенно утолщаются. Энергию для этого дают пища и запасы организма; поэтому при голодании или тяжёлой болезни мышечная масса, наоборот, уменьшается.
36. ЕГЭ
Что нужно уметь. Описывать этапы трансляции и роль рибосом, иРНК и тРНК; называть условия биосинтеза белка; определять антикодоны тРНК по кодонам и наоборот; пользоваться таблицей генетического кода; объяснять роль энергии и ферментов в синтезе белка [19].
В части 1 проверяют задания на выбор утверждений о трансляции и тРНК, на соответствие «структура — функция» (иРНК, тРНК, рибосома), на последовательность этапов биосинтеза белка, на распознавание элементов схемы трансляции и строения тРНК. Во второй части — задачи линии 27 и вопросы на объяснение.
Разбор типичного задания второй части
Задание: «Фрагмент иРНК имеет последовательность 5′-АУГГУУЦАЦААА-3′. Определите антикодоны тРНК (запишите от 3′ к 5′), аминокислоты и число тРНК, участвующих в синтезе». Решение: 1) кодоны: АУГ, ГУУ, ЦАЦ, ААА; 2) антикодоны (3′ → 5′): УАЦ, ЦАА, ГУГ, УУУ; 3) аминокислоты по таблице: мет — вал — гис — лиз; 4) в синтезе участвуют 4 тРНК (по числу кодонов).
Как потерять балл. Забыть, что направление записи антикодона важно. Если в условии антикодоны записаны от 5′ к 3′, их нужно перевернуть, прежде чем подбирать комплементарный кодон.
37. Для олимпиад
Сколько белков даёт одна иРНК. иРНК живёт 4 часа, на ней одновременно работают 20 рибосом, синтез одного белка занимает 1 минуту. Каждая рибосома за минуту выпускает один белок, все вместе — 20 белков в минуту: за 4 часа — 20 · 240 = 4800 молекул.
Точность длинного белка. При частоте ошибок 10−4 на аминокислоту вероятность, что белок из 1000 аминокислот не содержит ни одной ошибки, равна (1 − 10−4)1000 ≈ 0,90. Для титина (34 000 аминокислот) — около e−3,4 ≈ 0,03: почти каждая молекула титина содержит ошибки, и клетка это терпит.
Энергия синтеза. На пептидную связь — 4 макроэргические связи по 30,5 кДж/моль, то есть около 122 кДж/моль, тогда как сама связь «стоит» лишь около 20 кДж/моль. Избыток энергии клетка тратит на скорость и точность: необратимость шагов и проверку тРНК.
Трёхучастковая модель. На рибосоме одновременно может быть до трёх тРНК: в А-участке (входящая), в П-участке (с цепью) и в Е-участке (выходящая). При транслокации тРНК сдвигаются: из А в П, из П в Е, а из Е уходят.
38. Задания с разбором
Задание 1
Выберите три верных ответа. В трансляции участвуют: 1) иРНК; 2) ДНК-полимераза; 3) тРНК; 4) рибосомы; 5) РНК-полимераза; 6) рестриктазы.
Ответ
1, 3, 4.
Задание 2
Установите соответствие между характеристиками и молекулами. Характеристики: А) содержит антикодон; Б) служит матрицей для синтеза белка; В) образует пептидную связь; Г) имеет форму «клеверного листа»; Д) содержит кодоны; Е) входит в состав рибосомы. Молекулы: 1) иРНК; 2) тРНК; 3) рРНК.
Ответ
А2, Б1, В3, Г2, Д1, Е3.
Задание 3
Фрагмент иРНК: 5′-АУГУЦУГГАУАА-3′. Определите антикодоны тРНК (от 3′ к 5′), последовательность аминокислот и число тРНК, участвующих в синтезе этого фрагмента.
Ответ
1) Кодоны: АУГ, УЦУ, ГГА, УАА. 2) Антикодоны: УАЦ, АГА, ЦЦУ; для стоп-кодона УАА тРНК нет. 3) Аминокислоты: мет — сер — гли. 4) В синтезе участвуют 3 тРНК.
Задание 4
Установите последовательность событий при биосинтезе белка: А) присоединение аминокислоты к тРНК; Б) связывание малой субъединицы с иРНК; В) образование пептидной связи; Г) транслокация рибосомы; Д) освобождение полипептида на стоп-кодоне.
Ответ
А, Б, В, Г, Д.
Задание 5
Найдите ошибки в тексте. (1) Трансляция идёт на рибосомах. (2) Аминокислоты к тРНК присоединяет рибосома. (3) Антикодон тРНК комплементарен кодону иРНК. (4) Рибосома движется по иРНК от 3′- к 5′-концу. (5) На стоп-кодоне синтез заканчивается.
Ответ
(2) Аминокислоты к тРНК присоединяют ферменты аминоацил-тРНК-синтетазы в цитоплазме. (4) Рибосома движется по иРНК от 5′- к 3′-концу.
Задание 6
Выберите три верных ответа. Для синтеза белка необходимы: 1) иРНК; 2) АТФ и ГТФ; 3) ионы магния; 4) рестриктазы; 5) дезоксирибонуклеотиды; 6) ДНК-лигаза.
Ответ
1, 2, 3.
Задание 7
Антикодоны тРНК (записаны от 3′ к 5′) поступают к рибосоме в последовательности: УАЦ, ГГГ, ААЦ, ЦАУ. Определите кодоны иРНК, фрагмент полипептида и участок кодирующей цепи ДНК.
Ответ
1) Кодоны иРНК: АУГ, ЦЦЦ, УУГ, ГУА; иРНК 5′-АУГЦЦЦУУГГУА-3′. 2) Полипептид: мет — про — лей — вал. 3) Кодирующая цепь ДНК совпадает с иРНК (Т вместо У): 5′-АТГЦЦЦТТГГТА-3′.
Задание 8
Почему антибиотик тетрациклин подавляет синтез белка у бактерий и почти не влияет на синтез белка в цитоплазме клеток человека?
Ответ
1) Тетрациклин связывается с малой субъединицей бактериальной рибосомы и мешает аминоацил-тРНК войти в А-участок. 2) Рибосомы бактерий (70S) отличаются по строению от рибосом цитоплазмы человека (80S), и антибиотик с ними почти не связывается. 3) Синтез белка у бактерий останавливается, а клетки человека продолжают работать.
Задание 9
Установите соответствие между участками рибосомы и событиями. События: А) вход аминоацил-тРНК; Б) нахождение тРНК с растущей цепью; В) спаривание очередного кодона с антикодоном; Г) вход фактора освобождения на стоп-кодоне. Участки: 1) А-участок; 2) П-участок.
Ответ
А1, Б2, В1, Г1.
Задание 10
Белок состоит из 250 аминокислот. Сколько нуклеотидов в кодирующей части иРНК (со стоп-кодоном)? Сколько тРНК участвует в синтезе? Сколько макроэргических связей израсходуется на присоединение аминокислот (по 4 на каждую)?
Ответ
1) иРНК: 250 · 3 + 3 = 753 нуклеотида. 2) тРНК: 250 молекул (каждая доставляет одну аминокислоту; одна и та же молекула может использоваться многократно, поэтому говорят о 250 актах доставки). 3) Энергия: 250 · 4 = 1000 макроэргических связей.
Задание 11
Выберите три верных ответа. Транспортная РНК: 1) переносит аминокислоту к рибосоме; 2) содержит антикодон; 3) служит матрицей для синтеза белка; 4) на 3′-конце имеет последовательность ЦЦА; 5) синтезируется на рибосомах; 6) состоит из тысяч нуклеотидов.
Ответ
1, 2, 4.
Задание 12
Объясните, почему одна молекула иРНК может служить матрицей для синтеза многих молекул белка одновременно.
Ответ
1) иРНК не разрушается при трансляции. 2) Как только первая рибосома отходит от старт-кодона, на иРНК садится следующая; образуется полисома. 3) Каждая рибосома полисомы синтезирует свою молекулу белка, поэтому одновременно синтезируется много копий.
Задание 13
Установите соответствие между белками и местом их синтеза в клетке эукариот. Белки: А) инсулин; Б) ферменты гликолиза; В) белки лизосом; Г) белки цитоскелета; Д) пищеварительные ферменты поджелудочной железы. Место синтеза: 1) свободные рибосомы цитоплазмы; 2) рибосомы шероховатой ЭПС.
Ответ
А2, Б1, В2, Г1, Д2.
Задание 14
Почему точность синтеза белка зависит от аминоацил-тРНК-синтетаз, хотя кодон с антикодоном сопоставляет рибосома?
Ответ
1) Рибосома проверяет только соответствие антикодона кодону, а не аминокислоту на тРНК. 2) Если синтетаза присоединит к тРНК неправильную аминокислоту, рибосома включит её в белок. 3) Поэтому синтетазы должны точно выбирать аминокислоту и тРНК; многие из них имеют корректирующий центр, отщепляющий ошибочную аминокислоту.
Задание 15
Выберите три верных ответа. Рибосомы прокариот: 1) имеют размер 70S; 2) состоят из субъединиц 30S и 50S; 3) собираются в ядрышке; 4) являются мишенью многих антибиотиков; 5) имеют размер 80S; 6) прикреплены к шероховатой ЭПС.
Ответ
1, 2, 4.
Задание 16
В результате мутации кодон УГГ (триптофан) в середине гена заменился на УГА. Как это скажется на белке? Как называют такую мутацию?
Ответ
1) УГА — стоп-кодон, для него нет тРНК. 2) Дойдя до него, рибосома остановит синтез, и цепь освободится раньше времени. 3) Белок окажется укороченным и, скорее всего, нефункциональным. 4) Такую мутацию называют нонсенс-мутацией.
Задание 17
Чем объясняется то, что видов тРНК меньше, чем смысловых кодонов?
Ответ
1) Генетический код вырожден: одну аминокислоту кодируют несколько кодонов, различающихся в основном третьим нуклеотидом. 2) Третий нуклеотид кодона спаривается с первым нуклеотидом антикодона нестрого (неоднозначное спаривание). 3) Поэтому одна тРНК может узнавать несколько кодонов одной аминокислоты.
Задание 18
Рассмотрите схему трансляции (рисунок с цифрами в статье). Какой цифрой обозначена молекула, в которой записана информация о порядке аминокислот? Какие цифры обозначают структуры, в состав которых входит рРНК?
Ответ
1) Информация о порядке аминокислот записана в иРНК — цифра 1. 2) рРНК входит в состав малой и большой субъединиц рибосомы — цифры 2 и 3.
Задание 19 (олимпиадное)
Бактерию поместили в среду с радиоактивными аминокислотами на очень короткое время, затем выделили только что законченные белковые цепи одного вида и определили, в каком участке цепи больше всего метки. Где окажется больше метки: у N-конца или у C-конца? Объясните. (Этот опыт в 1961 году поставил Говард Динцис на синтезе гемоглобина.)
Ответ
1) Белок растёт от N-конца к C-концу. 2) За короткое время метки рибосомы, уже прошедшие большую часть иРНК, успели присоединить меченые аминокислоты только к концевому участку цепи. 3) Поэтому среди законченных цепей больше всего метки у C-конца, а к N-концу её количество убывает. 4) Опыт доказал, что синтез идёт последовательно от N-конца к C-концу.
Задание 20 (олимпиадное)
иРНК длиной 1500 нуклеотидов содержит кодирующую часть из 1200 нуклеотидов. Рибосомы садятся на неё каждые 3 секунды и транслируют со скоростью 6 кодонов в секунду. Сколько рибосом одновременно находится на кодирующей части? Каково расстояние между соседними рибосомами в нуклеотидах? Сколько белков синтезируется за 2 часа?
Ответ
1) Кодонов: 1200 / 3 = 400; время синтеза одного белка: 400 / 6 ≈ 66,7 с. 2) Рибосом одновременно: 66,7 / 3 ≈ 22. 3) За 3 с рибосома проходит 18 кодонов, то есть 54 нуклеотида — таково расстояние между соседними рибосомами (рибосома закрывает около 30 нуклеотидов, так что рибосомы идут почти вплотную). 4) За 2 часа: 7200 / 3 = 2400 белков.
Литература
- Alberts B., Heald R., Johnson A., Morgan D., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 7th ed. New York: W. W. Norton, 2022.
- Urry L. A., Cain M. L., Wasserman S. A., Minorsky P. V., Orr R. B. Campbell Biology. 12th ed. Pearson, 2020.
- Hoagland M. B., Stephenson M. L., Scott J. F., Hecht L. I., Zamecnik P. C. A soluble ribonucleic acid intermediate in protein synthesis // Journal of Biological Chemistry. 1958. Vol. 231. P. 241–257.
- Holley R. W., Apgar J., Everett G. A. et al. Structure of a ribonucleic acid // Science. 1965. Vol. 147. P. 1462–1465.
- Crick F. H. C. Codon–anticodon pairing: the wobble hypothesis // Journal of Molecular Biology. 1966. Vol. 19. P. 548–555.
- Palade G. E. A small particulate component of the cytoplasm // Journal of Biophysical and Biochemical Cytology. 1955. Vol. 1. P. 59–68.
- Nissen P., Hansen J., Ban N., Moore P. B., Steitz T. A. The structural basis of ribosome activity in peptide bond synthesis // Science. 2000. Vol. 289. P. 920–930.
- Shine J., Dalgarno L. The 3′-terminal sequence of Escherichia coli 16S ribosomal RNA: complementarity to nonsense triplets and ribosome binding sites // Proceedings of the National Academy of Sciences of the USA. 1974. Vol. 71. P. 1342–1346.
- Kozak M. Point mutations define a sequence flanking the AUG initiator codon that modulates translation by eukaryotic ribosomes // Cell. 1986. Vol. 44. P. 283–292.
- Blobel G., Dobberstein B. Transfer of proteins across membranes. I. Presence of proteolytically processed and unprocessed nascent immunoglobulin light chains on membrane-bound ribosomes of murine myeloma // Journal of Cell Biology. 1975. Vol. 67. P. 835–851.
- Jamieson J. D., Palade G. E. Intracellular transport of secretory proteins in the pancreatic exocrine cell. I. Role of the peripheral elements of the Golgi complex // Journal of Cell Biology. 1967. Vol. 34. P. 577–596.
- Warner J. R. The economics of ribosome biosynthesis in yeast // Trends in Biochemical Sciences. 1999. Vol. 24. P. 437–440.
- Anfinsen C. B. Principles that govern the folding of protein chains // Science. 1973. Vol. 181. P. 223–230.
- Nirenberg M. W., Matthaei J. H. The dependence of cell-free protein synthesis in E. coli upon naturally occurring or synthetic polyribonucleotides // Proceedings of the National Academy of Sciences of the USA. 1961. Vol. 47. P. 1588–1602.
- Woese C. R., Fox G. E. Phylogenetic structure of the prokaryotic domain: the primary kingdoms // Proceedings of the National Academy of Sciences of the USA. 1977. Vol. 74. P. 5088–5090.
- Goeddel D. V., Kleid D. G., Bolivar F. et al. Expression in Escherichia coli of chemically synthesized genes for human insulin // Proceedings of the National Academy of Sciences of the USA. 1979. Vol. 76. P. 106–110.
- Wang L., Brock A., Herberich B., Schultz P. G. Expanding the genetic code of Escherichia coli // Science. 2001. Vol. 292. P. 498–500.
- Fredens J., Wang K., de la Torre D. et al. Total synthesis of Escherichia coli with a recoded genome // Nature. 2019. Vol. 569. P. 514–518.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…