
Все клеточные организмы Земли — от бактерии в капле воды до секвойи и человека — построены из клеток только двух типов. Прокариотическая клетка мала, не имеет ядра и почти лишена внутренних мембран; эукариотическая — в сотни и тысячи раз больше по объёму, её ДНК заключена в ядро, а цитоплазма разделена мембранами на отсеки. Разрыв между ними — самый резкий во всей биологии: промежуточных форм среди живущих сейчас организмов нет, а сама эукариотическая клетка, как выяснилось, возникла из союза двух прокариот [1, 2].
В статье разобраны: как открывали клетки и как пришли к делению на два типа; что общего у всех клеток и чем они различаются; три домена жизни; размеры клеток и почему прокариоты мелкие; строение прокариотической клетки и клеточной стенки бактерий и архей; наследственный аппарат, синтез белка, движение и деление; автотрофные и гетеротрофные прокариоты и их роль в биоценозах; почему эукариоты крупнее и сложнее; как возникла эукариотическая клетка — по данным исследований 2015–2025 годов. В конце — сводная таблица, частые ошибки, что нужно знать к ЕГЭ, раздел для олимпиад и 20 заданий с разбором. Органоиды эукариотической клетки подробно описаны в статьях «Строение животной клетки» и «Строение растительной клетки».
- 1. Как открывали клетки
- 2. Два типа клеток: что общего и в чём разница
- 3. Три домена жизни
- 4. Размеры клеток
- 5. Строение прокариотической клетки
- 6. Клеточная стенка бактерий и архей
- 7. Строение эукариотической клетки
- 8. Наследственный аппарат
- 9. Синтез белка
- 10. Цитоскелет, движение и питание частицами
- 11. Деление, споры и обмен генами
- 12. Обмен веществ: гетеротрофные и автотрофные прокариоты
- 13. Место и роль прокариот в биоценозах
- 14. Почему эукариоты крупнее и сложнее
- 15. Происхождение эукариотической клетки
- 16. Сводная таблица
- 17. Частые ошибки и вопросы
- 18. Что нужно знать к ЕГЭ и ОГЭ
- 19. Для олимпиад
- Задания с разбором
- Литература
1. Как открывали клетки
Слово «клетка» появилось в 1665 году в книге Роберта Гука «Микрография». Рассматривая под микроскопом тонкий срез пробки, Гук увидел ячейки, похожие на соты, и назвал их cells — «каморки» [3]. Он видел лишь пустые оболочки мёртвых клеток, но слово прижилось. Через десять лет голландский торговец сукном Антони ван Левенгук, шлифовавший собственные линзы с увеличением до 270 раз, описал в письмах Лондонскому королевскому обществу «маленьких зверьков» в настое перца — простейших и, по всей видимости, крупных бактерий. В письме 1683 года он изобразил палочки и шарики из налёта на собственных зубах: это первое несомненное описание бактерий [4, 5]. Члены общества поначалу не поверили и проверяли его наблюдения при свидетелях.
В 1831 году ботаник Роберт Броун заметил в клетках эпидермиса орхидей постоянное тёмное тельце и назвал его ядром (nucleus). В 1838–1839 годах Маттиас Шлейден и Теодор Шванн обобщили наблюдения над растениями и животными: все организмы состоят из клеток, и клетка — общая единица их строения [6]. Недоставало ответа на вопрос, откуда берутся новые клетки: Шлейден считал, что они «кристаллизуются» из бесструктурного вещества. В 1855 году Рудольф Вирхов сформулировал принцип omnis cellula e cellula — «каждая клетка происходит от клетки» [7].
Долгое время бактерии считали просто мелкими растениями — «дробянками» (Schizomycetes). Особый характер их клеток стал понятен только в XX веке. В 1925 году французский протистолог Эдуар Шаттон ввёл слова «прокариотный» (от греч. pro — «до» и karyon — «ядро») и «эукариотный» (eu — «хороший, настоящий») [8, 9]. Широко использовать их стали после статьи Роджера Станиера и Корнелиса ван Ниля 1962 года «Понятие бактерии»: электронный микроскоп показал, что у бактерий нет ни ядерной оболочки, ни митохондрий, ни пластид, и авторы предложили считать прокариотную организацию отдельным, самым глубоким типом строения клеток [10].
- 1665Р. Гук — «Микрография»: ячейки пробки названы клетками
- 1676А. ван Левенгук описывает «зверьков» в настое перца, в 1683 г. — бактерий зубного налёта
- 1831Р. Броун — ядро в клетках орхидей
- 1838–1839М. Шлейден и Т. Шванн — клеточная теория
- 1855Р. Вирхов: «каждая клетка — от клетки»
- 1884Х. Грам — окраска, делящая бактерий на две группы
- 1887С. Н. Виноградский открывает хемосинтез
- 1905К. С. Мережковский: хлоропласты — бывшие симбионты
- 1925Э. Шаттон вводит слова «прокариотный» и «эукариотный»
- 1962Р. Станиер и К. ван Ниль: прокариоты — особый тип клеточной организации
- 1967Л. Маргулис — теория симбиогенеза митохондрий и пластид
- 1970О. Миллер снимает в электронный микроскоп одновременные транскрипцию и трансляцию у бактерий
- 1973Г. Берг и Р. Андерсон: бактериальный жгутик вращается
- 1977К. Вёзе и Дж. Фокс по рибосомной РНК открывают архей
- 1990Три домена: бактерии, археи, эукариоты
- 2001У бактерий найдены родственники актина и тубулина — бактериальный цитоскелет
- 2015Геномы локиархей — архей с «эукариотическими» генами
- 2016Monocercomonoides — эукариот вовсе без митохондрий
- 2020Выращен первый асгардархей — Prometheoarchaeum
- 2022Thiomargarita magnifica — бактерия длиной 2 см с ДНК в мембранных мешочках
- 2023Актиновый цитоскелет у асгардархея Lokiarchaeum ossiferum
- 2024Нитропласт — азотфиксирующая органелла водоросли
- 2025Новые древа асгардархей и датирование этапов возникновения эукариот
- клеточная теория
- прокариоты
- эукариоты
- два типа клеток и три домена
2. Два типа клеток: что общего и в чём разница
Прокариоты — организмы, клетки которых не имеют ядра: ДНК лежит прямо в цитоплазме. К ним относятся бактерии (включая цианобактерии) и археи. Эукариоты — организмы, клетки которых имеют ядро, отделённое от цитоплазмы двумембранной оболочкой. Это животные, растения, грибы и многочисленные одноклеточные — амёбы, инфузории, эвглены, водоросли, споровики.
Наличие ядра — лишь самый заметный признак. За ним стоит целый комплекс различий, связанных между собой: у эукариот есть система внутренних мембран, цитоскелет, способность поглощать частицы, митоз и мейоз, митохондрии. Всё это появилось у них вместе, поэтому для отнесения клетки к одному из двух типов смотрят на всю совокупность признаков, а не на один.
При этом всех клеток объединяет больше, чем различает. У любой клетки есть плазматическая мембрана из фосфолипидов (или их аналогов у архей) и белков; цитоплазма; наследственная информация в виде двуцепочечной ДНК; рибосомы, на которых синтезируется белок; один и тот же (с малыми исключениями) генетический код; АТФ как универсальная энергетическая «валюта» и фермент АТФ-синтаза, который её производит. Такое единство — главный довод в пользу того, что все клеточные организмы произошли от общего предка, которого называют LUCA (last universal common ancestor) [1, 11].
- ДНК в нуклеоидебез ядерной оболочки; обычно одна кольцевая хромосома и плазмиды
- Рибосомы 70Sсвободные в цитоплазме; трансляция начинается на ещё растущей мРНК
- Мембранных органоидов, как правило, нетдыхание и фотосинтез — на плазмалемме и её производных
- Клеточная стенкау бактерий — из муреина, у архей — белковый S-слой или псевдомуреин
- Жгутик — вращающийся моториз белка флагеллина, работает на токе протонов
- Деление надвоебез митоза; половой процесс заменён переносом генов
- Размер обычно 0,5–5 мкм
- Ядродвумембранная оболочка с порами; несколько линейных хромосом с гистонами
- Рибосомы 80Sв цитоплазме и на ЭПС; в митохондриях и пластидах — свои, 70S-типа
- Система внутренних мембранЭПС, аппарат Гольджи, лизосомы, вакуоли; митохондрии, у растений — пластиды
- Стенка не у всеху растений — из целлюлозы, у грибов — из хитина, у животных стенки нет
- Жгутик — изгибающийся выростмикротрубочки 9 + 2 под мембраной, моторы-динеины, энергия АТФ
- Митоз и мейозцитоскелет, эндо- и фагоцитоз
- Размер обычно 10–100 мкм
Вирусы не относятся ни к прокариотам, ни к эукариотам: у них нет клеточного строения, собственных рибосом и обмена веществ, и размножаются они только внутри клеток.
3. Три домена жизни
До 1970-х годов прокариоты казались однородной группой. Американский микробиолог Карл Вёзе решил сравнивать организмы не по внешнему виду, а по последовательности рибосомной РНК — молекулы, которая есть у всех клеток и меняется медленно. В 1977 году он вместе с Джорджем Фоксом обнаружил, что метаногены (микроорганизмы, выделяющие метан) отличаются от обычных бактерий так же сильно, как бактерии от эукариот [12]. Новую группу назвали архебактериями, а в 1990 году Вёзе, Отто Кандлер и Марк Уилис предложили делить всё живое на три домена: бактерии (Bacteria), археи (Archaea) и эукариоты (Eukarya) [13].
Археи внешне неотличимы от бактерий: они тоже мелкие, без ядра, с кольцевой ДНК. Но по ряду признаков они ближе к эукариотам: у них похожие на эукариотические РНК-полимеразы и белки, запускающие трансляцию, у многих есть гистоны, на которые наматывается ДНК, а в генах тРНК встречаются интроны. Уникальная черта архей — мембранные липиды: вместо сложноэфирных связей глицерина с жирными кислотами у них простые эфирные связи с разветвлёнными изопреноидными цепями, причём глицерин другого пространственного строения [14]. У архей, живущих в кипящих кислых источниках, липиды пронизывают мембрану насквозь и образуют монослой, который не расслаивается при нагревании. Известны археи, растущие при 122 °C [15].
Главная новость последних десяти лет — асгардархеи. В 2015 году в осадках у гидротермального поля «Замок Локи» между Гренландией и Норвегией собрали из фрагментов ДНК геном археи, названной локиархеей. В нём оказались гены белков, которые раньше считались исключительно эукариотическими: родственники актина, белков транспорта пузырьков и малых ГТФаз, управляющих мембранами [16]. Затем нашли целую группу родственников, назвав их по именам скандинавских богов: тор-, один-, хеймдалль-археи. В 2020 году японские микробиологи после двенадцати лет работы впервые вырастили асгардархея в культуре: клетка Prometheoarchaeum syntrophicum диаметром около 0,5 мкм делится раз в две-три недели и обрастает длинными выростами [17]. В 2023 году у другого выращенного вида, Lokiarchaeum ossiferum, увидели внутри таких выростов настоящие нити актина [18].
Сравнение сотен генов показало, что эукариоты выросли изнутри архей: ближайшие их родственники — асгардархеи, а среди них, по анализу 2023 года, хеймдалльархеи [19]. В 2025 году китайские исследователи, собрав 223 новых генома асгардархей, пришли к выводу, что эукариоты отделились чуть раньше — до расхождения всех известных хеймдалльархей [20]. В любом случае древо жизни сейчас рисуют с двумя исходными ветвями — бактериями и археями, а эукариоты — побег на ветви архей, к которому позже «привились» бактерии-симбионты.
- Клеточные организмы — общий предок LUCA: мембрана, ДНК, рибосомы, генетический код, АТФ-синтаза
- Бактерии — от кишечной палочки до цианобактерий
- Археи и эукариоты — сходные РНК-полимеразы и белки начала трансляции, гистоны, интроны в генах тРНК
- Эвриархеоты — метаногены, галоархеи
- Протеоархеи (Proteoarchaeota) — ТАСК-археи и асгардархеи
- ТАСК-археи — кренархеоты, таумархеоты
- Асгардархеи и эукариоты — гены «эукариотических» белков: актин, ESCRT, малые ГТФазы, белки транспорта пузырьков
- Локиархеи и другие асгардархеи
- Хеймдалльархеи и эукариоты — сестринские группы по Эме и др. (2023); по Чжану и др. (2025) эукариоты отделились до расхождения современных хеймдалльархей
- Эукариоты — протисты, грибы, растения, животные
- Цвет: синий — бактерии, жёлтый — археи, зелёный — эукариоты. Корень древа — между бактериями и археями; археи в таком древе — не единая группа: из них вышли эукариоты.
4. Размеры клеток
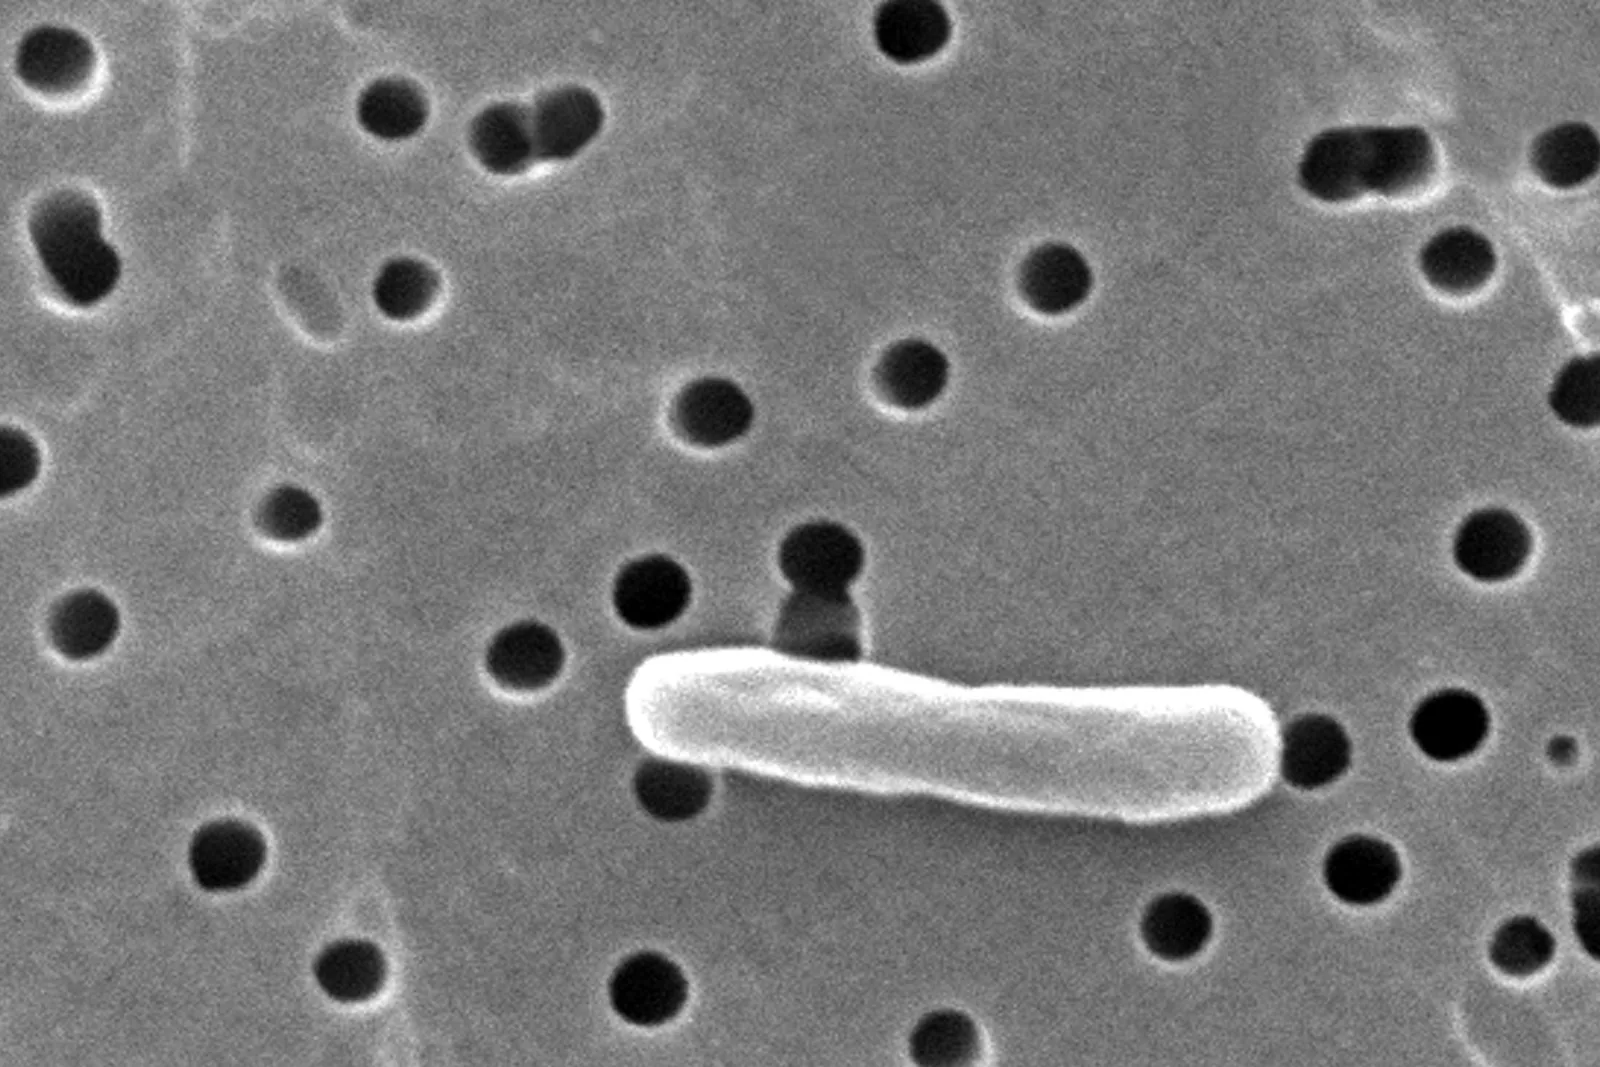
Типичная прокариотическая клетка имеет размер 0,5–5 мкм, типичная эукариотическая — 10–100 мкм. Разница в 10 раз по длине означает разницу в 1000 раз по объёму. Эритроцит человека диаметром 7,5 мкм по объёму равен примерно сотне кишечных палочек.
Почему прокариоты мелкие? Клетка получает вещества и отдаёт продукты обмена через поверхность, а потребляет и производит их всем объёмом. У шара радиусом r площадь поверхности равна 4πr², объём — 4/3·πr³, а их отношение S/V = 3/r. При увеличении радиуса в 10 раз на каждую единицу объёма приходится в 10 раз меньше поверхности. Для прокариот это особенно важно: дыхательная цепь и фотосинтез у них работают на плазматической мембране, и, увеличившись, клетка остаётся без «электростанции» в нужном количестве.
Вторая причина — диффузия. Внутри прокариотической клетки вещества перемещаются в основном за счёт теплового движения молекул. Время, за которое молекула в среднем смещается на расстояние x, растёт как квадрат расстояния: t ≈ x²/(2D), где D — коэффициент диффузии. Белок в цитоплазме кишечной палочки (D порядка 10 мкм²/с) пересекает клетку длиной 1 мкм за сотые доли секунды, а клетку размером 100 мкм — уже за минуты [21, 22]. Эукариоты обходят это ограничение двумя путями: внутренними мембранами, которые многократно увеличивают рабочую поверхность, и цитоскелетом с моторными белками, которые переносят грузы направленно.
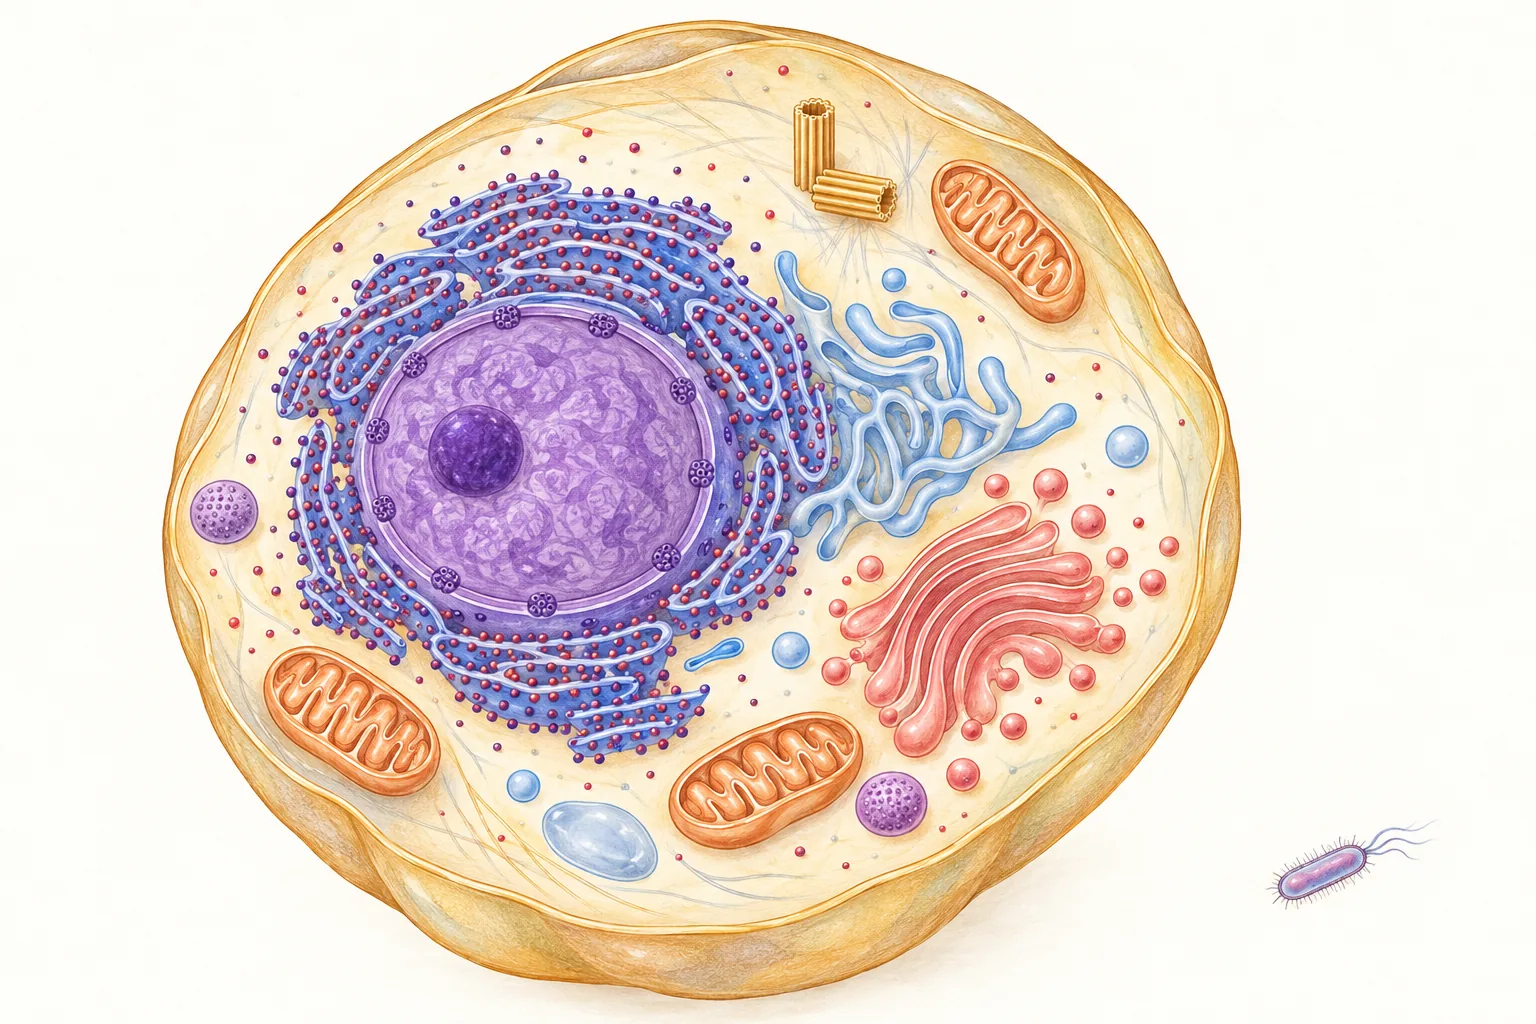
Рекорды есть с обеих сторон. Самые мелкие свободноживущие клетки — ультрамалые бактерии из подземных вод (группа CPR): их объём около 0,009 мкм³, внутри помещается лишь несколько десятков рибосом [23]. Самая мелкая эукариотическая клетка — морская зелёная водоросль Ostreococcus tauri, описанная в 1994 году: около 0,8 мкм, с единственным хлоропластом и одной митохондрией [24]. С другой стороны, бактерия Epulopiscium fishelsoni из кишечника рыб-хирургов достигает 0,6 мм и содержит десятки тысяч копий генома [25], а серобактерия Thiomargarita namibiensis, найденная в 1999 году у берегов Намибии, — 0,75 мм [26].
В 2022 году описали рекордсмена — Thiomargarita magnifica из мангровых болот Гваделупы. Её нитевидные клетки в среднем около 1 см, а самые длинные — 2 см, то есть видны невооружённым глазом [27]. Ограничение по диффузии она обходит хитро: почти весь объём клетки занимает огромная центральная вакуоль, а цитоплазма — тонкий слой у поверхности. Ещё неожиданнее, что ДНК и рибосомы у неё собраны в мембранные мешочки, названные пепинами («косточками»), — первый пример ДНК, отделённой мембраной, у бактерии. Ядром пепины не считают: у них нет ядерных пор и ядерной оболочки из двух мембран, а трансляция идёт внутри них.
Среди эукариот бывают одиночные клетки размером в сантиметры. Морская водоросль ацетабулярия — одна клетка длиной до 5–10 см с одним ядром в «корешке»; на ней в 1930-х годах Иоахим Хеммерлинг доказал, что форма шляпки определяется ядром. Желток куриного яйца — тоже одна клетка, хотя большую её часть составляют запасные вещества.
5. Строение прокариотической клетки
Рассмотрим клетку типичной бактерии — например, кишечной палочки — снаружи внутрь [11, 28].
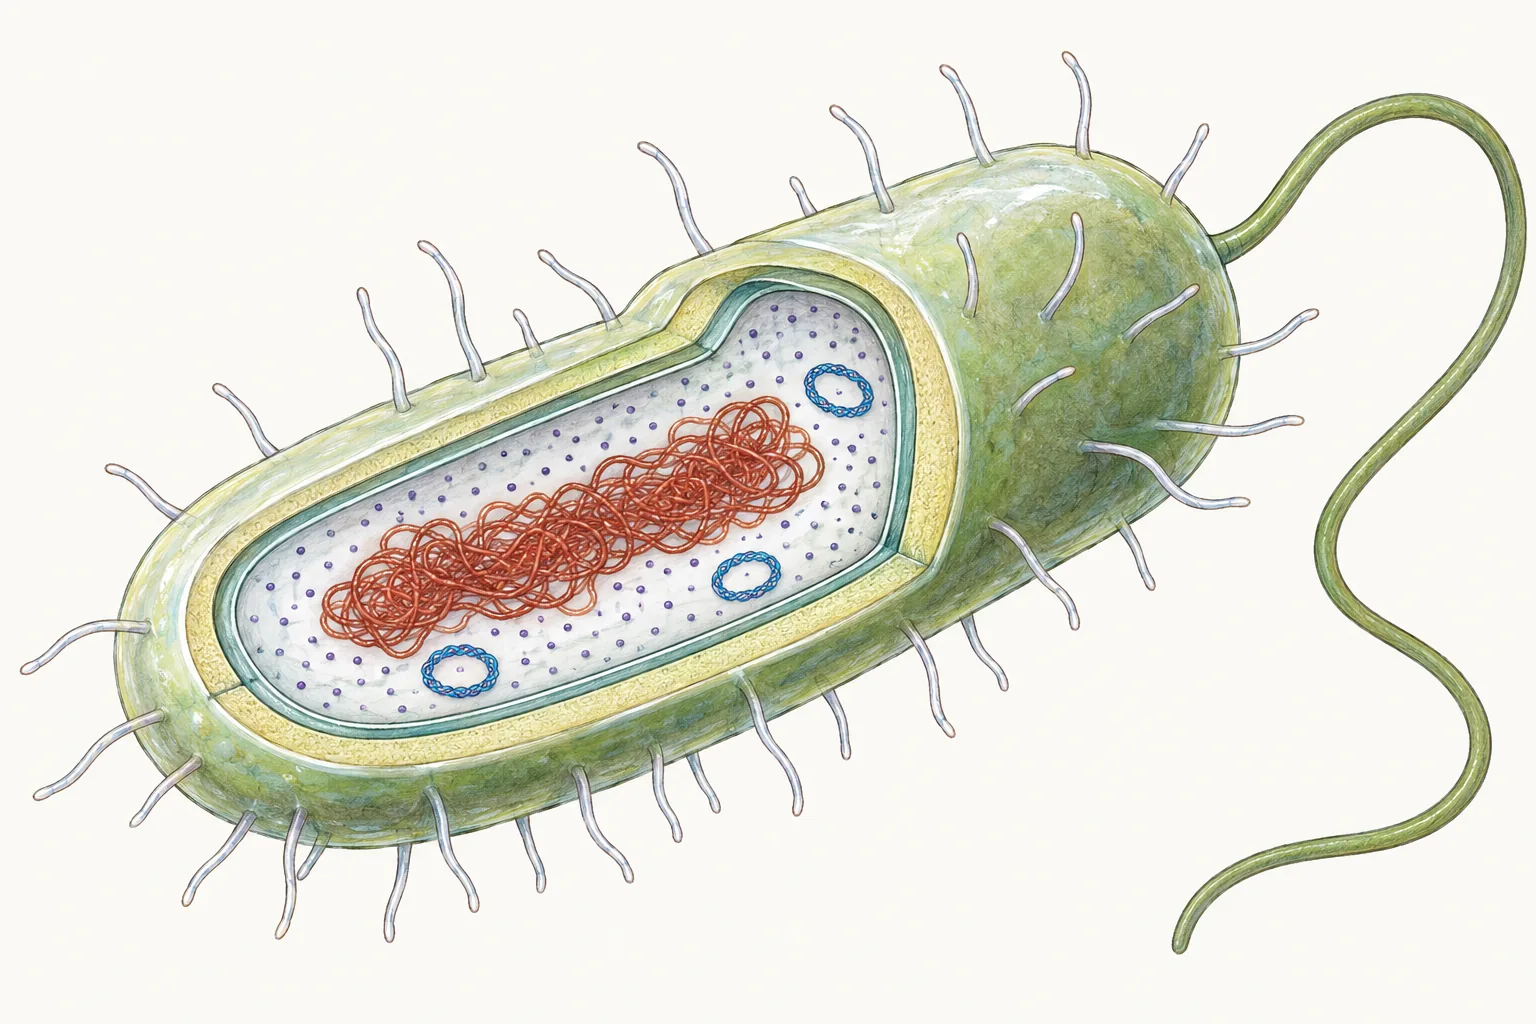
Поверхностные структуры. Снаружи у многих бактерий есть капсула или слизистый слой из полисахаридов: она защищает от высыхания и от фагоцитов, помогает прикрепляться к поверхностям и образовывать биоплёнки. Под капсулой — клеточная стенка (о ней — в следующем разделе). Наружу торчат жгутики для движения и тонкие ворсинки (пили, фимбрии) для прикрепления; особая половая ворсинка служит для передачи ДНК при конъюгации.
Плазматическая мембрана у прокариот выполняет гораздо больше функций, чем у эукариот. На ней работают дыхательная цепь и АТФ-синтаза (у эукариот — в митохондриях), транспортные системы, синтез компонентов стенки; к ней прикреплена хромосома, а при делении мембрана участвует в разделении копий ДНК. Можно сказать, что плазмалемма прокариот совмещает работу эукариотических плазмалеммы, внутренней мембраны митохондрий и отчасти ЭПС.
Цитоплазма прокариот очень плотная: в кишечной палочке около 3 млн белковых молекул и десятки тысяч рибосом [22]. Внутри нет постоянного течения, как в клетках растений, и нет мембранных органоидов, кроме отдельных исключений. Рибосомы прокариот мельче эукариотических: их обозначают 70S по скорости оседания при центрифугировании (у эукариот — 80S).
Нуклеоид — область цитоплазмы, где находится хромосома: обычно одна кольцевая молекула ДНК, многократно сложенная белками. Кроме неё, во многих клетках есть плазмиды — небольшие кольцевые молекулы ДНК, которые реплицируются самостоятельно и несут необязательные, но часто полезные гены: устойчивости к антибиотикам, токсинов, разложения необычных веществ.
Включения — запасы веществ: гранулы гликогена, капли полигидроксимасляной кислоты (из неё научились делать биоразлагаемый пластик), гранулы полифосфата (волютин), сера у серобактерий. У водных бактерий бывают газовые пузырьки — полые белковые цилиндры, которые позволяют клетке всплывать.
Внутренние мембраны и «органоиды» прокариот. Правило «у прокариот нет мембранных органоидов» в целом верно, но знать исключения полезно. У цианобактерий есть тилакоиды — мембраны с фотосинтетическими пигментами, лежащие стопками в цитоплазме. У магнитотактических бактерий, открытых в 1975 году Ричардом Блейкмором, — магнитосомы: пузырьки из впячиваний плазмалеммы с кристаллами магнетита Fe₃O₄, выстроенными в цепочку, как стрелка компаса; клетки плывут вдоль линий магнитного поля Земли [29, 30]. У анаммокс-бактерий, которые окисляют аммоний нитритом до азота, есть анаммоксосома — отсек, окружённый мембраной из необычных «лестничных» липидов, удерживающей ядовитый промежуточный продукт гидразин [31]. А у многих бактерий есть микрокомпартменты — отсеки, окружённые не мембраной, а оболочкой из белков, похожей на капсид вируса. Самые известные из них — карбоксисомы цианобактерий, в которых сосредоточен фермент фиксации CO₂ рубиско [32].
Стоит упомянуть и одну ошибку учебников. В 1950–1960-х годах на электронных фотографиях бактерий видели складчатые впячивания мембраны — мезосомы — и приписывали им роль «бактериальных митохондрий». Позже выяснилось, что это артефакты химической фиксации препаратов: при быстром замораживании клеток мезосом нет. Подробнее — в статье «История мезосом».
6. Клеточная стенка бактерий и архей
Клеточная стенка есть почти у всех прокариот. Она удерживает форму клетки и не даёт ей лопнуть: концентрация веществ в цитоплазме выше, чем снаружи, вода стремится внутрь, и давление в клетке грамположительной бактерии оценивают в 2–2,5 МПа — больше, чем в автомобильной шине [11].
Стенка бактерий построена из муреина (пептидогликана) — сети из полисахаридных цепей (чередующиеся остатки N-ацетилглюкозамина и N-ацетилмурамовой кислоты), сшитых короткими пептидами. Вся стенка — фактически одна гигантская молекула-«мешок» вокруг клетки. Муреин есть только у бактерий, поэтому он — идеальная мишень для лекарств: пенициллин мешает сшивать пептидные мостики, а фермент лизоцим из слёз и слюны (его открыл Александр Флеминг в 1922 году, за шесть лет до пенициллина) разрывает полисахаридные цепи. Клетки человека ни муреина, ни ферментов его синтеза не имеют.
В 1884 году датский врач Ханс Кристиан Грам искал способ сделать бактерии заметнее на срезах тканей и обнаружил, что после окраски генциановым фиолетовым и обработки раствором йода одни бактерии обесцвечиваются спиртом, а другие нет [33]. Причина оказалась в строении стенки:
| Признак | Грамположительные бактерии | Грамотрицательные бактерии |
|---|---|---|
| Окраска по Граму | Остаются фиолетовыми | Обесцвечиваются, докрашиваются в розовый |
| Слой муреина | Толстый, 20–80 нм, много слоёв | Тонкий, 2–7 нм |
| Наружная мембрана | Нет | Есть; во внешнем слое — липополисахарид (эндотоксин) |
| Особые компоненты | Тейхоевые кислоты | Белки-порины, периплазматическое пространство |
| Примеры | Стафилококк, стрептококк, сенная палочка, клостридии | Кишечная палочка, сальмонелла, холерный вибрион, цианобактерии |
Наружная мембрана грамотрицательных бактерий не пропускает многие антибиотики, поэтому лечить вызванные ими инфекции труднее. Есть и бактерии вовсе без стенки — микоплазмы; они не чувствительны к пенициллину и сохраняют форму за счёт стеролов в мембране, которые получают от хозяина.
Стенка архей устроена иначе, и муреина в ней нет [34]. У большинства архей поверх мембраны лежит S-слой — правильная решётка из одного вида белковых или гликопротеиновых молекул, похожая на кристалл. У некоторых метаногенов стенка из псевдомуреина: он напоминает муреин, но содержит другой сахар (N-ацетилталозаминуроновую кислоту) и другие связи между сахарами. Поэтому археи нечувствительны ни к пенициллину, ни к лизоциму. Встречаются археи вообще без стенки (термоплазма), а у метаносарцины стенка из полисахарида, похожего на хондроитин хряща.
Стенка эукариот, если она есть, химически совсем другая: у растений и многих водорослей — из целлюлозы, у грибов — из хитина (с глюканами). Клетки животных стенки не имеют, снаружи от их мембраны лежит гликокаликс — слой углеводных цепей белков и липидов. Подробно — в статье «Клеточная стенка растений».
7. Строение эукариотической клетки
Главная черта эукариотической клетки — компартментализация: внутренние мембраны делят её на отсеки, в каждом из которых свой набор ферментов и свои условия. В лизосоме среда кислая (pH около 5), в цитоплазме — почти нейтральная; в митохондриях окисляются органические вещества, а в цитоплазме рядом синтезируются жирные кислоты. Такие противоположные процессы могут идти одновременно, не мешая друг другу. Площадь внутренних мембран клетки печени примерно в 50 раз больше площади её плазмалеммы [1, 35].
Органоиды эукариотической клетки делят на три группы:
- двумембранные — ядро, митохондрии, пластиды (у растений и водорослей);
- одномембранные — эндоплазматическая сеть (ЭПС), аппарат Гольджи, лизосомы, вакуоли, пероксисомы; ЭПС, аппарат Гольджи, лизосомы и вакуоли связаны потоком пузырьков и вместе с ядерной оболочкой и плазмалеммой образуют единую эндомембранную систему;
- немембранные — рибосомы, клеточный центр с центриолями, цитоскелет, реснички и жгутики.
Как те же задачи решаются без органоидов у прокариот, показывает таблица.
| Функция | У эукариот | У прокариот |
|---|---|---|
| Хранение ДНК | Ядро с двумембранной оболочкой и порами | Нуклеоид прямо в цитоплазме |
| Синтез АТФ при дыхании | Внутренняя мембрана митохондрий | Плазматическая мембрана |
| Фотосинтез | Тилакоиды хлоропластов | Тилакоиды цианобактерий, впячивания плазмалеммы у пурпурных бактерий, хлоросомы у зелёных |
| Синтез и выведение белков наружу | Шероховатая ЭПС → аппарат Гольджи → пузырьки | Рибосомы у плазмалеммы и белковые каналы секреции в ней |
| Переваривание | Лизосомы (внутриклеточно) | Ферменты выделяются наружу, переваривание вне клетки |
| Опора и транспорт внутри клетки | Цитоскелет и моторные белки | Белки-родственники актина и тубулина (форма и деление); транспорт — диффузией |
Помимо мембранных органоидов, в эукариотической клетке много отсеков без мембраны — капель-конденсатов из белков и РНК (ядрышко, стресс-гранулы и другие). Это очень активная область исследований последних лет; подробнее — в статье о животной клетке.
8. Наследственный аппарат
| Признак | Прокариоты | Эукариоты |
|---|---|---|
| Где находится ДНК | В нуклеоиде, без оболочки | В ядре; немного — в митохондриях и пластидах |
| Хромосомы | Обычно одна, кольцевая | Несколько или много, линейные, с теломерами на концах |
| Упаковка | Белки-аналоги гистонов у бактерий; у многих архей — гистоны | Нуклеосомы: ДНК намотана на октамеры гистонов |
| Плазмиды | Часто | Редко (например, у дрожжей) |
| Размер генома | 0,16–16 млн пар нуклеотидов | От 2 млн до 160 млрд пар нуклеотидов |
| Доля кодирующей ДНК | 85–90 % | У человека около 1,5 % |
| Интроны | Почти нет | Есть в большинстве генов |
| Опероны | Часто: несколько генов под одним промотором | Как правило, у каждого гена свой промотор |
| Набор хромосом | Обычно одна копия (гаплоидны) | Гаплоидные и диплоидные фазы, чередующиеся при мейозе и оплодотворении |
Геном прокариот плотный и экономный. Хромосома кишечной палочки содержит 4,6 млн пар нуклеотидов и около 4300 генов белков, расположенных почти вплотную [36]. Геном человека в 700 раз длиннее (3,1 млрд пар нуклеотидов), а генов белков в нём лишь около 20 тысяч — всего впятеро больше; остальное — интроны, регуляторные участки, повторы и древние вирусные вставки. Рекорд среди эукариот в 2024 году установил новокаледонский папоротник Tmesipteris oblanceolata — 160 млрд пар нуклеотидов, в 50 раз больше, чем у человека [37].
Самые маленькие геномы — у бактерий-симбионтов насекомых: у Carsonella ruddii, живущей в клетках листоблошек, всего 160 тысяч пар нуклеотидов и меньше двухсот генов [38]. Такая бактерия уже не может жить самостоятельно и стоит на полпути к органелле. В 2016 году в Институте Крейга Вентера синтезировали искусственный «минимальный» геном бактерии JCVI-syn3.0: 473 гена, из которых функция 149 оставалась неизвестной [39].
Гены прокариот часто объединены в опероны — группы генов одного обменного пути, которые транскрибируются вместе в одну мРНК и включаются одним переключателем. Классический пример — лактозный оперон кишечной палочки: три гена ферментов усвоения лактозы молчат, пока в среде нет лактозы, потому что на операторе сидит белок-репрессор. Это открыли Франсуа Жакоб и Жак Моно, опубликовав гипотезу оперона в 1961 году; в 1965 году они получили Нобелевскую премию вместе с Андре Львовым [40].
У правил есть исключения. У возбудителя болезни Лайма боррелии и у почвенных стрептомицетов хромосома линейная; у холерного вибриона две кольцевые хромосомы. Многие прокариоты не гаплоидны, а полиплоидны: у цианобактерий бывает десяток копий хромосомы, у Epulopiscium — десятки тысяч. С другой стороны, у динофлагеллят ДНК в ядре почти не связана с гистонами и хромосомы постоянно конденсированы — исключение среди эукариот.
9. Синтез белка
Принципы матричного синтеза у всех клеток одинаковы: ДНК → мРНК → белок, один генетический код, транспортные РНК, рибосомы из двух субъединиц. Различается организация процесса во времени и пространстве.
- 1. ТранскрипцияРНК-полимераза одного вида читает ген прямо в цитоплазме; часто сразу несколько генов оперона
- 2. Трансляция — одновременнорибосомы садятся на 5′-конец мРНК, пока её 3′-конец ещё синтезируется
- 3. Белок готовчерез несколько секунд после начала транскрипции
- 1. Транскрипция в ядретри РНК-полимеразы; ген обычно один в своей единице транскрипции
- 2. Созревание (процессинг)кэп на 5′-конце, поли(А)-хвост на 3′-конце, сплайсинг — вырезание интронов
- 3. Выход из ядразрелая мРНК проходит через ядерные поры
- 4. Трансляция в цитоплазмена свободных рибосомах или на шероховатой ЭПС
У прокариот нет ядерной оболочки, поэтому транскрипция и трансляция сопряжены: рибосомы садятся на мРНК и начинают синтез белка, пока РНК-полимераза ещё не закончила её синтезировать. В 1970 году Оскар Миллер с коллегами получил знаменитые электронные фотографии: от нити ДНК кишечной палочки отходят растущие нити мРНК, усаженные рибосомами, как ёлочка [41]. Белок у бактерии может появиться через несколько секунд после включения гена — поэтому бактерии быстро перестраивают обмен при смене условий.
У эукариот транскрипция идёт в ядре, а трансляция — в цитоплазме. Первичный транскрипт (пре-мРНК) созревает: на 5′-конец присоединяется «кэп» из модифицированного гуанозина, на 3′-конец — хвост из 100–250 остатков аденилового нуклеотида, а интроны вырезаются, экзоны сшиваются (сплайсинг). Только зрелая мРНК выходит через ядерные поры. Разделение во времени даёт эукариотам дополнительные уровни регуляции: один ген благодаря альтернативному сплайсингу может кодировать несколько разных белков.
Отличаются и сами рибосомы. Прокариотическая рибосома 70S состоит из субъединиц 30S и 50S (в малой — 16S рРНК), эукариотическая 80S — из 40S и 60S (в малой — 18S рРНК). Коэффициенты седиментации не складываются арифметически: скорость оседания зависит от формы частицы, а не только от массы. Синтез белка у бактерий начинается с формилметионина, у эукариот и архей — с метионина.
На различиях рибосом основано действие многих антибиотиков: стрептомицин, тетрациклины, эритромицин, левомицетин (хлорамфеникол) связываются с рибосомами 70S и почти не затрагивают рибосомы 80S. «Почти» — важное слово: рибосомы митохондрий человека тоже происходят от бактериальных. Поэтому левомицетин в больших дозах угнетает кроветворение, а у людей с мутацией A1555G в гене митохондриальной 12S рРНК даже одна инъекция антибиотика-аминогликозида может вызвать необратимую глухоту [42]. Подробнее — в статьях «Как работают антибиотики» и «Антибиотики и митохондрии».
10. Цитоскелет, движение и питание частицами
Долго считалось, что цитоскелет есть только у эукариот. В 1991 году Эрфэй Би и Джо Латкенхаус показали, что белок FtsZ образует в месте будущей перетяжки делящейся бактерии кольцо [43], а в 1998 году выяснилось, что по пространственной структуре FtsZ — родственник тубулина [44]. В 2001 году то же установили для белка MreB палочковидных бактерий: он родствен актину и определяет форму клетки [45]. У изогнутой бактерии Caulobacter нашли белок кресцентин, похожий на промежуточные филаменты [46]. Так что основные белки цитоскелета появились ещё у прокариот. Но у них цитоскелет управляет формой и делением; моторов, которые возили бы грузы по нитям, у прокариот нет. Подробнее — в статье «Цитоскелет клетки».
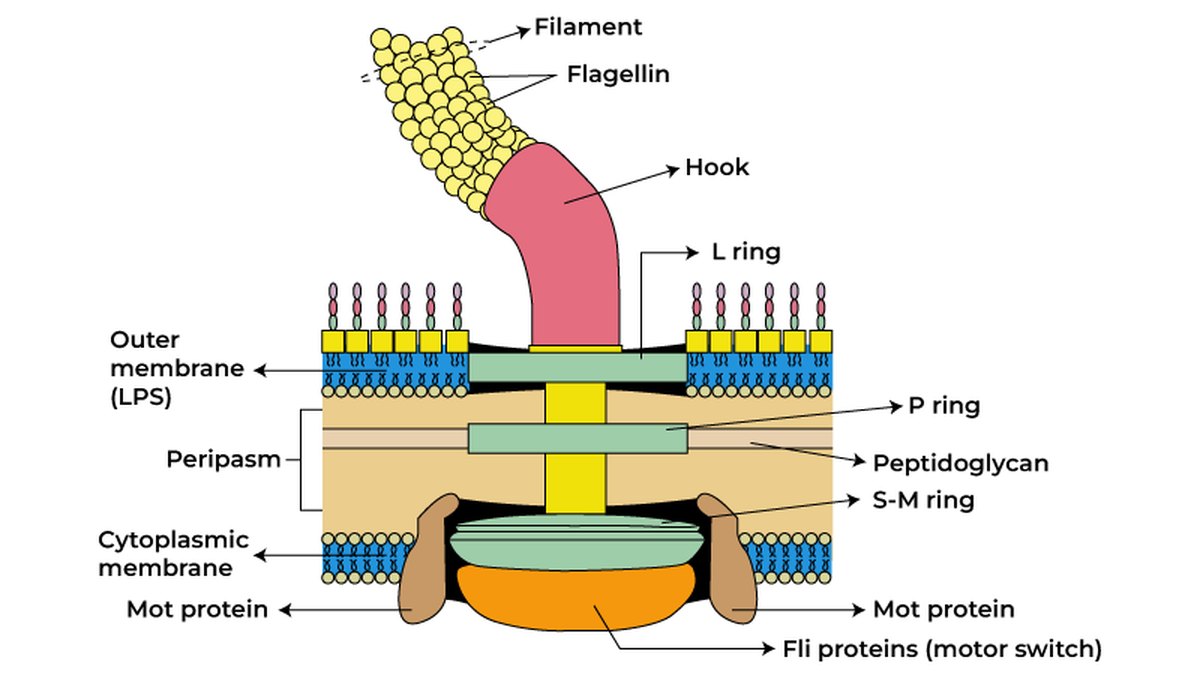
Ещё нагляднее различие жгутиков [47, 48]:
- Жгутик бактерий — жёсткая спиральная нить из белка флагеллина, которую вращает встроенный в мембрану мотор, как винт корабля. В 1973 году Говард Берг и Роберт Андерсон доказали, что жгутик именно вращается, а не изгибается [49]. Мотор работает на потоке протонов (у некоторых — ионов натрия) через мембрану, а не на АТФ; у кишечной палочки он делает около 100 оборотов в секунду и умеет менять направление вращения.
- Жгутик архей (археллум) тоже вращается, но устроен иначе: он родствен ворсинкам бактерий и работает на энергии АТФ.
- Жгутик эукариот — вырост клетки, покрытый плазмалеммой, внутри которого девять пар микротрубочек по окружности и две в центре (схема 9 + 2). Моторы-динеины, расходуя АТФ, сдвигают соседние пары, и жгутик изгибается волной. Он не вращается.
Сходство названий обманчиво: три типа жгутиков возникли независимо и не родственны. Подробнее — в статье «Два мотора жизни».
Только у эукариот есть эндоцитоз и фагоцитоз — захват частиц и капель впячиванием мембраны. Для этого нужны гибкая мембрана без жёсткой стенки и актиновый цитоскелет, который её двигает. Прокариоты питаются только растворёнными веществами, переваривая полимеры снаружи. Единственное известное приближение — бактерия Candidatus Uab amorphum из планктомицетов, описанная в 2019 году: она окружает и поглощает мелкие клетки, напоминая амёбу, хотя механизм, по-видимому, иной [50]. Именно фагоцитоз многие считают ключом к происхождению эукариот: без него трудно представить, как клетка-хозяин заполучила будущую митохондрию.
11. Деление, споры и обмен генами
Прокариоты размножаются бинарным делением: кольцевая хромосома удваивается, копии расходятся к полюсам, а кольцо из FtsZ стягивает клетку посередине. Веретена деления нет, митоза нет. При хороших условиях деление идёт очень быстро: кишечная палочка делится каждые 20 минут, а морская бактерия Vibrio natriegens — меньше чем за 10 минут [51]. Если бы ничто не ограничивало рост, потомство одной клетки через двое суток весило бы больше Земли. Этого не происходит: кончаются пища и место, накапливаются продукты обмена.
Эукариоты делятся митозом — сложным процессом с веретеном из микротрубочек, который точно распределяет между дочерними клетками десятки хромосом. Для полового размножения у них есть мейоз: в нём число хромосом уменьшается вдвое, а гены родителей перекомбинируются; затем при оплодотворении две гаплоидные клетки сливаются.
У прокариот нет ни мейоза, ни слияния гамет. Новые сочетания генов возникают у них иначе — горизонтальным переносом генов, то есть передачей ДНК не потомкам, а соседним клеткам, иногда другого вида. Этот процесс не связан с размножением: число клеток при нём не увеличивается [52, 53, 54].
- Захват «голой» ДНКиз среды, например от погибших клеток
- Опыт Ф. Гриффита, 1928безвредные пневмококки стали вирулентными
- Перенос бактериофагомфаг по ошибке упаковывает кусок ДНК хозяина
- Н. Зиндер и Дж. Ледерберг, 1952
- Прямой контакт двух клетокчерез половую ворсинку (пилю) передаётся плазмида
- Дж. Ледерберг и Э. Тейтем, 1946так распространяются гены устойчивости к антибиотикам
Горизонтальный перенос объясняет, почему устойчивость к антибиотикам так быстро распространяется среди разных бактерий: гены устойчивости часто лежат на плазмидах, а плазмиды переходят между клетками при конъюгации. У эукариот горизонтальный перенос тоже бывает, но редко.
Некоторые бактерии (сенная палочка, клостридии — возбудители столбняка и ботулизма) при недостатке питания образуют эндоспоры. Внутри клетки формируется обезвоженная копия с ДНК, окружённая многослойной оболочкой; материнская клетка затем разрушается. Спора выдерживает кипячение, высушивание, ультрафиолет и дезинфектанты [55]; именно поэтому хирургические инструменты стерилизуют не кипячением, а паром под давлением при 121 °C. Важно: спора бактерии — не способ размножения, ведь из одной клетки получается одна спора, а из споры — одна клетка. Это способ пережить неблагоприятные условия. Споры грибов и растений, напротив, служат для размножения и расселения.
12. Обмен веществ: гетеротрофные и автотрофные прокариоты
По разнообразию обмена веществ прокариоты намного превосходят эукариот. Эукариоты умеют, по сути, две вещи: дышать кислородом (в митохондриях) или бродить, и фотосинтезировать с выделением кислорода (в пластидах). И то и другое они «одолжили» у бактерий — вместе с самими митохондриями и пластидами. У прокариот же есть процессы, которых у эукариот нет совсем [11, 28]:
- хемосинтез — синтез органических веществ из CO₂ за счёт энергии окисления неорганических веществ (аммиака, нитрита, сероводорода, железа(II), водорода); открыт в 1887 году Сергеем Николаевичем Виноградским на серобактериях;
- фиксация атмосферного азота — фермент нитрогеназа есть только у прокариот;
- метаногенез — образование метана, известно только у архей;
- фотосинтез без выделения кислорода — у пурпурных и зелёных бактерий, донором электронов служит сероводород или водород, а не вода;
- анаэробное дыхание — с нитратом, сульфатом, железом(III) вместо кислорода в роли конечного акцептора электронов.
Строение прокариотической клетки зависит от способа питания. Кодификатор ЕГЭ отдельно требует знать особенности гетеротрофной и автотрофной клеток [56].
- Пример: кишечная палочка, сенная палочка
- Ферменты наружурасщепляют полимеры вне клетки
- Много белков-переносчиковв плазмалемме — для сахаров и аминокислот
- Запасыгранулы гликогена, капли полигидроксимасляной кислоты
- Пример: цианобактерии
- Тилакоидымембраны с хлорофиллом a и фикобилисомами
- Карбоксисомыбелковые «органоиды» с ферментом рубиско
- Газовые пузырькидержат клетку на свету
- Пример: нитрифицирующие и серобактерии
- Энергия окисленияаммиака, нитрита, H₂S, Fe²⁺, H₂
- Впячивания мембраныу нитрифицирующих — стопки мембран с ферментами
- Гранулы серызапас «топлива» у серобактерий
Цианобактерии — единственные прокариоты с фотосинтезом, как у растений: в их тилакоидах работают обе фотосистемы, а донор электронов — вода, поэтому выделяется кислород. Именно цианобактерии около 2,4 млрд лет назад насытили атмосферу кислородом — это событие называют Великим кислородным событием [57]. Хемоавтотрофы — нитрифицирующие бактерии, серобактерии, железобактерии — существуют за счёт химической энергии; у гидротермальных источников на дне океана они служат основой целых экосистем, не зависящих от солнечного света.
13. Место и роль прокариот в биоценозах
Прокариоты — самые многочисленные клеточные организмы на Земле. Их общее число оценивают в 10³⁰ клеток (оценки 1998 и 2019 годов — от 1,2·10³⁰ до 5·10³⁰), причём большая часть живёт не в океане и не в почве, а в глубинных породах коры [58, 59]. По биомассе прокариоты уступают только растениям: бактерии — около 70 млрд тонн углерода, археи — около 7 [60].
Самый многочисленный организм на планете — морская бактерия Pelagibacter ubique из группы SAR11: в океане около 2·10²⁸ её клеток [61]. Самый многочисленный фотосинтезирующий организм — цианобактерия прохлорококк, открытая только в 1988 году: её клетки диаметром 0,6 мкм проскальзывали сквозь фильтры и не замечались [62]. Прохлорококк и родственный ему синехококк вместе дают около четверти всей первичной продукции Мирового океана [63].
Роль прокариот в биоценозах:
- продуценты — цианобактерии в водоёмах, хемосинтетики у гидротермальных источников и в подземных экосистемах;
- редуценты — вместе с грибами разлагают мёртвое органическое вещество до минеральных; без них круговорот веществ остановился бы;
- участники круговорота азота — азотфиксаторы (клубеньковые бактерии в симбиозе с бобовыми, свободноживущий азотобактер, цианобактерии) переводят N₂ в аммиак; нитрифицирующие бактерии окисляют аммиак до нитратов; денитрификаторы и анаммокс-бактерии возвращают азот в атмосферу;
- симбионты — бактерии рубца жвачных и кишечника термитов расщепляют целлюлозу, которую животные сами не переваривают; в кишечнике человека бактерий примерно столько же, сколько собственных клеток тела [64];
- паразиты — возбудители чумы, холеры, туберкулёза, сибирской язвы, столбняка. Среди архей возбудителей болезней человека не известно;
- участники круговорота углерода и серы — метаногены в болотах и рубце, сульфатредуцирующие бактерии в осадках, серобактерии.
Человек использует прокариот для получения кисломолочных продуктов, антибиотиков (стрептомицин, тетрациклины выделены из стрептомицетов), ферментов, витаминов, инсулина (ген человека вставляют в кишечную палочку), для очистки сточных вод. Фермент Taq-полимераза из термофильной бактерии гейзеров Йеллоустона сделал возможной ПЦР, а бактериальная система CRISPR-Cas — редактирование генов.
14. Почему эукариоты крупнее и сложнее
Прокариоты появились по меньшей мере 3,4–3,5 млрд лет назад — таков возраст древнейших строматолитов, слоистых построек микробных сообществ [65]. Древнейшие окаменелости, которые уверенно относят к эукариотам, моложе — около 1,6–1,75 млрд лет [66]. Больше миллиарда лет прокариоты оставались прокариотами, и за четыре миллиарда лет ни одна их линия не стала устроенной по-эукариотному самостоятельно. Почему?
В 2010 году биохимики Ник Лейн и Уильям Мартин предложили энергетическое объяснение [2]. Синтез АТФ у прокариот идёт на плазмалемме, площадь которой растёт как квадрат размера, а потребности — как куб. Кроме того, чтобы управлять дыхательной цепью на большой мембране, нужно много копий генома, а каждая копия стоит энергии. Митохондрии решили обе проблемы: внутри клетки оказались сотни «электростанций» с собственной мембраной, а их геном сократился до нескольких десятков генов, нужных для местного управления. По расчётам авторов, эукариотическая клетка располагает в расчёте на один ген на несколько порядков большей энергией, чем бактерия, — и может позволить себе большой геном, тысячи регуляторных белков и дорогостоящие процессы вроде движения цитоскелета.
Гипотеза популярна, но не общепринята. Майкл Линч и Георги Маринов в 2017 году пересчитали энергетику клеток и пришли к выводу, что в расчёте на единицу объёма эукариоты не богаче энергией, чем прокариоты, и что непреодолимого энергетического барьера нет [67]. Спор продолжается; ясно одно — появление митохондрий было ключевым событием в истории эукариот.
15. Происхождение эукариотической клетки
Мысль о том, что хлоропласты — бывшие свободноживущие организмы, высказал в 1905 году русский ботаник Константин Сергеевич Мережковский. Он назвал её теорией симбиогенеза [68]. Идею долго считали экзотикой, пока в 1967 году американский биолог Линн Маргулис (тогда — Линн Саган) не собрала доказательства бактериального происхождения митохондрий и пластид [69]. Её статью отклонили около пятнадцати журналов, но к 1980-м годам после изучения ДНК и рибосом органелл теория стала общепринятой. Подробнее — в статье «Эндосимбиоз и симбиогенез».
Доказательства того, что митохондрии и пластиды произошли от бактерий:
- у них есть собственная кольцевая ДНК, не связанная с гистонами, — как у бактерий;
- собственные рибосомы 70S-типа, чувствительные к тем же антибиотикам, что и бактериальные;
- две мембраны: внутренняя — по составу похожа на мембрану бактерий (у митохондрий в ней есть кардиолипин, характерный для бактериальных мембран), наружная — на мембрану клетки-хозяина;
- новые органеллы образуются только делением старых, перешнуровкой, похожей на деление бактерий;
- по последовательностям генов митохондрии ближе всего к альфапротеобактериям, а пластиды — к цианобактериям [1].
Долгое время клеткой-хозяином представляли некий «примитивный эукариот» с ядром, но без митохондрий. Открытие асгардархей изменило картину: хозяином был археон, уже обладавший зачатками цитоскелета и мембранных выростов. Выращенный в 2020 году Prometheoarchaeum живёт в тесном союзе с бактериями, обмениваясь с ними водородом и другими веществами, и оплетает их выростами [17]. Отсюда модель «захвата»: археон постепенно обволакивал бактерию-партнёра, пока та не оказалась внутри. Близкую идею — что союз возник из обмена водородом — Мартин и Мюллер предложили ещё в 1998 году [70], и реконструкция 2025 года поддерживает её: общий предок асгардархей и эукариот, по-видимому, был анаэробом, жившим за счёт водорода [20].
Что было раньше — митохондрия или ядро и внутренние мембраны? Здесь мнения расходятся. В работе, опубликованной в конце 2025 года, Кристофер Кей, Филип Донохью и соавторы датировали удвоения генов, которые произошли на пути к эукариотам [71]. По их оценке, гены цитоскелета, мембранного транспорта и ядра начали удваиваться ещё до появления митохондрии; саму митохондрию клетка получила около 2,2 млрд лет назад (2,37–2,13 млрд лет), примерно в эпоху первого насыщения атмосферы кислородом, а последний общий предок всех эукариот (LECA) жил 1,8–1,67 млрд лет назад. Это модель «поздней митохондрии». Многие исследователи, в том числе Лейн и Мартин, считают, что без митохондрии усложнение клетки было бы энергетически невозможным. Датировки по молекулярным часам дают большой разброс, и вопрос открыт.
Есть ли эукариоты без митохондрий? Долго такими считали некоторых паразитических простейших (лямблию, трихомонаду), но у них нашли сильно упрощённые потомки митохондрий — гидрогеносомы и митосомы. В 2016 году впервые нашли эукариота, полностью утратившего митохондрию: жгутиконосца Monocercomonoides из кишечника шиншиллы. Единственную незаменимую функцию митохондрии — сборку железосерных кластеров для ферментов — у него взяла на себя система генов, полученная от бактерий горизонтальным переносом [72]. Митохондрию Monocercomonoides утратил вторично: его предки её имели, и прокариотом он от этого не стал.
Симбиогенез продолжается и сейчас. В 2024 году показали, что азотфиксирующая цианобактерия UCYN-A внутри морской водоросли Braarudosphaera bigelowii стала настоящей органеллой — нитропластом: она делится синхронно с клеткой-хозяином и получает около половины своих белков из клетки, а не синтезирует сама [73]. Нитропласту около 100 млн лет — он во много раз моложе пластид, возраст которых больше миллиарда лет. Это первая известная органелла эукариот, фиксирующая атмосферный азот. Другой «молодой» пример — пластида амёбы Paulinella, описанная в статье «Паулинелла: второй первичный эндосимбиоз».
16. Сводная таблица
| Признак | Прокариотическая клетка | Эукариотическая клетка |
|---|---|---|
| Организмы | Бактерии, археи | Протисты, грибы, растения, животные |
| Размер | Обычно 0,5–5 мкм | Обычно 10–100 мкм |
| Ядро | Нет, нуклеоид | Есть, двумембранная оболочка с порами |
| ДНК | Обычно одна кольцевая хромосома, плазмиды | Несколько линейных хромосом с гистонами; своя ДНК в митохондриях и пластидах |
| Рибосомы | 70S | 80S в цитоплазме, 70S-типа в митохондриях и пластидах |
| Мембранные органоиды | Как правило, нет (исключения: тилакоиды, магнитосомы, анаммоксосома) | ЭПС, аппарат Гольджи, лизосомы, вакуоли, митохондрии, пластиды |
| Клеточная стенка | Бактерии — муреин; археи — S-слой, псевдомуреин; у микоплазм нет | Растения — целлюлоза, грибы — хитин, у животных нет |
| Цитоскелет | Родственники актина и тубулина, без моторов-переносчиков | Микрофиламенты, микротрубочки, промежуточные филаменты, моторные белки |
| Жгутик | Вращающаяся нить из флагеллина, мотор на токе протонов | Вырост с микротрубочками 9 + 2, изгибается за счёт динеина и АТФ |
| Эндо- и фагоцитоз | Нет | Эндоцитоз — у всех; фагоцитоз — у животных и многих протистов |
| Транскрипция и трансляция | Сопряжены, в цитоплазме | Разделены: транскрипция в ядре, процессинг, трансляция в цитоплазме |
| Деление | Бинарное, без веретена | Митоз, мейоз |
| Половой процесс | Нет; горизонтальный перенос генов | Есть: мейоз и слияние гамет |
| Обмен веществ | Очень разнообразен: хемосинтез, азотфиксация, метаногенез, аноксигенный фотосинтез | Аэробное дыхание, брожение, кислородный фотосинтез |
| Покоящиеся формы | Эндоспоры (не для размножения), цисты | Цисты, споры (для размножения), семена |
| Многоклеточность | Колонии, нити, биоплёнки; простая | Сложные многоклеточные организмы с тканями |
17. Частые ошибки и вопросы
«У прокариот нет органоидов». Неточно: у них нет мембранных органоидов (за немногими исключениями), а немембранные органоиды — рибосомы — есть у всех клеток.
«У бактерий нет ДНК, а есть только нуклеоид». Нуклеоид — это область, где лежит ДНК. Хромосома у бактерий есть, просто обычно одна, кольцевая и без ядерной оболочки.
«Прокариоты — примитивные организмы». По строению клетка проще, но по разнообразию обмена веществ, скорости размножения и способности жить в крайних условиях прокариоты превосходят эукариот. Современные бактерии — продукт такой же долгой эволюции, как и люди.
«Спора бактерии — способ размножения». Нет, это способ пережить неблагоприятные условия: из одной клетки — одна спора.
«Цианобактерии — водоросли». Старое название «сине-зелёные водоросли» сбивает с толку. Цианобактерии — прокариоты: у них нет ядра и хлоропластов, а фотосинтез идёт на тилакоидах прямо в цитоплазме.
«Археи — древнейшие бактерии». Археи — не бактерии, а отдельный домен; название «архебактерии» устарело. Они не обязательно древнее бактерий.
«Хлоропласты и митохондрии есть у всех эукариот». Хлоропласты — только у растений и водорослей, митохондрии — почти у всех (кроме вторично утративших, вроде Monocercomonoides).
«Вирусы — прокариоты». Вирусы — неклеточные формы, они не относятся ни к прокариотам, ни к эукариотам.
Может ли эукариотическая клетка быть без ядра? Да, если она утратила его при созревании: эритроциты млекопитающих и членики ситовидных трубок растений. Это эукариотические клетки, потому что ядро у них было, и они сохраняют другие признаки эукариот.
Почему у бактерии нет ядра, а у Thiomargarita magnifica ДНК в мембранных мешочках — значит, она эукариот? Нет. По рибосомам, генам, клеточной стенке и отсутствию митохондрий это бактерия. Пепины возникли независимо и не похожи на ядро: в них есть рибосомы и идёт трансляция.
18. Что нужно знать к ЕГЭ и ОГЭ
В кодификаторе ЕГЭ-2027 по биологии тема называется «Типы клеток: эукариотическая и прокариотическая» (элемент 2.3). В неё входят строение прокариотической клетки, клеточная стенка бактерий и архей, особенности гетеротрофной и автотрофной прокариотических клеток, место и роль прокариот в биоценозах [56]. Сравнение клеток встречается также в темах «Организация генома у прокариот и эукариот», «Регуляция активности генов у прокариот. Гипотеза оперона», «Происхождение эукариот (симбиогенез)». В ОГЭ нужно уметь отличить бактерию от растения, гриба и животного и знать роль бактерий в природе и жизни человека.
Что проверяют чаще всего:
- признаки прокариотической клетки: нет ядра и мембранных органоидов, кольцевая ДНК в нуклеоиде, рибосомы 70S, стенка из муреина у бактерий, плазмиды;
- признаки, общие для всех клеток: мембрана, цитоплазма, рибосомы, ДНК;
- соответствие «организм — тип клетки»: цианобактерии, холерный вибрион, кишечная палочка — прокариоты; дрожжи, хламидомонада, амёба, мукор — эукариоты;
- доказательства симбиогенеза;
- эндоспора — не способ размножения;
- отличия синтеза белка у прокариот и эукариот (нет процессинга, транскрипция и трансляция одновременно, опероны);
- роль бактерий: азотфиксация, гниение, брожение, хемосинтез, болезни.
Типичные ловушки в заданиях: «рибосомы есть только у эукариот» (неверно), «у бактерий есть митохондрии» (неверно), «клеточная стенка бактерий из целлюлозы» (неверно — из муреина), «прокариоты делятся митозом» (неверно), «у грибов клеточная стенка из целлюлозы» (неверно — из хитина).
19. Для олимпиад
«Липидный разрыв». Мембранные липиды бактерий и эукариот построены на глицерин-3-фосфате, архей — на глицерин-1-фосфате (зеркальном изомере), с простыми эфирными связями и изопреноидными цепями. Эукариоты, произошедшие от архей, имеют «бактериальные» липиды. Это одна из загадок эукариогенеза: предполагают, что мембраны с промежуточным составом были у общего предка или что хозяин сменил тип липидов, получив гены от бактерий [14].
Ложные ядра у бактерий. В 1991 году у планктомицета Gemmata obscuriglobus описали нуклеоид, окружённый двойной мембраной, и сочли его «бактериальным ядром». Трёхмерная реконструкция 2013 года показала, что это сложные впячивания плазмалеммы, сообщающиеся с ней, а не замкнутый отсек [74]. Ещё интереснее «ядро» гигантских бактериофагов: заражённая клетка Pseudomonas строит по заказу фага белковую оболочку вокруг его ДНК, а белок фага, родственный тубулину, ставит эту структуру в центр клетки — получается подобие ядра с веретеном, возникшее у вируса независимо [75].
Гистоны архей. У архей Methanothermus fervidus гистоны собираются не в отдельные нуклеосомы, а в длинную спираль, на которую ДНК намотана непрерывно, — «гипернуклеосому» [76]. Это может быть исходная форма упаковки, из которой у эукариот возникли октамеры.
Энергетика и размер в цифрах. Отношение поверхности к объёму у шара равно 3/r; при переходе от r = 1 мкм к r = 10 мкм оно падает в 10 раз. Время диффузии на расстояние x пропорционально x²: в 100 раз большее расстояние — в 10 000 раз дольше. Поэтому гигантские бактерии либо очень тонкие (нити), либо имеют центральную вакуоль и тонкий слой цитоплазмы, либо полиплоидны и держат копии генома у самой поверхности.
Гены митохондрий. Свободноживущие альфапротеобактерии имеют тысячи генов, митохондрия человека — 37 (13 белков, 22 тРНК, 2 рРНК). Большинство генов ушло в ядро; белки митохондрий синтезируются в цитоплазме и импортируются через белковые транслоказы наружной и внутренней мембран. Почему не все гены ушли? Одно из объяснений (Дж. Аллен) — локальное управление: гены ключевых белков дыхательной цепи выгодно держать рядом с местом их работы, чтобы каждая митохондрия могла быстро подстраивать их синтез [77].
Сколько клеток в человеке. Пересмотренная в 2016 году оценка: 3,0·10¹³ собственных клеток и 3,8·10¹³ бактерий (в основном в толстой кишке), общей массой около 0,2 кг. Старая цифра «бактерий в 10 раз больше» оказалась завышенной. При этом 84 % собственных клеток по числу — эритроциты [64].
Задания с разбором
Задание 1. Выберите три признака, характерных для прокариотической клетки. 1) ДНК находится в нуклеоиде; 2) имеются митохондрии; 3) рибосомы 70S; 4) клеточная стенка бактерий содержит муреин; 5) деление митозом; 6) имеется ядерная оболочка.
Разбор
Ответ: 1, 3, 4. Митохондрий, митоза и ядерной оболочки у прокариот нет.
Задание 2. Установите соответствие между признаком и типом клетки: признаки — А) имеются плазмиды; Б) хромосомы линейные, с теломерами; В) транскрипция и трансляция сопряжены; Г) мРНК подвергается сплайсингу; Д) клеточная стенка из муреина; Е) имеются лизосомы; тип клетки — 1) прокариотическая, 2) эукариотическая.
Разбор
Ответ: А1, Б2, В1, Г2, Д1, Е2 (121212).
Задание 3. Установите соответствие между организмами и типом их клеток: А) холерный вибрион; Б) дрожжи; В) носток; Г) хламидомонада; Д) метанобактерия; Е) мукор; тип клеток — 1) прокариотические, 2) эукариотические.
Разбор
Ответ: А1, Б2, В1, Г2, Д1, Е2 (121212). Носток — цианобактерия; метанобактерия — архея, тоже прокариот; дрожжи и мукор — грибы, хламидомонада — зелёная водоросль.
Задание 4. Найдите три ошибки в тексте и исправьте их. (1) Прокариоты — организмы, клетки которых не имеют оформленного ядра. (2) К прокариотам относятся бактерии, археи и вирусы. (3) Генетический материал прокариот — кольцевая молекула ДНК. (4) В клетках прокариот нет рибосом. (5) Клеточная стенка бактерий состоит из муреина. (6) Бактерии размножаются спорами.
Разбор
Ошибки в предложениях 2, 4, 6. (2) Вирусы не имеют клеточного строения и к прокариотам не относятся. (4) Рибосомы (70S) у прокариот есть. (6) Бактерии размножаются делением надвое; эндоспоры служат для переживания неблагоприятных условий.
Задание 5. Расположите в правильной последовательности этапы реализации наследственной информации в эукариотической клетке: 1) выход мРНК через поры ядерной оболочки; 2) транскрипция; 3) сплайсинг пре-мРНК; 4) присоединение малой субъединицы рибосомы к мРНК; 5) образование пептидных связей.
Разбор
Ответ: 2, 3, 1, 4, 5.
Задание 6. Приведите не менее трёх доказательств того, что митохондрии произошли от бактерий-симбионтов.
Разбор
1) Собственная кольцевая ДНК без гистонов. 2) Собственные рибосомы 70S-типа, чувствительные к антибактериальным антибиотикам. 3) Две мембраны; внутренняя по составу похожа на бактериальную. 4) Размножаются делением. 5) По последовательностям генов ближе всего к альфапротеобактериям.
Задание 7. Почему у прокариот синтез белка может начаться до завершения синтеза мРНК, а у эукариот — нет?
Разбор
1) У прокариот нет ядерной оболочки: ДНК, РНК-полимераза и рибосомы находятся в одной цитоплазме, и рибосомы присоединяются к 5′-концу ещё растущей мРНК. 2) У эукариот транскрипция идёт в ядре, а трансляция — в цитоплазме. 3) Пре-мРНК эукариот должна пройти процессинг (кэп, поли(А)-хвост, сплайсинг) и только зрелой выйти через ядерные поры.
Задание 8. Пенициллин убивает многие бактерии, но не действует на микоплазмы, археи и клетки человека. Объясните почему.
Разбор
1) Пенициллин нарушает сшивку муреина — вещества клеточной стенки бактерий. 2) У микоплазм нет клеточной стенки. 3) У архей стенка из белкового S-слоя или псевдомуреина, ферменты его синтеза другие. 4) У клеток человека нет ни стенки, ни муреина.
Задание 9. Почему эндоспору бактерий не считают способом размножения? Какое значение она имеет?
Разбор
1) Из одной бактериальной клетки образуется одна спора, а из споры при прорастании — одна клетка: число особей не увеличивается. 2) Спора обезвожена и покрыта плотной многослойной оболочкой, поэтому переносит высокую температуру, высушивание, излучение. 3) Значение — переживание неблагоприятных условий и распространение.
Задание 10. Сравните клетки цианобактерии и кишечной палочки. Назовите не менее трёх особенностей строения цианобактерии, связанных с её способом питания.
Разбор
Цианобактерия — фотоавтотроф, кишечная палочка — гетеротроф. Особенности цианобактерии: 1) тилакоиды с хлорофиллом a и фикобилисомами в цитоплазме; 2) карбоксисомы с ферментом фиксации CO₂ (рубиско); 3) у многих газовые пузырьки, удерживающие клетку в освещённом слое воды; 4) у некоторых — гетероцисты, клетки для фиксации азота.
Задание 11. Почему большинство прокариотических клеток имеет малые размеры? Приведите не менее двух причин.
Разбор
1) С ростом размера уменьшается отношение площади поверхности к объёму, а у прокариот через плазмалемму идёт не только обмен веществами со средой, но и синтез АТФ (дыхательная цепь на мембране). 2) Вещества внутри клетки перемещаются в основном диффузией, время которой растёт пропорционально квадрату расстояния; внутренних мембран и транспорта по цитоскелету нет.
Задание 12. Назовите не менее трёх признаков, по которым археи сходны с бактериями, и не менее двух — по которым они сходны с эукариотами.
Разбор
С бактериями: нет ядра и мембранных органоидов; кольцевая хромосома в нуклеоиде; рибосомы 70S; мелкие размеры; деление надвое; опероны. С эукариотами: строение РНК-полимеразы и белков начала трансляции; гистоны у многих видов; интроны в генах тРНК; синтез белка начинается с метионина, а не с формилметионина; нет муреина.
Задание 13 (олимпиадное). Сравните отношение площади поверхности к объёму у шарообразной бактерии радиусом 1 мкм и шарообразной эукариотической клетки радиусом 10 мкм. Во сколько раз различаются их объёмы? Как эукариоты компенсируют недостаток поверхности?
Разбор
S/V = 3/r: у бактерии 3 мкм⁻¹, у эукариотической клетки 0,3 мкм⁻¹ — в 10 раз меньше. Объёмы различаются в 10³ = 1000 раз. Компенсация: внутренние мембраны (ЭПС, митохондрии с кристами, тилакоиды), во много раз увеличивающие рабочую поверхность; у некоторых клеток — микроворсинки и выросты плазмалеммы; транспорт по цитоскелету вместо диффузии.
Задание 14 (олимпиадное). Среднее время, за которое молекула смещается диффузией на расстояние x, оценивают по формуле t = x²/(2D). Для белка в цитоплазме примите D = 10 мкм²/с. Оцените время диффузии на 1 мкм, 10 мкм, 100 мкм и 1 см. Как Thiomargarita magnifica длиной 1 см обходит это ограничение?
Разбор
1 мкм: 1/20 = 0,05 с; 10 мкм: 100/20 = 5 с; 100 мкм: 10⁴/20 = 500 с (около 8 мин); 1 см = 10⁴ мкм: 10⁸/20 = 5·10⁶ с ≈ 58 суток. Тиомаргарита почти весь объём занимает вакуолью, а цитоплазма — тонкий слой у поверхности; ДНК и рибосомы распределены по всей клетке в сотнях тысяч копий (в пепинах), так что любой участок цитоплазмы близко и к поверхности, и к «своей» копии генома.
Задание 15 (олимпиадное). Кишечная палочка в идеальных условиях делится каждые 20 минут. Масса одной клетки — около 10⁻¹⁵ кг. Какой была бы масса потомства одной клетки через 48 часов неограниченного роста? Сравните с массой Земли (6,0·10²⁴ кг). Почему так не происходит?
Разбор
За 48 ч — 144 деления, клеток 2¹⁴⁴ ≈ 2,2·10⁴³, масса ≈ 2,2·10²⁸ кг — примерно в 3700 раз больше массы Земли. В действительности рост ограничивают пища, место, накопление продуктов обмена (кислот, спирта), конкуренты, хищники и фаги; в природе бактерии большую часть времени растут медленно или не растут вовсе.
Задание 16 (олимпиадное). Геном кишечной палочки — 4,6 млн пар нуклеотидов и около 4300 генов белков; геном человека — 3100 млн пар нуклеотидов и около 20 000 генов белков. Рассчитайте число генов на 1 млн пар нуклеотидов в обоих геномах. Во сколько раз различается «плотность» генов? Чем занята остальная ДНК человека?
Разбор
Кишечная палочка: 4300/4,6 ≈ 935 генов на 1 млн п. н.; человек: 20 000/3100 ≈ 6,5. Различие примерно в 140 раз. У человека большую часть генома занимают интроны, регуляторные участки, мобильные элементы и повторы (около половины генома), древние вирусные вставки, гены некодирующих РНК.
Задание 17 (олимпиадное). В теле человека около 3,0·10¹³ собственных клеток, из них 2,5·10¹³ — эритроциты, и около 3,8·10¹³ бактерий. Каково отношение числа бактерий к числу собственных клеток? К числу собственных клеток, имеющих ядро? Почему по массе бактерии составляют лишь около 0,2 кг?
Разбор
3,8/3,0 ≈ 1,3. Ядерных клеток 3,0 − 2,5 = 0,5·10¹³, отношение 3,8/0,5 ≈ 7,6. Бактерии в сотни и тысячи раз меньше по объёму, чем клетки человека (объём кишечной палочки около 1 мкм³, клетки печени — порядка 10³–10⁴ мкм³), поэтому даже при большем числе их масса мала.
Задание 18 (олимпиадное). По оценке 2018 года биомасса Земли — около 550 млрд т углерода, из них растения — 450, бактерии — 70, грибы — 12, археи — 7, протисты — 4, животные — 2. Какую долю составляют прокариоты и какую эукариоты? Почему, несмотря на огромную численность прокариот, по биомассе впереди растения?
Разбор
Прокариоты: (70 + 7)/550 ≈ 0,14 (14 %); эукариоты: (450 + 12 + 4 + 2)/550 = 468/550 ≈ 0,85 (85 %). Растения — крупные организмы, и большую часть их массы составляет древесина — мёртвые клеточные стенки из целлюлозы и лигнина, накапливающиеся десятилетиями. Бактерии мелкие, быстро размножаются и быстро погибают, а в глубинных породах, где их больше всего, растут крайне медленно при скудном питании.
Задание 19 (олимпиадное). По датировкам Кея и соавторов (2025) митохондриальный эндосимбиоз произошёл 2,37–2,13 млрд лет назад, а последний общий предок эукариот (LECA) жил 1,80–1,67 млрд лет назад. Каким могло быть наименьшее и наибольшее время между этими событиями? Что происходило с клеткой за этот период?
Разбор
Наименьшее: 2,13 − 1,80 = 0,33 млрд лет; наибольшее: 2,37 − 1,67 = 0,70 млрд лет. За это время большинство генов симбионта перешло в ядро или было утрачено, возникли системы импорта белков в митохондрию, сложились ядро с порами, эндомембранная система, митоз и мейоз, жгутик 9 + 2 — всё, что было у LECA. Ни одна промежуточная линия до наших дней не дожила.
Задание 20 (олимпиадное). Ученик утверждает: «Thiomargarita magnifica — эукариот, ведь её ДНК окружена мембраной, а Monocercomonoides — прокариот, ведь у него нет митохондрий». Опровергните оба утверждения.
Разбор
Тип клетки определяется совокупностью признаков и родством, а не одним признаком. 1) T. magnifica по генам рРНК — гамма-протеобактерия; у неё рибосомы 70S, бактериальная стенка, нет митохондрий, ЭПС, цитоскелета эукариотного типа; пепины не имеют двумембранной оболочки с порами, в них идёт трансляция — это независимо возникшее образование, а не ядро. 2) Monocercomonoides имеет ядро, рибосомы 80S, цитоскелет, жгутики 9 + 2, эндомембранную систему; по генам он относится к эукариотам из группы метамонад, а митохондрию утратил вторично, заменив её функцию полученной от бактерий системой сборки железосерных кластеров.
Литература
- Alberts B., Heald R., Johnson A., Morgan D., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 7th ed. New York: W. W. Norton, 2022.
- Lane N., Martin W. The energetics of genome complexity. Nature 2010, 467, 929–934.
- Hooke R. Micrographia: or Some Physiological Descriptions of Minute Bodies Made by Magnifying Glasses. London: Royal Society, 1665.
- van Leeuwenhoek A. Observations, communicated to the publisher by Mr. Antony van Leewenhoeck, in a Dutch letter of the 9th Octob. 1676 here English’d: concerning little animals by him observed in rain-well-sea- and snow water. Phil. Trans. R. Soc. 1677, 12, 821–831.
- Lane N. The unseen world: reflections on Leeuwenhoek (1677) ‘Concerning little animals’. Phil. Trans. R. Soc. B 2015, 370, 20140344.
- Schwann T. Mikroskopische Untersuchungen über die Uebereinstimmung in der Struktur und dem Wachsthum der Thiere und Pflanzen. Berlin: Sander, 1839.
- Virchow R. Die Cellularpathologie in ihrer Begründung auf physiologische und pathologische Gewebelehre. Berlin: Hirschwald, 1858.
- Chatton É. Pansporella perplexa, amoebien à spores protégées parasite des daphnies. Réflexions sur la biologie et la phylogénie des protozoaires. Ann. Sci. Nat. Zool. 1925, 8, 5–84.
- Sapp J. The prokaryote–eukaryote dichotomy: meanings and mythology. Microbiol. Mol. Biol. Rev. 2005, 69, 292–305.
- Stanier R. Y., van Niel C. B. The concept of a bacterium. Arch. Mikrobiol. 1962, 42, 17–35.
- Madigan M. T., Bender K. S., Buckley D. H., Sattley W. M., Stahl D. A. Brock Biology of Microorganisms. 16th ed. Harlow: Pearson, 2021.
- Woese C. R., Fox G. E. Phylogenetic structure of the prokaryotic domain: the primary kingdoms. Proc. Natl. Acad. Sci. USA 1977, 74, 5088–5090.
- Woese C. R., Kandler O., Wheelis M. L. Towards a natural system of organisms: proposal for the domains Archaea, Bacteria, and Eucarya. Proc. Natl. Acad. Sci. USA 1990, 87, 4576–4579.
- Lombard J., López-García P., Moreira D. The early evolution of lipid membranes and the three domains of life. Nat. Rev. Microbiol. 2012, 10, 507–515.
- Takai K., Nakamura K., Toki T. et al. Cell proliferation at 122 °C and isotopically heavy CH4 production by a hyperthermophilic methanogen under high-pressure cultivation. Proc. Natl. Acad. Sci. USA 2008, 105, 10949–10954.
- Spang A., Saw J. H., Jørgensen S. L. et al. Complex archaea that bridge the gap between prokaryotes and eukaryotes. Nature 2015, 521, 173–179.
- Imachi H., Nobu M. K., Nakahara N. et al. Isolation of an archaeon at the prokaryote–eukaryote interface. Nature 2020, 577, 519–525.
- Rodrigues-Oliveira T., Wollweber F., Ponce-Toledo R. I. et al. Actin cytoskeleton and complex cell architecture in an Asgard archaeon. Nature 2023, 613, 332–339.
- Eme L., Tamarit D., Caceres E. F. et al. Inference and reconstruction of the heimdallarchaeial ancestry of eukaryotes. Nature 2023, 618, 992–999.
- Zhang J., Feng X., Li M., Liu Y., Liu M., Hou L.-J., Dong H.-P. Deep origin of eukaryotes outside Heimdallarchaeia within Asgardarchaeota. Nature 2025, 642, 990–998.
- Elowitz M. B., Surette M. G., Wolf P.-E., Stock J. B., Leibler S. Protein mobility in the cytoplasm of Escherichia coli. J. Bacteriol. 1999, 181, 197–203.
- Milo R., Phillips R. Cell Biology by the Numbers. New York: Garland Science, 2015.
- Luef B., Frischkorn K. R., Wrighton K. C. et al. Diverse uncultivated ultra-small bacterial cells in groundwater. Nat. Commun. 2015, 6, 6372.
- Courties C., Vaquer A., Troussellier M. et al. Smallest eukaryotic organism. Nature 1994, 370, 255.
- Mendell J. E., Clements K. D., Choat J. H., Angert E. R. Extreme polyploidy in a large bacterium. Proc. Natl. Acad. Sci. USA 2008, 105, 6730–6734.
- Schulz H. N., Brinkhoff T., Ferdelman T. G., Hernández Mariné M., Teske A., Jørgensen B. B. Dense populations of a giant sulfur bacterium in Namibian shelf sediments. Science 1999, 284, 493–495.
- Volland J.-M., Gonzalez-Rizzo S., Gros O. et al. A centimeter-long bacterium with DNA contained in metabolically active, membrane-bound organelles. Science 2022, 376, 1453–1458.
- Нетрусов А. И., Котова И. Б. Микробиология: теория и практика. М.: Юрайт, 2018 (МГУ им. М. В. Ломоносова).
- Blakemore R. Magnetotactic bacteria. Science 1975, 190, 377–379.
- Uebe R., Schüler D. Magnetosome biogenesis in magnetotactic bacteria. Nat. Rev. Microbiol. 2016, 14, 621–637.
- van Niftrik L., Jetten M. S. M. Anammox bacteria: unique cell biology. Microbiol. Mol. Biol. Rev. 2012, 76, 585–596.
- Kerfeld C. A., Aussignargues C., Zarzycki J., Cai F., Sutter M. Bacterial microcompartments. Nat. Rev. Microbiol. 2018, 16, 277–290.
- Gram C. Ueber die isolirte Färbung der Schizomyceten in Schnitt- und Trockenpräparaten. Fortschr. Med. 1884, 2, 185–189.
- Albers S.-V., Meyer B. H. The archaeal cell envelope. Nat. Rev. Microbiol. 2011, 9, 414–426.
- Ченцов Ю. С. Введение в клеточную биологию. 4-е изд. М.: Академкнига, 2004 (МГУ им. М. В. Ломоносова).
- Blattner F. R., Plunkett G. 3rd, Bloch C. A. et al. The complete genome sequence of Escherichia coli K-12. Science 1997, 277, 1453–1462.
- Fernández P., Amice R., Bruy D. et al. A 160 Gbp fork fern genome shatters size record for eukaryotes. iScience 2024, 27, 109889.
- Nakabachi A., Yamashita A., Toh H. et al. The 160-kilobase genome of the bacterial endosymbiont Carsonella. Science 2006, 314, 267.
- Hutchison C. A. 3rd, Chuang R.-Y., Noskov V. N. et al. Design and synthesis of a minimal bacterial genome. Science 2016, 351, aad6253.
- Jacob F., Monod J. Genetic regulatory mechanisms in the synthesis of proteins. J. Mol. Biol. 1961, 3, 318–356.
- Miller O. L. Jr., Hamkalo B. A., Thomas C. A. Jr. Visualization of bacterial genes in action. Science 1970, 169, 392–395.
- Prezant T. R., Agapian J. V., Bohlman M. C. et al. Mitochondrial ribosomal RNA mutation associated with both antibiotic-induced and non-syndromic deafness. Nat. Genet. 1993, 4, 289–294.
- Bi E., Lutkenhaus J. FtsZ ring structure associated with division in Escherichia coli. Nature 1991, 354, 161–164.
- Löwe J., Amos L. A. Crystal structure of the bacterial cell-division protein FtsZ. Nature 1998, 391, 203–206.
- van den Ent F., Amos L. A., Löwe J. Prokaryotic origin of the actin cytoskeleton. Nature 2001, 413, 39–44.
- Ausmees N., Kuhn J. R., Jacobs-Wagner C. The bacterial cytoskeleton: an intermediate filament-like function in cell shape. Cell 2003, 115, 705–713.
- Berg H. C. The rotary motor of bacterial flagella. Annu. Rev. Biochem. 2003, 72, 19–54.
- Albers S.-V., Jarrell K. F. The archaellum: how Archaea swim. Front. Microbiol. 2015, 6, 23.
- Berg H. C., Anderson R. A. Bacteria swim by rotating their flagellar filaments. Nature 1973, 245, 380–382.
- Shiratori T., Suzuki S., Kakizawa Y., Ishida K. Phagocytosis-like cell engulfment by a planctomycete bacterium. Nat. Commun. 2019, 10, 5529.
- Eagon R. G. Pseudomonas natriegens, a marine bacterium with a generation time of less than 10 minutes. J. Bacteriol. 1962, 83, 736–737.
- Griffith F. The significance of pneumococcal types. J. Hyg. 1928, 27, 113–159.
- Lederberg J., Tatum E. L. Gene recombination in Escherichia coli. Nature 1946, 158, 558.
- Zinder N. D., Lederberg J. Genetic exchange in Salmonella. J. Bacteriol. 1952, 64, 679–699.
- Setlow P. Spores of Bacillus subtilis: their resistance to and killing by radiation, heat and chemicals. J. Appl. Microbiol. 2006, 101, 514–525.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
- Lyons T. W., Reinhard C. T., Planavsky N. J. The rise of oxygen in Earth’s early ocean and atmosphere. Nature 2014, 506, 307–315.
- Whitman W. B., Coleman D. C., Wiebe W. J. Prokaryotes: the unseen majority. Proc. Natl. Acad. Sci. USA 1998, 95, 6578–6583.
- Flemming H.-C., Wuertz S. Bacteria and archaea on Earth and their abundance in biofilms. Nat. Rev. Microbiol. 2019, 17, 247–260.
- Bar-On Y. M., Phillips R., Milo R. The biomass distribution on Earth. Proc. Natl. Acad. Sci. USA 2018, 115, 6506–6511.
- Morris R. M., Rappé M. S., Connon S. A. et al. SAR11 clade dominates ocean surface bacterioplankton communities. Nature 2002, 420, 806–810.
- Chisholm S. W., Olson R. J., Zettler E. R., Goericke R., Waterbury J. B., Welschmeyer N. A. A novel free-living prochlorophyte abundant in the oceanic euphotic zone. Nature 1988, 334, 340–343.
- Flombaum P., Gallegos J. L., Gordillo R. A. et al. Present and future global distributions of the marine Cyanobacteria Prochlorococcus and Synechococcus. Proc. Natl. Acad. Sci. USA 2013, 110, 9824–9829.
- Sender R., Fuchs S., Milo R. Revised estimates for the number of human and bacteria cells in the body. PLoS Biol. 2016, 14, e1002533.
- Allwood A. C., Walter M. R., Kamber B. S., Marshall C. P., Burch I. W. Stromatolite reef from the Early Archaean era of Australia. Nature 2006, 441, 714–718.
- Porter S. M. Insights into eukaryogenesis from the fossil record. Interface Focus 2020, 10, 20190105.
- Lynch M., Marinov G. K. Membranes, energetics, and evolution across the prokaryote-eukaryote divide. eLife 2017, 6, e20437.
- Mereschkowsky C. Über Natur und Ursprung der Chromatophoren im Pflanzenreiche. Biol. Centralbl. 1905, 25, 593–604.
- Sagan L. On the origin of mitosing cells. J. Theor. Biol. 1967, 14, 225–274.
- Martin W., Müller M. The hydrogen hypothesis for the first eukaryote. Nature 1998, 392, 37–41.
- Kay C. J., Spang A., Szöllősi G. J., Pisani D., Williams T. A., Donoghue P. C. J. Dated gene duplications elucidate the evolutionary assembly of eukaryotes. Nature 2026, 650, 129–140 (онлайн — декабрь 2025).
- Karnkowska A., Vacek V., Zubáčová Z. et al. A eukaryote without a mitochondrial organelle. Curr. Biol. 2016, 26, 1274–1284.
- Coale T. H., Loconte V., Turk-Kubo K. A. et al. Nitrogen-fixing organelle in a marine alga. Science 2024, 384, 217–222.
- Santarella-Mellwig R., Pruggnaller S., Roos N., Mattaj I. W., Devos D. P. Three-dimensional reconstruction of bacteria with a complex endomembrane system. PLoS Biol. 2013, 11, e1001565.
- Chaikeeratisak V., Nguyen K., Khanna K. et al. Assembly of a nucleus-like structure during viral replication in bacteria. Science 2017, 355, 194–197.
- Mattiroli F., Bhattacharyya S., Dyer P. N. et al. Structure of histone-based chromatin in Archaea. Science 2017, 357, 609–612.
- Allen J. F. Control of gene expression by redox potential and the requirement for chloroplast and mitochondrial genomes. J. Theor. Biol. 1993, 165, 609–631.
Обсуждение
Загружаем обсуждение…