
В сентябре 1957 года Фрэнсис Крик выступил в Лондоне на симпозиуме Общества экспериментальной биологии с докладом «О синтезе белка». Структура ДНК была известна уже четыре года, но никто не знал, как последовательность нуклеотидов превращается в белок. Крик предложил две идеи. Первую он назвал «гипотезой последовательности»: порядок нуклеотидов в нуклеиновой кислоте задаёт порядок аминокислот в белке. Вторую — «центральной догмой»: информация может передаваться от нуклеиновой кислоты к нуклеиновой кислоте и от нуклеиновой кислоты к белку, но никогда от белка обратно к нуклеиновой кислоте [1]. Позднее Крик признавался, что неудачно выбрал слово: он думал, что «догма» означает смелое, ещё не доказанное предположение, а не истину, которую нельзя оспаривать. Слово прижилось, а сама идея за шестьдесят с лишним лет выдержала все проверки.
Эта статья открывает серию о реализации наследственной информации. В ней разобрано, что такое реакции матричного синтеза, на каких общих принципах они основаны, как информация передаётся от ДНК к белку и признаку и как об этом узнали. Следующие статьи серии подробно разбирают транскрипцию, трансляцию, задачи на биосинтез белка, регуляцию работы генов и вирусы.
- 1. Что такое матричный синтез
- 2. Реакции матричного синтеза
- 3. Принцип комплементарности
- 4. Как открыли двойную спираль
- 5. Антипараллельность и направление синтеза
- 6. Репликация — матричный синтез ДНК
- 7. «Самый красивый эксперимент в биологии»
- 8. Точность матричного синтеза
- 9. Репарация: матричный синтез как ремонт
- 10. Проблема концов: теломеры и теломераза
- 11. Центральная догма молекулярной биологии
- 12. Обратная транскрипция: как опровергали «невозможное»
- 13. Что такое ген
- 14. «Один ген — один фермент»
- 15. От гена к признаку: серповидноклеточная анемия
- 16. Два этапа реализации наследственной информации
- 17. Генетический код — словарь перевода
- 18. Где идёт матричный синтез у прокариот и эукариот
- 19. Сколько стоит и как быстро идёт матричный синтез
- 20. Генные мутации глазами матричного синтеза
- 21. Матричный синтез в пробирке
- 22. Яды и лекарства, поражающие матричный синтез
- 23. мРНК-вакцины: трансляция по заказу
- 24. Почему всё начинается с РНК
- 25. Карта серии
- 26. Частые ошибки
- 27. Интересные факты
- 28. Частые вопросы
- 29. ЕГЭ
- 30. Для олимпиад
- 31. Задания с разбором
- Литература
1. Что такое матричный синтез
Матричный синтез — синтез полимера, при котором порядок мономеров в новой молекуле определяется порядком мономеров в уже существующей молекуле — матрице. Матрица работает как образец: к ней по одному подходят мономеры, каждый становится напротив «своего» звена матрицы, а фермент соединяет их в цепь. Матрицей в живых системах всегда служит нуклеиновая кислота — ДНК или РНК [2, 3].
Зачем клетке такой способ синтеза? Белок из 300 аминокислот можно составить из 20 видов аминокислот 20300 способами — это число с 390 нулями. Клетке же нужен один-единственный вариант, причём в тысячах одинаковых копий. Если бы аминокислоты соединялись случайно или по правилам, зашитым в фермент, клетка не смогла бы получать столь длинные молекулы с точно заданной последовательностью: каждый белок потребовал бы собственного фермента, а каждый такой фермент — ещё одного фермента для своего синтеза. Матрица решает задачу: один и тот же универсальный механизм — рибосома или полимераза — строит любую молекулу, а её последовательность «записана» в матрице.
Не все полимеры клетки синтезируются матрично. Крахмал, гликоген, целлюлоза собираются ферментами без всякой матрицы: их строение задаётся свойствами ферментов, которые присоединяют глюкозу определённым типом связи. Поэтому полисахариды однообразны — длинные цепи одинаковых звеньев — и не несут информации. Матричным способом синтезируются только «информационные» полимеры: ДНК, РНК и белки.
Определения. Матрица — молекула нуклеиновой кислоты, последовательность которой определяет последовательность синтезируемой молекулы. Матричный синтез — синтез полимера по матрице на основе принципа комплементарности. Реализация наследственной информации — синтез белков (и функциональных РНК) по информации, записанной в генах, и проявление её в признаках организма.
2. Реакции матричного синтеза
В любой клетке идут три матричные реакции.
- Репликация — удвоение ДНК: на каждой цепи материнской молекулы строится новая комплементарная цепь. Матрица — ДНК, продукт — ДНК, фермент — ДНК-полимераза.
- Транскрипция (от латинского transcriptio — переписывание) — синтез РНК на участке одной из цепей ДНК. Матрица — ДНК, продукт — РНК (информационная, рибосомная, транспортная и другие), фермент — РНК-полимераза.
- Трансляция (от латинского translatio — перевод) — синтез полипептида на рибосоме по информационной РНК. Матрица — иРНК, продукт — белок. Здесь «переписывание» сменяется «переводом»: язык нуклеотидов переводится на язык аминокислот с помощью генетического кода.
В клетках, заражённых вирусами, к ним добавляются ещё две реакции:
- Обратная транскрипция — синтез ДНК на матрице РНК. Её ведёт фермент обратная транскриптаза ретровирусов, к которым относится ВИЧ.
- Репликация РНК — синтез РНК на матрице РНК ферментом РНК-репликазой. Так размножаются вирусы гриппа, кори, полиомиелита, коронавирусы.
- РепликацияДНК → ДНК; ДНК-полимераза
- ТранскрипцияДНК → РНК; РНК-полимераза
- ТрансляцияиРНК → белок; рибосома
- Обратная транскрипцияРНК → ДНК; обратная транскриптаза (ретровирусы)
- Репликация РНКРНК → РНК; РНК-репликаза (РНК-вирусы)
| Реакция | Матрица | Продукт | Фермент | Где идёт |
|---|---|---|---|---|
| Репликация | ДНК | ДНК | ДНК-полимераза | ядро, митохондрии, пластиды; нуклеоид бактерий |
| Транскрипция | ДНК | РНК | РНК-полимераза | ядро, митохондрии, пластиды; нуклеоид бактерий |
| Трансляция | иРНК | полипептид | рибосома (пептидную связь образует рРНК) | рибосомы цитоплазмы, ЭПС, митохондрий, пластид |
| Обратная транскрипция | РНК | ДНК | обратная транскриптаза | клетка, заражённая ретровирусом |
| Репликация РНК | РНК | РНК | РНК-репликаза | клетка, заражённая РНК-вирусом |
У всех матричных реакций есть общие черты: матрица — нуклеиновая кислота; мономеры подбираются по принципу комплементарности (при трансляции — через антикодон тРНК); синтез идёт с затратой энергии; полимер растёт строго в одном направлении; процесс делится на три стадии — начало (инициацию), удлинение цепи (элонгацию) и окончание (терминацию). Наконец, матрица не расходуется: на одной ДНК можно синтезировать сколько угодно молекул РНК, а на одной иРНК — много молекул белка.
3. Принцип комплементарности
Точность матричного синтеза обеспечивает принцип комплементарности (от латинского complementum — дополнение): азотистые основания нуклеотидов образуют пары строго определённым образом. Аденин (А) спаривается с тимином (Т) в ДНК или с урацилом (У) в РНК, гуанин (Г) — с цитозином (Ц). Между А и Т (У) образуются две водородные связи, между Г и Ц — три.
Почему пары именно такие? Аденин и гуанин — пурины, крупные основания из двух колец; тимин, урацил и цитозин — пиримидины, из одного кольца. В двойной спирали расстояние между цепями постоянно, и в него помещается ровно одна пара «пурин + пиримидин». Два пурина не поместятся, два пиримидина окажутся слишком далеко друг от друга. А из двух возможных пар «пурин + пиримидин» только в паре А–Т и Г–Ц атомы, способные образовать водородные связи, оказываются точно друг напротив друга. Так геометрия молекул превращается в правило копирования.
- А — Таденин (пурин) и тимин (пиримидин) в ДНК; две водородные связи
- А — Уаденин и урацил в РНК и в паре ДНК — РНК; две водородные связи
- Г — Цгуанин (пурин) и цитозин (пиримидин); три водородные связи
- Следствиев двуцепочечной ДНК А = Т, Г = Ц (правила Чаргаффа)
Комплементарность — основа всех процессов, связанных с нуклеиновыми кислотами: строения двойной спирали ДНК, репликации, транскрипции, узнавания кодона антикодоном при трансляции, образования «шпилек» в молекулах РНК, гибридизации нуклеиновых кислот, на которой основаны ПЦР-тесты.
Следствие комплементарности — правила Чаргаффа. Австрийско-американский биохимик Эрвин Чаргафф в 1950 году, анализируя ДНК разных организмов, обнаружил, что состав ДНК у разных видов различен, но всегда количество аденина равно количеству тимина, а количество гуанина — количеству цитозина [4]. Объяснить эту закономерность Чаргафф не смог. Ответ дали Джеймс Уотсон и Фрэнсис Крик в 1953 году: А и Т, Г и Ц стоят друг напротив друга в двух цепях одной молекулы [5].
Как потерять балл. Применить правило Чаргаффа к РНК. Молекула иРНК одноцепочечная, и количество аденина в ней не обязано равняться количеству урацила. Правило А = Т, Г = Ц выполняется только для двуцепочечной ДНК.
4. Как открыли двойную спираль
История открытия структуры ДНК — одна из самых известных и драматичных в науке. К началу 1950-х годов было уже ясно, что наследственная информация записана именно в ДНК: в 1944 году американский микробиолог Освальд Эйвери с коллегами показал, что очищенная ДНК одного штамма пневмококков превращает другой штамм в первый, а в 1952 году Альфред Херши и Марта Чейз показали, что бактериофаг вводит в бактерию свою ДНК, а белковая оболочка остаётся снаружи. Но как устроена молекула и как она копируется, оставалось загадкой.
В Лондоне, в Королевском колледже, строение ДНК изучали методом рентгеноструктурного анализа Морис Уилкинс и Розалинд Франклин. Франклин получила исключительно чёткие рентгенограммы; самая знаменитая из них, «фотография 51», снятая в мае 1952 года её аспирантом Реймондом Гослингом, явно указывала на спираль. В Кембридже Уотсон и Крик пытались построить модель ДНК из проволоки и картонных фрагментов. Решающими для них стали три вещи: рентгенограммы Франклин, которые Уилкинс показал Уотсону без её ведома, правила Чаргаффа и догадка о том, как именно соединяются основания.
25 апреля 1953 года в журнале Nature вышла короткая — около одной страницы — статья Уотсона и Крика с моделью двойной спирали [5]. В конце её стояла знаменитая сдержанная фраза: авторы отмечали, что предложенное ими специфическое спаривание оснований сразу подсказывает возможный механизм копирования генетического материала. В том же номере вышли статьи Уилкинса и Франклин с экспериментальными данными. Нобелевскую премию 1962 года получили Уотсон, Крик и Уилкинс. Франклин умерла от рака в 1958 году в 37 лет, а посмертно Нобелевскую премию не присуждают; сегодня её вклад признан одним из решающих.
5. Антипараллельность и направление синтеза
Цепь нуклеиновой кислоты имеет направление, как стрела. Каждый нуклеотид содержит сахар (дезоксирибозу или рибозу), и атомы углерода в нём пронумерованы со штрихом: 1′, 2′, 3′, 4′, 5′. Нуклеотиды соединяются так, что фосфат связывает 5′-атом углерода одного сахара с 3′-атомом углерода следующего. Поэтому на одном конце цепи остаётся свободная фосфатная группа при 5′-атоме — это 5′-конец, а на другом — свободная гидроксильная группа при 3′-атоме — 3′-конец.
Две цепи ДНК антипараллельны: напротив 5′-конца одной цепи находится 3′-конец другой. Только при таком встречном расположении основания укладываются в пары, а сахаро-фосфатный остов образует правильную спираль.
Отсюда важнейшее правило всех матричных реакций: полимеразы удлиняют цепь только с 3′-конца, присоединяя новый нуклеотид к свободной OH-группе последнего. Новая цепь растёт в направлении 5′ → 3′, а матрица считывается в обратном направлении, 3′ → 5′. Так же и рибосома движется по иРНК от 5′-конца к 3′-концу.
| Цепь | Запись | Комментарий |
|---|---|---|
| Матричная цепь ДНК | 3′-ТАЦГГЦАТТ-5′ | считывается от 3′-конца к 5′-концу |
| Новая цепь ДНК (репликация) | 5′-АТГЦЦГТАА-3′ | растёт от 5′ к 3′, каждый нуклеотид комплементарен матрице |
| РНК (транскрипция) | 5′-АУГЦЦГУАА-3′ | то же, но вместо тимина — урацил |
Почему синтез идёт только в одну сторону? Энергию для присоединения нуклеотида даёт сам входящий нуклеотид: он поступает в виде трифосфата (АТФ, ГТФ, ЦТФ, УТФ для РНК; дАТФ, дГТФ, дЦТФ, дТТФ для ДНК), и при его присоединении отщепляются два концевых фосфата. Если бы цепь росла с 5′-конца, энергия хранилась бы на конце растущей цепи, и при исправлении ошибки — удалении неверного нуклеотида — цепь теряла бы «заряд» и не могла бы расти дальше. При росте с 3′-конца ошибочный нуклеотид можно вырезать без вреда для продолжения синтеза. Это одна из причин, почему все известные ДНК-полимеразы работают в направлении 5′ → 3′.
Как потерять балл. Перепутать концы при построении комплементарной цепи. Если матрица записана как 5′-…-3′, комплементарная цепь, записанная под ней, идёт 3′-…-5′. Чтобы записать её привычно, от 5′-конца, последовательность нужно прочитать справа налево.
6. Репликация — матричный синтез ДНК
Репликация происходит в синтетическом периоде интерфазы, перед делением клетки. Двойная спираль на определённых участках — точках начала репликации — расплетается особым ферментом (геликазой), цепи расходятся, образуя «вилку», и каждая цепь становится матрицей. ДНК-полимераза присоединяет к растущей цепи нуклеотиды, комплементарные нуклеотидам матрицы. В результате из одной молекулы получаются две, каждая из которых содержит одну старую и одну новую цепь. Такой способ называется полуконсервативным.
Поскольку полимераза наращивает цепь только в направлении 5′ → 3′, а цепи матрицы антипараллельны, две новые цепи в вилке синтезируются по-разному. Одна — ведущая — строится непрерывно, вслед за расплетанием. Другая — отстающая — строится короткими фрагментами в обратную сторону, которые затем сшивает фермент лигаза. Эти фрагменты длиной в сотни – пару тысяч нуклеотидов в 1968 году открыл японский биохимик Рэйдзи Оказаки, их называют фрагментами Оказаки. Кроме того, ДНК-полимераза не может начать цепь «с нуля»: ей нужен короткий участок РНК — затравка (праймер), который синтезирует особый фермент и потом удаляет.
У бактерии кишечной палочки кольцевая хромосома из 4,6 млн пар нуклеотидов копируется из одной точки начала двумя вилками, которые движутся в противоположные стороны со скоростью около 1000 нуклеотидов в секунду; на всю хромосому уходит около 40 минут. Вилки у эукариот движутся медленнее, около 50 нуклеотидов в секунду, а ДНК гораздо длиннее: самая длинная хромосома человека содержит около 250 млн пар нуклеотидов. Две вилки из одной точки копировали бы её больше месяца. Поэтому репликация у эукариот начинается одновременно в десятках тысяч точек, и весь геном удваивается за несколько часов [2].
7. «Самый красивый эксперимент в биологии»
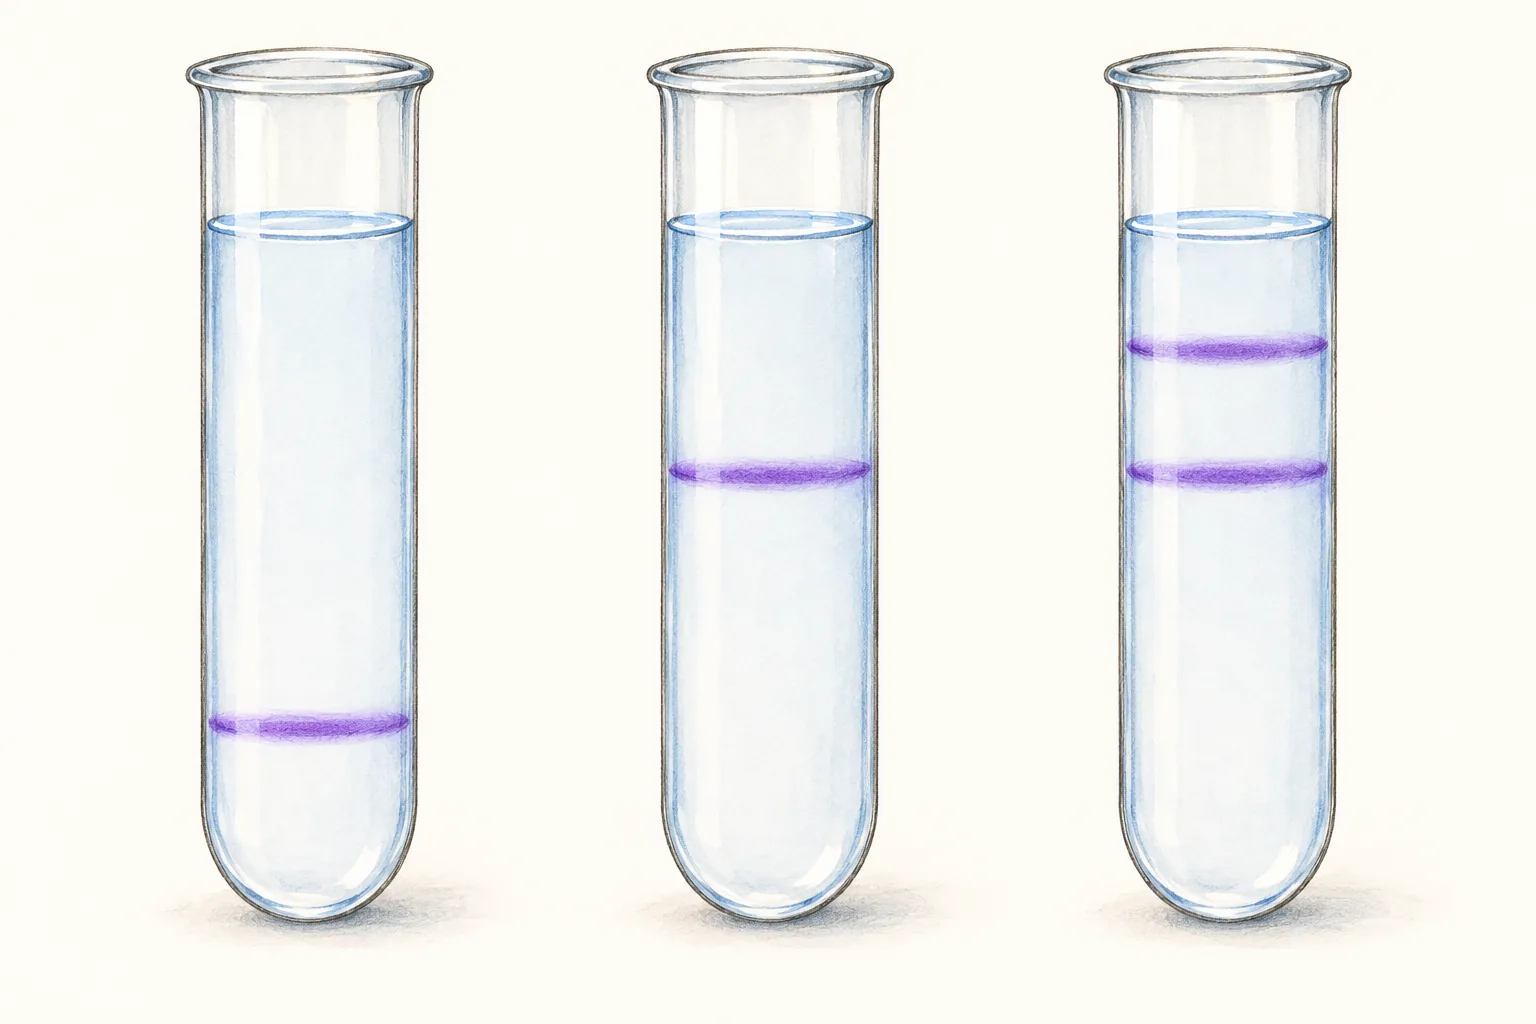
Модель Уотсона и Крика подсказывала полуконсервативный способ репликации, но были и другие варианты: консервативный (старая молекула остаётся целой, а новая состоит из двух новых цепей) и дисперсный (старые и новые участки перемешаны в обеих цепях). В 1958 году молодые американские исследователи Мэтью Мезельсон и Франклин Сталь проверили их опытом, который биолог Джон Кэрнс назвал «самым красивым экспериментом в биологии» [6].
Они много поколений выращивали кишечную палочку на среде, где единственным источником азота был тяжёлый изотоп 15N, так что вся ДНК бактерий стала «тяжёлой». Затем бактерий перенесли на среду с обычным лёгким азотом 14N и через каждое поколение выделяли ДНК. Тяжёлую и лёгкую ДНК разделяли ультрацентрифугированием в растворе хлорида цезия: при вращении с огромной скоростью в пробирке возникает градиент плотности, и каждая молекула останавливается там, где плотность раствора равна её собственной.
- До переноса — одна полоса тяжёлой ДНК.
- После одного деления — одна полоса промежуточной плотности. Это сразу отвергло консервативную модель: по ней были бы две полосы — тяжёлая и лёгкая.
- После двух делений — две полосы, промежуточная и лёгкая, поровну. Это отвергло дисперсную модель: по ней осталась бы одна полоса, сместившаяся к лёгкой.
Результат точно соответствовал полуконсервативной модели: каждая молекула после первого деления содержала одну тяжёлую и одну лёгкую цепь, а после второго половина молекул была гибридной, половина — полностью лёгкой.
8. Точность матричного синтеза
Комплементарность — сильное, но не абсолютное правило. Иногда основание принимает редкую форму и образует «неправильную» пару, иногда полимераза ошибается. Если бы клетка копировала ДНК с точностью, которую даёт одно только спаривание оснований, — около одной ошибки на десять тысяч нуклеотидов, — каждый раз при делении клетки человека в геноме появлялись бы сотни тысяч мутаций. Поэтому точность репликации обеспечивается в несколько ступеней [7].
- Отбор нуклеотида. Активный центр ДНК-полимеразы «примеряет» каждую пару: правильная пара А–Т или Г–Ц имеет строго определённую форму и размер, и полимераза присоединяет нуклеотид, только если пара подходит. Это снижает частоту ошибок примерно до одной на 104–105 нуклеотидов.
- Корректура. Многие ДНК-полимеразы умеют «оглядываться»: если последний присоединённый нуклеотид спарен неверно, полимераза вырезает его и вставляет правильный. Это повышает точность ещё примерно в сто раз.
- Исправление неспаренных оснований. После прохождения вилки особые белки находят оставшиеся неправильные пары, определяют, какая цепь новая, и исправляют ошибку именно в ней. Точность растёт ещё в сто – тысячу раз.
В итоге частота ошибок при репликации — около одной на миллиард нуклеотидов или ещё меньше. При каждом делении клетки человека в её шести миллиардах пар нуклеотидов (с учётом двух наборов хромосом) появляются в среднем лишь единицы новых мутаций, а нередко ни одной.
Транскрипция и трансляция гораздо менее точны: РНК-полимераза ошибается примерно один раз на 104–105 нуклеотидов, рибосома — примерно один раз на 103–104 аминокислот. Клетка может себе это позволить: ошибочная молекула РНК или белка — лишь одна из многих копий, она скоро разрушится и не передастся потомкам. Ошибка же в ДНК копируется при каждом следующем делении и становится мутацией. Поэтому именно репликация оснащена самыми совершенными механизмами контроля.
9. Репарация: матричный синтез как ремонт
ДНК повреждается не только при копировании. Шведский биохимик Томас Линдаль в 1970-х годах показал, что молекула ДНК химически гораздо менее устойчива, чем считали: в водной среде клетки от неё самопроизвольно отщепляются азотистые основания, цитозин теряет аминогруппу и превращается в урацил, основания окисляются активными формами кислорода. По его оценкам, в каждой клетке человека ежесуточно возникают многие тысячи таких повреждений [8]. Добавьте к этому ультрафиолет, который сшивает соседние тимины в «димеры», и вещества табачного дыма. Если бы повреждения не исправлялись, геном разрушился бы за считаные дни.
Исправление повреждений ДНК называют репарацией. Почти все её способы основаны на одном и том же принципе: повреждённый участок одной цепи вырезается, а потом заново синтезируется ДНК-полимеразой по второй, неповреждённой цепи — по принципу комплементарности. Двуцепочечная ДНК хранит информацию в двух экземплярах, и каждая цепь служит резервной копией другой. Это ещё одна причина, по которой наследственная информация хранится именно в двуцепочечной ДНК.
За исследование механизмов репарации Томас Линдаль, американец Пол Модрич и американец турецкого происхождения Азиз Санджар получили Нобелевскую премию по химии 2015 года. Значение репарации видно на примере наследственной болезни — пигментной ксеродермы: у больных не работает вырезание ультрафиолетовых повреждений, и риск рака кожи у них в тысячи раз выше обычного; им приходится всю жизнь избегать солнечного света.
10. Проблема концов: теломеры и теломераза
Линейные хромосомы эукариот создают для репликации особую трудность. Отстающая цепь синтезируется фрагментами, каждый из которых начинается с РНК-затравки. Затравку на самом конце хромосомы после удаления нечем заменить: для ДНК-полимеразы там нет начала. Поэтому при каждом удвоении конец новой цепи оказывается немного короче матрицы, и хромосомы с каждым делением укорачиваются.
На эту «проблему концевой репликации» в 1971 году обратил внимание советский биолог Алексей Оловников. Он связал её с открытием американского исследователя Леонарда Хейфлика: нормальные клетки человека в культуре делятся лишь около 50 раз, а потом перестают. Оловников предположил, что укорочение концов хромосом и служит «счётчиком» делений. Концы хромосом — теломеры — состоят из тысяч повторов короткой последовательности (у человека — ТТАГГГ), не несущих генов, и укорачиваются без вреда, пока их запас не исчерпан.
Почему же тогда хромосомы не укорачиваются из поколения в поколение? Ответ нашли американские биологи Кэрол Грейдер и Элизабет Блэкберн. На Рождество 1984 года аспирантка Грейдер увидела в экстракте инфузории тетрахимены активность фермента, который удлиняет теломеры, добавляя к ним повторы [9]. Фермент назвали теломеразой. Удивительно, что он несёт в себе собственную короткую молекулу РНК и использует её как матрицу для синтеза ДНК повторов, — то есть это обратная транскриптаза, работающая в наших собственных клетках. В 2009 году Блэкберн, Грейдер и Джек Шостак получили Нобелевскую премию.
Теломераза активна в половых и стволовых клетках, а в большинстве клеток тела выключена. Зато в 85–90 % злокачественных опухолей она включается снова, и раковые клетки получают способность делиться бесконечно. Поэтому теломераза — одна из мишеней поиска противоопухолевых препаратов (подробнее — в статье «Теломеры и теломераза»).
11. Центральная догма молекулярной биологии
Схема Крика описывает, в каких направлениях может передаваться информация о последовательности. В 1970 году, когда были открыты новые процессы, Крик уточнил её и разделил переходы на три группы [10].
- Общие — идут во всех клетках: ДНК → ДНК (репликация), ДНК → РНК (транскрипция), РНК → белок (трансляция).
- Особые — идут лишь в некоторых случаях, главным образом у вирусов: РНК → РНК (репликация РНК) и РНК → ДНК (обратная транскрипция), а также ДНК → белок — прямое считывание ДНК рибосомой, которое удалось получить лишь в пробирке.
- Неизвестные — не наблюдаются: белок → ДНК, белок → РНК, белок → белок (по последовательности).
- ДНК → ДНКрепликация
- ДНК → РНКтранскрипция
- РНК → белоктрансляция
- РНК → РНКрепликация РНК вирусов
- РНК → ДНКобратная транскрипция
- Белок → нуклеиновая кислотане наблюдается
Главный запрет догмы — информация не возвращается от белка к нуклеиновой кислоте. Клетка не может «прочитать» последовательность аминокислот белка и записать её в ген. Это имеет важное следствие для эволюции: изменения, приобретённые белками при жизни организма, — например, тренированные мышцы — не могут изменить гены и не наследуются. Так молекулярная биология объяснила, почему не работает наследование приобретённых признаков, в которое верил Ламарк.
Догму часто считают опровергнутой открытием прионов — белков, которые передают свою «неправильную» форму другим молекулам того же белка. Но прион передаёт не последовательность аминокислот, а пространственную укладку уже существующей цепи, поэтому центральная догма в формулировке Крика не нарушается (подробнее — в статье «Прионы»).
12. Обратная транскрипция: как опровергали «невозможное»
В начале 1960-х годов американский вирусолог Говард Темин изучал вирус саркомы Рауса — РНК-содержащий вирус, вызывающий рак у кур. Он заметил, что заражение блокируется веществами, мешающими синтезу ДНК, и что заражённые клетки устойчиво передают вирус потомкам. Темин предположил, что РНК вируса переписывается в ДНК, которая встраивается в хромосому клетки, — гипотезу «провируса». Поскольку это противоречило привычному направлению «ДНК → РНК», над Темином почти десять лет посмеивались.
В 1970 году Темин с японским сотрудником Сатоси Мидзутани и независимо от них Дэвид Балтимор обнаружили в частицах РНК-вирусов фермент, синтезирующий ДНК на матрице РНК [11, 12]. Статьи вышли в одном номере Nature. Фермент назвали обратной транскриптазой, а вирусы, у которых он есть, — ретровирусами (от латинского retro — назад). В 1975 году Темин и Балтимор вместе с Ренато Дульбекко получили Нобелевскую премию.
Через тринадцать лет к ретровирусам отнесли и ВИЧ, а обратная транскриптаза стала мишенью первого лекарства против него — азидотимидина. Сегодня этот фермент — незаменимый инструмент лабораторий: с его помощью получают ДНК-копии молекул иРНК, без него невозможны ПЦР-тесты на РНК-вирусы, в том числе на коронавирус. Выяснилось также, что около 8 % генома человека составляют остатки ретровирусов, встроившихся в ДНК наших предков миллионы лет назад, и ещё большая доля — мобильные элементы, размножающиеся через обратную транскрипцию (подробнее о геноме — в статье «Геномы бактерий, архей и эукариот»).
13. Что такое ген
Слово «ген» придумал в 1909 году датский ботаник Вильгельм Иогансен для обозначения единицы наследственности — ещё задолго до того, как стало известно, из чего она состоит. Для генетиков начала XX века ген был абстракцией, «точкой на хромосоме», от которой зависит признак. Молекулярная биология наполнила это понятие содержанием.
Ген — участок молекулы ДНК (у некоторых вирусов — РНК), в котором закодирована информация о последовательности аминокислот одной полипептидной цепи или о последовательности нуклеотидов функциональной молекулы РНК (рибосомной, транспортной, регуляторной). Большинство генов кодируют белки; продукты других генов — рРНК, тРНК, малые регуляторные РНК — работают в виде РНК и не транслируются.
Ген включает не только кодирующую последовательность, но и регуляторные участки: промотор, к которому присоединяется РНК-полимераза, участок окончания транскрипции, у эукариот — последовательности, усиливающие или ослабляющие работу гена. У эукариот кодирующая последовательность обычно разорвана некодирующими вставками — интронами, которые вырезаются из РНК (подробнее — в статье «Кодирующие и регуляторные последовательности»).
Совокупность всех генов организма называют генотипом, а всю ДНК клетки — геномом. У человека около 20 тысяч генов, кодирующих белки, и они составляют лишь около 1,5 % генома.
14. «Один ген — один фермент»
Как связаны гены и белки, впервые показали американские генетики Джордж Бидл и Эдвард Тейтем. В 1941 году они облучали рентгеновскими лучами споры хлебной плесени нейроспоры — гриба, который растёт на простейшей среде из сахара, солей и одного витамина, сам синтезируя всё остальное [13]. Среди потомков облучённых спор они искали мутантов, которые на простой среде не растут, а растут только при добавлении какого-нибудь одного вещества — определённой аминокислоты или витамина. Оказалось, что каждая такая мутация выключает одну ферментативную реакцию в цепочке синтеза этого вещества и наследуется как один ген.
Отсюда Бидл и Тейтем вывели принцип «один ген — один фермент»: каждый ген управляет синтезом одного фермента. Позже принцип уточнили. Многие белки — не ферменты, и многие состоят из нескольких разных полипептидных цепей, каждую из которых кодирует свой ген (гемоглобин взрослого человека — из двух α- и двух β-цепей). Поэтому сегодня говорят «один ген — один полипептид», а с учётом генов рРНК и тРНК и альтернативного сплайсинга, при котором один ген даёт несколько вариантов белка, — ещё осторожнее. В 1958 году Бидл и Тейтем получили Нобелевскую премию.
15. От гена к признаку: серповидноклеточная анемия
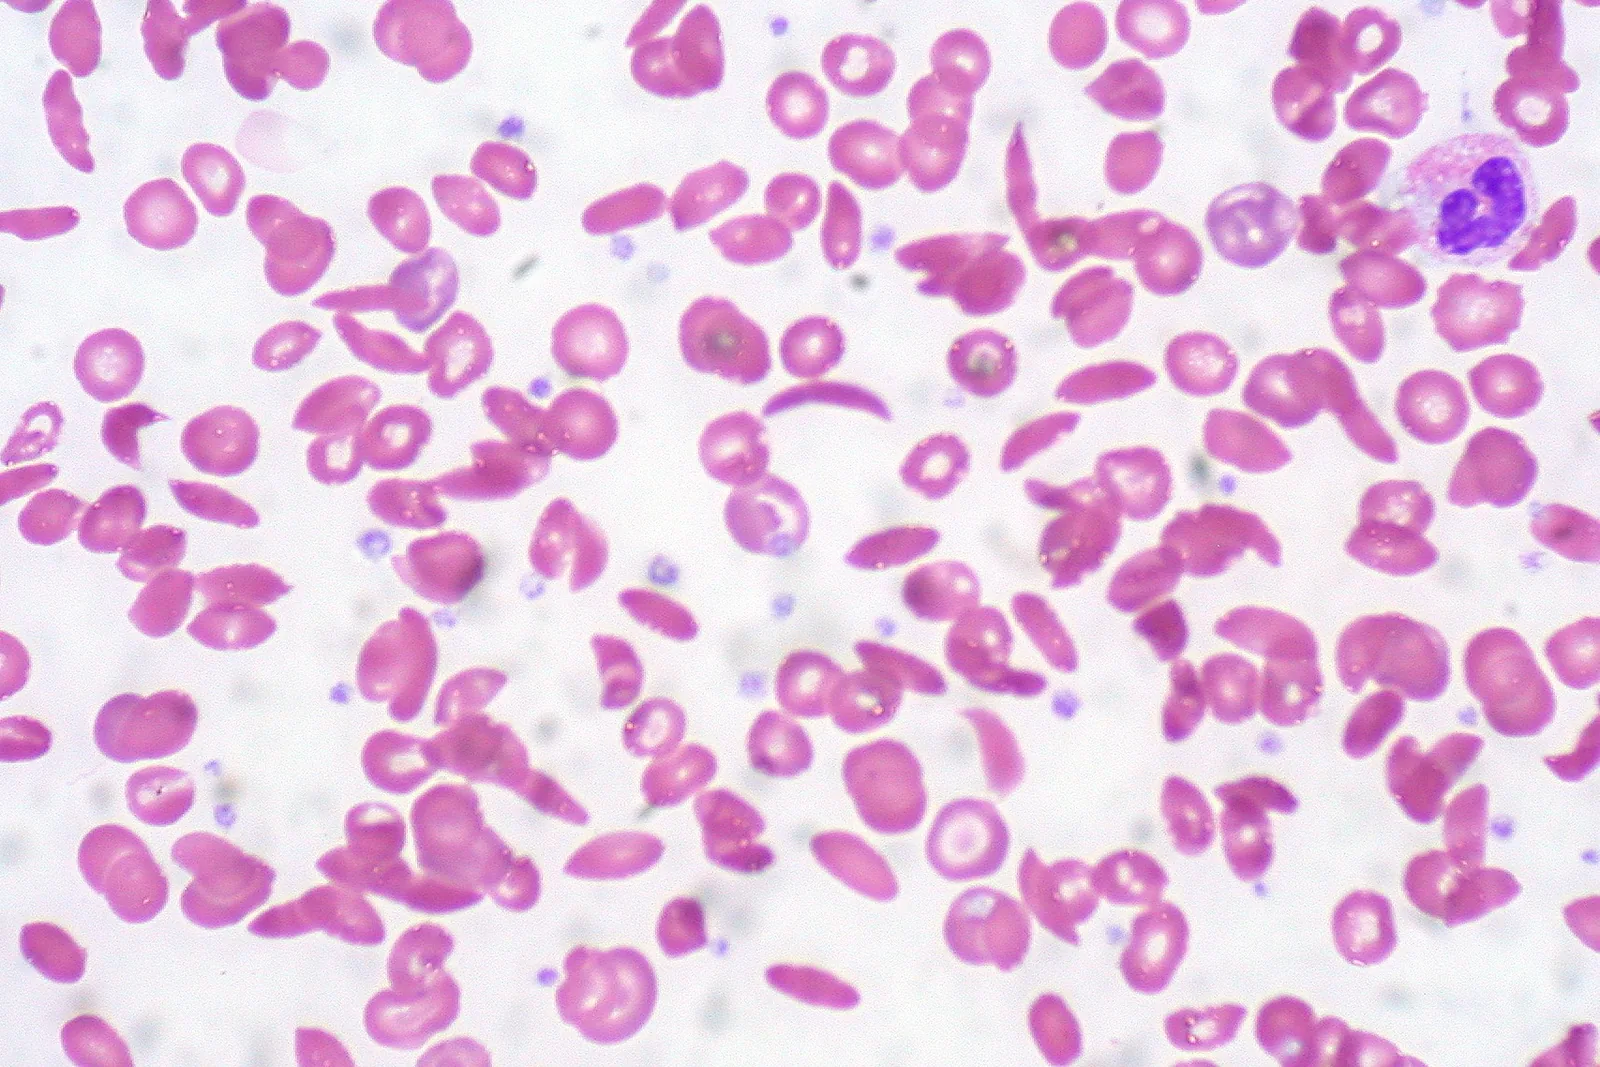
Самый наглядный пример того, как информация гена превращается в признак, дала серповидноклеточная анемия — наследственная болезнь, при которой эритроциты в условиях недостатка кислорода принимают форму серпа, слипаются и закупоривают мелкие сосуды.
В 1949 году Лайнус Полинг с сотрудниками сравнил гемоглобин больных и здоровых людей методом электрофореза — движения молекул в электрическом поле. Гемоглобин больных двигался иначе: его молекула несла другой электрический заряд. Статью Полинг назвал «Серповидноклеточная анемия — молекулярная болезнь» [14]; это было первое описание болезни, причина которой — изменение одного белка. В 1957 году английский биохимик Вернон Ингрэм расщепил оба гемоглобина ферментом на короткие пептиды и сравнил их. Различие нашлось в одном-единственном пептиде и в одной-единственной аминокислоте: в шестом положении β-цепи глутаминовая кислота была заменена на валин [15].
Так была прослежена вся цепочка от гена к признаку:
- в гене β-цепи гемоглобина один нуклеотид заменён другим — триплет ГАГ превратился в ГТГ (на кодирующей цепи);
- в иРНК вместо кодона ГАГ стоит кодон ГУГ;
- при трансляции вместо глутаминовой кислоты (заряженной, гидрофильной) включается валин (незаряженный, гидрофобный);
- на поверхности молекулы гемоглобина появляется «липкое» гидрофобное пятно, и молекулы, отдавшие кислород, слипаются в длинные нити;
- нити деформируют эритроцит, он становится серповидным, жёстким и быстро разрушается;
- у человека развиваются малокровие, боли, поражение органов из-за нарушения кровотока.
Тот же пример показывает, что «вредный» аллель может быть и полезным: люди, получившие один аллель серповидноклеточности и один нормальный, почти здоровы и при этом устойчивы к тропической малярии. Поэтому в Африке, где малярия распространена, этот аллель встречается часто (подробнее — в статье «Естественный отбор»).
16. Два этапа реализации наследственной информации
Информация гена, кодирующего белок, реализуется в два этапа.
Первый этап — транскрипция. На одной из цепей ДНК гена РНК-полимераза синтезирует молекулу РНК, комплементарную этой цепи. Цепь ДНК, служащая матрицей, называется матричной (транскрибируемой), а вторая — кодирующей (смысловой): её последовательность совпадает с последовательностью РНК, только вместо урацила в ней тимин. У эукариот первичный транскрипт созревает: на нём достраиваются «колпачок» и хвост, из него вырезаются интроны, и готовая иРНК выходит из ядра в цитоплазму.
Второй этап — трансляция. На рибосоме иРНК считывается тройками нуклеотидов — кодонами. Каждому кодону соответствует определённая аминокислота, которую доставляет транспортная РНК с комплементарным антикодоном. Рибосома соединяет аминокислоты пептидными связями в цепь. Затем полипептид сворачивается в пространственную структуру и становится работающим белком.
Обе стадии подробно разобраны в следующих статьях серии: «Транскрипция» и «Трансляция».
| Признак | Транскрипция | Трансляция |
|---|---|---|
| Матрица | одна цепь ДНК (матричная) | иРНК |
| Продукт | РНК (иРНК, рРНК, тРНК и др.) | полипептид |
| Мономеры | рибонуклеозидтрифосфаты (АТФ, ГТФ, ЦТФ, УТФ) | аминокислоты, доставленные тРНК |
| Кто ведёт | РНК-полимераза | рибосома |
| Как подбираются мономеры | по комплементарности с ДНК | по комплементарности антикодона тРНК кодону иРНК |
| Где у эукариот | в ядре (а также в митохондриях и пластидах) | в цитоплазме, на ЭПС (а также в митохондриях и пластидах) |
17. Генетический код — словарь перевода
Связь между последовательностью нуклеотидов и последовательностью аминокислот задаёт генетический код. Каждая аминокислота кодируется сочетанием из трёх нуклеотидов — триплетом (в иРНК — кодоном). Из четырёх нуклеотидов можно составить 43 = 64 разных триплета: 61 из них кодирует 20 аминокислот, а три (УАА, УАГ, УГА) служат сигналами окончания синтеза — стоп-кодонами. Кодон АУГ кодирует метионин и одновременно служит сигналом начала синтеза.
Почему триплет, а не дублет? Двумя нуклеотидами можно закодировать лишь 42 = 16 сочетаний — меньше двадцати аминокислот. Тремя — 64, с запасом. Именно поэтому большинство аминокислот кодируются несколькими кодонами. Первый кодон расшифровали в 1961 году американские биохимики Маршалл Ниренберг и Генрих Маттеи: искусственная РНК, состоявшая из одних урацилов, в бесклеточной системе давала белок только из фенилаланина — значит, УУУ кодирует фенилаланин. Свойства кода — триплетность, однозначность, вырожденность, неперекрываемость, универсальность — и история его расшифровки подробно разобраны в статье «Генетический код и его свойства».
Расчёт показывает и масштаб задачи: белок из 300 аминокислот кодируется 900 нуклеотидами иРНК (плюс стоп-кодон), а с учётом некодирующих участков и интронов ген такого белка у человека может занимать десятки тысяч пар нуклеотидов.
18. Где идёт матричный синтез у прокариот и эукариот
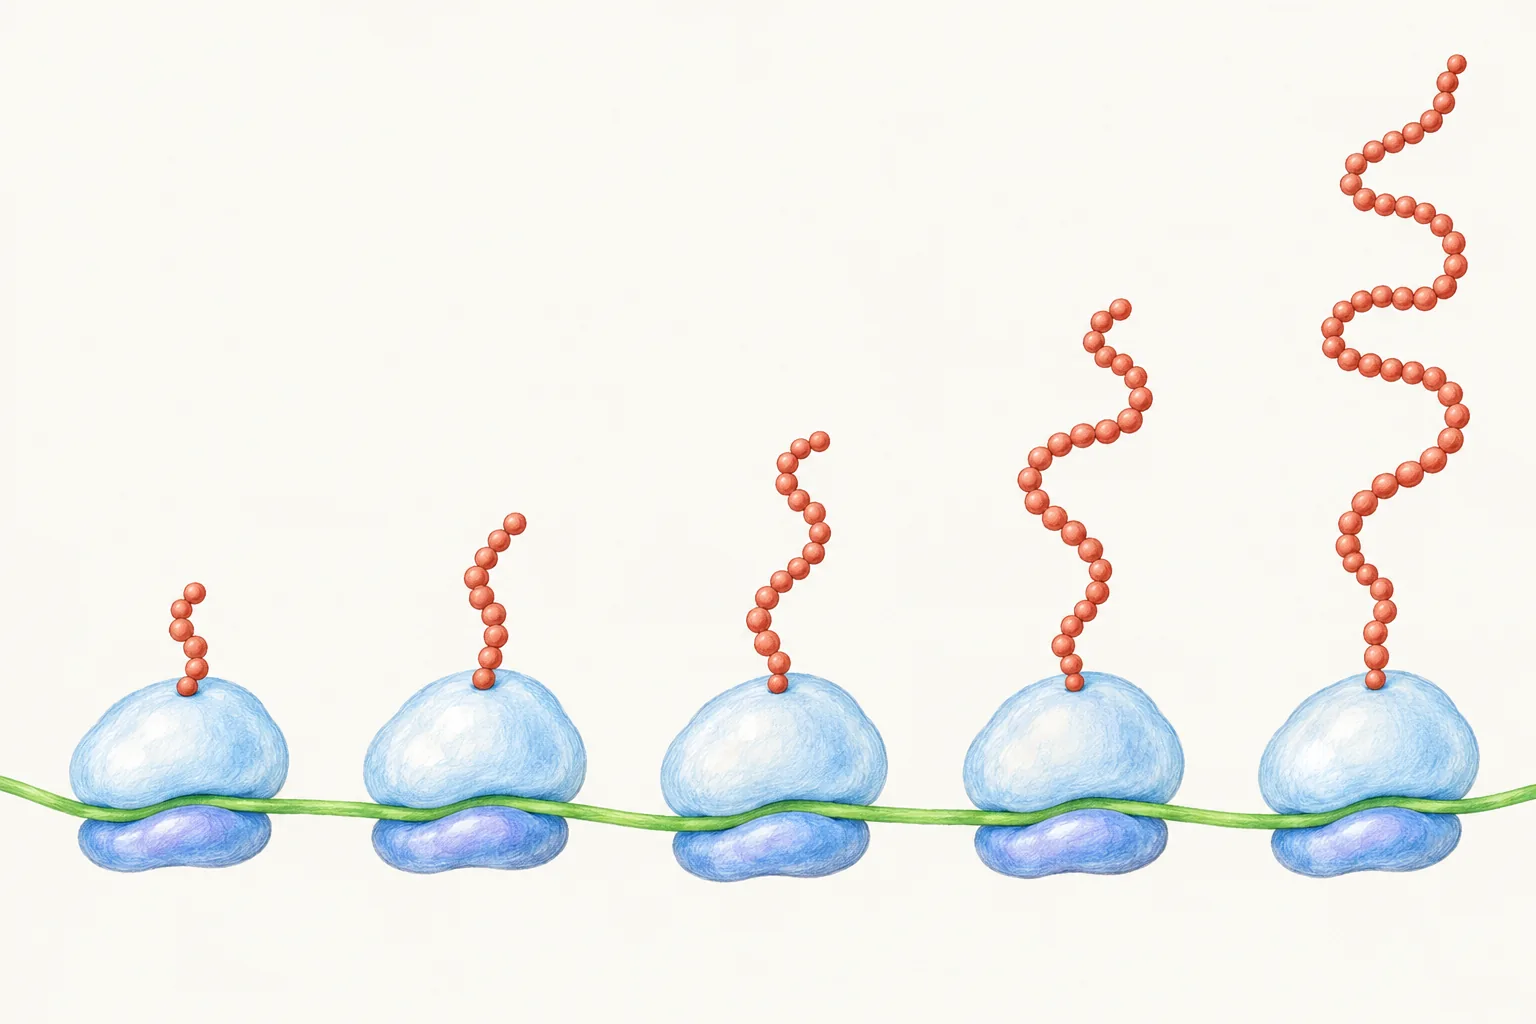
У бактерий и архей нет ядра, и ДНК лежит прямо в цитоплазме, в области нуклеоида. Поэтому транскрипция и трансляция у них сопряжены: рибосомы садятся на 5′-конец иРНК и начинают синтез белка, пока остальная часть молекулы ещё синтезируется на ДНК. Это впервые увидели в электронном микроскопе в 1970 году американские биологи Оскар Миллер, Барбара Хэмкало и Чарлз Томас: на снимках от нити ДНК кишечной палочки отходили растущие нити РНК, густо усаженные рибосомами, причём нити становились длиннее по мере удаления от начала гена [16]. Ген буквально «работал» на глазах.
У эукариот транскрипция и трансляция разделены в пространстве и во времени. ДНК находится в ядре, и там же синтезируется и созревает РНК; трансляция идёт в цитоплазме. Ядерная оболочка позволяет клетке «отредактировать» РНК до того, как её прочтёт рибосома: вырезать интроны, добавить защитные концевые участки, проверить качество. Это одна из причин, почему у эукариот возможна сложная регуляция работы генов.
Свои собственные матричные системы есть в митохондриях и пластидах. Они содержат кольцевую ДНК, собственные РНК-полимеразы и рибосомы, похожие на бактериальные, и синтезируют часть своих белков сами. У человека митохондриальная ДНК кодирует 13 белков дыхательной цепи и АТФ-синтазы, 22 тРНК и 2 рРНК. Это одно из доказательств происхождения этих органоидов от бактерий-симбионтов (подробнее — в статье «Эндосимбиоз и симбиогенез»).
| Признак | Прокариоты | Эукариоты |
|---|---|---|
| Где транскрипция | в цитоплазме (нуклеоид) | в ядре |
| Где трансляция | в цитоплазме, одновременно с транскрипцией | в цитоплазме и на шероховатой ЭПС, после выхода иРНК из ядра |
| Созревание иРНК | практически нет | «колпачок», хвост, вырезание интронов |
| Сколько белков на одной иРНК | часто несколько (одна иРНК на группу генов) | как правило, один |
| Рибосомы | 70S | 80S в цитоплазме, 70S в митохондриях и пластидах |
| Точки начала репликации | обычно одна на кольцевую хромосому | тысячи на каждой линейной хромосоме |
19. Сколько стоит и как быстро идёт матричный синтез
Все матричные реакции идут с затратой энергии. При репликации и транскрипции её поставляют сами мономеры: каждый нуклеотид поступает в виде трифосфата и, присоединяясь к цепи, отдаёт два концевых фосфата. При трансляции энергия расходуется трижды: на присоединение аминокислоты к тРНК (АТФ, расщепляемая до АМФ, — это эквивалент двух молекул АТФ), на доставку аминоацил-тРНК в рибосому (ГТФ) и на передвижение рибосомы по иРНК (ГТФ). Итого не меньше четырёх «макроэргических» фосфатов на одну пептидную связь. Белок из 300 аминокислот обходится клетке примерно в 1200 таких фосфатов — больше, чем даёт полное окисление 30 молекул глюкозы. У быстро растущей бактерии на синтез белка уходит большая часть всей энергии клетки [2] (подробнее об АТФ — в статье «АТФ и энергетика клетки»).
| Процесс | Скорость у бактерий | Скорость у эукариот | Частота ошибок |
|---|---|---|---|
| Репликация | около 1000 нуклеотидов в секунду | около 50 нуклеотидов в секунду | около 1 на 109–1010 |
| Транскрипция | около 40–80 нуклеотидов в секунду | около 20–70 нуклеотидов в секунду | около 1 на 104–105 |
| Трансляция | около 15–20 аминокислот в секунду | около 5–6 аминокислот в секунду | около 1 на 103–104 |
Эти скорости объясняют многое. Белок из 300 аминокислот бактериальная рибосома синтезирует примерно за 15–20 секунд, эукариотическая — примерно за минуту. Самый длинный ген человека — ген белка дистрофина, нарушения которого вызывают мышечную дистрофию Дюшенна, — занимает около 2,2 млн пар нуклеотидов, и его транскрипция длится около 16 часов. При этом готовая иРНК после вырезания интронов содержит лишь около 14 тысяч нуклеотидов.
Медленная трансляция компенсируется числом рибосом: на одной иРНК одновременно работают десятки рибосом, образуя полирибосому (полисому), и каждая строит свою копию белка. В клетке млекопитающего — около 10 миллионов рибосом.
20. Генные мутации глазами матричного синтеза
Ошибка репликации или неисправленное повреждение ДНК, закрепившееся в обеих цепях, становится генной мутацией — изменением последовательности нуклеотидов гена. Как она скажется на белке, зависит от того, что происходит с кодонами при транскрипции и трансляции.
| Мутация | Что меняется в иРНК | Последствие для белка |
|---|---|---|
| Замена нуклеотида без изменения аминокислоты (молчащая) | кодон ГАА → ГАГ | никакого: оба кодона кодируют глутаминовую кислоту — проявление вырожденности кода |
| Замена с изменением аминокислоты (миссенс) | ГАГ → ГУГ | одна аминокислота заменена другой; эффект от незаметного до тяжёлого (серповидноклеточная анемия) |
| Замена с появлением стоп-кодона (нонсенс) | УГГ → УГА | синтез обрывается, белок укорочен и обычно не работает |
| Вставка или выпадение одного-двух нуклеотидов | сдвиг рамки считывания | все кодоны после мутации прочитываются иначе; белок полностью искажён |
| Вставка или выпадение трёх нуклеотидов | один кодон добавлен или потерян | в белке на одну аминокислоту больше или меньше |
Сдвиг рамки считывания легко понять на примере фразы из трёхбуквенных слов: «КОТ БЫЛ СЫТ». Выпадение одной буквы в начале превращает её в бессмыслицу «ОТБ ЫЛС ЫТ…», хотя все остальные буквы на месте. Именно так в 1961 году Крик и его коллеги доказали, что код триплетный: вставка одного или двух нуклеотидов в ген бактериофага разрушала его, а три вставки рядом восстанавливали работу гена.
Пример выпадения трёх нуклеотидов — самая частая у европейцев мутация, вызывающая муковисцидоз: из белка-канала CFTR выпадает один остаток фенилаланина, и белок с одной недостающей аминокислотой неправильно сворачивается и не доходит до мембраны. Задачи на определение последствий мутаций — один из типов задач линии 27 ЕГЭ; они разобраны в статье «Задачи на биосинтез белка».
21. Матричный синтез в пробирке
Понимание матричных реакций дало биологии и медицине мощнейшие инструменты. Самый известный — полимеразная цепная реакция (ПЦР), придуманная в 1983 году американским биохимиком Кэри Мюллисом. Её идея — многократная репликация выбранного участка ДНК в пробирке. Смесь нагревают до 95 °C, и цепи ДНК расходятся; затем охлаждают, и к цепям присоединяются короткие искусственные затравки, ограничивающие нужный участок; затем ДНК-полимераза достраивает комплементарные цепи. Каждый цикл удваивает число копий, и за 30 циклов из одной молекулы получается около миллиарда.
Сначала полимеразу приходилось добавлять заново после каждого нагрева: при 95 °C обычные ферменты разрушаются. Решение нашлось в горячих источниках Йеллоустонского парка, где микробиолог Томас Брок нашёл и в 1969 году описал бактерию Thermus aquaticus, живущую при 70 °C. Её ДНК-полимераза (Taq-полимераза) выдерживает многократное нагревание, и с 1988 года ПЦР стала автоматической [17]. В 1993 году Мюллис получил Нобелевскую премию. ПЦР лежит в основе диагностики инфекций, генетических тестов, криминалистики, исследования древней ДНК.
На матричном синтезе основано и чтение ДНК — секвенирование. В методе Фредерика Сэнгера (1977) полимераза строит комплементарную цепь, а в смесь добавлены особые нуклеотиды, которые обрывают синтез; по длинам оборванных цепей определяют последовательность. Современные методы позволяют прочитать весь геном человека за сутки.
22. Яды и лекарства, поражающие матричный синтез
Матричные реакции так важны для клетки, что их нарушение смертельно, — и этим пользуются и живые организмы, и врачи.
- α-Аманитин — яд бледной поганки. Он прочно связывается с РНК-полимеразой эукариот, синтезирующей иРНК, и останавливает транскрипцию. Особенно страдает печень, куда яд попадает первым. Коварство отравления в том, что первые признаки появляются через 6–24 часа, когда яд уже прочно связан: клетки перестают синтезировать новые иРНК, а старые постепенно разрушаются.
- Рифампицин — антибиотик, блокирующий РНК-полимеразу бактерий, но не человека. Основное лекарство против туберкулёза.
- Антибиотики, действующие на рибосомы: тетрациклины мешают тРНК присоединиться к рибосоме, стрептомицин вызывает ошибки считывания кодонов, эритромицин закупоривает канал, по которому из рибосомы выходит растущая цепь, хлорамфеникол подавляет образование пептидной связи. Они поражают бактериальные рибосомы 70S и гораздо меньше — рибосомы 80S человека.
- Рицин из семян клещевины и дифтерийный токсин останавливают трансляцию в клетках человека: первый повреждает рРНК большой субъединицы, второй выводит из строя белок, передвигающий рибосому по иРНК.
- Противовирусные препараты — «фальшивые» нуклеотиды. Азидотимидин встраивается в ДНК, синтезируемую обратной транскриптазой ВИЧ, и обрывает цепь: у него нет 3′-гидроксила, к которому можно присоединить следующий нуклеотид. Ацикловир против вирусов герпеса активируется только ферментом вируса и обрывает вирусную ДНК. Ремдесивир подавляет РНК-репликазу коронавируса.
- Противоопухолевые препараты часто подавляют синтез ДНК в быстро делящихся клетках. Поэтому их побочные эффекты — поражение других быстро делящихся клеток: выпадение волос, повреждение слизистой кишечника, угнетение кроветворения.
Все эти вещества показывают, что матричный синтез у бактерий, вирусов и человека устроен в главном одинаково, но различается в деталях, — и именно различия в деталях позволяют создавать лекарства, поражающие возбудителя и щадящие больного.
23. мРНК-вакцины: трансляция по заказу
Самое новое применение матричного синтеза — вакцины на основе информационной РНК (их часто называют мРНК-вакцинами, от английского messenger RNA). В организм вводят не белок вируса и не ослабленный вирус, а молекулы иРНК, кодирующие один вирусный белок, — например, шиповидный белок коронавируса. иРНК упакована в крошечные жировые капли, которые сливаются с мембраной клеток. В цитоплазме рибосомы клеток человека транслируют её, как собственную иРНК, клетки выставляют вирусный белок на поверхность, и иммунная система учится его распознавать. Сама иРНК через несколько дней разрушается и в ядро не попадает.
Долгое время идея не работала: чужая РНК вызывала сильное воспаление и быстро разрушалась. В 2005 году венгерско-американский биохимик Каталин Карико и американский иммунолог Дрю Вайсман показали, что если заменить в синтетической РНК уридин на его природный вариант псевдоуридин, иммунная система почти перестаёт реагировать на такую РНК [18]; позже выяснилось, что такая РНК к тому же транслируется эффективнее. Через 15 лет эта работа позволила за несколько месяцев создать вакцины против COVID-19, а в 2023 году Карико и Вайсман получили Нобелевскую премию (подробнее — в статье «COVID-19 и SARS-CoV-2»).
24. Почему всё начинается с РНК
В матричных реакциях есть странность: ДНК хранит информацию, белки делают работу, но посредником между ними служит РНК, а рибосому, синтезирующую белок, «ведут» молекулы рРНК — именно они образуют пептидную связь. ДНК-полимеразе для начала синтеза нужна РНК-затравка, а строительные блоки ДНК — дезоксирибонуклеотиды — синтезируются из рибонуклеотидов.
Эти «следы» — главный довод в пользу гипотезы мира РНК: на ранних этапах жизни РНК была и носителем информации, и катализатором, способным копировать сам себя. Позже информация перешла к более устойчивой ДНК, а катализ — к более разнообразным белкам, но РНК осталась в центре всех матричных процессов (подробнее — в статье «Рибозимы и гипотеза мира РНК»).
25. Карта серии
Эта статья — обзор. Каждой теме раздела кодификатора о реализации наследственной информации посвящена отдельная статья.
- Матричный синтез и реализация наследственной информации — эта статья.
- Транскрипция — принципы комплементарности, антипараллельности и асимметричности, РНК-полимеразы, созревание РНК у эукариот.
- Трансляция — тРНК, рибосома, этапы и условия биосинтеза белка.
- Задачи на биосинтез белка — все типы задач линии 27 ЕГЭ с алгоритмами.
- Оперон — регуляция активности генов у прокариот, гипотеза Жакоба и Моно.
- Регуляция генов у эукариот и клеточный гомеостаз — регуляция обменных процессов в клетке.
- Бактериофаги и ретровирусы — строение простых и сложных вирусов, жизненные циклы.
- Вирусные болезни человека, животных и растений.
- ВИЧ и СПИД — медицинские и социальные проблемы.
- COVID-19 — коронавирус, болезнь, вакцины и последствия пандемии.
Темы раздела, которым уже посвящены статьи блога: «Генетический код и его свойства», «Геномы бактерий, архей и эукариот» (организация генома у прокариот и эукариот), «Кодирующие и регуляторные последовательности» и «Вирусы: строение, размножение, систематика».
26. Частые ошибки
- «Матрицей при трансляции служит ДНК». Матрица трансляции — иРНК; ДНК служит матрицей при репликации и транскрипции.
- «Транскрипция идёт на обеих цепях ДНК гена». Матрицей для РНК данного гена служит только одна цепь — матричная.
- «В РНК аденин комплементарен тимину». В РНК нет тимина; аденину комплементарен урацил.
- «Полимераза может удлинять цепь с любого конца». Только с 3′-конца: цепь растёт в направлении 5′ → 3′.
- «Матрица разрушается в ходе синтеза». Матрица не расходуется: на одном гене синтезируется много РНК, на одной иРНК — много белков.
- «Репликация идёт во время деления». Репликация идёт в синтетическом периоде интерфазы, до деления.
- «Синтез полисахаридов — тоже матричный». Матричным способом синтезируются только нуклеиновые кислоты и белки.
- «Белок может изменить свой ген». Информация от белка к нуклеиновой кислоте не передаётся — это главный запрет центральной догмы.
27. Интересные факты
- Если вытянуть ДНК одной клетки человека в нить, её длина составит около двух метров; ДНК всех клеток тела, сложенная в одну нить, протянулась бы до Солнца и обратно больше сотни раз.
- Статья Уотсона и Крика о двойной спирали заняла чуть больше одной журнальной страницы и не содержала собственных экспериментальных данных авторов.
- Мезельсон и Сталь провели свой знаменитый опыт, будучи молодыми сотрудниками: Мезельсону было 27 лет.
- Транскрипция самого длинного гена человека — гена дистрофина — длится около 16 часов.
- За 30 циклов ПЦР из одной молекулы ДНК получается около миллиарда копий.
- Около 8 % генома человека — остатки древних ретровирусов, когда-то заразивших наших предков.
- Термин «ген» на 44 года старше открытия двойной спирали.
- Крик признавался, что выбрал слово «догма», не зная его точного значения.
- Идея ПЦР пришла Кэри Мюллису весной 1983 года, когда он ночью вёл машину по горной дороге в Калифорнии.
- Лайнус Полинг, открывший «молекулярную болезнь», — единственный человек, получивший две Нобелевские премии единолично: по химии и премию мира.
- Розалинд Франклин в последние годы жизни изучала строение вирусов, в том числе вируса табачной мозаики, и её ученики продолжили эту работу.
- Теломеразу впервые обнаружили не у человека, а у инфузории тетрахимены: в её большом ядре тысячи мелких хромосом, а значит, и очень много теломер.
28. Частые вопросы
Чем матричный синтез отличается от обычной ферментативной реакции?
В обычной реакции фермент сам определяет, какие вещества и как соединятся. При матричном синтезе фермент (полимераза или рибосома) лишь соединяет мономеры, а порядок их соединения задаёт матрица. Поэтому один фермент может построить молекулу с любой последовательностью — ту, что записана в матрице.
Почему наследственную информацию хранит ДНК, а не РНК?
ДНК химически устойчивее: в дезоксирибозе нет гидроксильной группы при 2′-атоме углерода, которая делает РНК склонной к расщеплению. Двуцепочечная структура позволяет исправлять повреждения по второй цепи. Наконец, тимин вместо урацила позволяет распознавать повреждение: цитозин при случайной потере аминогруппы превращается в урацил, и в ДНК такой «чужой» урацил сразу выявляется и заменяется.
Если все клетки организма содержат одинаковую ДНК, почему они разные?
Потому что в разных клетках работают разные гены. В клетках-предшественниках эритроцитов транскрибируются гены гемоглобина, в клетках поджелудочной железы — гены инсулина и пищеварительных ферментов, в нейронах — гены белков синапсов. Регуляция работы генов разобрана в статьях «Оперон» и «Регуляция генов у эукариот и клеточный гомеостаз».
Сколько молекул белка можно получить с одной иРНК?
Много: иРНК не разрушается при трансляции, и по ней проходит рибосома за рибосомой. У бактерий иРНК живёт несколько минут, у эукариот — от минут до многих часов и даже дней, и за это время с неё синтезируются сотни и тысячи молекул белка.
Чем репликация отличается от транскрипции?
При репликации копируются обе цепи всей молекулы ДНК, продукт — ДНК, процесс идёт один раз за клеточный цикл. При транскрипции копируется только одна цепь отдельного гена, продукт — РНК, а процесс повторяется много раз и включается по потребности клетки.
Нарушают ли вирусы центральную догму?
Нет. Обратная транскрипция и репликация РНК — направления, которые Крик в 1970 году отнёс к «особым»; они не противоречат главному запрету — передаче информации от белка к нуклеиновым кислотам.
Что такое кодирующая и матричная цепь?
Матричная (транскрибируемая) цепь ДНК служит матрицей для РНК и комплементарна ей. Кодирующая (смысловая) цепь по последовательности совпадает с иРНК, только вместо урацила в ней тимин. В задачах ЕГЭ важно понимать, о какой цепи идёт речь в условии.
Почему ПЦР-тест на коронавирус включает обратную транскрипцию?
Геном коронавируса — РНК, а ДНК-полимераза ПЦР копирует только ДНК. Поэтому сначала обратная транскриптаза переписывает вирусную РНК в ДНК, а потом этот участок многократно копируется в ПЦР.
Почему хромосомы укорачиваются при делении, а у детей теломеры не короче, чем у родителей?
При репликации линейной ДНК конец отстающей цепи нельзя достроить, и теломеры в обычных клетках тела укорачиваются. Но в клетках, из которых образуются половые клетки, и в стволовых клетках работает теломераза, которая удлиняет теломеры по матрице своей собственной РНК. Поэтому зародыш получает хромосомы с полноценными теломерами.
Может ли мРНК-вакцина изменить гены человека?
Нет. иРНК вакцины находится в цитоплазме, где её транслируют рибосомы, и через несколько дней разрушается. Чтобы встроиться в ДНК, РНК должна быть переписана в ДНК обратной транскриптазой и попасть в ядро, а у вакцины нет ни того, ни другого.
Почему одна и та же мутация может быть безвредной и тяжёлой?
Всё зависит от того, где она произошла и что изменила. Замена нуклеотида в интроне или в межгенном участке обычно не влияет на белок; замена в третьем положении кодона часто не меняет аминокислоту; замена аминокислоты на поверхности белка, вдали от активного центра, может остаться незаметной. Но та же замена в активном центре фермента или появление стоп-кодона в начале гена выключают белок полностью.
Почему РНК-полимеразе не нужна затравка, а ДНК-полимеразе нужна?
РНК-полимераза способна начать цепь с первого нуклеотида и не проверяет свою работу так строго, как ДНК-полимераза. ДНК-полимераза присоединяет нуклеотид только к уже спаренному 3′-концу и сразу проверяет правильность пары; начать с нуля она не может. Это плата за высочайшую точность копирования ДНК.
29. ЕГЭ
Что нужно уметь. Называть реакции матричного синтеза, их матрицы, продукты и место протекания; объяснять принцип комплементарности; знать этапы реализации наследственной информации; использовать таблицу генетического кода; решать задачи на построение комплементарной цепи, определение последовательности иРНК, антикодонов тРНК и аминокислот [19].
Тема проверяется заданиями на выбор утверждений о матричных реакциях, на соответствие «процесс — характеристика», на последовательность этапов биосинтеза белка, а во второй части — задачами линии 27 и вопросами на объяснение («Почему матричный синтез обеспечивает точность передачи информации?»).
Разбор типичного задания
Задание: «Фрагмент матричной цепи ДНК: 3′-ТАЦГАААЦГ-5′. Определите последовательность иРНК и фрагмента полипептида». Решение: 1) по принципу комплементарности строим иРНК: 5′-АУГЦУУУГЦ-3′; 2) делим на кодоны: АУГ, ЦУУ, УГЦ; 3) по таблице генетического кода: мет — лей — цис. Ответ: иРНК 5′-АУГЦУУУГЦ-3′, полипептид мет-лей-цис.
Разбор задания с тРНК
Задание: «Антикодоны тРНК поступают к рибосоме в следующей последовательности: 3′-УАЦ-5′, 3′-ЦГА-5′, 3′-ААГ-5′. Определите последовательность иРНК, матричной цепи ДНК и фрагмента белка». Решение: 1) кодоны иРНК комплементарны антикодонам: АУГ, ГЦУ, УУЦ; иРНК 5′-АУГГЦУУУЦ-3′; 2) матричная цепь ДНК комплементарна иРНК: 3′-ТАЦЦГАААГ-5′ (заметьте: она совпадает с антикодонами, только вместо урацила — тимин); 3) по таблице кода: мет — ала — фен.
Как потерять балл. Пользоваться таблицей кода, подставляя триплеты ДНК, а не кодоны иРНК. Таблица генетического кода в ЕГЭ составлена для иРНК: в ней урацил, а не тимин.
30. Для олимпиад
Расчёт опыта Мезельсона — Сталя. После n делений в лёгкой среде из одной исходной тяжёлой молекулы получается 2n молекул, и ровно две из них гибридные (содержат по одной исходной тяжёлой цепи), а остальные лёгкие. Доля гибридной ДНК — 2 / 2n: после двух делений — 1/2, после трёх — 1/4, после четырёх — 1/8.
Сколько ошибок при репликации. Диплоидный геном человека — около 6,4 · 109 пар нуклеотидов. При частоте ошибок 10−10 на нуклеотид на одно деление приходится около 0,6 новой мутации; если бы корректуры не было (10−5), их было бы около 64 тысяч.
Время синтеза. Бактериальная хромосома 4,6 · 106 пар нуклеотидов копируется двумя вилками со скоростью около 1000 нуклеотидов в секунду: 4,6 · 106 / (2 · 1000) = 2300 с ≈ 38 мин. Но кишечная палочка в хорошей среде делится каждые 20 минут. Парадокс решается тем, что новая репликация начинается раньше, чем закончилась предыдущая: в быстро растущей клетке хромосома копируется сразу несколькими «поколениями» вилок.
Почему ДНК-полимераза не начинает цепь сама. Полимераза с корректурой проверяет, правильно ли спарен конец цепи, к которому она присоединяет нуклеотид. Начиная синтез с нуля, ей нечего проверять, поэтому начало поручено РНК-затравке, которую потом удаляют и заменяют ДНК. Неточная затравка не страшна: её всё равно вырежут.
31. Задания с разбором
Задание 1
Выберите три верных ответа. К реакциям матричного синтеза относятся: 1) репликация ДНК; 2) синтез гликогена; 3) транскрипция; 4) гликолиз; 5) трансляция; 6) синтез АТФ.
Ответ
1, 3, 5.
Задание 2
Установите соответствие между процессами и матрицами. Процессы: А) репликация; Б) транскрипция; В) трансляция; Г) обратная транскрипция. Матрицы: 1) ДНК; 2) иРНК; 3) РНК вируса.
Ответ
А1, Б1, В2, Г3.
Задание 3
Фрагмент цепи ДНК: 5′-АТГЦЦТАГГ-3′. Постройте комплементарную цепь ДНК и запишите её от 5′-конца.
Ответ
Комплементарная цепь, записанная под исходной: 3′-ТАЦГГАТЦЦ-5′. От 5′-конца: 5′-ЦЦТАГГЦАТ-3′.
Задание 4
В молекуле ДНК 22 % нуклеотидов с тимином. Определите процентное содержание нуклеотидов с аденином, гуанином и цитозином. Объясните.
Ответ
1) По принципу комплементарности А = Т = 22 %. 2) На Г и Ц приходится 100 − 44 = 56 %. 3) Г = Ц = 28 %.
Задание 5
Найдите ошибки в тексте. (1) Матричный синтез — синтез полимера по образцу молекулы-матрицы. (2) Матрицей при транскрипции служат обе цепи гена. (3) Новая цепь нуклеиновой кислоты растёт в направлении 5′ → 3′. (4) Матрица после синтеза разрушается. (5) В РНК аденину комплементарен урацил.
Ответ
(2) Матрицей служит только одна цепь гена — матричная. (4) Матрица не расходуется и используется многократно.
Задание 6
Выберите три верных ответа. Принцип комплементарности лежит в основе: 1) строения двойной спирали ДНК; 2) образования пептидной связи; 3) узнавания кодона антикодоном; 4) образования дисульфидных мостиков; 5) транскрипции; 6) гидролиза крахмала.
Ответ
1, 3, 5.
Задание 7
Установите последовательность событий при реализации наследственной информации у эукариот: А) выход иРНК из ядра; Б) созревание РНК (вырезание интронов); В) транскрипция; Г) соединение аминокислот на рибосоме; Д) формирование пространственной структуры белка.
Ответ
В, Б, А, Г, Д.
Задание 8
Матричная цепь ДНК: 3′-ТАЦТТТЦЦГ-5′. Определите последовательность иРНК и аминокислот (используйте таблицу генетического кода).
Ответ
1) иРНК: 5′-АУГАААГГЦ-3′. 2) Кодоны: АУГ, ААА, ГГЦ. 3) Полипептид: мет — лиз — гли.
Задание 9
Почему в опыте Мезельсона и Сталя после первого деления в лёгкой среде вся ДНК имела промежуточную плотность? Какую гипотезу репликации это опровергло?
Ответ
1) При полуконсервативной репликации каждая дочерняя молекула содержит одну старую (тяжёлую, 15N) и одну новую (лёгкую, 14N) цепь, поэтому её плотность промежуточная. 2) Это опровергло консервативную гипотезу: по ней образовались бы молекулы двух типов — целиком тяжёлые и целиком лёгкие, то есть две полосы.
Задание 10
Выберите три верных ответа. У прокариот: 1) транскрипция и трансляция идут одновременно; 2) транскрипция идёт в ядре; 3) иРНК не проходит созревания с вырезанием интронов; 4) рибосомы 70S; 5) трансляция идёт только на ЭПС; 6) репликация начинается в тысячах точек.
Ответ
1, 3, 4.
Задание 11
Объясните, почему изменения белков, возникшие при жизни организма, не наследуются. Ответ свяжите с центральной догмой молекулярной биологии.
Ответ
1) Согласно центральной догме информация передаётся от нуклеиновых кислот к белку, но не от белка к нуклеиновым кислотам. 2) Изменение белка не может изменить последовательность нуклеотидов гена. 3) Потомкам передаётся ДНК половых клеток, поэтому приобретённые изменения белков не наследуются.
Задание 12
Установите соответствие между характеристиками и процессами. Характеристики: А) продукт — РНК; Б) продукт — ДНК; В) копируется вся молекула ДНК; Г) копируется одна цепь отдельного гена; Д) идёт один раз за клеточный цикл; Е) фермент — РНК-полимераза. Процессы: 1) репликация; 2) транскрипция.
Ответ
А2, Б1, В1, Г2, Д1, Е2.
Задание 13
Какие преимущества даёт эукариотической клетке разделение транскрипции и трансляции ядерной оболочкой?
Ответ
1) РНК может пройти созревание до трансляции: вырезаются интроны, достраиваются защитные концевые участки. 2) В цитоплазму выходят только готовые, проверенные иРНК, а дефектные разрушаются. 3) Появляются дополнительные возможности регуляции работы генов — на уровне созревания и выхода иРНК из ядра.
Задание 14
Выберите три верных ответа. Обратная транскрипция: 1) синтез ДНК на матрице РНК; 2) характерна для ретровирусов; 3) идёт при делении всех клеток; 4) осуществляется ферментом обратной транскриптазой; 5) синтез белка на матрице ДНК; 6) является главным путём передачи информации в клетке.
Ответ
1, 2, 4.
Задание 15
Объясните, как замена одного нуклеотида в гене β-цепи гемоглобина приводит к серповидноклеточной анемии.
Ответ
1) Замена нуклеотида изменяет кодон иРНК (ГАГ → ГУГ). 2) В шестом положении β-цепи глутаминовая кислота заменяется на валин. 3) Изменяются свойства гемоглобина: при недостатке кислорода его молекулы слипаются в нити. 4) Эритроциты принимают серповидную форму, плохо проходят по капиллярам и быстро разрушаются — развивается малокровие.
Задание 16
Сколько нуклеотидов содержит участок иРНК, кодирующий полипептид из 150 аминокислот (без стоп-кодона)? Сколько нуклеотидов в соответствующем участке двуцепочечной ДНК? Сколько тРНК участвует в синтезе?
Ответ
1) иРНК: 150 · 3 = 450 нуклеотидов. 2) ДНК: 450 · 2 = 900 нуклеотидов (450 пар). 3) тРНК: 150 (каждая доставляет одну аминокислоту).
Задание 17
Выберите три верных ответа. Точность репликации обеспечивается: 1) принципом комплементарности; 2) корректирующей активностью ДНК-полимеразы; 3) исправлением неспаренных оснований после репликации; 4) расщеплением АТФ рибосомой; 5) работой лизосом; 6) обратной транскрипцией.
Ответ
1, 2, 3.
Задание 18
Почему ошибки транскрипции и трансляции менее опасны для организма, чем ошибки репликации?
Ответ
1) Ошибочная РНК или белок — одна из многих копий; остальные молекулы правильные. 2) Такие молекулы живут недолго и разрушаются. 3) Ошибка репликации закрепляется в ДНК, копируется при каждом делении и передаётся дочерним клеткам (а в половых клетках — потомкам) как мутация.
Задание 19 (олимпиадное)
Бактерии много поколений выращивали на среде с 15N, затем перенесли на среду с 14N. Какая доля молекул ДНК будет гибридной (15N/14N) после трёх делений? после пяти? Какие результаты получились бы после двух делений при консервативной и при дисперсной репликации?
Ответ
1) Из каждой исходной молекулы после n делений получается 2n молекул, из них две гибридные. После трёх делений — 2/8 = 1/4, после пяти — 2/32 = 1/16. 2) Консервативная: после двух делений — 1/4 тяжёлых и 3/4 лёгких, две полосы (тяжёлая и лёгкая), гибридной нет. 3) Дисперсная: одна полоса, в которой доля тяжёлого изотопа — 1/4 (плотность ближе к лёгкой), без отдельной лёгкой полосы.
Задание 20 (олимпиадное)
Ген бактерии длиной 1200 пар нуклеотидов транскрибируется со скоростью 50 нуклеотидов в секунду, а иРНК транслируется со скоростью 15 аминокислот в секунду. Через сколько секунд после начала транскрипции может закончиться синтез первого белка, если рибосома садится на иРНК сразу после синтеза первых 30 нуклеотидов и движется не быстрее РНК-полимеразы? Почему у эукариот такой расчёт невозможен?
Ответ
1) Транскрипция гена: 1200 / 50 = 24 с. 2) Рибосома проходит иРНК со скоростью 15 · 3 = 45 нуклеотидов в секунду, то есть медленнее полимеразы, и всё время отстаёт от неё. Она начинает через 30 / 50 = 0,6 с и проходит 1200 нуклеотидов за 1200 / 45 ≈ 26,7 с. 3) Синтез белка закончится примерно через 0,6 + 26,7 ≈ 27,3 с после начала транскрипции (на конце рибосома не обгоняет полимеразу: она заканчивает позже, чем та — в 24 с). 4) У эукариот транскрипция идёт в ядре, а трансляция — в цитоплазме, после созревания и выхода иРНК из ядра; процессы не сопряжены, и время определяется также созреванием и транспортом иРНК.
Литература
- Crick F. H. C. On protein synthesis // Symposia of the Society for Experimental Biology. 1958. Vol. 12. P. 138–163.
- Alberts B., Heald R., Johnson A., Morgan D., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 7th ed. New York: W. W. Norton, 2022.
- Urry L. A., Cain M. L., Wasserman S. A., Minorsky P. V., Orr R. B. Campbell Biology. 12th ed. Pearson, 2020.
- Chargaff E. Chemical specificity of nucleic acids and mechanism of their enzymatic degradation // Experientia. 1950. Vol. 6. P. 201–209.
- Watson J. D., Crick F. H. C. Molecular structure of nucleic acids: a structure for deoxyribose nucleic acid // Nature. 1953. Vol. 171. P. 737–738.
- Meselson M., Stahl F. W. The replication of DNA in Escherichia coli // Proceedings of the National Academy of Sciences of the USA. 1958. Vol. 44. P. 671–682.
- Kunkel T. A. DNA replication fidelity // Journal of Biological Chemistry. 2004. Vol. 279. P. 16895–16898.
- Lindahl T. Instability and decay of the primary structure of DNA // Nature. 1993. Vol. 362. P. 709–715.
- Greider C. W., Blackburn E. H. Identification of a specific telomere terminal transferase activity in Tetrahymena extracts // Cell. 1985. Vol. 43. P. 405–413.
- Crick F. Central dogma of molecular biology // Nature. 1970. Vol. 227. P. 561–563.
- Temin H. M., Mizutani S. RNA-dependent DNA polymerase in virions of Rous sarcoma virus // Nature. 1970. Vol. 226. P. 1211–1213.
- Baltimore D. RNA-dependent DNA polymerase in virions of RNA tumour viruses // Nature. 1970. Vol. 226. P. 1209–1211.
- Beadle G. W., Tatum E. L. Genetic control of biochemical reactions in Neurospora // Proceedings of the National Academy of Sciences of the USA. 1941. Vol. 27. P. 499–506.
- Pauling L., Itano H. A., Singer S. J., Wells I. C. Sickle cell anemia, a molecular disease // Science. 1949. Vol. 110. P. 543–548.
- Ingram V. M. Gene mutations in human haemoglobin: the chemical difference between normal and sickle cell haemoglobin // Nature. 1957. Vol. 180. P. 326–328.
- Miller O. L., Hamkalo B. A., Thomas C. A. Visualization of bacterial genes in action // Science. 1970. Vol. 169. P. 392–395.
- Saiki R. K., Gelfand D. H., Stoffel S. et al. Primer-directed enzymatic amplification of DNA with a thermostable DNA polymerase // Science. 1988. Vol. 239. P. 487–491.
- Karikó K., Buckstein M., Ni H., Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA // Immunity. 2005. Vol. 23. P. 165–175.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…