
В 1932 году голландский патолог Й. Помпе вскрыл тело семимесячной девочки, умершей от сердечной недостаточности. Сердце ребёнка было огромным, и под микроскопом оказалось, что клетки сердечной мышцы, печени, мышц и почек забиты гликогеном. Почему клетки не расщепляли свой запасной углевод, оставалось загадкой тридцать лет. В 1963 году бельгийский биохимик Г. Эр, коллега К. де Дюва, нашёл ответ: у таких детей отсутствует один фермент — кислая α-глюкозидаза, работающая только в лизосомах [1]. Гликоген, попадающий в лизосомы, там не расщеплялся и накапливался, пока лизосомы не раздували клетку. Так впервые причину болезни связали с нарушением работы лизосом. Сегодня известно около семидесяти таких лизосомных болезней накопления.
Лизосомы, эндоплазматическая сеть и аппарат Гольджи — одномембранные органоиды, которые работают как единая система. Эта статья продолжает серию о строении клетки (начало — «Строение клетки: общий план»). Речь в ней пойдёт о том, как эти органоиды устроены и как они работают вместе.
- 1. Одномембранные органоиды как система
- 2. Эндоплазматическая сеть
- 3. Шероховатая ЭПС и синтез растворимых белков
- 4. Синтез клеточных мембран
- 5. Гладкая ЭПС
- 6. Аппарат Гольджи и его секреторная функция
- 7. Пузырьковый транспорт
- 8. Лизосомы
- 9. Лизосомные болезни накопления
- 10. Аутофагия: клетка переваривает себя
- 11. Пероксисомы
- 12. Вакуоли — тоже одномембранные органоиды
- 13. ЭПС и болезни
- 14. Откуда взялась эндомембранная система
- 15. Взаимосвязь одномембранных органоидов
- 16. Частые ошибки
- 17. Интересные факты
- 18. Частые вопросы
- 19. ЕГЭ
- 20. Для олимпиад
- 21. Задания с разбором
- Литература
1. Одномембранные органоиды как система
Одномембранными называют органоиды, окружённые одной мембраной: эндоплазматическую сеть (ЭПС), аппарат Гольджи, лизосомы, эндосомы, вакуоли, пероксисомы, транспортные и секреторные пузырьки. Все они, кроме пероксисом, связаны между собой и с плазмалеммой либо прямым переходом мембран, либо потоком мембранных пузырьков и вместе образуют эндомембранную систему [2].
Основной поток в этой системе идёт от ЭПС через аппарат Гольджи к лизосомам, к плазмалемме и наружу из клетки. Встречный поток — от плазмалеммы внутрь клетки при эндоцитозе — идёт через эндосомы к лизосомам. Пузырьки, возвращающие мембрану и «заблудившиеся» белки назад, движутся в обратном направлении. Поэтому, говоря о любом одномембранном органоиде, нужно помнить, откуда в него приходят вещества и куда уходят.
- Шероховатая ЭПСсинтез белков на экспорт, мембранных белков, ферментов лизосом
- Аппарат Гольджидоработка, сортировка, упаковка
- Секреторные пузырькиэкзоцитоз: белок выходит из клетки
- Плазмалеммаполучает новые белки и липиды
- Эндосомы и лизосомыполучают ферменты из аппарата Гольджи
- Плазмалеммаэндоцитоз: участок мембраны с грузом уходит внутрь
- Ранние эндосомысортировка: рецепторы возвращаются к поверхности
- Поздние эндосомыполучают ферменты, закисляются
- Лизосомыпереваривание поглощённого
- Обратный потокпузырьки возвращают белки из Гольджи в ЭПС
| Органоид | Строение | Главные функции |
|---|---|---|
| Шероховатая (гранулярная) ЭПС | уплощённые цистерны, мембрана покрыта рибосомами | синтез секретируемых белков, мембранных белков и белков лизосом; их сворачивание и первичная модификация |
| Гладкая (агранулярная) ЭПС | сеть ветвящихся трубочек без рибосом | синтез липидов и стероидов, обезвреживание ядов, запас ионов кальция, у печени — образование глюкозы из гликогена |
| Аппарат Гольджи | стопки уплощённых цистерн, пузырьки | доработка белков и липидов, сортировка, упаковка в пузырьки, секреция, образование лизосом; у растений — синтез полисахаридов клеточной стенки |
| Лизосомы | пузырьки 0,1–1 мкм с гидролазами, кислая среда | внутриклеточное переваривание поглощённых веществ и собственных отслуживших структур |
| Эндосомы | пузырьки и трубочки у поверхности и в глубине клетки | сортировка поглощённого при эндоцитозе: что вернуть к поверхности, что отправить в лизосомы |
| Пероксисомы | пузырьки с оксидазами и каталазой | окисление жирных кислот, обезвреживание пероксида водорода и спирта |
| Вакуоли (растения, грибы) | крупная полость, окружённая тонопластом | запас воды и веществ, тургор, переваривание (подробно — в статье «Клеточная стенка, вакуоль и тургор») |
2. Эндоплазматическая сеть
Эндоплазматическую сеть увидели на первой электронной фотографии целой клетки, полученной в 1945 году К. Портером, А. Клодом и Э. Фуллам: в тонкой краевой части клетки куриного зародыша была видна кружевная сеть канальцев и пузырьков [3]. Поскольку сеть лежала во внутренней, «эндоплазматической» части цитоплазмы, Портер позже и назвал её эндоплазматической сетью (ретикулумом). На срезах тканей она выглядела как множество параллельных мембранных цистерн, часто усеянных мелкими гранулами — будущими рибосомами.
ЭПС — самый крупный мембранный органоид большинства эукариотических клеток. Её мембраны составляют больше половины всех мембран клетки, а её полость (люмен) — около десятой части объёма клетки [2]. Это одна непрерывная система: все цистерны и трубочки ЭПС сообщаются между собой, а её полость переходит в пространство между двумя мембранами ядерной оболочки. Наружная мембрана ядерной оболочки — по сути, участок ЭПС, и на ней тоже сидят рибосомы.
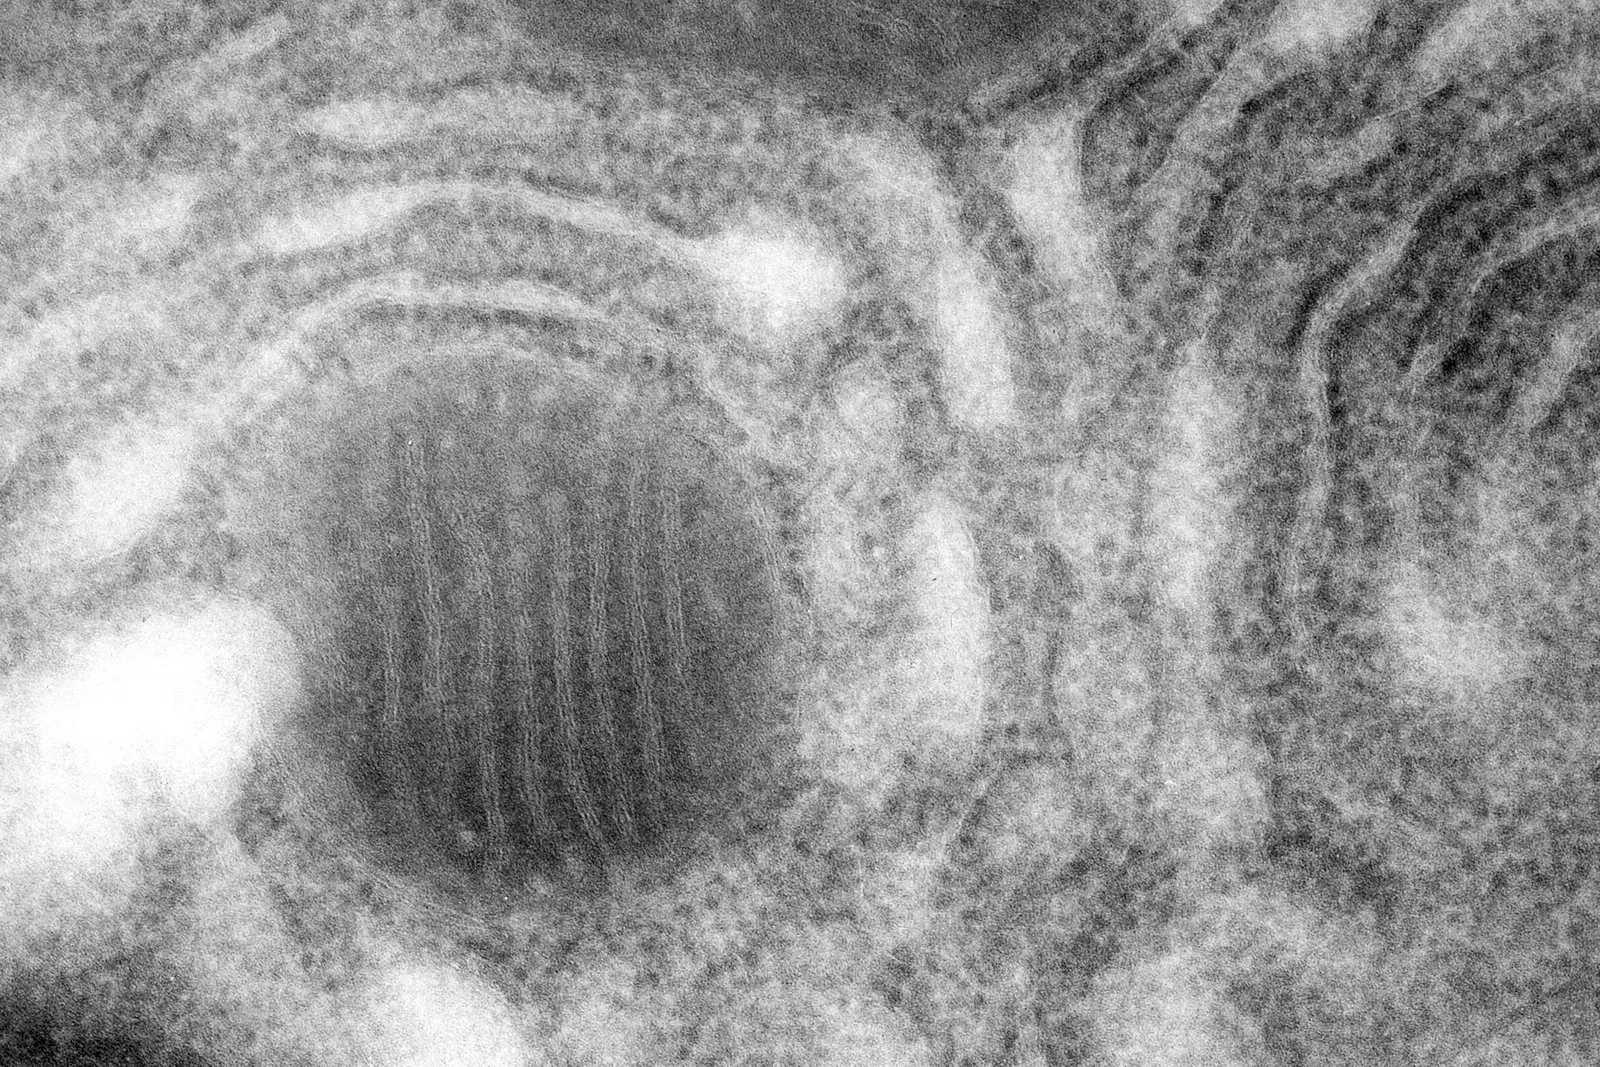
Различают два вида ЭПС. Шероховатая, или гранулярная, ЭПС образована уплощёнными цистернами, наружная (обращённая к цитозолю) поверхность которых покрыта рибосомами — отсюда её «шероховатость» на электронных фотографиях. Гладкая, или агранулярная, ЭПС образована сетью тонких ветвящихся трубочек без рибосом. Это части одной системы: гладкая ЭПС непосредственно продолжается из шероховатой. Соотношение двух видов в разных клетках разное и зависит от их работы [2, 4].
ЭПС не застывшая структура. Её трубочки постоянно растут, ветвятся и сливаются, вытягиваясь вдоль микротрубочек; в живой клетке, окрашенной светящейся меткой, сеть ЭПС видна как непрерывно колеблющееся кружево. При делении клетки ЭПС не разрушается, а распределяется между дочерними клетками.
3. Шероховатая ЭПС и синтез растворимых белков
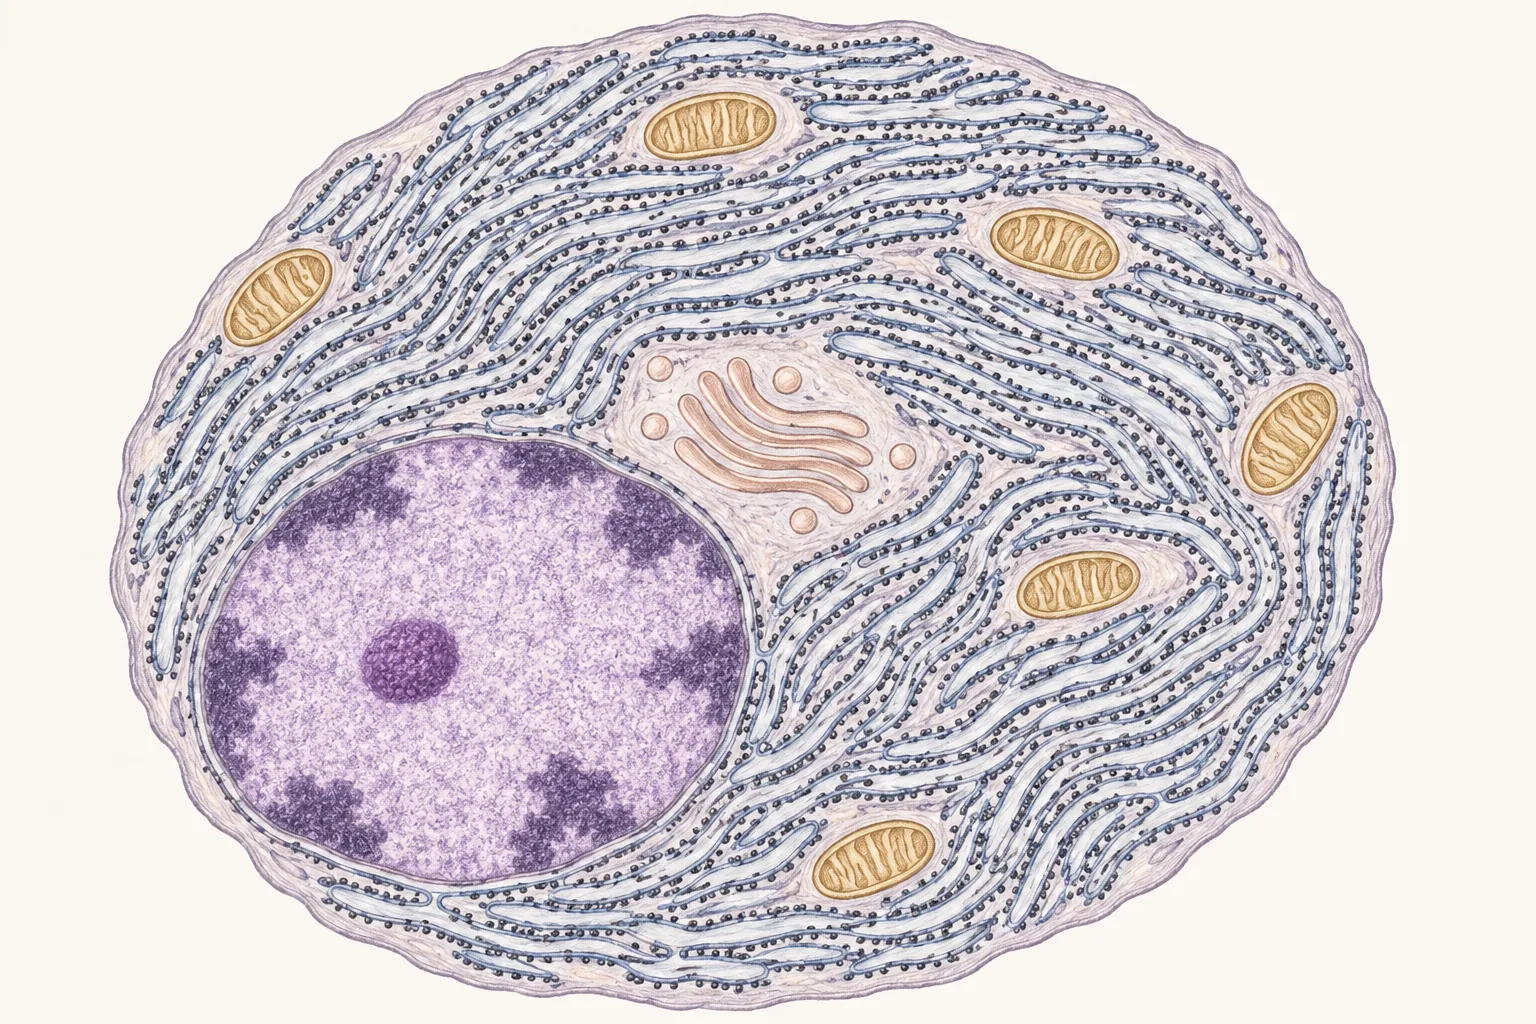
Шероховатая ЭПС — место синтеза белков, которые клетка выделяет наружу (растворимых секреторных белков), белков мембран эндомембранной системы и плазмалеммы и ферментов лизосом. Особенно развита она в клетках, выделяющих много белка: в клетках поджелудочной железы, плазматических клетках, клетках печени, выделяющих белки плазмы крови, в фибробластах, синтезирующих коллаген [2].
Как рибосома находит ЭПС
Все рибосомы клетки одинаковы, и синтез любого белка начинается на свободной рибосоме в цитозоле. Если белок предназначен для секреции, первые 15–30 аминокислот его цепи образуют сигнальную последовательность — участок с гидрофобными аминокислотами. Как только он выходит из рибосомы, его узнаёт частица, распознающая сигнал (её открыли П. Уолтер и Г. Блобель в 1981 году [5]). Частица связывается с сигналом и с рибосомой и приостанавливает синтез. Затем она связывается со своим рецептором на мембране ЭПС и передаёт рибосому белковому каналу — транслокону. Синтез возобновляется, и растущая цепь проходит через канал прямо в полость ЭПС. Сигнальный участок отрезается ферментом в полости ЭПС, и в цитозоль этот белок больше не попадает [6].
Пауза в синтезе нужна для того, чтобы белок не успел свернуться в цитозоле: свёрнутая молекула через узкий канал транслокона не пройдёт. Поэтому белки в ЭПС входят «по ходу синтеза», в виде ещё не свёрнутой цепи. Когда синтез заканчивается, рибосома отделяется от мембраны и возвращается в цитозоль, где может начать синтез уже другого белка.
Как открыли сигнальную последовательность
Первый намёк на сигнальную последовательность получил в 1972 году аргентинский по происхождению иммунолог С. Мильштейн, работавший в Кембридже. Он изучал лёгкие цепи антител, которые синтезируют опухолевые плазматические клетки. Если мРНК этих цепей переводили в белок в пробирке, в смеси без мембран, получалась цепь чуть длиннее настоящей — с «лишним» участком из двух десятков аминокислот на конце, с которого начинается синтез. Если же в пробирку добавляли мелкие пузырьки ЭПС (микросомы), цепь получалась нормальной длины [7]. Мильштейн предположил, что лишний участок — предшественник, который отрезается при прохождении в ЭПС.
Г. Блобель довёл эти опыты до конца. В бесклеточной системе он показал, что белок с лишним участком попадает внутрь микросом и защищён ими от разрушения ферментами, добавленными снаружи, а белок, синтез которого начинался без микросом и завершался в их присутствии, внутрь уже не проникал [6]. Значит, белок входит в ЭПС только по ходу синтеза, и вход направляет участок в начале цепи. Так появилась сигнальная гипотеза, за которую Блобель получил Нобелевскую премию 1999 года. Мильштейн получил Нобелевскую премию раньше, в 1984 году, — за другое открытие: метод получения моноклональных антител.
Что происходит с белком в полости ЭПС
Полость ЭПС — особая среда для сворачивания белков.
- Сворачивание с помощью шаперонов. Белки-шапероны полости ЭПС связываются с несвёрнутыми участками цепи и не дают им слипаться друг с другом.
- Дисульфидные мостики. В окислительной среде полости ЭПС особый фермент помогает образоваться дисульфидным связям между остатками цистеина. Эти связи скрепляют белки, которым предстоит работать в «суровых» условиях вне клетки, — например, антитела и пищеварительные ферменты.
- Гликозилирование. К большинству белков, поступивших в ЭПС, сразу присоединяется заранее собранный блок из 14 остатков сахаров. Дальше в ЭПС и аппарате Гольджи этот блок подрезается и достраивается.
- Сборка из субъединиц. Многие белки состоят из нескольких цепей: например, антитело — из двух тяжёлых и двух лёгких. Цепи соединяются в ЭПС.
Контроль качества
ЭПС не выпускает неправильно свёрнутые белки. Пока белок не принял правильную форму, шапероны удерживают его, давая новые попытки свернуться. Если белок так и не свернулся, его выводят обратно в цитозоль через особый канал и разрушают в протеасомах. Именно так погибает белок CFTR с самой частой мутацией, вызывающей муковисцидоз: он мог бы немного работать, но ЭПС бракует его и не пропускает к плазмалемме (подробнее — в статье «Транспорт веществ через мембрану»).
Если неправильно свёрнутых белков в ЭПС становится слишком много, клетка включает особую программу — ответ на несвёрнутые белки. Датчики в мембране ЭПС передают сигнал в ядро, и клетка синтезирует больше шаперонов, расширяет ЭПС и временно сокращает синтез новых белков. Первый такой датчик описали в 1993 году американцы Дж. Кокс, К. Шаму и П. Уолтер на дрожжах [8]. Если перегрузка не проходит, клетка запускает собственную гибель. Хроническая перегрузка ЭПС важна, например, для β-клеток поджелудочной железы, синтезирующих огромное количество инсулина: при диабете второго типа они работают с перегрузкой и постепенно гибнут.
Плазматическая клетка — фабрика антител. Когда B-лимфоцит превращается в плазматическую клетку, объём её шероховатой ЭПС увеличивается в несколько раз, и она начинает выделять до нескольких тысяч молекул антител в секунду. Для этого клетка заранее включает ответ на несвёрнутые белки — ещё до того, как белков становится слишком много.
4. Синтез клеточных мембран
ЭПС — главная «мастерская» мембран клетки. Здесь синтезируются почти все фосфолипиды и холестерин, отсюда новая мембрана расходится по всем органоидам эндомембранной системы и к плазмалемме [2].
Липиды. Ферменты синтеза фосфолипидов встроены в мембрану ЭПС, и их активные центры обращены к цитозолю. Из жирных кислот и глицерофосфата, находящихся в цитозоле, они собирают молекулы фосфолипидов и сразу встраивают их в наружный (цитоплазматический) слой мембраны ЭПС. Если бы липиды оставались только в этом слое, он рос бы быстрее внутреннего, и мембрана изгибалась бы. Поэтому в мембране ЭПС работают белки-скрамблазы, которые быстро и без затраты энергии перебрасывают часть новых липидов во внутренний слой. Асимметрию слоёв, характерную для плазмалеммы, клетка создаёт позже — в аппарате Гольджи и в самой плазмалемме, где работают флиппазы.
Белки мембран. Мембранные белки синтезируются на шероховатой ЭПС так же, как секреторные, но в их цепи, кроме сигнального участка, есть один или несколько гидрофобных участков из 20–25 аминокислот. Когда такой участок проходит через канал транслокона, канал раскрывается вбок и выпускает его прямо в липидный слой. Участок остаётся в мембране в виде α-спирали, пронизывающей её. Чередуя участки, которые проходят в полость, и участки, которые встраиваются в мембрану, клетка задаёт, сколько раз белок пересечёт мембрану и какой стороной будет обращён к полости. Эта ориентация сохраняется на всём пути белка: сторона, обращённая в полость ЭПС, после встраивания пузырька в плазмалемму окажется снаружи клетки.
Распределение мембран. Новые мембраны в составе транспортных пузырьков уходят из ЭПС в аппарат Гольджи, а оттуда — к лизосомам, эндосомам, плазмалемме. Митохондрии и пероксисомы пузырьков из ЭПС не получают: липиды к ним переходят в местах прямого контакта мембран с помощью белков-переносчиков липидов. Так ЭПС снабжает мембранами всю клетку.
Как потерять балл. Написать, что мембраны органоидов образуются заново из отдельных молекул или что каждый органоид сам синтезирует свою мембрану. Новые мембраны эндомембранной системы образуются в ЭПС и распределяются пузырьками; органоид растёт, получая готовые участки мембраны.
5. Гладкая ЭПС
Гладкая ЭПС — сеть тонких трубочек без рибосом. В большинстве клеток её немного, но в некоторых она занимает большую часть цитоплазмы. Её функции разнообразны [2, 4].
Синтез липидов и стероидов. В гладкой ЭПС синтезируются холестерин и из него — стероидные гормоны. Поэтому гладкая ЭПС сильно развита в клетках коры надпочечников (кортизол, альдостерон), в клетках Лейдига семенников (тестостерон), в клетках жёлтого тела яичника (прогестерон). В клетках кишечника в гладкой ЭПС из всосавшихся жирных кислот вновь собираются жиры, которые затем выводятся в лимфу. В клетках сальных желёз здесь образуется кожное сало.
Обезвреживание ядов. В клетках печени гладкая ЭПС содержит ферменты семейства цитохромов P450. Они присоединяют к жирорастворимым веществам — лекарствам, ядам, продуктам обмена — гидроксильные группы, и эти вещества становятся растворимыми в воде и могут быть выведены с мочой или желчью. Если человек долго принимает некоторые снотворные (барбитураты), гладкая ЭПС его клеток печени разрастается в несколько раз: в 1966 году американские цитологи А. Джонс и Д. Фосетт показали это на хомяках, получавших фенобарбитал [9]. Ферментов становится больше, лекарство быстрее разрушается и действует слабее, — так развивается привыкание. Поэтому при одновременном приёме нескольких лекарств одно из них может ускорить или замедлить разрушение другого.
У системы обезвреживания есть и обратная сторона. Присоединяя к молекуле кислород, ферменты гладкой ЭПС иногда превращают безвредное вещество в опасное. Бензпирен — вещество табачного дыма и копоти — сам по себе малоактивен, но в клетках ферменты цитохрома P450 превращают его в соединение, которое прочно связывается с ДНК и вызывает мутации. Так курение и вдыхание продуктов горения повышают риск рака лёгких. Похожим образом при передозировке парацетамола в печени образуется токсичный продукт, повреждающий гепатоциты.
Грейпфрутовый сок и лекарства. Вещества грейпфрута подавляют один из ферментов цитохрома P450 в клетках кишечника. В результате некоторые лекарства, принятые с грейпфрутовым соком, почти не разрушаются при всасывании, и их концентрация в крови становится в несколько раз выше расчётной. Поэтому в инструкциях к ряду лекарств прямо указано, что их нельзя запивать грейпфрутовым соком.
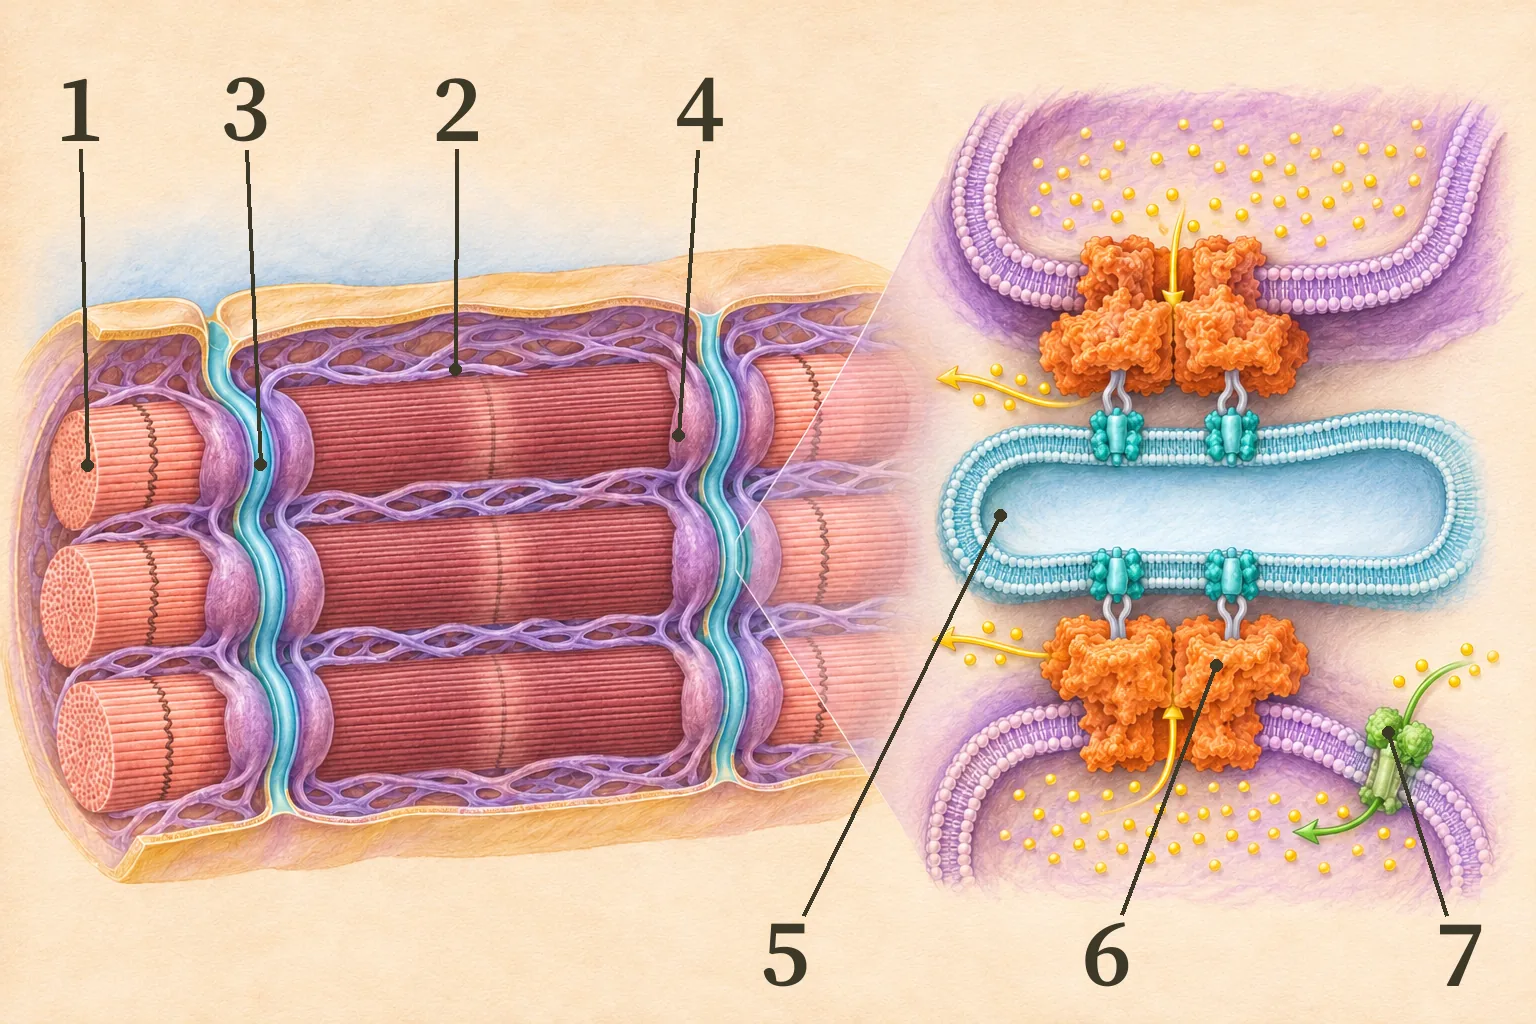
Запас кальция. Насосы мембраны ЭПС закачивают ионы кальция в её полость, и там их концентрация в тысячи раз выше, чем в цитозоле. По сигналу каналы ЭПС открываются, кальций выходит в цитозоль и запускает процессы — от секреции до сокращения. Особенно развита эта функция в мышечных волокнах, где специализированная гладкая ЭПС — саркоплазматическая сеть — оплетает каждую миофибриллу и выпускает кальций при каждом нервном импульсе (подробно — в статьях «Цитоплазма и немембранные органоиды» и «Мышечные ткани»).
Глюкоза из гликогена. В клетках печени фермент, отщепляющий фосфат от глюкозо-6-фосфата, находится в мембране ЭПС. Только после этого глюкоза может выйти в кровь. Поэтому печень может пополнять запас глюкозы в крови, а мышцы, у которых этого фермента нет, используют свой гликоген только для себя.
ЭПС в разных клетках
Объём и вид ЭПС зависят от работы клетки, и опытный гистолог по одной электронной фотографии ЭПС может догадаться, чем занята клетка.
- Нейроны. В телах нервных клеток при окраске основными красителями видны тёмные зёрна — тельца Ниссля, описанные немецким невропатологом Ф. Нисслем в конце XIX века. Электронный микроскоп показал, что это стопки цистерн шероховатой ЭПС с множеством рибосом: нейрон синтезирует огромное количество белков для своих отростков.
- Гепатоциты имеют обильные и шероховатую ЭПС (белки плазмы крови — альбумин, факторы свёртывания), и гладкую ЭПС (обезвреживание, синтез холестерина и липопротеинов).
- Мышечные волокна — особую гладкую ЭПС, саркоплазматическую сеть, оплетающую каждую миофибриллу.
- Клетки, синтезирующие стероиды (кора надпочечников, клетки Лейдига), — гладкую ЭПС, занимающую большую часть цитоплазмы.
- Растительные клетки. ЭПС проходит через плазмодесмы из клетки в клетку в виде тонкой трубочки и объединяет ЭПС соседних клеток. В семенах злаков и бобовых в ЭПС синтезируются запасные белки (например, белки клейковины пшеницы), которые откладываются в особых белковых тельцах и вакуолях. Из мембраны ЭПС отпочковываются масляные тельца семян подсолнечника и других масличных растений.
6. Аппарат Гольджи и его секреторная функция
Аппарат Гольджи открыл в 1898 году итальянский гистолог К. Гольджи, импрегнируя нервные клетки серебром. Полвека спорили, существует ли он на самом деле, пока электронный микроскоп не показал стопки уплощённых цистерн. Подробная история этого спора и строение органоида изложены в статье «Аппарат Гольджи: строение и функции»; здесь — то, что нужно знать о его месте в системе одномембранных органоидов.
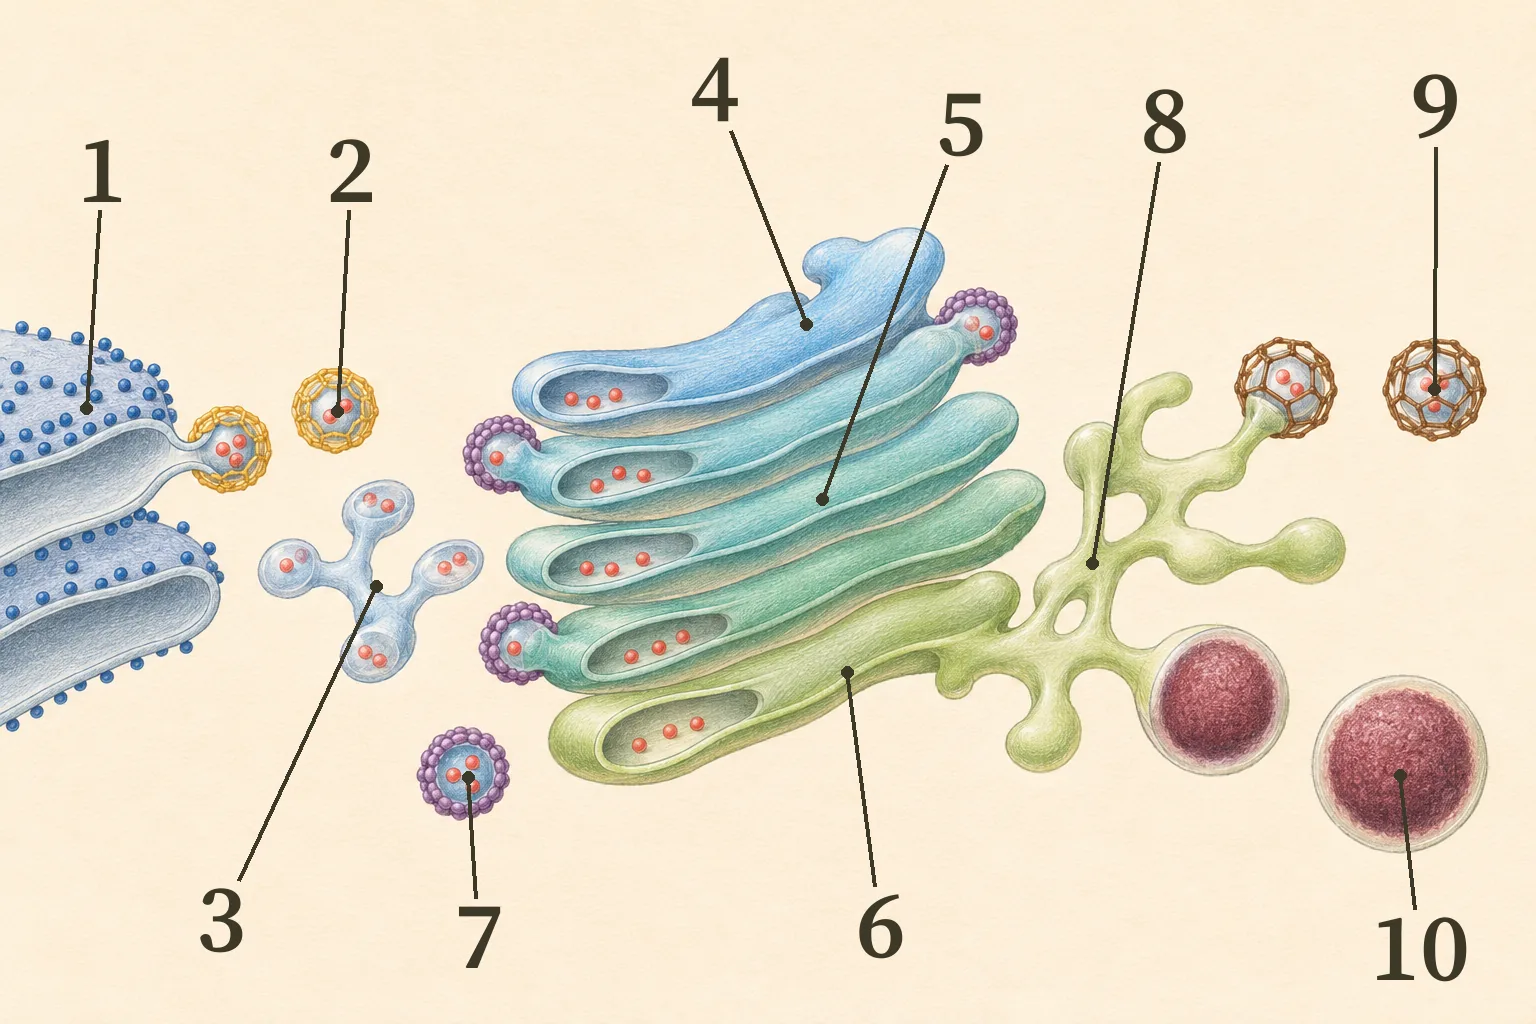
Аппарат Гольджи состоит из стопок (диктиосом), в каждой из которых 4–8 уплощённых изогнутых цистерн, и из окружающих их пузырьков. У стопки две стороны. Цис-сторона обращена к ЭПС и принимает пузырьки из неё, транс-сторона обращена к плазмалемме и отдаёт пузырьки дальше. Между ними лежат средние цистерны. Белки и липиды проходят через стопку от цис- к транс-стороне, и в каждой цистерне их обрабатывают свои ферменты [2].
Функции аппарата Гольджи:
- Доработка белков. Углеводные цепи, присоединённые в ЭПС, подрезаются и достраиваются; к некоторым белкам присоединяются сульфатные группы. Многие белки-предшественники разрезаются на активные части: так из проинсулина образуется инсулин — уже в созревающих секреторных гранулах, отшнуровавшихся от аппарата Гольджи.
- Синтез полисахаридов. В аппарате Гольджи растительных клеток синтезируются полисахариды клеточной стенки — пектины и гемицеллюлозы (сама целлюлоза синтезируется на плазмалемме). В клетках животных — компоненты межклеточного вещества и слизи.
- Сортировка. В транс-сети Гольджи белки сортируются по назначению: в лизосомы, в секреторные гранулы, к плазмалемме.
- Секреция. Пузырьки с секретом отшнуровываются от транс-стороны и движутся к поверхности. У одних клеток они сливаются с плазмалеммой постоянно, у других — накапливаются в виде секреторных гранул и выделяются по сигналу.
- Образование лизосом. Ферменты лизосом получают в аппарате Гольджи метку маннозо-6-фосфат, по которой их узнают и отправляют в лизосомы (раздел 8).
- Образование клеточной пластинки при делении растительной клетки: пузырьки аппарата Гольджи с полисахаридами сливаются в экваторе клетки и образуют новую стенку.
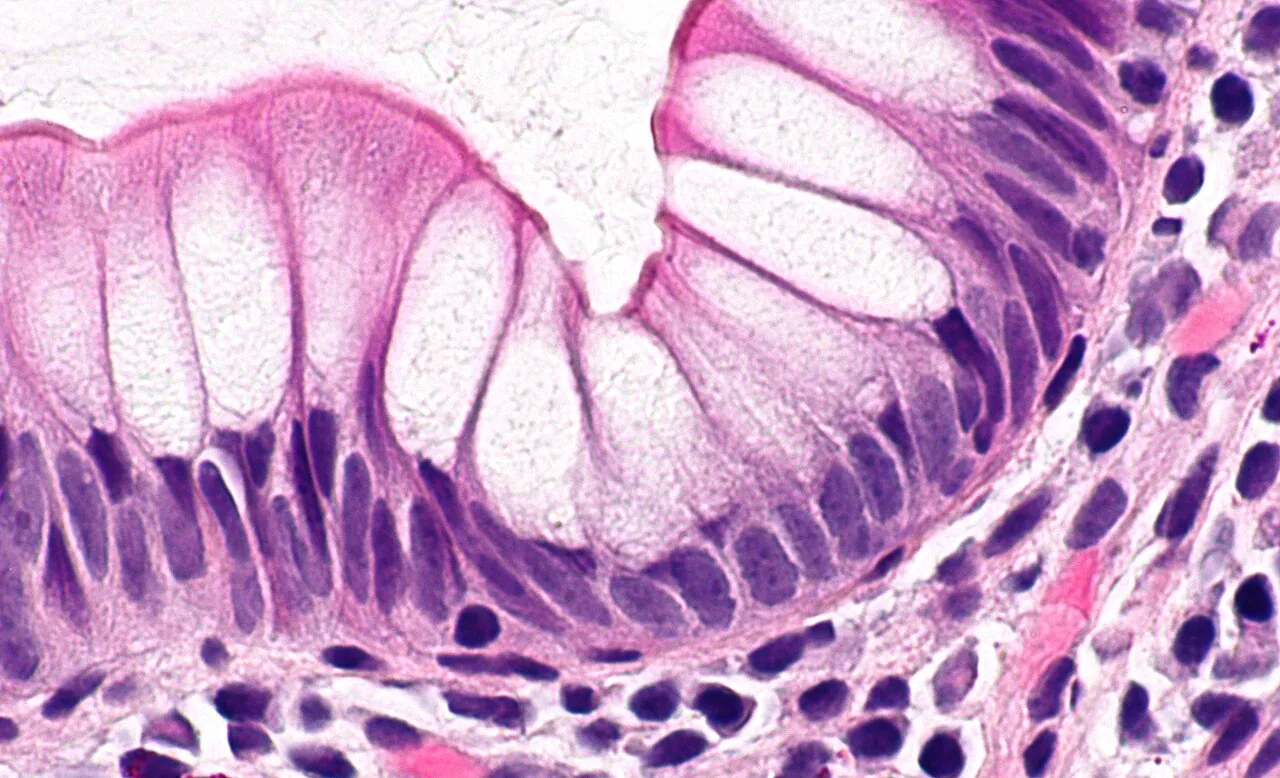
Аппарат Гольджи особенно развит в секреторных клетках. В бокаловидных клетках кишечника он огромен и производит слизь; в клетках, которые формируют акросому сперматозоида, именно он собирает этот особый мешочек ферментов на головке сперматозоида.
Как железы выделяют секрет
Клетки желёз выделяют секрет разными способами, и по ним железы делят на три типа. При мерокриновой секреции секреторные пузырьки сливаются с плазмалеммой (экзоцитоз), и клетка остаётся целой. Так работают слюнные железы, поджелудочная железа, большинство потовых желёз. При апокриновой секреции вместе с секретом отделяется и часть верхушки клетки: так капли молочного жира выходят из клеток молочной железы, окружённые участком плазмалеммы. При голокриновой секреции клетка накапливает секрет, гибнет и целиком превращается в секрет; так работают сальные железы, и их клетки постоянно заменяются новыми за счёт деления клеток у основания железы. Секреция инсулина, ферментов, антител, слизи — всё это мерокриновая секреция, обеспеченная работой ЭПС и аппарата Гольджи.
Где находится аппарат Гольджи и как он делится
В животной клетке стопки цистерн Гольджи соединены друг с другом в единую ленту, которая лежит возле ядра, вокруг клеточного центра. Такое положение не случайно: вокруг клеточного центра сходятся минус-концы микротрубочек, по которым динеины доставляют пузырьки из ЭПС. Перед делением клетки лента распадается на отдельные стопки и мелкие пузырьки, которые распределяются между дочерними клетками, а после деления снова собираются. У растений аппарат Гольджи устроен иначе: сотни отдельных подвижных стопок разбросаны по всей цитоплазме и перемещаются вдоль актиновых нитей вместе с током цитоплазмы, на ходу принимая пузырьки из ЭПС.
Вирусы на конвейере клетки
Вирусы, окружённые мембраной, используют эндомембранную систему клетки-хозяина. Белки оболочки вируса гриппа или ВИЧ синтезируются на шероховатой ЭПС заражённой клетки, проходят через аппарат Гольджи, где к ним присоединяются углеводные цепи, и доставляются к плазмалемме. Там они собираются вместе с генетическим материалом вируса, и новые вирусные частицы отпочковываются от клетки, захватывая участок её мембраны. У ВИЧ белок оболочки становится активным только после того, как фермент аппарата Гольджи разрезает его на две части. Коронавирусы собираются не на плазмалемме, а в промежуточном отсеке между ЭПС и аппаратом Гольджи и выходят из клетки по секреторному пути в пузырьках. Многие противовирусные подходы направлены именно на эти этапы.
7. Пузырьковый транспорт
Как пузырёк, отшнуровавшийся от ЭПС, «знает», куда ему двигаться, и почему он сливается именно с аппаратом Гольджи, а не с митохондрией? Ответ на эти вопросы дали в 1970–1990-е годы три исследователя, которые в 2013 году разделили за это Нобелевскую премию.
Американский биохимик Р. Шекман подошёл к задаче как генетик. Он искал мутантные дрожжи, у которых нарушена секреция: при повышенной температуре такие клетки переставали выделять ферменты, а внутри них скапливались мембраны и пузырьки. В 1980 году он описал 23 таких гена [10]. По тому, где именно застревали белки у разных мутантов — в ЭПС, в пузырьках, в аппарате Гольджи, — удалось расставить по порядку этапы секреторного пути и найти белки, нужные для каждого этапа. Американский биохимик Дж. Ротман воссоздал перенос пузырьков в пробирке и нашёл белки, обеспечивающие их слияние с мембраной-мишенью, — белки SNARE (см. статью о транспорте через мембрану). Немецко-американский физиолог Т. Зюдхоф выяснил, как ионы кальция заставляют пузырьки с медиатором сливаться с мембраной синапса в нужный момент.
Сегодня известно, что пузырьки образуются с помощью белковых оболочек. Белки оболочки собираются на мембране, изгибают её и отщепляют пузырёк, захватывая нужный груз. Пузырьки из ЭПС в аппарат Гольджи несут оболочку одного типа (её называют COPII), пузырьки, возвращающие белки из аппарата Гольджи в ЭПС, — другого (COPI), а пузырьки от транс-сети Гольджи к эндосомам и пузырьки эндоцитоза — оболочку из клатрина. Вскоре после отщепления оболочка сбрасывается, и мембрана пузырька может слиться с мишенью. «Адрес» пузырька определяют белки на его поверхности, которые узнают парные белки на мембране-мишени [2].
Возвращение «беглецов». Вместе с грузом из ЭПС в пузырьки случайно попадают и белки, которые должны остаться в ЭПС, — например, шапероны. В аппарате Гольджи их узнают по последовательности из четырёх аминокислот на конце цепи (KDEL) рецепторы, которые возвращают их пузырьками COPI обратно в ЭПС. Если этот сигнал удалить, шапероны будут выделяться из клетки наружу. Это хороший пример того, что транспорт в клетке идёт в обе стороны, и порядок поддерживается постоянной сортировкой.
8. Лизосомы
История открытия лизосом началась с неудачного опыта. В 1949 году К. де Дюв в Лувене изучал действие инсулина на печень и измерял в разных фракциях клеток активность ферментов, а кислую фосфатазу определял лишь для сравнения. В свежих фракциях её активность оказалась необъяснимо низкой, а в тех же фракциях, пролежавших пять дней в холодильнике, — в несколько раз выше. Де Дюв предположил, что фермент заключён в частицы с мембраной, не пропускающей субстрат, и проявляет активность, лишь когда мембрана повреждена [11]. Вскоре в тех же частицах нашли и другие ферменты, расщепляющие белки, нуклеиновые кислоты, углеводы, — все они работали в кислой среде. В 1955 году де Дюв назвал частицы лизосомами, а в 1956 году американский цитолог А. Новикофф по просьбе де Дюва рассмотрел богатую лизосомами фракцию в электронный микроскоп и увидел мелкие тельца, окружённые одной мембраной и содержащие плотный материал [12].
Строение
Лизосома — пузырёк размером обычно 0,1–1 мкм, окружённый одной мембраной. Внутри неё — около 60 разных гидролаз: протеазы, нуклеазы, липазы, гликозидазы, фосфатазы. Вместе они могут расщепить практически любую биологическую молекулу. Все эти ферменты работают в кислой среде с pH около 4,5–5 и почти неактивны при нейтральном pH цитозоля. Кислоту в лизосоме поддерживает протонный насос её мембраны, который закачивает протоны внутрь за счёт энергии АТФ [2].
Почему лизосома не переваривает саму себя? Белки её мембраны сильно гликозилированы: углеводные цепи на стороне, обращённой в полость, образуют плотный слой, защищающий мембрану от протеаз. А если лизосома лопнет, её ферменты попадут в нейтральную среду цитозоля, где почти не работают.
Почему переваривание в клетке устроено именно так — в кислых пузырьках с ферментами, работающими только в кислой среде? Такое устройство даёт двойную защиту. Чтобы клетка переварила саму себя, должны одновременно нарушиться и мембрана лизосомы, и кислотность цитозоля, — а это случается только при гибели клетки. Кроме того, кислая среда сама помогает перевариванию: в ней белки теряют свою пространственную структуру и становятся доступнее для протеаз, а многие рецепторы отпускают захваченные молекулы. Тот же принцип использует желудок: кислота желудочного сока разворачивает белки пищи, и пепсин, работающий только в кислой среде, расщепляет их, не трогая клетки стенки желудка, защищённые слизью.
Как образуются лизосомы
Ферменты лизосом синтезируются на шероховатой ЭПС, как секреторные белки, и проходят в аппарат Гольджи. Там к ним присоединяется особая метка — маннозо-6-фосфат. В транс-сети Гольджи рецепторы узнают эту метку и собирают ферменты в пузырьки, которые сливаются с эндосомами. В кислой среде эндосомы рецепторы отпускают ферменты и возвращаются в аппарат Гольджи за новыми, а эндосома, накопив ферменты, созревает в лизосому [13]. Если метка не присоединяется (болезнь I-клеток), ферменты уходят «по умолчанию» по секреторному пути и выводятся из клетки, а лизосомы остаются пустыми.
В школьных учебниках различают первичные лизосомы — только что образовавшиеся пузырьки с ферментами — и вторичные, которые образуются при слиянии первичной лизосомы с пузырьком, содержащим материал для переваривания: с фагосомой или пиноцитозным пузырьком (пищеварительная вакуоль) или с аутофагосомой. Непереваренные остатки накапливаются в остаточных тельцах. В долго живущих клетках (нейронах, клетках сердечной мышцы) остаточные тельца с годами заполняются бурым пигментом липофусцином — «пигментом старения».
Эндосомы: сортировочная станция
Пузырьки, образовавшиеся при эндоцитозе, сливаются с ранними эндосомами — неправильной формы пузырьками и трубочками недалеко от поверхности клетки. Среда в них слабокислая (pH около 6), и в ней многие рецепторы отпускают захваченные молекулы. Затем рецепторы собираются в трубчатых выростах эндосомы, отщепляются и возвращаются к поверхности клетки, а освобождённый груз остаётся в эндосоме, которая постепенно закисляется, получает ферменты из аппарата Гольджи и созревает в лизосому [2].
Благодаря этому рецепторы используются многократно. Рецептор ЛПНП, открытый М. Брауном и Дж. Голдштейном, совершает «рейс» от поверхности в эндосому и обратно примерно каждые 10 минут и за свою жизнь — около суток — успевает сделать более сотни таких рейсов [14]. А холестерин из частиц ЛПНП в лизосомах освобождается и используется для построения мембран.
Функции лизосом
- Переваривание поглощённого. Бактерии, захваченные макрофагами и нейтрофилами, пища амёб и инфузорий, белки, поглощённые путём эндоцитоза, — всё это переваривается в лизосомах. Мелкие продукты расщепления (аминокислоты, сахара, нуклеотиды) выходят через мембрану лизосомы в цитозоль и используются клеткой.
- Аутофагия — переваривание собственных отслуживших органоидов и белков (раздел 10).
- Внеклеточное переваривание. Некоторые клетки выделяют содержимое лизосом наружу. Остеокласты прикрепляются к кости, создают под собой закрытый кислый участок и выделяют туда лизосомные ферменты, растворяя костное вещество. Акросома сперматозоида — видоизменённая лизосома: её ферменты помогают сперматозоиду пройти через оболочки яйцеклетки.
- Иммунитет. В лизосомах макрофагов и дендритных клеток белки поглощённых бактерий расщепляются не полностью, а до коротких пептидов. Эти пептиды связываются с особыми белками главного комплекса гистосовместимости и выносятся на поверхность клетки, где их «осматривают» T-лимфоциты. Так лизосома не только уничтожает возбудителя, но и сообщает иммунной системе, какой именно возбудитель проник в организм.
- Рассасывание тканей при развитии. При метаморфозе головастика его хвост постепенно исчезает: клетки хвоста по сигналу гормона щитовидной железы гибнут, а их остатки переваривают лизосомы самих клеток и макрофагов.
Возбудители, обманывающие лизосомы
Многие возбудители болезней научились избегать переваривания в лизосомах. Туберкулёзная палочка, поглощённая макрофагом, мешает слиянию фагосомы с лизосомами: в 1971 году английские микробиологи Дж. Армстронг и Ф. Харт показали это, пометив лизосомы макрофагов красителем, — у фагосом с живыми палочками краситель почти не появлялся [15]. Палочка годами живёт внутри макрофага, и именно поэтому туберкулёз так трудно лечить. Другие бактерии (например, листерии) разрушают мембрану фагосомы и выходят в цитозоль, а возбудитель лейшманиоза, наоборот, живёт и размножается прямо внутри кислых лизосом, устойчивый к их ферментам.
Кислая среда лизосом используется и в медицине. Противомалярийный препарат хлорохин — слабое основание: в кислой пищеварительной вакуоли малярийного плазмодия он связывает протоны, накапливается в высокой концентрации и мешает паразиту обезвреживать продукты переваривания гемоглобина.
Как потерять балл. Написать, что ферменты лизосом синтезируются в самих лизосомах или в аппарате Гольджи. Ферменты синтезируются на рибосомах шероховатой ЭПС, а аппарат Гольджи лишь метит и сортирует их. Ещё одна ошибка — сказать, что лизосомы есть у всех эукариот в одинаковом виде: у растений и грибов их функцию во многом выполняет вакуоль.
9. Лизосомные болезни накопления
Если в лизосоме не работает один из ферментов, вещество, которое он должен расщеплять, накапливается в лизосомах. Они разрастаются и заполняют клетку, нарушая её работу. Такие болезни называют лизосомными болезнями накопления. Каждая из них редка, но вместе они встречаются примерно у одного новорождённого из 5–7 тысяч. Большинство наследуется по аутосомно-рецессивному типу: болеет ребёнок, получивший дефектный ген от обоих родителей-носителей.
- Болезнь Помпе — нет кислой α-глюкозидазы, в лизосомах накапливается гликоген; поражаются сердце и мышцы [1].
- Болезнь Тея — Сакса — нет фермента, расщепляющего один из ганглиозидов — гликолипидов мембран нервных клеток. Ганглиозид накапливается в лизосомах нейронов, и ребёнок, нормально развивавшийся первые месяцы жизни, постепенно утрачивает навыки и погибает в раннем детстве. В некоторых этнических группах носителем является каждый 25–30-й человек; благодаря программам проверки носительства частота болезни в этих группах снизилась в десятки раз.
- Болезнь Гоше — нет фермента, расщепляющего глюкоцереброзид; он накапливается в макрофагах селезёнки, печени и костного мозга. Для неё в 1991 году впервые создали заместительную терапию: больным регулярно вводят недостающий фермент, к которому присоединены остатки маннозы, — макрофаги захватывают его через рецепторы и доставляют в лизосомы.
- Болезнь I-клеток — не присоединяется метка маннозо-6-фосфат, и почти все ферменты лизосом уходят из клетки (раздел 8).
История изучения этих болезней — пример того, как медицина и клеточная биология помогали друг другу: болезни подсказали функции отдельных ферментов лизосом, а понимание того, как ферменты попадают в лизосому, позволило создать лекарства.
10. Аутофагия: клетка переваривает себя
Ещё де Дюв заметил на электронных фотографиях лизосомы, внутри которых были видны обрывки митохондрий и ЭПС, и в 1963 году назвал этот процесс аутофагией — «самопоеданием». Механизм оставался неясным тридцать лет, пока за него не взялся японский биолог Ё. Осуми. Он использовал дрожжи, у которых роль лизосом играет вакуоль, и вывел мутантов, у которых в вакуоли не работали протеазы. Если такие дрожжи голодали, их вакуоль заполнялась пузырьками с непереваренной цитоплазмой — их было хорошо видно даже в световой микроскоп [16]. Затем Осуми нашёл гены, без которых эти пузырьки не образуются. В 2016 году он получил Нобелевскую премию по физиологии и медицине.
При аутофагии участок цитоплазмы вместе с органоидами окружается двойной мембраной, образуя аутофагосому. Она сливается с лизосомой, и содержимое переваривается. Аутофагия выполняет несколько задач [17]:
- при голодании клетка получает аминокислоты и другие вещества, переваривая часть своих белков и органоидов;
- клетка уничтожает повреждённые митохондрии, скопления неправильно свёрнутых белков, проникшие в цитоплазму бактерии;
- в долгоживущих клетках (нейронах) аутофагия постоянно «убирает мусор»; её нарушение связано с нейродегенеративными болезнями.
Аутофагия — не то же самое, что гибель клетки. Это способ её выживания и обновления: клетка печени за неделю может обновить значительную часть своих органоидов, не прекращая работы.
11. Пероксисомы
Пероксисомы — небольшие (0,2–1 мкм) одномембранные пузырьки, которые долго путали с лизосомами. Их функцию установил де Дюв в 1965–1966 годах: в них находятся ферменты-оксидазы, которые окисляют органические вещества кислородом с образованием пероксида водорода, и фермент каталаза, который сразу разлагает этот пероксид на воду и кислород. Отсюда и название органоида [2].
В пероксисомах животных окисляются жирные кислоты с очень длинными цепями, которые не могут окисляться в митохондриях, синтезируются особые липиды миелиновой оболочки нервов и обезвреживаются некоторые яды; в клетках печени и почек около четверти выпитого спирта окисляется именно в пероксисомах. У растений пероксисомы участвуют в фотодыхании, а в прорастающих семенах масличных растений особые пероксисомы — глиоксисомы — превращают запасённые жиры в сахара.
Белки пероксисом синтезируются на свободных рибосомах и импортируются из цитозоля по сигналу из трёх аминокислот на конце цепи. При тяжёлой наследственной болезни — синдроме Цельвегера — импорт белков нарушен, и пероксисомы в клетках «пустые» [18]. Длинноцепочечные жирные кислоты накапливаются, нарушается образование миелина, и дети погибают в первый год жизни. Эта болезнь показала, насколько важен для человека этот небольшой органоид.
Пероксисома — отдельно от системы. Пероксисомы не получают ферменты из ЭПС и аппарата Гольджи: их белки поступают прямо из цитозоля. Поэтому их обычно не относят к эндомембранной системе, хотя новые пероксисомы могут отпочковываться и от ЭПС.
12. Вакуоли — тоже одномембранные органоиды
Вакуолями называют крупные мембранные пузырьки, заполненные водным раствором. Их строение и функции подробно разобраны в статье «Клеточная стенка, вакуоль и тургор», вместе с клеточной стенкой, тургором и плазмолизом. Здесь отметим главное, что связывает вакуоли с другими одномембранными органоидами [2, 4].
- Центральная вакуоль растительной клетки окружена мембраной — тонопластом — и заполнена клеточным соком: раствором сахаров, органических кислот, солей, пигментов, запасных белков, ядовитых веществ. Она занимает до 80–90 % объёма зрелой клетки, поддерживает тургор, служит складом и мусорной корзиной клетки, а благодаря кислым гидролазам выполняет и роль лизосомы. Белки вакуоли, как и белки лизосом, синтезируются на шероховатой ЭПС и доставляются пузырьками из аппарата Гольджи.
- Вакуоли грибов устроены похоже: в клетках дрожжей именно в вакуоли Осуми увидел аутофагию.
- Пищеварительные вакуоли протистов образуются при фагоцитозе и сливаются с лизосомами — по сути, это вторичные лизосомы.
- Сократительные вакуоли пресноводных протистов выводят из клетки избыток воды (см. статью «Транспорт веществ через мембрану»).
13. ЭПС и болезни
Нарушения работы ЭПС приводят к болезням, которые хорошо показывают значение контроля качества белков.
Недостаточность α₁-антитрипсина. α₁-Антитрипсин — белок, который синтезируется в клетках печени, выделяется в кровь и защищает ткани лёгких от разрушения ферментами лейкоцитов. При одной из частых мутаций его молекулы в ЭПС гепатоцитов слипаются друг с другом в длинные цепочки и не могут выйти из клетки. Болезнь бьёт в двух местах сразу: скопления белка повреждают клетки печени, а в лёгких не хватает защиты, и при курении быстро развивается эмфизема — разрушение альвеол.
Сахарный диабет. β-Клетки поджелудочной железы синтезируют огромное количество проинсулина, и их ЭПС постоянно работает на пределе. При диабете второго типа, когда организм требует всё больше инсулина, хроническая перегрузка ЭПС вызывает ответ на несвёрнутые белки, а при его истощении — гибель β-клеток. Редкие формы диабета у новорождённых связаны с мутациями гена инсулина, при которых проинсулин не может правильно свернуться в ЭПС.
Муковисцидоз — пример того, как контроль качества ЭПС может быть слишком строгим: мутантный белок CFTR частично работоспособен, но ЭПС бракует его. Современные лекарства для таких больных помогают белку свернуться и пройти контроль.
14. Откуда взялась эндомембранная система
У бактерий и архей нет ни ЭПС, ни аппарата Гольджи, ни лизосом, а у всех эукариот они есть. Значит, эндомембранная система возникла при становлении эукариотической клетки. Согласно наиболее распространённой гипотезе, она образовалась из впячиваний плазмалеммы предковой клетки: участки мембраны со встроенными рибосомами и ферментами уходили внутрь, отшнуровывались и превращались во внутренние мембранные отсеки. Этим объясняется, почему полость ЭПС и других органоидов топологически соответствует внешней среде, а ядерная оболочка — часть той же системы, что и ЭПС.
В пользу древности эндомембранной системы говорит то, что белки, обеспечивающие образование пузырьков и их слияние, одинаковы у всех эукариот — от дрожжей до человека, — а их отдалённые родственники найдены у асгардархей, ближайших к эукариотам архей (подробнее — в статье «Типы клеток»). Митохондрии и пластиды возникли иначе — из бактерий-симбионтов, — и поэтому в эндомембранную систему не входят [2].
15. Взаимосвязь одномембранных органоидов
Связь одномембранных органоидов лучше всего видна, если проследить путь разных белков.
| Белок | Путь | Чем закончится |
|---|---|---|
| Секреторный (инсулин, пищеварительный фермент, антитело) | рибосома на шероховатой ЭПС → полость ЭПС → пузырёк → аппарат Гольджи → секреторный пузырёк | экзоцитоз, белок выходит из клетки |
| Мембранный (рецептор, переносчик) | рибосома на шероховатой ЭПС → мембрана ЭПС → пузырёк → мембрана аппарата Гольджи → пузырёк | встраивается в плазмалемму |
| Фермент лизосом | рибосома на шероховатой ЭПС → полость ЭПС → аппарат Гольджи (метка маннозо-6-фосфат) → пузырёк → эндосома | оказывается в лизосоме |
| Белок полости ЭПС (шаперон) | рибосома на шероховатой ЭПС → полость ЭПС; если попал в аппарат Гольджи — возврат пузырьком | остаётся в ЭПС |
| Поглощённый белок (например, ЛПНП) | плазмалемма → эндоцитозный пузырёк → эндосома | переваривается в лизосоме |
| Липид | мембрана ЭПС → пузырьки → аппарат Гольджи → плазмалемма и др. | часть мембран клетки |
Отсюда видно, что одномембранные органоиды работают последовательно: ЭПС синтезирует и сворачивает, аппарат Гольджи дорабатывает и сортирует, лизосомы переваривают, а пузырьки связывают все отсеки между собой. Нарушение в любом звене сказывается на всей системе: если ЭПС перегружена несвёрнутыми белками, аппарату Гольджи нечего дорабатывать; если не работает сортировка в аппарате Гольджи, ферменты не попадут в лизосомы.
- 1898К. Гольджи описывает «внутренний сетчатый аппарат» нервных клеток
- 1932Й. Помпе описывает болезнь с накоплением гликогена в клетках
- 1945К. Портер, А. Клод, Э. Фуллам: сеть канальцев в цитоплазме — будущая ЭПС
- 1955К. де Дюв называет лизосомы; Дж. Паладе описывает рибосомы на мембранах ЭПС
- 1963Г. Эр: болезнь Помпе — нехватка фермента лизосом; де Дюв вводит слово «аутофагия»
- 1967Дж. Джеймисон и Дж. Паладе прослеживают путь секреторного белка
- 1975Г. Блобель доказывает сигнальную гипотезу
- 1980Р. Шекман находит гены секреторного пути у дрожжей
- 1992Ё. Осуми видит аутофагию в вакуолях мутантных дрожжей
- 1993П. Уолтер с коллегами: датчик ответа на несвёрнутые белки в мембране ЭПС
- световая микроскопия и клиника
- электронная микроскопия, биохимия, генетика
16. Частые ошибки
- «На гладкой ЭПС синтезируются белки». Белки синтезируются рибосомами; на гладкой ЭПС рибосом нет, там синтезируются липиды и стероиды.
- «Аппарат Гольджи синтезирует белки». Аппарат Гольджи дорабатывает, сортирует и упаковывает белки, синтезированные на шероховатой ЭПС; синтезирует он полисахариды (у растений — для клеточной стенки).
- «Лизосомы образуются в ЭПС». Ферменты лизосом синтезируются на шероховатой ЭПС, но лизосомы образуются при участии аппарата Гольджи и эндосом.
- «Лизосома — двумембранный органоид». У лизосомы одна мембрана.
- «Ферменты лизосом работают в нейтральной среде». Они работают в кислой среде (pH около 5), поэтому почти неактивны в цитозоле.
- «Пероксисомы — то же, что лизосомы». Пероксисомы содержат оксидазы и каталазу, а не гидролазы, и получают белки прямо из цитозоля.
- «Путь секреторного белка: рибосома → аппарат Гольджи → ЭПС». Правильно: рибосома на шероховатой ЭПС → полость ЭПС → аппарат Гольджи → секреторный пузырёк → плазмалемма.
17. Интересные факты
- Коллаген — самый распространённый белок тела человека — тоже проходит путь через ЭПС и аппарат Гольджи. В ЭПС к его аминокислотам пролину и лизину присоединяются гидроксильные группы, и для этого нужен витамин C. При цинге из-за нехватки витамина C коллаген получается непрочным: кровоточат дёсны, плохо заживают раны.
- Слизистая оболочка желудка, бронхов, кишечника защищена слизью, которую производят аппараты Гольджи бокаловидных клеток. Молекулы слизи — муцины — на 80 % по массе состоят из углеводов, присоединённых именно в аппарате Гольджи.
- Если бы вся ЭПС одной клетки печени была развёрнута в одну плоскость, её площадь в десятки раз превысила бы площадь поверхности самой клетки.
- Липофусцин — «пигмент старения» — в нейронах пожилого человека может занимать значительную часть цитоплазмы. Это непереваренные остатки, которые лизосомы не смогли расщепить за десятилетия.
- Дрожжевые мутанты, на которых Шекман и Осуми совершили свои открытия, отличаются от нормальных дрожжей одной-двумя мутациями. Их поиск занимал годы просмотра тысяч колоний — пример того, как фундаментальное знание об устройстве клетки добывается на «неинтересных» организмах.
- В клетках человека одновременно работают десятки разных видов транспортных пузырьков, и каждый находит свою мишень по уникальному сочетанию белков на поверхности. Ошибки случаются редко: у большинства белков вероятность попасть «не туда» очень мала.
- Слово «лизосома» происходит от греческих слов «растворение» и «тело», а «пероксисома» — от слова «пероксид» (перекись), которую образуют и разлагают её ферменты.
- Плазматические клетки, синтезирующие антитела, живут в костном мозге годами и десятилетиями, непрерывно выделяя антитела. Именно они обеспечивают длительный иммунитет после прививок.
18. Частые вопросы
Чем шероховатая ЭПС отличается от гладкой?
Шероховатая ЭПС образована уплощёнными цистернами, покрытыми рибосомами, и синтезирует белки на экспорт, мембранные белки и ферменты лизосом. Гладкая ЭПС — сеть трубочек без рибосом; в ней синтезируются липиды и стероиды, обезвреживаются яды, запасается кальций. Это части одной системы, переходящие друг в друга.
Почему секреторные белки не синтезируются прямо в аппарате Гольджи?
В аппарате Гольджи нет рибосом. Белки синтезируются рибосомами, а рибосомы, синтезирующие белки на экспорт, прикрепляются к ЭПС, потому что их белок должен с самого начала оказаться в полости эндомембранной системы. Аппарат Гольджи получает уже синтезированные и свёрнутые белки и дорабатывает их.
Что будет, если лизосома лопнет?
Немного ферментов в цитозоле клетке не повредит: при нейтральном pH они почти не работают, а в цитозоле есть их ингибиторы. Но если лопается много лизосом сразу (например, при повреждении кристаллами мочевой кислоты при подагре или частицами кремнезёма в лёгких шахтёров), клетка погибает, а вышедшие ферменты вызывают воспаление.
Есть ли лизосомы у растений?
Функцию лизосом у растений в основном выполняет центральная вакуоль: в ней есть те же кислые гидролазы, и в неё поступает для переваривания отслуживший материал клетки. Мелкие литические пузырьки, похожие на лизосомы, у растений тоже бывают. В школьных заданиях лизосомы обычно относят к признакам животной клетки.
Чем лизосома отличается от пищеварительной вакуоли?
Пищеварительная вакуоль образуется, когда лизосома сливается с пузырьком, содержащим поглощённую пищу (фагосомой). Иначе говоря, пищеварительная вакуоль — это вторичная лизосома, в которой идёт переваривание.
Почему ЭПС и аппарат Гольджи не сливаются в один органоид, если между ними всё время ходят пузырьки?
Каждый отсек сохраняет свой состав благодаря постоянной сортировке. Белки, которые должны остаться в ЭПС, возвращаются из аппарата Гольджи обратно; белки аппарата Гольджи удерживаются в нём благодаря особенностям своих трансмембранных участков и взаимодействиям друг с другом. Мембраны ЭПС и Гольджи различаются и по составу липидов. Если транспорт из ЭПС остановить, аппарат Гольджи за несколько минут распадается, а его белки возвращаются в ЭПС: значит, Гольджи существует благодаря постоянному потоку, а не сам по себе.
Могут ли рибосомы шероховатой ЭПС синтезировать белки для цитозоля?
Обычно нет: к ЭПС прикрепляются только рибосомы, синтезирующие белки с сигнальной последовательностью. Когда синтез заканчивается, рибосома отделяется и может начать синтез любого другого белка — если он без сигнала, она останется свободной в цитозоле.
Почему белок на экспорт нельзя просто «выкачать» из клетки насосом?
Насосы и переносчики плазмалеммы переносят ионы и небольшие молекулы. Белок — огромная молекула со сложной пространственной структурой; протащить свёрнутый белок через мембрану очень трудно, а развернуть и снова свернуть его снаружи клетке нечем. Поэтому секреторный белок с самого начала синтезируется в полость ЭПС, сворачивается там и выходит из клетки в пузырьке, ни разу не пересекая мембрану в свёрнутом виде.
Откуда берётся мембрана секреторных пузырьков, если клетка постоянно их выделяет?
Мембрана пузырьков отшнуровывается от аппарата Гольджи, а он получает её из ЭПС. При экзоцитозе мембрана пузырька встраивается в плазмалемму, а избыток мембраны клетка возвращает внутрь эндоцитозом и снова использует. Так мембрана совершает круговорот, и площадь плазмалеммы секреторной клетки остаётся постоянной, хотя через неё проходит огромное количество пузырьков.
19. ЕГЭ
Что нужно уметь. Описывать строение и функции шероховатой и гладкой ЭПС, аппарата Гольджи, лизосом; знать, что белки на экспорт синтезируются на рибосомах шероховатой ЭПС, а липиды — на гладкой ЭПС; описывать секреторную функцию аппарата Гольджи и образование лизосом; объяснять взаимосвязь одномембранных органоидов и путь секреторного белка; знать функции вакуолей растительной клетки [19].
Задания по этой теме очень разнообразны. На соответствие: «органоид — функция» (особенно гладкая и шероховатая ЭПС, аппарат Гольджи, лизосомы). На последовательность: путь белка от рибосомы до плазмалеммы, этапы внутриклеточного переваривания. В заданиях с рисунком часто изображают стопку цистерн Гольджи с пузырьками или цистерны ЭПС с рибосомами. Во второй части — объяснить, почему в клетках поджелудочной железы развиты шероховатая ЭПС и аппарат Гольджи, а в клетках надпочечников — гладкая ЭПС; почему при болезнях накопления клетка разрушается.
Как потерять балл. Назвать аппарат Гольджи местом синтеза белков. Перепутать функции гладкой и шероховатой ЭПС. Написать, что лизосомы синтезируют ферменты. В последовательности секреторного пути поставить аппарат Гольджи раньше ЭПС.
20. Для олимпиад
Топология и ориентация белков. Сторона мембраны ЭПС, обращённая в полость, соответствует наружной стороне плазмалеммы и полости лизосомы. Поэтому углеводы гликопротеинов, присоединённые в ЭПС и Гольджи, всегда оказываются снаружи клетки или внутри полости органоида. Белок с одним трансмембранным участком, у которого начало цепи было направлено в полость ЭПС, окажется в плазмалемме началом наружу. Задачи на ориентацию белков часто дают на олимпиадах.
Мутанты секреторного пути. В опытах Шекмана положение «пробки» определяли по накоплению мембран. Если мутант накапливает расширенную ЭПС, ген нужен для выхода из ЭПС; если накапливает пузырьки — для их слияния с аппаратом Гольджи; если стопки Гольджи — для выхода из Гольджи. Скрещивая мутантов двух типов, по фенотипу двойного мутанта определяли, какой этап предшествует другому: двойной мутант выглядит как мутант по более раннему этапу.
Сигналы сортировки. Полезно знать, к какому результату приведёт изменение сигнала: удаление сигнальной последовательности — белок останется в цитозоле; присоединение сигнала KDEL к секреторному белку — белок останется в ЭПС; отсутствие метки маннозо-6-фосфат — ферменты лизосом будут выделены из клетки; присоединение сигнала ядерной локализации к белку цитозоля — белок окажется в ядре.
Многократное использование рецепторов. Рецептор маннозо-6-фосфата за один рейс доставляет в эндосому одну-две молекулы фермента и возвращается в аппарат Гольджи. Если рейс занимает около 20 минут, а клетке нужно доставить 10⁶ молекул ферментов в час, то при двух молекулах за рейс нужно 10⁶ / (2 · 3) ≈ 1,7 · 10⁵ рецепторов (каждый успевает сделать три рейса в час). Если рецептор после первого рейса разрушался бы, клетке пришлось бы синтезировать его в сотни раз больше. Такие оценки показывают, зачем в клетке существует «обратный транспорт» рецепторов.
Расчёт времени. В опыте Джеймисона и Паладе (подробно — в статье «Строение клетки: общий план») метка через несколько минут переходила из ЭПС в аппарат Гольджи, а через пару часов оказывалась в зрелых секреторных гранулах. Если клетка непрерывно выделяет белок со скоростью v молекул в минуту, а белок проводит в секреторном пути в среднем 60 минут, то в каждый момент в пути находится около 60v молекул. Это простое соотношение (количество в пути = скорость × время) используется и для других потоков в клетке.
21. Задания с разбором
Задание 1
Установите соответствие между функциями и органоидами. Функции: А) синтез белков на экспорт; Б) синтез стероидных гормонов; В) обезвреживание ядов в клетках печени; Г) образование лизосом; Д) упаковка секрета в пузырьки; Е) депо ионов кальция в мышечном волокне. Органоиды: 1) шероховатая ЭПС; 2) гладкая ЭПС; 3) аппарат Гольджи.
Ответ
А1, Б2, В2, Г3, Д3, Е2.
Задание 2
Выберите три верных ответа. Лизосомы: 1) окружены одной мембраной; 2) содержат гидролитические ферменты; 3) синтезируют белки; 4) образуются при участии аппарата Гольджи; 5) содержат собственную ДНК; 6) имеют нейтральную среду.
Ответ
1, 2, 4.
Задание 3
Установите последовательность этапов внутриклеточного переваривания бактерии макрофагом: 1) слияние фагосомы с лизосомой; 2) захват бактерии псевдоподиями; 3) выход продуктов расщепления в цитозоль; 4) образование фагосомы; 5) расщепление веществ бактерии гидролазами.
Ответ
2, 4, 1, 5, 3.
Задание 4
Найдите ошибки в тексте. (1) Шероховатая ЭПС покрыта рибосомами. (2) На гладкой ЭПС синтезируются белки на экспорт. (3) Аппарат Гольджи состоит из стопок уплощённых цистерн. (4) В аппарате Гольджи синтезируются ферменты лизосом. (5) Лизосомы содержат ферменты, работающие в кислой среде.
Ответ
(2) Белки на экспорт синтезируются на рибосомах шероховатой ЭПС; на гладкой ЭПС синтезируются липиды и стероиды. (4) Ферменты лизосом синтезируются на рибосомах шероховатой ЭПС; в аппарате Гольджи они модифицируются, сортируются и упаковываются в пузырьки.
Задание 5
В каких клетках хорошо развита шероховатая ЭПС, а в каких — гладкая? Приведите по два примера и объясните.
Ответ
1) Шероховатая ЭПС развита в клетках, выделяющих много белка: клетки поджелудочной железы (ферменты, инсулин), плазматические клетки (антитела). 2) Гладкая ЭПС развита в клетках, синтезирующих стероиды (кора надпочечников, клетки семенников), и в клетках печени (обезвреживание ядов). 3) Строение клетки соответствует её функции: белки синтезируются на рибосомах шероховатой ЭПС, липиды и стероиды — ферментами гладкой ЭПС.
Задание 6
Выберите три верных ответа. Функции аппарата Гольджи: 1) накопление и упаковка веществ в пузырьки; 2) синтез АТФ; 3) образование лизосом; 4) синтез полисахаридов клеточной стенки растений; 5) синтез белков; 6) фотосинтез.
Ответ
1, 3, 4.
Задание 7
Почему при болезни Помпе в клетках сердечной мышцы и скелетных мышц накапливается гликоген?
Ответ
1) Часть гликогена клетки поступает в лизосомы и в норме расщепляется там кислой α-глюкозидазой. 2) При болезни Помпе этот фермент отсутствует из-за мутации гена. 3) Гликоген не расщепляется и накапливается в лизосомах, которые разрастаются и нарушают работу клеток.
Задание 8
Человек длительно принимал снотворное фенобарбитал, и его действие ослабло. Объясните, с изменением какого органоида клеток печени это связано.
Ответ
1) Лекарства обезвреживаются ферментами гладкой ЭПС клеток печени. 2) При длительном приёме фенобарбитала гладкая ЭПС разрастается, количество её ферментов увеличивается. 3) Лекарство быстрее разрушается, его концентрация в крови ниже, и действие ослабевает (развивается привыкание).
Задание 9
Установите соответствие между признаками и органоидами. Признаки: А) содержат каталазу; Б) содержат кислые гидролазы; В) белки поступают из ЭПС через аппарат Гольджи; Г) белки поступают прямо из цитозоля; Д) участвуют в фагоцитозе; Е) образуют пероксид водорода при окислении веществ. Органоиды: 1) лизосомы; 2) пероксисомы.
Ответ
А2, Б1, В1, Г2, Д1, Е2.
Задание 10
Почему ферменты лизосом не разрушают клетку при нормальной её работе? Приведите три довода.
Ответ
1) Ферменты отделены от цитоплазмы мембраной лизосомы. 2) Белки мембраны лизосомы защищены со стороны полости слоем углеводов от действия протеаз. 3) Ферменты активны в кислой среде (pH около 5), а в цитозоле pH около 7,2, поэтому даже вышедшие ферменты почти не работают.
Задание 11
Выберите три верных ответа. Мембранные белки плазмалеммы: 1) синтезируются на рибосомах шероховатой ЭПС; 2) синтезируются в аппарате Гольджи; 3) проходят через аппарат Гольджи; 4) доставляются к плазмалемме в пузырьках; 5) синтезируются на рибосомах митохондрий; 6) образуются в лизосомах.
Ответ
1, 3, 4.
Задание 12
Что такое аутофагия и какое значение она имеет для клетки?
Ответ
1) Аутофагия — переваривание клеткой собственных органоидов и белков: участок цитоплазмы окружается мембраной, образуется аутофагосома, которая сливается с лизосомой. 2) Позволяет клетке при голодании получить питательные вещества. 3) Удаляет повреждённые и отслужившие органоиды (например, митохондрии) и скопления неправильно свёрнутых белков, обновляет клетку.
Задание 13
Установите последовательность событий при образовании лизосомы: 1) присоединение метки маннозо-6-фосфат в аппарате Гольджи; 2) синтез фермента на рибосоме шероховатой ЭПС; 3) поступление фермента в полость ЭПС; 4) упаковка фермента в пузырёк в транс-сети Гольджи; 5) доставка фермента в эндосому, которая созревает в лизосому; 6) перенос фермента из ЭПС в аппарат Гольджи.
Ответ
2, 3, 6, 1, 4, 5.
Задание 14
Почему у растений нет потребности в большом количестве лизосом? Какой органоид выполняет их функцию?
Ответ
1) Функцию лизосом в растительной клетке выполняет центральная вакуоль, содержащая кислые гидролазы. 2) Растительные клетки не захватывают пищу фагоцитозом (питаются автотрофно, окружены стенкой), поэтому переваривание поглощённых частиц им не нужно. 3) Переваривание собственных отслуживших структур (аутофагия) идёт в вакуоли.
Задание 15
Выберите три верных ответа. Гладкая ЭПС: 1) лишена рибосом; 2) синтезирует липиды; 3) является двумембранным органоидом; 4) участвует в обезвреживании ядов; 5) синтезирует белки на экспорт; 6) образует лизосомы.
Ответ
1, 2, 4.
Задание 16
Белок, содержащий на конце цепи сигнал KDEL, у мутантной клетки обнаружили в межклеточной жидкости. Какой белок или процесс мог быть нарушен у этой клетки?
Ответ
1) В норме белки с сигналом KDEL, попавшие в аппарат Гольджи, узнаются рецептором и возвращаются в ЭПС пузырьками. 2) У мутантной клетки, вероятно, нарушен рецептор KDEL (или образование возвращающих пузырьков). 3) Поэтому белок не возвращается в ЭПС, проходит по секреторному пути и выделяется из клетки экзоцитозом.
Задание 17
Установите соответствие между структурами и их происхождением. Структуры: А) акросома сперматозоида; Б) секреторные гранулы с инсулином; В) пищеварительная вакуоль амёбы; Г) клеточная пластинка делящейся растительной клетки; Д) аутофагосома, слившаяся с лизосомой. Происхождение: 1) производные аппарата Гольджи; 2) образуются при слиянии лизосомы с другим пузырьком.
Ответ
А1, Б1, В2, Г1, Д2.
Задание 18
Почему у детей с синдромом Цельвегера нарушается развитие нервной системы?
Ответ
1) У больных нарушен импорт белков в пероксисомы, и пероксисомы не содержат ферментов. 2) Не окисляются жирные кислоты с очень длинными цепями, и они накапливаются в тканях. 3) Не синтезируются особые липиды, нужные для образования миелиновой оболочки нервных волокон, поэтому нарушается развитие мозга.
Задание 19 (олимпиадное)
У дрожжей есть температурочувствительные мутанты sec, у которых при повышенной температуре нарушен секреторный путь. Мутант A накапливает расширенную ЭПС, мутант B — многочисленные мелкие пузырьки. Двойной мутант AB накапливает расширенную ЭПС. Какой этап нарушен у каждого мутанта и какой этап идёт раньше?
Ответ
1) У мутанта A нарушен выход белков из ЭПС (образование пузырьков из ЭПС). 2) У мутанта B пузырьки образуются, но не сливаются с аппаратом Гольджи. 3) Двойной мутант выглядит как A: белки не выходят из ЭПС, поэтому пузырьков не образуется. Значит, этап A (выход из ЭПС) предшествует этапу B (слиянию пузырьков с Гольджи).
Задание 20 (олимпиадное)
Клетка выделяет 10 000 молекул белка в минуту. Белок проводит в ЭПС в среднем 20 минут, в аппарате Гольджи — 20 минут, в секреторных гранулах — 80 минут. Сколько молекул этого белка находится в каждом отсеке и во всём секреторном пути в любой момент при постоянной работе клетки?
Ответ
Количество в отсеке равно скорости потока, умноженной на время пребывания. 1) ЭПС: 10 000 · 20 = 200 000. 2) Аппарат Гольджи: 10 000 · 20 = 200 000. 3) Гранулы: 10 000 · 80 = 800 000. 4) Всего: 1 200 000 молекул, из них две трети — в секреторных гранулах (запас для быстрой секреции по сигналу).
Литература
- Hers H. G. α-Glucosidase deficiency in generalized glycogen-storage disease (Pompe’s disease) // Biochemical Journal. 1963. Vol. 86. P. 11–16.
- Alberts B., Heald R., Johnson A. et al. Molecular Biology of the Cell. 7th ed. New York: W. W. Norton, 2022.
- Porter K. R., Claude A., Fullam E. F. A study of tissue culture cells by electron microscopy // Journal of Experimental Medicine. 1945. Vol. 81. P. 233–246.
- Ченцов Ю. С. Введение в клеточную биологию: учебник для вузов. 4-е изд. М.: ИКЦ «Академкнига», 2004.
- Walter P., Ibrahimi I., Blobel G. Translocation of proteins across the endoplasmic reticulum. I. Signal recognition protein (SRP) binds to in-vitro-assembled polysomes synthesizing secretory protein // Journal of Cell Biology. 1981. Vol. 91. P. 545–550.
- Blobel G., Dobberstein B. Transfer of proteins across membranes. I. Presence of proteolytically processed and unprocessed nascent immunoglobulin light chains on membrane-bound ribosomes of murine myeloma // Journal of Cell Biology. 1975. Vol. 67. P. 835–851.
- Milstein C., Brownlee G. G., Harrison T. M., Mathews M. B. A possible precursor of immunoglobulin light chains // Nature New Biology. 1972. Vol. 239. P. 117–120.
- Cox J. S., Shamu C. E., Walter P. Transcriptional induction of genes encoding endoplasmic reticulum resident proteins requires a transmembrane protein kinase // Cell. 1993. Vol. 73. P. 1197–1206.
- Jones A. L., Fawcett D. W. Hypertrophy of the agranular endoplasmic reticulum in hamster liver induced by phenobarbital (with a review on the functions of this organelle in liver) // Journal of Histochemistry and Cytochemistry. 1966. Vol. 14. P. 215–232.
- Novick P., Field C., Schekman R. Identification of 23 complementation groups required for post-translational events in the yeast secretory pathway // Cell. 1980. Vol. 21. P. 205–215.
- Appelmans F., Wattiaux R., de Duve C. Tissue fractionation studies. 5. The association of acid phosphatase with a special class of cytoplasmic granules in rat liver // Biochemical Journal. 1955. Vol. 59. P. 438–445.
- Novikoff A. B., Beaufay H., de Duve C. Electron microscopy of lysosome-rich fractions from rat liver // Journal of Biophysical and Biochemical Cytology. 1956. Vol. 2 (Suppl.). P. 179–184.
- Kornfeld S. Trafficking of lysosomal enzymes // FASEB Journal. 1987. Vol. 1. P. 462–468.
- Brown M. S., Goldstein J. L. A receptor-mediated pathway for cholesterol homeostasis // Science. 1986. Vol. 232. P. 34–47.
- Armstrong J. A., Hart P. D. Response of cultured macrophages to Mycobacterium tuberculosis, with observations on fusion of lysosomes with phagosomes // Journal of Experimental Medicine. 1971. Vol. 134. P. 713–740.
- Takeshige K., Baba M., Tsuboi S., Noda T., Ohsumi Y. Autophagy in yeast demonstrated with proteinase-deficient mutants and conditions for its induction // Journal of Cell Biology. 1992. Vol. 119. P. 301–311.
- Mizushima N., Komatsu M. Autophagy: renovation of cells and tissues // Cell. 2011. Vol. 147. P. 728–741.
- Goldfischer S., Moore C. L., Johnson A. B. et al. Peroxisomal and mitochondrial defects in the cerebro-hepato-renal syndrome // Science. 1973. Vol. 182. P. 62–64.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…