
В 1949 году бельгийский биохимик К. де Дюв изучал, как инсулин действует на клетки печени. Он растирал печень крысы, разделял полученную кашицу центрифугой на фракции и в каждой измерял активность ферментов. Для сравнения он определял и кислую фосфатазу — фермент, который, как тогда считалось, к делу отношения не имел. Свежие препараты показали неожиданно низкую активность. Те же фракции, простоявшие пять дней в холодильнике, дали в несколько раз больше. Ошибки в измерениях не нашлось, и де Дюв предположил, что фермент заключён в мешочки с мембраной: пока мешочки целы, субстрат к ферменту не проникает, а со временем мембраны рвутся, и фермент «освобождается». В 1955 году он назвал эти мешочки лизосомами — «растворяющими тельцами», хотя увидеть их в электронный микроскоп удалось только после этого [1, 2].
Эта история хорошо показывает главное, что нужно понять о клетке: она не мешок с раствором ферментов, а система отсеков. У каждого отсека свой состав, своя кислотность и своя работа, и все они связаны потоками веществ и сигналов. Эта статья открывает серию о строении клетки для подготовки к ЕГЭ и олимпиадам. В ней разобран общий план: как увидели внутреннее устройство клетки, из чего она состоит, как классифицируют её структуры, зачем нужны отсеки и как органоиды работают вместе. Подробностям об отдельных органоидах посвящены следующие статьи серии.
- 1. Что видно в световой микроскоп
- 2. Электронный микроскоп и центрифуга: как открыли органоиды
- 3. Как изучают клетку сегодня
- 4. Два типа клеток
- 5. Общий план эукариотической клетки
- 6. Классификация органоидов
- 7. Зачем клетке отсеки
- 8. Клетка в цифрах
- 9. Эндомембранная система: единая сеть
- 10. Как белок находит свой органоид
- 11. Путь секреторного белка
- 12. Митохондрии и пластиды: бактерии внутри клетки
- 13. Немембранные структуры и «капли» в цитоплазме
- 14. Ядро: опыты с ацетабулярией
- 15. Органоиды соприкасаются
- 16. Цитоплазма: тесно, вязко и в движении
- 17. Клетки растений, животных и грибов
- 18. Клетки разных профессий
- 19. Клетки без ядра и без митохондрий
- 20. Как узнать органоид на рисунке и фотографии
- 21. Частые ошибки
- 22. Интересные факты
- 23. Частые вопросы
- 24. ЕГЭ
- 25. Для олимпиад
- 26. Задания с разбором
- Литература
1. Что видно в световой микроскоп
Первые клетки увидел английский естествоиспытатель Р. Гук. В книге «Микрография» (1665) он описал тонкий срез пробки, похожий на пчелиные соты, и назвал его ячейки клетками (cells). На самом деле это были пустые оболочки — клеточные стенки мёртвых клеток. Примерно через десять лет голландский торговец сукном А. ван Левенгук, шлифовавший линзы сам, разглядел в капле воды подвижных «анималькулей» — одноклеточных эукариот, а затем и бактерии, а также эритроциты и сперматозоиды [3].
Полтора века после этого клетку видели в основном как оболочку с содержимым. В 1831 году шотландский ботаник Р. Браун заметил в клетках эпидермиса орхидей плотное округлое тельце и назвал его ядром (nucleus). В 1838–1839 годах ботаник М. Шлейден и зоолог Т. Шванн обобщили наблюдения: все растения и животные состоят из клеток, и клетки у них устроены сходно. В 1855 году врач Р. Вирхов добавил к этому положение «каждая клетка — от клетки» (omnis cellula e cellula). Так сложилась клеточная теория — одно из оснований биологии, которое проверяется и на ЕГЭ.
Во второй половине XIX века световые микроскопы приблизились к пределу своих возможностей. Немецкий физик Э. Аббе, работавший с оптиком К. Цейсом, показал, что две точки нельзя увидеть раздельно, если расстояние между ними меньше примерно половины длины волны света. Для видимого света это около 0,2 мкм. Предел определяется волновой природой света, а не качеством стёкол, поэтому никакое увеличение его не преодолеет [3].
Предел разрешения. Формула Аббе: d = λ / (2n sin α), где λ — длина волны, n sin α — числовая апертура объектива (у лучших иммерсионных объективов около 1,4). Для зелёного света λ = 550 нм: d = 550 / (2 · 1,4) ≈ 200 нм = 0,2 мкм. Митохондрию (0,5–1 мкм в ширину) световой микроскоп ещё различит, а рибосому (около 25 нм) — нет.
Помогли красители. Гистологи научились окрашивать клетки: ядра хорошо принимали основные красители, и в 1879–1882 годах немецкий анатом В. Флемминг увидел в них окрашенное вещество — хроматин — и проследил, как в делящейся клетке из него образуются нити, позже названные хромосомами. В 1890 году Р. Альтман описал в цитоплазме мелкие зёрна, которые считал самостоятельными живыми частицами, «биобластами». В 1898 году К. Бенда назвал их митохондриями — от греческих слов «нить» и «зерно». В том же году итальянский гистолог К. Гольджи, пропитывая нервные клетки солями серебра и осмия, увидел вокруг ядра тонкую сеточку — «внутренний сетчатый аппарат», который сегодня носит его имя [3, 4].
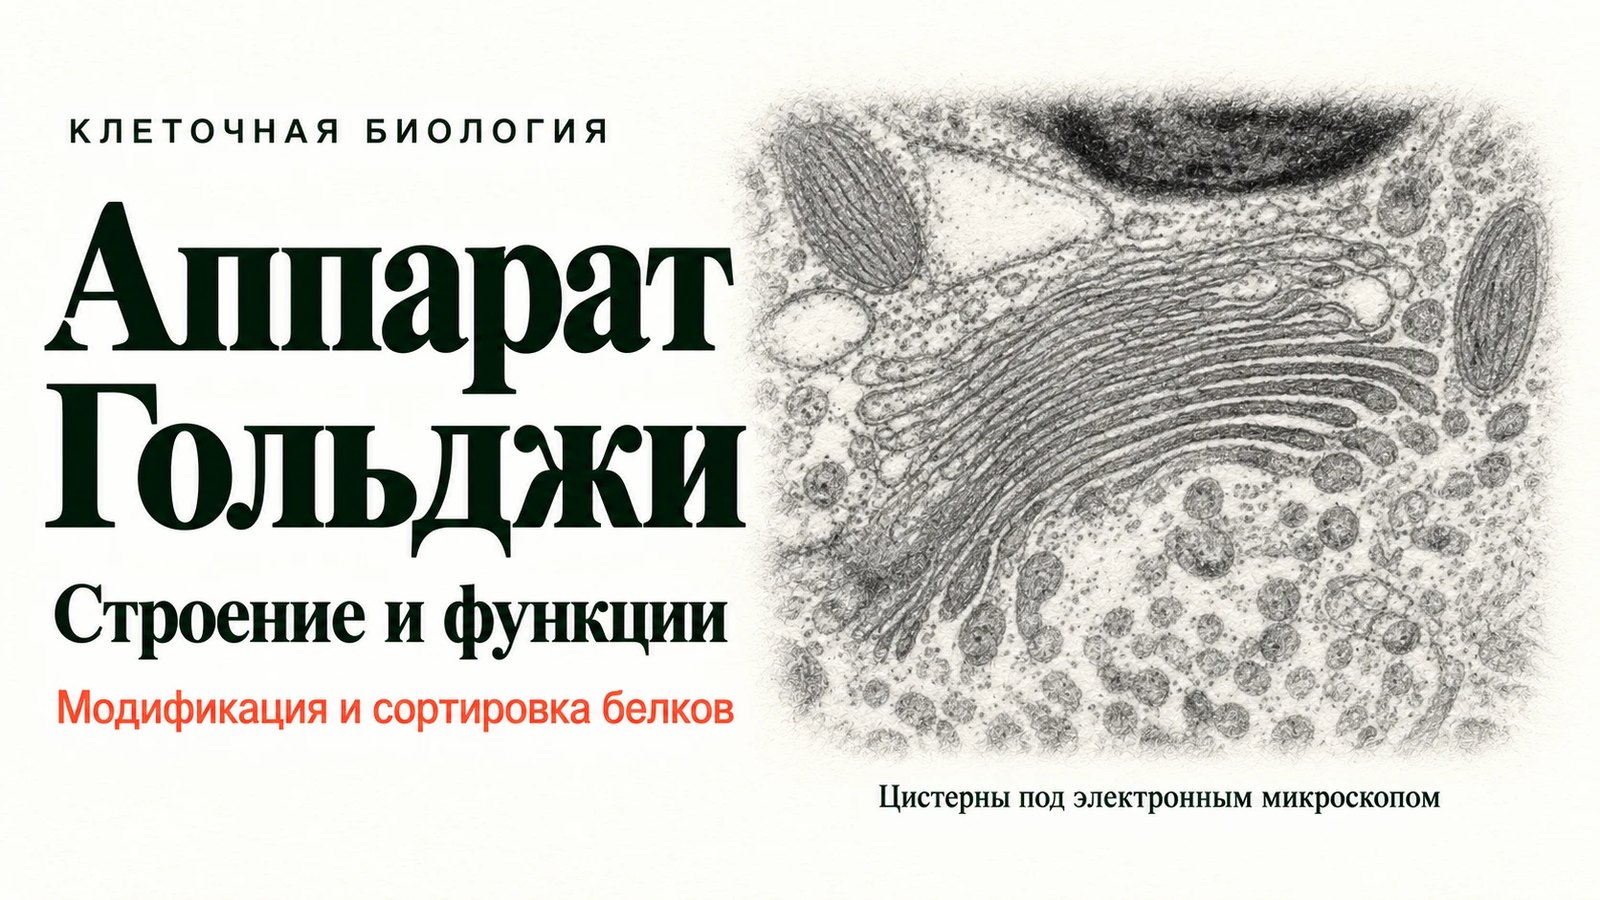
Аппарату Гольджи долго не верили. Структура проявлялась только при определённой обработке, и многие гистологи считали её артефактом — осадком металла, который никакого отношения к живой клетке не имеет. Спор длился полвека и закончился, только когда электронный микроскоп показал в клетках стопки уплощённых цистерн именно там, где их рисовал Гольджи. Подробно об этом — в статье «Аппарат Гольджи: строение и функции».
К началу XX века в световой микроскоп были видны ядро с ядрышком, хромосомы, митохондрии, пластиды, вакуоли, клеточный центр, аппарат Гольджи, реснички и жгутики. Но как эти структуры устроены внутри и что в них происходит, оставалось загадкой.
2. Электронный микроскоп и центрифуга: как открыли органоиды
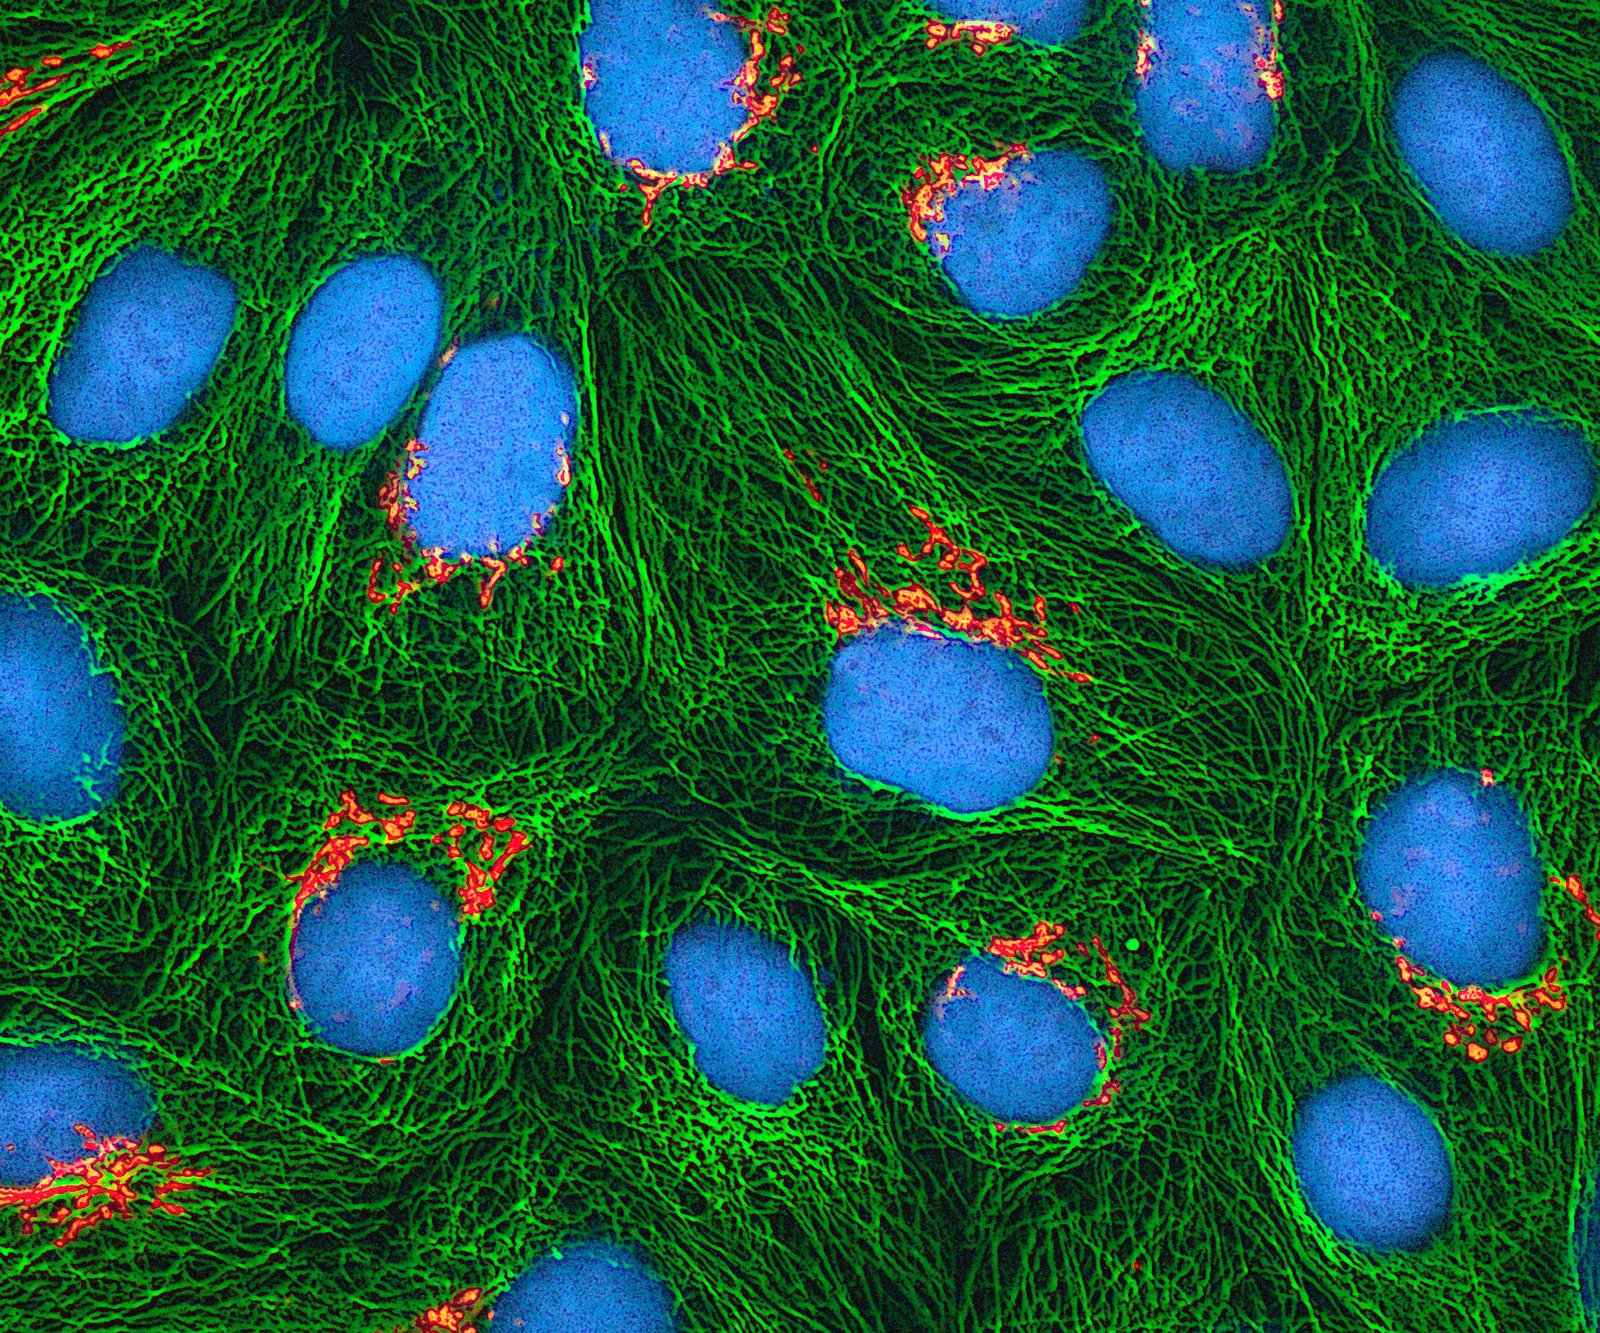
Выход дал электрон. Длина волны быстрого электрона в тысячи раз меньше длины волны света, и в 1931 году немецкие инженеры М. Кнолль и Э. Руска построили первый электронный микроскоп с магнитными линзами [5]. Через два года прибор Руски уже превзошёл по разрешению лучшие световые микроскопы. Руска получил за это изобретение Нобелевскую премию по физике — правда, только в 1986 году, за два года до смерти.
Биологам электронный микроскоп сначала мало помог. Электроны поглощаются воздухом и толстыми образцами, поэтому препарат должен быть в вакууме и очень тонким, а живая клетка в вакууме высыхает и разрушается. Понадобились годы, чтобы научиться фиксировать клетки (особенно удачным оказался тетраоксид осмия, который заодно контрастирует мембраны), заливать их в пластик и резать на срезы толщиной в десятки нанометров. В 1945 году К. Портер, А. Клод и Э. Фуллам получили первую электронную фотографию целой клетки — тонкого краевого участка клетки куриного зародыша, выращенной на плёнке. В цитоплазме виднелась кружевная сеть канальцев, которую позже назвали эндоплазматической сетью [6].
Параллельно развивался другой метод — дифференциальное центрифугирование. Его отработал бельгиец А. Клод в Рокфеллеровском институте в Нью-Йорке. Ткань гомогенизируют — разрушают клетки, но стараются сохранить органоиды, — а затем центрифугируют с возрастающей скоростью. Сначала оседают самые крупные и плотные частицы: ядра и обломки клеток. Затем — митохондрии. При ещё более высоких ускорениях — мелкие пузырьки, которые Клод назвал микросомами (как выяснилось, это обрывки ЭПС с рибосомами). В надосадочной жидкости остаётся цитозоль. Каждую фракцию можно было изучить биохимически: какие в ней ферменты, что она умеет делать [3].
Так выяснилось, что митохондрии окисляют органические вещества и синтезируют АТФ, что синтез белка связан с микросомами, а лизосомы содержат гидролазы. Румынский по происхождению американский цитолог Дж. Паладе соединил оба метода: в 1955 году он описал в электронном микроскопе мелкие плотные гранулы, которые густо покрывали мембраны ЭПС и лежали в цитоплазме свободно, а затем показал, что именно они — место синтеза белка [7]. Позднее эти гранулы назвали рибосомами. В 1974 году Клод, де Дюв и Паладе разделили Нобелевскую премию по физиологии и медицине «за открытия, касающиеся структурной и функциональной организации клетки».
Как увидели пероксисомы. В 1954 году в клетках почки мыши описали округлые одномембранные тельца — «микротельца». Их функция была неизвестна, пока группа де Дюва не нашла в такой фракции печени оксидазы, образующие пероксид водорода, и каталазу, которая его разлагает. В 1965–1966 годах де Дюв назвал эти органоиды пероксисомами. Так функцию органоида, сначала увиденного в микроскоп, установили с помощью центрифуги.
За 1950–1960-е годы электронная микроскопия показала тонкое строение мембран, митохондрий с кристами, хлоропластов с гранами, ядерной оболочки с порами, ресничек с характерным набором микротрубочек 9 + 2. Большинство рисунков клетки в учебниках основано на этих фотографиях.
3. Как изучают клетку сегодня
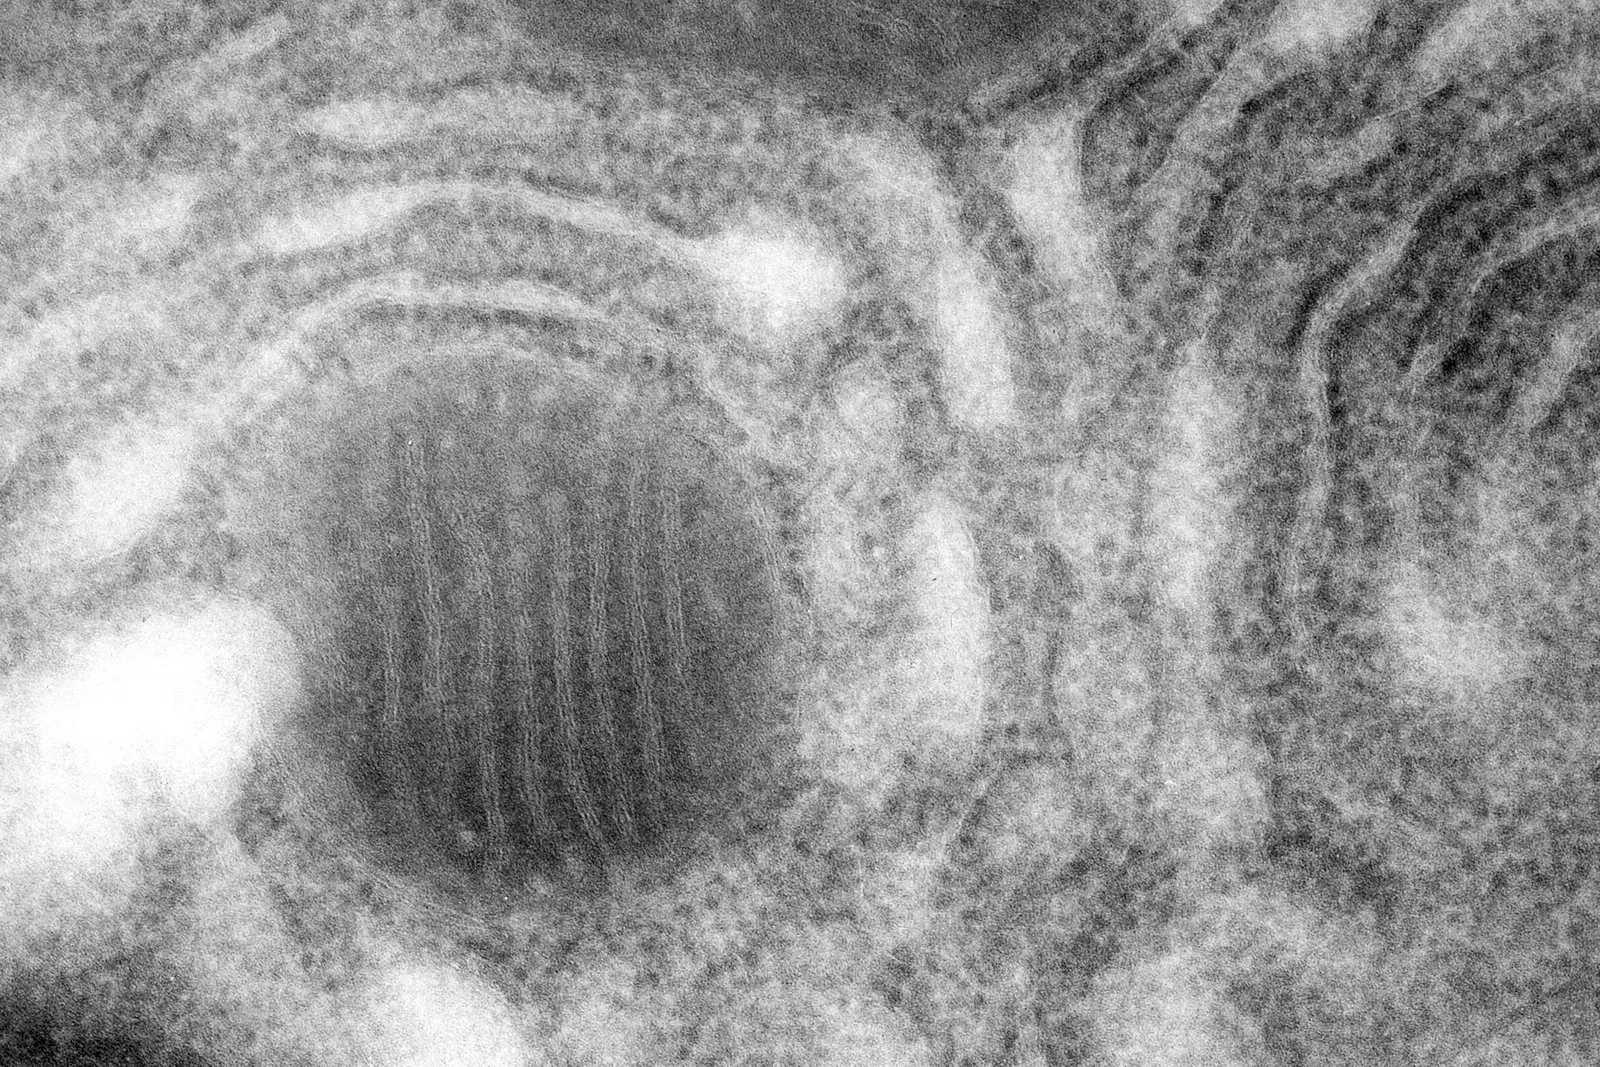
У электронной микроскопии есть важный недостаток: она показывает мёртвую, фиксированную клетку. Как органоиды движутся и меняются, по ней не понять. Решение нашлось там, где его не искали. В 1962 году японский химик О. Симомура, изучая свечение медузы Aequorea victoria, выделил из неё белок экворин, а вместе с ним — второй, зелёный флуоресцентный белок [8]. Тридцать лет спустя американец М. Чалфи вставил ген этого белка в бактерию и в нематоду, и они засветились зелёным в ультрафиолете [9]. Оказалось, что белку для свечения не нужно ничего, кроме собственной цепи. Его ген можно «пришить» к гену любого белка клетки — и светящаяся метка покажет, где этот белок находится в живой клетке и куда перемещается. Р. Цянь получил варианты других цветов. В 2008 году Симомура, Чалфи и Цянь стали лауреатами Нобелевской премии по химии.
Но и флуоресцентный микроскоп подчиняется пределу Аббе. Обойти его помогли методы сверхразрешения. Один из них предложил американский физик Э. Бетциг: если в каждый момент светятся лишь немногие случайные молекулы метки, положение каждой можно найти с точностью до нанометров, а затем сложить тысячи кадров в одно изображение [10]. Бетциг, а также Ш. Хелл и У. Мёрнер получили за сверхразрешающую микроскопию Нобелевскую премию по химии 2014 года.
Третья революция — криоэлектронная микроскопия. Образец не сушат и не окрашивают, а мгновенно замораживают так, что вода превращается не в кристаллы льда, а в аморфное стекло. Компьютер объединяет десятки тысяч изображений одинаковых молекул в трёхмерную модель с почти атомным разрешением. Так увидели строение рибосомы во время синтеза белка, ядерной поры, мембранных насосов. Ж. Дюбоше, Й. Франк и Р. Хендерсон получили за этот метод Нобелевскую премию по химии 2017 года. Сегодня криоэлектронная томография позволяет рассматривать органоиды прямо внутри тонкого слоя замороженной клетки.
| Метод | Разрешение | Что даёт | Ограничения |
|---|---|---|---|
| Световой микроскоп | около 0,2 мкм | живые клетки, ядро, хлоропласты, вакуоли, движение цитоплазмы | не видно рибосом, мембран, внутреннего строения органоидов |
| Флуоресцентный микроскоп | около 0,2 мкм (со сверхразрешением — десятки нанометров) | расположение и движение конкретных белков в живой клетке | видно только то, что помечено |
| Электронный микроскоп | для клеток — несколько нанометров | мембраны, кристы, граны, рибосомы, поры ядра | клетка мёртвая, нужна фиксация и срезы |
| Криоэлектронная микроскопия | для молекул — доли нанометра | строение белковых комплексов и органоидов без химической обработки | сложная и дорогая аппаратура |
| Дифференциальное центрифугирование | — | чистые фракции органоидов для биохимии | клетки разрушаются, органоиды частично повреждаются |
Методы цитологии — тема заданий ЕГЭ. Нужно помнить, что центрифугирование разделяет органоиды по размеру и плотности, а электронный микроскоп позволил изучить ультраструктуру клетки — строение органоидов, недоступное световому микроскопу.
4. Два типа клеток
Электронная микроскопия провела в мире живого резкую границу. У одних организмов наследственный материал отделён от цитоплазмы двойной мембраной ядерной оболочки, а цитоплазма разделена мембранами на множество отсеков. У других ядра нет, ДНК лежит прямо в цитоплазме (эту область называют нуклеоидом), а мембранных органоидов почти нет. Первых назвали эукариотами («с настоящим ядром»), вторых — прокариотами («до ядра»). Прокариоты — это бактерии и археи, эукариоты — протисты, грибы, растения и животные [3, 11].
| Признак | Прокариотическая клетка | Эукариотическая клетка |
|---|---|---|
| Ядро | нет; ДНК в нуклеоиде | есть, с двойной оболочкой и порами |
| ДНК | обычно одна кольцевая хромосома, часто плазмиды; гистонов у бактерий нет | несколько линейных хромосом с гистонами; кольцевая ДНК в митохондриях и пластидах |
| Мембранные органоиды | нет (бывают впячивания мембраны, тилакоиды цианобактерий) | ЭПС, аппарат Гольджи, лизосомы, вакуоли, митохондрии, пластиды |
| Рибосомы | 70S | 80S в цитоплазме, 70S в митохондриях и пластидах |
| Цитоскелет | есть белки-предшественники актина и тубулина | развитый: микрофиламенты, микротрубочки, промежуточные филаменты |
| Жгутики | вращающаяся белковая нить (у бактерий и архей разные) | выросты клетки с микротрубочками 9 + 2, изгибаются |
| Деление | бинарное, без митоза | митоз, мейоз |
| Размер | обычно 0,5–5 мкм | обычно 10–100 мкм |
Строение прокариотической клетки, клеточная стенка бактерий и архей, автотрофные и гетеротрофные прокариоты и их роль в биоценозах подробно разобраны в статье «Типы клеток: прокариотическая и эукариотическая». Ниже речь пойдёт в основном об эукариотической клетке.
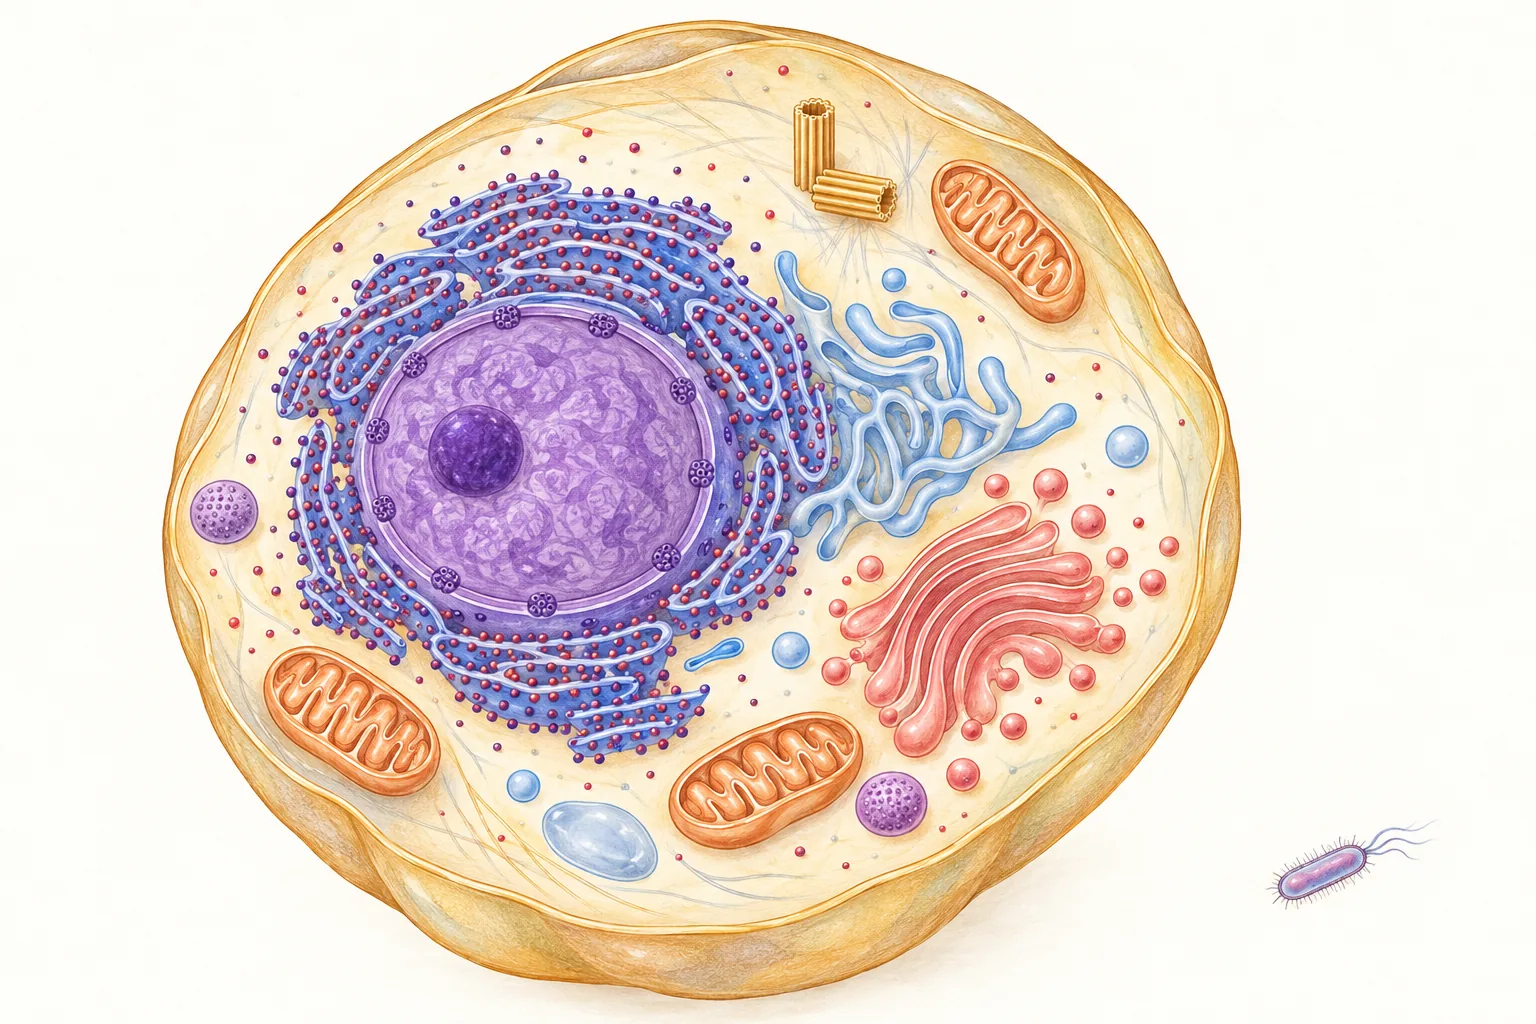
Разница в размерах значительна. Кишечная палочка имеет длину около 2 мкм и объём около 1 мкм³. Клетка печени человека имеет поперечник около 20 мкм, а объём — несколько тысяч кубических микрометров [12]. Значит, в объёме одной клетки печени поместились бы тысячи кишечных палочек. Есть исключения в обе стороны: самая мелкая из известных свободноживущих эукариотических клеток, морская зелёная водоросль Ostreococcus tauri, меньше микрометра, а бактерия Thiomargarita magnifica, описанная в 2022 году, достигает двух сантиметров в длину. Но в среднем эукариотическая клетка в тысячи раз больше прокариотической по объёму, и именно отсеки позволяют ей работать при таких размерах.
5. Общий план эукариотической клетки
В школьной цитологии эукариотическую клетку делят на три части: поверхностный аппарат, цитоплазму и ядро [4].
Поверхностный аппарат отделяет клетку от среды и связывает с ней. Его основа — плазматическая мембрана (плазмалемма): двойной слой липидов со встроенными белками. Снаружи к мембране у животных клеток прикреплён гликокаликс — слой углеводных цепей, связанных с белками и липидами; он участвует в узнавании клеток друг другом. У растений, грибов и многих протистов поверх мембраны лежит прочная клеточная стенка. Через поверхностный аппарат в клетку поступают вещества, через него проходят сигналы, с его помощью клетки соединяются в ткани. Строение мембраны и транспорт веществ через неё разобраны в статьях «Плазматическая мембрана» и «Транспорт веществ через мембрану».
Цитоплазма — всё содержимое клетки между плазмалеммой и ядром. В ней различают три составляющие.
- Цитозоль (гиалоплазма) — жидкая часть цитоплазмы: водный раствор белков, РНК, ионов, сахаров, аминокислот. В цитозоле идут гликолиз, синтез белка на свободных рибосомах, множество других реакций.
- Органоиды (органеллы) — постоянные структуры цитоплазмы, каждая со своим строением и функцией: эндоплазматическая сеть, аппарат Гольджи, лизосомы, вакуоли, митохондрии, пластиды, рибосомы, клеточный центр, цитоскелет и другие.
- Включения — непостоянные образования: запасные вещества (крахмальные зёрна, капли жира, гранулы гликогена) и продукты обмена (кристаллы солей). Они появляются и исчезают в зависимости от состояния клетки.
Ядро хранит основную часть наследственной информации клетки и управляет её жизнью. Оно окружено двумембранной оболочкой с порами, внутри находятся хроматин, ядрышки и ядерный сок — кариоплазма.
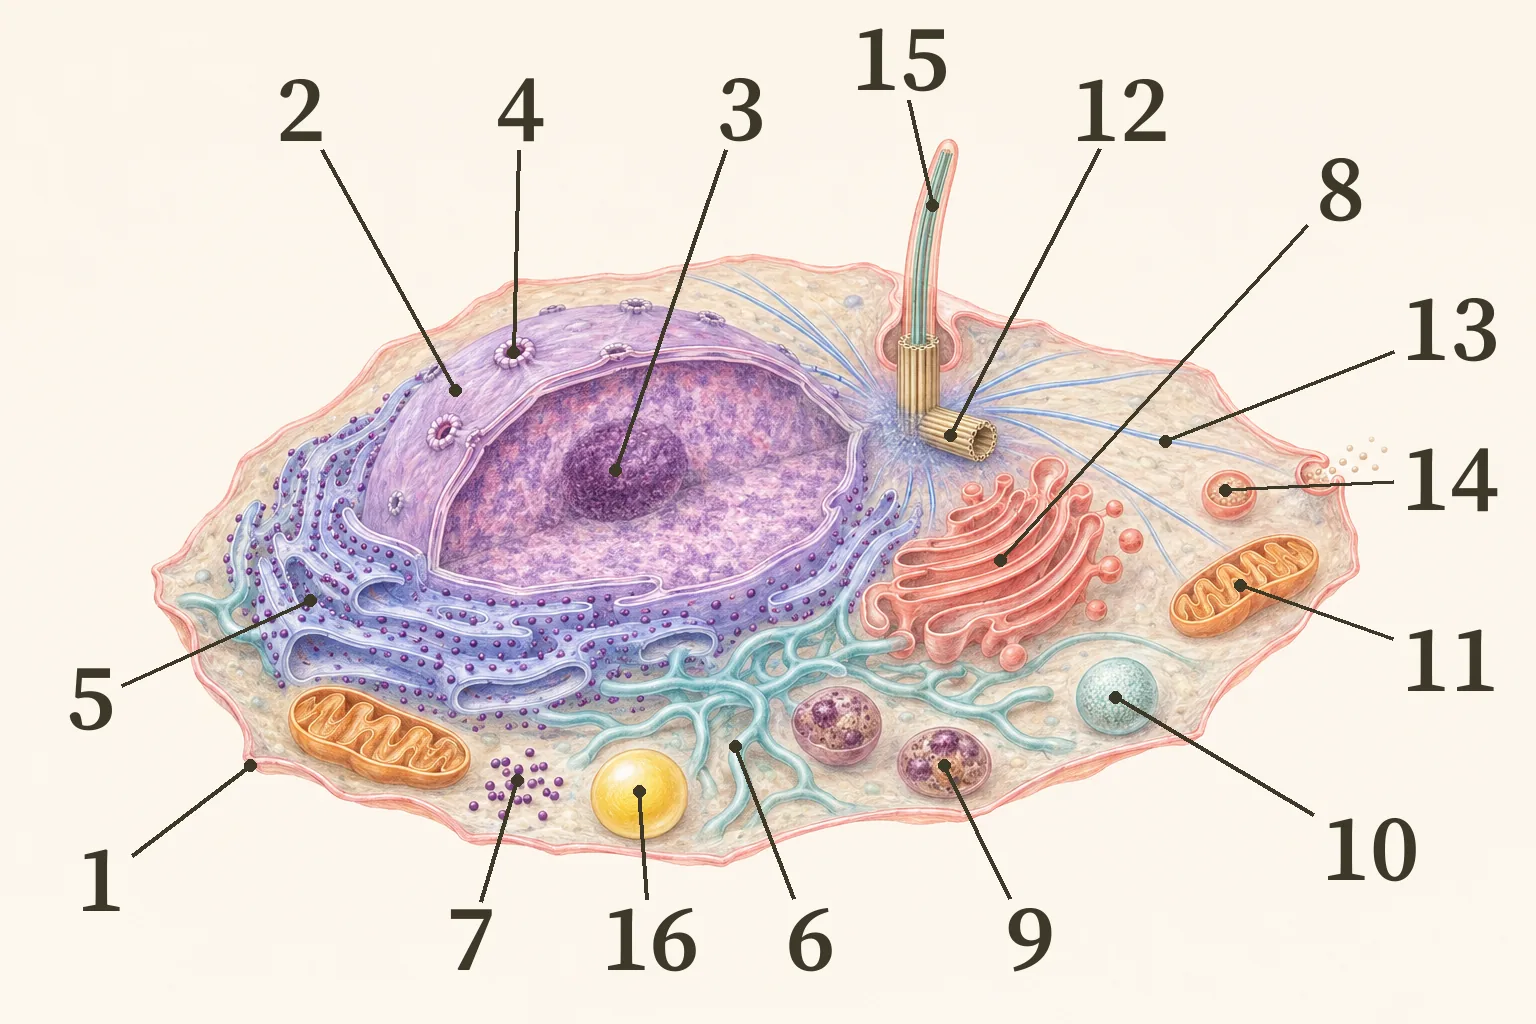
Эту схему не стоит понимать буквально: границы между частями подвижны. Мембрана ядерной оболочки переходит в мембрану ЭПС, а пространство между двумя мембранами ядерной оболочки сообщается с полостью ЭПС. В делящейся клетке животного ядерная оболочка распадается на пузырьки, и хромосомы оказываются прямо в цитоплазме. Цитоскелет пронизывает всю клетку и связан и с плазмалеммой, и с ядром. Поэтому современные учебники говорят о клетке как о целостной системе, а деление на части нужно прежде всего для удобства описания.
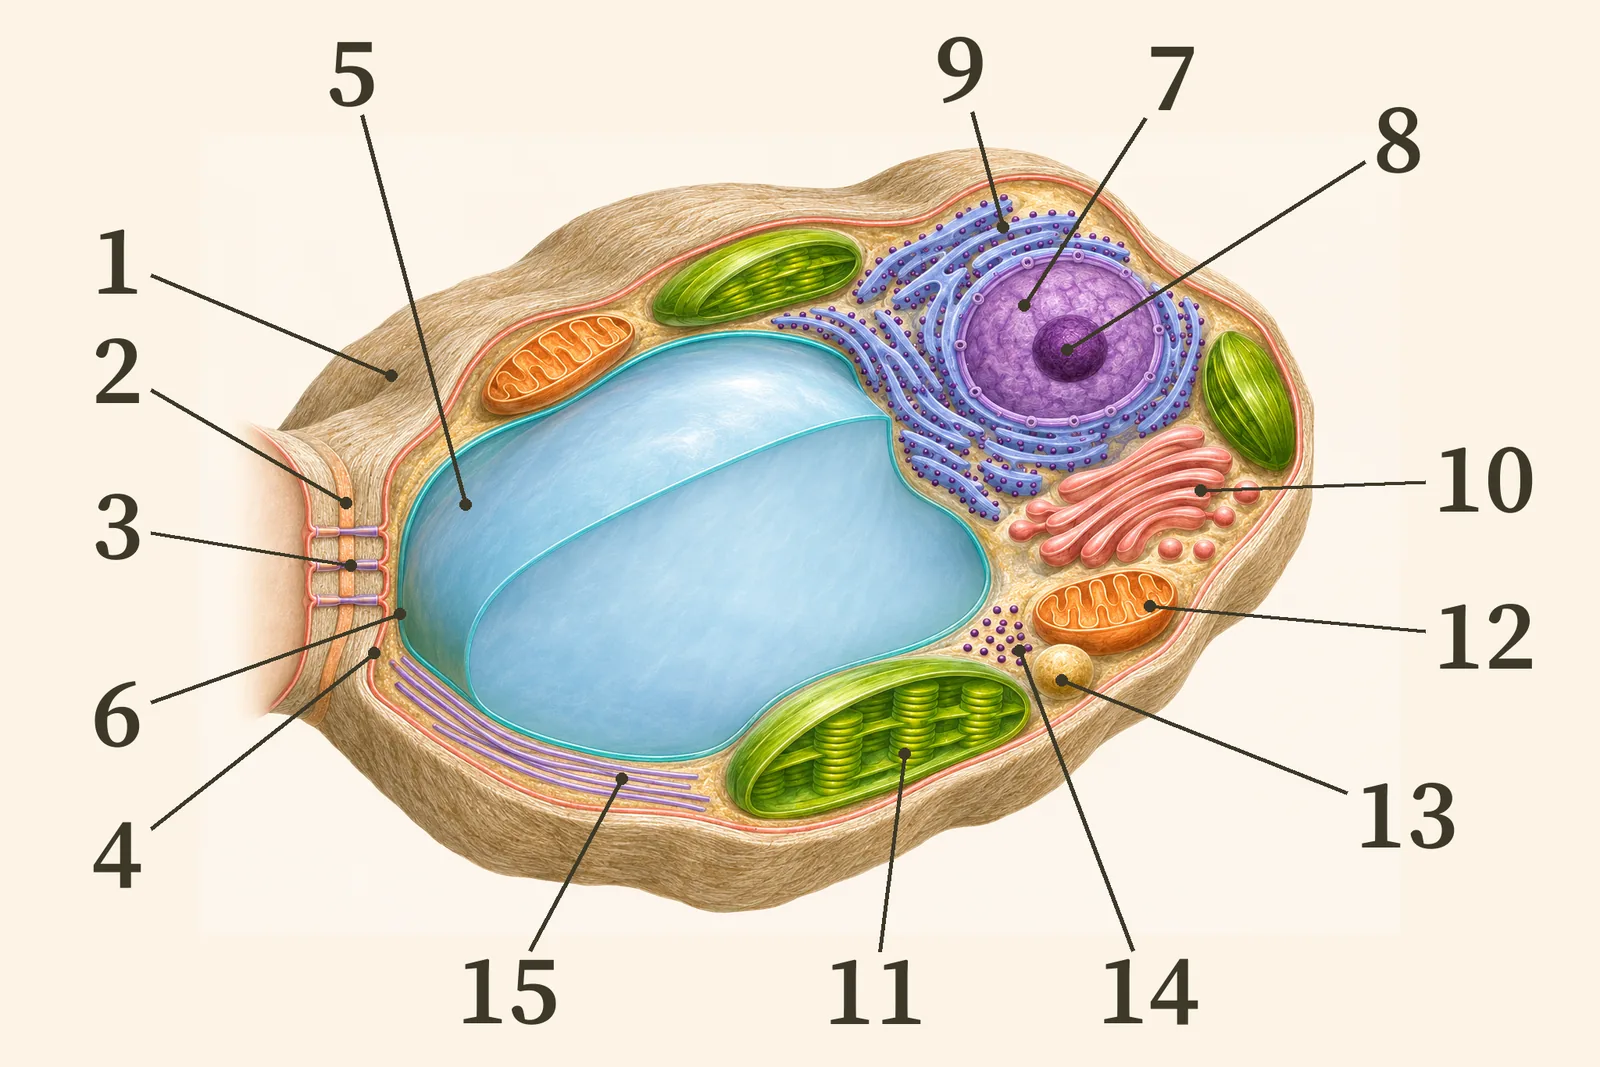
Как потерять балл. Назвать цитоплазму «жидкостью, в которой плавают органоиды». Цитоплазма включает и цитозоль, и органоиды, и включения; жидкую часть называют цитозолем, или гиалоплазмой. И ещё: включения — не органоиды. Капля жира или крахмальное зерно не имеют постоянного строения и функции, их количество меняется.
6. Классификация органоидов
Органоиды принято группировать по строению — по числу мембран, которые их окружают. Это удобно не только для экзамена: число мембран отражает происхождение органоида и способ его работы [3, 4].
- ЭПСшероховатая и гладкая
- Аппарат Гольджи
- Лизосомы
- Вакуоли
- Пероксисомы
- Эндосомы, пузырьки
- Митохондриисвоя ДНК, рибосомы 70S
- Пластидыхлоро-, хромо-, лейкопласты
- Ядров кодификаторе — отдельно от органоидов
- Рибосомы80S в цитоплазме
- Клеточный центрцентриоли 9 × 3
- Цитоскелетмикротрубочки, микрофиламенты, промежуточные филаменты
- Реснички и жгутикимикротрубочки 9 + 2
Одномембранные органоиды — эндоплазматическая сеть (шероховатая и гладкая), аппарат Гольджи, лизосомы, вакуоли, пероксисомы, а также эндосомы и различные транспортные пузырьки. Все они, кроме пероксисом, образуют единую эндомембранную систему: их мембраны происходят одна из другой и обмениваются пузырьками.
Двумембранные органоиды — митохондрии и пластиды. Их называют полуавтономными: у них есть собственная кольцевая ДНК, собственные рибосомы бактериального типа (70S), они размножаются делением и не образуются заново из других мембран клетки. Это наследство их происхождения от бактерий-симбионтов. Ядро тоже окружено двумя мембранами, и в части учебников его относят к двумембранным органоидам, но в кодификаторе ЕГЭ оно рассматривается отдельно, как самостоятельный компонент клетки.
Немембранные органоиды — рибосомы, клеточный центр с центриолями, микротрубочки, микрофиламенты и промежуточные филаменты цитоскелета, базальные тельца ресничек и жгутиков. Реснички и жгутики окружены плазмалеммой, но сами построены из микротрубочек и поэтому обычно рассматриваются вместе с немембранными органоидами. Ядрышко тоже не окружено мембраной, но это не органоид цитоплазмы, а структура ядра.
| Органоид | Строение | Главные функции | Где есть |
|---|---|---|---|
| Шероховатая ЭПС | одна мембрана; цистерны, покрытые рибосомами | синтез белков на экспорт, мембранных и лизосомных белков; их сворачивание | все эукариоты |
| Гладкая ЭПС | одна мембрана; ветвящиеся трубочки без рибосом | синтез липидов и стероидов, обезвреживание ядов, запас ионов кальция | все эукариоты |
| Аппарат Гольджи | одна мембрана; стопки уплощённых цистерн и пузырьки | доработка, сортировка и упаковка белков, секреция, образование лизосом; у растений — синтез полисахаридов стенки | все эукариоты (кроме немногих паразитических протистов) |
| Лизосомы | одна мембрана; пузырёк с гидролазами, кислая среда | внутриклеточное переваривание, разрушение старых органоидов | животные, грибы; у растений их роль выполняет вакуоль |
| Вакуоли | одна мембрана (тонопласт); полость с клеточным соком | запас воды и веществ, тургор, накопление отходов, у растений — переваривание | растения, грибы, многие протисты |
| Пероксисомы | одна мембрана; пузырёк с оксидазами и каталазой | окисление жирных кислот, обезвреживание пероксида водорода | все эукариоты |
| Митохондрии | две мембраны, внутренняя образует кристы; ДНК, рибосомы 70S | клеточное дыхание, синтез АТФ | почти все эукариоты |
| Пластиды | две (у некоторых водорослей три или четыре) мембраны; ДНК, рибосомы 70S | фотосинтез (хлоропласты), окраска (хромопласты), запас (лейкопласты) | растения, водоросли |
| Рибосомы | без мембраны; две субъединицы из рРНК и белков | синтез белка | все клетки |
| Клеточный центр | без мембраны; две центриоли из микротрубочек (9 × 3) | организация микротрубочек, веретена деления | животные, многие протисты; у высших растений центриолей нет |
| Цитоскелет | без мембраны; микротрубочки, микрофиламенты, промежуточные филаменты | форма клетки, движение, транспорт внутри клетки, деление | все эукариоты |
| Реснички и жгутики | вырост клетки, покрытый плазмалеммой; внутри микротрубочки 9 + 2 | движение клетки или жидкости вдоль клетки | многие клетки животных и протистов, сперматозоиды мхов и папоротников |
В старых учебниках встречается и другое деление — на органоиды общего значения, которые есть во всех клетках (митохондрии, ЭПС, рибосомы), и органоиды специального значения, которые есть только в специализированных клетках (миофибриллы мышечных волокон, реснички мерцательного эпителия, жгутики сперматозоидов). Это деление условно, но иногда встречается в заданиях.
Как потерять балл. Отнести рибосомы к одномембранным органоидам: на рисунках они изображены точками на мембранах ЭПС, и кажется, что они часть этих мембран. Рибосомы мембраны не имеют, они лишь временно прикрепляются к ЭПС во время синтеза белка. Вторая частая ошибка — назвать лизосому двумембранной: у неё одна мембрана.
7. Зачем клетке отсеки
Прокариоты прекрасно живут без внутренних мембран уже больше трёх с половиной миллиардов лет. Зачем же эукариотической клетке десятки разных отсеков? Ответов несколько, и все они связаны с химией и физикой.
Несовместимые реакции. В лизосоме pH около 4,5–5, и её гидролазы работают именно в кислой среде. В цитозоле pH около 7,2. Если бы лизосомные ферменты действовали по всей клетке, они переварили бы её собственные белки, нуклеиновые кислоты и мембраны. Мембрана держит их взаперти, а кислотность служит второй линией защиты: случайно вытекшие в цитозоль гидролазы в нейтральной среде почти не работают [3]. Так же разделены синтез и распад жирных кислот: синтез идёт в цитозоле, а окисление — в митохондриях и пероксисомах. Будь оба процесса в одном растворе, клетка тратила бы энергию на бесполезный круговорот.
Концентрирование. Фермент работает тем быстрее, чем выше концентрация его субстрата. Заперев нужные вещества в малом объёме, клетка ускоряет реакции. Ферменты цикла Кребса в матриксе митохондрии сосредоточены так плотно, что продукт одной реакции почти сразу попадает к следующему ферменту.
Градиенты. Мембрана, непроницаемая для ионов, позволяет создать разность их концентраций, а с ней — запас энергии. Митохондрия перекачивает протоны из матрикса в межмембранное пространство, и обратный поток протонов через фермент АТФ-синтазу даёт энергию для синтеза АТФ. Хлоропласт делает то же самое, только накапливает протоны внутри тилакоидов. Без замкнутой мембраны такой механизм невозможен — именно поэтому синтез АТФ при дыхании и фотосинтезе у всех организмов связан с мембранами.
Особая среда для работы. В полости ЭПС окислительная среда: здесь легко образуются дисульфидные мостики, скрепляющие белки, которые будут работать вне клетки. Здесь же много ионов кальция и белков-шаперонов, помогающих новым цепям сворачиваться. В восстановительной среде цитозоля дисульфидные связи не образуются.
Площадь поверхности. Многие ферменты работают, только будучи встроенными в мембрану: ферменты синтеза липидов, дыхательная цепь, фотосистемы. У прокариот для них есть лишь плазмалемма. У эукариот общая площадь внутренних мембран во много раз больше площади наружной.
Поверхность и объём. У куба с ребром a площадь поверхности 6a², объём a³, отношение — 6/a. Для ребра 1 мкм отношение равно 6 мкм⁻¹, для ребра 10 мкм — 0,6 мкм⁻¹. Значит, при увеличении линейного размера в 10 раз на единицу объёма приходится в 10 раз меньше наружной мембраны. Крупной клетке не хватило бы плазмалеммы ни для обмена со средой, ни для синтеза АТФ, если бы не внутренние мембраны и складки.
Есть у отсеков и своя цена. Белки нужно доставлять в нужный отсек по «адресу», вещества — переносить через мембраны, для чего нужны белки-переносчики и затраты энергии. Мембраны нужно постоянно обновлять. Эукариотическая клетка тратит на поддержание своей внутренней организации заметную часть энергии, но выигрывает несравнимо больше.
8. Клетка в цифрах
Представить себе соотношение частей клетки помогают измерения на электронных фотографиях. Классический объект таких исследований — клетка печени (гепатоцит): она крупная, богата органоидами, и в печени таких клеток большинство. Подсчитав, какую долю площади срезов занимает каждый органоид, получают его долю в объёме клетки [3].
| Отсек гепатоцита | Доля объёма клетки | Число в клетке |
|---|---|---|
| Цитозоль | 54 % | 1 |
| Митохондрии | 22 % | около 1700 |
| Шероховатая ЭПС (полость) | 9 % | 1 |
| Гладкая ЭПС и аппарат Гольджи (полости) | 6 % | — |
| Ядро | 6 % | 1 |
| Пероксисомы | 1 % | около 400 |
| Лизосомы | 1 % | около 300 |
| Эндосомы | 1 % | около 200 |
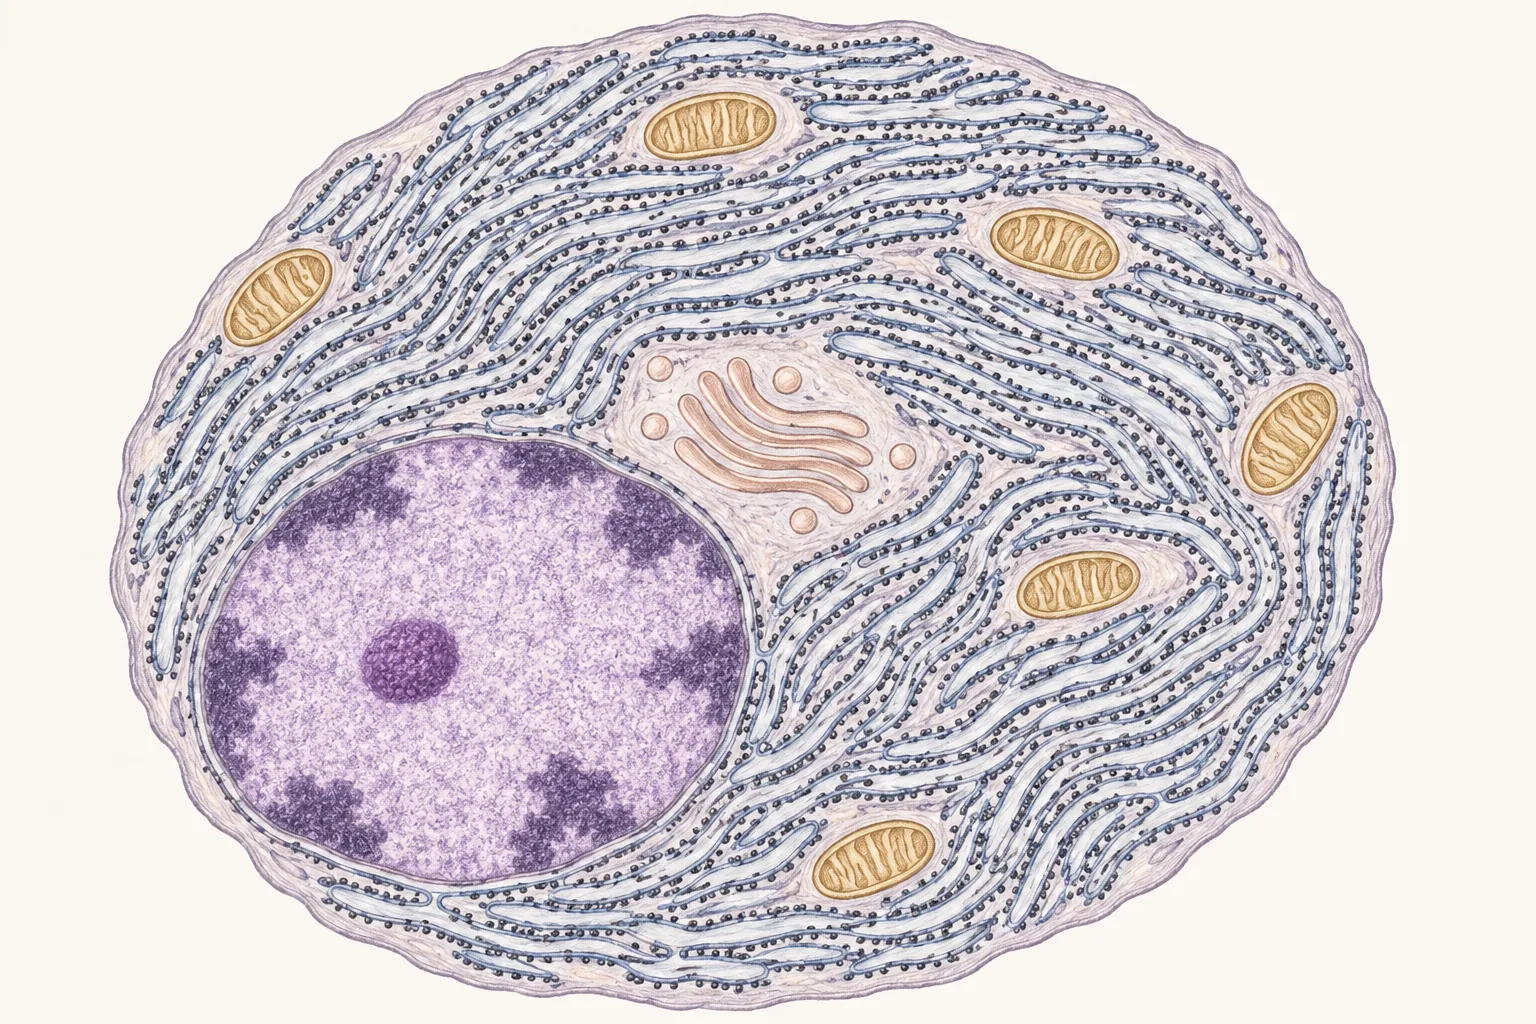
Почти половина объёма клетки печени приходится на мембранные отсеки, причём пятая часть всего объёма — на митохондрии. Ещё выразительнее площади мембран. Плазмалемма гепатоцита составляет лишь около 2 % всех его мембран. Около половины площади приходится на ЭПС (шероховатая — около 35 %, гладкая — около 16 %), около трети — на внутреннюю мембрану митохондрий с её кристами. В клетке поджелудочной железы, которая выделяет огромное количество пищеварительных ферментов, на шероховатую ЭПС приходится уже около 60 % мембран [3]. Соотношение органоидов в клетке отражает её работу: где много секреции белков — много шероховатой ЭПС, где много энергозатрат — много митохондрий.
Другие числа, которые помогают почувствовать масштаб [12, 13]:
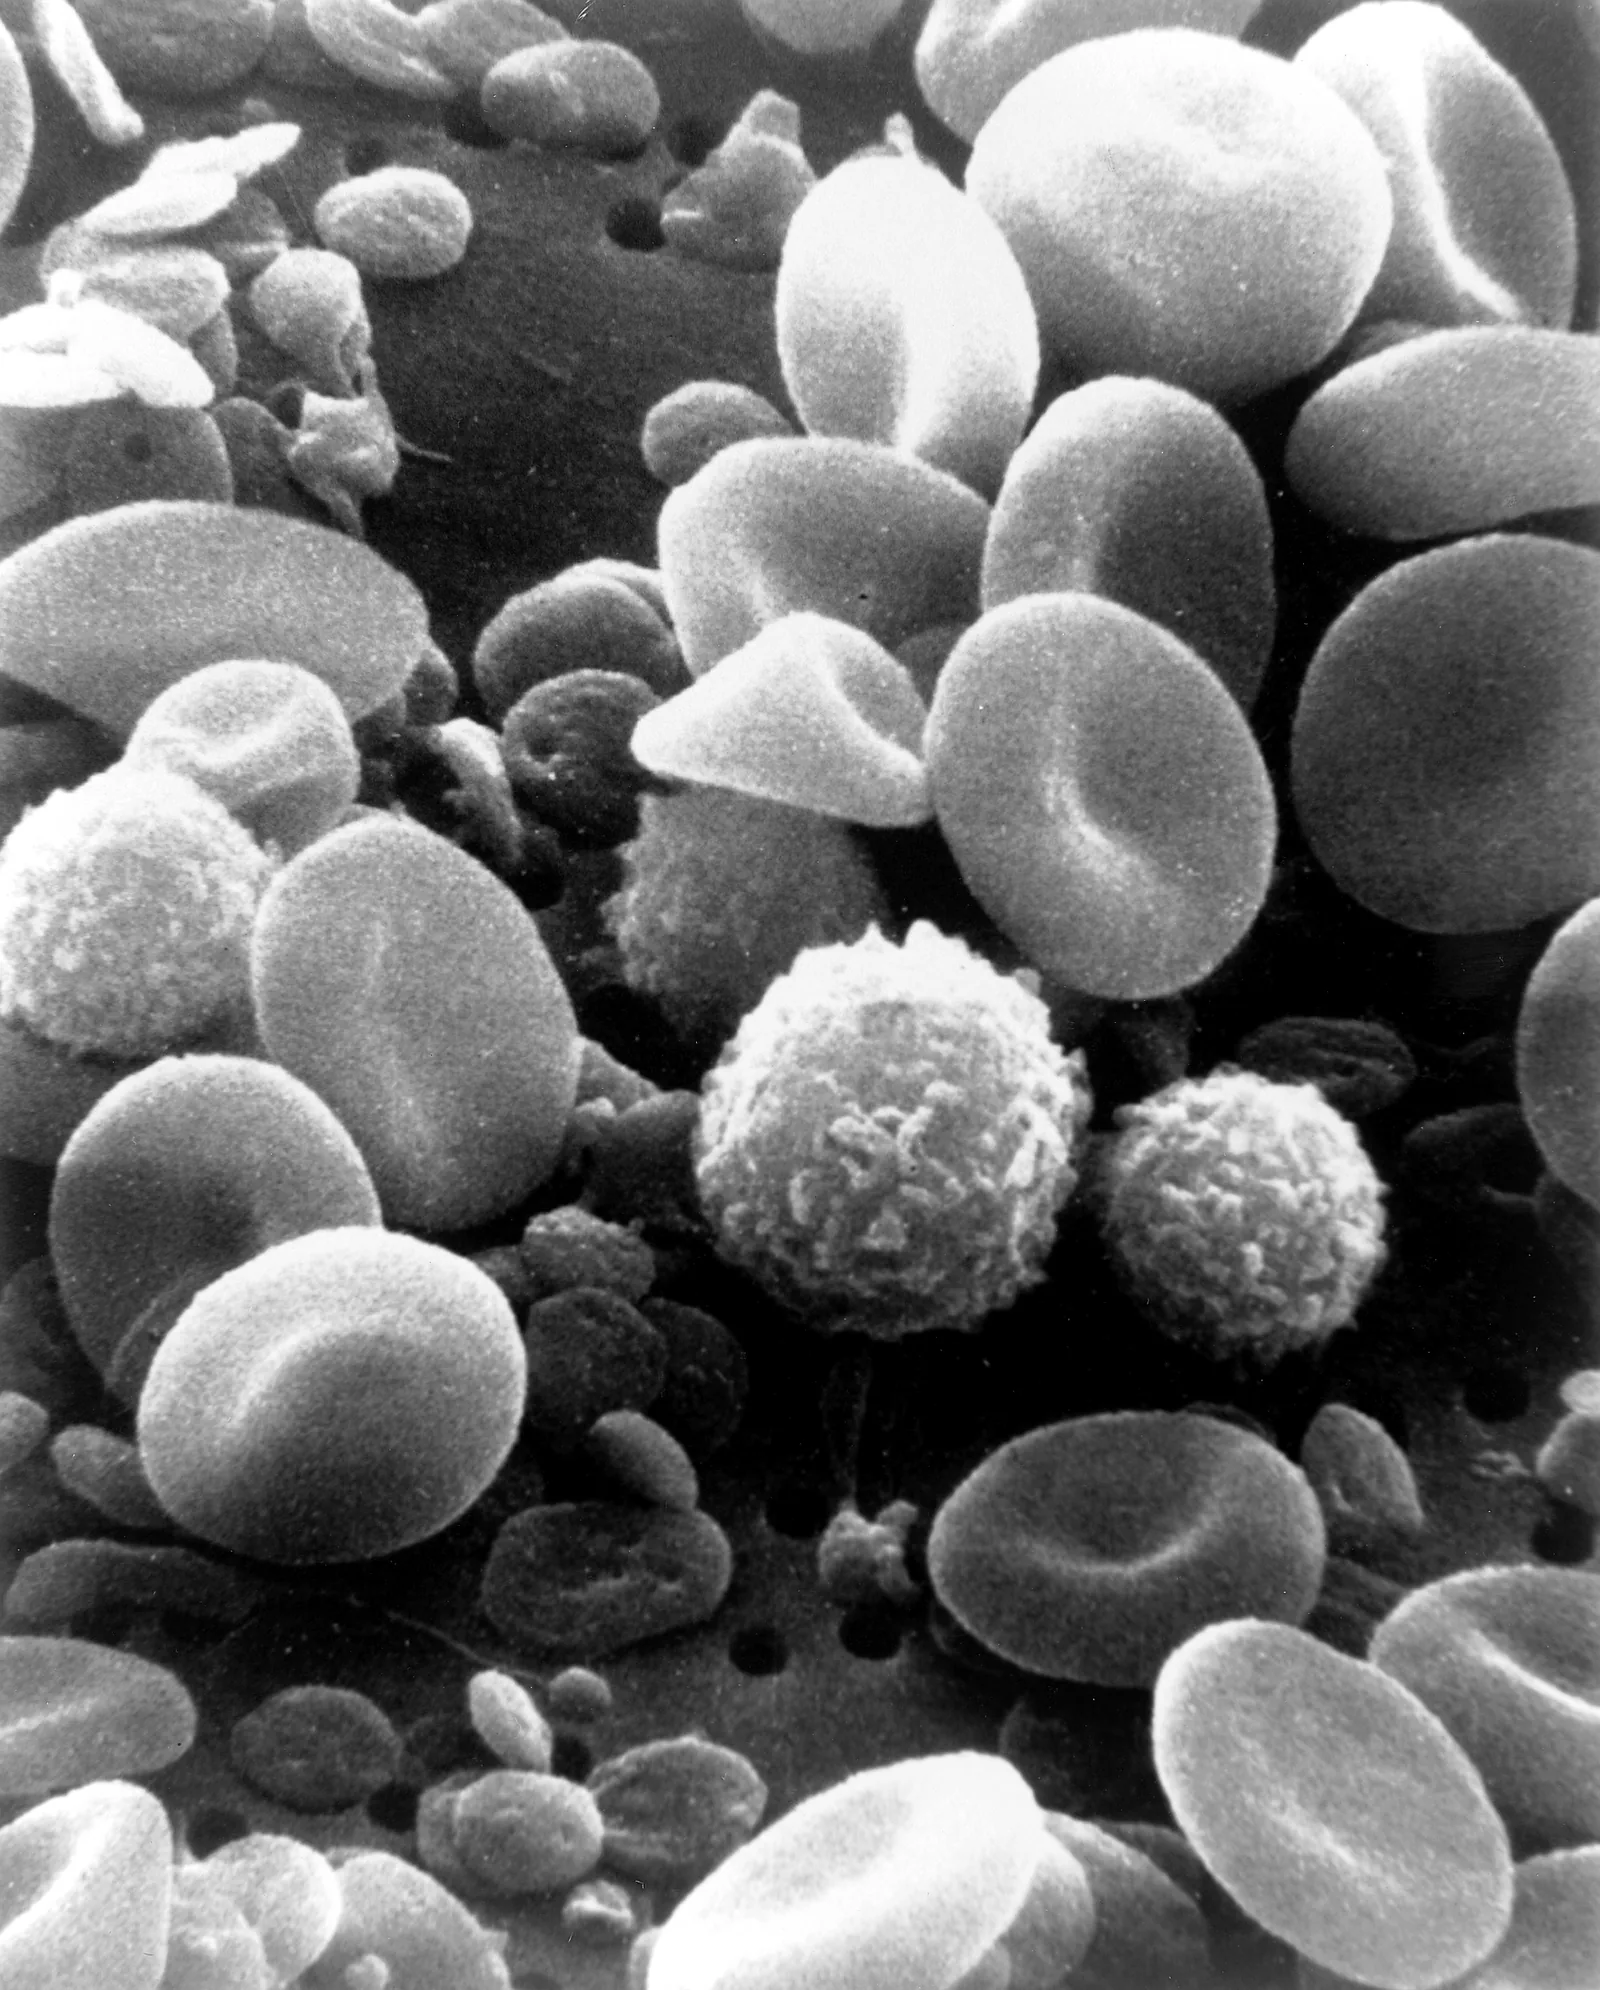
- В теле взрослого человека около 30 триллионов (3 · 10¹³) клеток. Из них около 84 % по числу — эритроциты, которые лишены ядра и всех органоидов.
- В клетке млекопитающего, которая активно растёт, — миллионы рибосом; в кишечной палочке — десятки тысяч.
- Одна клетка млекопитающего содержит несколько миллиардов белковых молекул, и все они распределены по своим отсекам.
- Митохондриальная ДНК человека содержит 16 569 пар нуклеотидов и всего 37 генов [14]. Ядерная ДНК — около 3 миллиардов пар нуклеотидов в гаплоидном наборе.
- Мембрана клетки имеет толщину около 7–10 нм — в тысячи раз меньше диаметра клетки.
9. Эндомембранная система: единая сеть
Одномембранные органоиды — ЭПС, аппарат Гольджи, лизосомы, эндосомы, вакуоли, секреторные пузырьки — вместе с ядерной оболочкой и плазмалеммой образуют эндомембранную систему. Это не просто набор похожих органоидов: их мембраны непрерывно переходят одна в другую [3, 15].
Связь устроена двумя способами. Первый — прямая непрерывность: наружная мембрана ядерной оболочки продолжается в мембрану шероховатой ЭПС, а шероховатая ЭПС — в гладкую. Второй — пузырьки. От мембраны одного отсека отшнуровывается пузырёк с грузом, переходит к другому отсеку и сливается с его мембраной. Так белки и липиды переходят из ЭПС в аппарат Гольджи, из аппарата Гольджи — в лизосомы, к плазмалемме или в секреторные гранулы. Обратный поток пузырьков возвращает мембрану и «заблудившиеся» белки назад.
Отсюда следует важный вывод: мембраны в клетке не возникают с нуля. Новые липиды синтезируются ферментами, встроенными в мембрану ЭПС, и сразу встраиваются в её слой, обращённый к цитозолю. Затем мембрана растёт и расходится пузырьками по другим отсекам. Новый органоид эндомембранной системы образуется только из уже существующей мембраны. Цитологи иногда перефразируют Вирхова: «каждая мембрана — от мембраны» [3].
Внутри и снаружи. Полость ЭПС, цистерн Гольджи, лизосом и пузырьков с точки зрения топологии соответствует внешней среде клетки. Когда секреторный пузырёк сливается с плазмалеммой, его полость открывается наружу, а внутренняя поверхность его мембраны становится наружной поверхностью клетки. Поэтому углеводные цепи, которые присоединяются к белкам и липидам в полости ЭПС и Гольджи, оказываются на наружной стороне плазмалеммы и образуют гликокаликс. Чтобы попасть из цитозоля в полость любого из этих отсеков, белок должен пересечь мембрану хотя бы один раз — обычно в ЭПС.
Пероксисомы стоят особняком. Долго считалось, что они размножаются только делением и получают все белки из цитозоля. Сейчас известно, что новые пероксисомы могут отпочковываться и от ЭПС, но основную часть ферментов они действительно импортируют готовыми из цитозоля. Митохондрии и пластиды в эндомембранную систему не входят совсем: пузырьки от ЭПС к ним не направляются, и почти все свои белки они получают через особые белковые каналы в мембранах.
Строение ЭПС, аппарата Гольджи и лизосом, синтез растворимых белков и мембран, взаимосвязь одномембранных органоидов подробно разобраны в статье «Одномембранные органоиды: ЭПС, аппарат Гольджи, лизосомы». Здесь важен общий принцип: одномембранные органоиды — это не отдельные «детали», а участки одной подвижной системы мембран.
10. Как белок находит свой органоид
Почти все белки клетки синтезируются в цитозоле, на рибосомах, по информации, записанной в ядре. Но работать им предстоит в самых разных местах: в ядре, в митохондрии, в лизосоме, в мембране, за пределами клетки. Как белок попадает по назначению?
В 1971 году Г. Блобель и Д. Сабатини предположили, а в 1975 году Блобель и Б. Доберштейн доказали, что секретируемые белки начинаются с короткого участка — сигнальной последовательности, которая направляет рибосому к мембране ЭПС [16]. Синтезируемая цепь проходит через канал в мембране прямо в полость ЭПС, а сигнальный участок отрезается. Позже выяснилось, что «адреса» записаны в последовательностях почти всех белков, которые работают не в цитозоле. В 1999 году Блобель получил за открытие белковых сигналов Нобелевскую премию по физиологии и медицине.
| Куда направлен белок | Сигнал | Как узнали |
|---|---|---|
| В ЭПС (а оттуда — в секрет, в мембрану, в лизосомы) | гидрофобный участок из 15–30 аминокислот в начале цепи | Блобель и Доберштейн, 1975 [16] |
| Остаться в полости ЭПС | четыре аминокислоты на конце цепи: лизин, аспарагиновая кислота, глутаминовая кислота, лейцин (KDEL) | С. Манро и Х. Пелэм, 1987 [17] |
| В ядро | короткий участок, богатый лизином и аргинином (например, PKKKRKV у белка вируса SV40) | Д. Калдерон и коллеги, 1984 [18] |
| В пероксисому | три аминокислоты на конце цепи: серин, лизин, лейцин (SKL) | С. Гулд и коллеги, 1989 [19] |
| В митохондрию | начальный участок, образующий спираль с положительным зарядом на одной стороне | [3] |
| В лизосому | метка из маннозо-6-фосфата, которую присоединяют к ферменту в аппарате Гольджи | [3] |
Сигналы удивительно надёжны. Если присоединить к обычному белку цитозоля последовательность PKKKRKV, он окажется в ядре; если удалить сигнал KDEL у белка ЭПС, клетка выделит его наружу. Ошибки адресации ведут к болезням. При наследственной болезни I-клеток ферменты лизосом не получают метку маннозо-6-фосфата — и вместо лизосом выводятся из клетки. Лизосомы остаются пустыми, непереваренные вещества накапливаются в них в виде включений, отсюда и название болезни (inclusion cells).
Белки в «транзите». Белки митохондрий и пластид синтезируются в цитозоле полностью и лишь затем проходят через белковые каналы в двух мембранах органоида. Белки ЭПС, наоборот, проходят через мембрану прямо во время синтеза. О том, как работают каналы хлоропластов, рассказано в статье «TOC и TIC: как белки попадают в хлоропласт».
11. Путь секреторного белка
Лучший пример совместной работы органоидов — синтез белка «на экспорт». Его проследил Паладе с Дж. Джеймисоном в 1960-х годах в клетках поджелудочной железы морской свинки — клетках, которые выделяют пищеварительные ферменты [20].
Опыт был построен так. Кусочки железы в течение трёх минут выдерживали в растворе с аминокислотой лейцином, содержащей радиоактивную метку, — это «импульс». Затем их переносили в раствор с обычным лейцином — это «погоня». Метка успевала встроиться только в те белки, которые синтезировались в течение трёх минут импульса. Через разные промежутки времени кусочки фиксировали, делали срезы и покрывали их фотоэмульсией: над радиоактивными белками эмульсия темнела. Сравнив фотографии, можно было увидеть, как «меченая волна» белка движется по клетке.
Сразу после импульса метка лежала над шероховатой ЭПС. Через несколько минут она перешла в область аппарата Гольджи, примерно через полчаса — в крупные незрелые секреторные гранулы, а через пару часов оказалась в зрелых гранулах, скопившихся у верхушки клетки, обращённой в проток железы. Ни в одном опыте метка не появлялась ни в митохондриях, ни в ядре. Так был доказан секреторный путь.
Путь секреторного белка нужно знать для ЕГЭ в виде последовательности: рибосома шероховатой ЭПС → полость ЭПС → транспортный пузырёк → аппарат Гольджи → секреторный пузырёк → плазмалемма (экзоцитоз). Задания на эту последовательность встречаются регулярно, в том числе с примерами: инсулин в β-клетках поджелудочной железы, антитела в плазматических клетках, ферменты пищеварительных желёз.
12. Митохондрии и пластиды: бактерии внутри клетки
Митохондрии и пластиды заметно отличаются от остальных органоидов. Они окружены двумя мембранами, у них есть собственная кольцевая ДНК, собственные рибосомы 70S, как у бактерий, и они размножаются делением, а не образуются из других мембран клетки. Антибиотики, подавляющие синтез белка у бактерий (например, хлорамфеникол), подавляют его и в митохондриях. Всё это объясняет теория симбиогенеза: митохондрии происходят от α-протеобактерий, а пластиды — от цианобактерий, которые когда-то поселились внутри предковой клетки [21].
У этой теории есть русские корни. В 1905 году казанский ботаник К. С. Мережковский опубликовал статью «О природе и происхождении хроматофоров в растительном царстве», в которой доказывал, что хлоропласты — бывшие цианобактерии [22]. Его соотечественник Б. М. Козо-Полянский в книге «Новый принцип биологии» (1924) распространил эту идею на митохондрии. На Западе их почти не читали. В 1967 году американка Л. Маргулис (тогда Саган) заново собрала доводы в пользу симбиогенеза. Её статью отвергли полтора десятка журналов, а когда она вышла, многие отнеслись к ней скептически. Решающими стали молекулярные данные 1970–1980-х годов: гены рибосомной РНК митохондрий и пластид оказались ближе к генам бактерий, чем к ядерным генам той же клетки.
За время совместной жизни бывшие бактерии лишились большинства своих генов. Часть генов перешла в ядро, часть просто исчезла. Митохондриальная ДНК человека кодирует лишь 13 белков дыхательной цепи, 2 рибосомные РНК и 22 транспортные РНК [14], а в самой митохондрии работает более тысячи разных белков. Почти все они закодированы в ядре, синтезируются в цитозоле и импортируются в органоид. Поэтому митохондрии и пластиды называют полуавтономными: свой генетический аппарат у них есть, но без ядра они существовать не могут.
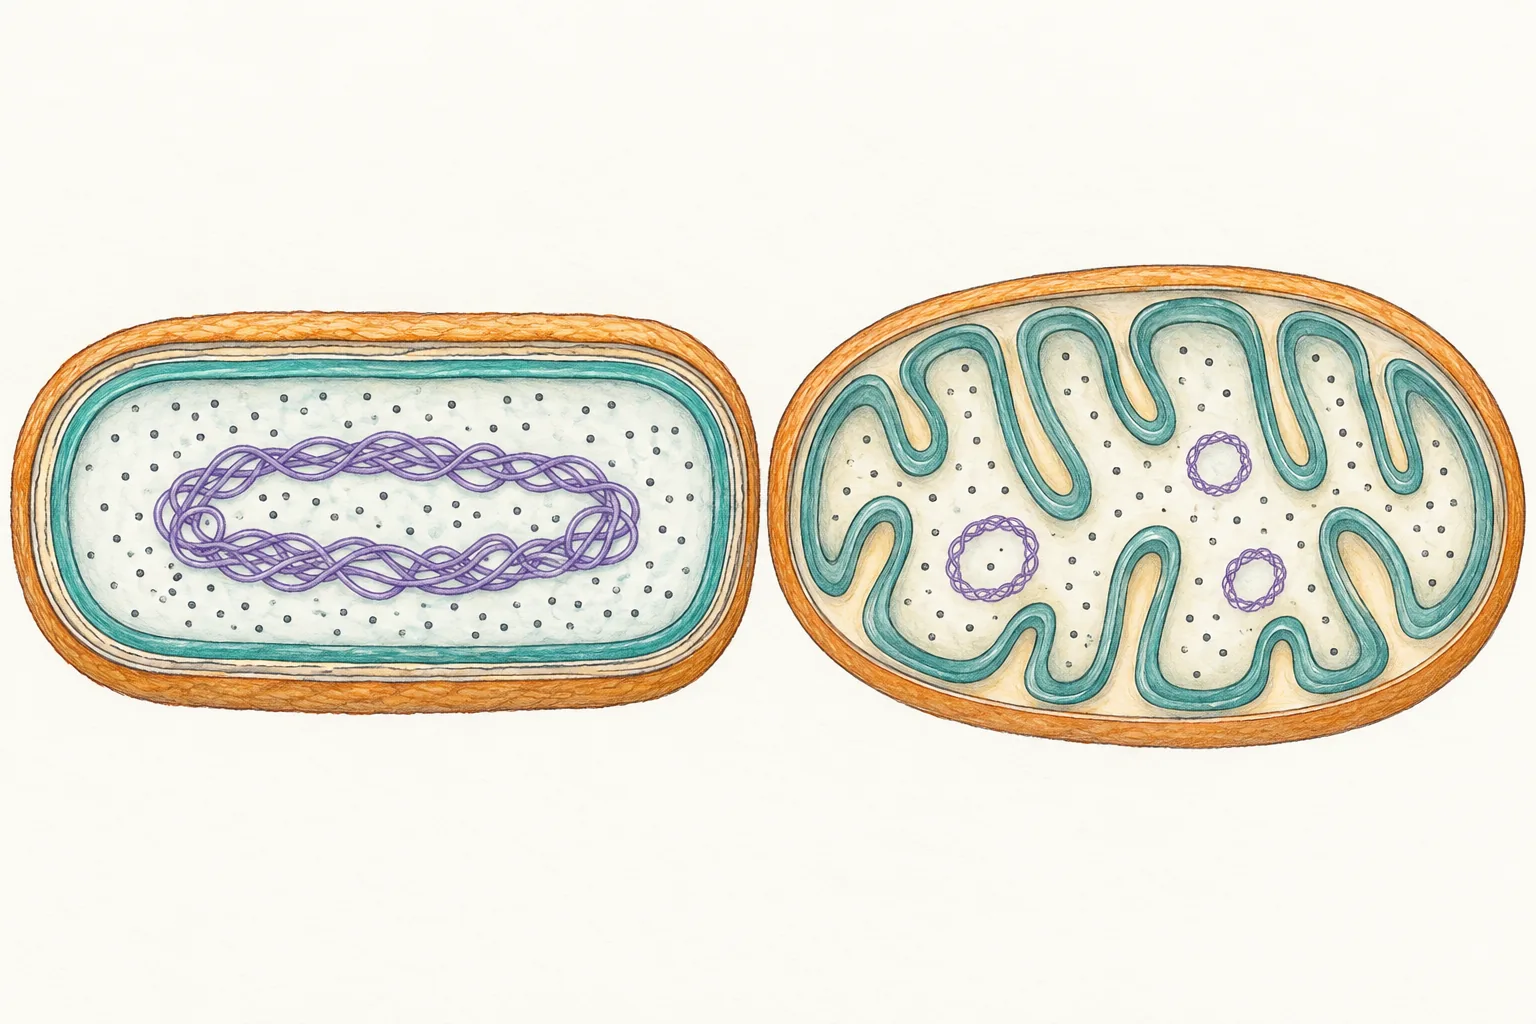
Строение митохондрий и пластид, первичные, вторичные и сложные пластиды водорослей разобраны в статье «Митохондрии и пластиды». А о том, как одноклеточные и даже морские слизни крадут пластиды у водорослей, можно прочитать в статье «Клептопластия».
13. Немембранные структуры и «капли» в цитоплазме
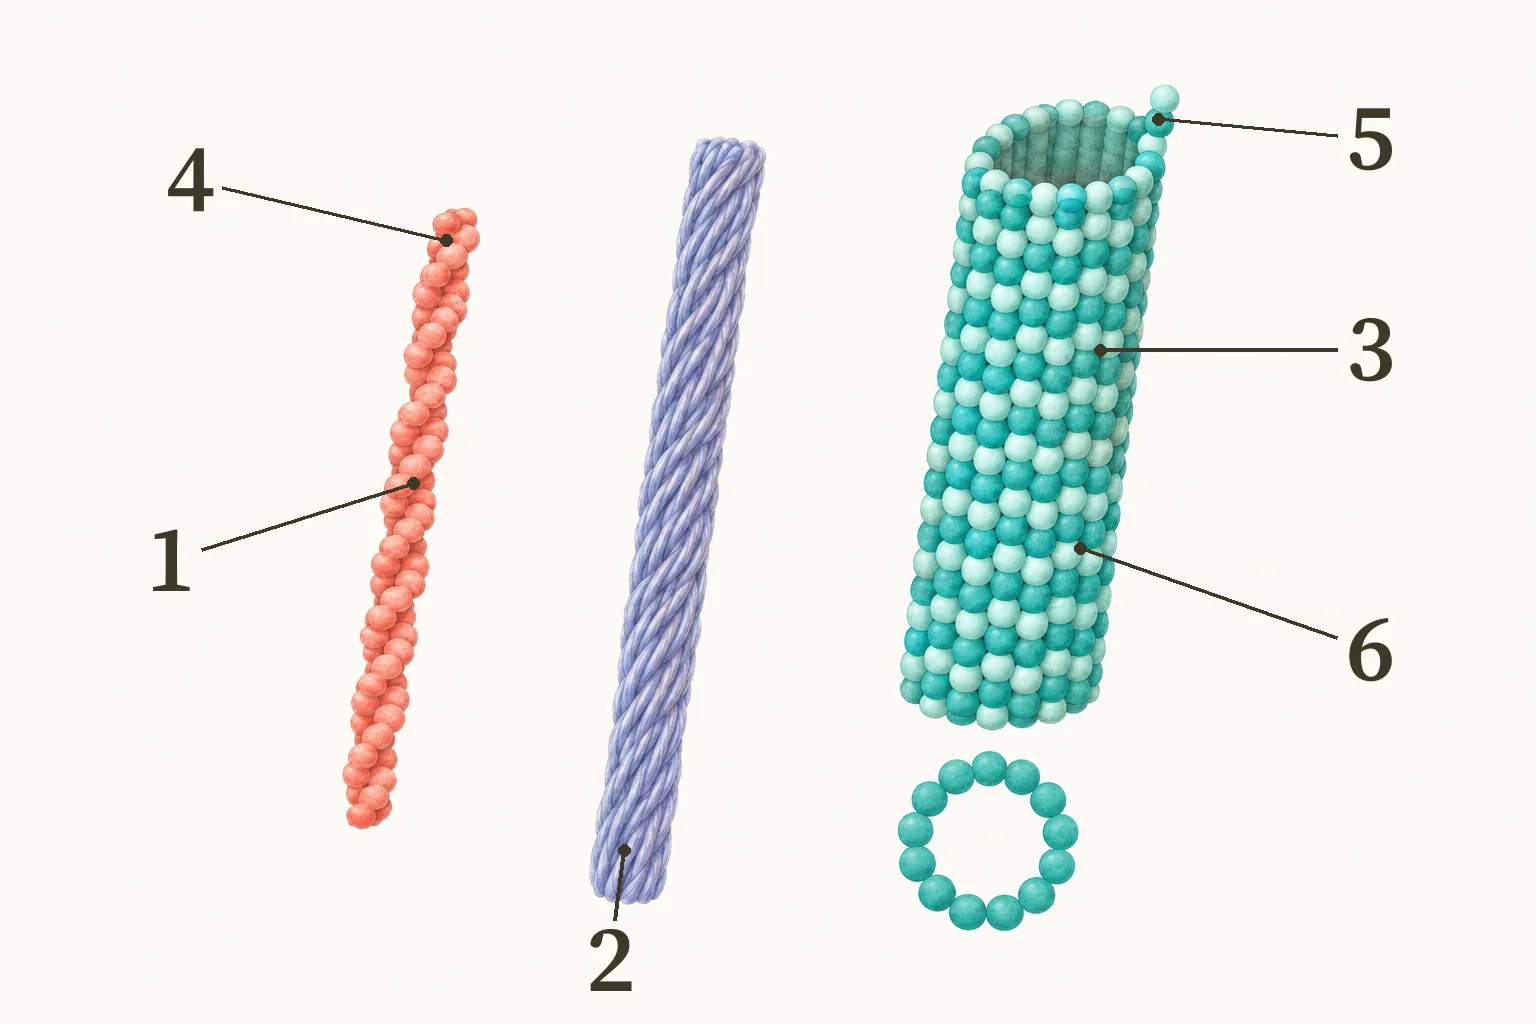
Немембранные органоиды — это крупные белковые или белково-нуклеиновые комплексы. Рибосома состоит из двух субъединиц, построенных из рибосомных РНК и десятков белков; её диаметр около 25–30 нм. Микротрубочки — полые цилиндры из белка тубулина диаметром 25 нм, микрофиламенты — нити из актина толщиной около 7 нм, промежуточные филаменты — около 10 нм. Центриоль — цилиндр из девяти триплетов микротрубочек. Эти структуры собираются из отдельных молекул, и многие из них, как микротрубочки, постоянно разбираются и собираются заново [3].
Долгое время считалось, что, кроме этих органоидов, в цитоплазме без мембран ничего упорядоченного нет. Но с 2009 года стало ясно, что клетка умеет создавать отсеки и без мембран. Американский биофизик К. Брангвинн, работавший тогда в Дрездене, изучал гранулы в половых клетках нематоды Caenorhabditis elegans и заметил, что они ведут себя как капли жидкости: сливаются, растекаются, растворяются и снова конденсируются, когда меняются условия [23]. Через два года выяснилось, что ядрышко в ядрах лягушачьих ооцитов тоже ведёт себя как жидкая капля: два ядрышка, коснувшись друг друга, сливаются в одно [24].
Такие образования называют биомолекулярными конденсатами. Они возникают, когда определённые белки и РНК притягиваются друг к другу множеством слабых связей и отделяются от окружающего раствора, как капли масла от воды. Внутри конденсата нужные молекулы собраны в высокой концентрации, а граница не требует мембраны и легко исчезает [25]. Конденсатами оказались ядрышко, тельца Кахаля в ядре, гранулы стресса, которые появляются в цитоплазме при перегреве или нехватке энергии, и многие другие структуры. Их изучение — одно из самых быстро развивающихся направлений клеточной биологии; есть данные, что нарушение конденсатов связано с некоторыми нейродегенеративными болезнями.
Для экзамена. На ЕГЭ немембранные органоиды — это рибосомы, клеточный центр (центриоли), микротрубочки и микрофиламенты, а также органоиды движения — реснички и жгутики. Конденсаты в кодификаторе не упоминаются, но объясняют, как ядрышко существует без мембраны.
14. Ядро: опыты с ацетабулярией
То, что ядро управляет клеткой, сегодня кажется очевидным: в нём записана информация о строении белков. Но в 1930-е годы, когда роль ДНК ещё не была известна, это пришлось доказывать опытами. Красивее всех это сделал немецкий биолог И. Хеммерлинг [26].
Он работал с ацетабулярией — морской зелёной водорослью, каждая особь которой представляет собой одну клетку длиной несколько сантиметров. Клетка состоит из ризоида, которым она прикреплена ко дну, длинного стебелька и «шляпки» на верхушке. Единственное ядро находится в ризоиде. Хеммерлинг отрезал шляпку — и водоросль отращивала новую. Отрезал стебелёк от ризоида — и стебелёк без ядра тоже мог отрастить шляпку, но только один раз; дальше он погибал. Ризоид с ядром регенерировал снова и снова.
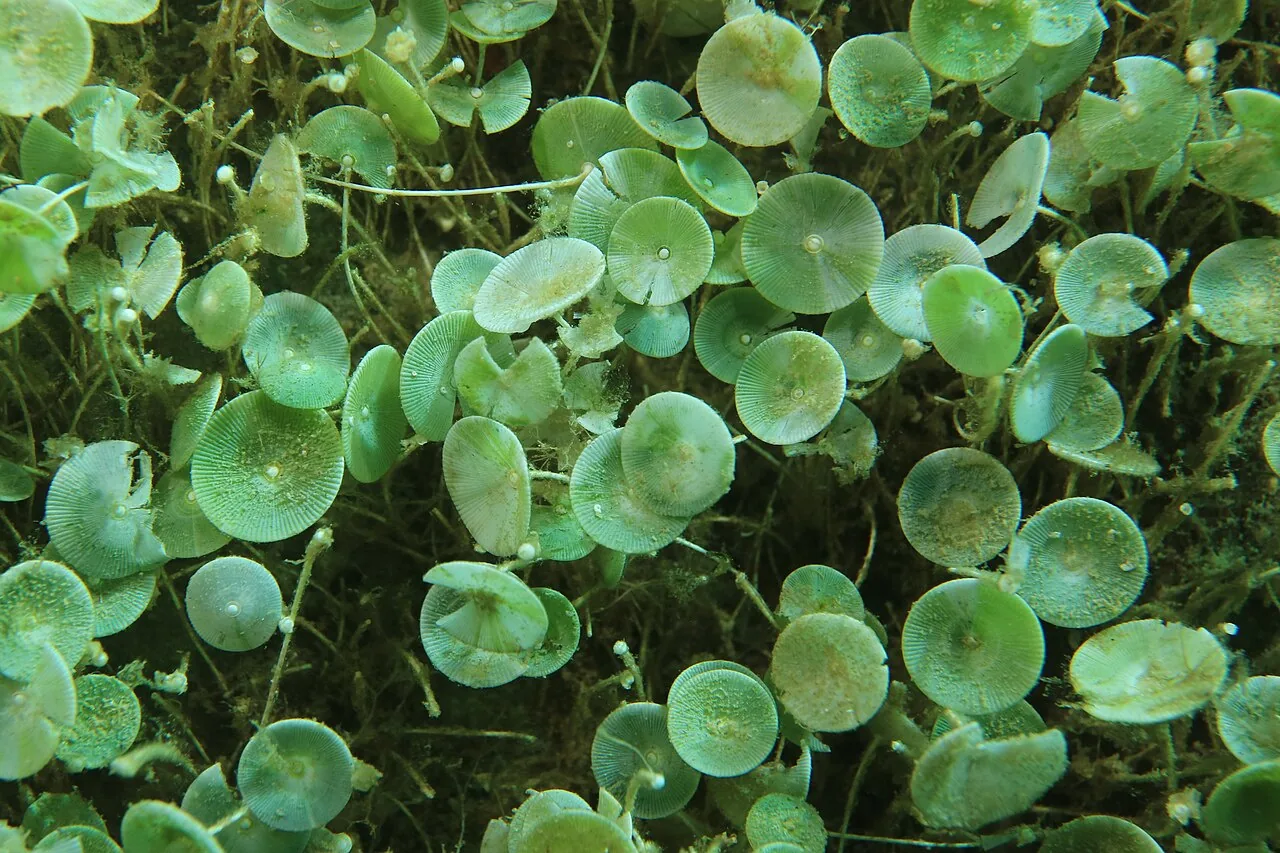
Самый известный опыт — пересадка. У двух видов ацетабулярии разная форма шляпки: у одного она цельная, у другого рассечена на отдельные лучи. Хеммерлинг прививал стебелёк одного вида на ризоид с ядром другого. Первая шляпка, которая вырастала на привитом стебельке, имела промежуточную форму. Но если её срезать, следующая шляпка всегда была такой, как у вида, которому принадлежало ядро. Вывод Хеммерлинга: ядро выделяет в цитоплазму вещества, определяющие форму клетки, эти вещества какое-то время сохраняются в цитоплазме, но запас их без ядра не возобновляется. Сегодня понятно, что этими «веществами» были молекулы матричной РНК, которые синтезируются в ядре и служат матрицами для синтеза белков в цитоплазме.
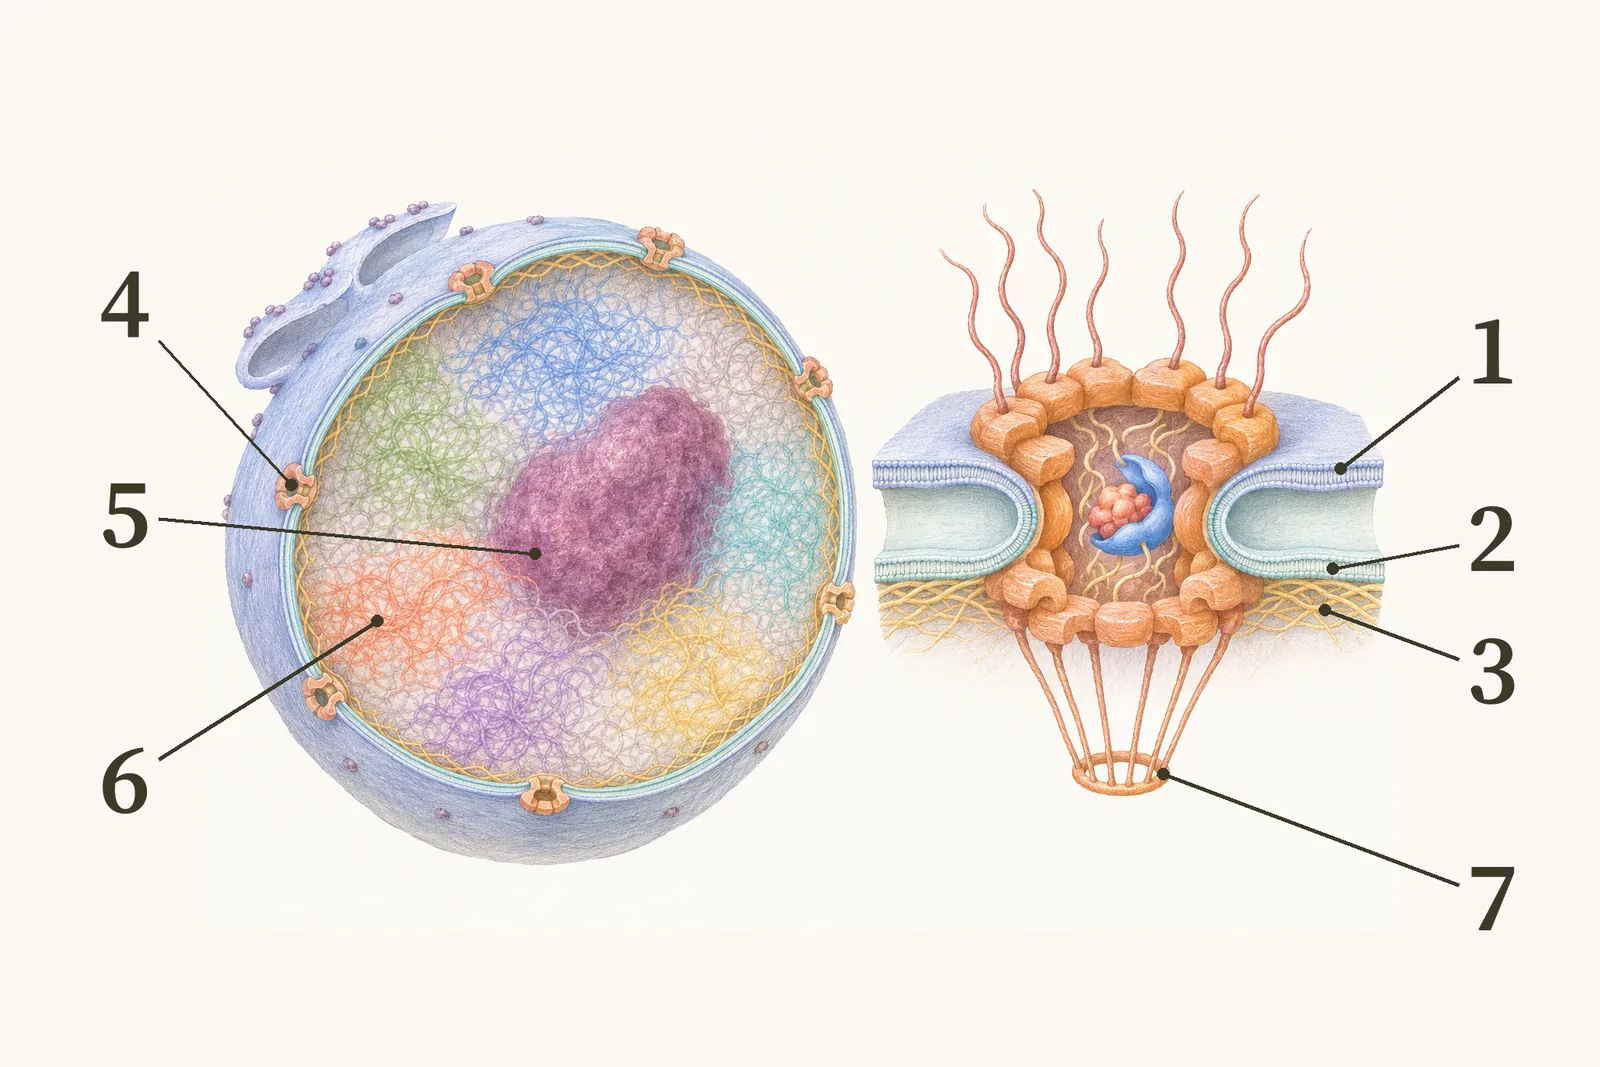
Строение ядра — оболочка с порами, хроматин, ядрышки, ядерный белковый матрикс, расположение хромосом в интерфазном ядре, гистоны — разобрано в статье «Ядро клетки». Здесь отметим главное. Ядро отделено от цитоплазмы двойной мембраной, пронизанной несколькими тысячами ядерных пор. Через поры в ядро входят белки (с тем самым сигналом из лизина и аргинина), а из ядра выходят молекулы РНК и субъединицы рибосом. Разделение транскрипции (в ядре) и трансляции (в цитоплазме) даёт эукариотической клетке дополнительную возможность регулировать работу генов: прежде чем мРНК выйдет из ядра, её можно отредактировать, вырезать из неё интроны, задержать.
15. Органоиды соприкасаются
Старые рисунки показывают органоиды как отдельные тельца, разбросанные по цитоплазме. Современные методы показали, что они постоянно соприкасаются. В 1990 году канадский биохимик Дж. Вэнс выделила из печени особую фракцию — участки ЭПС, прочно связанные с митохондриями, — и показала, что именно в местах контакта идёт обмен липидами между двумя органоидами [27]. Через такие контакты митохондрии получают от ЭПС фосфолипиды для своих мембран и ионы кальция, которые регулируют их работу.
В 2017 году группа американских исследователей окрасила в живых клетках одновременно шесть разных органоидов шестью разными цветами и проследила их взаимное расположение [28]. Оказалось, что ЭПС соприкасается почти со всеми остальными органоидами, а места контактов возникают и исчезают за секунды и минуты. В местах контакта ЭПС с митохондрией митохондрия может делиться: трубочка ЭПС обхватывает её и намечает место перетяжки. Капли жира в клетке образуются прямо из мембраны ЭПС и остаются с ней связанными.
Цитоплазма, таким образом, — не склад отдельных деталей, а сеть, где органоиды обмениваются веществами не только через пузырьки, но и в местах прямого контакта мембран.
16. Цитоплазма: тесно, вязко и в движении
Цитозоль только на рисунках выглядит прозрачной жидкостью. Белки, РНК и другие макромолекулы занимают 20–30 % его объёма. В кишечной палочке концентрация белка и РНК достигает 300–400 граммов на литр — плотнее, чем в яичном белке [29]. В такой тесноте молекулы постоянно сталкиваются, и это меняет скорость реакций: например, белкам легче собираться в комплексы.
Небольшие молекулы и белки перемещаются в цитоплазме диффузией — хаотичным тепловым движением. Флуоресцентный белок GFP диффундирует в цитоплазме примерно втрое медленнее, чем в воде [30]. Для клетки размером 10–20 мкм этого достаточно: белок пересекает её за секунды. Но время диффузии растёт пропорционально квадрату расстояния. Через миллиметр белок будет «добираться» часами, а через метр — столетиями. Поэтому крупные клетки, особенно нервные с длинными отростками, перевозят вещества активно — на моторных белках, которые шагают по микротрубочкам и тянут за собой пузырьки и органоиды.
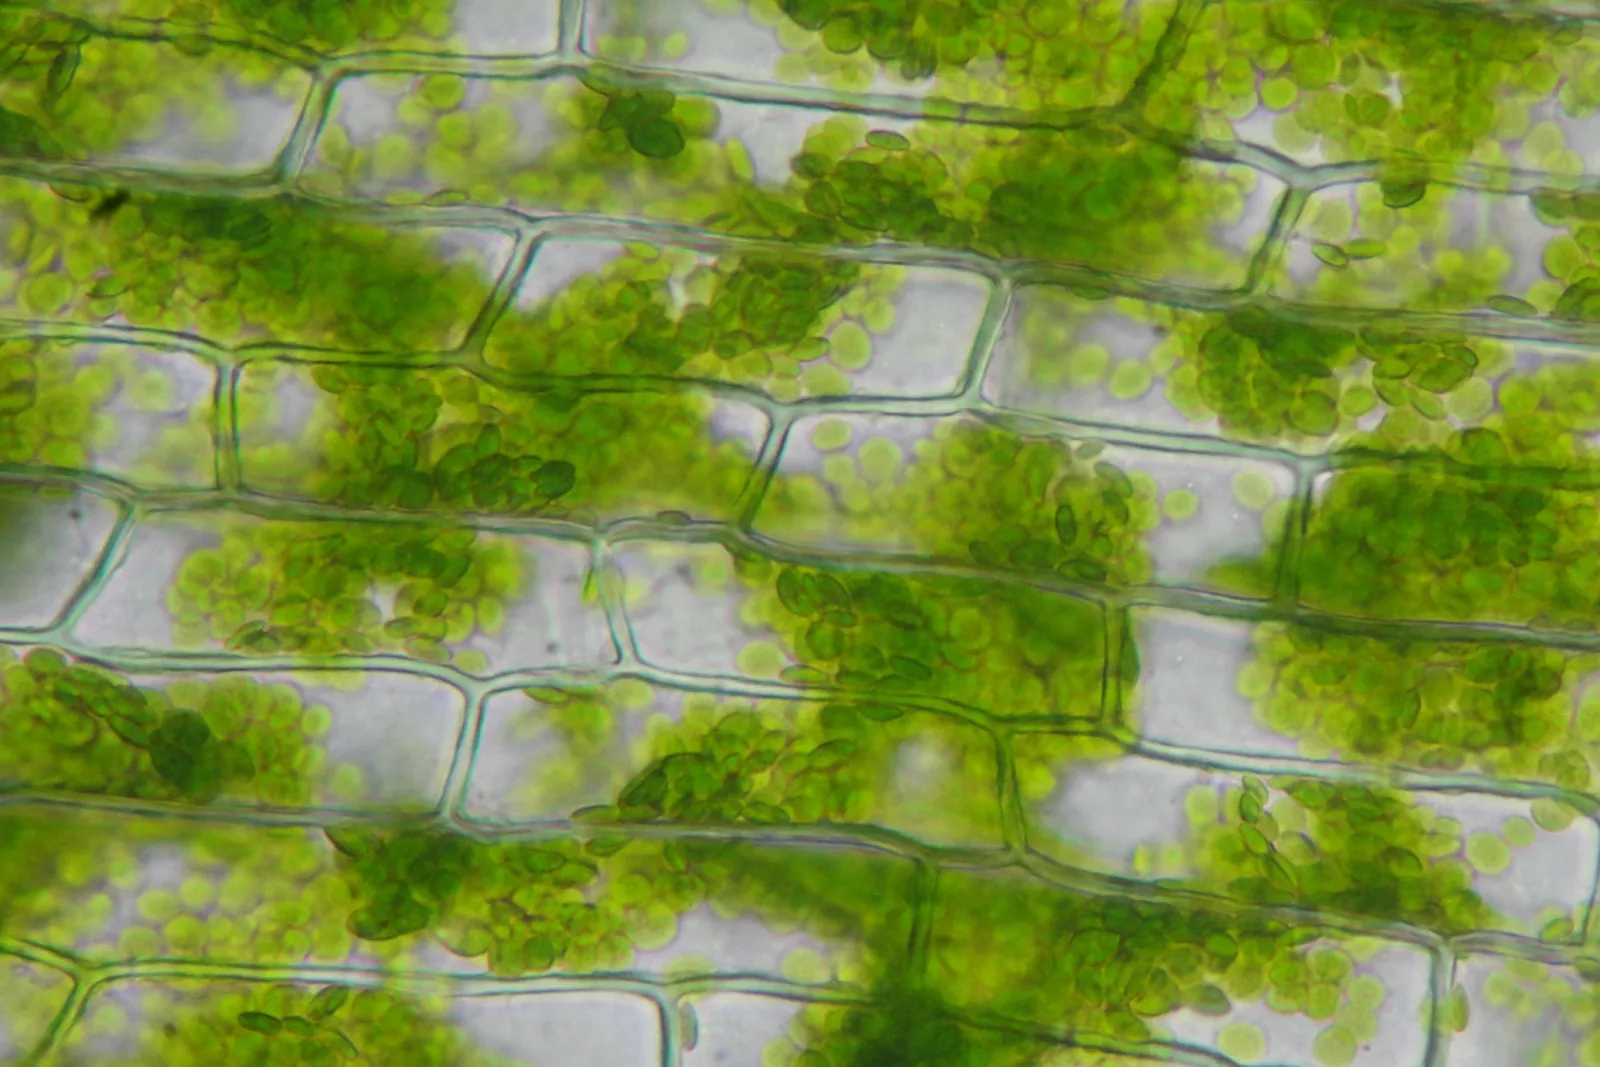
У растительных клеток видно и движение цитоплазмы в целом — циклоз. В клетках листа элодеи хлоропласты плывут вдоль стенок по кругу, а в гигантских клетках водоросли хары цитоплазма течёт со скоростью около 0,1 мм в секунду. Движение обеспечивают молекулы миозина, которые тянут органоиды вдоль пучков актиновых микрофиламентов. Циклоз перемешивает содержимое клетки и ускоряет доставку веществ туда, куда одной диффузии не хватило бы. Подробнее о цитоскелете и движении цитоплазмы — в статьях «Цитоскелет клетки» и «Цитоплазма и немембранные органоиды».
17. Клетки растений, животных и грибов
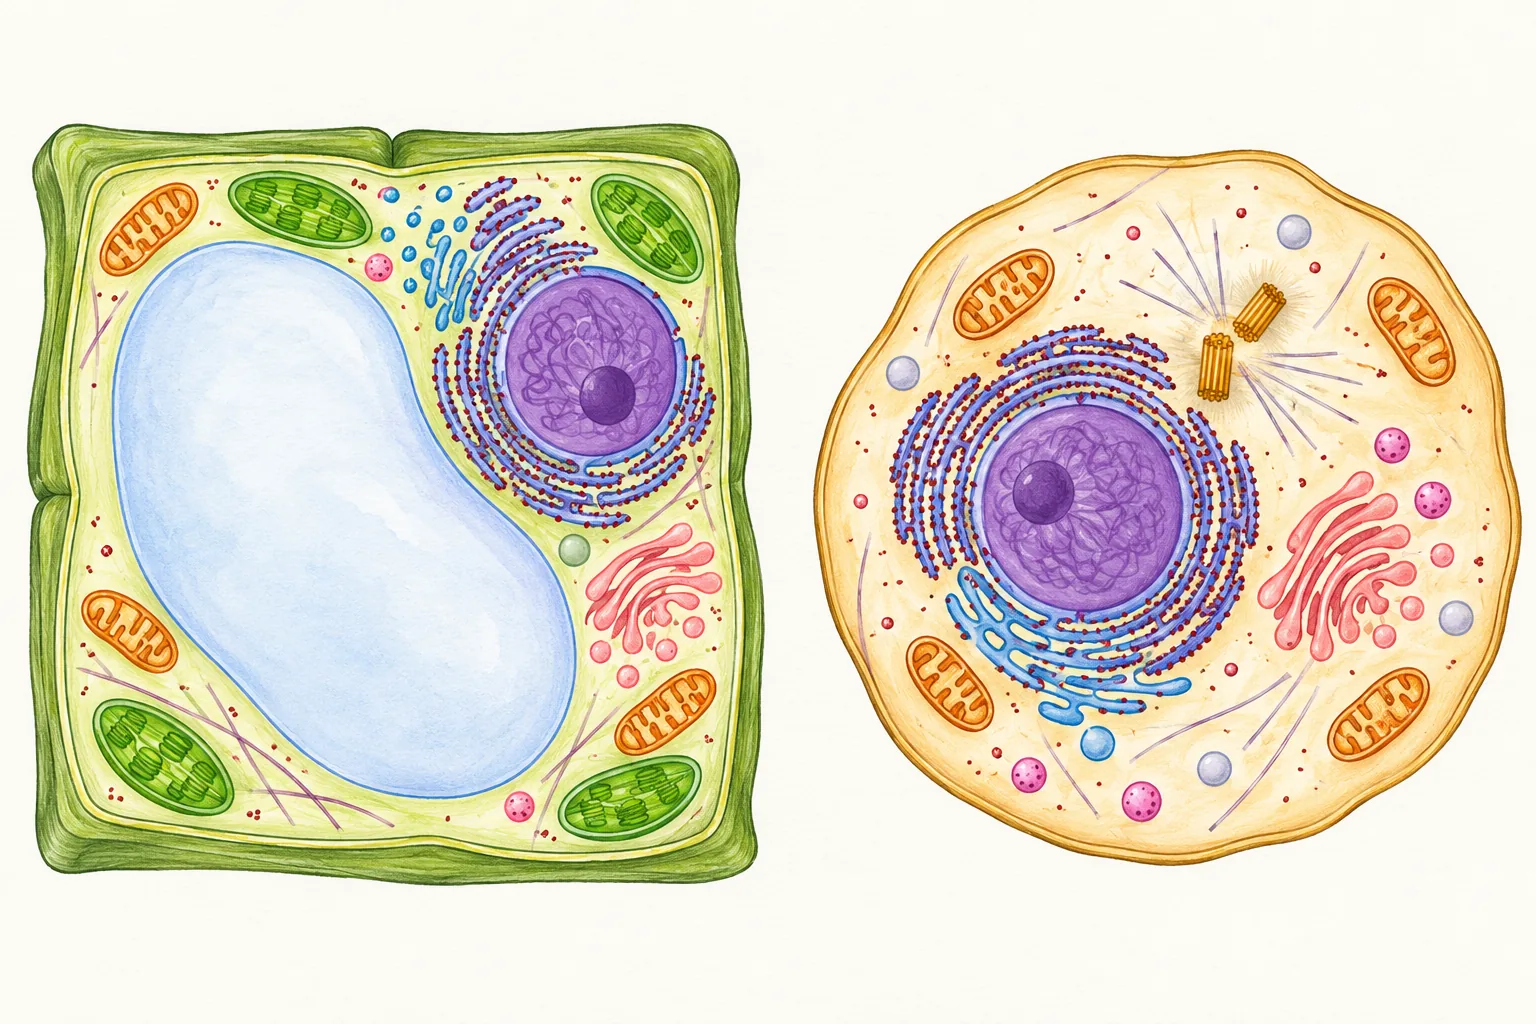
При общем плане строения клетки разных царств эукариот заметно различаются. Различия в основном связаны со способом питания и образом жизни. Растения — неподвижные автотрофы, поэтому у них есть хлоропласты, жёсткая стенка из целлюлозы и крупная вакуоль, поддерживающая тургор. Животные — подвижные гетеротрофы, их клетки лишены стенки, а энергию запасают в виде гликогена. Грибы — неподвижные гетеротрофы, всасывающие пищу; у них есть стенка (основа — хитин), но нет пластид [3, 11].
| Признак | Растительная клетка | Животная клетка | Грибная клетка |
|---|---|---|---|
| Клеточная стенка | есть, основа — целлюлоза | нет; есть гликокаликс | есть, основа — хитин и глюканы |
| Пластиды | есть | нет | нет |
| Вакуоль | крупная центральная с клеточным соком | крупной нет; бывают мелкие пузырьки и вакуоли | есть, часто крупные |
| Запасной углевод | крахмал | гликоген | гликоген |
| Центриоли | у цветковых и голосеменных нет | есть | у большинства нет |
| Лизосомы | их роль выполняет вакуоль | есть | их роль во многом выполняет вакуоль |
| Тип питания | автотрофный | гетеротрофный | гетеротрофный (всасывание) |
Сравнительная характеристика клеток эукариот подробно разобрана в статье «Клеточные включения и сравнение клеток растений, животных и грибов», а каждая из клеток — в статьях «Строение растительной клетки», «Строение животной клетки» и «Строение грибной клетки».
18. Клетки разных профессий
В многоклеточном организме клетки специализированы, и набор органоидов у них подчинён работе. По составу органоидов нередко можно угадать функцию клетки — это часто требуется в заданиях с объяснением.
- Плазматическая клетка выделяет антитела — тысячи молекул в секунду. Почти всю её цитоплазму занимает шероховатая ЭПС, а рядом с ядром виден крупный аппарат Гольджи.
- Клетки коры надпочечников и семенников, синтезирующие стероидные гормоны, богаты гладкой ЭПС: в ней образуются стероиды.
- Клетки печени также богаты гладкой ЭПС: её ферменты обезвреживают лекарства и яды. У людей, долго принимающих некоторые снотворные, гладкая ЭПС в клетках печени разрастается — и лекарство начинает действовать слабее.
- Клетки сердечной мышцы работают без отдыха всю жизнь. Митохондрии занимают в них около трети объёма.
- Сперматозоид несёт минимум цитоплазмы, ядро с плотно упакованной ДНК, жгутик и митохондрии, спирально уложенные вокруг начального отдела жгутика.
- Макрофаги и нейтрофилы, поглощающие бактерии, богаты лизосомами.
- Клетки эпителия тонкой кишки несут тысячи микроворсинок, увеличивающих поверхность всасывания.
- Клетки палисадной ткани листа заполнены хлоропластами, а клетки клубня картофеля — лейкопластами с крахмалом.
В серии статей о тканях такие примеры рассмотрены на уровне тканей. Общее правило: строение клетки соответствует её функции — это одно из положений, которые проверяются на ЕГЭ.
19. Клетки без ядра и без митохондрий
У правил строения клетки есть интересные исключения. Эритроциты млекопитающих перед выходом в кровь выталкивают ядро и теряют все органоиды. Освободившееся место занято гемоглобином, а энергию эритроцит получает только гликолизом — иначе он сам тратил бы кислород, который переносит. Эритроциты птиц, рептилий, амфибий и рыб ядро сохраняют. Ситовидные трубки флоэмы растений тоже лишены ядра: их обслуживают соседние клетки-спутницы. Клетки хрусталика глаза в ходе созревания разрушают ядро и органоиды, которые рассеивали бы свет.
Есть и эукариоты совсем без митохондрий. У кишечного паразита лямблии и у дизентерийной амёбы вместо митохондрий есть крошечные двумембранные тельца — митосомы. Они не синтезируют АТФ, но собирают железосерные кластеры — небольшие группы атомов железа и серы, без которых не работают многие ферменты. А в 2016 году исследователи из Карлова университета в Праге описали жгутиконосца Monocercomonoides из кишечника шиншиллы, у которого митохондрий нет вообще — ни в каком виде. Функцию сборки железосерных кластеров у него выполняет набор ферментов, полученный от бактерий переносом генов [31]. Его предки митохондрии имели, но эта линия их утратила. Так что «митохондрии есть у всех эукариот» — правило с исключениями, хотя для экзамена его формулируют без оговорок.
20. Как узнать органоид на рисунке и фотографии
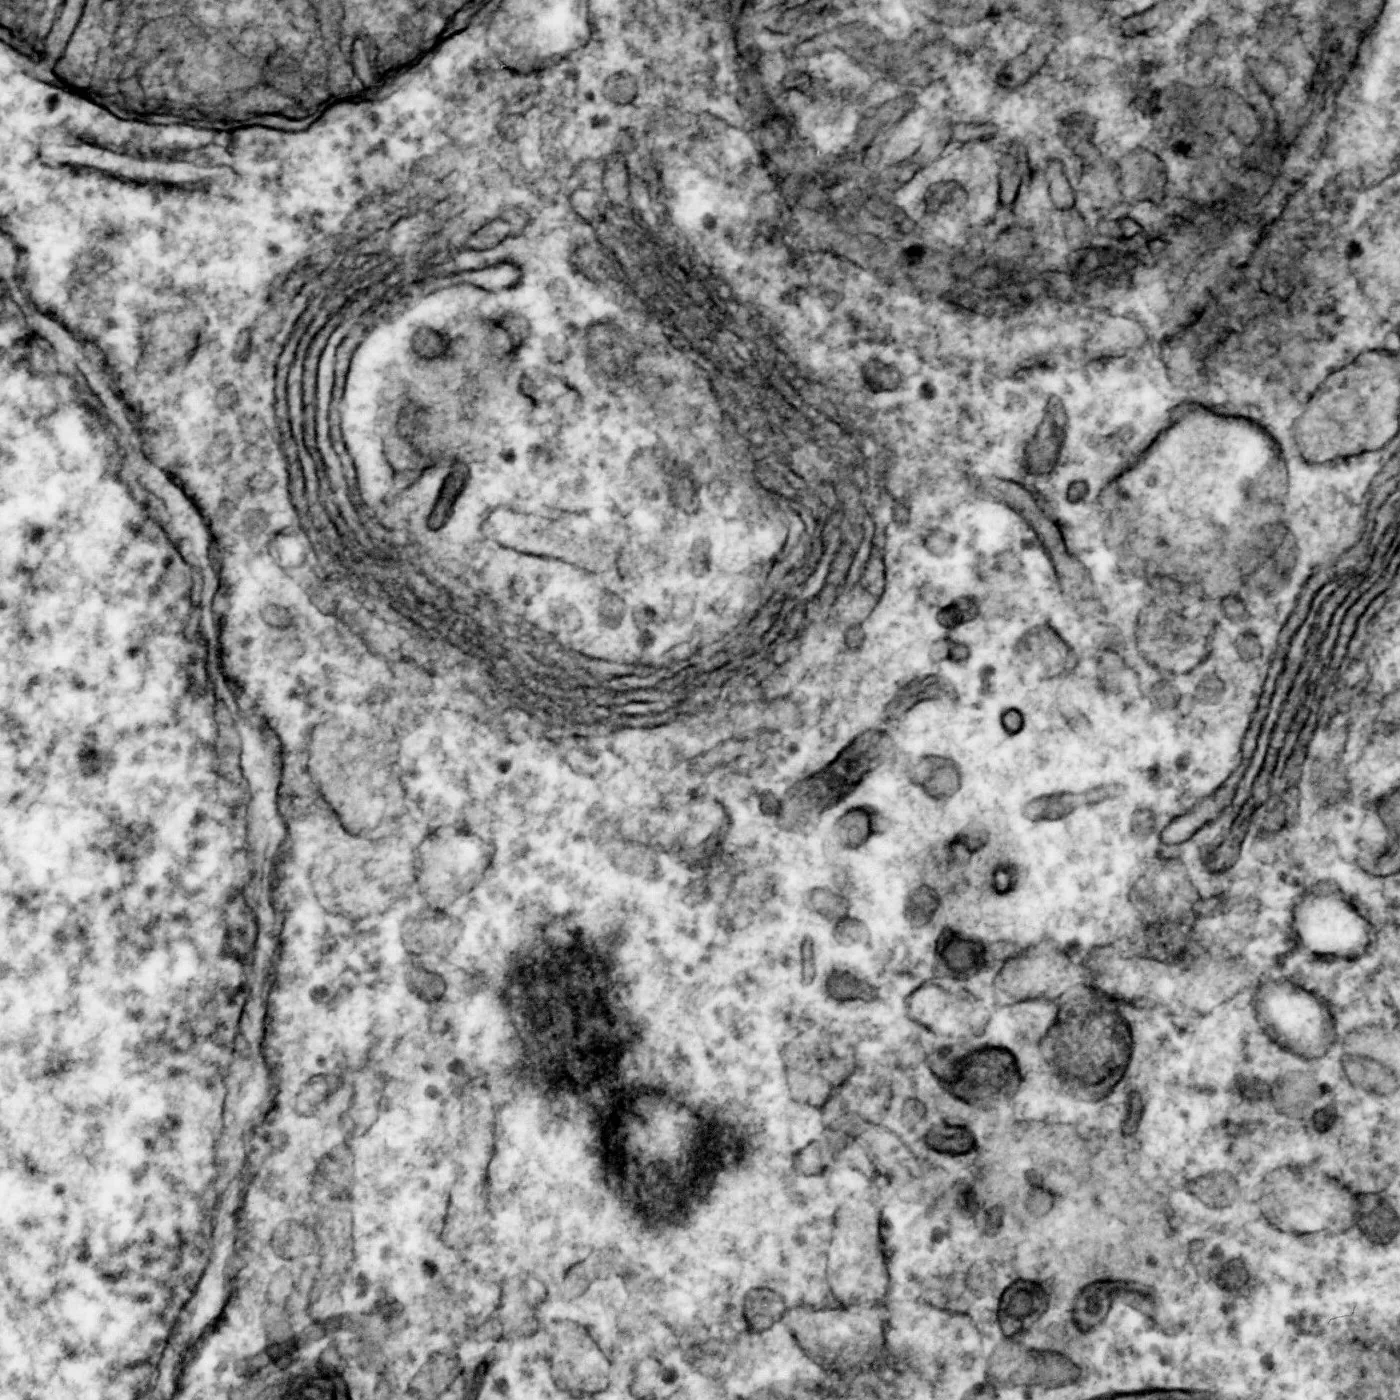
В ЕГЭ встречаются задания с изображением клетки или отдельного органоида. Чаще всего это схематичные рисунки, но бывают и электронные микрофотографии. Узнать органоид помогают несколько признаков.
| Органоид | Как выглядит на рисунке | На что обратить внимание |
|---|---|---|
| Митохондрия | овальное тельце, внутри — складки-перегородки | две мембраны, складки (кристы) отходят от внутренней мембраны |
| Хлоропласт | линза или овал со стопками дисков внутри | стопки (граны) соединены пластинками; есть зёрна крахмала |
| Шероховатая ЭПС | параллельные мембранные цистерны с точками | точки — рибосомы на наружной стороне мембран |
| Гладкая ЭПС | ветвящиеся трубочки без точек | нет рибосом |
| Аппарат Гольджи | стопка изогнутых плоских мешочков с пузырьками по краям | цистерны не соединены с рибосомами, по краям много пузырьков |
| Лизосома | округлый пузырёк с тёмным содержимым | одна мембрана; нередко внутри видны остатки переваренного |
| Ядро | крупное округлое тело с тёмными участками и ядрышком | двойная оболочка с порами |
| Клеточный центр | два цилиндра под прямым углом | в поперечном разрезе — девять групп по три трубочки |
| Ресничка (поперечный срез) | кольцо из девяти пар трубочек и две трубочки в центре | формула 9 + 2 (у центриоли — 9 × 3 без центральных) |
Если на рисунке изображена клетка целиком, сначала нужно определить её тип. Клеточная стенка, хлоропласты и крупная вакуоль указывают на растительную клетку; центриоли, отсутствие стенки и мелкие вакуоли — на животную; стенка без пластид — на грибную; отсутствие ядра и мембранных органоидов, кольцевая ДНК в цитоплазме и мелкий размер — на бактерию.
21. Частые ошибки
- «Рибосомы — одномембранные органоиды». Нет, немембранные. Рибосомы бывают свободными в цитозоле и прикреплёнными к ЭПС.
- «Ядро — немембранный органоид» или «ядро окружено одной мембраной». Оболочка ядра двойная, с порами.
- «У растений нет митохондрий, ведь у них есть хлоропласты». Митохондрии есть и у растений: хлоропласт синтезирует органические вещества и АТФ на свету, а дыхание в митохондриях идёт постоянно, днём и ночью.
- «У прокариот нет рибосом» или «рибосомы прокариот такие же, как у эукариот». Рибосомы есть у всех клеток, но у прокариот они мельче (70S), чем в цитоплазме эукариот (80S).
- «Клеточный центр есть во всех клетках». Центриолей нет в клетках цветковых и голосеменных растений и у большинства грибов; веретено деления у них образуется без центриолей.
- «Лизосомы образуются в ЭПС». Ферменты лизосом синтезируются на шероховатой ЭПС, но сами лизосомы отшнуровываются от аппарата Гольджи (и созревают при слиянии с эндосомами).
- «Клеточная стенка грибов из целлюлозы». Основа стенки большинства грибов — хитин; целлюлоза — у растений.
- «Вакуоль есть только у растений». Вакуоли есть у грибов и многих протистов (сократительные, пищеварительные); у животных клеток бывают мелкие вакуоли, но крупной центральной нет.
- «Включения — это органоиды». Включения — непостоянные запасы и отходы, органоиды — постоянные структуры.
- «Митохондрии и хлоропласты полностью автономны, раз у них своя ДНК». Большинство их белков закодировано в ядре, поэтому они полуавтономны.
22. Интересные факты
- Самые длинные клетки человека — нейроны. Отросток двигательного нейрона идёт из спинного мозга к мышцам стопы и достигает метра, а у чувствительных нейронов, проводящих сигналы от стопы к продолговатому мозгу, общая длина отростков ещё больше. У жирафа и синего кита аксоны достигают нескольких метров.
- Желток страусиного яйца — одна клетка, крупнейшая из ныне существующих яйцеклеток. Но живая цитоплазма в ней занимает малую часть: основной объём — запасные вещества, то есть включения.
- Тропическая зелёная водоросль каулерпа выглядит как растение с «листьями», «стеблем» и «корнями» длиной в десятки сантиметров, но перегородок внутри неё нет: всё тело — одна многоядерная клетка.
- Митохондрии наследуются у человека только по материнской линии: при оплодотворении митохондрии сперматозоида уничтожаются. Поэтому по митохондриальной ДНК можно проследить родство по женской линии на десятки тысяч лет назад.
- Слово «лизосома» придумали раньше, чем лизосому увидели: де Дюв предсказал её существование по поведению ферментов, а американский цитолог А. Новикофф вскоре нашёл эти тельца на электронных фотографиях фракции, которую ему передал де Дюв [3].
- Поверхность всех внутренних мембран одной клетки печени примерно в 50 раз больше площади её плазмалеммы.
- Белок GFP, которым сегодня метят органоиды во всём мире, был обнаружен попутно: Симомура искал источник голубого свечения медузы, а зелёный белок поначалу казался побочным продуктом [8].
- В клетке нет «пустых» мест. Даже между органоидами цитозоль пронизан нитями цитоскелета, а макромолекулы стоят в нём так плотно, что крупная частица, например пузырёк, без моторных белков почти не сдвигается с места.
23. Частые вопросы
Ядро — это органоид или нет?
В разных учебниках по-разному. Часть авторов называет ядро двумембранным органоидом, часть — самостоятельным компонентом клетки наравне с цитоплазмой и поверхностным аппаратом. В кодификаторе ЕГЭ ядро описано отдельно от органоидов. В ответах безопасно писать «ядро» без уточнения, а если спрашивают о двумембранных структурах клетки — указывать и ядро, и митохондрии, и пластиды.
Почему у прокариот нет митохондрий, если они синтезируют АТФ?
Синтез АТФ при дыхании у прокариот идёт на плазмалемме: в ней находятся дыхательная цепь и АТФ-синтаза, и протоны перекачиваются наружу из клетки. Митохондрия происходит от бактерии, поэтому её внутренняя мембрана работает так же, как плазмалемма бактерии.
Есть ли органоиды у прокариот?
Мембранных органоидов, как у эукариот, нет. Но у многих бактерий есть внутренние структуры: тилакоиды цианобактерий, магнитосомы — мембранные пузырьки с кристаллами магнетита у бактерий, ориентирующихся по магнитному полю, карбоксисомы — белковые оболочки с ферментом фиксации углекислого газа. Рибосомы у прокариот есть всегда.
Чем цитоплазма отличается от цитозоля?
Цитоплазма — всё содержимое клетки вне ядра: цитозоль, органоиды и включения. Цитозоль (гиалоплазма) — только жидкая часть, в которой находятся органоиды.
Можно ли увидеть органоиды в школьный микроскоп?
Можно увидеть ядро, хлоропласты (в клетках элодеи или мха), вакуоль с окрашенным соком (в клетках кожицы красного лука), крахмальные зёрна. При хорошем освещении — движение хлоропластов. Митохондрии, ЭПС, аппарат Гольджи, рибосомы в школьный микроскоп не видны.
Почему эукариотические клетки крупнее прокариотических?
Внутренние мембраны дают эукариотической клетке большую площадь для мембранных реакций, а митохондрии — много энергии в расчёте на ген. Цитоскелет и моторные белки обеспечивают транспорт на расстояния, на которых одной диффузии не хватило бы. Прокариоту с такими размерами было бы трудно обеспечить себя энергией и веществами.
Сколько в клетке митохондрий?
Сильно по-разному: от одной крупной ветвящейся митохондрии у некоторых одноклеточных водорослей и трипаносом до тысяч в клетке печени и сотен тысяч в крупной яйцеклетке. Митохондрии к тому же сливаются и делятся, поэтому их число в одной клетке может меняться за минуты.
24. ЕГЭ
Что нужно уметь. Различать прокариотическую и эукариотическую клетки; называть части эукариотической клетки (поверхностный аппарат, цитоплазма, ядро) и составляющие цитоплазмы (цитозоль, органоиды, включения); относить органоиды к одномембранным, двумембранным и немембранным; связывать строение органоида с его функцией; называть методы изучения клетки; знать путь секреторного белка; различать клетки растений, животных и грибов; объяснять, почему митохондрии и пластиды полуавтономны [32].
Строение клетки — одна из самых «весомых» тем экзамена. Она встречается в заданиях с выбором нескольких верных ответов, на соответствие («органоид — признак» или «органоид — тип клетки»), на последовательность (путь белка, этапы фагоцитоза), в заданиях с рисунком, где нужно узнать органоид по изображению, и в заданиях второй части — на поиск ошибок в тексте и на объяснение.
Удобно запомнить несколько «связок», на которых строится большинство заданий:
- две мембраны + своя ДНК + рибосомы 70S + деление = митохондрии и пластиды → симбиогенез;
- рибосомы на мембранах → шероховатая ЭПС → белки на экспорт и для мембран;
- синтез липидов, стероидов, обезвреживание ядов, запас кальция → гладкая ЭПС;
- сортировка, упаковка, секреция, образование лизосом, полисахариды стенки растений → аппарат Гольджи;
- гидролазы, кислая среда, переваривание → лизосомы;
- микротрубочки 9 × 3 без центральной пары → центриоль; 9 + 2 → ресничка и жгутик;
- целлюлоза + крахмал + пластиды → растения; хитин + гликоген, без пластид → грибы; гликоген, без стенки, с центриолями → животные.
Как потерять балл. В заданиях на соответствие органоидов и функций перепутать гладкую и шероховатую ЭПС, отнести к функциям аппарата Гольджи синтез белка, назвать рибосомы местом синтеза липидов, а лизосомы — местом синтеза ферментов. В заданиях с объяснением — написать, что митохондрии «вырабатывают энергию»: энергия не возникает из ничего, митохондрии запасают энергию окисления органических веществ в виде АТФ.
25. Для олимпиад
Эффект и цена отсеков. Олимпиадные задачи нередко предлагают оценить, что даёт клетке компартментализация. Пример: если в отсеке объёмом 1 % объёма клетки собрать столько же молекул вещества, сколько было бы при равномерном распределении по всей клетке, их концентрация в отсеке возрастёт в 100 раз. Скорость реакции, пропорциональная концентрации субстрата при её низком значении, возрастёт примерно во столько же раз. Обратная сторона — необходимость транспорта через мембраны и затраты энергии на поддержание градиентов.
Диффузия и размер клетки. Среднее время, за которое молекула диффузией смещается на расстояние x в одном направлении, оценивают формулой t ≈ x² / (2D), где D — коэффициент диффузии. Для белка размером с GFP в цитоплазме D ≈ 25 мкм²/с [30]. На 10 мкм: t ≈ 100 / 50 = 2 с. На 1 мм: t ≈ 10⁶ / 50 = 2 · 10⁴ с — почти шесть часов. На 1 м (аксон двигательного нейрона): t ≈ 10¹² / 50 = 2 · 10¹⁰ с — сотни лет. Моторный белок кинезин, двигаясь со скоростью около 1 мкм/с, пройдёт метр примерно за 11–12 суток. Отсюда ясно, почему крупные клетки не могут обойтись без цитоскелета и активного транспорта [12].
Топология мембран. Полезно уметь определять, какая сторона мембраны какому пространству соответствует. Полость ЭПС, цистерн Гольджи, лизосом, эндосом и секреторных пузырьков топологически эквивалентна внешней среде. Сторона мембраны, обращённая в полость этих органоидов, при экзоцитозе становится наружной стороной плазмалеммы. Поэтому гликопротеины плазмалеммы несут углеводы снаружи, а белок, синтезированный в цитозоле, может попасть в лизосому только пройдя через мембрану ЭПС. Межмембранное пространство ядерной оболочки сообщается с полостью ЭПС. Матрикс митохондрии и строма хлоропласта соответствуют цитоплазме бывшей бактерии, а полость тилакоида — особый отсек: и у цианобактерий тилакоиды образуют внутреннюю систему мембран, отдельную от плазмалеммы.
Почему эукариоты стали сложными. Британские биологи Н. Лейн и У. Мартин в 2010 году предположили, что усложнение эукариот стало возможным только благодаря митохондриям: внутренние мембраны с дыхательной цепью, снабжаемые небольшими собственными геномами, позволили клетке получать на порядки больше энергии в расчёте на один ген, чем у прокариот [33]. Американские генетики М. Линч и Г. Маринов в 2017 году оспорили эти расчёты: по их оценке, в пересчёте на объём клетки эукариоты не имеют энергетического преимущества, и большая площадь мембран — следствие размера, а не причина сложности [34]. Спор не завершён, и на олимпиадах его используют как пример научной дискуссии.
Метки и опыты. Задачи по цитологии часто опираются на классические эксперименты: импульсную метку с последующей «погоней» (Джеймисон и Паладе), пересадку ядер (Хеммерлинг), бесклеточный синтез белка с микросомами и без них (Блобель). Нужно уметь предсказать результат при изменении условий. Например: если в клетке нарушен сигнал KDEL, белки полости ЭПС будут выделяться наружу; если удалить сигнальную последовательность у секреторного белка, он останется в цитозоле; если в опыте Джеймисона и Паладе заблокировать выход пузырьков из ЭПС, метка останется над шероховатой ЭПС.
26. Задания с разбором
Задание 1
Выберите три верных ответа. К немембранным органоидам относят: 1) рибосомы; 2) лизосомы; 3) клеточный центр; 4) аппарат Гольджи; 5) микротрубочки; 6) пластиды.
Ответ
1, 3, 5. Лизосомы и аппарат Гольджи — одномембранные органоиды, пластиды — двумембранные.
Задание 2
Установите соответствие между органоидами и числом их мембран. Органоиды: А) митохондрия; Б) лизосома; В) хлоропласт; Г) шероховатая ЭПС; Д) вакуоль; Е) аппарат Гольджи. Число мембран: 1) одна; 2) две.
Ответ
А2, Б1, В2, Г1, Д1, Е1.
Задание 3
Установите последовательность, в которой секреторный белок проходит по клетке: 1) аппарат Гольджи; 2) полость ЭПС; 3) рибосома на мембране ЭПС; 4) секреторный пузырёк; 5) транспортный пузырёк; 6) плазмалемма.
Ответ
3, 2, 5, 1, 4, 6.
Задание 4
Выберите три верных ответа. Признаки, общие для митохондрий и хлоропластов: 1) две мембраны; 2) содержат хлорофилл; 3) кольцевая ДНК; 4) кристы; 5) рибосомы 70S; 6) есть у всех эукариот.
Ответ
1, 3, 5. Хлорофилл есть только в хлоропластах, кристы — только в митохондриях, хлоропластов нет у животных и грибов.
Задание 5
Установите соответствие между признаками и органоидами. Признаки: А) синтез липидов и стероидов; Б) на мембранах расположены рибосомы; В) обезвреживание ядов в клетках печени; Г) синтез белков на экспорт; Д) депо ионов кальция в мышечных волокнах. Органоиды: 1) шероховатая ЭПС; 2) гладкая ЭПС.
Ответ
А2, Б1, В2, Г1, Д2.
Задание 6
Установите соответствие между признаками и типами клеток. Признаки: А) запасной углевод — гликоген, есть клеточная стенка из хитина; Б) есть пластиды; В) нет клеточной стенки; Г) клеточная стенка из целлюлозы; Д) есть центриоли, запасной углевод — гликоген. Типы клеток: 1) растительная; 2) животная; 3) грибная.
Ответ
А3, Б1, В2, Г1, Д2.
Задание 7
Выберите три верных ответа. Методы, позволившие изучить строение органоидов: 1) электронная микроскопия; 2) гибридологический анализ; 3) дифференциальное центрифугирование; 4) генеалогический метод; 5) метод меченых атомов; 6) близнецовый метод.
Ответ
1, 3, 5. Гибридологический, генеалогический и близнецовый методы — методы генетики.
Задание 8
Найдите ошибки в тексте, укажите номера предложений и исправьте их. (1) Эукариотическая клетка состоит из поверхностного аппарата, цитоплазмы и ядра. (2) К одномембранным органоидам относят ЭПС, аппарат Гольджи, лизосомы и рибосомы. (3) Митохондрии и пластиды имеют собственную ДНК и рибосомы 80S. (4) Клеточная стенка грибов, как и растений, состоит из целлюлозы. (5) Включения — непостоянные структуры клетки.
Ответ
(2) Рибосомы — немембранные органоиды. (3) Рибосомы митохондрий и пластид — 70S, как у бактерий. (4) Основа клеточной стенки грибов — хитин.
Задание 9
Почему митохондрии и пластиды называют полуавтономными органоидами? Приведите три довода.
Ответ
1) У них есть собственная кольцевая ДНК и собственные рибосомы 70S, на которых синтезируется часть их белков. 2) Они размножаются делением и не образуются заново из других мембран клетки. 3) Однако большинство их белков закодировано в ядерной ДНК и синтезируется в цитоплазме, поэтому вне клетки они существовать не могут.
Задание 10
В клетках поджелудочной железы сильно развиты шероховатая ЭПС и аппарат Гольджи, а в клетках сердечной мышцы много митохондрий. Объясните, с чем это связано.
Ответ
1) Клетки поджелудочной железы синтезируют и выделяют большое количество белков — пищеварительных ферментов и гормонов. 2) Белки на экспорт синтезируются на рибосомах шероховатой ЭПС, а аппарат Гольджи упаковывает их в секреторные пузырьки. 3) Клетки сердечной мышцы непрерывно сокращаются и тратят много АТФ, который синтезируется в митохондриях.
Задание 11
В эксперименте ткань гомогенизировали и центрифугировали с возрастающей скоростью. Какие структуры окажутся в осадке первыми, а какие — последними? На каком свойстве основан метод?
Ответ
1) Первыми осаждаются самые крупные и плотные структуры — ядра. 2) Затем митохондрии (и хлоропласты в растительных тканях), затем обрывки ЭПС с рибосомами (микросомы), при наибольших ускорениях — рибосомы. 3) Метод основан на различиях органоидов по размеру и плотности.
Задание 12
Выберите три верных ответа. В клетке животного есть: 1) центриоли; 2) лизосомы; 3) клеточная стенка; 4) крахмальные зёрна; 5) гликоген; 6) хлоропласты.
Ответ
1, 2, 5.
Задание 13
Почему лизосомные ферменты не разрушают саму клетку? Приведите два объяснения.
Ответ
1) Ферменты отделены от цитоплазмы мембраной лизосомы (белки этой мембраны защищены углеводными цепями со стороны полости). 2) Ферменты лизосом активны в кислой среде (pH около 5), а в цитозоле pH около 7,2, поэтому даже вышедшие из лизосомы ферменты почти не работают.
Задание 14
Какие преимущества дают эукариотической клетке внутренние мембраны? Назовите три.
Ответ
1) Разделяют несовместимые процессы (например, распад веществ в лизосомах и синтез в цитоплазме). 2) Создают отсеки с особой средой и высокой концентрацией ферментов и субстратов. 3) Увеличивают площадь, на которой размещаются ферменты (синтез липидов, дыхательная цепь, фотосинтез), и позволяют создавать градиенты ионов для синтеза АТФ.
Задание 15
И. Хеммерлинг прививал стебелёк ацетабулярии одного вида на ризоид с ядром другого вида. Шляпка какой формы вырастала после повторной регенерации? Какой вывод из этого сделан?
Ответ
1) После удаления первой (промежуточной) шляпки вырастала шляпка вида, которому принадлежало ядро. 2) Вывод: ядро определяет признаки клетки, посылая в цитоплазму вещества (как выяснилось позже — молекулы мРНК), по которым синтезируются белки. 3) Первая шляпка была промежуточной, потому что в цитоплазме стебелька ещё сохранялись вещества от прежнего ядра.
Задание 16
Выберите три верных ответа. Эритроциты млекопитающих: 1) не имеют ядра; 2) содержат много митохондрий; 3) получают энергию путём гликолиза; 4) имеют клеточную стенку; 5) заполнены гемоглобином; 6) имеют развитую шероховатую ЭПС.
Ответ
1, 3, 5.
Задание 17
Установите соответствие между структурами и составляющими цитоплазмы. Структуры: А) капли жира; Б) митохондрии; В) крахмальные зёрна; Г) рибосомы; Д) гранулы гликогена; Е) аппарат Гольджи. Составляющие цитоплазмы: 1) органоиды; 2) включения.
Ответ
А2, Б1, В2, Г1, Д2, Е1.
Задание 18
Белок, который в норме остаётся в полости ЭПС, обнаружен в межклеточной жидкости. Какое изменение в его аминокислотной последовательности может это объяснить? Каким путём он вышел из клетки?
Ответ
1) Белок утратил сигнал удержания в ЭПС — четыре аминокислоты (KDEL) на конце цепи, по которым белки возвращаются из аппарата Гольджи в ЭПС. 2) Без сигнала он прошёл по секреторному пути: из ЭПС в транспортных пузырьках в аппарат Гольджи, затем в секреторных пузырьках к плазмалемме. 3) Вышел из клетки путём экзоцитоза.
Задание 19 (олимпиадное)
Коэффициент диффузии белка в цитоплазме равен 25 мкм²/с. Оцените по формуле t ≈ x² / (2D), за какое время белок продиффундирует на 10 мкм и на 1 м. Сколько суток займёт путь в 1 м для моторного белка, движущегося со скоростью 1 мкм/с? Сделайте вывод.
Ответ
1) На 10 мкм: 10² / (2 · 25) = 2 с. 2) На 1 м = 10⁶ мкм: 10¹² / 50 = 2 · 10¹⁰ с — около 634 лет. 3) Моторному белку нужно 10⁶ с ≈ 11,6 суток. 4) В пределах обычной клетки диффузии достаточно, а в длинных отростках нейронов вещества и органоиды перевозятся активно по микротрубочкам.
Задание 20 (олимпиадное)
Объём гепатоцита — 5000 мкм³. Митохондрии занимают 22 % объёма клетки, их число — 1700. Найдите суммарный объём митохондрий и средний объём одной митохондрии. Если представить митохондрию цилиндром диаметром 0,5 мкм, какой будет её средняя длина?
Ответ
1) 5000 · 0,22 = 1100 мкм³. 2) 1100 / 1700 ≈ 0,65 мкм³. 3) Площадь сечения цилиндра π · 0,25² ≈ 0,196 мкм²; длина 0,65 / 0,196 ≈ 3,3 мкм. Это соответствует электронным фотографиям: митохондрии — вытянутые тельца длиной несколько микрометров, а в живой клетке они нередко сливаются в ветвящуюся сеть.
Литература
- Appelmans F., Wattiaux R., de Duve C. Tissue fractionation studies. 5. The association of acid phosphatase with a special class of cytoplasmic granules in rat liver // Biochemical Journal. 1955. Vol. 59. P. 438–445.
- de Duve C., Pressman B. C., Gianetto R., Wattiaux R., Appelmans F. Tissue fractionation studies. 6. Intracellular distribution patterns of enzymes in rat-liver tissue // Biochemical Journal. 1955. Vol. 60. P. 604–617.
- Alberts B., Heald R., Johnson A. et al. Molecular Biology of the Cell. 7th ed. New York: W. W. Norton, 2022.
- Ченцов Ю. С. Введение в клеточную биологию: учебник для вузов. 4-е изд. М.: ИКЦ «Академкнига», 2004.
- Knoll M., Ruska E. Das Elektronenmikroskop // Zeitschrift für Physik. 1932. Bd. 78. S. 318–339.
- Porter K. R., Claude A., Fullam E. F. A study of tissue culture cells by electron microscopy // Journal of Experimental Medicine. 1945. Vol. 81. P. 233–246.
- Palade G. E. A small particulate component of the cytoplasm // Journal of Biophysical and Biochemical Cytology. 1955. Vol. 1. P. 59–68.
- Shimomura O., Johnson F. H., Saiga Y. Extraction, purification and properties of aequorin, a bioluminescent protein from the luminous hydromedusan, Aequorea // Journal of Cellular and Comparative Physiology. 1962. Vol. 59. P. 223–239.
- Chalfie M., Tu Y., Euskirchen G., Ward W. W., Prasher D. C. Green fluorescent protein as a marker for gene expression // Science. 1994. Vol. 263. P. 802–805.
- Betzig E., Patterson G. H., Sougrat R. et al. Imaging intracellular fluorescent proteins at nanometer resolution // Science. 2006. Vol. 313. P. 1642–1645.
- Urry L. A., Cain M. L., Wasserman S. A., Minorsky P. V., Orr R. B. Campbell Biology. 12th ed. Pearson, 2020.
- Milo R., Phillips R. Cell Biology by the Numbers. New York: Garland Science, 2016.
- Sender R., Fuchs S., Milo R. Revised estimates for the number of human and bacteria cells in the body // PLOS Biology. 2016. Vol. 14. Art. e1002533.
- Anderson S., Bankier A. T., Barrell B. G. et al. Sequence and organization of the human mitochondrial genome // Nature. 1981. Vol. 290. P. 457–465.
- Lodish H., Berk A., Kaiser C. A. et al. Molecular Cell Biology. 9th ed. New York: W. H. Freeman, 2021.
- Blobel G., Dobberstein B. Transfer of proteins across membranes. I. Presence of proteolytically processed and unprocessed nascent immunoglobulin light chains on membrane-bound ribosomes of murine myeloma // Journal of Cell Biology. 1975. Vol. 67. P. 835–851.
- Munro S., Pelham H. R. B. A C-terminal signal prevents secretion of luminal ER proteins // Cell. 1987. Vol. 48. P. 899–907.
- Kalderon D., Roberts B. L., Richardson W. D., Smith A. E. A short amino acid sequence able to specify nuclear location // Cell. 1984. Vol. 39. P. 499–509.
- Gould S. J., Keller G.-A., Hosken N., Wilkinson J., Subramani S. A conserved tripeptide sorts proteins to peroxisomes // Journal of Cell Biology. 1989. Vol. 108. P. 1657–1664.
- Jamieson J. D., Palade G. E. Intracellular transport of secretory proteins in the pancreatic exocrine cell. I. Role of the peripheral elements of the Golgi complex // Journal of Cell Biology. 1967. Vol. 34. P. 577–596.
- Sagan L. On the origin of mitosing cells // Journal of Theoretical Biology. 1967. Vol. 14. P. 225–274.
- Martin W., Kowallik K. V. Annotated English translation of Mereschkowsky’s 1905 paper «Über Natur und Ursprung der Chromatophoren im Pflanzenreiche» // European Journal of Phycology. 1999. Vol. 34. P. 287–295.
- Brangwynne C. P., Eckmann C. R., Courson D. S. et al. Germline P granules are liquid droplets that localize by controlled dissolution/condensation // Science. 2009. Vol. 324. P. 1729–1732.
- Brangwynne C. P., Mitchison T. J., Hyman A. A. Active liquid-like behavior of nucleoli determines their size and shape in Xenopus laevis oocytes // PNAS. 2011. Vol. 108. P. 4334–4339.
- Banani S. F., Lee H. O., Hyman A. A., Rosen M. K. Biomolecular condensates: organizers of cellular biochemistry // Nature Reviews Molecular Cell Biology. 2017. Vol. 18. P. 285–298.
- Hämmerling J. Nucleo-cytoplasmic relationships in the development of Acetabularia // International Review of Cytology. 1953. Vol. 2. P. 475–498.
- Vance J. E. Phospholipid synthesis in a membrane fraction associated with mitochondria // Journal of Biological Chemistry. 1990. Vol. 265. P. 7248–7256.
- Valm A. M., Cohen S., Legant W. R. et al. Applying systems-level spectral imaging and analysis to reveal the organelle interactome // Nature. 2017. Vol. 546. P. 162–167.
- Ellis R. J. Macromolecular crowding: obvious but underappreciated // Trends in Biochemical Sciences. 2001. Vol. 26. P. 597–604.
- Swaminathan R., Hoang C. P., Verkman A. S. Photobleaching recovery and anisotropy decay of green fluorescent protein GFP-S65T in solution and cells: cytoplasmic viscosity probed by green fluorescent protein translational and rotational diffusion // Biophysical Journal. 1997. Vol. 72. P. 1900–1907.
- Karnkowska A., Vacek V., Zubáčová Z. et al. A eukaryote without a mitochondrial organelle // Current Biology. 2016. Vol. 26. P. 1274–1284.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
- Lane N., Martin W. The energetics of genome complexity // Nature. 2010. Vol. 467. P. 929–934.
- Lynch M., Marinov G. K. Membranes, energetics, and evolution across the prokaryote-eukaryote divide // eLife. 2017. Vol. 6. Art. e20437.
Обсуждение
Загружаем обсуждение…