
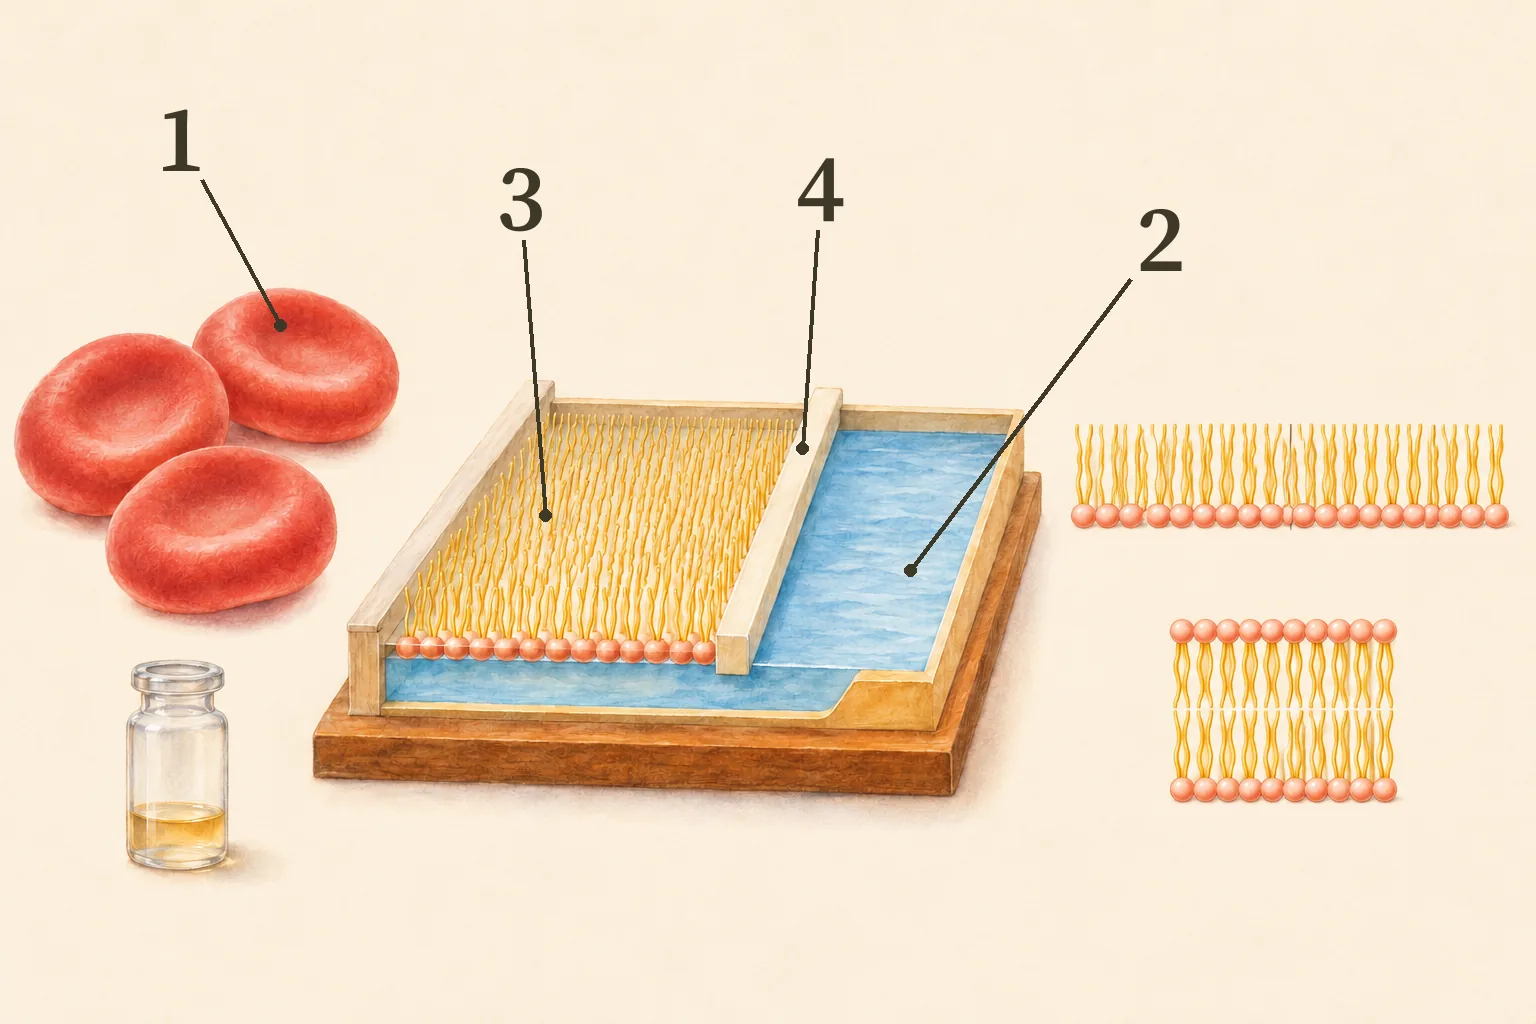
В 1925 году два голландских врача, Э. Гортер и Ф. Грендель, задались простым вопросом: сколько жира в оболочке эритроцита? Они взяли кровь собаки, кролика, овцы, козы, морской свинки и человека, отмыли эритроциты, извлекли из них ацетоном все липиды и аккуратно распределили их по поверхности воды в специальной ванночке. Липиды легли на воду слоем толщиной в одну молекулу, и площадь этого слоя можно было измерить. Затем Гортер и Грендель оценили под микроскопом суммарную поверхность взятых эритроцитов. Для всех животных результат оказался одинаковым: площадь монослоя примерно вдвое превышала поверхность клеток. Отсюда следовал вывод, который определил всю дальнейшую цитологию: эритроцит окружён слоем липидов толщиной в две молекулы [1].
Позже выяснилось, что Гортер и Грендель дважды ошиблись: ацетон извлёк не все липиды, а площадь поверхности эритроцитов они занизили. Ошибки почти точно скомпенсировали друг друга, и вывод о двойном слое оказался верным. Эта статья продолжает серию о строении клетки, начатую обзором «Строение клетки: общий план, органоиды и их взаимосвязь». Речь в ней пойдёт о том, как устроена плазматическая мембрана и почему она устроена именно так. О том, как вещества проходят через мембрану, рассказывает следующая статья серии — «Транспорт веществ через мембрану».
- 1. Как догадались, что у клетки есть мембрана
- 2. Химический состав мембраны
- 3. Липиды: почему они образуют двойной слой
- 4. Мембрана — двумерная жидкость
- 5. Две стороны мембраны
- 6. Мембранные белки
- 7. Гликокаликс и узнавание клеток
- 8. Функции плазматической мембраны
- 9. Межклеточные контакты
- 10. Мембрана и электричество
- 11. Мембрана неоднородна: домены и рафты
- 12. Мембраны бактерий, архей, растений и грибов
- 13. Как мембрана растёт и обновляется
- 14. Мембрана без воды
- 15. Откуда взялись первые мембраны
- 16. Мембрана как мишень
- 17. Частые ошибки
- 18. Интересные факты
- 19. Частые вопросы
- 20. ЕГЭ
- 21. Для олимпиад
- 22. Задания с разбором
- Литература
1. Как догадались, что у клетки есть мембрана
В световой микроскоп плазматическую мембрану не увидеть: её толщина — несколько нанометров, в сорок раз меньше предела разрешения. О её существовании узнали косвенно, по поведению клеток в растворах. В середине XIX века швейцарский ботаник К. Нэгели заметил, что содержимое растительной клетки в концентрированном растворе соли сжимается и отходит от клеточной стенки, сохраняя чёткую границу. Он предположил, что протопласт окружён тонкой плёнкой, и в 1855 году вместе с К. Крамером назвал её плазматической мембраной. В 1877 году немецкий ботаник В. Пфеффер построил искусственную полупроницаемую перегородку из осадка ферроцианида меди в стенках пористого сосуда и впервые измерил осмотическое давление. Он считал, что и клетки окружены похожей плёнкой, пропускающей воду, но задерживающей растворённые вещества [2].
Из чего же сделана эта плёнка? Ответ подсказал английский по рождению физиолог Э. Овертон, работавший в Цюрихе. В 1890-х годах он испытал на клетках растений сотни разных веществ и измерил, как быстро они проникают внутрь. Оказалось, что быстрее всех входят вещества, хорошо растворимые в маслах и плохо — в воде: спирты, эфиры, хлороформ. Соли, сахара, аминокислоты проникают очень медленно. Овертон заключил, что клетка покрыта слоем «липоидов» — жироподобных веществ, похожих на холестерин и лецитин [3]. Эта догадка была точной: лецитин — одно из старых названий фосфатидилхолина, главного фосфолипида мембран.
Наркоз и мембраны. Овертон и немецкий фармаколог Г. Мейер независимо заметили, что сила наркотического действия веществ — эфира, хлороформа, спиртов — растёт пропорционально их растворимости в маслах. Это правило Мейера — Овертона долго считали доказательством того, что наркоз вызывается растворением веществ в липидах мембран нервных клеток. Сейчас известно, что главные мишени наркозных средств — белки мембран (ионные каналы и рецепторы), но связь с растворимостью в жирах остаётся: чтобы добраться до этих белков, вещество должно войти в липидный слой.
В 1917 году американский химик И. Ленгмюр показал, что жирные кислоты и похожие молекулы на поверхности воды выстраиваются в слой толщиной в одну молекулу: их «водолюбивые» головки погружаются в воду, а «водобоязненные» хвосты торчат наружу [4]. Его ванночка с подвижным барьером позволила измерять площадь такого монослоя. Именно ей и воспользовались Гортер и Грендель.
Двойной слой липидов объяснял многое, но не всё. Поверхностное натяжение на границе клетки оказалось гораздо меньше, чем у капли масла в воде. В 1935 году английские физиологи Дж. Даниелли и Х. Давсон предложили «бутербродную» модель: липидный бислой с обеих сторон покрыт сплошным слоем белков [5]. Белки, по их мнению, и снижали натяжение.
Электронный микроскоп сначала подтвердил эту модель. В 1959 году американский цитолог Дж. Робертсон показал, что мембраны на срезах, окрашенных осмием, выглядят как три слоя: две тёмные полосы по краям и светлая посередине, общей толщиной около 7,5 нм. Такая же картина была у плазмалеммы, у мембран органоидов, у миелиновой оболочки нервов. Робертсон назвал это «элементарной мембраной» и решил, что все мембраны устроены одинаково: тёмные полосы — белки и головки липидов, светлая — их хвосты [6].
Но вскоре накопились факты, которые в «бутерброд» не укладывались. Мембраны разных органоидов сильно различались по соотношению белков и липидов. Многие мембранные белки не растворялись в воде, а извлекались только детергентами, то есть были погружены в гидрофобную середину слоя. В 1966 году американец Д. Брантон применил метод замораживания-скалывания: замороженную мембрану раскалывали ножом, и скол проходил ровно посередине бислоя, между двумя слоями липидов. На поверхностях скола были видны многочисленные частицы диаметром около 8 нм — белки, пронизывающие мембрану насквозь [7].
Решающий опыт поставили в 1970 году Л. Фрай и М. Эдидин. Они слили клетку мыши с клеткой человека с помощью вируса, а белки поверхности пометили антителами со светящимися красителями: мышиные — зелёным, человеческие — красным. Сразу после слияния гибридная клетка была наполовину зелёной, наполовину красной. Через 40 минут при 37 °C цвета перемешались по всей поверхности. При низкой температуре перемешивание шло намного медленнее. Значит, белки свободно перемещаются в плоскости мембраны, а сама мембрана — жидкая [8].
В 1972 году американцы С. Сингер и Г. Николсон объединили все эти данные в жидкостно-мозаичную модель: мембрана — это двумерная жидкость из липидов, в которую, как отдельные детали мозаики, встроены белки [9]. Модель с поправками действует до сих пор. Последующие поправки касаются в основном того, что мозаика оказалась гораздо плотнее и упорядоченнее, чем думали в 1972 году (об этом — в разделе 11).
- 1855К. Нэгели и К. Крамер называют плёнку вокруг протопласта плазматической мембраной
- 1877В. Пфеффер измеряет осмотическое давление с помощью искусственной полупроницаемой перегородки
- 1899Э. Овертон: быстрее входят в клетку вещества, растворимые в жирах, — клетка покрыта «липоидами»
- 1925Э. Гортер и Ф. Грендель: липидов эритроцита хватает на два слоя
- 1935Дж. Даниелли и Х. Давсон: бислой липидов между двумя слоями белка
- 1959Дж. Робертсон: трёхслойная «элементарная мембрана» в электронном микроскопе
- 1966Д. Брантон: на сколе замороженной мембраны видны белки, пронизывающие бислой
- 1970Л. Фрай и М. Эдидин: белки мыши и человека перемешиваются на мембране гибридной клетки
- 1972С. Сингер и Г. Николсон: жидкостно-мозаичная модель; М. Бретшер: асимметрия бислоя
- 1975Н. Анвин и Р. Хендерсон: первое изображение мембранного белка — бактериородопсина
- 1997К. Симонс и Э. Иконен: рафты — участки, богатые холестерином и сфинголипидами
- догадки по проницаемости и опыты с липидами
- электронная микроскопия и молекулярные методы
2. Химический состав мембраны
Плазматическая мембрана состоит из липидов, белков и углеводов. Углеводы не существуют в мембране сами по себе: они присоединены к белкам (гликопротеины) или к липидам (гликолипиды) и всегда находятся на наружной стороне [2].
Соотношение липидов и белков в разных мембранах очень разное и отражает их работу. В типичной плазмалемме животной клетки на белки и на липиды приходится примерно по половине массы. В миелиновой оболочке нервных волокон, главная задача которой — электрическая изоляция, белков меньше четверти массы. Во внутренней мембране митохондрий, где работает дыхательная цепь, белков около трёх четвертей [2]. Поскольку молекула белка в десятки раз тяжелее молекулы липида, даже в мембране с равными массами липидов и белков на одну белковую молекулу приходится около пятидесяти молекул липидов.
| Компонент | Доля массы плазмалеммы | Где расположен | Главная роль |
|---|---|---|---|
| Фосфолипиды | основная часть липидов | оба слоя бислоя | основа мембраны, барьер для ионов и крупных полярных молекул |
| Холестерин (у животных) | до одной молекулы на каждую молекулу фосфолипида | оба слоя | регулирует текучесть и прочность |
| Гликолипиды | несколько процентов липидов | только наружный слой | узнавание клеток, рецепторы |
| Белки | около половины массы (от 25 до 75 % в разных мембранах) | погружены в бислой или прикреплены к нему | транспорт, рецепция, ферментативная работа, контакты |
| Углеводы | несколько процентов | только снаружи, в составе гликопротеинов и гликолипидов | гликокаликс, узнавание |
3. Липиды: почему они образуют двойной слой
Главные липиды мембран — фосфолипиды. Молекула фосфолипида построена на основе трёхатомного спирта глицерина. К двум его атомам углерода присоединены остатки жирных кислот — длинные углеводородные цепи из 14–24 атомов углерода. К третьему присоединён остаток фосфорной кислоты, а к нему — небольшая полярная группа: холин, этаноламин, серин или инозит. По ней фосфолипиды и называют: фосфатидилхолин, фосфатидилэтаноламин, фосфатидилсерин, фосфатидилинозит [2, 10].
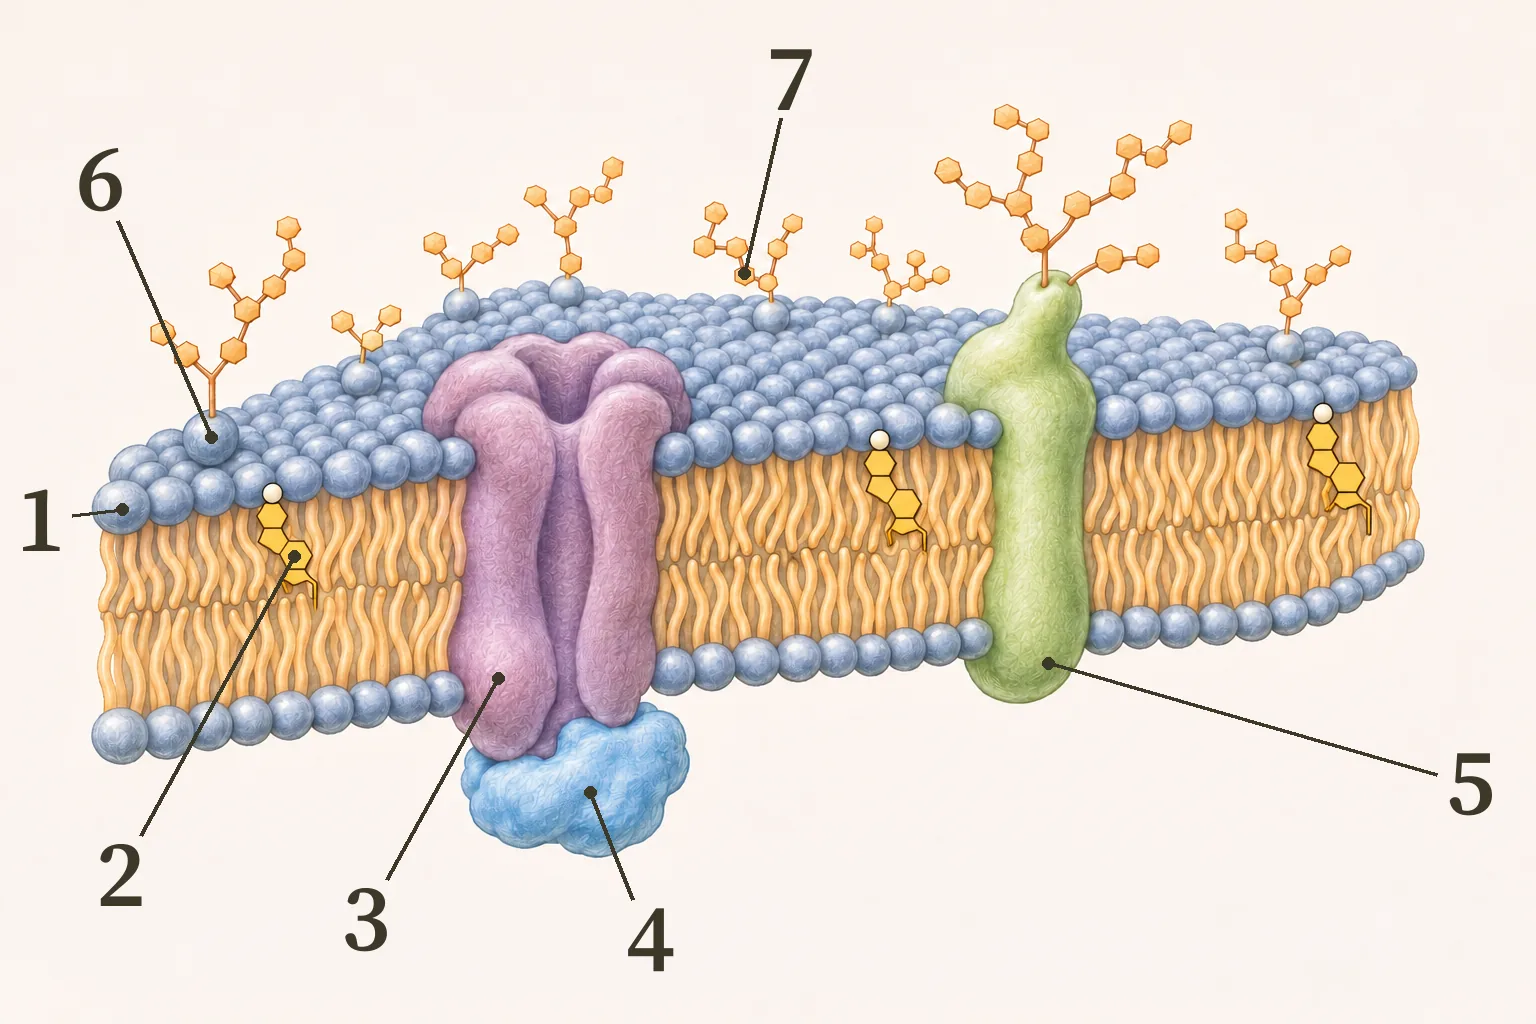
Важнейшее свойство такой молекулы — двойственность. Фосфатная группа с присоединённой к ней группировкой несёт заряды и хорошо взаимодействует с водой: это гидрофильная «головка». Две углеводородные цепи неполярны и с водой не взаимодействуют: это гидрофобные «хвосты». Такие молекулы называют амфифильными. В воде они самопроизвольно располагаются так, чтобы хвосты были спрятаны от воды, а головки обращены к ней.
Почему это происходит? Дело не в том, что хвосты «притягиваются» друг к другу: силы притяжения между углеводородными цепями слабы. Главная причина — вода. Молекулы воды соединены друг с другом водородными связями. Вокруг неполярной цепи они не могут образовать таких связей и вынуждены выстраиваться упорядоченной «клеткой». Это энергетически невыгодно: порядок уменьшает энтропию. Когда хвосты собираются вместе, площадь их контакта с водой уменьшается, молекулы воды освобождаются, и энтропия системы растёт. Это явление называют гидрофобным эффектом. Он же заставляет капли масла сливаться в воде и белки — сворачиваться так, чтобы неполярные аминокислоты оказались внутри [2].
Форма молекулы определяет, какую структуру образуют амфифильные молекулы. У мыла (соли жирной кислоты) одна цепь и широкая головка, молекула похожа на конус, и в воде такие молекулы собираются в шарики-мицеллы, где хвосты спрятаны в центре. У фосфолипида две цепи, и молекула близка к цилиндру; цилиндры удобнее всего укладываются в двойной слой — бислой, где хвосты двух слоёв обращены друг к другу. Плоский бислой имеет открытые края, на которых хвосты соприкасаются с водой, поэтому он самопроизвольно замыкается в пузырёк. Так из одной лишь смеси фосфолипидов и воды без всякой затраты энергии образуются замкнутые мембранные пузырьки.
Липосомы. В 1965 году английский гематолог А. Бэнгем рассматривал в электронный микроскоп сухие фосфолипиды, смешанные с водой, и увидел множество замкнутых пузырьков, вложенных друг в друга, как слои луковицы. Он показал, что такие пузырьки удерживают внутри ионы калия, то есть ведут себя как модель клеточной мембраны [11]. Их назвали липосомами. Сегодня липосомы служат упаковкой для лекарств, а липидные наночастицы — их родственники — доставляют в клетки молекулы мРНК в вакцинах [12].
Двойной слой липидов обладает ещё одним важным свойством — он сам себя «лечит». Если в нём появится разрыв, края разрыва окажутся невыгодными (хвосты будут контактировать с водой), и бислой самопроизвольно сомкнётся. Небольшие повреждения мембраны клетки затягиваются за доли секунды.
Кроме фосфолипидов на основе глицерина, в мембранах есть сфинголипиды. Их основа — не глицерин, а аминоспирт сфингозин, длинная цепь которого служит одним из «хвостов». Сфингомиелин особенно богат в миелиновой оболочке нервов (отсюда название). Если к сфингозину вместо фосфатной группы присоединена цепочка сахаров, получается гликолипид. Гликолипиды мозга — ганглиозиды — несут сложные разветвлённые цепочки сахаров с остатками сиаловой кислоты.
Холестерин
Третий важный класс мембранных липидов животных — стероиды, прежде всего холестерин. Его молекула состоит из жёсткой плоской системы четырёх колец, короткого углеводородного хвоста и единственной полярной гидроксильной группы. В мембране холестерин встраивается между фосфолипидами: гидроксильная группа — у головок, жёсткие кольца — вдоль начальных участков жирнокислотных хвостов. В плазмалемме животных клеток холестерина много: иногда по одной молекуле на каждую молекулу фосфолипида [2].
Холестерин часто считают «вредным» веществом, но без него животная клетка не могла бы существовать. Он делает мембрану прочнее и менее проницаемой для мелких водорастворимых молекул и регулирует её текучесть. Кроме того, из холестерина синтезируются стероидные гормоны и желчные кислоты. У растений вместо холестерина в мембранах находятся близкие по строению фитостерины, у грибов — эргостерин, у многих бактерий — сходные по роли гопаноиды.
Как потерять балл. Написать, что основа мембраны — «слой белков» или «двойной слой белков». Основа мембраны — двойной слой липидов (бислой); белки встроены в него или прикреплены к его поверхности.
4. Мембрана — двумерная жидкость
Липиды в мембране не закреплены на местах. Каждая молекула постоянно вращается вокруг своей оси, её хвосты изгибаются, а сама она меняется местами с соседями — около десяти миллионов раз в секунду. В результате молекула липида за секунду смещается в плоскости мембраны в среднем на расстояние порядка микрометра — длины небольшой бактерии [2]. По вязкости гидрофобная середина мембраны сравнима с растительным маслом.
Зато переход липида из одного слоя в другой (его называют «флип-флоп») происходит крайне редко. Чтобы перевернуться, молекула должна протащить свою заряженную головку через гидрофобную середину мембраны, а это энергетически очень невыгодно. В искусственных мембранах отдельная молекула фосфолипида переходит в другой слой реже раза в месяц [2]. В клетке этот переход ускоряют особые белки — флиппазы и скрамблазы, и с их помощью клетка управляет составом каждого слоя.
Текучесть — не случайное свойство, а условие работы мембраны. Белки-переносчики и каналы меняют форму, рецепторы встречаются друг с другом в плоскости мембраны, пузырьки сливаются с мембраной и отшнуровываются от неё — всё это возможно только в жидком слое. Если мембрана затвердевает, транспорт останавливается, и клетка гибнет. Если она слишком жидкая, через неё начинают «протекать» ионы.
От чего зависит текучесть
При охлаждении липидный бислой, как и любой жир, переходит из жидкого состояния в твёрдое, похожее на гель. Температура перехода зависит от строения хвостов. Чем длиннее углеводородные цепи, тем сильнее они взаимодействуют друг с другом и тем выше температура затвердевания. Двойные связи в цепях действуют наоборот. Двойная связь в цис-форме создаёт в цепи излом, и изогнутые хвосты не могут плотно уложиться рядом друг с другом. Поэтому жиры с насыщенными жирными кислотами, например сливочное масло и сало, при комнатной температуре твёрдые, а жиры с ненасыщенными — растительные масла — жидкие [2, 10].
- Ненасыщенные жирные кислотыдвойные связи создают изломы цепей, хвосты укладываются рыхло
- Короткие цепислабее взаимодействуют друг с другом
- Повышение температурыусиливается тепловое движение молекул
- Холестерин при низкой температуремешает хвостам упорядоченно уложиться
- Насыщенные жирные кислотыпрямые цепи плотно прилегают друг к другу
- Длинные цеписильнее взаимодействуют друг с другом
- Понижение температурыбислой переходит в упорядоченное, гелеобразное состояние
- Холестерин при температуре телажёсткие кольца ограничивают движение хвостов
- мембрана жиже
- мембрана плотнее
Холестерин действует двояко. При температуре тела его жёсткие кольца ограничивают движения хвостов, и мембрана становится плотнее и менее проницаемой. При низкой температуре холестерин, наоборот, мешает хвостам упорядоченно уложиться, и мембрана не затвердевает. Так холестерин сглаживает зависимость текучести от температуры.
Организмы, температура тела которых зависит от среды, умеют подстраивать состав мембран. В 1974 году американский биохимик М. Синенски выращивал кишечную палочку при разных температурах и измерял вязкость её мембран. Оказалось, что при температуре от 15 до 43 °C вязкость почти одинакова: при похолодании бактерия синтезирует больше ненасыщенных и коротких жирных кислот, при потеплении — больше насыщенных. Синенски назвал это гомеовязкостной адаптацией [13]. Похожим образом меняют состав мембран рыбы при сезонных изменениях температуры воды, растения при закаливании перед зимой, животные при подготовке к спячке [14].
Рыбы из ледяных морей. В мембранах антарктических рыб, живущих при температуре воды около −1,9 °C, доля ненасыщенных жирных кислот гораздо выше, чем у рыб тёплых морей. Если перенести такую мембрану в тепло, она станет слишком жидкой; если охладить мембрану тропической рыбы до антарктической температуры, она частично затвердеет.
Как измеряют подвижность молекул в мембране
Опыт Фрая и Эдидина показал, что белки движутся, но не позволял измерить скорость. В 1976 году американские биофизики Д. Аксельрод, Э. Элсон, У. Уэбб и их коллеги предложили метод, которым пользуются до сих пор, — восстановление флуоресценции после фотообесцвечивания [15]. Белки или липиды мембраны метят светящимся красителем. Затем короткой вспышкой лазера «выжигают» метку на маленьком пятне поверхности клетки — пятно становится тёмным. Если молекулы в мембране подвижны, в тёмное пятно постепенно приходят светящиеся молекулы с соседних участков, а обесцвеченные расходятся. По скорости, с которой пятно снова начинает светиться, вычисляют коэффициент диффузии. Если часть молекул закреплена (например, связана с цитоскелетом), пятно восстанавливается не полностью, и по этому остатку можно оценить долю неподвижных молекул.
Такие измерения показали, что липиды диффундируют в мембране со скоростью около 1 мкм² в секунду, а белки — в десятки и сотни раз медленнее, причём часть белков почти неподвижна. Позднее появились методы слежения за отдельными молекулами, которые и привели к открытию «оград» и отсеков в мембране (раздел 11).
5. Две стороны мембраны
Наружный и внутренний слои плазмалеммы различаются по составу. В 1972 году английский биохимик М. Бретшер показал это на эритроцитах: метка, которая не проникает через мембрану, связывалась снаружи с одними фосфолипидами, а с другими — только после разрушения клетки [16]. В наружном слое преобладают фосфатидилхолин и сфингомиелин, там же находятся все гликолипиды. Во внутреннем — фосфатидилэтаноламин и фосфатидилсерин; последний несёт отрицательный заряд, поэтому внутренняя сторона мембраны заряжена отрицательно. Холестерин распределён между слоями примерно поровну [17].
- Фосфатидилхолин и сфингомиелиннейтральные в целом липиды
- Гликолипидывсе находятся только здесь
- Углеводы гликопротеиновгликокаликс
- Холестеринпримерно половина
- Фосфатидилэтаноламин
- Фосфатидилсериннесёт отрицательный заряд
- Фосфатидилинозитучаствует в передаче сигналов
- Холестеринпримерно половина
Асимметрию поддерживают флиппазы — ферменты, которые, затрачивая АТФ, переносят фосфатидилсерин и фосфатидилэтаноламин из наружного слоя во внутренний. Нарушение асимметрии служит для организма важным сигналом.
- Сигнал «съешь меня». Когда клетка гибнет запрограммированной смертью (апоптозом), флиппазы отключаются, а скрамблазы перемешивают слои. Фосфатидилсерин оказывается снаружи, и макрофаги узнают по нему гибнущую клетку и поглощают её, не вызывая воспаления. Это открыла в 1992 году американская исследовательница В. Фадок с коллегами [18]. Каждый день в теле человека так погибают и поглощаются миллиарды клеток.
- Свёртывание крови. При активации тромбоцитов фосфатидилсерин выходит на их поверхность, и на этой отрицательно заряженной поверхности собираются белки свёртывания, ускоряя образование тромба.
- Старение эритроцитов. Стареющие эритроциты постепенно теряют асимметрию мембраны, и макрофаги селезёнки и печени удаляют их из крови.
Асимметричны и белки: каждая молекула мембранного белка встроена в мембрану строго определённым образом, одним концом наружу, другим — внутрь. Белок не может перевернуться так же, как не может перевернуться липид: для этого пришлось бы протащить через гидрофобную середину крупные гидрофильные участки. Рецептор гормона всегда обращён связывающим участком наружу, а насос перекачивает ионы всегда в одном направлении. Углеводы гликопротеинов и гликолипидов всегда находятся снаружи.
6. Мембранные белки
Если липиды образуют основу мембраны, то почти всю её «работу» выполняют белки. Около трети всех генов человека кодирует мембранные белки [2]. По тому, как белок связан с мембраной, различают несколько групп.
- Пронизывают бислойодин или несколько раз
- Участок в мембранеα-спираль из 20–25 неполярных аминокислот или бочонок из β-цепей
- Как выделитьтолько разрушив бислой детергентом
- Примерыканалы, насосы, переносчики, многие рецепторы
- Лежат на поверхностисвязаны с головками липидов или с интегральными белками
- Связислабые, ионные и водородные
- Как выделитьизменив концентрацию солей или pH
- Примерыспектрин эритроцита, белки цитоскелета
- Связаны с липидомковалентной связью; хвост липида в одном из слоёв
- Гдемного на наружной поверхности клетки
- Примерынекоторые ферменты и рецепторы поверхности
Интегральные белки погружены в бислой. Большинство из них — трансмембранные: они пронизывают мембрану насквозь, один или несколько раз. Участок белковой цепи, проходящий через бислой, обычно свёрнут в спираль (α-спираль) из 20–25 аминокислот с неполярными боковыми группами. Такая спираль имеет длину около 3 нм — как раз толщину гидрофобного слоя. У белков наружной мембраны грамотрицательных бактерий, митохондрий и хлоропластов участок, проходящий через мембрану, имеет форму бочонка из β-цепей. Извлечь интегральные белки из мембраны можно, только разрушив бислой детергентами.
Периферические белки не погружены в бислой, а связаны с поверхностью мембраны — с головками липидов или с выступающими участками интегральных белков — слабыми связями. Их можно отделить, изменив концентрацию солей или pH раствора. Примеры — белки цитоскелета, прикреплённые к внутренней стороне плазмалеммы.
Белки, заякоренные липидом, связаны ковалентной связью с молекулой липида, хвост которой погружён в один из слоёв мембраны. Таких белков много на наружной поверхности клетки.
Первым мембранным белком, строение которого увидели, был бактериородопсин — светочувствительный белок солелюбивых архей, перекачивающий протоны под действием света. В 1975 году британцы Н. Анвин и Р. Хендерсон получили его изображение с помощью электронного микроскопа и увидели семь α-спиралей, пронизывающих мембрану [19]. Позже выяснилось, что такую же укладку из семи спиралей имеют сотни рецепторов животных, в том числе рецепторы зрения, обоняния и многих гормонов.
| Функция белка | Примеры |
|---|---|
| Транспортная | каналы (калиевые, натриевые, аквапорины), переносчики глюкозы, насосы (натрий-калиевая АТФаза) |
| Рецепторная | рецепторы гормонов (инсулина, адреналина), медиаторов, света, запахов |
| Ферментативная | ферменты пищеварения на мембране микроворсинок кишечника, ферменты синтеза АТФ во внутренней мембране митохондрий |
| Контактная | кадгерины, белки плотных контактов и десмосом, коннексины щелевых контактов |
| Опорная | белки, связывающие мембрану с цитоскелетом и с межклеточным веществом (интегрины) |
| Узнавание | белки главного комплекса гистосовместимости, гликопротеины групп крови |
Мембрана эритроцита — самая изученная мембрана тела. К её внутренней стороне прикреплена сеть из белка спектрина, натянутая, как каркас, на всю поверхность клетки. Она придаёт эритроциту форму двояковогнутого диска и позволяет ему сгибаться в капиллярах, вдвое более узких, чем он сам, и затем восстанавливать форму. При наследственных нарушениях белков этой сети эритроциты становятся шарообразными и хрупкими и быстро разрушаются в селезёнке — развивается наследственная анемия.
Мембранные белки — мишени многих лекарств. На них действуют лекарства, снижающие давление, обезболивающие, антигистаминные средства, многие лекарства для сердца. Белки мембраны используют и возбудители болезней: вирус гриппа прикрепляется к остаткам сиаловой кислоты на гликопротеинах клеток дыхательных путей, вирус иммунодефицита человека — к белку CD4 на T-хелперах.
Насколько мембрана «мозаична». На схемах в учебниках белки изображают редкими островками в море липидов. Реальная мембрана гораздо плотнее. В мембране эритроцита белки занимают около четверти площади даже в средней, гидрофобной её части, а у поверхности, где выступают их крупные участки, — ещё больше [20]. Американский биофизик Д. Энгельман в 2005 году сформулировал это так: мембраны скорее мозаичны, чем жидки [21].
7. Гликокаликс и узнавание клеток
Наружная поверхность животной клетки покрыта слоем углеводов — гликокаликсом (от греческих слов «сладкий» и «оболочка»). Это короткие и длинные цепочки сахаров, присоединённые к белкам и липидам мембраны, а также к белкам, выделенным клеткой и удерживаемым на её поверхности. Толщина гликокаликса — от нескольких до сотен нанометров. Особенно толстый гликокаликс у клеток эпителия кишечника, где он покрывает микроворсинки, и у внутренней выстилки кровеносных сосудов [2].
Гликокаликс выполняет несколько функций. Он защищает мембрану от механических и химических повреждений. В кишечнике в нём удерживаются пищеварительные ферменты, и здесь идёт пристеночное пищеварение, открытое советским физиологом А. М. Уголевым в 1958 году. Но главное — гликокаликс служит «паспортом» клетки. Цепочки сахаров очень разнообразны: из десятка разных моносахаридов, соединённых в разных положениях и с ветвлениями, можно построить огромное число вариантов. По ним клетки узнают друг друга, а иммунная система отличает свои клетки от чужих.
Группы крови
Самый известный пример — группы крови системы AB0. В 1901 году австрийский врач К. Ландштейнер смешивал сыворотку крови одних людей с эритроцитами других и заметил, что в некоторых сочетаниях эритроциты склеиваются. Так были открыты группы крови, и переливание крови стало безопасным. Ландштейнер получил за это открытие Нобелевскую премию в 1930 году.
Группа крови определяется концом углеводной цепочки на гликопротеинах и гликолипидах эритроцитов. У людей с группой 0 цепочка заканчивается сахаром фукозой (это антиген H). У людей с группой A к ней присоединён ещё один сахар — N-ацетилгалактозамин, у людей с группой B — галактоза. Присоединяют их ферменты-гликозилтрансферазы, закодированные в гене ABO. В 1990 году выяснилось, что ферменты A и B различаются всего четырьмя аминокислотами, а аллель 0 несёт выпадение одного нуклеотида, из-за которого синтезируется укороченный неактивный белок [22]. Так одна буква в ДНК определяет, какой сахар окажется на поверхности каждого эритроцита. Подробно о наследовании групп крови — в статье «Кодоминирование и группы крови».
Губки, которые собирают себя заново. В 1907 году американский зоолог Г. Уилсон продавил морскую губку через мелкую шёлковую ткань. Губка распалась на отдельные клетки, но через несколько дней клетки собрались в комочки, а из них выросли маленькие губки [23]. Позже в таких опытах смешивали клетки губок двух видов разного цвета, и клетки собирались раздельно, каждая к своему виду. Узнавание обеспечивают крупные углеводно-белковые молекулы на поверхности клеток губки. Это один из самых древних примеров узнавания «свой — чужой» у животных.
8. Функции плазматической мембраны
Функции плазмалеммы вытекают из её строения. В школьных учебниках и заданиях ЕГЭ выделяют следующие [24, 25].
- Барьерная. Мембрана отделяет содержимое клетки от среды и не пропускает большинство веществ без участия белков. Благодаря ей состав цитоплазмы сильно отличается от состава внешней среды.
- Транспортная. Мембрана избирательно пропускает вещества: одни свободно, другие — с помощью белков-переносчиков и каналов, третьи — с затратой энергии, против разности концентраций; крупные частицы поступают путём эндоцитоза и выводятся экзоцитозом. Это свойство называют избирательной проницаемостью, или полупроницаемостью.
- Рецепторная (сигнальная). Белки-рецепторы связывают гормоны, медиаторы и другие сигнальные молекулы и передают сигнал внутрь клетки, не впуская сами молекулы.
- Контактная. Мембрана участвует в образовании межклеточных контактов, соединяющих клетки в ткани.
- Узнавание. Гликокаликс и белки поверхности позволяют клеткам узнавать друг друга.
- Ферментативная. На мембране работают многие ферменты, например ферменты пристеночного пищеварения.
- Создание разности потенциалов. За счёт неравномерного распределения ионов по сторонам мембраны на ней существует электрический потенциал — основа возбудимости нервных и мышечных клеток.
- Барьернаябислой не пропускает ионы и крупные полярные молекулы
- Разделение зарядовбислой — изолятор, на нём держится потенциал
- Транспортнаяканалы, переносчики, насосы
- Рецепторнаясвязывание гормонов и медиаторов
- Контактнаяплотные контакты, десмосомы, щелевые контакты
- Ферментативнаянапример, пристеночное пищеварение
- Узнаваниегликокаликс — «паспорт» клетки, группы крови
- Защитаслой гликокаликса над мембраной
9. Межклеточные контакты
В многоклеточном организме клетки соединены друг с другом. Соединения образуют мембранные белки, которые связываются с такими же белками соседней клетки или с межклеточным веществом, а изнутри — с цитоскелетом. Тип контакта зависит от того, что он должен обеспечить: прочность, непроницаемость или обмен веществами [2].
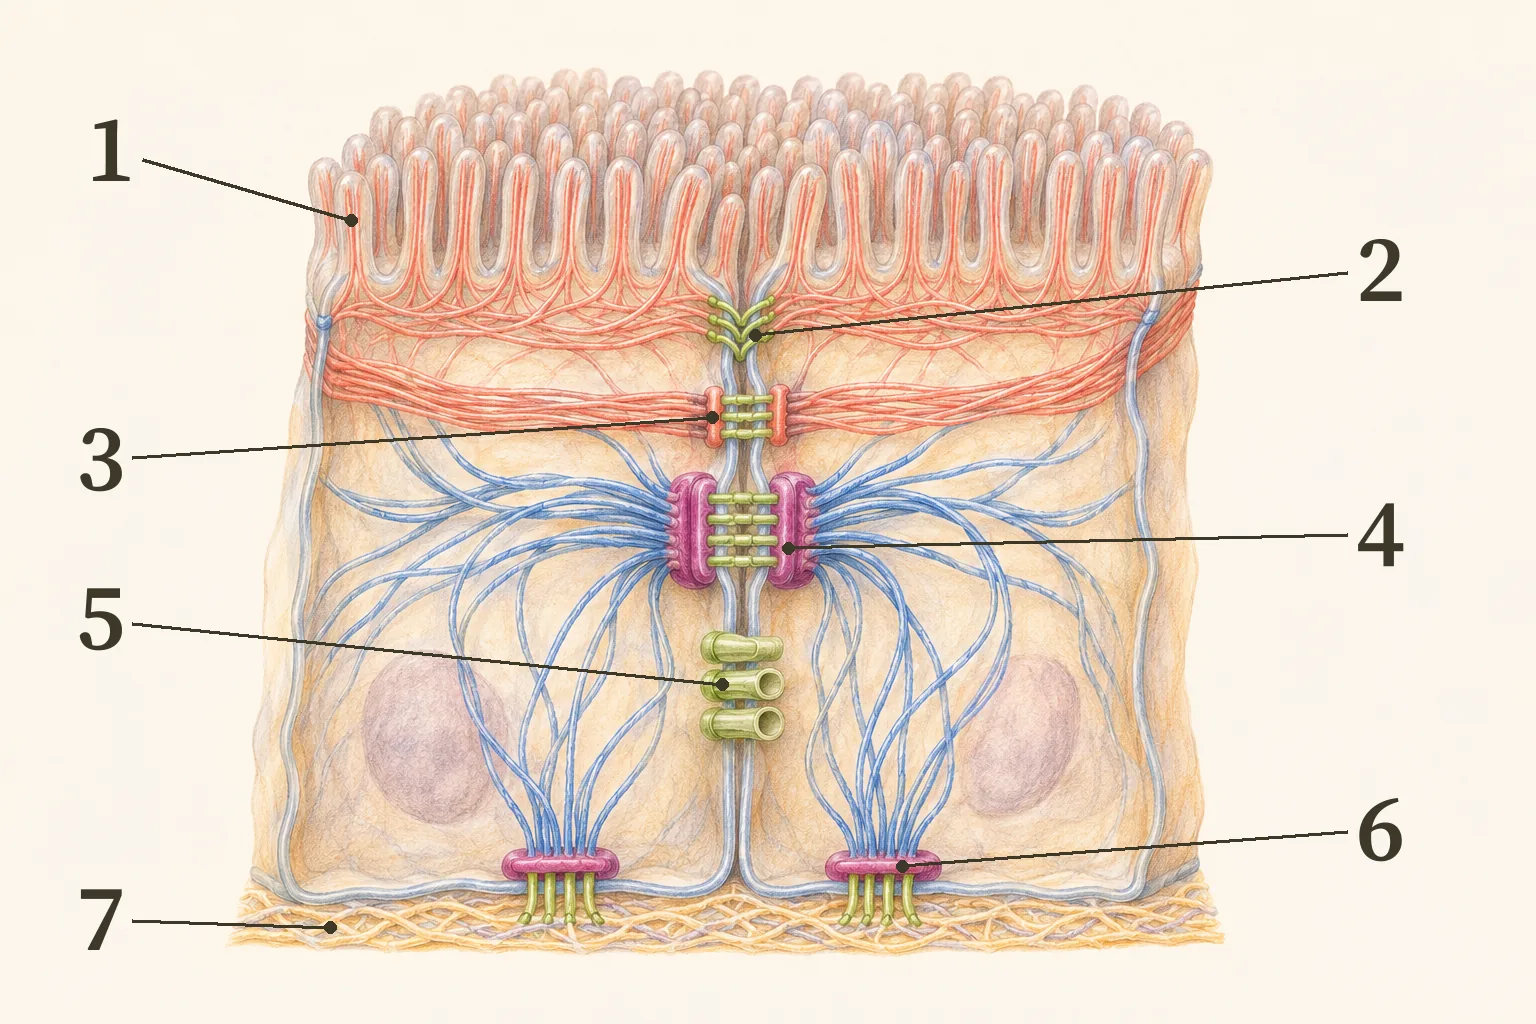
- Плотные контакты опоясывают клетки эпителия у их верхушки. Белки соседних мембран сшиваются так плотно, что между клетками не может пройти даже ион. Поэтому содержимое кишечника или мочевого пузыря не просачивается между клетками в ткани: всё, что всасывается, проходит через сами клетки, а значит, под их контролем.
- Адгезионные контакты и десмосомы обеспечивают прочность. Белки-кадгерины соседних клеток сцепляются друг с другом, а изнутри к ним прикреплены нити цитоскелета: в адгезионных контактах — актиновые, в десмосомах — промежуточные филаменты. Через десмосомы цитоскелет всех клеток пласта связан в единую сеть, поэтому кожа и сердечная мышца выдерживают растяжение. При болезни пузырчатке иммунная система вырабатывает антитела против белков десмосом, клетки эпидермиса разъединяются, и на коже образуются пузыри.
- Щелевые контакты — каналы из белков-коннексинов, которые соединяют цитоплазму соседних клеток. Через них проходят ионы и мелкие молекулы (до массы около 1000 дальтон), но не белки. По щелевым контактам возбуждение распространяется от одной клетки сердечной мышцы к другой, и сердце сокращается согласованно.
- Плазмодесмы — у растений: каналы в клеточной стенке, выстланные плазмалеммой, общей для двух соседних клеток. Через них соединены цитоплазмы почти всех клеток растения. Подробно — в статье «Плазмодесмы: строение, транспорт и регуляция».
Контакты разобраны подробнее в статье «Эпителиальные ткани», поскольку именно в эпителии их набор наиболее полон.
10. Мембрана и электричество
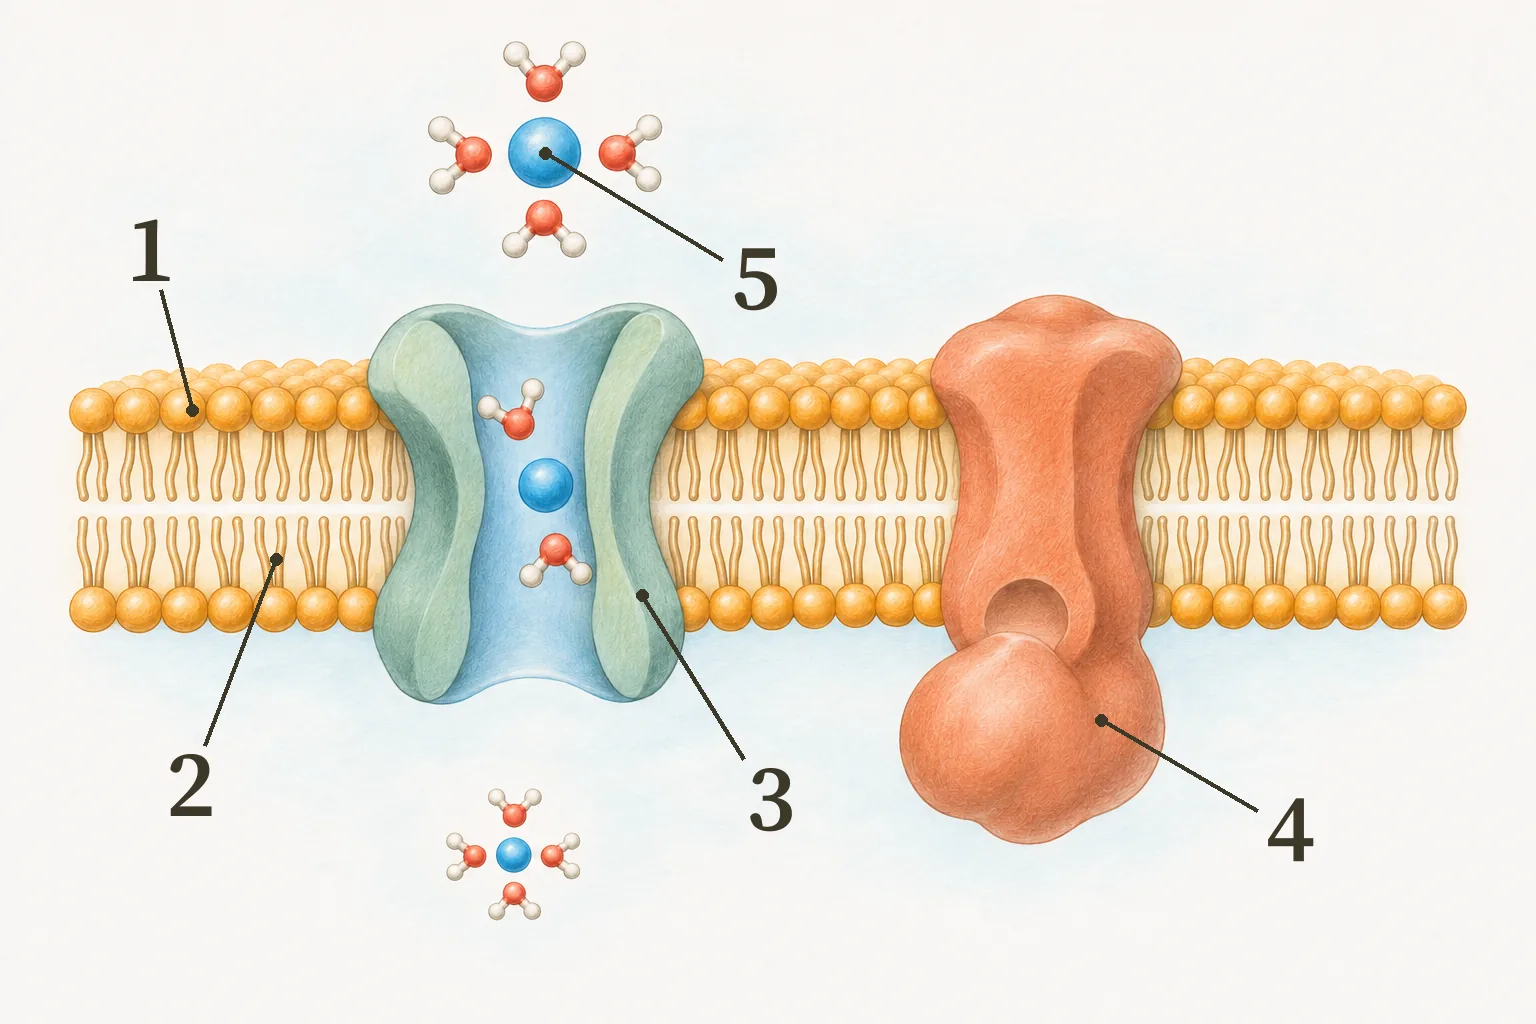
Липидный бислой почти не пропускает ионы: чтобы пройти через гидрофобную середину, ион должен расстаться со своей водной оболочкой, а это требует огромной энергии. Поэтому мембрана служит электрическим изолятором, разделяющим два проводящих раствора — цитоплазму и внеклеточную жидкость. С точки зрения физики это конденсатор: две проводящие обкладки, разделённые тонким слоем диэлектрика. Электрическая ёмкость клеточных мембран у самых разных организмов почти одинакова — около 1 микрофарада на квадратный сантиметр [2].
На мембране почти всех живых клеток существует разность потенциалов: внутренняя сторона заряжена отрицательно относительно наружной. В покое у нервных клеток она составляет около −70 мВ. Это немного, но толщина мембраны — всего около 5 нм. Напряжённость электрического поля внутри мембраны равна 0,07 В / (5 · 10⁻⁹ м) ≈ 1,4 · 10⁷ В/м — четырнадцать миллионов вольт на метр. Это в несколько раз больше напряжённости, при которой искра пробивает сухой воздух (около 3 · 10⁶ В/м). Такое поле действует на заряженные участки мембранных белков и управляет, например, открыванием потенциалзависимых каналов.
Откуда берётся этот потенциал и как он меняется при возбуждении, подробно рассказано в статьях «Потенциал покоя» и «Потенциал покоя и потенциал действия». Для понимания строения мембраны важно одно: без непроницаемого для ионов бислоя и встроенных в него избирательных каналов и насосов электрическая жизнь клетки была бы невозможна.
11. Мембрана неоднородна: домены и рафты
Жидкостно-мозаичная модель 1972 года предполагала, что липиды и белки распределены в мембране более или менее равномерно и движутся свободно. Последующие исследования показали, что это не совсем так.
Во-первых, в мембране есть участки с особым составом. В 1997 году финские биохимики К. Симонс и Э. Иконен предположили, что сфинголипиды и холестерин собираются в небольшие, более плотные и упорядоченные участки, которые «плывут» в более жидком окружении, и назвали их рафтами — «плотами» [26]. С рафтами связаны многие рецепторы и белки, заякоренные липидами. Через них, по-видимому, проникают в клетку некоторые вирусы и бактериальные токсины. Размер и время жизни рафтов долго были предметом споров: в живой клетке они оказались очень мелкими (десятки нанометров) и короткоживущими, и сейчас их рассматривают как один из принципов организации мембраны, а не как постоянные «плоты» [27].
Во-вторых, движение белков и липидов в плазмалемме ограничено цитоскелетом. Японский биофизик А. Кусуми, прослеживая движение отдельных молекул, показал, что сеть актиновых нитей под мембраной разбивает её на маленькие отсеки размером в десятки и сотни нанометров. Молекулы быстро движутся внутри отсека и лишь время от времени «перескакивают» в соседний [28]. Белки, прикреплённые к цитоскелету, служат как бы столбиками ограды, которые задерживают и липиды.
В-третьих, у многих клеток плазмалемма разделена на участки с разным составом. У клетки эпителия кишечника верхушечная мембрана, обращённая в просвет кишки, содержит ферменты пищеварения и переносчики для всасывания, а боковая и нижняя мембраны — совсем другие белки, например натрий-калиевый насос. Разделяют их плотные контакты, через которые белки не могут продиффундировать.
12. Мембраны бактерий, архей, растений и грибов
Общий принцип строения — бислой амфифильных липидов со встроенными белками — одинаков у всех клеток. Это одно из доказательств общего происхождения жизни. Но детали различаются, и некоторые из них очень интересны.
Бактерии. В мембранах большинства бактерий нет стеринов; их роль играют гопаноиды. У грамотрицательных бактерий снаружи от клеточной стенки лежит вторая, наружная мембрана. Её внутренний слой состоит из фосфолипидов, а наружный — из липополисахарида, крупной молекулы с длинной углеводной цепью. Липополисахарид делает наружную мембрану малопроницаемой для многих антибиотиков и детергентов; в организме человека он вызывает лихорадку и воспаление. Антибиотики полимиксины связываются с липополисахаридом и разрушают наружную мембрану [2].
Археи. У архей липиды мембран устроены иначе, чем у всех остальных организмов. Во-первых, углеводородные цепи присоединены к глицерину не сложноэфирной связью, как у бактерий и эукариот, а простой эфирной связью, которая гораздо устойчивее к нагреванию и кислотам. Во-вторых, сами цепи не прямые жирнокислотные, а разветвлённые, построенные из пятиуглеродных звеньев изопрена. В-третьих, у архей используется «зеркальная» форма глицерофосфата — другой оптический изомер. У многих архей, живущих в горячих кислых источниках, цепи с двух сторон мембраны сшиты в единые молекулы длиной во всю толщину мембраны: вместо двойного слоя получается один слой молекул, который не расслаивается даже при температуре 80–100 °C [29]. Различие в липидах бактерий и архей называют «липидным водоразделом». Как и почему оно возникло, пока неизвестно; интересно, что эукариоты, родственные археям по многим генам, унаследовали липиды «бактериального» типа.
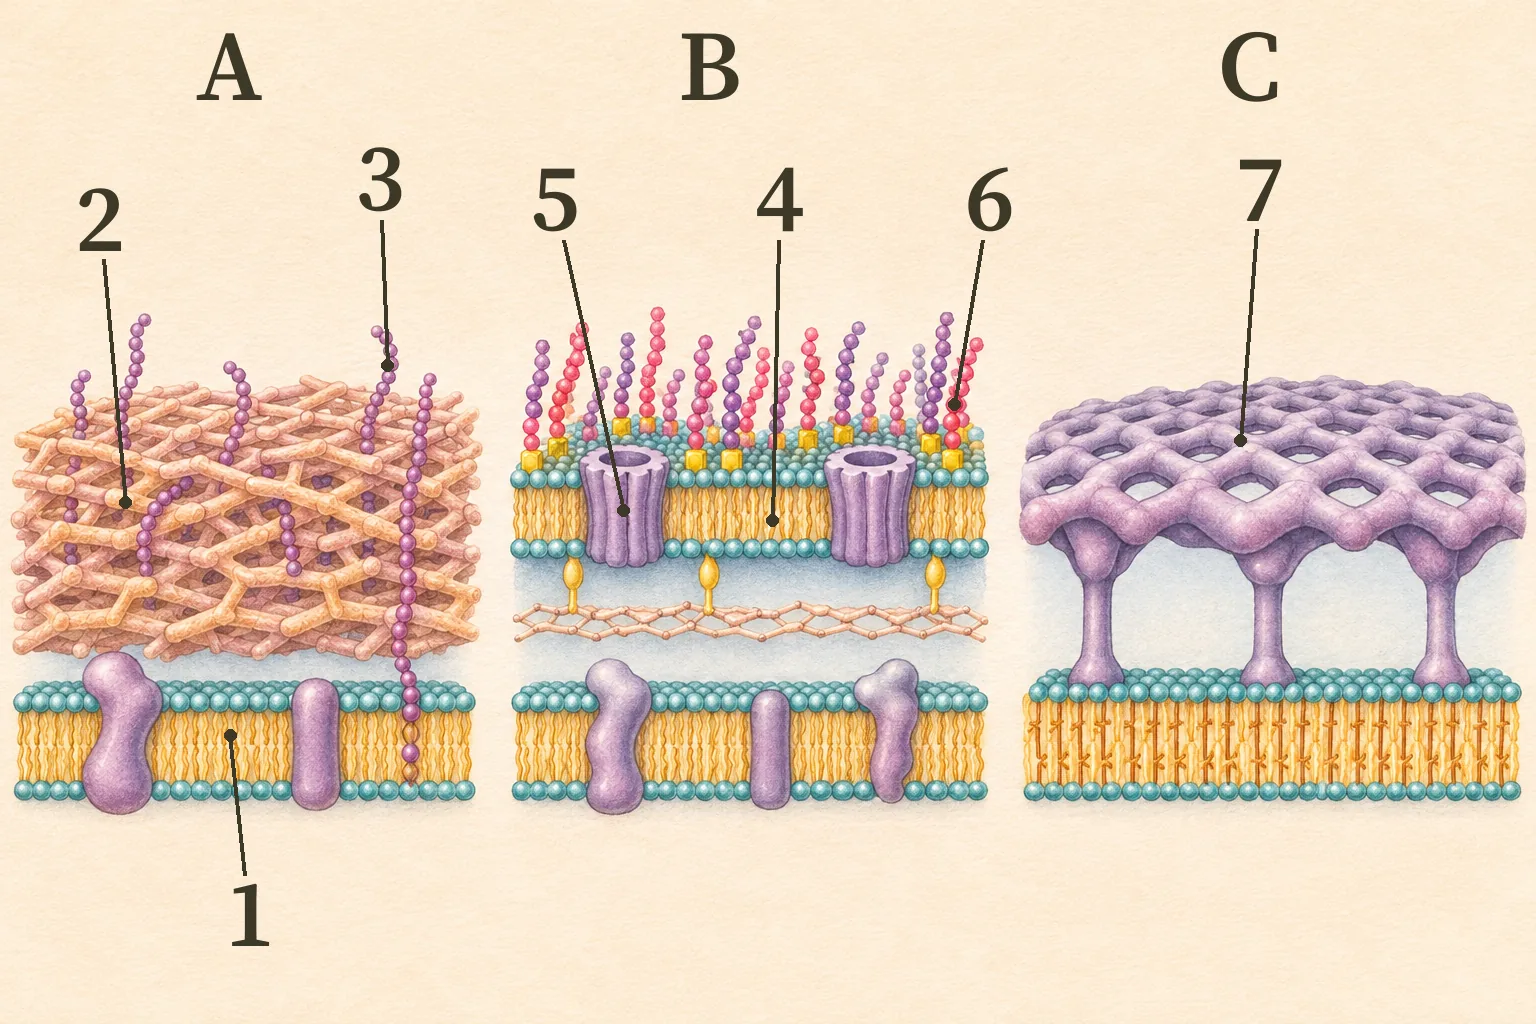
Растения содержат в мембранах фитостерины (ситостерин, стигмастерин) и особенно много ненасыщенных жирных кислот. В мембранах тилакоидов хлоропластов фосфолипидов мало (около десятой части липидов): их основу составляют галактолипиды — гликолипиды с остатками галактозы.
Грибы содержат в мембранах эргостерин. Это различие используется в медицине: противогрибковые лекарства действуют на эргостерин, почти не затрагивая холестерин клеток человека. Амфотерицин B связывает эргостерин и вытягивает его из мембраны гриба [30], а противогрибковые препараты группы азолов подавляют фермент, нужный для синтеза эргостерина.
13. Как мембрана растёт и обновляется
Плазмалемма не возникает заново: она растёт, получая готовые участки мембраны. Липиды синтезируются ферментами мембраны эндоплазматической сети, белки — на рибосомах шероховатой ЭПС. Затем в составе пузырьков они проходят через аппарат Гольджи и при экзоцитозе встраиваются в плазмалемму. Обратный процесс — эндоцитоз — непрерывно забирает участки плазмалеммы внутрь клетки. Большая их часть возвращается к поверхности, меньшая направляется в лизосомы и разрушается.
Масштабы этого обмена удивительны. В 1976 году исследователи Рокфеллеровского университета Р. Стайнман, С. Броуди и З. Кон подсчитали на электронных фотографиях, сколько мембраны уходит внутрь клетки с пиноцитозными пузырьками. Оказалось, что фибробласт за час поглощает участки мембраны, по площади равные примерно половине своей поверхности, а макрофаг — почти вдвое больше всей своей поверхности [31]. Поскольку размер клеток при этом не меняется, ровно столько же мембраны должно возвращаться к поверхности. Плазмалемма — не неподвижная оболочка, а поток.
Мембрана умеет и чиниться. Небольшие разрывы бислой затягивает сам. Крупные повреждения — например, при сокращении мышц или прохождении клеток через узкие места — опасны: в клетку врываются ионы кальция, концентрация которых снаружи в десять тысяч раз выше, чем в цитозоле. Но именно этот кальций запускает ремонт: к месту разрыва устремляются пузырьки и лизосомы, сливаются друг с другом и с краями разрыва и закрывают его, как заплаткой; повреждённый участок затем удаляется эндоцитозом. Ремонт занимает секунды [32].
14. Мембрана без воды
Двойной слой липидов существует только в воде: именно вода заставляет хвосты прятаться внутрь. Что же происходит с мембраной, если клетка высыхает? При удалении воды головки фосфолипидов сближаются, мембрана переходит в гелеобразное состояние, а при повторном увлажнении слои на короткое время перестраиваются и становятся проницаемыми. Содержимое клетки вытекает, и клетка гибнет. Поэтому большинство организмов полного высыхания не переносит.
Но есть исключения — организмы, способные к ангидробиозу, то есть к жизни без воды. Тихоходки, коловратки, личинки африканского комара-звонца, некоторые нематоды, семена растений, пекарские дрожжи, а также «растения воскресения» — папоротники и цветковые, листья которых высыхают до хрупкости и оживают после дождя. Многие из них накапливают перед высыханием дисахарид трегалозу. В 1984 году американские биологи Дж. и Л. Кроу и английский биофизик Д. Чепмен показали, что трегалоза защищает мембраны: её молекулы встают между головками фосфолипидов на место ушедшей воды и удерживают их на прежнем расстоянии [33]. Мембрана, высушенная с трегалозой, после увлажнения сохраняет целостность и не теряет содержимое пузырьков.
Трегалоза — не единственный способ: тихоходки, например, обходятся небольшим количеством трегалозы, зато вырабатывают особые белки, которые при высыхании образуют стекловидную массу и защищают клеточные структуры. Но сама задача у всех одна — сохранить мембраны, пока нет воды. Похожие проблемы возникают при замерзании: лёд оттягивает воду из клеток и повреждает мембраны. Морозостойкие растения перед зимой накапливают в клетках сахара и меняют состав липидов мембран — снова гомеовязкостная адаптация в действии.
15. Откуда взялись первые мембраны
Если все клетки окружены мембраной, то когда-то должна была появиться первая мембрана. Её «изобретение» — одна из загадок происхождения жизни. Современные фосфолипиды синтезируются сложной цепочкой ферментов, которых на древней Земле быть не могло. Значит, первые мембраны были проще.
Подсказку дали метеориты. В 1985 году американский биофизик Д. Димер извлёк органические вещества из Мурчисонского метеорита — углистого хондрита, упавшего в Австралии в 1969 году, — и обнаружил, что некоторые из них в воде самопроизвольно образуют замкнутые мембранные пузырьки [34]. Это были амфифильные молекулы, в том числе простые жирные кислоты, образовавшиеся без всякой жизни. Значит, материал для мембран мог быть на ранней Земле в готовом виде.
Пузырьки из жирных кислот устроены так же, как фосфолипидные, но гораздо менее устойчивы и более проницаемы. Оказалось, что для первых клеток это скорее достоинство. В 2003 году группа американского биохимика Дж. Шостака показала, что пузырьки из жирных кислот растут, встраивая в себя новые молекулы из раствора, а при продавливании через узкие поры делятся на дочерние пузырьки, не теряя содержимого. Глина монтмориллонит ускоряет образование таких пузырьков и одновременно помогает соединяться нуклеотидам РНК, так что пузырёк может «захватить» вместе с частицей глины и молекулы РНК [35]. Через такую мембрану могли проходить нуклеотиды и другие мелкие молекулы, нужные для копирования РНК внутри, — без всяких белков-переносчиков. Шостак получил за исследования теломер Нобелевскую премию 2009 года, а затем посвятил себя моделированию первых клеток.
Когда в клетках появились ферменты, синтезирующие фосфолипиды, мембрана стала прочнее и менее проницаемой, и клетке пришлось обзавестись белками-переносчиками. Почему бактерии и археи выбрали разные липиды (раздел 12), остаётся загадкой. Одна из гипотез предполагает, что последний общий предок всех живых организмов ещё не имел окончательно сложившейся мембраны современного типа, и бактерии и археи «достроили» её независимо.
16. Мембрана как мишень
Раз мембрана так важна для жизни клетки, её разрушение — универсальный способ убить клетку. Этим пользуются организмы, создающие яды, иммунная система и медицина.
- Детергенты и спирт. Мыло и другие детергенты встраиваются в бислой и растворяют его, превращая в мицеллы. Так мыло разрушает оболочки вирусов, окружённых мембраной (гриппа, коронавирусов), и мембраны части бактерий. Спирт в концентрации около 70 % нарушает упаковку липидов и сворачивает белки.
- Сапонины — вещества многих растений (мыльнянки, конского каштана, женьшеня) — связываются с холестерином и образуют в мембранах поры. При попадании в кровь они разрушают эритроциты, поэтому для животных ядовиты; растения защищаются ими от грибов и насекомых.
- Яды змей и пчёл. Ферменты фосфолипазы в яде многих змей отщепляют от фосфолипидов жирнокислотные хвосты, и мембраны разрушаются. Главный компонент яда пчелы — пептид мелиттин — встраивается в мембрану и образует в ней поры.
- Иммунная защита. Белки системы комплемента собираются на мембране бактерии в кольцевую пору, через которую клетку покидают ионы и вода. T-киллеры выделяют белок перфорин, пробивающий поры в мембране заражённых и опухолевых клеток.
- Лекарства. Амфотерицин B действует на эргостерин мембран грибов, полимиксины — на наружную мембрану грамотрицательных бактерий. Многие антимикробные пептиды, которые вырабатывают кожа лягушек и клетки человека, разрушают мембраны бактерий: эти мембраны несут больше отрицательно заряженных липидов на наружной стороне, чем мембраны наших клеток.
- Доставка лекарств. Липосомы и липидные наночастицы, напротив, используют способность мембран сливаться. Лекарство заключают внутрь пузырька из липидов, и он доставляет его в клетку. Так устроены некоторые противоопухолевые препараты и вакцины на основе мРНК [12].
17. Частые ошибки
- «Мембрана состоит из двух слоёв белков» или «из белков и одного слоя липидов». Основа — двойной слой липидов, белки встроены в него.
- «Гликокаликс есть у всех клеток». Гликокаликс характерен для животных клеток. У растений и грибов поверх мембраны находится клеточная стенка; углеводы на поверхности их мембран есть, но гликокаликсом их обычно не называют.
- «Гидрофобные хвосты обращены наружу». Наружу, к воде, обращены гидрофильные головки; гидрофобные хвосты обращены внутрь мембраны, друг к другу.
- «Мембрана твёрдая». Мембрана жидкая: липиды и многие белки перемещаются в её плоскости.
- «Белки только лежат на поверхности мембраны». Есть периферические белки на поверхности и интегральные, пронизывающие мембрану насквозь.
- «Холестерин есть во всех мембранах». Холестерин характерен для мембран животных; у растений — фитостерины, у грибов — эргостерин, у большинства бактерий стеринов нет.
- «Полупроницаемость — способность пропускать вещества наполовину». Полупроницаемость (избирательная проницаемость) — способность пропускать одни вещества и задерживать другие.
18. Интересные факты
- На один квадратный микрометр бислоя приходится около пяти миллионов молекул липидов, а плазмалемма небольшой животной клетки содержит порядка миллиарда молекул липидов [2].
- В клетках человека сотни разных видов липидов, а с учётом всех вариантов жирнокислотных хвостов — тысячи. Зачем клетке такое разнообразие, до конца не понятно [17].
- Если растянуть все мембраны одной клетки печени в одну плоскость, получится площадь, примерно в 50 раз превышающая площадь самой плазмалеммы.
- Миелиновая оболочка аксона — это плазмалемма шванновской клетки или олигодендроцита, намотанная вокруг аксона десятками слоёв. В ней мало белков и много холестерина и сфингомиелина, и она хорошо изолирует аксон электрически.
- Мембраны клеток мозга очень богаты ненасыщенной докозагексаеновой кислотой (омега-3), которой особенно много в мембранах палочек и колбочек сетчатки.
- Знаменитый опыт Фрая и Эдидина, доказавший текучесть мембраны, длился 40 минут, а клетки для него сливали с помощью вируса Сендай, который в природе вызывает болезнь у мышей. Сегодня такие гибриды получают с помощью электрических импульсов или полиэтиленгликоля [8].
- Эритроцит за 120 дней жизни проходит по сосудам несколько сотен километров и сотни тысяч раз протискивается через капилляры, но его мембрана выдерживает это благодаря сети спектрина.
- Липидный бислой проницаем для воды гораздо больше, чем для ионов, но у многих клеток воды через него проходит недостаточно, и вода идёт через белковые каналы — аквапорины. О них — в следующей статье серии.
19. Частые вопросы
Почему мембрана не растворяется в воде?
Потому что её основа — липиды, которые в воде не растворяются. Гидрофобный эффект заставляет их хвосты собираться вместе, а головки — обращаться к воде; двойной слой — самая выгодная для фосфолипидов форма в водной среде.
Чем мембрана отличается от клеточной стенки?
Мембрана — тонкий (около 5–10 нм) жидкий двойной слой липидов с белками, живая часть клетки, которая регулирует обмен веществ. Клеточная стенка — гораздо более толстый и прочный слой полисахаридов (целлюлоза у растений, хитин у грибов, муреин у бактерий) снаружи от мембраны. Она защищает клетку и придаёт ей форму, но почти не участвует в избирательном транспорте.
Одинаковы ли плазмалемма и мембраны органоидов?
Принцип строения одинаков, но состав различается. В мембранах ЭПС мало холестерина, в плазмалемме его много. Во внутренней мембране митохондрий нет холестерина, зато много особого фосфолипида кардиолипина, который в других мембранах клетки почти не встречается, — ещё одно наследство бактериальных предков митохондрий.
Почему углеводы гликокаликса находятся только снаружи?
Сахара присоединяются к белкам и липидам в полости ЭПС и аппарата Гольджи. Эта сторона мембраны при экзоцитозе становится наружной стороной плазмалеммы. Перевернуться белок или липид с крупной углеводной цепочкой не может.
Можно ли увидеть мембрану в микроскоп?
В световой — нет: её толщина в десятки раз меньше предела разрешения, видна только граница клетки. В электронный микроскоп на срезах мембрана видна как трёхслойная структура: две тёмные линии и светлая между ними.
Зачем мембране белки, если липиды и так создают барьер?
Липидный барьер слишком «хорош»: он не пропускает ионы, сахара, аминокислоты, которые клетке нужны. Белки делают барьер избирательным — пропускают нужные вещества в нужном направлении, принимают сигналы, соединяют клетки. Без белков мембрана была бы просто изолирующей плёнкой.
Почему мембраны построены из фосфолипидов, а не из обычных жиров?
Молекула обычного жира (триглицерида) содержит три жирнокислотных хвоста и не имеет полярной головки: она целиком гидрофобна и в воде собирается в каплю, а не в слой. В молекуле фосфолипида на месте одного из трёх хвостов находится заряженная фосфатная группа. Именно сочетание полярной головки и двух неполярных хвостов позволяет молекуле образовывать бислой.
Как сливаются мембраны, если бислой так устойчив?
Самопроизвольно два бислоя почти не сливаются: между ними остаётся слой воды, и их головки отталкиваются. Слияние обеспечивают особые белки. Внутри клетки это белки SNARE на пузырьке и на мембране-мишени: они скручиваются друг с другом и стягивают мембраны так близко, что вода вытесняется, и слои липидов перестраиваются в общий. Вирусы, окружённые мембраной (вирус гриппа, ВИЧ), несут собственные белки слияния, которые внедряются в мембрану клетки и подтягивают к ней мембрану вируса.
20. ЕГЭ
Что нужно уметь. Описывать строение плазматической мембраны по жидкостно-мозаичной модели: двойной слой фосфолипидов, гидрофильные головки и гидрофобные хвосты, интегральные и периферические белки, гликокаликс; называть функции мембраны (барьерная, транспортная, рецепторная, контактная) и связывать их со строением; знать, что мембрана обладает избирательной проницаемостью (полупроницаемостью); отличать мембрану от клеточной стенки [36].
Мембрана встречается в заданиях на соответствие («структура — функция», «компонент мембраны — признак»), в заданиях на выбор трёх верных утверждений и в заданиях второй части. Часто дают рисунок участка мембраны с цифрами и просят назвать обозначенные компоненты: липидный бислой, интегральный белок, периферический белок, гликокаликс (гликопротеин, гликолипид). Ориентиры: углеводные цепочки на рисунке всегда сверху — это наружная сторона; белок, проходящий насквозь, — интегральный; белок на поверхности — периферический.
Как потерять балл. Перепутать гидрофильные и гидрофобные части фосфолипида. Написать, что гликокаликс образован липидами (он образован углеводами, связанными с белками и липидами). Сказать, что рецепторы пропускают гормоны в клетку: рецептор связывает сигнальную молекулу и передаёт сигнал, а сама молекула (если она не стероидная) обычно в клетку не проходит.
21. Для олимпиад
Опыт Гортера и Гренделя в числах. Площадь поверхности эритроцита человека около 140 мкм². Если в 1 мкл крови 5 млн эритроцитов, их суммарная поверхность равна 5 · 10⁶ · 140 мкм² = 7 · 10⁸ мкм² = 7 · 10⁻⁴ м² = 7 см². Площадь монослоя липидов, извлечённых из этих клеток, оказалась бы около 14 см². Гортер и Грендель, вычисляя площадь эритроцитов по высушенным мазкам, получили заметно заниженную величину; но и ацетон извлёк не все липиды, и ошибки компенсировали друг друга [1].
Ёмкость и заряд. Удельная ёмкость мембраны C ≈ 1 мкФ/см² = 10⁻² Ф/м². Заряд на единице площади при потенциале 70 мВ: q = CU = 10⁻² · 0,07 = 7 · 10⁻⁴ Кл/м². Разделив на заряд электрона (1,6 · 10⁻¹⁹ Кл), получим около 4,4 · 10¹⁵ ионов на квадратный метр, или около 4400 ионов на квадратный микрометр. Это ничтожная доля ионов цитоплазмы: в 1 мкм³ цитоплазмы при концентрации калия 140 ммоль/л около 8 · 10⁷ ионов калия. Значит, потенциал на мембране создаётся крайне малым избытком зарядов у её поверхностей, а основные объёмы растворов остаются электрически нейтральными.
Диффузия в плоскости мембраны. Коэффициент латеральной диффузии липида D ≈ 1 мкм²/с. В двумерном случае среднее время смещения на расстояние r оценивают как t ≈ r² / (4D). На 2 мкм (длина бактерии): t ≈ 4 / 4 = 1 с. На 20 мкм (поперечник животной клетки): t ≈ 400 / 4 = 100 с. Белки диффундируют в мембране в десятки и сотни раз медленнее, а многие вообще удерживаются цитоскелетом.
Состав и температура. Если бактерию перенести в холод, то в её мембранах увеличится доля ненасыщенных и коротких жирных кислот. У архей жирных кислот нет, и они действуют иначе: с ростом температуры в их изопреноидных цепях становится больше пятичленных колец, уплотняющих мембрану. Задачи олимпиад часто предлагают предсказать, как изменится текучесть мембраны при замене насыщенной кислоты на ненасыщенную, при добавлении холестерина при разных температурах, или объяснить, почему мембраны архей из горячих источников образованы монослоем.
Топология белков. Трансмембранный белок с одной α-спиралью имеет один участок по одну сторону мембраны и другой — по другую. Белок с семью спиралями (как бактериородопсин и рецепторы, связанные с G-белками) имеет начало цепи снаружи и конец — внутри клетки: нечётное число пересечений меняет сторону. При чётном числе пересечений оба конца находятся по одну сторону мембраны. Это простое правило помогает в задачах о строении рецепторов и переносчиков.
22. Задания с разбором
Задание 1
Выберите три верных ответа. В состав плазматической мембраны животной клетки входят: 1) фосфолипиды; 2) целлюлоза; 3) белки; 4) хитин; 5) холестерин; 6) муреин.
Ответ
1, 3, 5. Целлюлоза, хитин и муреин — вещества клеточных стенок растений, грибов и бактерий.
Задание 2
Установите соответствие между характеристиками и компонентами мембраны. Характеристики: А) образуют двойной слой; Б) пронизывают мембрану насквозь или прикреплены к её поверхности; В) имеют гидрофильную головку и гидрофобные хвосты; Г) выполняют функции переносчиков и рецепторов; Д) обеспечивают барьер для ионов. Компоненты: 1) фосфолипиды; 2) белки.
Ответ
А1, Б2, В1, Г2, Д1.
Задание 3
Выберите три верных ответа. Гликокаликс: 1) образован углеводами, связанными с белками и липидами; 2) находится на внутренней стороне мембраны; 3) участвует в узнавании клеток; 4) характерен для животных клеток; 5) состоит из целлюлозы; 6) есть только у бактерий.
Ответ
1, 3, 4.
Задание 4
Найдите ошибки в тексте. (1) Основу плазматической мембраны составляет двойной слой белков. (2) Гидрофобные хвосты фосфолипидов обращены к воде. (3) Белки мембраны могут пронизывать её насквозь. (4) Мембрана обладает избирательной проницаемостью. (5) Углеводы гликокаликса находятся на внутренней стороне мембраны.
Ответ
(1) Основа мембраны — двойной слой липидов (фосфолипидов). (2) К воде обращены гидрофильные головки, хвосты — внутрь мембраны. (5) Углеводы гликокаликса находятся на наружной стороне мембраны.
Задание 5
Почему фосфолипиды в воде самопроизвольно образуют двойной слой? Ответ поясните.
Ответ
1) Молекула фосфолипида амфифильна: у неё гидрофильная головка и два гидрофобных хвоста. 2) Гидрофобные хвосты не взаимодействуют с водой, и их контакт с водой энергетически невыгоден (гидрофобный эффект). 3) В двойном слое хвосты обращены друг к другу и спрятаны от воды, а головки обращены к воде с обеих сторон; бислой замыкается в пузырёк, чтобы не было открытых краёв.
Задание 6
Установите соответствие между функциями мембраны и примерами. Функции: 1) рецепторная; 2) транспортная; 3) контактная. Примеры: А) связывание инсулина белком на поверхности клетки; Б) прохождение ионов калия через канал; В) соединение клеток эпителия десмосомами; Г) перенос глюкозы белком-переносчиком; Д) связывание медиатора на постсинаптической мембране; Е) щелевые контакты клеток сердечной мышцы.
Ответ
А1, Б2, В3, Г2, Д1, Е3.
Задание 7
Как изменится текучесть мембраны, если в её фосфолипидах насыщенные жирные кислоты заменятся ненасыщенными? Как используют это свойство бактерии при понижении температуры?
Ответ
1) Двойные связи в цис-форме создают изломы в углеводородных цепях, хвосты укладываются менее плотно, и текучесть мембраны увеличивается. 2) При понижении температуры мембрана становится более вязкой; бактерии синтезируют больше ненасыщенных (и более коротких) жирных кислот и сохраняют текучесть мембраны почти постоянной (гомеовязкостная адаптация).
Задание 8
В опыте Фрая и Эдидина слили клетку мыши и клетку человека, предварительно пометив белки их поверхности разными светящимися метками. Через 40 минут метки перемешались по всей поверхности гибридной клетки. Какой вывод сделали исследователи? Что произойдёт, если провести опыт при низкой температуре?
Ответ
1) Белки свободно перемещаются (диффундируют) в плоскости мембраны, значит, мембрана имеет жидкую природу. 2) При низкой температуре мембрана становится более вязкой, и перемешивание меток замедляется или почти прекращается. 3) Этот опыт стал одним из главных доводов в пользу жидкостно-мозаичной модели.
Задание 9
Выберите три верных ответа. Интегральные белки мембраны: 1) пронизывают бислой полностью или частично; 2) легко отделяются от мембраны при изменении концентрации солей; 3) содержат участки с неполярными аминокислотами; 4) могут служить каналами для ионов; 5) располагаются только на внутренней поверхности мембраны; 6) являются углеводами.
Ответ
1, 3, 4. Пункт 2 относится к периферическим белкам.
Задание 10
Чем различаются мембраны архей и бактерий? Назовите три признака.
Ответ
1) У архей углеводородные цепи присоединены к глицерину простой эфирной связью, у бактерий — сложноэфирной. 2) У архей цепи разветвлённые, построены из изопреновых звеньев, у бактерий — неразветвлённые цепи жирных кислот. 3) У архей используется другой оптический изомер глицерофосфата; у многих архей из горячих источников мембрана образована монослоем молекул, проходящих через всю её толщину.
Задание 11
Почему противогрибковое лекарство амфотерицин B действует на клетки грибов сильнее, чем на клетки человека?
Ответ
1) Амфотерицин B связывается со стерином мембраны. 2) В мембранах грибов основной стерин — эргостерин, с которым лекарство связывается прочнее, а в мембранах человека — холестерин. 3) Нарушение мембраны гриба приводит к гибели клетки, клетки человека повреждаются меньше (хотя побочные действия у препарата есть).
Задание 12
Объясните, почему при апоптозе фосфатидилсерин оказывается на наружной стороне мембраны и к чему это приводит.
Ответ
1) В живой клетке флиппазы с затратой АТФ удерживают фосфатидилсерин во внутреннем слое мембраны. 2) При апоптозе флиппазы отключаются, а скрамблазы перемешивают слои, и фосфатидилсерин выходит на наружную поверхность. 3) Макрофаги узнают фосфатидилсерин как сигнал «съешь меня» и поглощают гибнущую клетку без воспаления.
Задание 13
Выберите три верных ответа. Холестерин в мембране животной клетки: 1) встраивается между фосфолипидами; 2) делает мембрану более проницаемой для ионов; 3) сглаживает зависимость текучести мембраны от температуры; 4) является белком; 5) служит предшественником стероидных гормонов; 6) характерен для клеточной стенки растений.
Ответ
1, 3, 5.
Задание 14
Чем объясняется, что между клетками эпителия кишечника не просачивается содержимое кишки? Какую роль это играет?
Ответ
1) Клетки эпителия у верхушки соединены плотными контактами: белки соседних мембран сшиты так плотно, что между клетками не проходят даже ионы. 2) Поэтому всасывание идёт только через сами клетки, с помощью транспортных белков их мембран. 3) Организм контролирует, какие вещества поступают из кишечника во внутреннюю среду, и защищён от проникновения бактерий и токсинов.
Задание 15
Установите соответствие между организмами и стеринами (или их аналогами) их мембран. Организмы: А) человек; Б) дрожжи; В) пшеница; Г) цианобактерия; Д) мукор. Вещества: 1) холестерин; 2) эргостерин; 3) фитостерины; 4) гопаноиды.
Ответ
А1, Б2, В3, Г4, Д2. Гопаноиды есть не у всех бактерий, но у цианобактерий они широко распространены.
Задание 16
Почему эритроциты, у которых нарушен белок спектрин, быстро разрушаются в селезёнке?
Ответ
1) Сеть спектрина на внутренней стороне мембраны придаёт эритроциту форму двояковогнутого диска и эластичность. 2) Без неё эритроциты становятся шаровидными и жёсткими и не могут деформироваться. 3) Проходя через узкие щели в селезёнке, такие эритроциты задерживаются и разрушаются макрофагами — развивается анемия.
Задание 17
Выберите три верных ответа. Признаки, общие для мембран всех живых клеток: 1) основа — бислой амфифильных липидов; 2) содержат холестерин; 3) в них встроены белки; 4) обладают избирательной проницаемостью; 5) покрыты клеточной стенкой; 6) содержат эргостерин.
Ответ
1, 3, 4. (У некоторых архей основу составляет монослой, но и он образован амфифильными липидами.)
Задание 18
Как группа крови человека связана с мембраной эритроцитов? Почему люди с группой 0 не имеют антигенов A и B?
Ответ
1) Антигены групп крови — углеводные цепочки гликопротеинов и гликолипидов наружной стороны мембраны эритроцитов. 2) Ферменты, кодируемые аллелями A и B гена ABO, присоединяют к концу цепочки разные сахара (N-ацетилгалактозамин или галактозу). 3) Аллель 0 несёт мутацию (выпадение нуклеотида), из-за которой фермент неактивен, поэтому цепочка остаётся без дополнительного сахара.
Задание 19 (олимпиадное)
Удельная ёмкость мембраны — 1 мкФ/см², разность потенциалов — 70 мВ. Сколько одновалентных ионов приходится на 1 мкм² мембраны в виде избыточного заряда? Сравните с числом ионов калия в 1 мкм³ цитоплазмы при концентрации 140 ммоль/л (число Авогадро 6 · 10²³ моль⁻¹, заряд электрона 1,6 · 10⁻¹⁹ Кл).
Ответ
1) 1 мкФ/см² = 10⁻² Ф/м²; q = 10⁻² · 0,07 = 7 · 10⁻⁴ Кл/м². 2) Число ионов на 1 м²: 7 · 10⁻⁴ / 1,6 · 10⁻¹⁹ ≈ 4,4 · 10¹⁵; на 1 мкм² (10⁻¹² м²) — около 4400. 3) В 1 мкм³ = 10⁻¹⁵ л: 0,14 · 10⁻¹⁵ · 6 · 10²³ ≈ 8,4 · 10⁷ ионов калия. 4) Избыточный заряд составляет ничтожную долю ионов (около 0,005 %): потенциал создаётся очень малым смещением зарядов у мембраны.
Задание 20 (олимпиадное)
Площадь поверхности эритроцита — 140 мкм², на 1 мкм² бислоя приходится 5 · 10⁶ молекул липидов в двух слоях. Сколько молекул липидов в мембране одного эритроцита? Какую площадь займёт их монослой? Каким оказалось бы отношение площадей, если бы мембрана была однослойной?
Ответ
1) 140 · 5 · 10⁶ = 7 · 10⁸ молекул. 2) В монослое молекулы займут площадь вдвое большую, чем бислой: 280 мкм². 3) Отношение площади монослоя к поверхности клетки равно 2 : 1; при однослойной мембране оно было бы 1 : 1. Именно отношение 2 : 1 позволило Гортеру и Гренделю сделать вывод о двойном слое.
Литература
- Gorter E., Grendel F. On bimolecular layers of lipoids on the chromocytes of the blood // Journal of Experimental Medicine. 1925. Vol. 41. P. 439–443.
- Alberts B., Heald R., Johnson A. et al. Molecular Biology of the Cell. 7th ed. New York: W. W. Norton, 2022.
- Overton E. Ueber die allgemeinen osmotischen Eigenschaften der Zelle, ihre vermutlichen Ursachen und ihre Bedeutung für die Physiologie // Vierteljahrsschrift der Naturforschenden Gesellschaft in Zürich. 1899. Bd. 44. S. 88–135.
- Langmuir I. The constitution and fundamental properties of solids and liquids. II. Liquids // Journal of the American Chemical Society. 1917. Vol. 39. P. 1848–1906.
- Danielli J. F., Davson H. A contribution to the theory of permeability of thin films // Journal of Cellular and Comparative Physiology. 1935. Vol. 5. P. 495–508.
- Robertson J. D. The ultrastructure of cell membranes and their derivatives // Biochemical Society Symposium. 1959. Vol. 16. P. 3–43.
- Branton D. Fracture faces of frozen membranes // PNAS. 1966. Vol. 55. P. 1048–1056.
- Frye L. D., Edidin M. The rapid intermixing of cell surface antigens after formation of mouse-human heterokaryons // Journal of Cell Science. 1970. Vol. 7. P. 319–335.
- Singer S. J., Nicolson G. L. The fluid mosaic model of the structure of cell membranes // Science. 1972. Vol. 175. P. 720–731.
- Lodish H., Berk A., Kaiser C. A. et al. Molecular Cell Biology. 9th ed. New York: W. H. Freeman, 2021.
- Bangham A. D., Standish M. M., Watkins J. C. Diffusion of univalent ions across the lamellae of swollen phospholipids // Journal of Molecular Biology. 1965. Vol. 13. P. 238–252.
- Pardi N., Hogan M. J., Porter F. W., Weissman D. mRNA vaccines — a new era in vaccinology // Nature Reviews Drug Discovery. 2018. Vol. 17. P. 261–279.
- Sinensky M. Homeoviscous adaptation — a homeostatic process that regulates the viscosity of membrane lipids in Escherichia coli // PNAS. 1974. Vol. 71. P. 522–525.
- Hazel J. R. Thermal adaptation in biological membranes: is homeoviscous adaptation the explanation? // Annual Review of Physiology. 1995. Vol. 57. P. 19–42.
- Axelrod D., Koppel D. E., Schlessinger J., Elson E., Webb W. W. Mobility measurement by analysis of fluorescence photobleaching recovery kinetics // Biophysical Journal. 1976. Vol. 16. P. 1055–1069.
- Bretscher M. S. Asymmetrical lipid bilayer structure for biological membranes // Nature New Biology. 1972. Vol. 236. P. 11–12.
- van Meer G., Voelker D. R., Feigenson G. W. Membrane lipids: where they are and how they behave // Nature Reviews Molecular Cell Biology. 2008. Vol. 9. P. 112–124.
- Fadok V. A., Voelker D. R., Campbell P. A. et al. Exposure of phosphatidylserine on the surface of apoptotic lymphocytes triggers specific recognition and removal by macrophages // Journal of Immunology. 1992. Vol. 148. P. 2207–2216.
- Unwin P. N. T., Henderson R. Molecular structure determination by electron microscopy of unstained crystalline specimens // Journal of Molecular Biology. 1975. Vol. 94. P. 425–440.
- Dupuy A. D., Engelman D. M. Protein area occupancy at the center of the red blood cell membrane // PNAS. 2008. Vol. 105. P. 2848–2852.
- Engelman D. M. Membranes are more mosaic than fluid // Nature. 2005. Vol. 438. P. 578–580.
- Yamamoto F., Clausen H., White T., Marken J., Hakomori S. Molecular genetic basis of the histo-blood group ABO system // Nature. 1990. Vol. 345. P. 229–233.
- Wilson H. V. On some phenomena of coalescence and regeneration in sponges // Journal of Experimental Zoology. 1907. Vol. 5. P. 245–258.
- Ченцов Ю. С. Введение в клеточную биологию: учебник для вузов. 4-е изд. М.: ИКЦ «Академкнига», 2004.
- Urry L. A., Cain M. L., Wasserman S. A., Minorsky P. V., Orr R. B. Campbell Biology. 12th ed. Pearson, 2020.
- Simons K., Ikonen E. Functional rafts in cell membranes // Nature. 1997. Vol. 387. P. 569–572.
- Lingwood D., Simons K. Lipid rafts as a membrane-organizing principle // Science. 2010. Vol. 327. P. 46–50.
- Kusumi A., Nakada C., Ritchie K. et al. Paradigm shift of the plasma membrane concept from the two-dimensional continuum fluid to the partitioned fluid // Annual Review of Biophysics and Biomolecular Structure. 2005. Vol. 34. P. 351–378.
- Koga Y., Morii H. Biosynthesis of ether-type polar lipids in archaea and evolutionary considerations // Microbiology and Molecular Biology Reviews. 2007. Vol. 71. P. 97–120.
- Gray K. C., Palacios D. S., Dailey I. et al. Amphotericin primarily kills yeast by simply binding ergosterol // PNAS. 2012. Vol. 109. P. 2234–2239.
- Steinman R. M., Brodie S. E., Cohn Z. A. Membrane flow during pinocytosis. A stereologic analysis // Journal of Cell Biology. 1976. Vol. 68. P. 665–687.
- Andrews N. W., Corrotte M. Plasma membrane repair // Current Biology. 2018. Vol. 28. P. R392–R397.
- Crowe J. H., Crowe L. M., Chapman D. Preservation of membranes in anhydrobiotic organisms: the role of trehalose // Science. 1984. Vol. 223. P. 701–703.
- Deamer D. W. Boundary structures are formed by organic components of the Murchison carbonaceous chondrite // Nature. 1985. Vol. 317. P. 792–794.
- Hanczyc M. M., Fujikawa S. M., Szostak J. W. Experimental models of primitive cellular compartments: encapsulation, growth, and division // Science. 2003. Vol. 302. P. 618–622.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…