
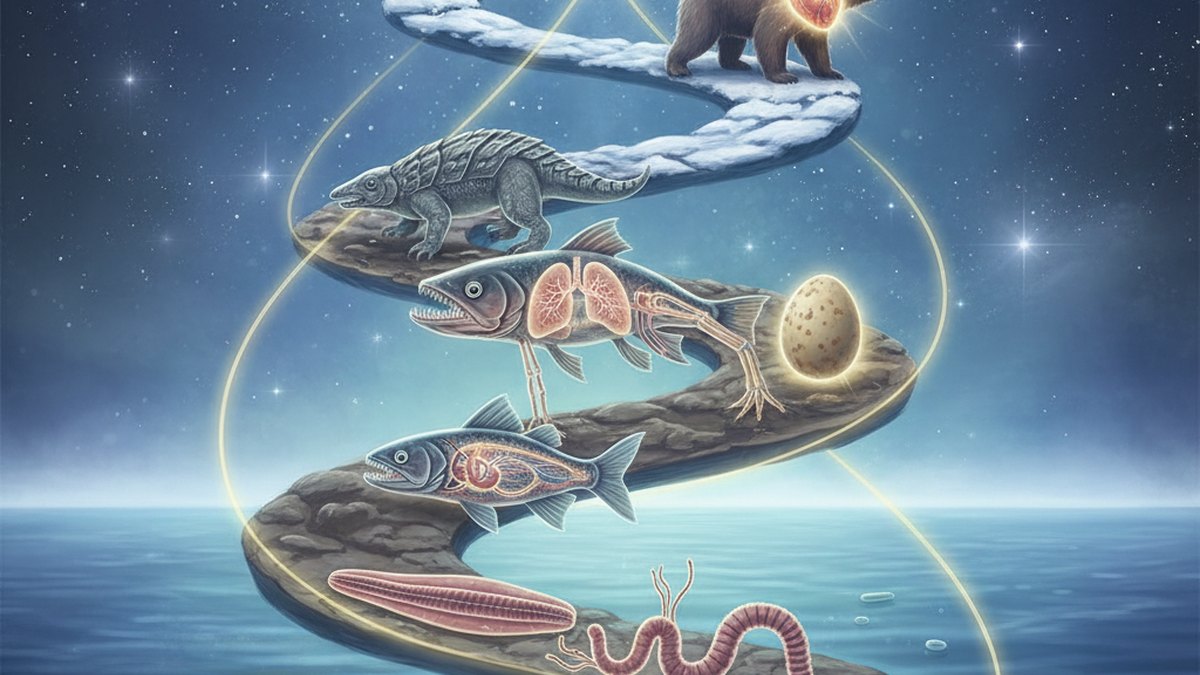
В вашем среднем ухе звук передают три крошечные косточки. Двести пятьдесят миллионов лет назад две из них были суставом нижней челюсти ваших предков-цинодонтов, а ещё раньше, у кистепёрых рыб, третья подвешивала челюсть к черепу. Череп наземных позвоночных — самая наглядная книга эволюции: в нём кости меняют работу, сливаются, исчезают, а на их месте появляются отверстия. Голова отделилась от плеч и получила шею, глаза поднялись на темя и выросли втрое, жаберная щель стала слуховым проходом, в висках открылись окна для мышц, у птиц и змей череп стал подвижным, как механизм, а у млекопитающих — прочной коробкой с одной костью в нижней челюсти.
Ниже — из каких частей состоит череп и откуда они взялись, что изменилось при выходе на сушу, как появилось наземное ухо, что такое височные окна и почему по ним классифицируют рептилий, как устроен подвижный череп ящериц, змей и птиц, как у предков млекопитающих сменился челюстной сустав и родились слуховые косточки, какие общие законы управляют преобразованиями черепа. В конце — что нужно знать к ЕГЭ, раздел для олимпиадников и 16 заданий с разбором. О том, какие кости черепа строит нервный гребень, — в статье «Из чего сделан наш скелет», о хордовых в целом — в статье «Хордовые».
- Как изучали эволюцию черепа
- Три части черепа
- Череп рыб — предков четвероногих
- Выход на сушу: шея, глаза, рыло
- Крыша черепа первых четвероногих
- Затылок и шея
- Как появилось наземное ухо
- Череп земноводных
- Височные окна
- Загадка черепахи
- Подвижный череп ящериц и змей
- Крокодилы и динозавры
- Череп птиц
- Синапсиды: путь к млекопитающим
- Новый челюстной сустав
- Рождение слуховых косточек
- Череп млекопитающих
- Нос и обоняние
- Зубы: от рыбьих к млекопитающим
- Череп человека
- Гены, которые лепят череп
- Общие закономерности
- Частые вопросы
- Что нужно знать к ЕГЭ
- Для олимпиад
- Задания с разбором
- Литература
Как изучали эволюцию черепа
В 1790 году Иоганн Вольфганг Гёте, гуляя по песчаному острову Лидо в Венеции, поднял расколотый череп барана и увидел в нём что-то вроде нескольких сросшихся позвонков. Так родилась «позвонковая теория черепа», которую развивали Лоренц Окен и Ричард Оуэн: череп считали продолжением позвоночника, видоизменёнными позвонками. В 1858 году Томас Гексли в лекции перед Королевским обществом показал, что череп развивается совсем иначе, чем позвоночник: его основа закладывается хрящевыми пластинками вокруг хорды и капсулами органов чувств, а не сегментами. Позвонковую теорию оставили, но сама идея — искать в черепе следы древних единиц и сравнивать кости разных животных — стала основой сравнительной анатомии [1].
- 1790И. В. Гёте на Лидо видит в расколотом черепе барана «позвонки» — рождается позвонковая теория черепа
- 1837К. Райхерт: молоточек и наковальня зародыша развиваются из челюстной дуги
- 1858Т. Гексли опровергает позвонковую теорию: череп развивается иначе, чем позвоночник
- 1903Г. Осборн делит рептилий по височным окнам на синапсид и диапсид
- 1913Э. Гаупп доказывает происхождение слуховых косточек из костей челюсти
- 1914С. Уиллистон: число костей черепа в эволюции уменьшается
- 1987Дж. Клак находит в Гренландии черепа акантостеги
- 2002Мышь с меткой клеток нервного гребня: какие кости черепа строит гребень
- 2006Тиктаалик: рыба с шеей и плоской головой
- 2011Ляоконодон: слуховые косточки отделились от челюсти, но держатся на хряще
- 2012Б.-А. Бхуллар: череп птиц — «детский» череп динозавра
- 2015Эвнотозавр: предки черепах были диапсидами
- сравнительная анатомия
- ископаемые
- развитие и гены
Важнейшее открытие XIX века касалось уха. В 1837 году эмбриолог Карл Райхерт заметил, что у зародыша млекопитающих молоточек и наковальня закладываются из хряща первой жаберной (челюстной) дуги — той самой, из которой у рептилий развиваются кости челюстного сустава. В 1913 году Эрнст Гаупп подробно доказал гомологию, и с тех пор её называют теорией Райхерта — Гауппа [2]. Палеонтологи подтвердили её находками. В 1903 году Генри Осборн предложил делить рептилий по числу височных окон на синапсид и диапсид, а в 1914 году Сэмюэл Уиллистон заметил, что в эволюции позвоночных число костей черепа неуклонно уменьшается, — это наблюдение называют законом Уиллистона [3].
XX и XXI века добавили ископаемые переходные формы и генетику развития. В 1987 году экспедиция Дженнифер Клак нашла в Восточной Гренландии хорошо сохранившиеся черепа акантостеги, а в 2006 году Нил Шубин, Тед Дешлер и Фэриш Дженкинс описали тиктаалика — рыбу с шеей [4]. Из Китая пришли раннемеловые млекопитающие с «переходным» ухом [5]. Генетики научились метить клетки нервного гребня и прослеживать, какие кости черепа они строят [6]. Сегодня эволюцию черепа изучают компьютерной томографией окаменелостей, моделированием нагрузок и сравнением генов, управляющих развитием лица.
Три части черепа
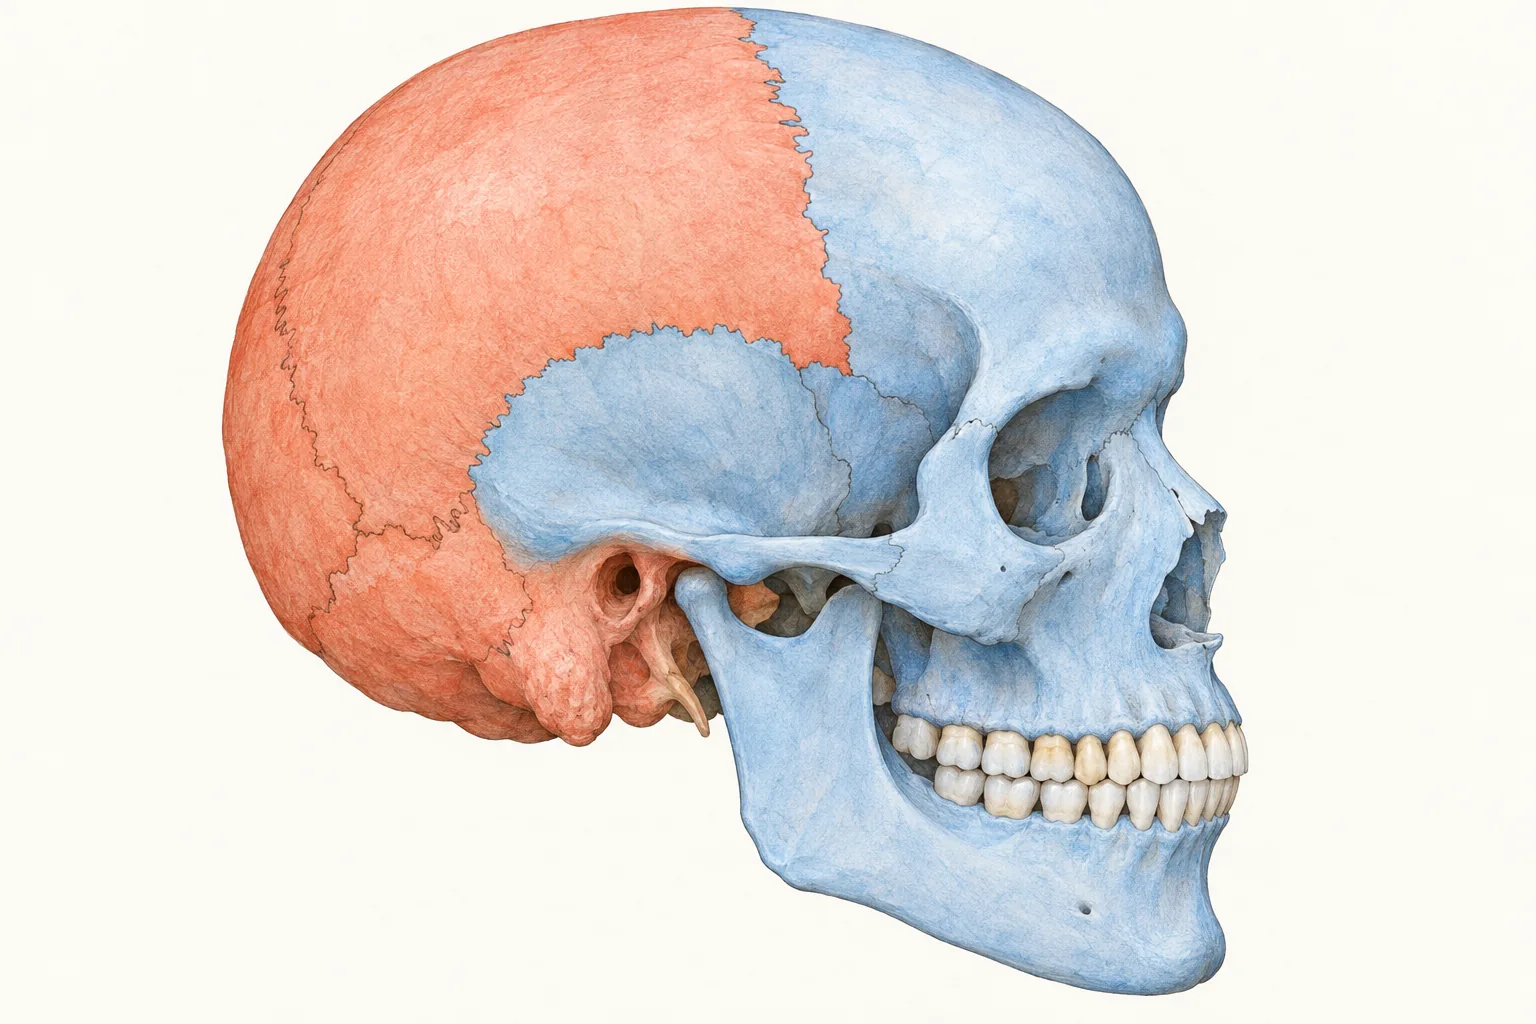
Череп позвоночного — не одна структура, а три, собранные вместе и разные по происхождению. Мозговая коробка (нейрокраниум) у зародыша закладывается как хрящевая капсула вокруг головного мозга и органов чувств — обоняния, зрения, внутреннего уха; затем хрящ замещается костью. Из неё у человека происходят затылочная, клиновидная, решётчатая кости и каменистая часть височной. Покровные кости (дерматокраниум) образуются прямо в соединительной ткани, без хрящевой модели: это крыша черепа, щёки, нёбо, наружные кости челюстей. Их далёкие предки — костные пластины панциря древних бесчелюстных и рыб. Висцеральный череп (спланхнокраниум) — скелет жаберных дуг: у рыб он поддерживает жабры, а у наземных позвоночных превратился в челюсти, подъязычную кость, хрящи гортани и слуховые косточки.
- Что этокоробка вокруг мозга и капсулы органов чувств
- Как развиваетсясначала хрящ, затем замещается костью
- Костизатылочные, клиновидная, решётчатая, ушные
- Что этокрыша черепа, щёки, нёбо, наружные кости челюстей
- Как развиваетсясразу в соединительной ткани, без хряща
- Костиносовые, лобные, теменные, чешуйчатые, скуловые, верхнечелюстные
- Что этоскелет жаберных дуг
- Как развиваетсяхрящ дуг, частью окостеневающий
- Производныечелюсти, подъязычный аппарат, слуховые косточки, хрящи гортани
Различаются части и по клеткам-строителям. Большую часть черепа лица и передней части крыши строят клетки нервного гребня — особая популяция, мигрирующая из краёв нервной пластинки зародыша. Затылок и задняя часть мозговой коробки происходят из мезодермы. В 2002 году Сяобин Цзян с соавторами генетически пометили клетки нервного гребня у мыши и обнаружили, что лобная кость построена гребнем, а теменная — мезодермой, и граница между ними проходит по венечному шву [6]. Нервный гребень — «изобретение» позвоночных; его появление сделало возможной новую голову с челюстями и крупными органами чувств [7].
Череп рыб — предков четвероногих
Наземные позвоночные произошли от лопастепёрых (саркоптеригиевых) рыб, ближайшие живые родственники которых — двоякодышащие рыбы и латимерия. Классической моделью предка долго служил девонский эвстеноптерон, которого шведский палеонтолог Эрик Ярвик изучал десятилетиями, послойно сошлифовывая и зарисовывая череп. Череп такой рыбы был покрыт мозаикой покровных костей, а по бокам головы лежала серия жаберных крышек, соединявшая череп с плечевым поясом: голова и туловище двигались как одно целое. Нижняя челюсть подвешивалась к мозговой коробке через крупную кость — подвесок (гиомандибулу), часть второй, подъязычной дуги. Между челюстной и подъязычной дугами оставалась небольшая жаберная щель — брызгальце.
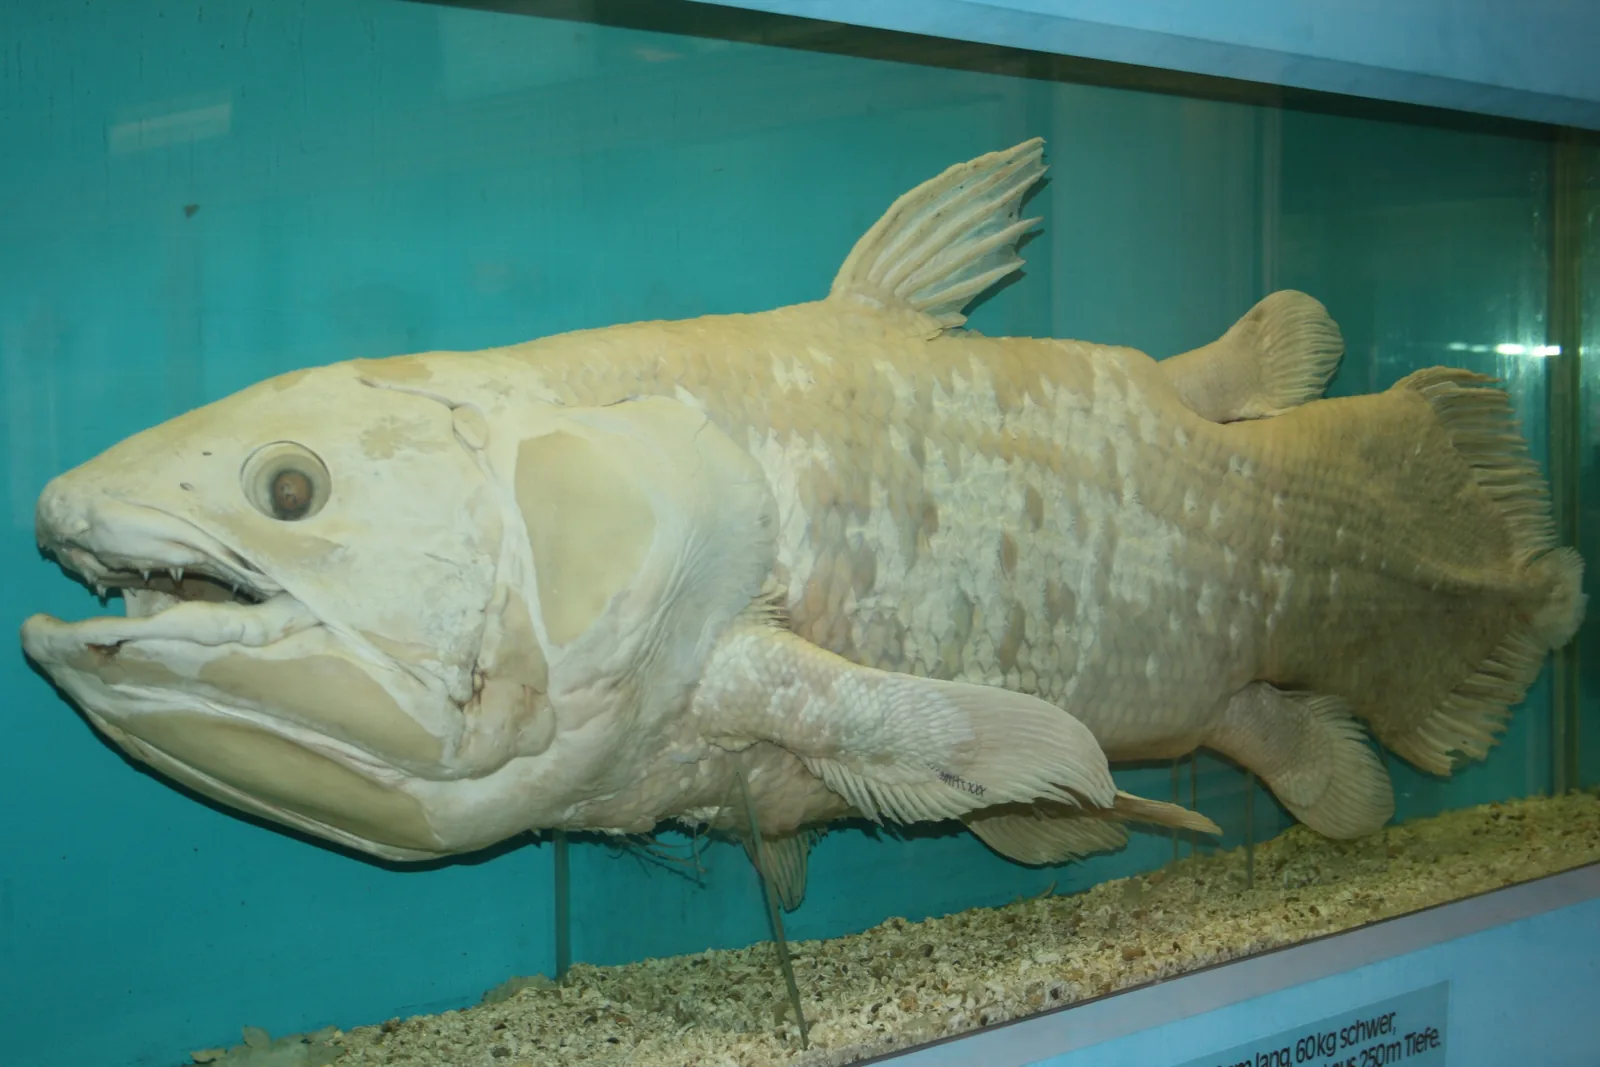
Важная особенность — внутричерепной сустав. Мозговая коробка лопастепёрых рыб состояла из двух половин, передней и задней, соединённых подвижным сочленением: при раскрывании рта передняя часть с верхней челюстью приподнималась. У латимерии этот сустав сохранился до сих пор, у наземных позвоночных он исчез, и мозговая коробка стала единой. Ещё одна важнейшая черта — хоаны, внутренние ноздри, открывающиеся в ротовую полость. В 2004 году Чжу Минь и Пер Альберг описали из Китая рыбу кеньихтис, у которой наружная ноздря как раз «переезжает» внутрь через край челюсти: хоана возникла из задней наружной ноздри [8]. Хоаны позволили дышать воздухом с закрытым ртом — задолго до выхода на сушу.
Выход на сушу: шея, глаза, рыло
Тиктаалик, живший около 375 миллионов лет назад на мелководьях тропических рек, — идеальная переходная форма. У него ещё были чешуя, жабры и плавники с лучами, но голова уже плоская, как у крокодила, глаза на темени, а жаберных крышек нет: череп отделился от плечевого пояса, и впервые появилась шея [4]. Рыба могла поворачивать голову, не разворачивая всё тело, — на мелководье и в зарослях это огромное преимущество. Позднейшие четвероногие — акантостега и ихтиостега (около 365 миллионов лет назад) — уже имели пальцы, у акантостеги ещё были внутренние жабры, а их черепа сохраняли многие рыбьи кости [9].
Одно из самых заметных изменений — глаза. В 2017 году Малкольм Макайвер и Ларс Шмитц измерили глазницы 59 ископаемых и показали, что ещё до выхода на сушу средний размер глазницы вырос с 13 до 36 миллиметров — почти втрое, а глаза сместились на верх головы. Под водой это почти не увеличивает дальность зрения: вода мутная и поглощает свет. Но если высунуть глаза из воды, дальность вырастает в разы, а объём видимого пространства — в миллионы раз. Авторы предположили, что первые четвероногие сначала научились выглядывать из воды, как крокодилы, высматривая добычу на берегу, и лишь потом выбрались на сушу [10].
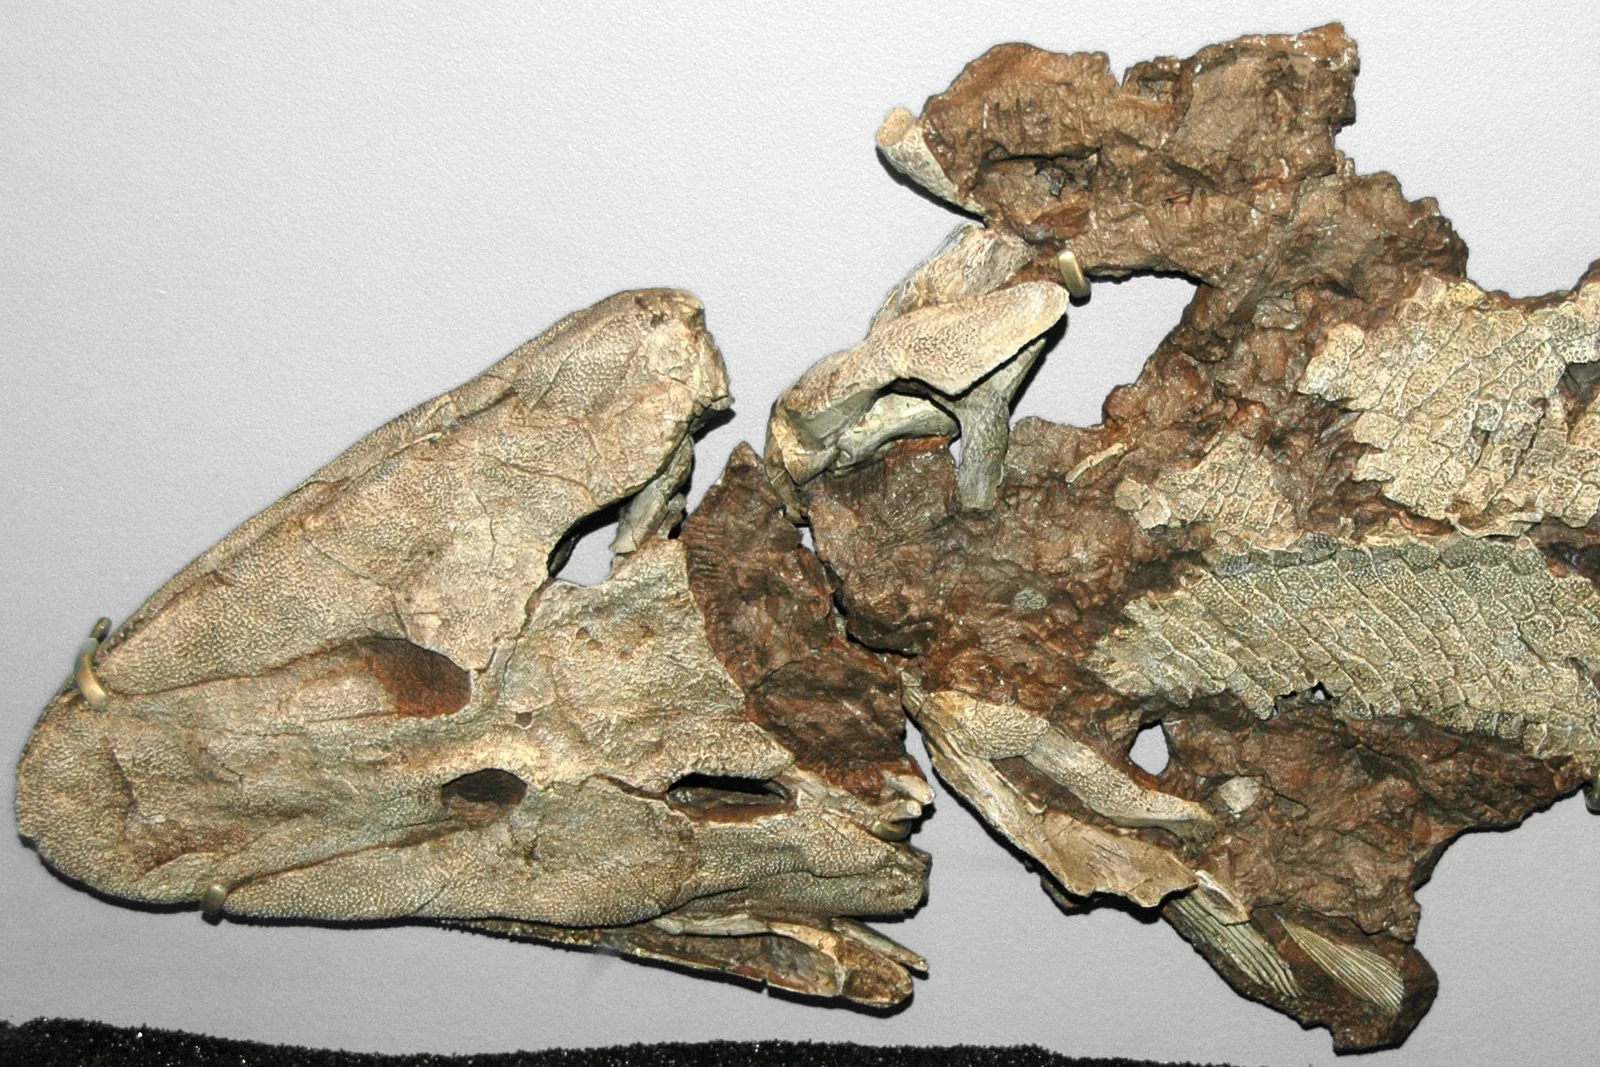
Изменились и пропорции головы. У рыб длинная заглазничная часть черепа — там лежат жаберные крышки и мощные мышцы, обслуживающие всасывание воды. У четвероногих, наоборот, удлинилось рыло, а затылок укоротился. Рыба ловит добычу, резко расширяя рот и всасывая воду; на суше всасывать нечего, и добычу нужно хватать и прижимать челюстями. Голова превратилась из «насоса» в «щипцы». Это перестроило и мышцы: на первый план вышли мышцы-закрыватели челюсти, которым позже понадобятся височные окна.
Крыша черепа первых четвероногих
Череп ранних четвероногих — стегоцефалов, «панцирноголовых», — был сплошным костяным щитом, как крыша дома. В нём различают ряды костей, которые с небольшими изменениями прослеживаются до человека: по средней линии — носовые, лобные, теменные и заднетеменные; по краю — предчелюстные и верхнечелюстные с зубами; вокруг глазницы — предлобная, слёзная, заднелобная, заглазничная и скуловая; сзади — чешуйчатая, квадратно-скуловая, надвисочная, табличная. Между теменными костями оставалось отверстие для теменного («третьего») глаза — светочувствительного органа, который у гаттерии и многих ящериц сохранился до сих пор. По поверхности костей тянулись желобки органов боковой линии — наследство водной жизни.
Многие стегоцефалы — темноспондилы — достигали размеров крокодила и жили в воде и у воды до мелового периода. Их огромные плоские головы с глазами на темени, как у тиктаалика, позволяли подстерегать добычу, лёжа на дне. На заднем крае черепа у многих из них была глубокая выемка, долгое время считавшаяся местом барабанной перепонки; сейчас многие палеонтологи думают, что в ней находилось брызгальце, через которое животное дышало, а настоящее наземное ухо появилось позже.
Затылок и шея
У рыбы голова не нуждается в особом суставе: она связана с плечевым поясом жаберными крышками и поворачивается вместе с телом. Когда у четвероногих голова отделилась от плеч, понадобилось подвижное соединение черепа с позвоночником. Его образуют затылочные мыщелки — выступы вокруг большого затылочного отверстия, которые входят в углубления первого шейного позвонка. У ранних четвероногих сустав был слабым, и шея короткой; у амниот первые два позвонка превратились в специальный механизм. Первый позвонок — атлант — несёт череп и позволяет кивать, второй — эпистрофей (осевой позвонок) — имеет зубовидный отросток, вокруг которого атлант с черепом поворачивается из стороны в сторону. Зубовидный отросток — это бывшее тело атланта, приросшее к следующему позвонку.
Длина и подвижность шеи у разных групп очень различна. У земноводных шейный позвонок обычно один, и лягушка почти не может повернуть голову. У млекопитающих шейных позвонков почти всегда семь — у жирафа, мыши и кита; исключения — ленивцы и ламантины. У птиц их от 10 до 25, и сова поворачивает голову примерно на 270 градусов, не пережимая сосуды благодаря особому устройству артерий в каналах позвонков. Длинная гибкая шея птиц компенсирует неподвижные глаза и короткие «руки»-крылья: клювом птица делает то, что млекопитающие делают лапами.
Как появилось наземное ухо
Услышать звук в воздухе гораздо труднее, чем в воде. Тело позвоночного по плотности близко к воде, и под водой звук легко проходит через ткани прямо во внутреннее ухо. Но на границе воздуха и воды акустические сопротивления (импедансы) различаются примерно в 3600 раз, и от поверхности тела отражается 99,9 % энергии звука — потеря около 30 децибел. Чтобы слышать на суше, нужен согласователь: лёгкая перепонка большой площади, улавливающая слабые колебания воздуха, и рычаг, передающий их на маленькое окно внутреннего уха с большим давлением.
- Подвесоккость второй дуги подвешивает челюсть к черепу
- Квадратная и сочленовнаяобразуют челюстной сустав
- Слухвнутреннее ухо и боковая линия; звук идёт через ткани
- Стремечко (колумелла)одна косточка от перепонки к овальному окну
- Квадратная и сочленовнаяпо-прежнему челюстной сустав
- Слуххорошо до 4–10 кГц
- Стремечкоиз подвеска
- Наковальня и молоточекиз квадратной и сочленовной костей
- Барабанное кольцоиз угловой кости челюсти; слух у некоторых до 100 кГц и выше
Материал для согласователя уже был. Подвесок, освободившийся от роли опоры челюсти, у первых четвероногих стал толстым стремечком — сначала, скорее всего, опорой мозговой коробки, а не проводником звука. У акантостеги стремечко массивное, а у ихтиостеги ухо устроено так необычно, что Дженнифер Клак предположила его приспособление к слуху под водой [11]. Ещё раньше, у панцерихтиса, брызгальце уже было широким, а подвесок — коротким, как у четвероногих: «заготовка» среднего уха появилась у рыб [12].
Самое удивительное: настоящее барабанное ухо с тонким стремечком возникло не один раз. Сравнение ископаемых и строения уха показывает, что бесхвостые амфибии, ветвь, ведущая к ящерицам и змеям, архозавры (крокодилы и птицы), черепахи и млекопитающие обзавелись барабанной перепонкой независимо — в основном в триасовом периоде, 250–200 миллионов лет назад [13]. Поэтому у лягушки, ящерицы и мыши среднее ухо работает по одному принципу, но устроено по-разному. Лучше всех согласование решили млекопитающие — цепью из трёх косточек.
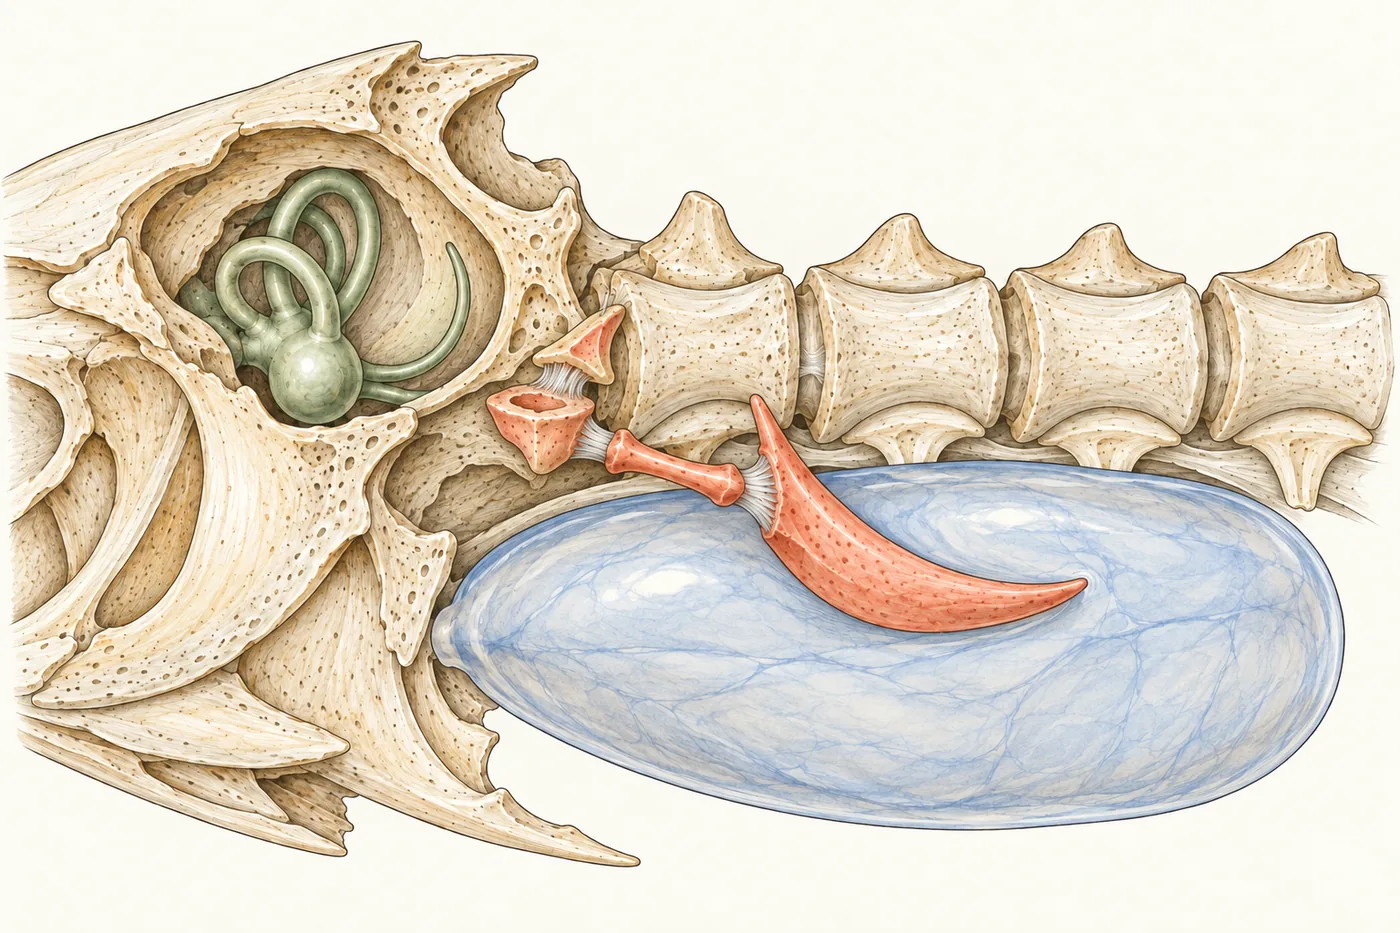
Рыбы тоже искали способ усилить слух, и карпообразные «изобрели» собственный аналог слуховых косточек — веберов аппарат, цепь косточек из отростков позвонков, связывающую плавательный пузырь с внутренним ухом. Это прекрасный пример конвергенции: разные кости, разное происхождение, одна задача. О судьбе жаберных дуг подробнее — в статье «Эволюция висцерального черепа позвоночных животных».
Череп земноводных
Современные земноводные — лягушки, хвостатые и безногие — пошли по пути облегчения черепа. Многие кости крыши, сохранившиеся у стегоцефалов, у них утрачены, а череп лягушки с огромными глазницами похож на лёгкий каркас. Лягушка в буквальном смысле глотает глазами: при глотании она втягивает глаза, и глазные яблоки через тонкое дно глазницы проталкивают пищу к пищеводу. Безногие земноводные — червяги, роющие почву головой, — наоборот, вернулись к прочному сплошному черепу, но с уменьшенными глазами.
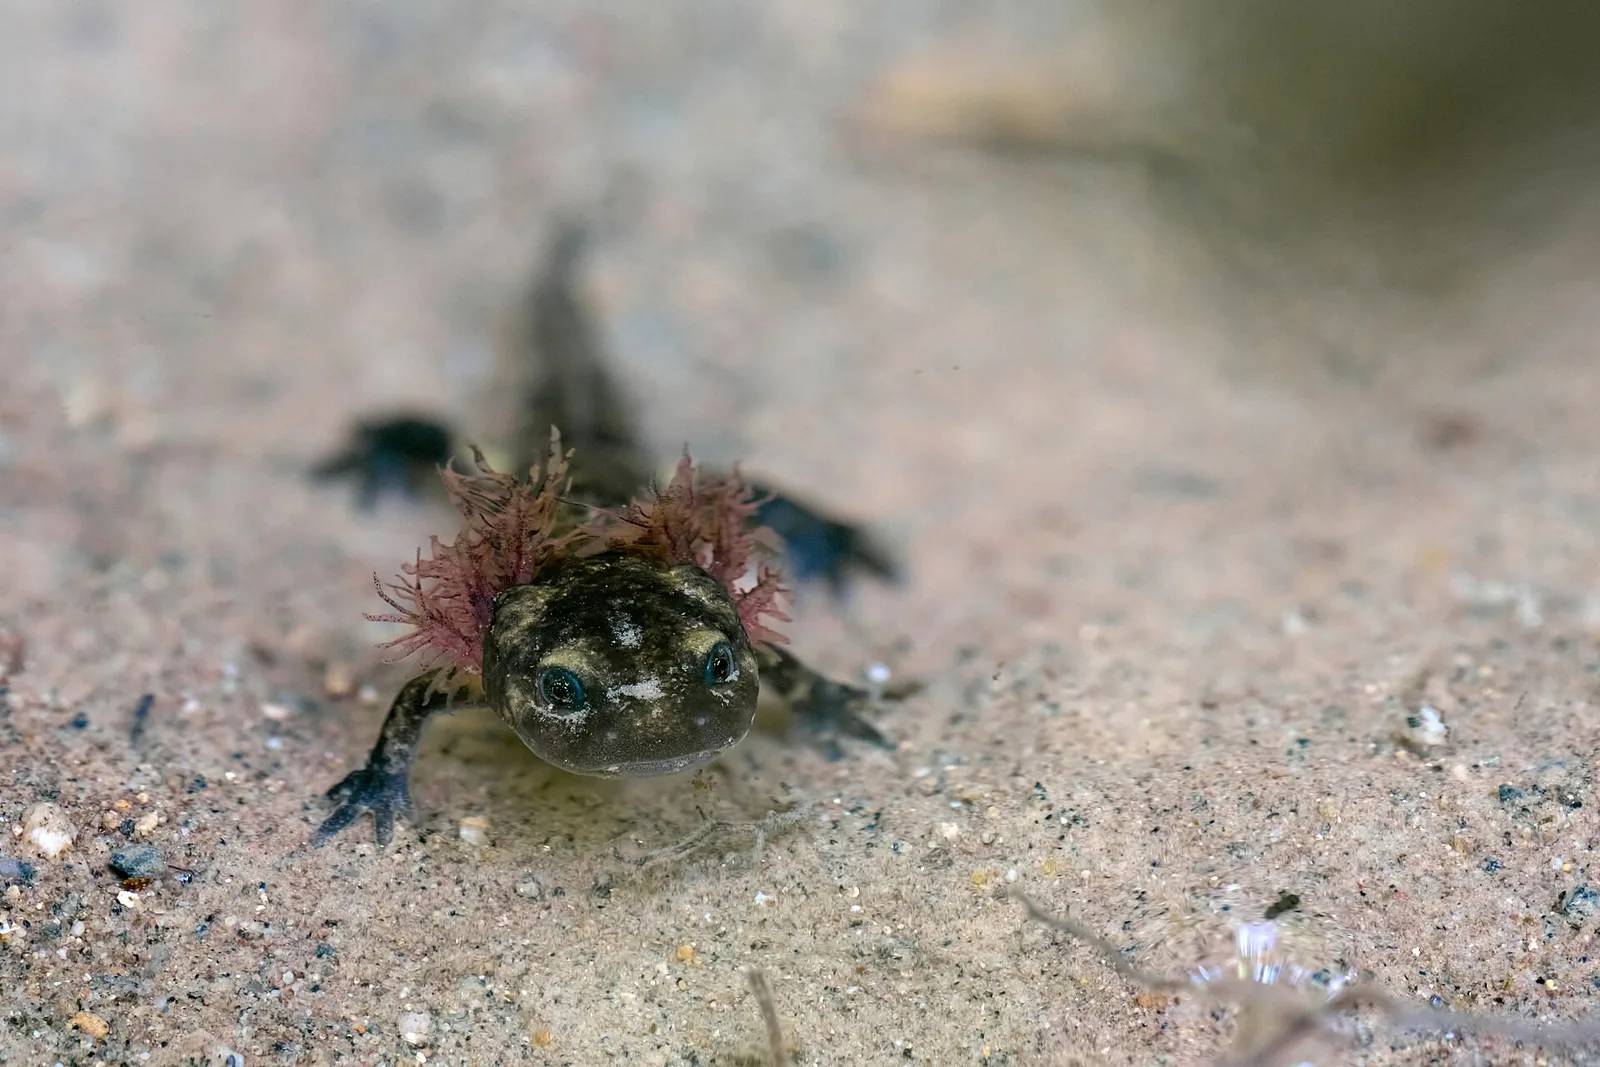
У земноводных, как и у млекопитающих, череп сочленяется с позвоночником двумя затылочными мыщелками; у рептилий и птиц мыщелок один. Это не прямое родство, а разные решения одной задачи. Зубы у земноводных обычно мелкие, одинаковые, многие сидят на нёбных костях. Среднее ухо лягушек с барабанной перепонкой, видимой позади глаза, и тонким стремечком — один из независимо возникших типов наземного уха. Хвостатые земноводные, многие из которых сохраняют личиночные черты, барабанной перепонки не имеют и воспринимают низкие звуки и вибрацию через кости и плечевой пояс.
Височные окна
У первых амниот — позвоночных, откладывающих яйца с зародышевыми оболочками на суше, — височная область черепа была сплошной. Но уже около 306 миллионов лет назад в одной из ветвей, синапсидах, позади глазницы открылось одно отверстие, а через несколько миллионов лет в ветви диапсид — два. Генри Осборн в 1903 году положил число этих височных окон в основу классификации [14]. Анапсиды — без окон; синапсиды — с одним нижним окном (к ним относятся млекопитающие и их предки); диапсиды — с двумя окнами, верхним и нижним, разделёнными костной дугой (ящерицы, змеи, гаттерия, крокодилы, динозавры и птицы).
- Окнанет: височная область сплошная
- Ктопервые амниоты, парейазавры; черепахи — вторично
- Окнаодно нижнее, под заглазничной и чешуйчатой костями
- Ктопеликозавры, терапсиды, млекопитающие
- У человекаокно стало височной ямкой, под ним — скуловая дуга
- Окнадва: верхнее и нижнее, между ними дуга
- Ктоящерицы и змеи, гаттерия, крокодилы, динозавры и птицы
- Измененияу ящериц утрачена нижняя дуга, у змей — обе, у птиц окна слились с глазницей
Зачем черепу дырки? Мышцы, закрывающие рот, у рептилий лежат в височной области под крышей черепа. Когда они сокращаются, они утолщаются, и им нужно место. Края окна дают прочную опору для прикрепления мышц, а сами мышцы при сокращении выпячиваются через отверстие наружу. Кроме того, расчёты нагрузок показывают, что в сплошной височной пластине есть участки, почти не несущие напряжения; удаление этой «лишней» кости облегчает череп без потери прочности. У синапсид окно со временем расширялось, пока у млекопитающих не слилось с глазницей: от бывшей пластины осталась лишь скуловая дуга, а височная мышца крепится прямо к стенке мозговой коробки, у хищников — к высокому сагиттальному гребню.
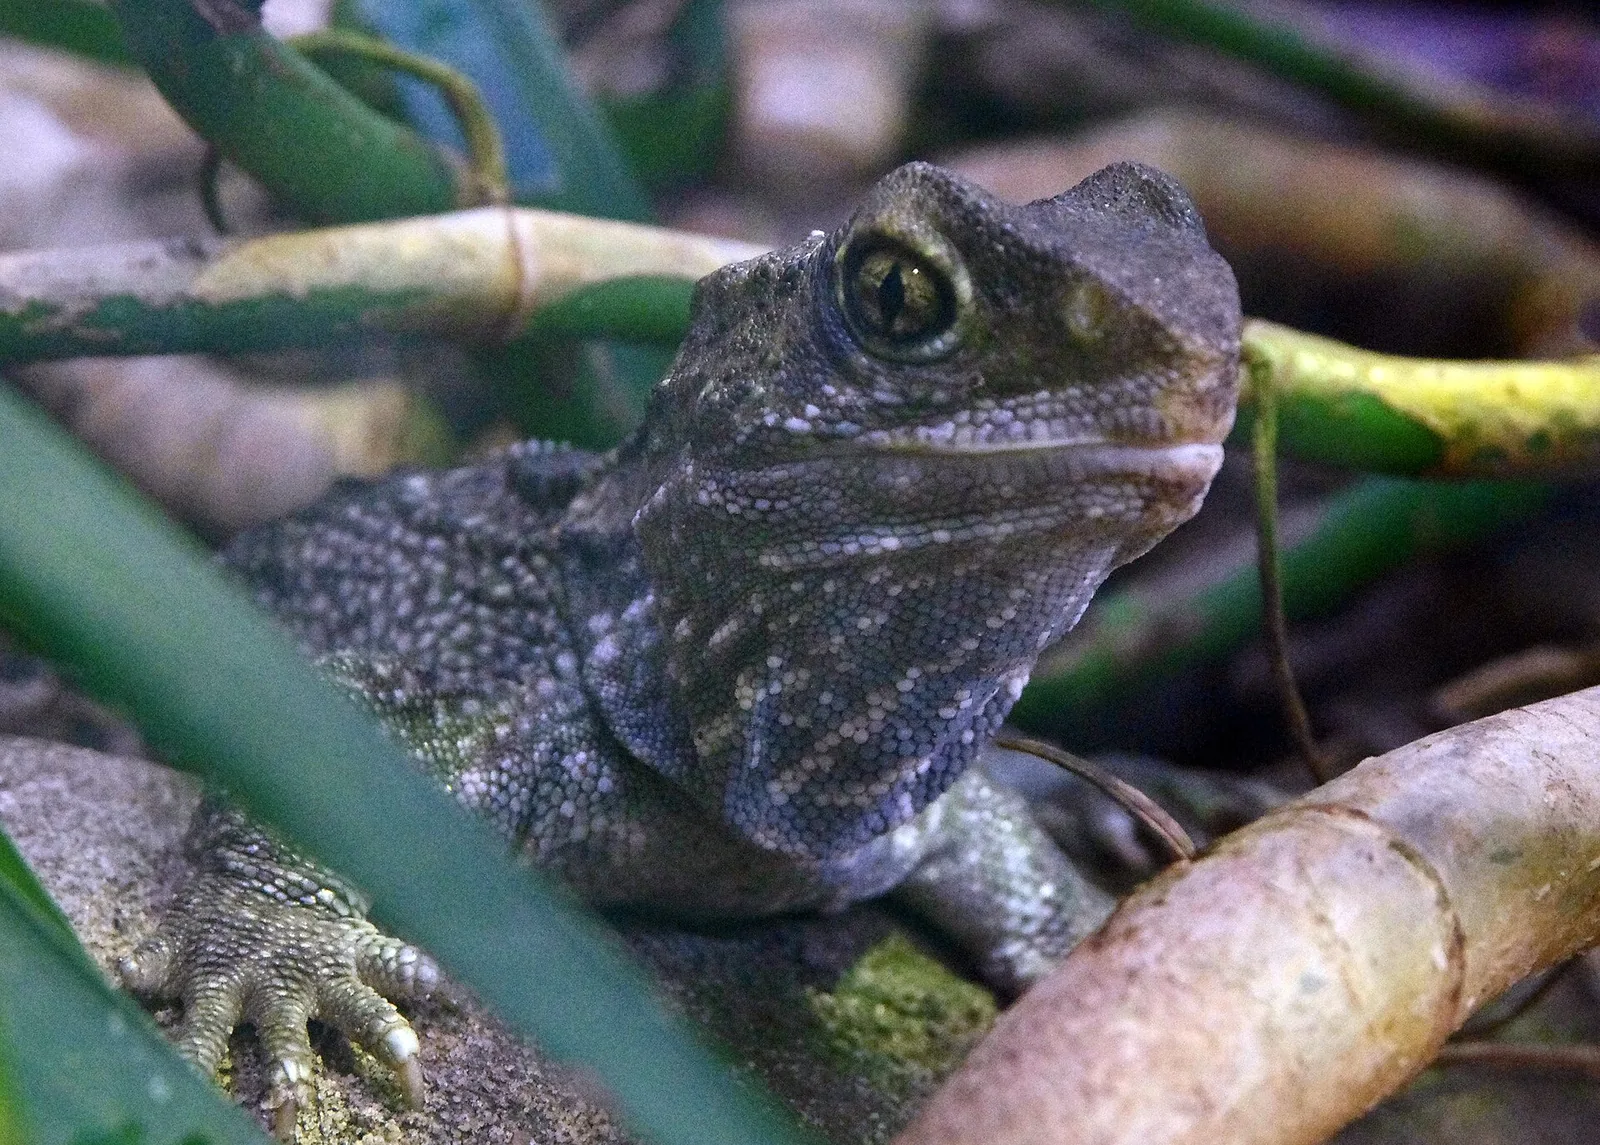
У диапсид окна тоже менялись. У ящериц утрачена нижняя височная дуга, у змей — обе дуги, и это освободило квадратную кость для движения. У гаттерии нижняя дуга полная, и её долго считали примитивной чертой «живого ископаемого». Но ископаемые родственники гаттерии нижней дуги не имели: у современной гаттерии она восстановилась вторично. У птиц окна слились с глазницей. Морские рептилии ихтиозавры и плезиозавры имели одно верхнее окно (такой череп называли эуриапсидным), но это видоизменённые диапсиды.
Загадка черепахи
У черепах височных окон нет, и долго их считали последними анапсидами — потомками древнейших рептилий вроде парейазавров. Но анализ генов настойчиво помещал черепах рядом с крокодилами и птицами, то есть среди диапсид. Противоречие разрешили ископаемые. В 2015 году Райнер Шох и Ханс-Дитер Зюс описали из триаса Германии паппохелиса — предка черепах с зачатками панциря и двумя височными окнами [15]. В том же году Габриэль Бевер с соавторами показали методом компьютерной томографии, что у молодого эвнотозавра — пермской «прачерепахи» из Южной Африки — есть верхнее височное окно, которое у взрослых закрывается [16].
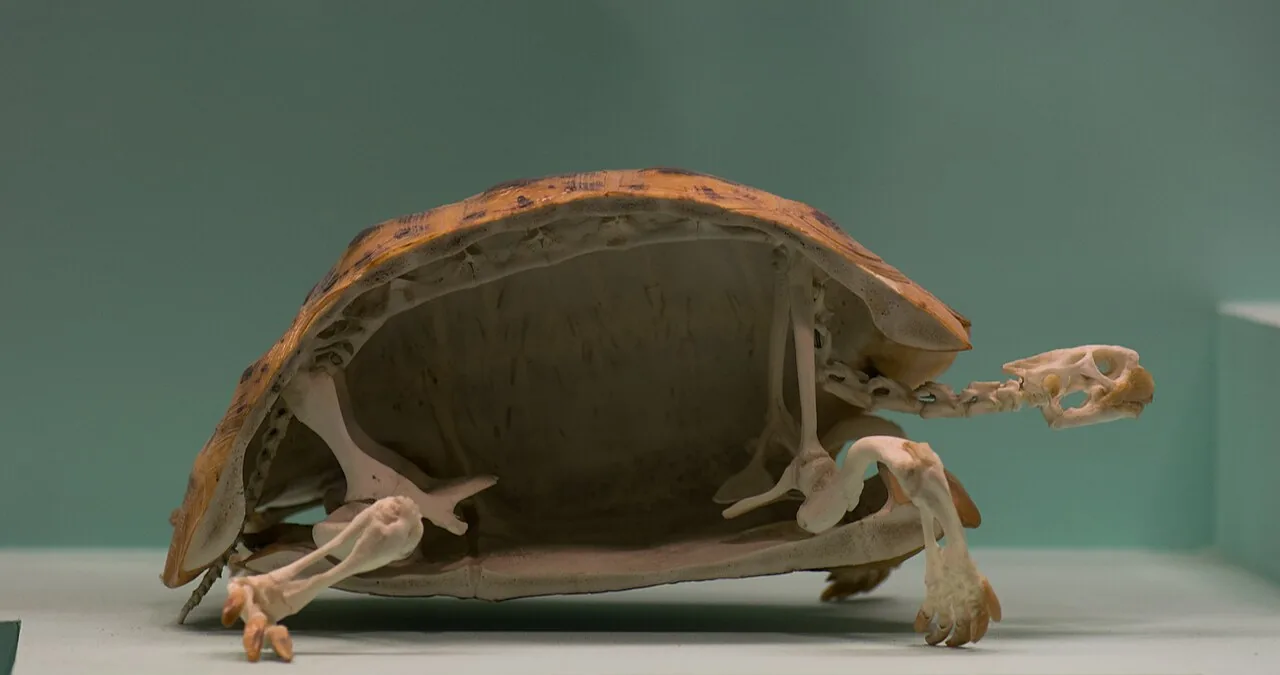
Значит, сплошной череп черепах — вторичный: окна закрылись, когда панцирь и роющий образ жизни потребовали прочной головы. Правда, у многих современных черепах на заднем крае черепа есть глубокие вырезки — «эмаргинации», через которые проходят челюстные мышцы, так что функционально проблема решена по-другому. История черепахи — хороший урок: сходство признака (отсутствие окон) может быть вторичным и не означать родства.
Подвижный череп ящериц и змей
Череп человека, кроме нижней челюсти, — неподвижная коробка. У многих рептилий и птиц кости черепа соединены подвижно, и при раскрывании рта меняет положение не только нижняя челюсть, но и верхняя. Это явление называют кинетизмом черепа. У ящериц утрата нижней височной дуги освободила квадратную кость: она качается на мозговой коробке, как маятник, и отводит сустав нижней челюсти назад, увеличивая раскрывание рта (так называемая стрептостилия). У многих ящериц есть ещё и подвижное сочленение в крыше черепа между лобными и теменными костями: морда приподнимается, когда ящерица хватает добычу, и опускается, прижимая её.
- Подвижная квадратная костькачается и опускает нижнюю челюсть дальше назад
- Сустав в крыше черепаморда приподнимается при раскрывании рта
- Половины челюстине срастаются спереди, а связаны эластичной связкой
- Длинная квадратная костьрот раскрывается шире головы
- Крючья нёбапоочерёдно «шагают» по добыче
- Подвижное надклювьеподнимается благодаря гибкой зоне у основания
- Тягиквадратная кость толкает скуловую дугу и нёбо вперёд
- Ринхокинезу куликов гнётся кончик клюва
Рекордсмены кинетизма — змеи. Правая и левая половины нижней челюсти у них не срастаются, а соединены эластичной связкой и могут расходиться. Длинная квадратная кость отодвигает сустав далеко назад, так что рот раскрывается шире головы. Кости нёба и верхней челюсти подвижны по отдельности: змея «шагает» по добыче, поочерёдно продвигая левую и правую стороны челюстей, и как бы натягивает себя на жертву. При этом мозг защищён особенно хорошо: лобные и теменные кости опускаются вниз, полностью закрывая мозговую коробку спереди и с боков, — у ящериц там перепончатая стенка. Ископаемая змея наяш с задними ногами из мела Аргентины, черепа которой описали в 2019 году, показала, что у древних змей ещё сохранялась скуловая кость и череп был менее подвижным: способность глотать крупную добычу развивалась постепенно.
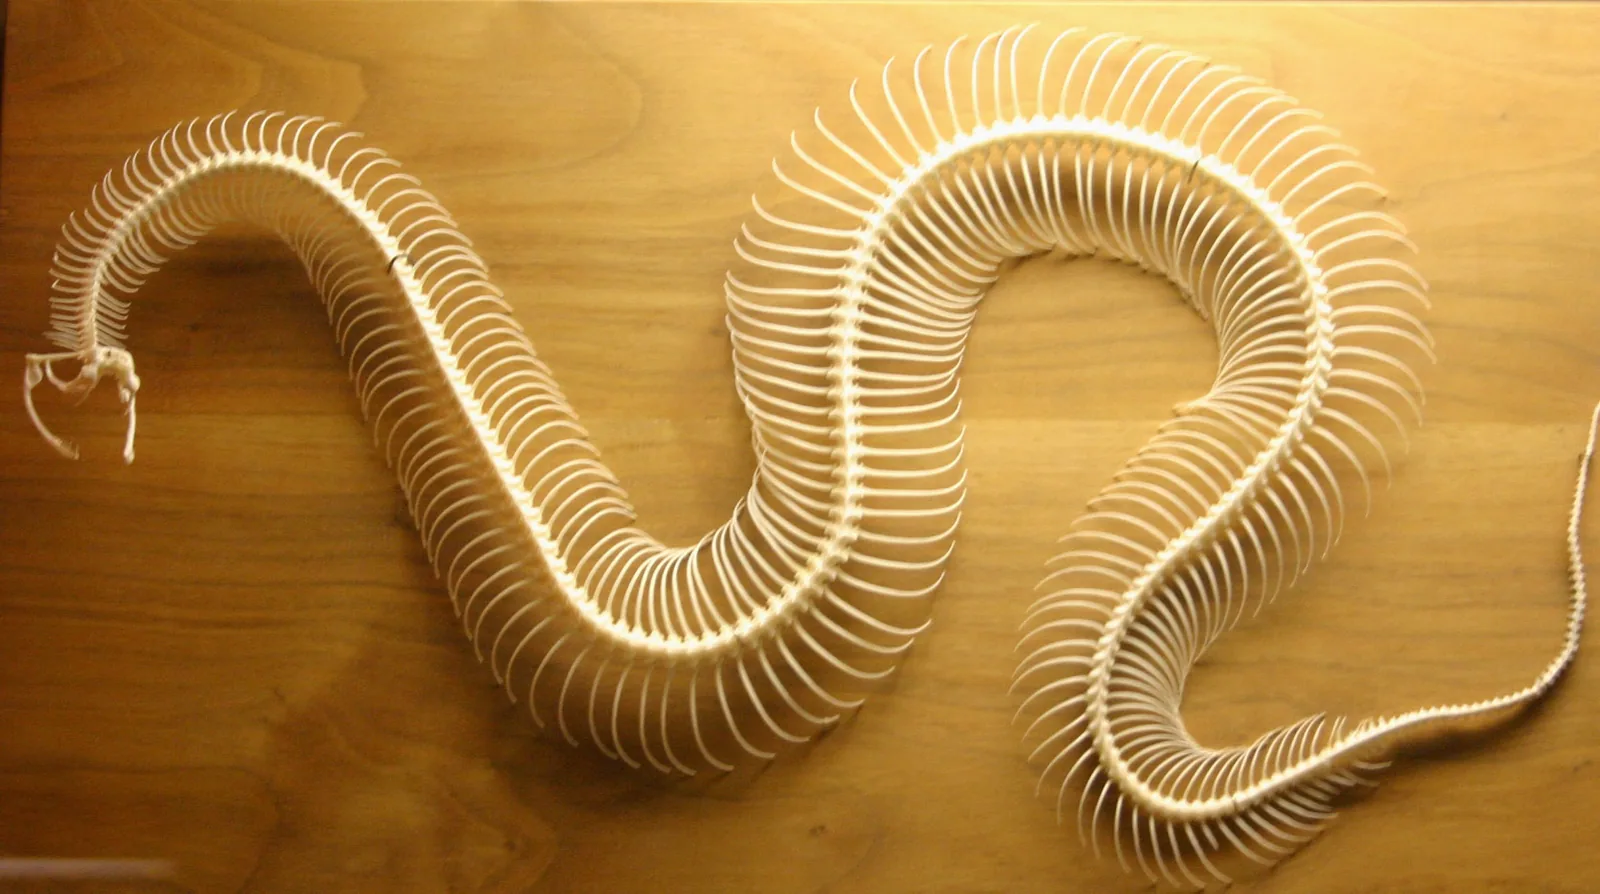
Зубы ядовитых змей — особая история. У гадюк ядовитый зуб сидит на короткой верхнечелюстной кости, которая поворачивается при раскрывании рта: в покое зуб сложен вдоль нёба, а при укусе выдвигается вперёд, как лезвие складного ножа. Это ещё один пример того, как подвижность костей черепа становится основой новой функции.
Крокодилы и динозавры
Архозавры — крокодилы, вымершие динозавры и их потомки птицы — кроме двух височных окон имеют ещё предглазничное окно между ноздрёй и глазницей и окно в нижней челюсти. У хищных динозавров череп был облегчён до предела: большие окна, полости, заполненные воздушными мешками, тонкие костные перемычки. Тем не менее он выдерживал огромные нагрузки: по расчётам, тираннозавр сжимал челюсти с силой около 35 тысяч ньютонов — больше, чем любое ныне живущее наземное животное [17].
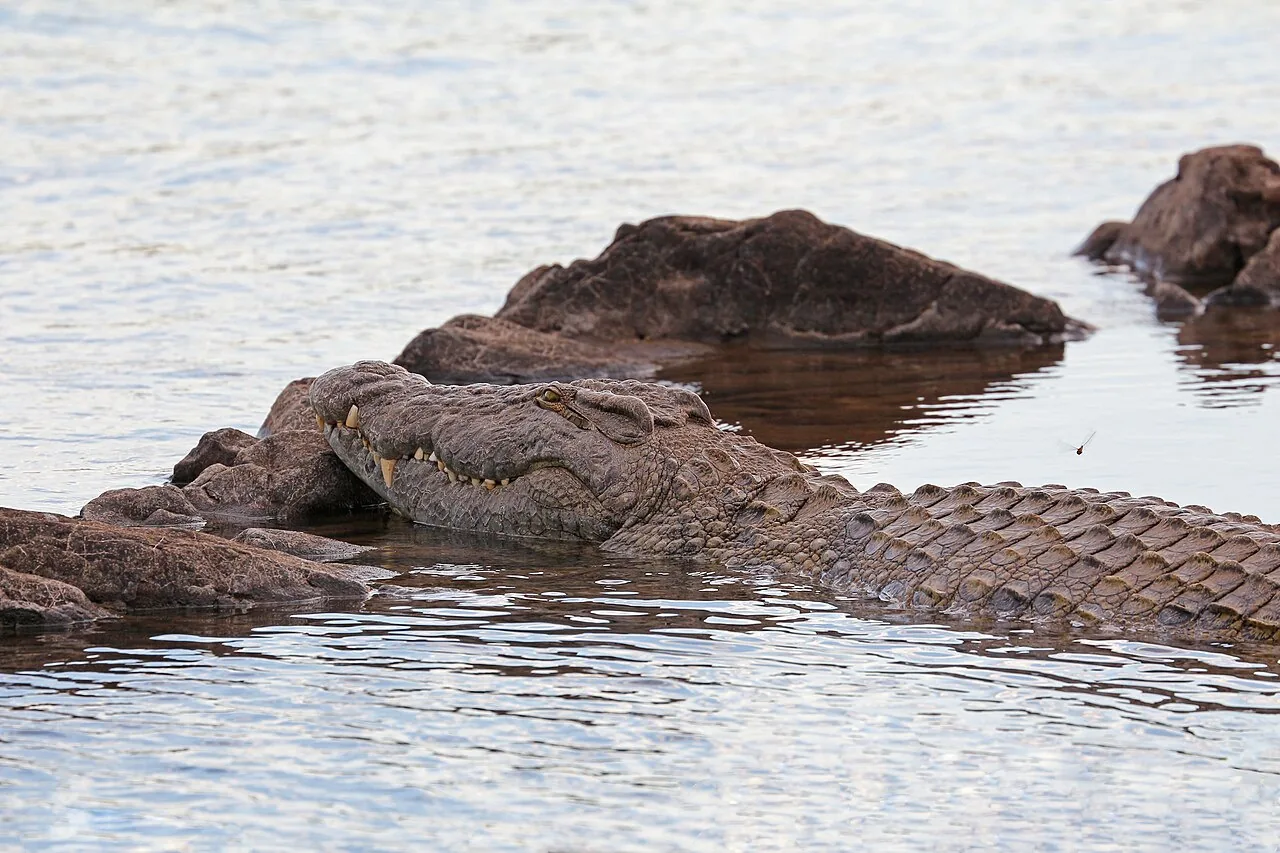
Крокодилы, наоборот, имеют массивный череп и независимо от млекопитающих «изобрели» вторичное нёбо: кости верхней челюсти, нёбные и крыловидные кости образуют костную пластину, отделяющую носовой ход от рта, а внутренние ноздри открываются далеко позади, у самой глотки. Вместе с нёбной занавеской это позволяет крокодилу держать добычу под водой с открытым ртом и дышать, выставив над водой лишь кончик морды. Гребнистый крокодил развивает самую большую измеренную силу укуса среди ныне живущих животных — около 16 тысяч ньютонов.
Череп птиц
Птица — динозавр, и её череп — видоизменённый череп мелкого хищного динозавра. В 2012 году Бхарт-Анджан Бхуллар с соавторами сравнили форму черепов десятков динозавров, их ископаемых родственников и птиц и показали, что взрослая птица сохраняет пропорции детёныша своих предков: огромные глазницы, большая мозговая коробка, короткая морда. Это педоморфоз — сохранение юношеских черт у взрослых, и он происходил в линии, ведущей к птицам, в несколько этапов [18].
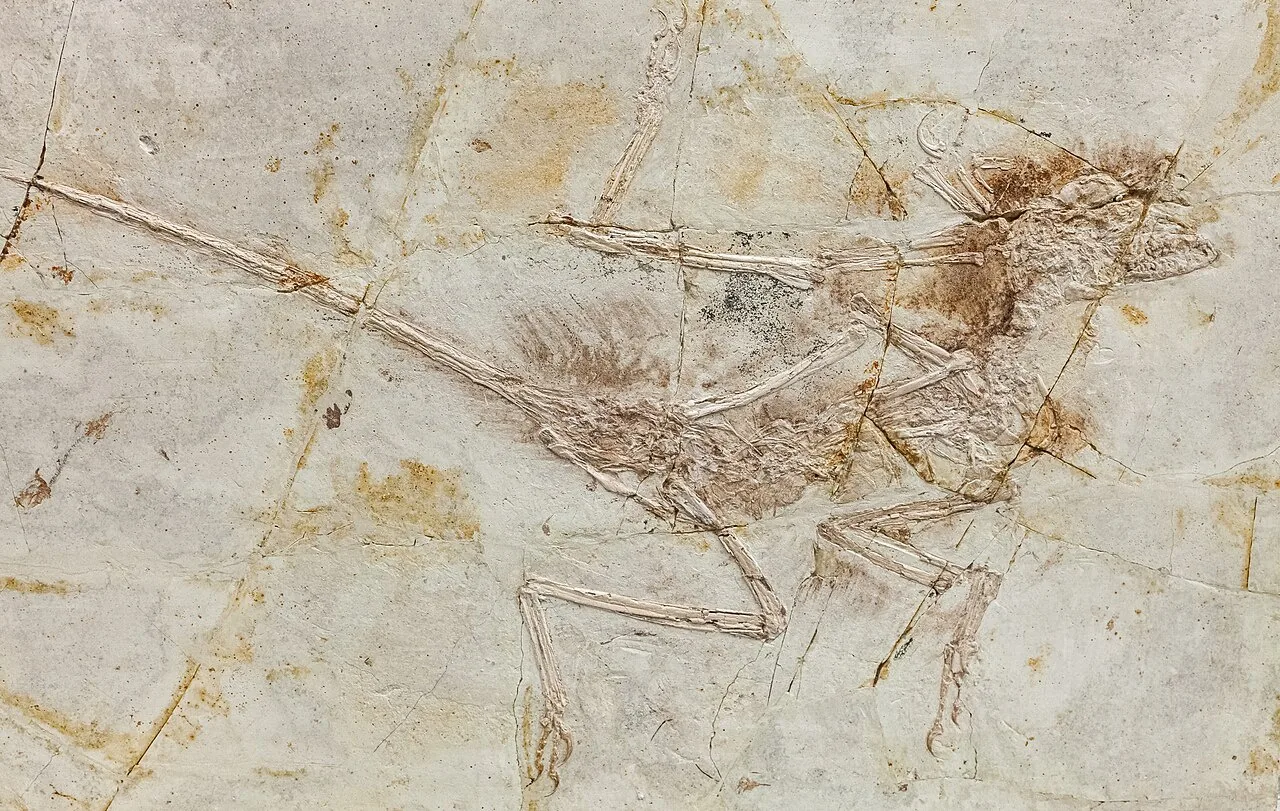
Клюв — новое образование. У предков птиц предчелюстные кости были маленькими парными косточками с зубами. У птиц они срослись и разрослись в основу надклювья, покрытого роговым чехлом. Позднее Бхуллар показал, что за этим стоит изменение активности сигнальных путей в центре лица зародыша: подавив их у куриного эмбриона, удалось получить «динозавровую» морду с раздельными предчелюстными костями [19]. Зубы общий предок современных птиц утратил около 116 миллионов лет назад — следы этого видны в «сломанных» генах эмали в геномах птиц [20].
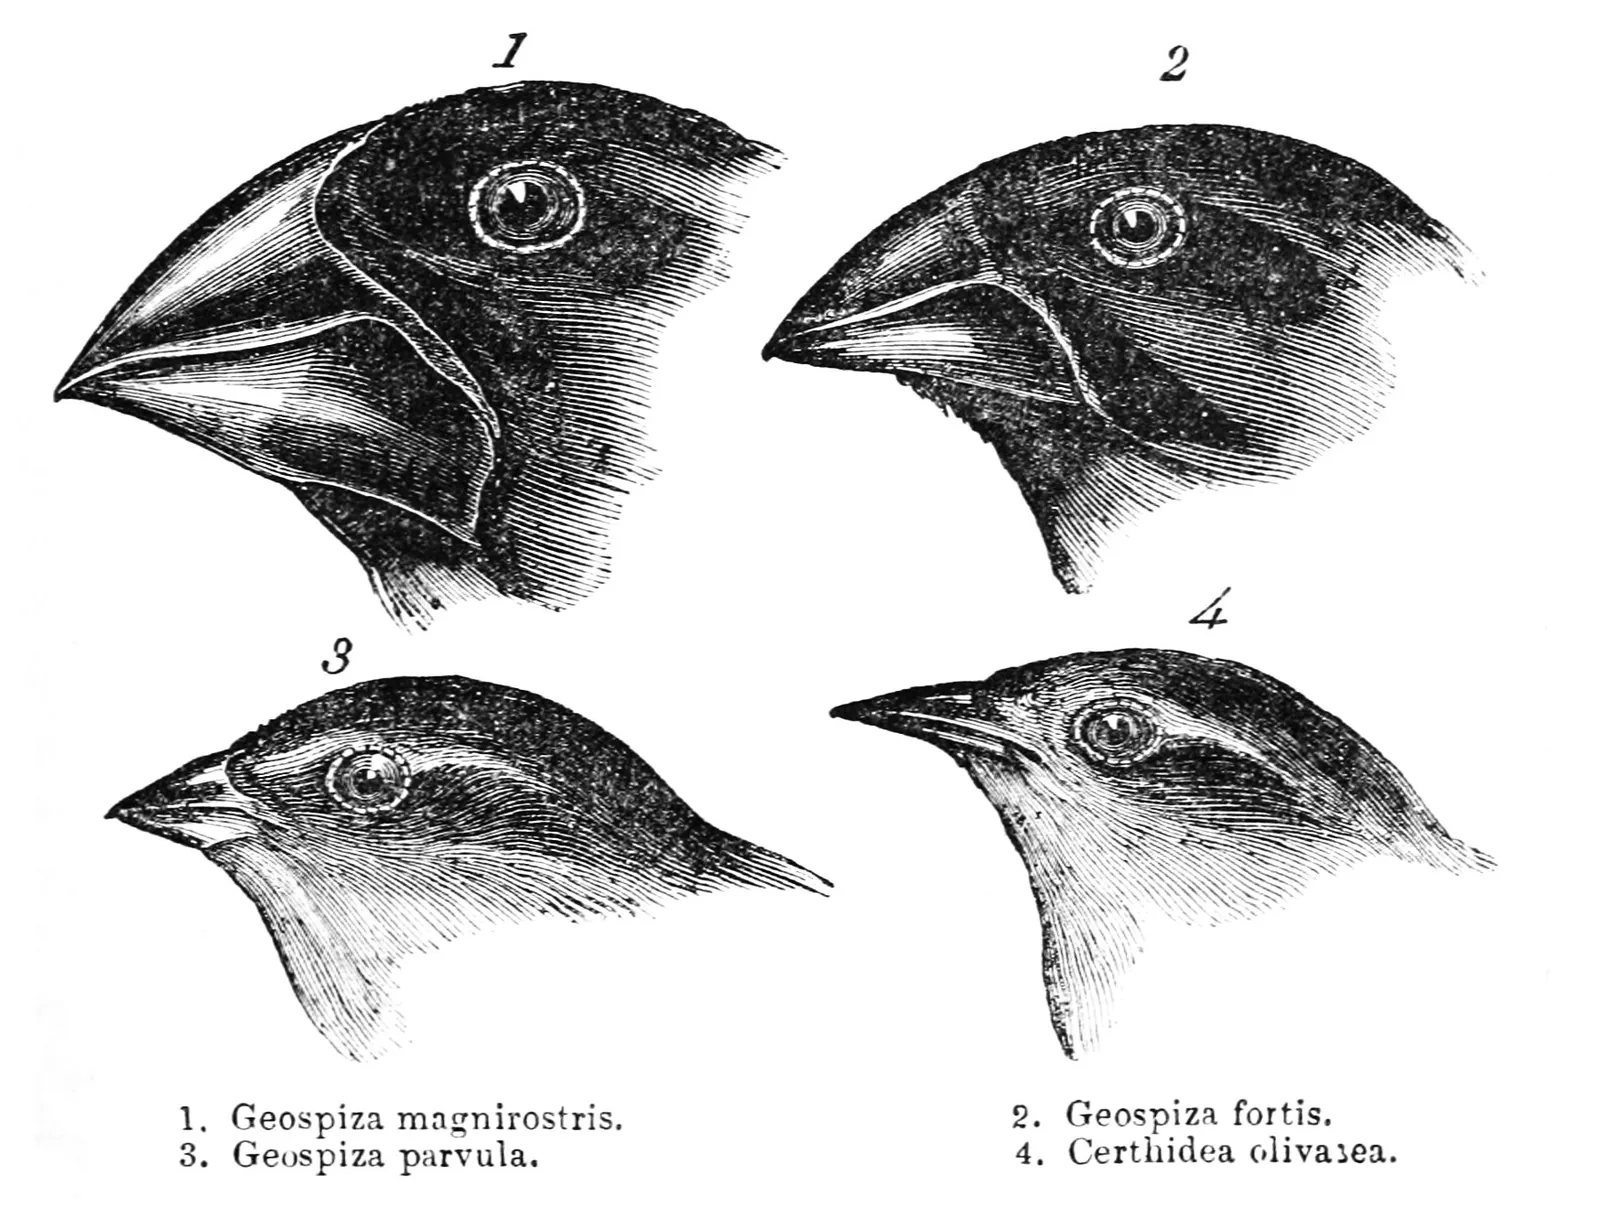
Форма клюва — классический пример быстрой эволюции. У дарвиновых вьюрков глубину и ширину клюва определяет количество сигнального белка BMP4 в зачатке клюва, а длину — активность кальмодулинового пути [21]. Кости черепа взрослой птицы почти полностью срастаются, и швы исчезают; череп лёгок, многие кости пневматизированы. При этом клюв подвижен: у большинства птиц надклювье поднимается благодаря гибкой зоне у основания и системе тяг от квадратной кости. Глаза птиц огромны: у страуса глазное яблоко больше его мозга, а у многих птиц глазницы разделены лишь тонкой перегородкой.
Синапсиды: путь к млекопитающим
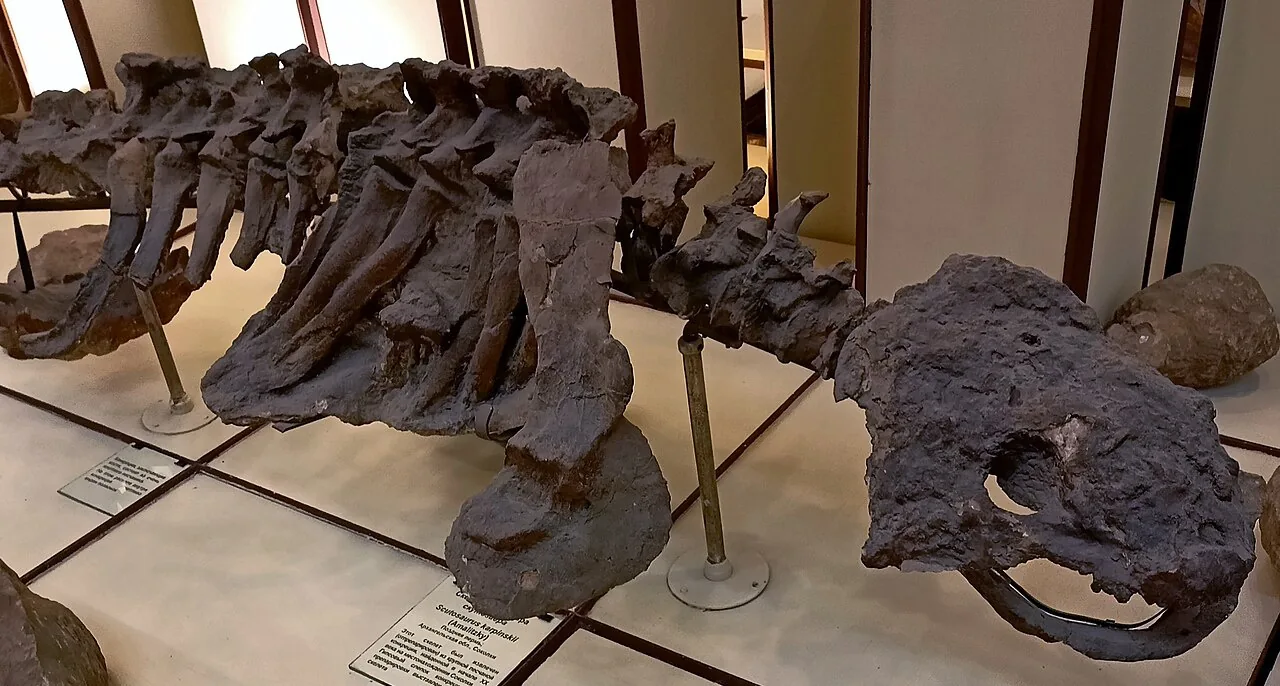
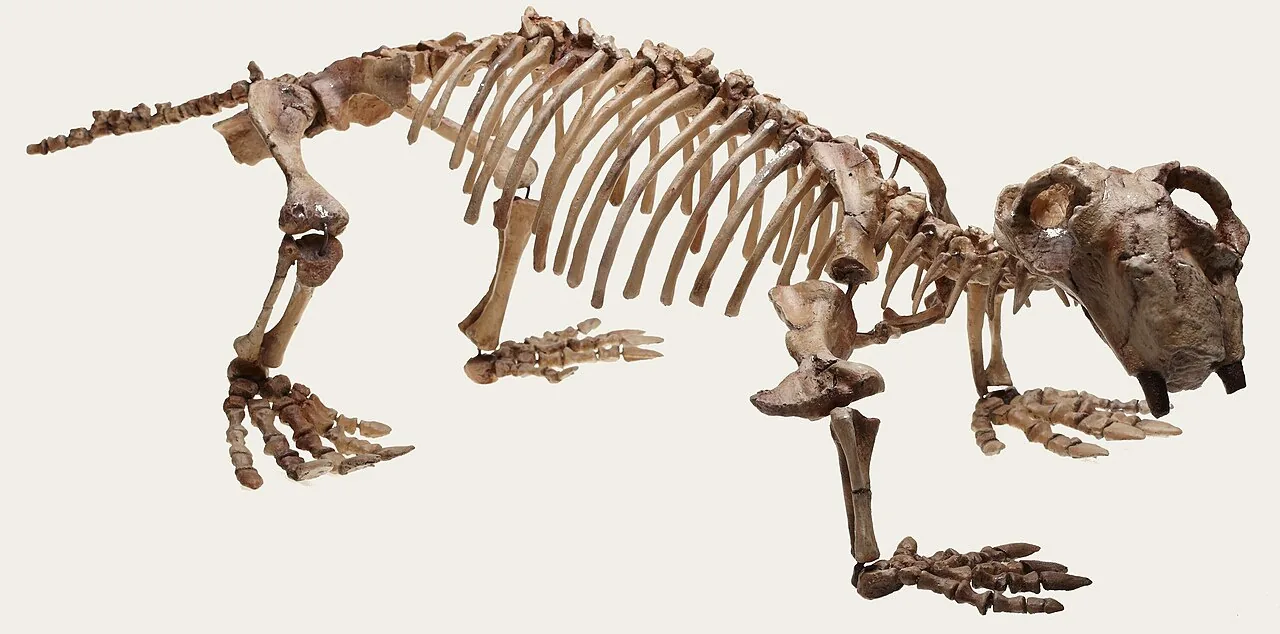
Ветвь синапсид отделилась от остальных амниот более 310 миллионов лет назад, и её история — самая полная летопись преобразования черепа, какую знает палеонтология. Ранние синапсиды, или пеликозавры, — диметродон с парусом на спине и его родня — ещё имели череп рептилии: много костей, маленькое височное окно, нижнюю челюсть из семи костей и сустав между квадратной и сочленовной костями. Но уже у них зубы были неодинаковыми: впереди — увеличенные «клыки». Следующая ступень — терапсиды, звероподобные рептилии пермского периода: хищные горгонопсы, растительноядные дицинодонты с роговым клювом и двумя бивнями, зверозубые териодонты. Особенно хорошо они представлены в Южной Африке и в России [22]: на Северной Двине Владимир Амалицкий в 1890-х годах раскопал целое кладбище пермских животных, включая горгонопса иностранцевию и парейазавров [3].
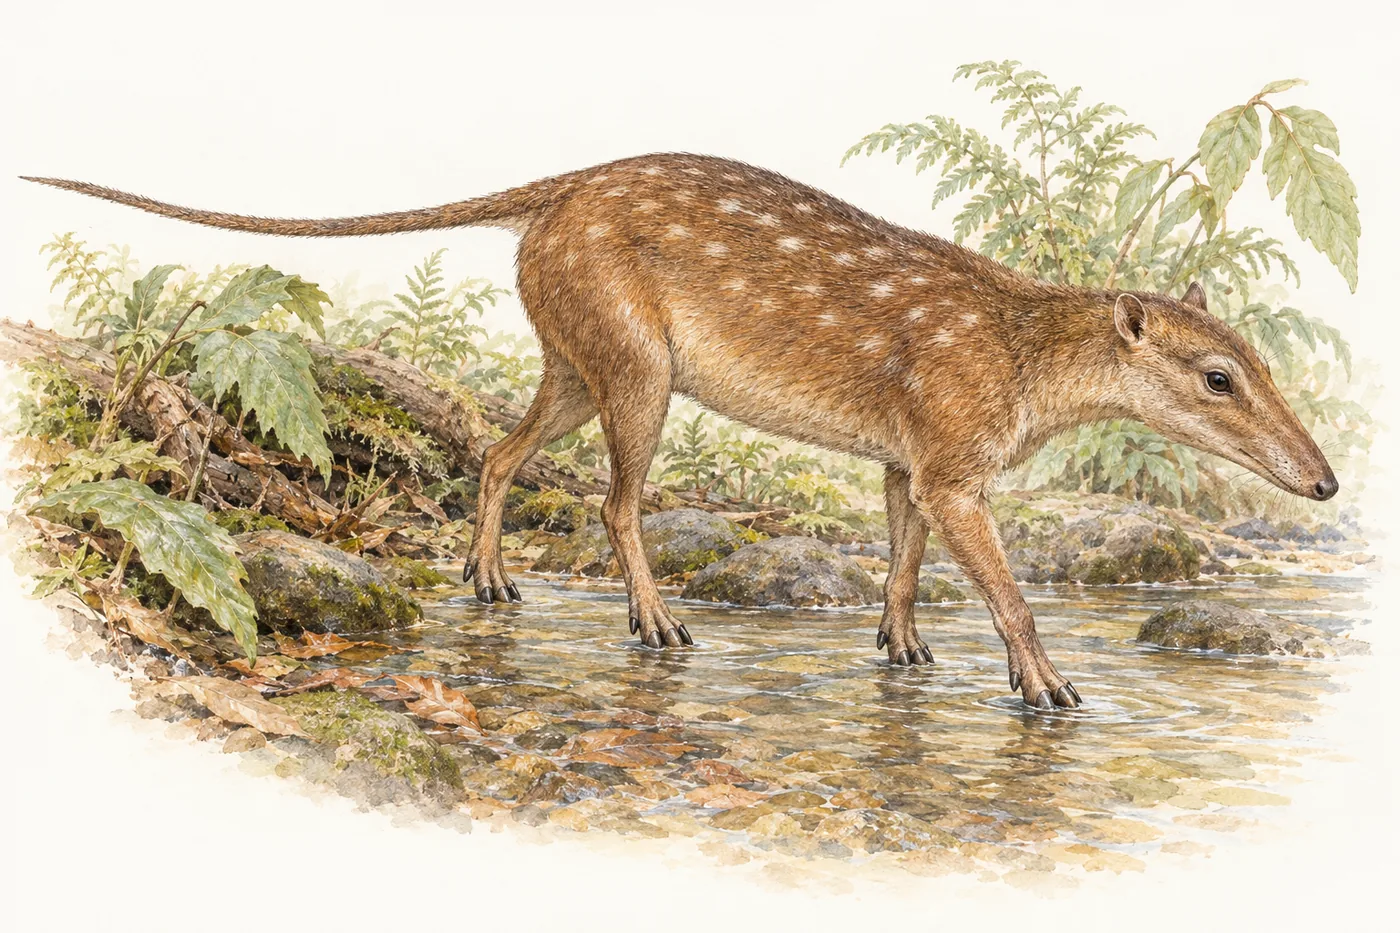
В черепах терапсид и их потомков цинодонтов шаг за шагом появлялись черты млекопитающих. Височное окно расширялось, а по средней линии крыши вырастал сагиттальный гребень для мышц. Возникла скуловая дуга, к которой крепится жевательная мышца, — новая мышца, отделившаяся от закрывателя челюсти и тянущая её вперёд и вверх. Появилось вторичное нёбо: у цинодонта тринаксодона (ранний триас) оно уже почти полное, а значит, животное могло дышать, не прекращая жевать, — важное условие для обмена веществ, требующего непрерывного дыхания. Зубы разделились на резцы, клыки и многовершинные щёчные зубы, способные пережёвывать пищу. На внутренней стенке носовой полости у поздних терапсид появились гребни для носовых раковин — тонких завитков кости, которые у млекопитающих согревают и увлажняют вдыхаемый воздух и сберегают воду и тепло на выдохе; их связывают с возникновением теплокровности [23].
Мозговая коробка постепенно расширялась. В 2011 году Тимоти Роу, Томас Макрини и Ло Чжэси, изучив томограммы черепов, показали, что мозг предков млекопитающих увеличивался тремя скачками, и первый из них был связан с обонянием и осязанием: росли обонятельные луковицы и кора, обрабатывающая сигналы от волос [24]. Череп превратился из «коробки с окнами для мышц» в прочную капсулу вокруг крупного мозга.
Новый челюстной сустав
Самое знаменитое преобразование в черепе синапсид — смена челюстного сустава. У рептилий нижняя челюсть состоит из нескольких костей: впереди зубная, сзади — пять-шесть мелких («зачелюстных»), в том числе сочленовная, которая образует сустав с квадратной костью черепа. У млекопитающих в нижней челюсти одна кость — зубная, и она сочленяется с чешуйчатой костью (у человека — височно-нижнечелюстной сустав). Как одно превратилось в другое, если челюсть не может работать «без сустава» ни одного поколения?
Ответ дали ископаемые. У терапсид зубная кость становилась всё больше, а задние кости — всё мельче. У цинодонтов зубная кость почти дотянулась до чешуйчатой. У раннеюрского цинодонта диартрогнатуса (его название и означает «двойной сустав») и у раннего млекопитающего морганукодона, жившего около 205 миллионов лет назад, работали сразу два сустава: старый — между квадратной и сочленовной костями, и новый — между зубной и чешуйчатой. Пока нагрузку брал на себя новый сустав, старые кости освобождались для другой работы. Мелкие кости, лежавшие в желобке на внутренней стороне зубной кости, уже тогда, вероятно, проводили звук: животные «слышали челюстью», как многие рептилии.
| Кость рептилии (или рыбы) | Где у рептилии | Что из неё у млекопитающего |
|---|---|---|
| Подвесок (гиомандибула) | стремечко (у рыб — подвеска челюсти) | стремечко |
| Квадратная | верхняя часть челюстного сустава | наковальня |
| Сочленовная | нижняя часть челюстного сустава | молоточек |
| Угловая | задняя часть нижней челюсти | барабанная кость (кольцо, держащее перепонку) |
| Предсочленовная | нижняя челюсть | передний отросток молоточка |
| Зубная | передняя часть нижней челюсти | вся нижняя челюсть |
Рождение слуховых косточек
Освободившиеся кости превратились в слуховые косточки. Сочленовная стала молоточком, квадратная — наковальней, угловая — барабанным кольцом, на котором натянута перепонка. Вместе со стремечком они образовали трёхзвенную цепь, которая работает как рычаг и согласователь: площадь барабанной перепонки человека примерно в 17 раз больше площади основания стремечка, а рычаг молоточка и наковальни выигрывает ещё в 1,3 раза, и давление на овальное окно внутреннего уха возрастает более чем в 20 раз. Лёгкие маленькие косточки, освобождённые от тяжёлой челюсти, могут колебаться быстро — отсюда способность млекопитающих слышать высокие звуки: мышь — до 90 килогерц, летучие мыши — ещё выше, тогда как рептилии и птицы почти не слышат выше 10 килогерц.
Переход «из челюсти в ухо» и сегодня повторяется в развитии каждого млекопитающего. У зародыша человека молоточек и наковальня закладываются на заднем конце меккелева хряща — хрящевой основы нижней челюсти [25], — и лишь потом хрящ рассасывается, отделяя косточки. У новорождённых сумчатых, например опоссума, который рождается крошечным и сразу присасывается к соску, нижняя челюсть первые дни сочленяется с черепом именно через молоточек и наковальню — старым рептилийным суставом, — и лишь позднее формируется новый сустав, а косточки уходят в ухо.
Находки из раннего мела Китая показали промежуточную стадию в окаменелостях. У яноконодона, описанного в 2007 году, и ляоконодона, описанного в 2011 году, молоточек и наковальня уже не участвуют в челюстном суставе, но ещё связаны с нижней челюстью окостеневшим меккелевым хрящом, который, вероятно, поддерживал барабанную перепонку [26, 5]. Сравнение разных групп мезозойских млекопитающих показало, что окончательное отделение косточек от челюсти произошло по меньшей мере дважды — у предков однопроходных и у предков сумчатых и плацентарных, — используя одну и ту же эмбриональную программу.
Череп млекопитающих
Итоговый череп млекопитающего — это одна кость в нижней челюсти, сустав между зубной и чешуйчатой костями, скуловая дуга, вторичное нёбо, носовые раковины, крупная мозговая коробка, два затылочных мыщелка, три слуховые косточки, зубы разных типов, которые меняются лишь один раз (молочные на постоянные), и точное смыкание верхних и нижних зубов. На этой основе возникло огромное разнообразие. У грызунов резцы растут всю жизнь, а нижняя челюсть может двигаться вперёд-назад, переключаясь между грызением и жеванием. У хищников мощный сагиттальный гребень и плотный сустав, позволяющий челюсти двигаться только вверх-вниз, как ножницам. У жвачных сустав, наоборот, свободный, и челюсть ходит из стороны в сторону, перетирая траву.
Киты перестроили череп радикальнее всех: кости морды вытянулись назад и «наехали» на крышу черепа, ноздри переместились на темя и стали дыхалом. Ухо китов окружено массивной костной капсулой — инволюкрумом, отделённой от черепа и проводящей звук в воде; такая капсула уже была у индохиуса — сухопутного родственника китов. Череп слона, напротив, пронизан воздушными полостями, облегчающими огромную голову, а носовое отверстие у него одно и большое. Австрийский палеонтолог Отенио Абель предположил, что черепа карликовых слонов со средиземноморских островов дали начало мифу о циклопах: огромное носовое отверстие в середине лба легко принять за глазницу.
Нос и обоняние
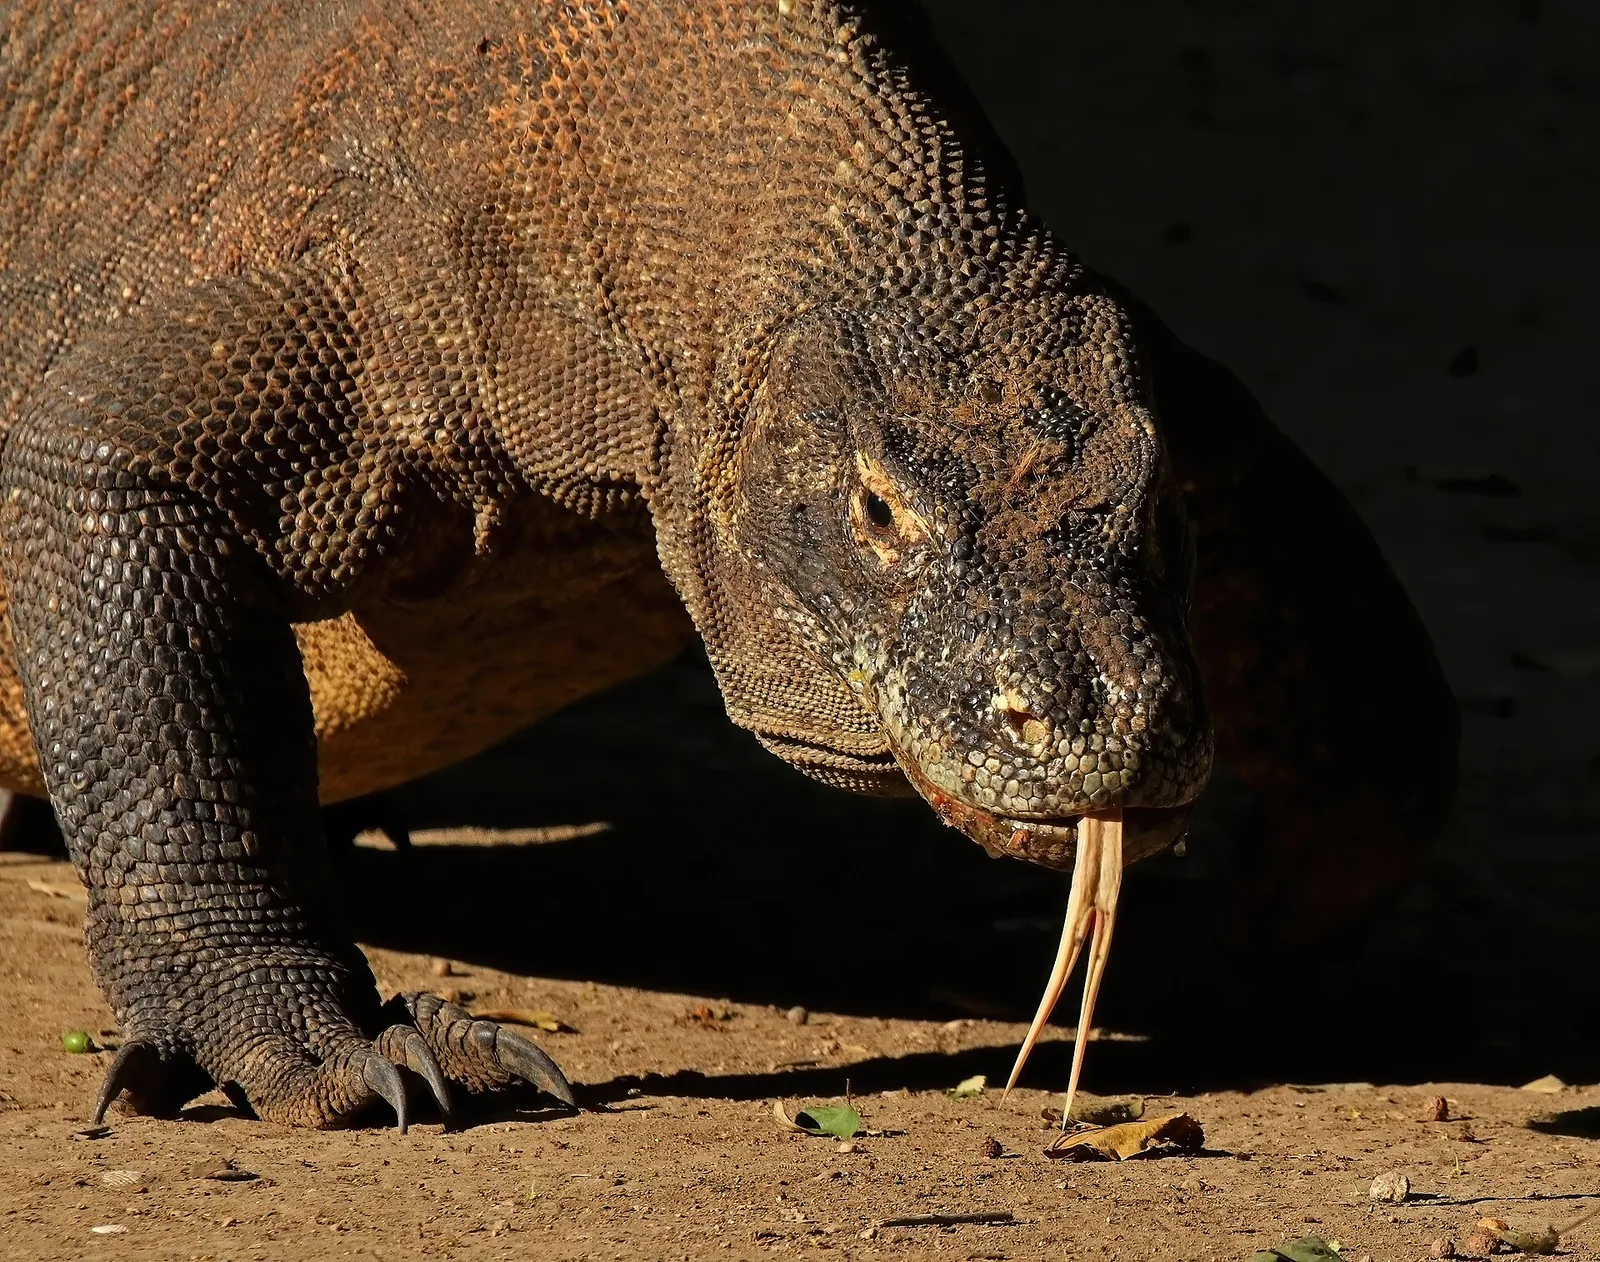
У рыб ноздри ведут в слепые обонятельные мешки и служат только для обоняния. У четвероногих носовая полость через хоаны соединилась с ртом и стала частью дыхательного пути, и в черепе это отразилось очень заметно. У земноводных и рептилий появился вомероназальный (якобсонов) орган — отдельная хеморецепторная камера в нёбе или носовой перегородке, улавливающая феромоны и запахи добычи. Змеи и вараны «пробуют воздух» раздвоенным языком: кончики языка переносят пахучие молекулы к отверстиям этого органа, и змея определяет направление запаха, сравнивая сигналы левой и правой половинок. У человека вомероназальный орган закладывается у зародыша, но у взрослого не работает.
У млекопитающих носовая полость разрослась и заполнилась носовыми раковинами. Обонятельные раковины, покрытые обонятельным эпителием, у собаки имеют площадь в десятки раз больше, чем у человека; решётчатая кость с ситовидной пластинкой пропускает к мозгу тысячи обонятельных нервных волокон. Дыхательные раковины, о которых шла речь выше, согревают и увлажняют воздух. Зубатые киты, перешедшие на эхолокацию, почти полностью утратили обоняние: у них нет обонятельных луковиц, а носовые ходы стали частью звукового аппарата. Птицы долго считались «нюхающими слабо», но у киви, грифов-индеек и буревестников обонятельные луковицы крупные, и они находят пищу по запаху за километры.
Зубы: от рыбьих к млекопитающим
Зубы рыб и первых четвероногих были одинаковыми коническими шипами и сменялись всю жизнь: на месте выпавшего вырастал новый — так называемая многократная смена зубов (полифиодонтия). Зубы сидели не только на краях челюстей, но и на нёбе. У рептилий зубы по способу прикрепления бывают разными: у многих ящериц они прирастают к внутренней стенке челюсти или к её краю, а у крокодилов и динозавров сидят в отдельных лунках — альвеолах, как у млекопитающих. Крокодил за жизнь может сменить каждый зуб несколько десятков раз.
У синапсид зубы постепенно разделились по функциям: резцы, клыки и щёчные зубы. У млекопитающих смена стала однократной (дифиодонтия: молочные и постоянные), а щёчные зубы получили сложную поверхность с бугорками и гребнями, точно смыкающимися с зубами противоположной челюсти. Точное смыкание возможно только при однократной смене: если зубы всё время меняются, они не могут «притереться» друг к другу. Поэтому дифиодонтию, неподвижный сустав нижней челюсти и рост черепа, заканчивающийся во взрослом состоянии, считают звеньями одной цепи. Ключевое изобретение — трибосфенический коренной зуб, где выступ одного зуба работает как пестик в ступке другого: он позволил одновременно резать и перетирать пищу и стал исходным для зубов почти всех современных млекопитающих.
Череп человека
Череп взрослого человека состоит из 22 костей: восемь образуют мозговую коробку (лобная, две теменные, затылочная, две височные, клиновидная, решётчатая), четырнадцать — лицевой череп; к ним добавляются шесть слуховых косточек и подъязычная кость. У новорождённого кости крыши ещё не сомкнуты и соединены перепончатыми участками — родничками, что позволяет голове пройти через родовые пути и мозгу быстро расти: за первые годы жизни объём мозга увеличивается в несколько раз.
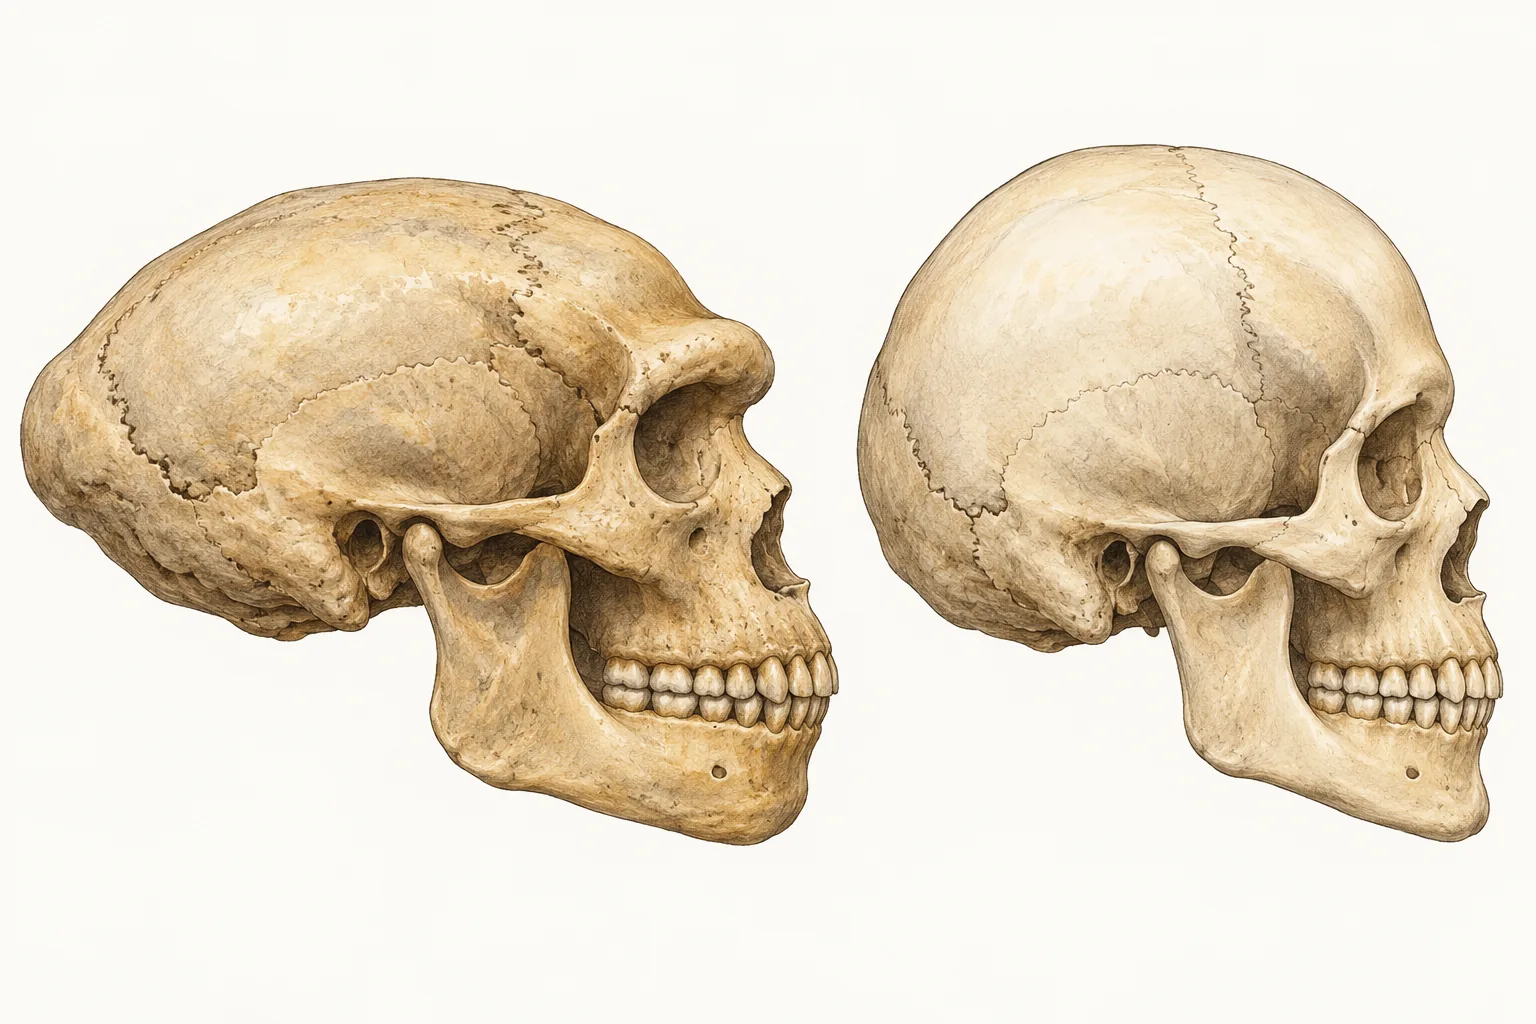
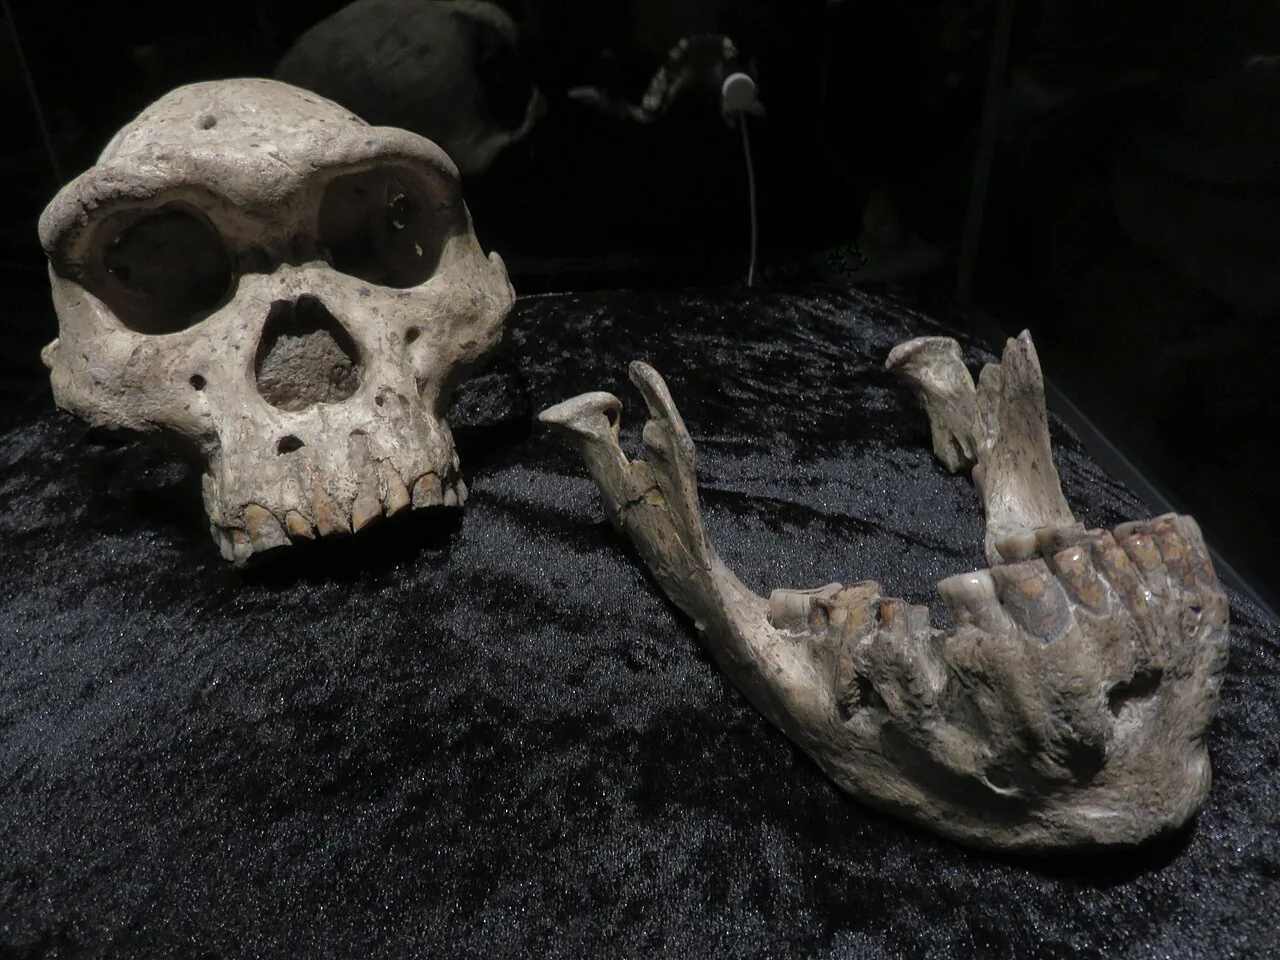
По сравнению с другими приматами у человека огромная округлая мозговая коробка, небольшое лицо, уменьшенные челюсти и зубы, выступающий подбородок — уникальная черта нашего вида. Большое затылочное отверстие, через которое спинной мозг соединяется с головным, сместилось вперёд, под центр черепа: голова балансирует на вертикальном позвоночнике. У человека разумного мозговая коробка стала шаровидной постепенно: по данным томографии ископаемых черепов, современной округлой формы она достигла лишь в последние 100–35 тысяч лет, хотя объём мозга уже был близок к нынешнему [27]. Неандертальцы с таким же объёмом мозга имели вытянутую назад коробку и мощные надглазничные валики.
Гены, которые лепят череп
Почему из одной жаберной дуги получается верхняя челюсть, а из соседней — нижняя? Клетки нервного гребня, заселяющие дуги зародыша, получают «адрес» от генов-регуляторов. Задние дуги размечены генами Hox, а первая, челюстная, дуга — единственная, где они не работают. Если у мыши выключить ген Hoxa2, вторая дуга теряет свой адрес и превращается в копию первой: вместо подъязычных элементов возникают зеркальные двойники молоточка, наковальни и барабанной кости [28]. Внутри челюстной дуги верх и низ различают гены семейства Dlx: в нижней половине работают Dlx5 и Dlx6. В 2002 году Майкл Дипью с соавторами выключили их у мыши и получили зародыш, у которого нижняя челюсть превратилась в зеркальную копию верхней, со своими «верхнечелюстными» костями и вибриссами [29].
Мелкие изменения в тех же сигнальных путях меняют форму лица. У пород собак длина морды связана с числом повторов в гене Runx2, управляющем окостенением: сравнив десятки пород, Джон Фондон и Гарольд Гарнер показали, что чем больше соотношение двух типов повторов, тем длиннее морда, и эти повторы мутируют необычно часто, что объясняет быстроту селекции [30]. Мутации рецептора фактора роста фибробластов FGFR2 у человека вызывают преждевременное зарастание швов черепа — краниосиностоз; при синдроме Аперта голова приобретает вытянутую вверх форму, потому что мозг растёт там, где швы ещё открыты. Эти примеры показывают, что череп растёт как согласованная система: швы, мозг, мышцы и зубы постоянно «договариваются» друг с другом, и изменения в одном месте влекут перестройку всего.
Общие закономерности
Уменьшение числа костей. Закон Уиллистона подтверждается в линиях земноводных, рептилий, птиц и особенно синапсид: кости сливаются, исчезают или переходят в другие системы [3]. Анализ черепов как сетей контактов между костями показал, что при этом череп становится не проще, а сложнее устроенным: каждая оставшаяся кость граничит с большим числом соседей, а сам череп делится на чёткие модули — мозговую коробку, лицевую часть, челюстной аппарат [31].
Смена функции. Жаберная дуга становится челюстью, опора челюсти — слуховой косточкой, кости сустава — косточками уха, жаберная щель — слуховой трубой и полостью среднего уха. Новое редко создаётся с нуля: эволюция переделывает имеющиеся детали, а промежуточные формы часто выполняют обе функции сразу, как двойной сустав морганукодона.
Окна и облегчение. Независимо у разных групп в черепе появляются отверстия там, где кость не несёт нагрузки, а мышцам нужно место. Подвижность и её утрата. Череп то становится кинетическим (ящерицы, змеи, птицы), то прочным и неподвижным (черепахи, крокодилы, млекопитающие) — в зависимости от способа питания. Конвергенция. Вторичное нёбо возникло у крокодилов и млекопитающих, барабанное ухо — по меньшей мере пять раз, клюв — у птиц, черепах и дицинодонтов. Изменение сроков развития. Педоморфоз сделал череп птиц похожим на череп детёныша динозавра, а сдвиги в работе сигнальных белков нервного гребня меняют форму клюва и лица за немногие поколения.
Частые вопросы
Правда ли, что в нашем ухе — бывшая челюсть рептилии? Да, в том смысле, что молоточек и наковальня гомологичны сочленовной и квадратной костям, образующим челюстной сустав у рептилий и ранних синапсид. Это доказано и развитием зародыша, и рядом ископаемых переходных форм.
Почему у змей нет «отвисающей» нижней челюсти, о которой иногда пишут? Змеи не «вывихивают» челюсть. Их рот раскрывается широко потому, что половины нижней челюсти соединены эластичной связкой, а квадратная кость длинная и подвижная.
Зачем человеку роднички? Подвижные кости крыши черепа новорождённого позволяют голове слегка деформироваться при родах и дают место быстро растущему мозгу. Роднички закрываются в основном к полутора-двум годам.
Были ли у птиц зубы? У предков — да: у археоптерикса и многих меловых птиц были зубы. Современные птицы потеряли их около 116 миллионов лет назад, но в их геноме сохранились неработающие гены эмали.
Почему у черепах нет височных окон, если они родственны ящерицам и крокодилам? Их предки были диапсидами, но окна закрылись вторично, когда череп стал прочнее; у многих черепах челюстные мышцы проходят через вырезки на заднем крае черепа.
Что нужно знать к ЕГЭ
- череп состоит из мозгового и лицевого (висцерального) отделов; челюсти позвоночных произошли из передней жаберной дуги (ароморфоз — появление челюстей);
- у земноводных череп соединяется с позвоночником двумя затылочными мыщелками, у пресмыкающихся и птиц — одним, у млекопитающих — двумя;
- у земноводных появилось среднее ухо с одной слуховой косточкой (стремечком) и барабанной перепонкой; у пресмыкающихся и птиц — одна косточка, у млекопитающих — три (молоточек, наковальня, стремечко);
- у млекопитающих зубы дифференцированы (резцы, клыки, малые и большие коренные) и сидят в альвеолах; есть вторичное костное нёбо, позволяющее дышать во время жевания;
- у птиц нет зубов, челюсти покрыты роговым клювом, кости черепа срастаются;
- череп человека: мозговой отдел преобладает над лицевым, есть подбородочный выступ, большое затылочное отверстие смещено вперёд — признаки, связанные с развитием мозга, речи и прямохождением;
- кости черепа соединяются швами (неподвижно), подвижно — лишь нижняя челюсть.
Ловушки. «У рептилий три слуховые косточки» — нет, одна. «У птиц и млекопитающих по одному мыщелку» — нет: у птиц один, у млекопитающих два. «Вторичное нёбо есть только у млекопитающих» — оно есть и у крокодилов. «Нижняя челюсть млекопитающих состоит из нескольких костей» — нет, из одной зубной. «Слуховые косточки появились заново» — нет, это видоизменённые кости челюстного сустава и подвеска. «Череп — видоизменённые позвонки» — нет, это опровергнутая теория XIX века.
Для олимпиад
Гомологии висцерального черепа. Первая (челюстная) дуга: нёбно-квадратный хрящ → квадратная кость → наковальня; меккелев хрящ → сочленовная кость → молоточек. Вторая (подъязычная) дуга: подвесок → стремечко; остальные элементы → подъязычная кость. Брызгальце (первая жаберная щель) → полость среднего уха и слуховая (евстахиева) труба. Покровная угловая кость → барабанная кость.
Физика среднего уха. Коэффициент прохождения звука через границу двух сред по интенсивности T = 4Z₁Z₂/(Z₁ + Z₂)²; для воздуха (около 415 Па·с/м) и воды (около 1,5·10⁶ Па·с/м) он около 0,1 %. Среднее ухо компенсирует большую часть потерь отношением площадей перепонки и окна и рычагом косточек; выигрыш по давлению в 20 раз — это около 26 дБ.
Биомеханика челюстей. Челюсть — рычаг третьего рода: сила укуса F = Fₘ·a/b, где a — плечо мышцы от сустава, b — расстояние от сустава до точки укуса. Короткая морда и далеко вперёд вынесенное прикрепление мышц дают сильный укус (хищники, грызуны), длинная морда — быстрое смыкание (крокодилы-рыбоеды, дельфины).
Классификация по окнам и её ограничения. Анапсидность черепах — вторичная, гаттерия вторично восстановила нижнюю дугу, эуриапсиды — видоизменённые диапсиды. Число окон — удобный признак, но не всегда отражает родство; в современной систематике группы выделяют по совокупности признаков и молекулярных данных.
Задания с разбором
Задание 1
Назовите три части черепа позвоночного, укажите, как развивается каждая, и приведите по две кости или структуры из каждой части у человека.
Разбор
Мозговая коробка (нейрокраниум) — закладывается хрящом вокруг мозга и органов чувств, затем окостеневает: затылочная, клиновидная, решётчатая кости, каменистая часть височной. Покровные кости (дерматокраниум) — образуются прямо в соединительной ткани без хряща: лобная, теменные, носовые, верхнечелюстные, скуловые. Висцеральный череп — скелет жаберных дуг: нижняя челюсть (у человека её кость покровная, но закладывается на основе меккелева хряща), слуховые косточки, подъязычная кость, хрящи гортани.
Задание 2
Какие изменения в черепе тиктаалика отличают его от кистепёрых рыб и сближают с четвероногими? Какое значение имело каждое из них?
Разбор
Утрата жаберных крышек и отделение черепа от плечевого пояса — появилась шея, голову можно поворачивать без поворота тела. Уплощённая голова с глазами на темени и увеличенные глазницы — можно выглядывать из воды и видеть далеко. Удлинённое рыло и укороченная заглазничная часть — переход от всасывания к захвату добычи челюстями. Укороченный подвесок и широкое брызгальце — предпосылки среднего уха.
Задание 3
Глазницы предков четвероногих за время перехода к суше выросли в среднем с 13 до 36 мм. Во сколько раз выросли диаметр глаза и площадь зрачка (при пропорциональном росте)? Почему увеличение глаз дало выигрыш в воздухе, но почти не дало его под водой?
Разбор
Диаметр: 36 / 13 ≈ 2,8 раза; площадь зрачка пропорциональна квадрату: (36 / 13)² ≈ 7,7 раза. В воде дальность зрения ограничивается поглощением и рассеянием света в мутной воде — всего несколько метров, и больший глаз мало что добавляет. В воздухе свет почти не поглощается, и дальность ограничена чувствительностью глаза; крупный глаз собирает больше света и видит на сотни метров, поэтому выглядывание из воды стало очень выгодным.
Задание 4
Объясните, почему наземным позвоночным понадобилось среднее ухо, и какие структуры рыб послужили для него материалом.
Разбор
Акустические сопротивления воздуха и тканей тела различаются в тысячи раз, и почти вся энергия звука из воздуха отражается от тела. Нужен согласователь: тонкая перепонка большой площади и рычаг, передающий колебания на маленькое окно внутреннего уха с увеличенным давлением. Материал: подвесок (гиомандибула) второй дуги, переставший поддерживать челюсть, стал стремечком; брызгальце (жаберная щель между первой и второй дугами) стало полостью среднего уха и слуховой трубой.
Задание 5
Что такое височные окна? Назовите три типа черепа по Осборну и приведите примеры животных. Каково функциональное значение окон?
Разбор
Отверстия в височной области черепа позади глазницы. Анапсидный (без окон): ранние амниоты, парейазавры, черепахи (вторично). Синапсидный (одно нижнее окно): пеликозавры, терапсиды, млекопитающие (окно слилось с глазницей, осталась скуловая дуга). Диапсидный (два окна): гаттерия, ящерицы и змеи (дуги частично утрачены), крокодилы, динозавры, птицы. Окна дают место сокращающимся челюстным мышцам и опору их прикреплению по краям, облегчают череп в участках без нагрузки.
Задание 6
Почему черепах сейчас относят к диапсидам, хотя височных окон у них нет? Какие данные это подтверждают?
Разбор
Молекулярные данные помещают черепах рядом с архозаврами (крокодилами и птицами), то есть внутри диапсид. Ископаемые: у триасового паппохелиса два височных окна, у молодого пермского эвнотозавра есть верхнее височное окно, которое закрывается у взрослых. Сплошной череп черепах — вторичное приспособление (прочная голова, у многих — вырезки на заднем крае для мышц).
Задание 7
Объясните, как змея проглатывает добычу, которая шире её головы. Какие особенности черепа это позволяют? Почему мозг змеи при этом защищён лучше, чем у ящерицы?
Разбор
Половины нижней челюсти не срастаются, а соединены эластичной связкой; квадратная кость длинная и подвижна, сустав отнесён назад; обе височные дуги утрачены; кости нёба и верхней челюсти двигаются независимо, и змея поочерёдно «шагает» правой и левой сторонами челюстей по добыче. Мозговая коробка змеи полностью закрыта костью: лобные и теменные кости опускаются вниз и окружают мозг, тогда как у ящериц передняя часть боковой стенки перепончатая; это защищает мозг от давления крупной добычи.
Задание 8
Какие особенности черепа птиц связаны с полётом и способом питания? Что такое педоморфоз и как он проявился в черепе птиц?
Разбор
Связанные с полётом: облегчённый череп, тонкие пневматизированные кости, утрата зубов и тяжёлых челюстей (клюв лёгок), сращение костей. С питанием и ориентацией: роговой клюв разной формы, подвижное надклювье (кинетизм), огромные глазницы. Педоморфоз — сохранение у взрослых пропорций детёныша предка: у птиц большие глазницы и мозговая коробка, короткая морда, как у детёнышей хищных динозавров.
Задание 9
Перечислите изменения черепа в ряду синапсид от пеликозавров к млекопитающим. Какое значение имели вторичное нёбо и носовые раковины?
Разбор
Расширение височного окна и слияние его с глазницей, сагиттальный гребень, скуловая дуга и жевательная мышца, вторичное нёбо, дифференцировка зубов, увеличение зубной кости и уменьшение остальных костей нижней челюсти, новый сустав зубной и чешуйчатой костей, переход костей сустава в среднее ухо, два затылочных мыщелка, расширение мозговой коробки. Вторичное нёбо разделяет носовой и ротовой пути и позволяет дышать во время жевания и сосания; носовые раковины согревают и увлажняют воздух и сберегают воду и тепло — оба признака связывают с высоким уровнем обмена веществ и теплокровностью.
Задание 10
Как могла смениться функция челюстного сустава, если животное не может жить без работающего сустава? Приведите палеонтологические доказательства.
Разбор
Через промежуточную стадию с двумя суставами одновременно: старым (квадратная — сочленовная) и новым (зубная — чешуйчатая). Пока новый сустав принимал нагрузку, старые кости уменьшались и освобождались для проведения звука. Доказательства: цинодонт диартрогнатус («двойной сустав»), морганукодон с двумя суставами; яноконодон и ляоконодон, у которых косточки уже вне сустава, но связаны с челюстью окостеневшим меккелевым хрящом. Развитие: у зародышей млекопитающих молоточек связан с меккелевым хрящом, у новорождённых сумчатых челюсть временно сочленяется через молоточек и наковальню.
Задание 11
Установите соответствие между костью рептилии и структурой млекопитающего: 1) квадратная; 2) сочленовная; 3) угловая; 4) подвесок (стремечко рептилий); 5) зубная. Структуры: А) молоточек; Б) наковальня; В) стремечко; Г) барабанная кость; Д) нижняя челюсть.
Разбор
1 — Б, 2 — А, 3 — Г, 4 — В, 5 — Д.
Задание 12
Барабанное ухо возникло у разных групп наземных позвоночных независимо. Какие факты на это указывают? Как называется такое явление в эволюции и чем оно отличается от гомологии?
Разбор
У бесхвостых амфибий, чешуйчатых, архозавров, черепах и млекопитающих барабанная перепонка крепится к разным костям, полость среднего уха устроена по-разному, у млекопитающих три косточки, у остальных одна; у ранних представителей каждой ветви барабанного уха нет, оно появляется в основном в триасе отдельно в каждой линии. Это конвергенция (параллелизм): сходная функция и строение у неродственных структур в силу сходных требований среды. Гомология — сходство по происхождению: стремечко всех четвероногих гомологично подвеску рыб, но барабанные уши как целые органы не гомологичны.
Задание 13
Сколько костей в черепе взрослого человека без слуховых косточек и подъязычной кости? Сколько вместе с ними? Назовите кости мозгового отдела.
Разбор
Без слуховых косточек и подъязычной кости — 22 (8 в мозговом отделе и 14 в лицевом). Вместе с шестью слуховыми косточками — 28, с подъязычной — 29. Мозговой отдел: лобная, две теменные, затылочная, две височные, клиновидная, решётчатая.
Задание 14
Сформулируйте закон Уиллистона и приведите примеры из эволюции черепа. Означает ли уменьшение числа костей упрощение черепа?
Разбор
В эволюции число однотипных частей организма уменьшается, а оставшиеся специализируются. Примеры: нижняя челюсть из семи костей у пеликозавров и из одной у млекопитающих; срастание костей черепа птиц; утрата многих покровных костей у земноводных и млекопитающих; слияние парных лобных и других костей. Не означает: сетевой анализ показывает, что оставшиеся кости соединяются с большим числом соседей, а череп разделяется на чёткие модули — устройство становится сложнее, а специализация выше.
Задание 15 (олимпиадное)
Акустическое сопротивление воздуха 415 Па·с/м, воды (и мягких тканей) 1,48·10⁶ Па·с/м. Найдите долю энергии звука, проходящую из воздуха в ткани (T = 4Z₁Z₂/(Z₁ + Z₂)²), и выразите потерю в децибелах. Площадь барабанной перепонки человека 55 мм², основания стремечка 3,2 мм², рычаг косточек 1,3. Во сколько раз возрастает давление и сколько это децибел?
Разбор
T = 4 · 415 · 1,48·10⁶ / (1,48·10⁶ + 415)² ≈ 1,12·10⁻³ ≈ 0,11 %; потеря 10·lg(1,12·10⁻³) ≈ −29,5 дБ, около 30 дБ. Выигрыш по давлению: (55 / 3,2) · 1,3 ≈ 17,2 · 1,3 ≈ 22,3 раза; в децибелах 20·lg 22,3 ≈ 27 дБ. Среднее ухо возвращает около 27 из 30 дБ, теряемых на границе воздуха и тканей.
Задание 16 (олимпиадное)
Жевательная мышца прикреплена к нижней челюсти в 3 см от сустава и развивает силу 600 Н. Какова сила укуса передними зубами (9 см от сустава) и щёчными зубами (4,5 см)? Как изменится сила укуса передними зубами, если морда укоротится до 6 см? Почему у хищников с мощным укусом короткая морда, а у рыбоядных животных — длинная?
Разбор
Челюсть — рычаг: F = 600 · 3 / 9 = 200 Н передними зубами; 600 · 3 / 4,5 = 400 Н щёчными. При длине 6 см: 600 · 3 / 6 = 300 Н — в 1,5 раза больше. Короткая морда даёт большое механическое преимущество и сильный укус (кошачьи, гиены); длинная морда даёт большую скорость смыкания кончика челюстей и широкий захват, что важно при ловле быстрой и скользкой добычи (гавиал, дельфины), где сила менее важна.
Литература
- Kardong K. V. Vertebrates: Comparative Anatomy, Function, Evolution. 8th ed. New York: McGraw-Hill, 2019.
- Maier W., Ruf I. Evolution of the mammalian middle ear: a historical review // Journal of Anatomy. 2016. Vol. 228. P. 270–283.
- Sidor C. A. Simplification as a trend in synapsid cranial evolution // Evolution. 2001. Vol. 55. P. 1419–1442.
- Daeschler E. B., Shubin N. H., Jenkins F. A. A Devonian tetrapod-like fish and the evolution of the tetrapod body plan // Nature. 2006. Vol. 440. P. 757–763.
- Meng J., Wang Y., Li C. Transitional mammalian middle ear from a new Cretaceous Jehol eutriconodont // Nature. 2011. Vol. 472. P. 181–185.
- Jiang X., Iseki S., Maxson R. E., Sucov H. M., Morriss-Kay G. M. Tissue origins and interactions in the mammalian skull vault // Developmental Biology. 2002. Vol. 241. P. 106–116.
- Дзержинский Ф. Я., Васильев Б. Д., Малахов В. В. Зоология позвоночных. 2-е изд. М.: Академия, 2013.
- Zhu M., Ahlberg P. E. The origin of the internal nostril of tetrapods // Nature. 2004. Vol. 432. P. 94–97.
- Clack J. A. Gaining Ground: The Origin and Evolution of Tetrapods. 2nd ed. Bloomington: Indiana University Press, 2012.
- MacIver M. A., Schmitz L., Mugan U. et al. Massive increase in visual range preceded the origin of terrestrial vertebrates // Proceedings of the National Academy of Sciences USA. 2017. Vol. 114. P. E2375–E2384.
- Clack J. A., Ahlberg P. E., Finney S. M. et al. A uniquely specialized ear in a very early tetrapod // Nature. 2003. Vol. 425. P. 65–69.
- Brazeau M. D., Ahlberg P. E. Tetrapod-like middle ear architecture in a Devonian fish // Nature. 2006. Vol. 439. P. 318–321.
- Christensen-Dalsgaard J., Carr C. E. Evolution of a sensory novelty: tympanic ears and the associated neural processing // Brain Research Bulletin. 2008. Vol. 75. P. 365–370.
- Osborn H. F. The reptilian subclasses Diapsida and Synapsida and the early history of the Diaptosauria // Memoirs of the American Museum of Natural History. 1903. Vol. 1. P. 449–507.
- Schoch R. R., Sues H.-D. A Middle Triassic stem-turtle and the evolution of the turtle body plan // Nature. 2015. Vol. 523. P. 584–587.
- Bever G. S., Lyson T. R., Field D. J., Bhullar B.-A. S. Evolutionary origin of the turtle skull // Nature. 2015. Vol. 525. P. 239–242.
- Gignac P. M., Erickson G. M. The biomechanics behind extreme osteophagy in Tyrannosaurus rex // Scientific Reports. 2017. Vol. 7. 2012.
- Bhullar B.-A. S., Marugán-Lobón J., Racimo F. et al. Birds have paedomorphic dinosaur skulls // Nature. 2012. Vol. 487. P. 223–226.
- Bhullar B.-A. S., Morris Z. S., Sefton E. M. et al. A molecular mechanism for the origin of a key evolutionary innovation, the bird beak and palate, revealed by an integrative approach to major transitions in vertebrate history // Evolution. 2015. Vol. 69. P. 1665–1677.
- Meredith R. W., Zhang G., Gilbert M. T. P., Jarvis E. D., Springer M. S. Evidence for a single loss of mineralized teeth in the common avian ancestor // Science. 2014. Vol. 346. 1254390.
- Abzhanov A., Protas M., Grant B. R., Grant P. R., Tabin C. J. Bmp4 and morphological variation of beaks in Darwin’s finches // Science. 2004. Vol. 305. P. 1462–1465.
- Kemp T. S. The Origin and Evolution of Mammals. Oxford: Oxford University Press, 2005.
- Hillenius W. J. The evolution of nasal turbinates and mammalian endothermy // Paleobiology. 1992. Vol. 18. P. 17–29.
- Rowe T. B., Macrini T. E., Luo Z.-X. Fossil evidence on origin of the mammalian brain // Science. 2011. Vol. 332. P. 955–957.
- Ромер А., Парсонс Т. Анатомия позвоночных: в 2 т. / пер. с англ. М.: Мир, 1992.
- Luo Z.-X., Chen P., Li G., Chen M. A new eutriconodont mammal and evolutionary development in early mammals // Nature. 2007. Vol. 446. P. 288–293.
- Neubauer S., Hublin J.-J., Gunz P. The evolution of modern human brain shape // Science Advances. 2018. Vol. 4. eaao5961.
- Rijli F. M., Mark M., Lakkaraju S. et al. A homeotic transformation is generated in the rostral branchial region of the head by disruption of Hoxa-2, which acts as a selector gene // Cell. 1993. Vol. 75. P. 1333–1349.
- Depew M. J., Lufkin T., Rubenstein J. L. R. Specification of jaw subdivisions by Dlx genes // Science. 2002. Vol. 298. P. 381–385.
- Fondon J. W., Garner H. R. Molecular origins of rapid and continuous morphological evolution // Proceedings of the National Academy of Sciences USA. 2004. Vol. 101. P. 18058–18063.
- Esteve-Altava B., Marugán-Lobón J., Botella H., Rasskin-Gutman D. Structural constraints in the evolution of the tetrapod skull complexity: Williston’s law revisited using network models // Evolutionary Biology. 2013. Vol. 40. P. 209–219.
Обсуждение
Загружаем обсуждение…