
В Средиземном море на камнях живёт зелёный червь бонеллия. Самка размером со сливу высовывает из расщелины длинный раздвоенный хоботок. Самцов рядом не видно: они длиной всего 1–3 мм и живут внутри половых путей самки, где только и делают, что оплодотворяют яйца. В 1914 году швейцарский зоолог Ф. Бальцер выяснил, что у бонеллии пол не записан в генах заранее. Личинка, которая опустилась на дно, становится самкой; личинка, которая села на хоботок взрослой самки, под действием выделяемых ею веществ превращается в крошечного самца и уползает внутрь её тела [1]. Один и тот же набор генов даёт самца или самку в зависимости от того, где оказалась личинка.
У человека пол определяется Y-хромосомой с геном SRY, и кажется, что так должно быть у всех. Но это лишь один из многих способов. Ниже разобрано, как определяется пол у дрозофилы, нематоды, птиц, бабочек, пчёл, рыб, черепах, крокодилов, ящериц, растений и гермафродитов, почему у одних животных пол зависит от генов, а у других — от температуры или соседей, и как это связано с тем, что нужно знать на ЕГЭ. Это третья статья серии о генетике пола; основы — в статьях «Генетика пола: аутосомы, половые хромосомы и определение пола» и «Определение пола у человека».
- 1. Общая схема: сигнал, переключатель, исполнители
- 2. Дрозофила: считают X-хромосомы
- 3. Нематода: гермафродиты и самцы
- 4. Птицы: доза гена на Z-хромосоме
- 5. Бабочки: пол определяет малая РНК
- 6. Пчёлы, осы, муравьи: гаплодиплоидия
- 7. Рыбы: переключатели сменяются постоянно
- 8. Смена пола у рыб
- 9. Рептилии: пол задаёт температура
- 10. Потепление и черепахи
- 11. Зачем определять пол температурой
- 12. Земноводные
- 13. Беспозвоночные: соседи и бактерии
- 14. Растения
- 15. Виды из одних самок
- 16. Гермафродиты
- 17. Грибы: тысячи «полов»
- 18. Как отличить генетическое определение пола от средового
- 19. Почему так много способов
- 20. История изучения
- 21. Частые ошибки
- 22. Интересные факты
- 23. Частые вопросы
- 24. Что пока не решено
- 25. ЕГЭ
- 26. Для олимпиад
- 27. Задания с разбором
- Литература
1. Общая схема: сигнал, переключатель, исполнители
Любой механизм определения пола можно представить как цепочку. В начале — сигнал: набор хромосом, доза гена, температура, присутствие соседей. Сигнал действует на главный ген-переключатель, который выбирает между двумя программами развития. Дальше работают гены-исполнители, которые строят мужские или женские органы и клетки [2].
- Хромосомноепол задают половые хромосомы: XY, XO, ZW, ZO — млекопитающие, птицы, большинство насекомых
- По набору хромосомгаплодиплоидия: самцы гаплоидны — пчёлы, осы, муравьи, некоторые клещи
- Многими генамипол зависит от суммы аллелей нескольких генов — некоторые рыбы
- Температуракрокодилы, многие черепахи, некоторые ящерицы и рыбы
- Социальная средарыбы-клоуны, губаны, моллюск крепидула — пол меняется в зависимости от соседей
- Место развитияморской червь бонеллия: личинка на самке становится самцом
- Симбионтыбактерии вольбахии превращают генетических самцов мокриц в самок
- генетическое определение
- средовое определение
Удивительно, что начала цепочек у разных животных совсем непохожи, а концы — родственны. Почти у всех животных в числе последних звеньев работают гены семейства DMRT: у человека и птиц — DMRT1, у дрозофилы — doublesex, у нематоды — mab-3. Белки этого семейства связываются с ДНК одинаковым участком и включают гены, нужные самцам. Переключатели вверху цепочки сменялись в эволюции многократно, а исполнители внизу сохранились сотни миллионов лет [2].
- МлекопитающиеSRY на Y-хромосоме → SOX9
- ПтицыDMRT1 на Z-хромосоме: две копии (ZZ) — самец, одна (ZW) — самка
- Рыба медакаDMY — копия гена dmrt1, оказавшаяся на Y-хромосоме
- Радужная форельsdY — ген, произошедший от гена иммунной системы
- Тутовый шелкопрядмалая РНК Fem с W-хромосомы выключает мужской ген Masc
- Дрозофилачисло X-хромосом → Sxl → tra → doublesex
- Медоносная пчелаген csd: гетерозигота — самка, одна аллель — самец
- Хурмамалая РНК OGI с Y-хромосомы выключает «женский» ген MeGI
- позвоночные
- насекомые и растения
Определение пола делят на два больших типа. При генетическом пол известен с момента оплодотворения: он зависит от хромосом или генов зиготы. При средовом пол выбирается позже, во время развития, под действием внешних условий. Но, как будет видно, граница между ними не всегда ясна.
2. Дрозофила: считают X-хромосомы
У дрозофилы, как и у человека, самки XX, а самцы XY. Но в 1916 году К. Бриджес обнаружил, что мухи XXY — нормальные самки, а мухи XO — самцы, хотя и бесплодные. Значит, Y-хромосома у дрозофилы пол не определяет: она нужна только для образования сперматозоидов. Через несколько лет Бриджес получил мух с тремя наборами аутосом. Мухи с тремя X и тремя наборами аутосом были самками, с двумя X и тремя наборами — промежуточными интерсексами [3]. Он сделал вывод, что пол дрозофилы определяется отношением числа X-хромосом к числу наборов аутосом: 1 (2X : 2A) — самка, 0,5 (1X : 2A) — самец, промежуточное значение — интерсекс.
Современные исследования уточнили эту картину: главное значение имеет само число X-хромосом, а наборы аутосом влияют косвенно, через размер клеток и ядер [4]. В X-хромосоме дрозофилы есть несколько генов, белки которых работают как «счётчики»: при двух X их в раннем зародыше вдвое больше, и этого достаточно, чтобы включить ген-переключатель Sex-lethal.
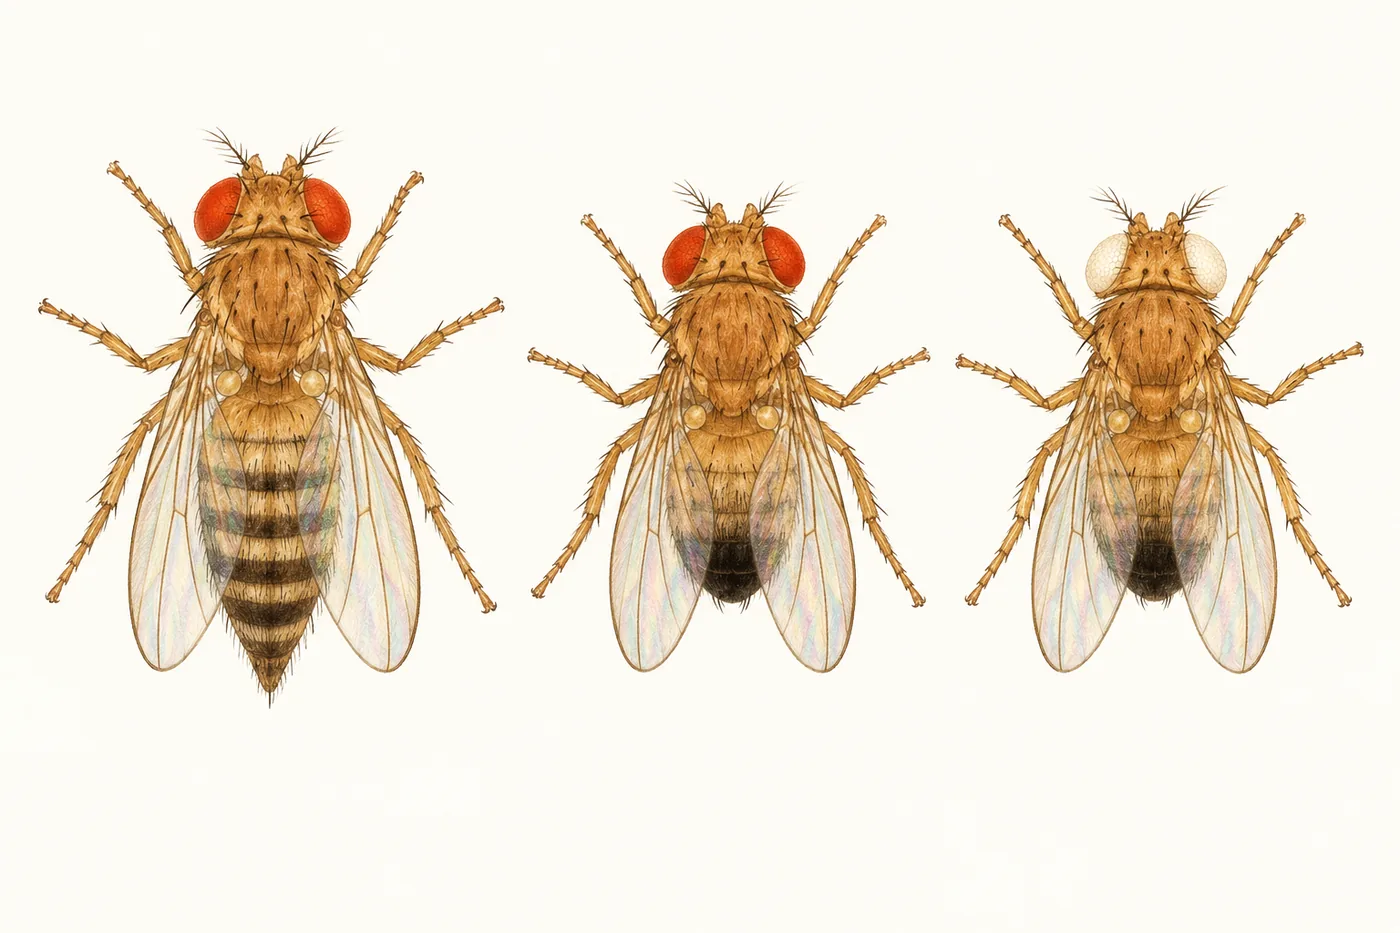
Важная особенность механизма дрозофилы — то, что каждая клетка определяет свой пол самостоятельно, по своим хромосомам. У млекопитающих большинство половых признаков создают гормоны семенника, а у мух гормоны почти не участвуют. Поэтому у мух нередки гинандроморфы — особи, одна половина тела которых мужская, другая женская: если в зиготе XX при первом делении одна X-хромосома потерялась, половина клеток становится XO и строит мужскую половину тела.
Ген Sex-lethal назван так потому, что мутации в нём смертельны для одного пола. Дело в том, что он управляет не только развитием половых признаков, но и компенсацией дозы генов X-хромосомы. У самцов дрозофилы единственная X работает вдвое активнее, чем каждая из двух X у самок, — так выравнивается количество белков. Если у самки ошибочно не включится Sex-lethal, обе её X начнут работать «по-мужски» с двойной силой, и зародыш погибнет. Подробнее о компенсации дозы — в статье «Генетическая структура половых хромосом».
3. Нематода: гермафродиты и самцы
У нематоды ценорабдитис почти все особи — гермафродиты с двумя X-хромосомами: в их половой железе сначала образуются сперматозоиды, а затем яйцеклетки, и гермафродит может оплодотворить сам себя. Самцы, XO, возникают редко — примерно один на тысячу потомков — из-за нерасхождения X-хромосомы в мейозе. Как и у дрозофилы, нематода «считает» X-хромосомы: при двух X ген-переключатель xol-1 выключается, и развивается гермафродит; при одной — включается, и развивается самец [5].
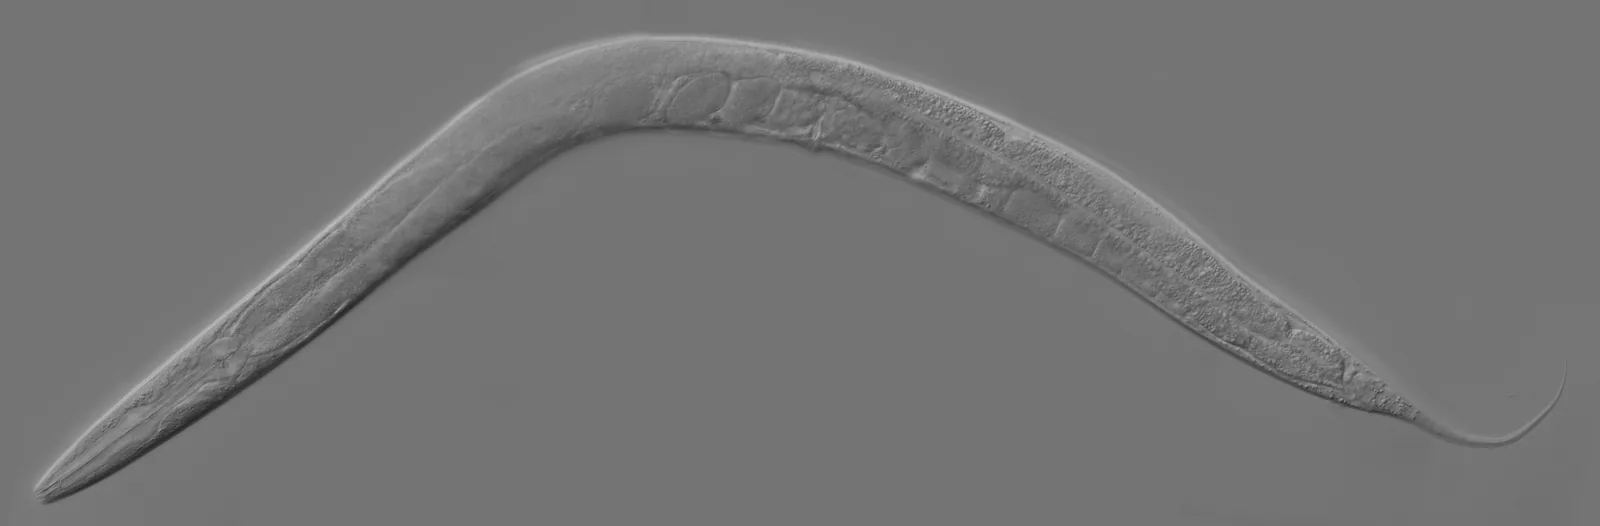
Почему гермафродиты, а не самки? Гермафродит, способный к самооплодотворению, может основать колонию из одной особи, попав на новое место, а нематода живёт в разлагающихся растительных остатках, которые появляются и исчезают. Самцы позволяют время от времени скрещиваться и смешивать гены. Такая смешанная система встречается у многих организмов, живущих в нестабильной среде.
4. Птицы: доза гена на Z-хромосоме
У птиц самки гетерогаметны (ZW), самцы — гомогаметны (ZZ). На W-хромосоме птиц нет гена, подобного SRY. Пол определяется дозой гена DMRT1, который лежит на Z-хромосоме: у самца две его копии, у самки одна. В 2009 году австралийские исследователи снизили работу DMRT1 в зародышах-петушках ZZ с помощью интерференции РНК, и их гонады начали развиваться в яичники [6].
У птиц, в отличие от млекопитающих, нет полной инактивации одной из Z-хромосом у самцов, и многие гены Z работают у петуха в более высокой дозе, чем у курицы. Кроме того, как и у дрозофилы, многие половые признаки клеток птиц определяются их собственным набором хромосом, а не только гормонами: у кур-гинандроморфов половина тела ZZ остаётся «петушиной», несмотря на общие гормоны [7].
5. Бабочки: пол определяет малая РНК
У бабочек, как у птиц, самки ZW, а самцы ZZ, но механизм совсем другой — и он оказался неожиданным. В 2014 году японские генетики выяснили, что у тутового шелкопряда W-хромосома несёт не ген белка, а участок, с которого считывается крошечная молекула РНК длиной около 29 нуклеотидов — piРНК Fem. Она находит и разрушает РНК гена Masc, лежащего на Z-хромосоме, который нужен для мужского развития. У самки (ZW) Fem есть, и Masc выключен; у самца (ZZ) Fem нет, Masc работает, и развивается самец [8].
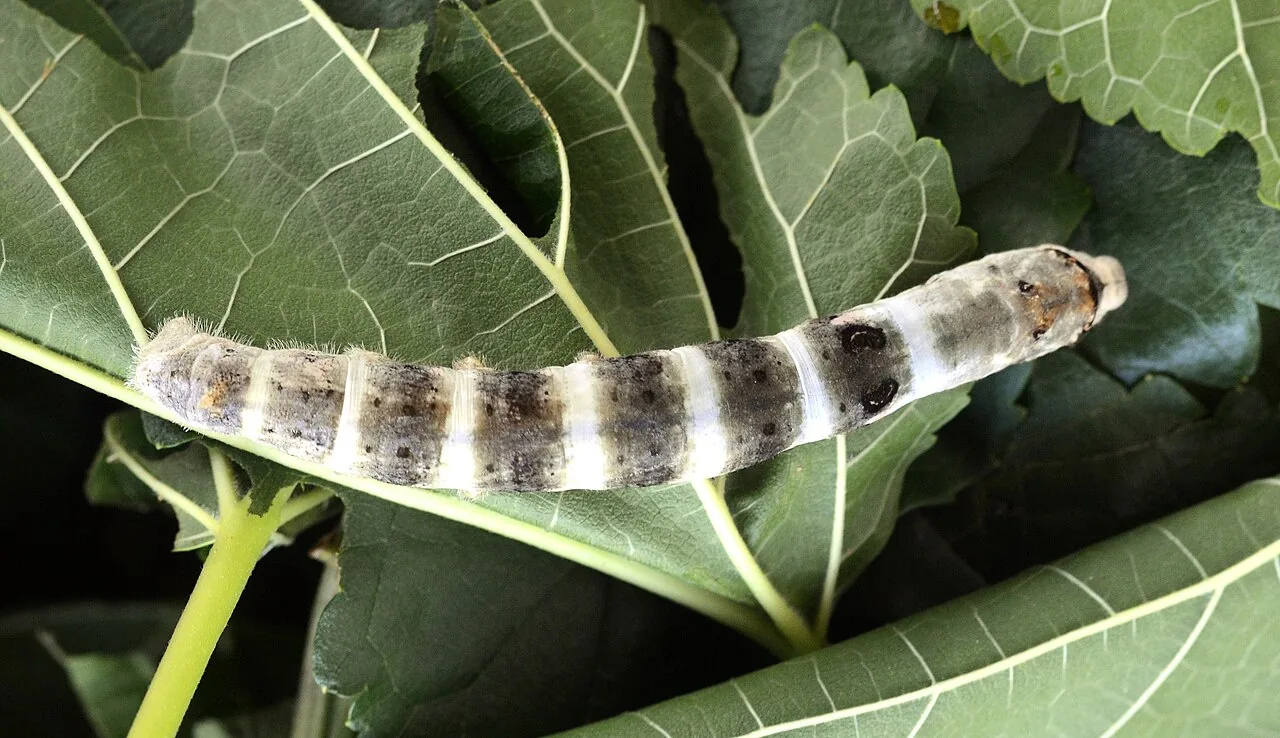
Это первый известный случай, когда пол животного определяет не белок, а малая РНК. Для шелководства открытие имеет практическое значение: самцы шелкопряда дают на 20–25 % больше шёлка, чем самки, и знание механизма помогает выводить породы, в которых выживают только самцы.
6. Пчёлы, осы, муравьи: гаплодиплоидия
У перепончатокрылых нет половых хромосом. Самки развиваются из оплодотворённых яиц и диплоидны, самцы — из неоплодотворённых и гаплоидны. Такую систему называют гаплодиплоидией. Матка медоносной пчелы запасает сперму трутней и, откладывая яйцо, сама «решает», оплодотворить ли его: в маленьких ячейках сотов откладывает оплодотворённые яйца, из которых выйдут рабочие пчёлы, в крупных трутневых — неоплодотворённые [9].
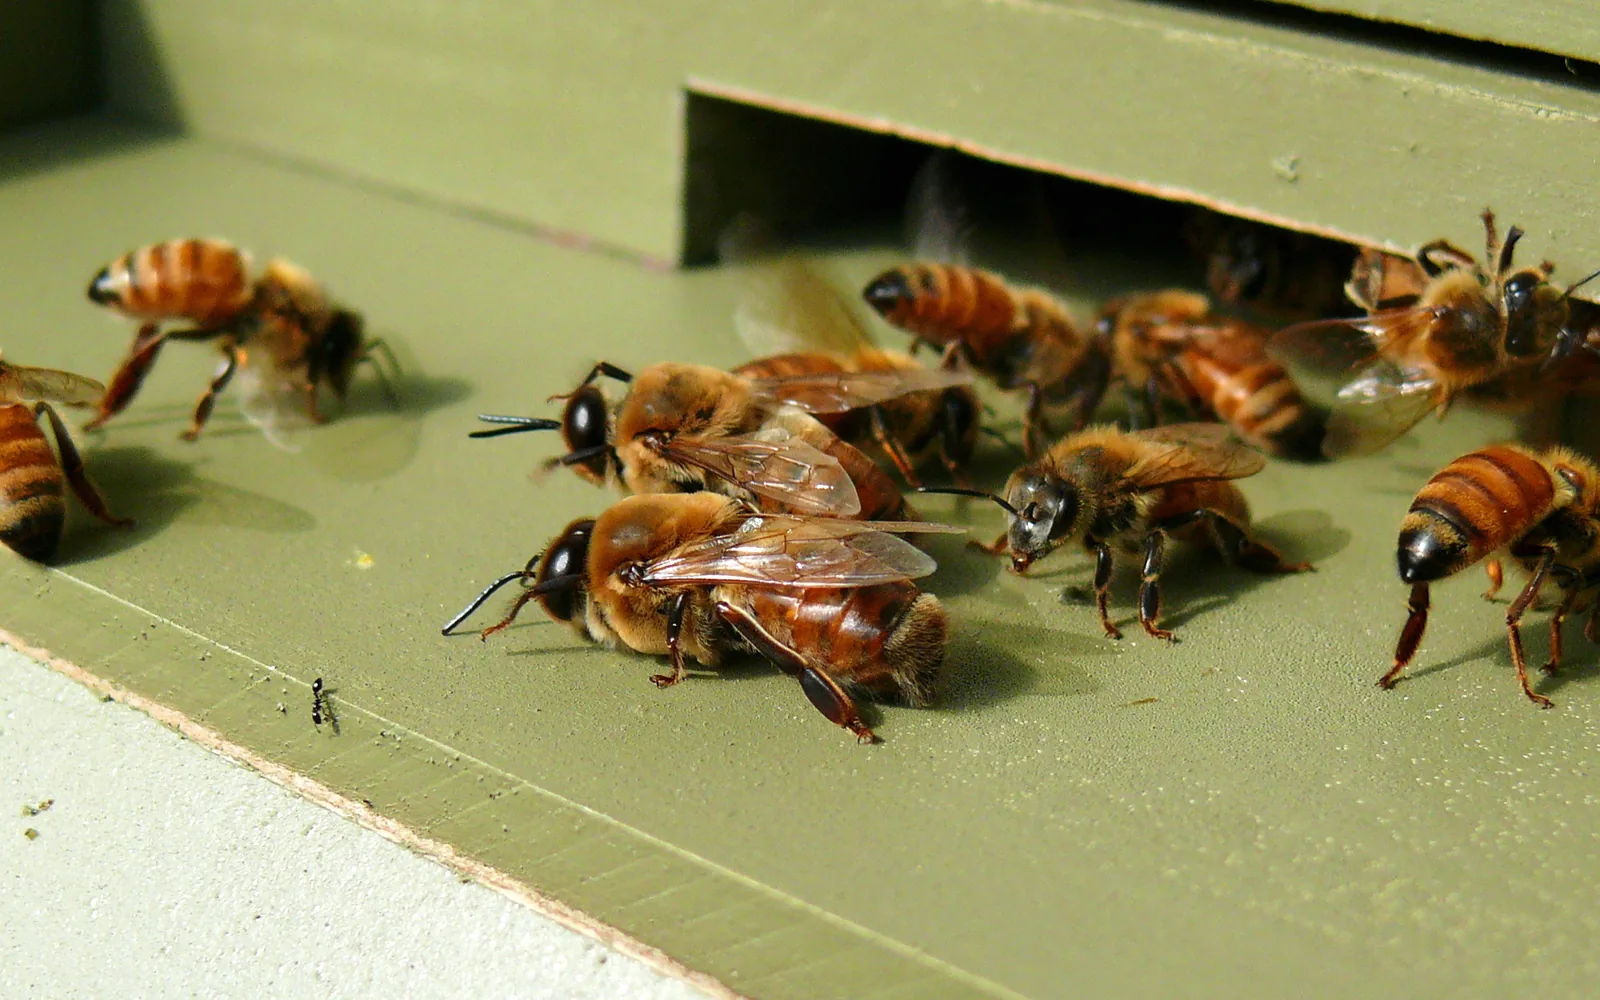
На молекулярном уровне у пчелы пол определяет ген csd (сложный определитель пола), у которого в популяциях существуют десятки аллелей. Если особь гетерозиготна — несёт два разных аллеля, — развивается самка. Если у особи только один аллель (гаплоидный трутень) или два одинаковых (диплоидная гомозигота), развивается самец [9]. Диплоидных самцов рабочие пчёлы распознают и съедают ещё личинками. Поэтому близкородственное скрещивание для пчёл особенно вредно: оно увеличивает долю гомозигот по csd, и значительная часть расплода погибает. Пчеловоды учитывают это при выведении маток.
Гаплодиплоидия — одна из причин, по которой у перепончатокрылых так часто возникала общественная жизнь. Английский биолог У. Гамильтон в 1964 году заметил, что сёстры от одного отца в такой системе делят в среднем 3/4 генов — больше, чем мать с дочерью (1/2). Рабочей пчеле генетически выгоднее выращивать сестёр, чем собственное потомство [10]. Позже выяснилось, что дело не только в этом — например, матки многих видов спариваются со многими самцами, и родство сестёр снижается, — но идея Гамильтона заложила основу теории родственного отбора.
7. Рыбы: переключатели сменяются постоянно
Рыбы — рекордсмены по разнообразию механизмов определения пола. Среди них есть виды с XY и ZW, с температурным определением пола, с многими генами, влияющими на пол, и виды, меняющие пол в течение жизни [2].
У маленькой японской рыбки медаки в 2002 году нашли ген-переключатель DMY на Y-хромосоме — второй после SRY известный ген, определяющий пол у позвоночных. Он оказался копией гена dmrt1, которая около десяти миллионов лет назад удвоилась и попала на одну из хромосом, ставшую с тех пор Y [11]. У близких видов медаки, разошедшихся всего несколько миллионов лет назад, DMY нет — у них пол определяют другие гены.
У радужной форели главный ген пола sdY произошёл от гена, который у других рыб участвует в иммунной защите от вирусов [12]. У разных видов рыб роль переключателя играют гены антимюллерова гормона, его рецептора, гены факторов роста — каждый раз новый ген «перехватывает» управление уже существующей цепочкой.
У лабораторных линий рыбки данио, одной из главных моделей генетики развития, половых хромосом вообще нет: пол зависит от суммы аллелей нескольких генов и от условий выращивания — плотности, питания, температуры. При этом у диких данио есть половые хромосомы ZW: лабораторные линии их утратили за десятилетия разведения в аквариумах.
8. Смена пола у рыб
Многие морские рыбы меняют пол в течение жизни. Это последовательный гермафродитизм: особь сначала функционирует как самец, а потом как самка, или наоборот [13].
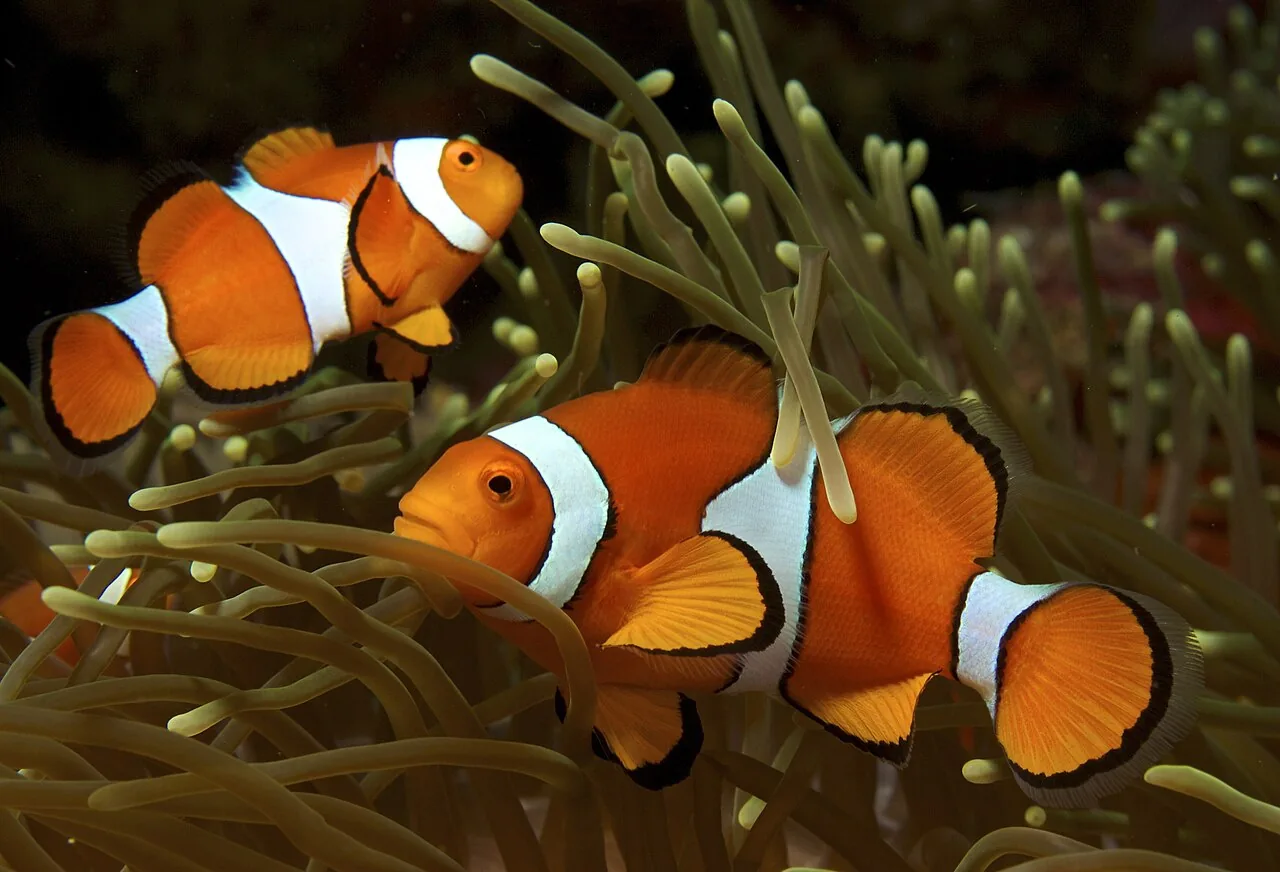
Рыбы-клоуны живут небольшими группами среди щупалец актинии. Самая крупная рыба в группе — самка, вторая по размеру — самец, остальные — неразмножающиеся молодые самцы. Если самка погибает, самец за несколько недель превращается в самку: его семенник перестраивается в яичник. А самый крупный из молодых становится новым размножающимся самцом. Так группа без поиска новых партнёров восстанавливает пару.
У губана-синеголова, живущего на коралловых рифах Карибского моря, наоборот, сначала все рыбы — самки или мелкие самцы, а в группе доминирует крупный ярко окрашенный самец. Если его убрать, самая крупная самка уже через несколько часов начинает вести себя как самец, а через десять дней её яичник превращается в семенник, производящий сперматозоиды. В 2019 году показали, что смена пола начинается с гормонов стресса и сопровождается перестройкой работы тысяч генов в гонаде [13].
Почему одни рыбы сначала самцы, а другие — самки? Объяснение даёт размер. Самка тем плодовитее, чем она крупнее: у неё больше икры. Самец у рыб-клоунов размножается с одной самкой, и его успех мало зависит от размера, — выгоднее быть самцом в молодости и самкой в зрелости. А у губанов крупный самец охраняет территорию и спаривается со многими самками, и его успех сильно растёт с размером, — выгоднее быть самкой в молодости и самцом, когда вырастешь.
9. Рептилии: пол задаёт температура
В 1966 году французский биолог М. Шарнье, изучая в Сенегале ящерицу агаму, обнаружила, что пол её детёнышей зависит от температуры, при которой развивались яйца [14]. Позже такое температурное определение пола нашли у всех крокодилов, у многих черепах, у гаттерии и некоторых ящериц. Половых хромосом у этих видов нет: из одного и того же яйца при одной температуре выйдет самец, при другой — самка.
- Тип Iaхолоднее — самцы, теплее — самки: многие черепахи (красноухая: 26 °C — самцы, 31 °C — самки)
- Тип Ibхолоднее — самки, теплее — самцы: некоторые ящерицы и рыбы
- Тип IIпри низких и высоких температурах — самки, при средних — самцы: крокодилы, некоторые черепахи и ящерицы
Решающим оказывается короткий период в середине развития зародыша, когда закладываются гонады. Температура действует на работу генов в клетках гонады. В 2018 году у красноухой черепахи нашли ключевое звено: фермент KDM6B, который снимает с хроматина метильные метки и тем самым открывает доступ к гену Dmrt1. При «мужской» температуре фермента много, Dmrt1 включается, и развивается семенник. Если работу KDM6B подавить, черепашата при «мужской» температуре становятся самками [15].
Граница между генетическим и температурным определением пола не абсолютна. У австралийской бородатой агамы есть половые хромосомы ZW. Но при инкубации выше 32 °C зародыши ZZ развиваются в самок. В 2015 году такие самки ZZ были найдены и в дикой природе. Они откладывают яйца, и их потомство уже не имеет W-хромосомы — пол у него целиком зависит от температуры. В лаборатории переход от хромосомного определения пола к температурному занял всего одно поколение [16].
10. Потепление и черепахи
Температурное определение пола делает животных уязвимыми к изменению климата. У морских черепах самки рождаются при высокой температуре песка. В 2018 году исследователи определили пол тысяч зелёных черепах, кормящихся у Большого Барьерного рифа. Среди молодых черепах из гнездовий на тёплом северном побережье Австралии оказалось более 99 % самок; среди черепах, вылупившихся несколько десятилетий назад, когда песок был прохладнее, самок было заметно меньше [17].
Пока самцов хватает, потому что один самец спаривается со многими самками. Но если доля самцов будет продолжать снижаться, размножение может нарушиться. Чтобы этого избежать, на некоторых пляжах гнёзда затеняют, поливают прохладной водой или переносят яйца в инкубаторы. Сами черепахи могут приспособиться, откладывая яйца в более прохладные места или в другое время года, — но для долгоживущих животных с медленной сменой поколений эволюционное приспособление может не успеть.
11. Зачем определять пол температурой
Если пол можно надёжно определить хромосомами, зачем полагаться на погоду? В 1977 году американские биологи Э. Чарнов и Дж. Булл предложили объяснение: температурное определение пола выгодно, если условия развития по-разному влияют на успех будущих самцов и самок. Например, если тёплая кладка даёт крупных детёнышей, а крупный размер важнее для самок (они больше откладывают яиц), то лучше, чтобы из тёплых кладок выходили самки [18].
Проверить это было трудно: у животных с температурным определением пола нельзя получить самца и самку при одной и той же температуре. В 2008 году австралийские зоологи Д. Уорнер и Р. Шайн обошли это препятствие у короткоживущей ящерицы-агамы: обрабатывали яйца веществом, подавляющим синтез эстрогенов, и получали самцов при любой температуре. Оказалось, что самцы, развившиеся при «мужской» температуре, оставляли больше потомства, чем самцы из «женской» температуры, и наоборот для самок [19]. Так впервые было доказано, что температурное определение пола приспособительно.
12. Земноводные
У большинства земноводных пол определяется генетически, но половые хромосомы под микроскопом обычно неразличимы. У одних видов самцы гетерогаметны (XY), у других — самки (ZW). У японской морщинистой лягушки обе системы встречаются в разных популяциях одного вида. У многих лягушек и тритонов пол можно изменить, выращивая личинок в воде с половыми гормонами или при необычной температуре: в лаборатории из генетических самцов получают плодовитых самок, и наоборот. Это показывает, что у земноводных генетический сигнал — лишь первое звено, которое легко переопределить.
13. Беспозвоночные: соседи и бактерии
У морского брюхоногого моллюска крепидулы особи живут стопками: одна сидит на другой. Нижние, самые старые, — самки, верхние, молодые, — самцы, а между ними — особи, меняющие пол. Молодая особь, осевшая на стопку, остаётся самцом долго; осевшая отдельно на камень быстро становится самкой. Пол здесь определяется положением и соседями [1].
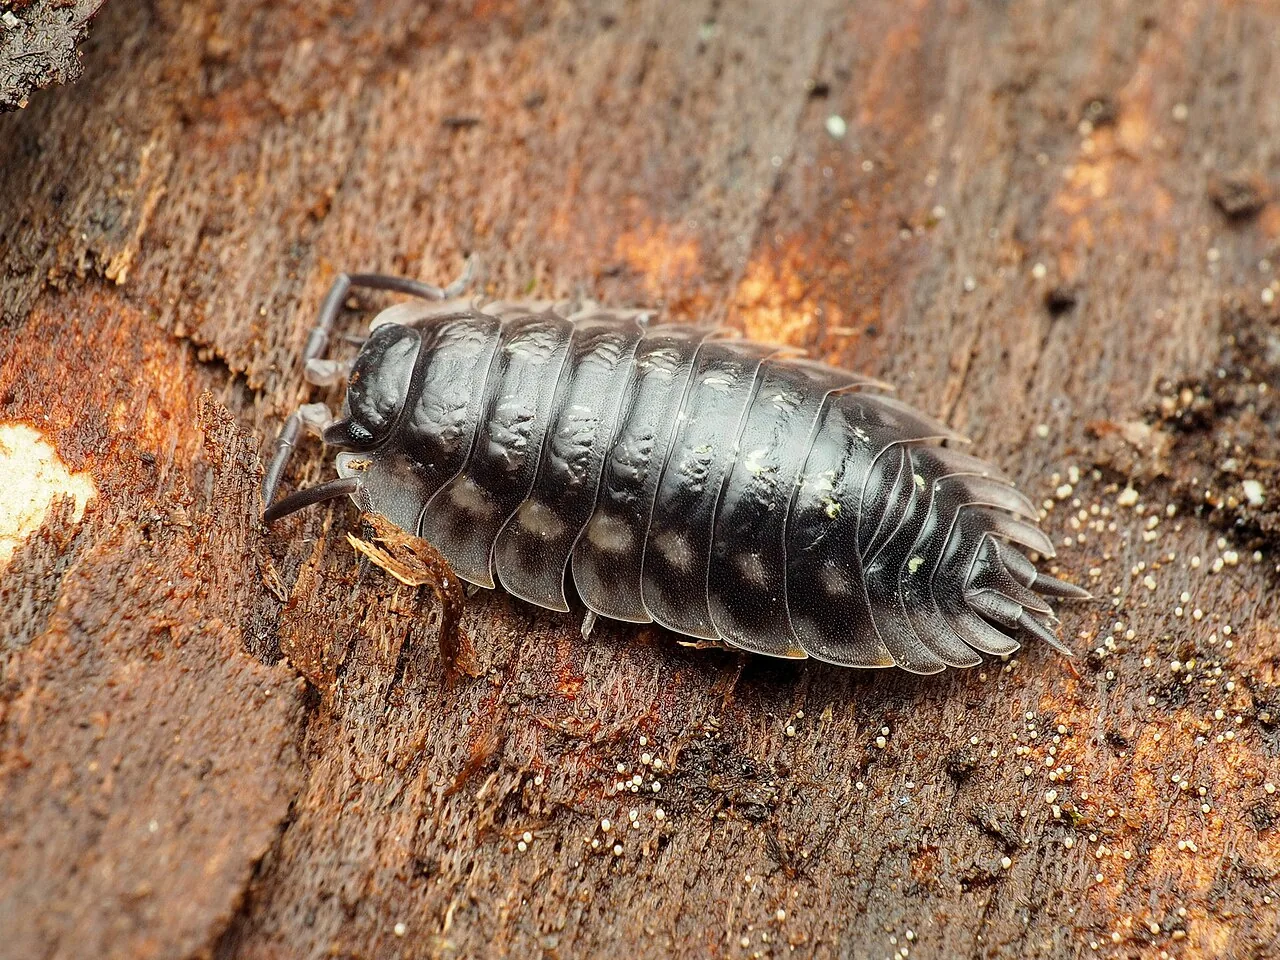
Иногда пол хозяина определяют паразиты. Бактерии рода вольбахия живут в клетках многих членистоногих и передаются только через яйцеклетки: в сперматозоидах почти нет цитоплазмы, и бактерии в них не попадают. Самцы для бактерии — тупик. У наземных ракообразных мокриц вольбахия превращает генетических самцов в функциональных самок, увеличивая число особей, передающих её дальше. В некоторых популяциях мокриц W-хромосома из-за этого вообще исчезла, и пол каждой особи определяется тем, есть ли в ней бактерия [20]. У других насекомых вольбахия убивает зародышей-самцов или вызывает партеногенез.
14. Растения
У большинства цветковых растений цветки обоеполые, и определения пола особи нет. У двудомных растений пол чаще всего определяется генетически, и механизмы оказываются не менее разнообразными, чем у животных [21]. У хурмы Y-хромосома несёт ген, с которого считывается малая РНК OGI; она выключает ген MeGI, подавляющий развитие тычинок, — и растение становится мужским [22]. Механизм поразительно похож на механизм шелкопряда, хотя возник совершенно независимо.
Есть и растения, пол которых зависит от условий. У лесного травянистого растения аризема, родственного аронникам, мелкие особи образуют только мужские соцветия, а крупные, накопившие запасы в клубне, — женские: семена требуют больше ресурсов, чем пыльца. В неблагоприятный год крупное растение может снова стать мужским. У огурца соотношение мужских и женских цветков на одном растении зависит от гормона этилена, длины дня и температуры, и этим пользуются овощеводы.
15. Виды из одних самок
Крайний случай — виды, в которых самцов нет вовсе. Скальные ящерицы Армении, у которых в 1958 году советский герпетолог И. Даревский впервые обнаружил партеногенез у позвоночных, американские ящерицы-хлыстохвосты, некоторые палочники и коловратки размножаются только самками: яйцеклетки развиваются без оплодотворения. Многие такие виды возникли при скрещивании двух родственных видов, и гибридные самки сохранили способность развиваться без самцов.
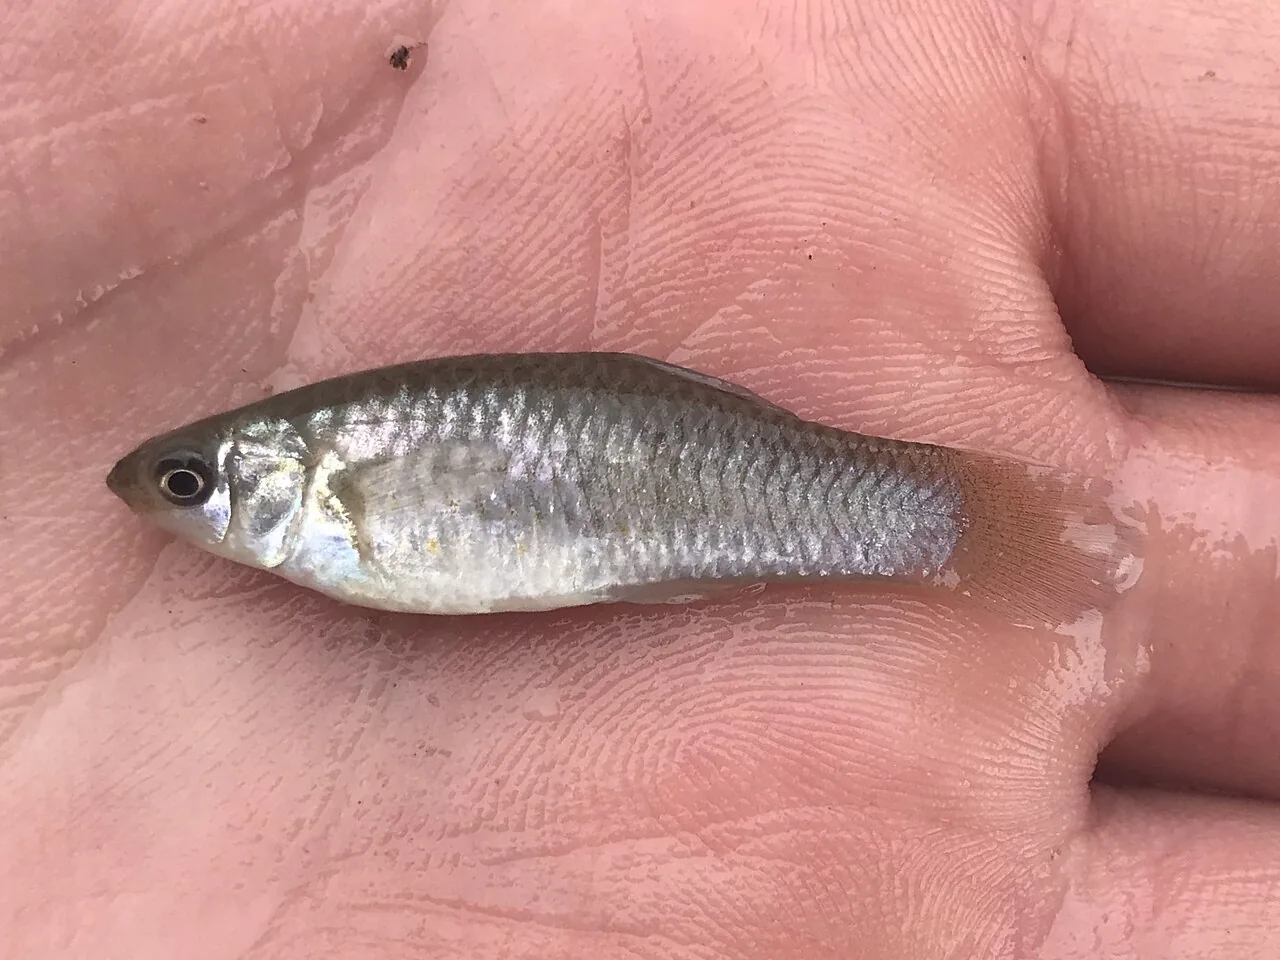
У амазонской моллинезии — маленькой рыбки из рек Мексики и Техаса — самки тоже дают только самок, но им нужны сперматозоиды самцов родственного вида: сперматозоид запускает развитие яйца, а его гены в зародыш не попадают. Для таких видов вопрос «как определяется пол» решён радикально — все потомки самки. Подробнее — в статье «Партеногенез».
16. Гермафродиты
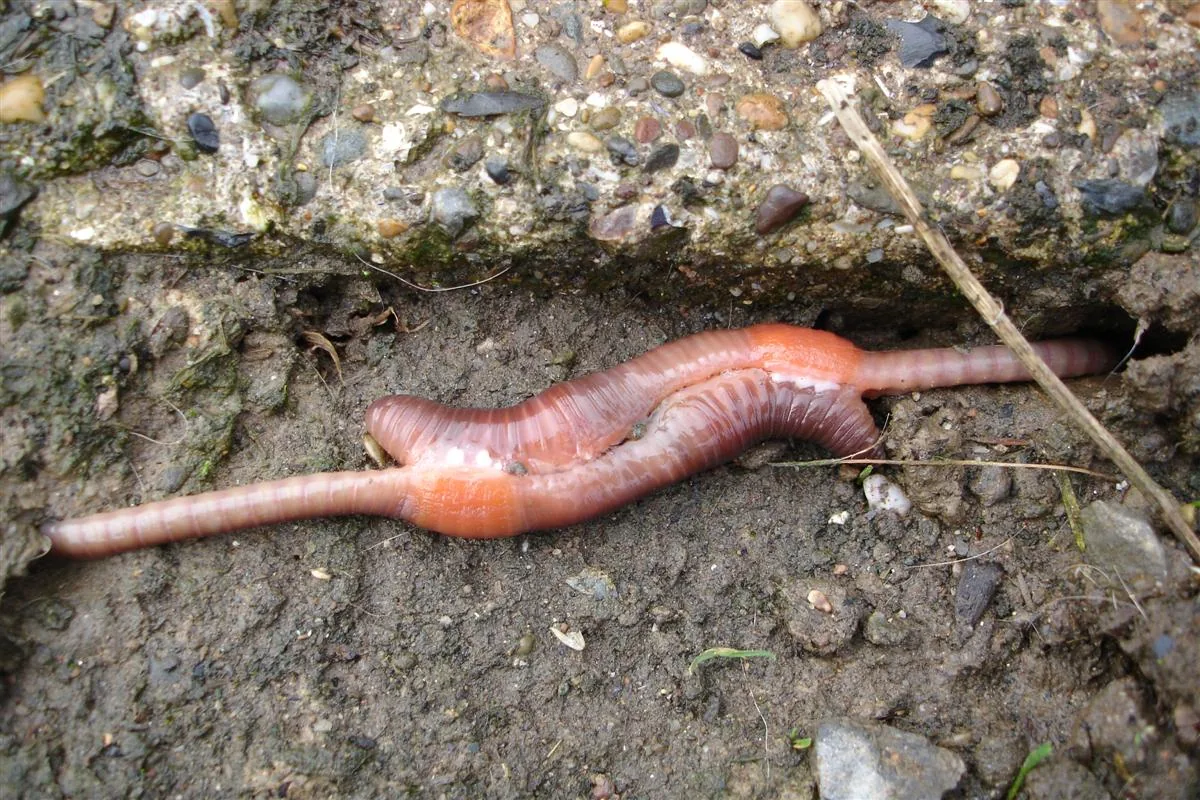
Около 5–6 % всех видов животных — гермафродиты, а если не считать насекомых, среди которых гермафродитов почти нет, — около трети [23]. Гермафродитизм особенно распространён у малоподвижных и редко встречающихся животных: если партнёра найти трудно, лучше, чтобы любая встречная особь подходила для спаривания [1].
- Сутьособь одновременно образует яйцеклетки и сперматозоиды
- Примерыдождевые черви, виноградные улитки, плоские черви, нематода ценорабдитис, рыбка мангровый ривулус
- Сначала самец (протандрия)рыбы-клоуны, крепидула, многие креветки
- Сначала самка (протогиния)губаны, морские окуни-груперы, попугаевые рыбы
Большинство одновременных гермафродитов избегают самооплодотворения: дождевые черви и виноградные улитки при спаривании обмениваются сперматозоидами. Но есть и исключения. Мангровый ривулус — небольшая рыбка из мангровых болот Флориды и Карибского моря — и его ближайший родственник — единственные известные позвоночные, регулярно оплодотворяющие сами себя: у ривулуса внутри одной гонады образуются и яйцеклетки, и сперматозоиды. Поколения самооплодотворения делают особи почти полностью гомозиготными, и ривулус — природная «чистая линия».
17. Грибы: тысячи «полов»
У грибов и многих водорослей гаметы часто одинаковы по размеру, и самцов и самок в обычном смысле нет. Вместо пола у них есть типы спаривания: слиться могут только клетки, различающиеся по особым участкам генома — локусам типа спаривания. У пекарских дрожжей два типа спаривания, a и α, и клетка может сменить свой тип, заменив один набор генов другим [24].
У древесного гриба щелелистника два независимых локуса типа спаривания, каждый с множеством аллелей. Две клетки совместимы, если различаются по обоим локусам. Американский миколог Дж. Рейпер подсчитал в 1960-х годах, что у щелелистника более двадцати тысяч типов спаривания [25]. Почти любые две встретившиеся клетки совместимы, но клетки одного гриба — нет, что препятствует самооплодотворению. Подробнее — в статье «Половой процесс у грибов».
18. Как отличить генетическое определение пола от средового
Если вид изучен мало, установить механизм определения пола можно опытами [2].
- Инкубация при разных температурах. Яйца одной кладки делят на части и выдерживают при разных температурах. Если при всех температурах соотношение полов около 1 : 1, пол определяется генетически. Если при низкой температуре выходят почти одни самцы, а при высокой — самки (или наоборот), определение пола температурное.
- Поиск половых хромосом. Сравнивают кариотипы самцов и самок, а сейчас чаще — последовательности их ДНК: ищут участки, которые есть только у одного пола. Найденный участок, встречающийся только у самцов, указывает на систему XY, только у самок — на ZW.
- Реципрокные скрещивания. Если признак, сцепленный с полом, у потомства распределяется по-разному в зависимости от того, кто из родителей его нёс, можно определить, какой пол гетерогаметен.
- Проверка переопределения. Особей с известным генетическим полом выращивают при необычной температуре или с гормонами и смотрят, развиваются ли у них гонады противоположного пола, как у бородатой агамы.
19. Почему так много способов
Разнообразие механизмов определения пола — одна из загадок эволюционной биологии. Чтобы образовать гаметы двух типов, достаточно любого надёжного переключателя, и, по-видимому, выбор этого переключателя мало влияет на приспособленность. Поэтому новые переключатели легко возникают и закрепляются: новый ген, оказавшийся «выше» по цепочке, может перехватить управление, если даёт хоть небольшое преимущество, например помогает удержать рядом с собой гены, полезные одному полу [2].
Смена переключателя у млекопитающих и птиц затруднена: их половые хромосомы очень старые и сильно различаются, а Y и W потеряли большинство генов. Новому переключателю здесь закрепиться трудно: перестройки половых хромосом обычно снижают плодовитость, а без X- или Z-хромосомы, несущей сотни необходимых генов, зародыш не развивается. Механизм как бы «застыл». У рыб, земноводных, рептилий половые хромосомы часто молодые и почти одинаковые, и переключатели сменяются легко. Так, разнообразие механизмов отражает не случайность, а возраст половых хромосом: чем они моложе, тем подвижнее система.
20. История изучения
- 1914Ф. Бальцер: пол бонеллии зависит от того, куда осела личинка
- 1921К. Бриджес: у дрозофилы пол зависит от соотношения X-хромосом и наборов аутосом
- 1964У. Гамильтон объясняет общественность перепончатокрылых гаплодиплоидией
- 1966М. Шарнье открывает температурное определение пола у ящерицы агамы
- 1977Э. Чарнов и Дж. Булл: когда выгодно определять пол условиями среды
- 2002У медаки найден ген DMY — второй после SRY ген-переключатель пола у позвоночных
- 2003У медоносной пчелы найден ген csd
- 2009У курицы пол задаёт доза гена DMRT1 на Z-хромосоме
- 2014Пол шелкопряда и хурмы определяют малые РНК
- 2015У диких бородатых агам ZZ-самцы при жаре превращаются в самок
- 2018Популяция зелёных черепах Большого Барьерного рифа становится почти целиком женской
- классическая генетика и экология
- гены-переключатели
В 1914 году Ф. Бальцер описал определение пола средой у бонеллии. В 1916–1925 годах К. Бриджес выяснил, что у дрозофилы пол зависит от числа X-хромосом относительно наборов аутосом [3]. В 1964 году У. Гамильтон связал общественную жизнь перепончатокрылых с гаплодиплоидией [10]. В 1966 году М. Шарнье открыла температурное определение пола [14], а в 1977 году Э. Чарнов и Дж. Булл объяснили, когда оно выгодно [18]. На рубеже XX и XXI веков нашли гены-переключатели у медаки [11], пчелы [9], курицы [6], форели [12], шелкопряда [8] и хурмы [22], выяснили, как температура включает Dmrt1 у черепахи [15], и увидели, как в природе хромосомное определение пола сменяется температурным [16].
21. Частые ошибки
| Ошибка | Как правильно |
|---|---|
| У дрозофилы, как у человека, пол определяет Y-хромосома | У дрозофилы пол определяется числом X-хромосом (относительно наборов аутосом); муха XXY — самка, XO — самец |
| Трутни развиваются из оплодотворённых яиц | Трутни — из неоплодотворённых, гаплоидны; самки (матки и рабочие) — из оплодотворённых |
| У всех рептилий пол определяется температурой | У змей и многих ящериц — половыми хромосомами; температурой — у крокодилов, многих черепах, гаттерии, части ящериц |
| Пол, определённый генетически, нельзя изменить | У многих рыб, земноводных, у бородатой агамы генетический пол переопределяется температурой, гормонами, соседями |
| Гермафродиты обязательно оплодотворяют сами себя | Большинство гермафродитов (дождевые черви, улитки) спариваются с другой особью |
| У птиц пол определяет ген на W-хромосоме | У птиц пол определяется дозой гена DMRT1 на Z-хромосоме: ZZ — самец, ZW — самка |
| Пол у рыб-клоунов определяется при оплодотворении и не меняется | Рыбы-клоуны — последовательные гермафродиты: самец может стать самкой |
| Механизм определения пола одинаков у всех животных | Механизмы очень разнообразны; сходны в основном последние звенья цепочки (гены семейства DMRT) |
22. Интересные факты
- Пол тутового шелкопряда определяет молекула РНК длиной около 29 нуклеотидов [8].
- У красноухой черепахи при 26 °C вылупляются самцы, при 31 °C — самки; при 29 °C — примерно поровну.
- Среди молодых зелёных черепах из тёплых гнездовий северной Австралии более 99 % — самки [17].
- У бородатой агамы в лаборатории за одно поколение хромосомное определение пола сменилось температурным [16].
- Рабочие пчёлы съедают личинок диплоидных самцов, гомозиготных по гену csd [9].
- Самка губана-синеголова начинает вести себя как самец через несколько часов после исчезновения самца [13].
- Бактерии вольбахии превращают самцов мокриц в самок [20].
23. Частые вопросы
Почему у одних животных XY, а у других ZW?
Половые хромосомы возникали в разных группах независимо, из разных пар аутосом. Если ген-переключатель, определяющий мужской пол, появился в одной из хромосом, она стала Y; если ген, определяющий женский пол, — W. Какая из двух систем возникнет, — дело случая в эволюции.
Можно ли у черепахи определить пол по хромосомам?
У видов с температурным определением пола — нет: у самцов и самок одинаковые хромосомы, и пол известен только после того, как закладываются гонады. Поэтому пол детёныша черепахи определяют по строению гонад, по гормонам в крови или позже — по внешним признакам.
Почему диплоидные трутни у пчёл — проблема?
Диплоидные самцы, гомозиготные по гену csd, бесплодны или дают диплоидные сперматозоиды, а рабочие пчёлы уничтожают их ещё личинками. Если матка спарилась с трутнем, несущим такой же аллель csd, как у неё, половина оплодотворённых яиц станет диплоидными самцами и погибнет. Поэтому для пчёл важно разнообразие аллелей csd.
Почему у насекомых почти нет гермафродитов?
Насекомые подвижны, легко находят партнёров, и раздельнополость позволяет каждому полу специализироваться. Кроме того, у них сильно различаются половые системы самцов и самок, и совместить их в одной особи сложно. Гермафродиты есть лишь у немногих видов, например у некоторых червецов.
Может ли у человека пол зависеть от температуры?
Нет. У млекопитающих зародыш развивается при постоянной температуре тела матери, и пол определяется хромосомами — геном SRY. Температурное определение пола возможно только у животных, яйца которых развиваются вне тела матери при меняющейся температуре.
24. Что пока не решено
- Как именно температура «включает» мужскую или женскую программу у разных рептилий: у черепахи найден фермент KDM6B, но как он чувствует температуру, ещё изучают [15].
- Успеют ли черепахи и крокодилы приспособиться к потеплению, сдвигая сроки и места кладок [17].
- Почему у одних групп механизмы определения пола неизменны десятки миллионов лет, а у других меняются у близких видов [2].
- Что определяет пол у утконоса и ехидны, у которых нет гена SRY.
25. ЕГЭ
В кодификаторе ЕГЭ — хромосомный механизм определения пола, гомогаметный и гетерогаметный пол [26]. Разнообразие механизмов на экзамене прямо не проверяется, но сведения о дрозофиле, птицах, бабочках, пчёлах встречаются в заданиях, а о гаплоидных трутнях — в заданиях на жизненные циклы и партеногенез.
Что нужно уметь. Называть гетерогаметный пол у человека, дрозофилы, птиц, бабочек; объяснять, почему трутни гаплоидны и как образуются их сперматозоиды; приводить примеры определения пола условиями среды (температура у рептилий); различать раздельнополых животных и гермафродитов, одновременный и последовательный гермафродитизм.
Типичные формулировки ответов:
- «У птиц и бабочек гетерогаметен женский пол (ZW), у человека и дрозофилы — мужской (XY)».
- «У пчёл из оплодотворённых яиц развиваются самки (2n), из неоплодотворённых — трутни (n); сперматозоиды трутня образуются митозом».
- «У крокодилов и многих черепах пол определяется температурой, при которой развиваются яйца».
Как потерять балл. Сказать, что сперматозоиды трутня образуются мейозом (он гаплоиден — образуются митозом). Написать, что у птиц гетерогаметны самцы. Перепутать дрозофилу и человека в вопросе о роли Y-хромосомы.
26. Для олимпиад
Родство при гаплодиплоидии
Самка-пчела получает половину генов от матери и половину от отца. Отец гаплоиден, и все его сперматозоиды одинаковы, поэтому отцовская половина у сестёр совпадает полностью. Материнская половина совпадает в среднем наполовину. Доля общих генов у сестёр: 1/2 · 1 + 1/2 · 1/2 = 3/4. У матери с дочерью — 1/2. У сестры с братом: брат получает гены только от матери, и сестра делит с ним в среднем 1/2 · 1/2 = 1/4 своих генов. Поэтому, по Гамильтону, рабочей пчеле выгоднее выращивать сестёр (3/4), чем собственных дочерей (1/2), и невыгодно — братьев (1/4).
Потери расплода из-за гена csd
Матка с аллелями csd1csd2 спарилась с трутнем csd1. Оплодотворённые яйца: csd1csd1 (диплоидный самец, погибнет) и csd1csd2 (самка) — поровну. Половина оплодотворённых яиц потеряна. Если трутень несёт третий аллель, все оплодотворённые яйца дают самок. Если в популяции k равночастых аллелей csd, вероятность того, что случайный трутень несёт один из двух аллелей матки, — 2/k. При 20 аллелях — 10 %, и в среднем теряется 5 % оплодотворённых яиц.
Как вольбахия захватывает популяцию
Пусть половина самок заражена, и каждая самка оставляет двух потомков. Заражённая самка даёт двух дочерей (все заражены — бактерия превращает сыновей в дочерей), незаражённая — одну дочь и одного сына. Среди самок следующего поколения заражённые составят 2 · 0,5 / (2 · 0,5 + 1 · 0,5) = 2/3. Доля заражённых самок растёт с каждым поколением, а самцов становится всё меньше.
Пол дрозофилы по соотношению X : A
Отношение числа X-хромосом к числу наборов аутосом: XX;AA — 1,0 (самка); XY;AA — 0,5 (самец); XXY;AA — 1,0 (самка); XO;AA — 0,5 (самец, бесплодный); XXX;AAA — 1,0 (самка); XX;AAA — 0,67 (интерсекс).
27. Задания с разбором
Задание 1
Установите соответствие между организмом и способом определения пола: А) человек; Б) курица; В) медоносная пчела; Г) красноухая черепаха; Д) рыба-клоун; Е) дрозофила. Способы: 1) Y-хромосома (ген SRY); 2) доза гена на Z-хромосоме; 3) гаплодиплоидия; 4) температура; 5) смена пола в зависимости от положения в группе; 6) число X-хромосом.
Ответ
А1, Б2, В3, Г4, Д5, Е6.
Задание 2
Выберите три верных утверждения: 1) трутни развиваются из неоплодотворённых яиц; 2) у дрозофилы муха XXY — самец; 3) у крокодилов пол зависит от температуры инкубации яиц; 4) у бабочек гетерогаметны самцы; 5) рыбы-клоуны могут менять пол; 6) все гермафродиты оплодотворяют сами себя.
Ответ
1, 3, 5.
Задание 3
Почему у дрозофилы муха с кариотипом XO — самец, а у человека человек с кариотипом 45,X — женщина?
Ответ
1) У дрозофилы пол определяется числом X-хромосом (соотношением X : A): при одной X развивается самец, Y-хромосома нужна только для плодовитости. 2) У человека пол определяется наличием Y-хромосомы с геном SRY: без Y развиваются яичники и женский фенотип.
Задание 4
Сколько хромосом в клетках тела матки, рабочей пчелы и трутня, если у матки 32 хромосомы? Сколько хромосом в сперматозоидах трутня и как они образуются?
Ответ
Матка и рабочая пчела — 32 (2n), трутень — 16 (n). Сперматозоиды трутня содержат 16 хромосом и образуются митозом: мейоз у гаплоидной особи невозможен.
Задание 5
Найдите ошибки в тексте и исправьте их. (1) У птиц гетерогаметен женский пол. (2) У пчёл самцы развиваются из оплодотворённых яиц. (3) У многих черепах пол определяется температурой. (4) Гермафродиты всегда оплодотворяют сами себя. (5) Рыбы-клоуны меняют пол с мужского на женский.
Ответ
Ошибки в предложениях 2 и 4. (2) Самцы пчёл (трутни) развиваются из неоплодотворённых яиц. (4) Большинство гермафродитов (дождевые черви, улитки) оплодотворяют друг друга; самооплодотворение встречается лишь у немногих видов.
Задание 6
Почему потепление климата угрожает популяциям морских черепах?
Ответ
1) У морских черепах пол определяется температурой: при высокой температуре песка развиваются самки. 2) При потеплении почти всё потомство становится самками. 3) Самцов может стать недостаточно для размножения; черепахи живут долго и медленно сменяют поколения, поэтому могут не успеть приспособиться.
Задание 7
Установите соответствие между организмом и типом гермафродитизма: А) дождевой червь; Б) рыба-клоун; В) губан-синеголов; Г) виноградная улитка; Д) крепидула. Типы: 1) одновременный; 2) последовательный.
Ответ
А1, Б2, В2, Г1, Д2.
Задание 8
Как определяется пол у тутового шелкопряда? Какой пол у него гетерогаметен?
Ответ
Гетерогаметны самки (ZW), самцы ZZ. W-хромосома несёт участок, с которого считывается малая РНК Fem; она разрушает РНК мужского гена Masc на Z-хромосоме. У самок Masc выключен, у самцов (без W) работает — развивается самец.
Задание 9
Почему у губанов выгодно сначала быть самкой, а потом самцом?
Ответ
1) У губанов крупный самец охраняет территорию и спаривается со многими самками; его успех резко растёт с размером. 2) Плодовитость самки зависит от размера слабее, а мелкий самец почти не имеет шансов. 3) Поэтому выгодно размножаться как самка, пока особь мелкая, и как самец — когда она вырастет.
Задание 10
Объясните, почему близкородственное скрещивание особенно вредно для пчёл.
Ответ
1) Пол пчелы определяется геном csd: гетерозиготы — самки, гомозиготы и гаплоиды — самцы. 2) При близкородственном скрещивании растёт вероятность, что матка и трутень несут одинаковый аллель csd. 3) Тогда часть оплодотворённых яиц даёт диплоидных самцов, которых рабочие пчёлы уничтожают, и семья ослабевает.
Задание 11
Выберите три примера определения пола условиями среды: 1) температура инкубации яиц у крокодилов; 2) Y-хромосома у человека; 3) место прикрепления личинки у бонеллии; 4) положение в стопке у крепидулы; 5) ZW у птиц; 6) число X-хромосом у дрозофилы.
Ответ
1, 3, 4.
Задание 12
Как бактерия вольбахия влияет на пол мокриц и почему ей это выгодно?
Ответ
1) Вольбахия превращает генетических самцов мокриц в функциональных самок. 2) Бактерия передаётся только через яйцеклетки — сперматозоиды её не несут. 3) Самцы для неё — тупик, а каждая дополнительная самка передаёт бактерию потомству, поэтому доля заражённых особей растёт.
Задание 13
Что доказали опыты К. Бриджеса с триплоидными дрозофилами?
Ответ
Мухи 3X : 3A были самками, 2X : 3A — интерсексами, а 2X : 2A — самками и 1X : 2A — самцами. Значит, пол дрозофилы определяется не наличием Y, а соотношением числа X-хромосом и наборов аутосом.
Задание 14
Почему у нематоды ценорабдитис самцы встречаются очень редко?
Ответ
1) Почти все особи — гермафродиты XX, оплодотворяющие сами себя. 2) При самооплодотворении потомство тоже XX. 3) Самцы XO возникают лишь при нерасхождении X-хромосомы в мейозе (около 0,1 % потомков) или при скрещивании с самцом.
Задание 15
У бородатой агамы самки ZW, самцы ZZ. При инкубации выше 32 °C зародыши ZZ становятся самками. Каким будет пол потомства самки ZZ (выросшей при жаре) и самца ZZ при инкубации при 28 °C? при 34 °C?
Ответ
Все потомки ZZ. При 28 °C все развиваются в самцов, при 34 °C — в самок. Пол такого потомства определяется только температурой.
Задание 16
Объясните, почему у птиц пол потомка определяется матерью, а у пчёл — тоже матерью, но иначе.
Ответ
У птиц самка гетерогаметна (ZW): пол зависит от того, какая хромосома (Z или W) попала в яйцеклетку. У пчёл матка решает, оплодотворить ли яйцо: из оплодотворённых выходят самки, из неоплодотворённых — самцы.
Задание 17
Как опыт Д. Уорнера и Р. Шайна доказал приспособительный характер температурного определения пола?
Ответ
1) Обработав яйца ящериц веществом, подавляющим синтез эстрогенов, они получали самцов при любой температуре. 2) Самцы из «мужской» температуры оставляли больше потомства, чем самцы из «женской», а самки — наоборот. 3) Значит, температура инкубации влияет на успех каждого пола, и определение пола температурой выгодно.
Задание 18 (олимпиадное)
Рассчитайте долю общих генов (коэффициент родства) у медоносной пчелы: а) между сёстрами от одного отца; б) между сёстрами от разных отцов; в) между сестрой и братом. Почему многократное спаривание маток снижает выгоду рабочих от ухода за сёстрами?
Ответ
а) 1/2 · 1 + 1/2 · 1/2 = 3/4. б) Отцовские гены не совпадают: 1/2 · 0 + 1/2 · 1/2 = 1/4. в) 1/4 (брат получает гены только от матери). Если матка спаривается со многими трутнями, большинство рабочих — сводные сёстры с родством 1/4, что меньше родства с собственными дочерьми (1/2).
Задание 19 (олимпиадное)
В популяции пчёл 10 равночастых аллелей csd. Матка гетерозиготна. Какая доля её оплодотворённых яиц в среднем даст диплоидных самцов, если она спарилась с одним случайным трутнем? С десятью трутнями?
Ответ
С одним трутнем: вероятность, что трутень несёт один из двух аллелей матки, 2/10; в этом случае теряется половина яиц. Средняя доля: 0,2 · 0,5 = 0,1 (10 %). С десятью трутнями средняя доля та же — 10 % (среднее не зависит от числа трутней), но разброс между семьями меньше: почти не бывает семей, теряющих половину расплода.
Задание 20 (олимпиадное)
В популяции мокриц 20 % самок заражены вольбахией, превращающей всех сыновей в дочерей; передача бактерии 100 %. Каждая самка оставляет 2 потомков. Найдите долю заражённых среди самок следующего поколения и соотношение полов в нём.
Ответ
Заражённые самки (0,2) дают 0,2 · 2 = 0,4 заражённых дочери. Незаражённые (0,8) — 0,8 дочерей и 0,8 сыновей. Самок 0,4 + 0,8 = 1,2, из них заражены 0,4 / 1,2 = 1/3. Соотношение полов: 1,2 самки : 0,8 самца = 3 : 2.
Литература
- Gilbert S. F., Barresi M. J. F. Developmental Biology. 12th ed. Oxford University Press, 2020.
- Bachtrog D., Mank J. E., Peichel C. L. et al. Sex determination: why so many ways of doing it? // PLoS Biology. 2014. Vol. 12. Art. e1001899.
- Bridges C. B. Sex in relation to chromosomes and genes // The American Naturalist. 1925. Vol. 59. P. 127–137.
- Erickson J. W., Quintero J. J. Indirect effects of ploidy suggest X chromosome dose, not the X:A ratio, signals sex in Drosophila // PLoS Biology. 2007. Vol. 5. Art. e332.
- Griffiths A. J. F., Doebley J., Peichel C., Wassarman D. A. Introduction to Genetic Analysis. 12th ed. New York: Macmillan Learning, 2020.
- Smith C. A., Roeszler K. N., Ohnesorg T. et al. The avian Z-linked gene DMRT1 is required for male sex determination in the chicken // Nature. 2009. Vol. 461. P. 267–271.
- Zhao D., McBride D., Nandi S. et al. Somatic sex identity is cell autonomous in the chicken // Nature. 2010. Vol. 464. P. 237–242.
- Kiuchi T., Koga H., Kawamoto M. et al. A single female-specific piRNA is the primary determiner of sex in the silkworm // Nature. 2014. Vol. 509. P. 633–636.
- Beye M., Hasselmann M., Fondrk M. K. et al. The gene csd is the primary signal for sexual development in the honeybee and encodes an SR-type protein // Cell. 2003. Vol. 114. P. 419–429.
- Hamilton W. D. The genetical evolution of social behaviour. I, II // Journal of Theoretical Biology. 1964. Vol. 7. P. 1–52.
- Matsuda M., Nagahama Y., Shinomiya A. et al. DMY is a Y-specific DM-domain gene required for male development in the medaka fish // Nature. 2002. Vol. 417. P. 559–563.
- Yano A., Guyomard R., Nicol B. et al. An immune-related gene evolved into the master sex-determining gene in rainbow trout, Oncorhynchus mykiss // Current Biology. 2012. Vol. 22. P. 1423–1428.
- Todd E. V., Ortega-Recalde O., Liu H. et al. Stress, novel sex genes, and epigenetic reprogramming orchestrate socially controlled sex change // Science Advances. 2019. Vol. 5. Art. eaaw7006.
- Charnier M. Action de la température sur la sex-ratio chez l’embryon d’Agama agama (Agamidae, Lacertilien) // Comptes rendus des séances de la Société de biologie. 1966. Vol. 160. P. 620–622.
- Ge C., Ye J., Weber C. et al. The histone demethylase KDM6B regulates temperature-dependent sex determination in a turtle species // Science. 2018. Vol. 360. P. 645–648.
- Holleley C. E., O’Meally D., Sarre S. D. et al. Sex reversal triggers the rapid transition from genetic to temperature-dependent sex // Nature. 2015. Vol. 523. P. 79–82.
- Jensen M. P., Allen C. D., Eguchi T. et al. Environmental warming and feminization of one of the largest sea turtle populations in the world // Current Biology. 2018. Vol. 28. P. 154–159.
- Charnov E. L., Bull J. When is sex environmentally determined? // Nature. 1977. Vol. 266. P. 828–830.
- Warner D. A., Shine R. The adaptive significance of temperature-dependent sex determination in a reptile // Nature. 2008. Vol. 451. P. 566–568.
- Cordaux R., Bouchon D., Grève P. The impact of endosymbionts on the evolution of host sex-determination mechanisms // Trends in Genetics. 2011. Vol. 27. P. 332–341.
- Ming R., Bendahmane A., Renner S. S. Sex chromosomes in land plants // Annual Review of Plant Biology. 2011. Vol. 62. P. 485–514.
- Akagi T., Henry I. M., Tao R., Comai L. A Y-chromosome-encoded small RNA acts as a sex determinant in persimmons // Science. 2014. Vol. 346. P. 646–650.
- Jarne P., Auld J. R. Animals mix it up too: the distribution of self-fertilization among hermaphroditic animals // Evolution. 2006. Vol. 60. P. 1816–1824.
- Ni M., Feretzaki M., Sun S. et al. Sex in fungi // Annual Review of Genetics. 2011. Vol. 45. P. 405–430.
- Raper J. R. Genetics of Sexuality in Higher Fungi. New York: Ronald Press, 1966.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…