
В 1884 году ирландский врач Чарлз Мак-Манн, разглядывая ткани животных в ручной спектроскоп, заметил в спектре света, прошедшего через мышцы, тёмные полосы поглощения. Он решил, что это особые дыхательные пигменты, и назвал их гистогематинами. Но знаменитый немецкий химик Феликс Хоппе-Зайлер объявил, что это просто продукты разложения гемоглобина, и о работах Мак-Манна забыли. Через сорок лет, в 1925 году, кембриджский паразитолог Давид Кейлин, рассматривая в такой же спектроскоп летательные мышцы живых насекомых, увидел те же полосы. И увидел больше: когда насекомое активно дышало, полосы исчезали, а если его лишить кислорода — становились яркими. Пигменты то принимали, то отдавали электроны в ритме дыхания [1]. Кейлин назвал их цитохромами — «клеточными пигментами» — и в своей статье отдал должное забытому Мак-Манну. Так были найдены первые звенья цепи, по которой электроны пищи текут к кислороду.
Это десятая, заключительная статья серии об обмене веществ и энергии в клетке (начало — «Обмен веществ клетки»). В предыдущей статье — «Этапы энергетического обмена» — глюкоза прошла гликолиз и цикл Кребса и превратилась в CO2, а её энергия оказалась в восстановленных переносчиках НАД·Н и ФАД·Н2. Здесь — как эта энергия превращается в АТФ в дыхательной цепи митохондрий, почему аэробный путь выгоднее анаэробного и насколько эффективен энергетический обмен.
- 1. Что происходит в дыхательной цепи
- 2. Как открывали дыхательную цепь
- 3. Где работает дыхательная цепь
- 4. Из чего состоит дыхательная цепь
- 5. Как переносчики удерживают электрон
- 6. Почему электроны текут к кислороду
- 7. Хемиосмотическая теория Митчелла
- 8. Протонодвижущая сила
- 9. АТФ-синтаза: протоны вращают мотор
- 10. Как АТФ выходит из митохондрии
- 11. Сколько АТФ даёт одна молекула глюкозы
- 12. Эффективность энергетического обмена
- 13. Как измеряют дыхание
- 14. Преимущества аэробного пути перед анаэробным
- 15. Как клетка регулирует дыхание
- 16. Дыхание в работе: мышцы, тренировка, полёт
- 17. Разобщение: когда дыхание греет
- 18. Яды дыхательной цепи
- 19. Утечка электронов, активные формы кислорода и старение
- 20. Митохондриальные болезни
- 21. Цитохром c: летопись эволюции и сигнал гибели клетки
- 22. Энергия и сложность жизни
- 23. Дыхание у бактерий
- 24. Итог серии: обмен веществ как система
- 25. Частые ошибки
- 26. Интересные факты
- 27. Частые вопросы
- 28. ЕГЭ
- 29. Для олимпиад
- 30. Задания с разбором
- Литература
1. Что происходит в дыхательной цепи
Дыхательная цепь (цепь переноса электронов) — система белков и переносчиков во внутренней мембране митохондрий, по которой электроны от НАД·Н и ФАД·Н2 передаются на кислород. При этом энергия электронов используется для перекачки протонов из матрикса в межмембранное пространство. Затем протоны возвращаются в матрикс через АТФ-синтазу, и энергия их потока идёт на синтез АТФ. Весь этот процесс — перенос электронов, перекачку протонов и синтез АТФ — называют окислительным фосфорилированием [2, 3].
Суммарно для одной молекулы НАД·Н:
НАД·Н + H+ + ½O2 → НАД+ + H2O (энергия → перекачка протонов → АТФ)
Именно здесь используется кислород, который мы вдыхаем: он принимает электроны в самом конце цепи и, соединяясь с протонами, превращается в воду. Без кислорода электроны «некуда сбросить», цепь останавливается, и синтез АТФ в митохондриях прекращается.
Дыхательная цепь даёт подавляющую часть АТФ аэробной клетки: из 38 молекул АТФ, образующихся при полном окислении глюкозы, 34 синтезируются здесь (по школьному счёту). Поэтому именно дыхательная цепь делает аэробное дыхание в десятки раз выгоднее брожения.
Определения. Дыхательная цепь — цепь переносчиков электронов во внутренней мембране митохондрий. Окислительное фосфорилирование — синтез АТФ за счёт энергии окисления, переданной через протонный градиент. Конечный акцептор электронов — кислород. Протонодвижущая сила — энергия, запасённая в разности концентраций протонов и электрических потенциалов на мембране.
2. Как открывали дыхательную цепь
Путь к пониманию дыхательной цепи занял почти век.
- 1920-е годы. Немецкий биохимик Отто Варбург открыл «дыхательный фермент», содержащий железо, и показал, что его угнетает угарный газ, но это угнетение снимается ярким светом. По спектру действия света он определил, что фермент — родственник гемоглобина. Сегодня его называют цитохромоксидазой — последним звеном дыхательной цепи. В 1931 году Варбург получил Нобелевскую премию. Одновременно Кейлин открыл цитохромы и показал, что они передают электроны друг другу по цепочке.
- 1930-е годы. Советский биохимик Владимир Энгельгардт в Казани обнаружил, что дыхание сопровождается синтезом органических фосфатов, а его ученики Владимир Белицер и Елена Цыбакова в 1939 году измерили, что на каждый поглощённый атом кислорода синтезируется не меньше двух молекул АТФ. Так было показано, что дыхание и синтез АТФ тесно связаны — «сопряжены».
- 1948–1949 годы. Американские биохимики Альберт Ленинджер и Юджин Кеннеди доказали, что окислительное фосфорилирование, цикл Кребса и окисление жирных кислот идут именно в митохондриях.
- 1961 год. Английский биохимик Питер Митчелл предложил хемиосмотическую теорию: связь между дыханием и синтезом АТФ осуществляет градиент протонов на мембране [4]. Нобелевская премия 1978 года.
- 1990–2010-е годы. Расшифрована пространственная структура всех комплексов дыхательной цепи и АТФ-синтазы. Бойер и Уокер получили Нобелевскую премию 1997 года за механизм АТФ-синтазы.
3. Где работает дыхательная цепь
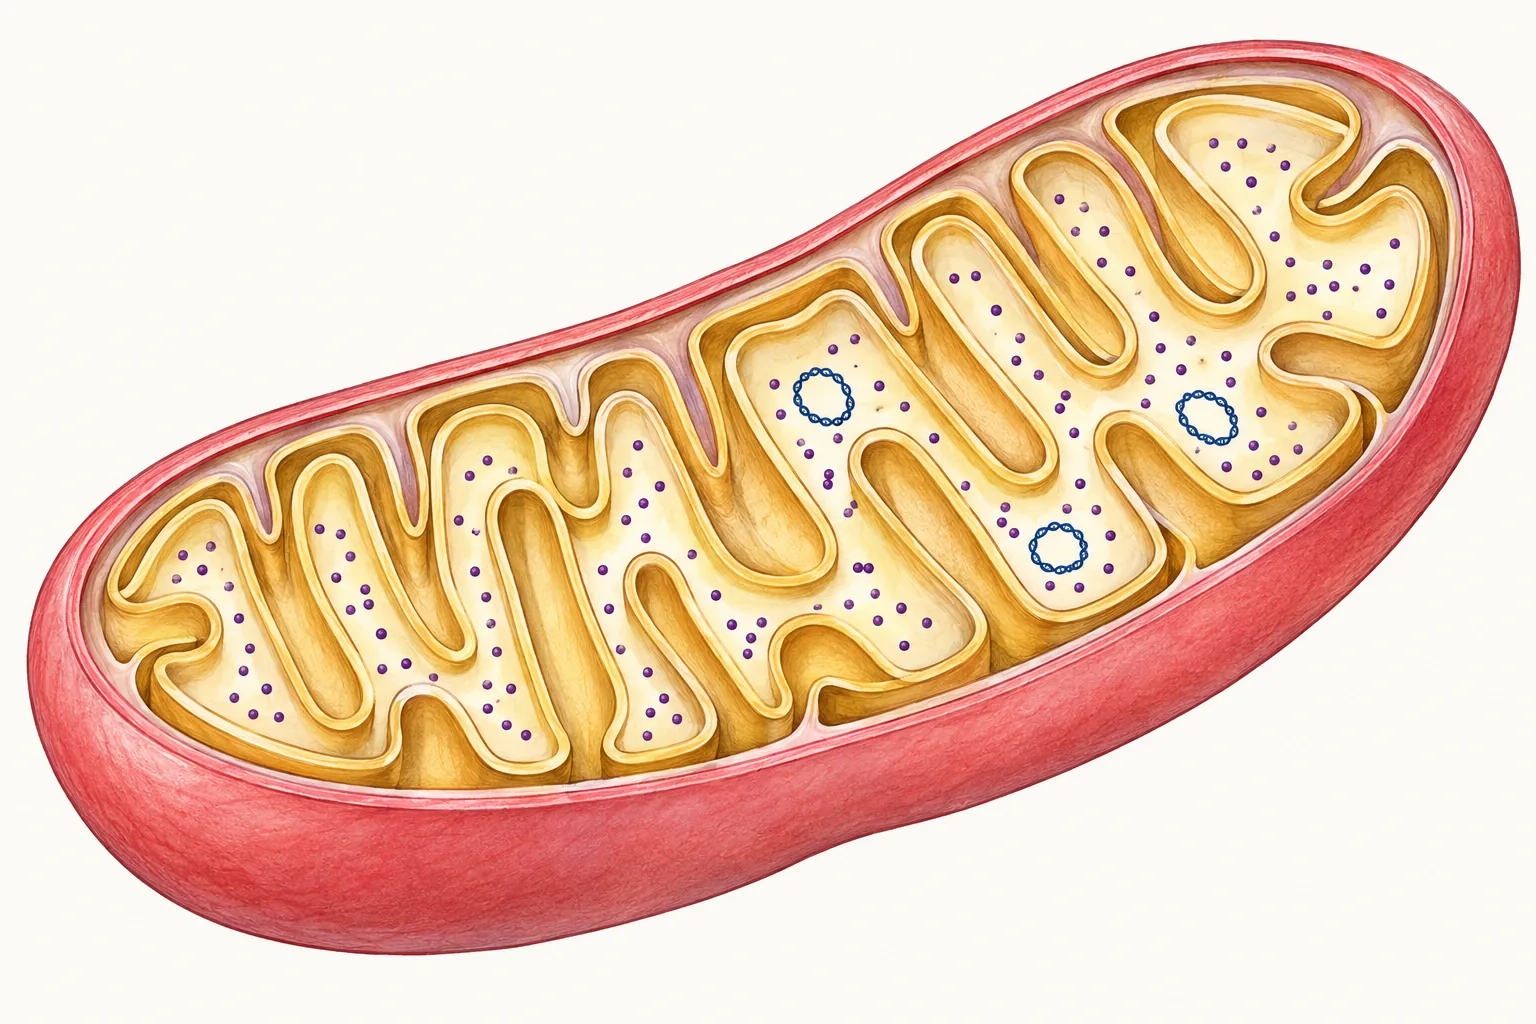
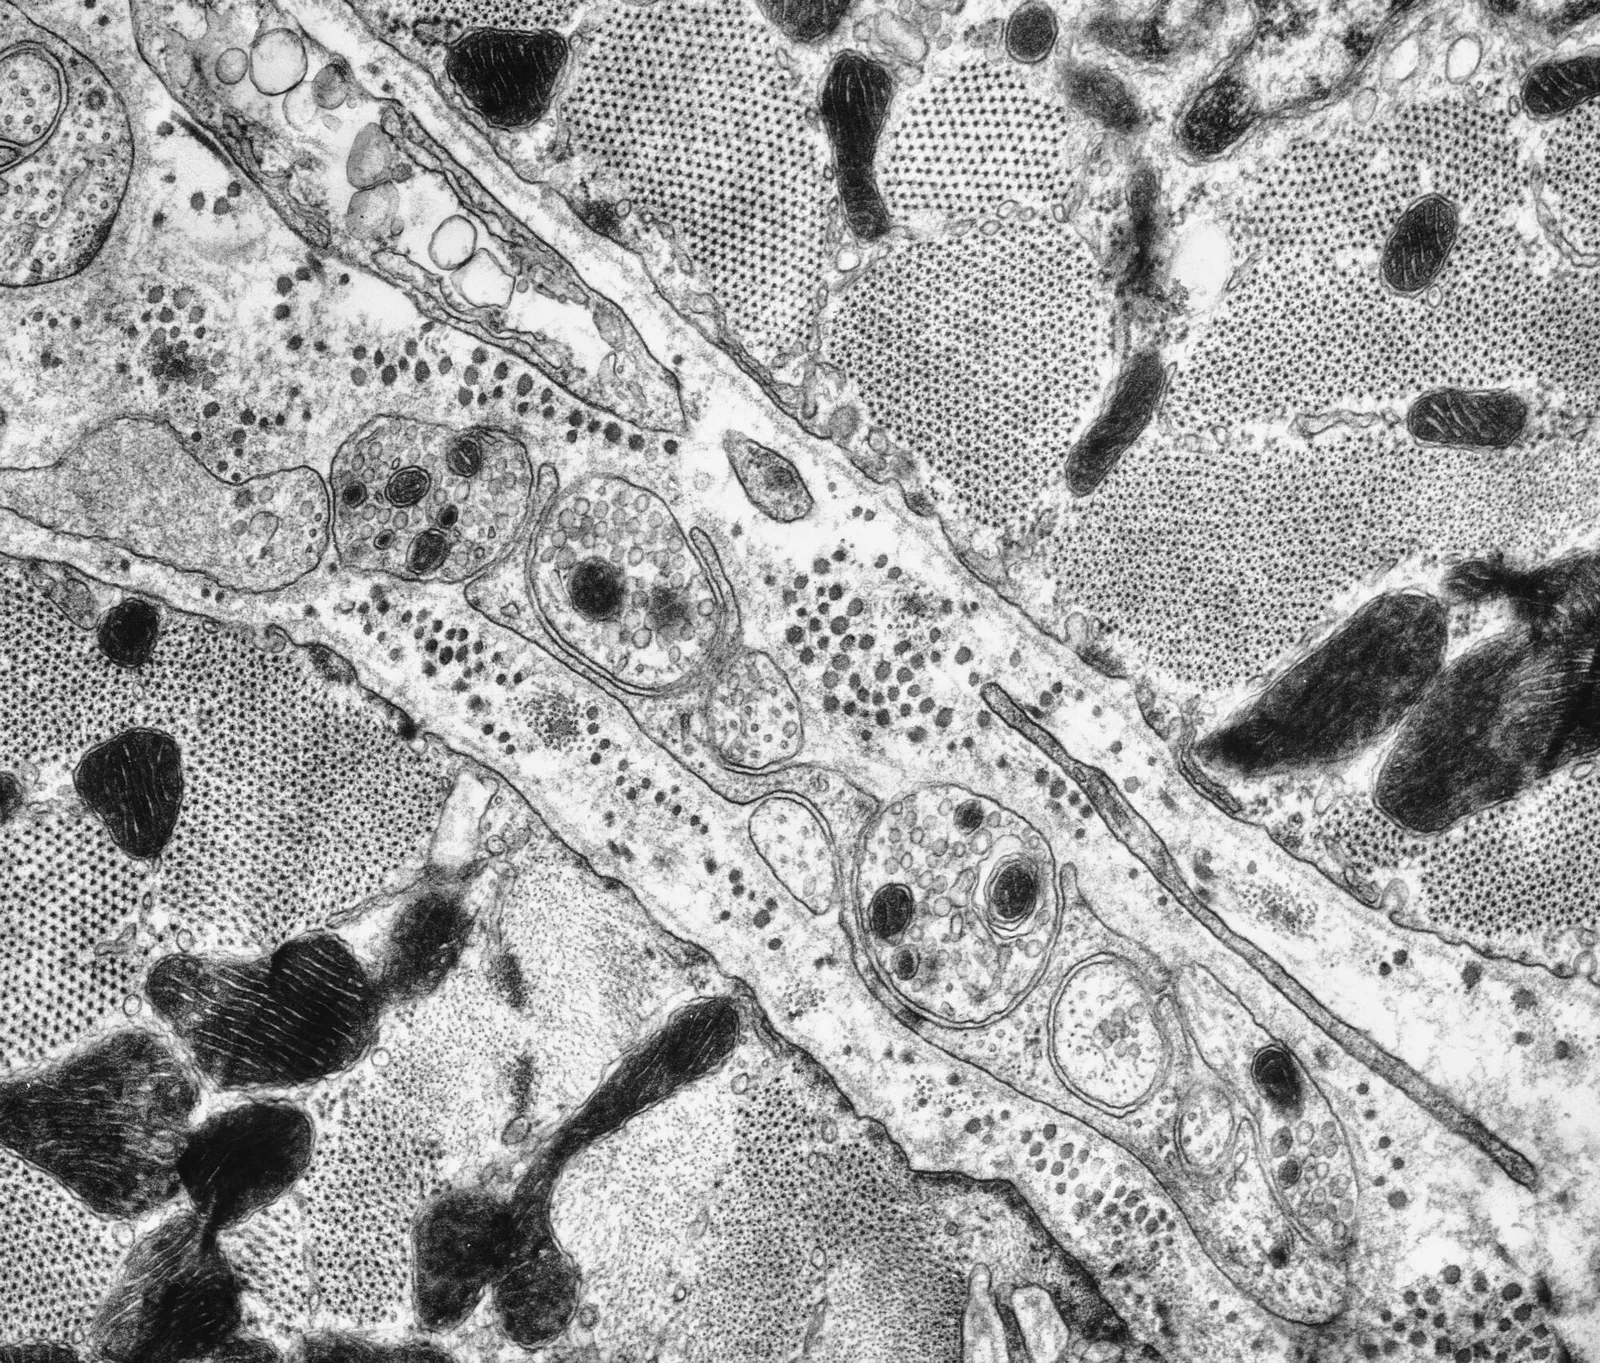
Митохондрия устроена так, чтобы дыхательная цепь могла создать и использовать протонный градиент. У неё две мембраны. Наружная гладкая и содержит крупные каналы, пропускающие небольшие молекулы. Внутренняя образует складки — кристы — и почти непроницаема для ионов, в том числе для протонов. Между мембранами лежит межмембранное пространство, внутри внутренней мембраны — матрикс с ферментами цикла Кребса.
Комплексы дыхательной цепи и АТФ-синтазы встроены во внутреннюю мембрану, причём преимущественно в мембрану крист. Кристы увеличивают площадь мембраны в несколько раз: в клетке сердечной мышцы площадь внутренних мембран митохондрий может быть в десятки раз больше площади плазматической мембраны. Протоны перекачиваются из матрикса в межмембранное пространство и в узкие полости крист, а возвращаются через АТФ-синтазу, головка которой обращена в матрикс (подробнее — в статье «Митохондрии и пластиды»).
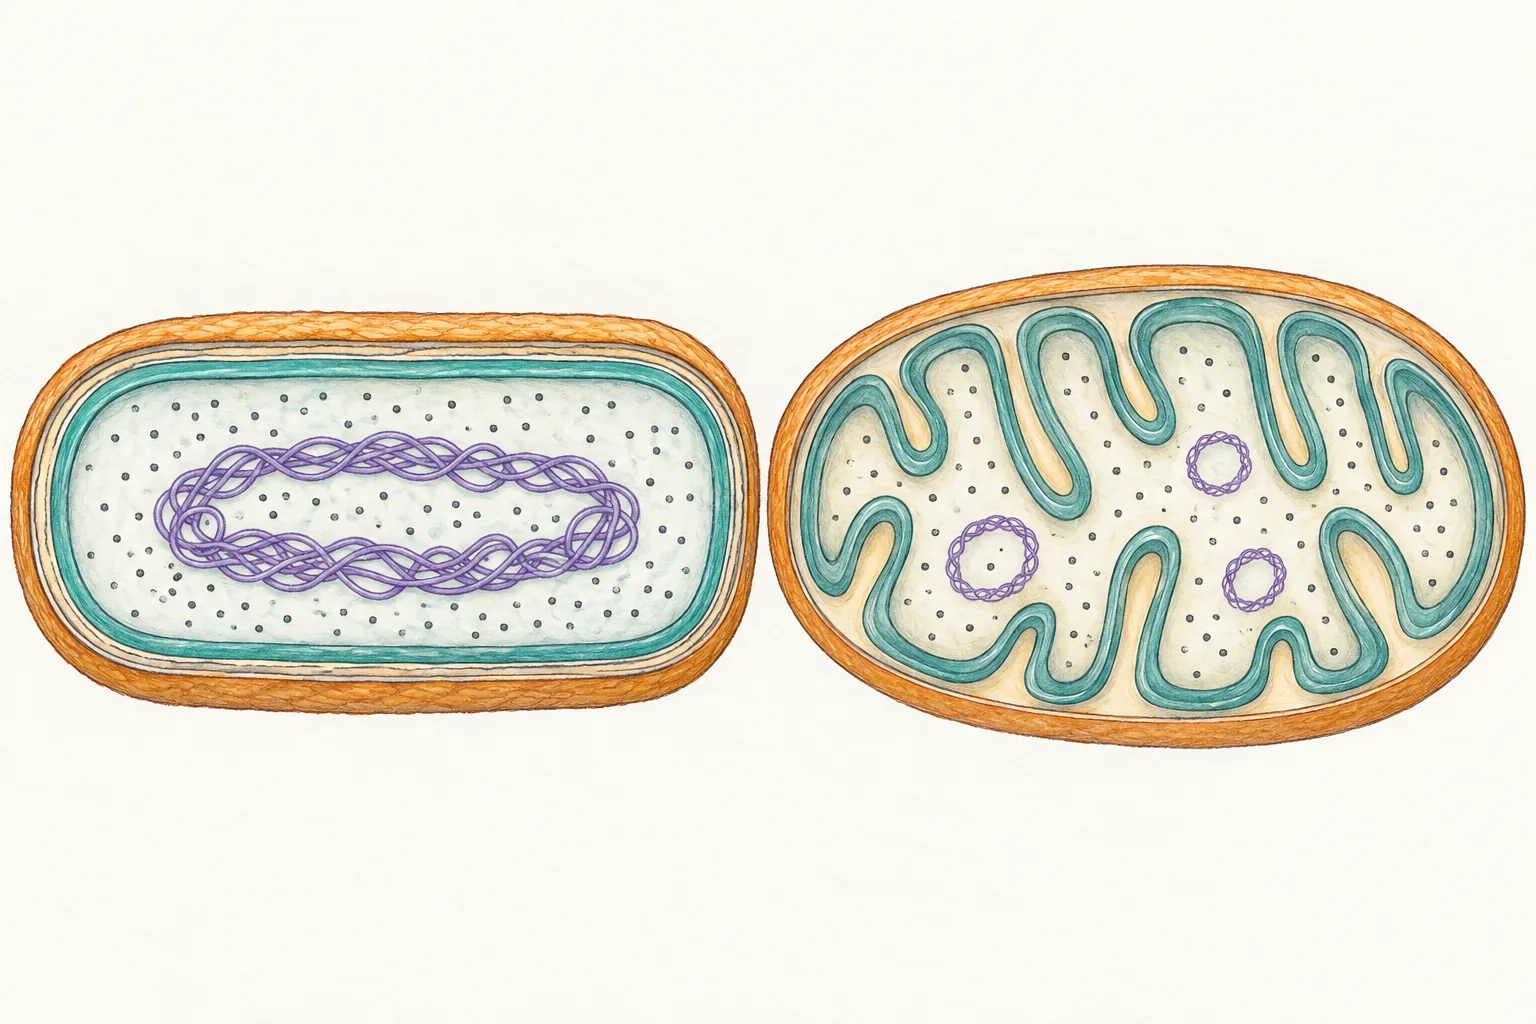
Митохондрии — потомки бактерий, и их внутренняя мембрана соответствует плазматической мембране бактерии-предка. У современных бактерий дыхательная цепь и АТФ-синтаза сидят прямо в плазматической мембране, а протоны выкачиваются наружу, в пространство между мембраной и клеточной стенкой.
4. Из чего состоит дыхательная цепь
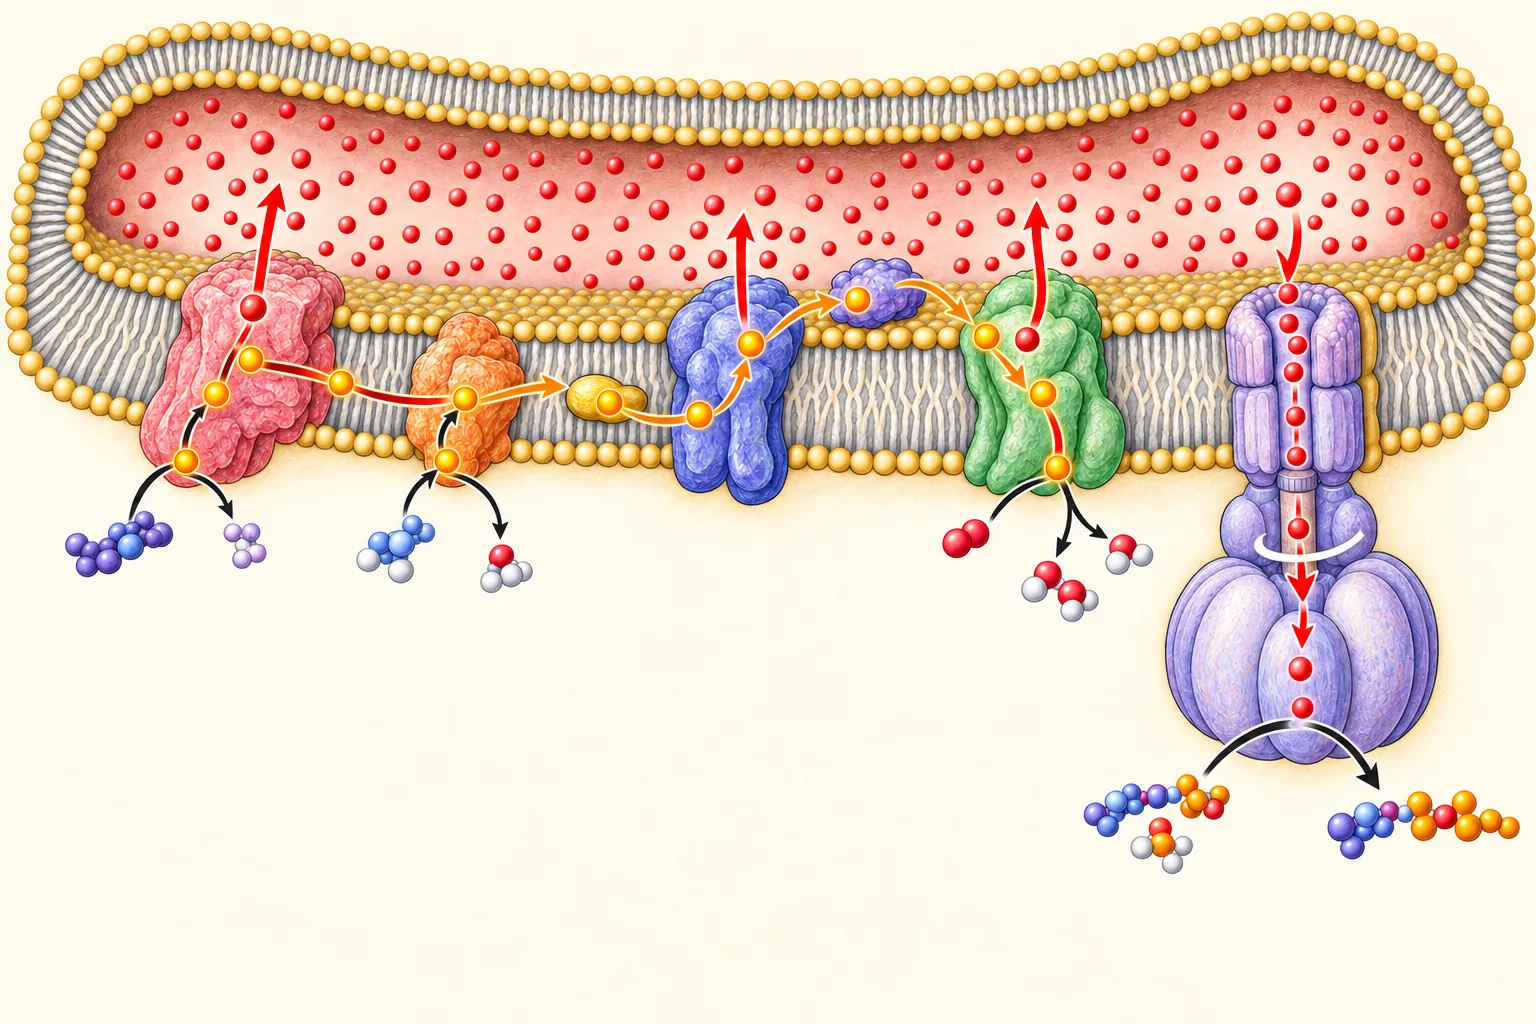
Дыхательная цепь состоит из четырёх крупных белковых комплексов и двух подвижных переносчиков [3].
- Комплекс I (НАД·Н-дегидрогеназа) — огромный белок из 45 субъединиц у человека. Он принимает два электрона от НАД·Н и передаёт их на убихинон, одновременно перекачивая из матрикса 4 протона. Его строение, похожее на сапог с «подошвой» в мембране, расшифровали лишь в 2010-х годах [5].
- Комплекс II (сукцинатдегидрогеназа) — тот самый фермент цикла Кребса, который окисляет янтарную кислоту. Электроны от его ФАД·Н2 тоже передаются на убихинон, но протонов комплекс II не перекачивает — поэтому ФАД·Н2 даёт меньше АТФ, чем НАД·Н.
- Убихинон (кофермент Q) — небольшая жирорастворимая молекула, свободно перемещающаяся в толще мембраны. Он собирает электроны от комплексов I и II и несёт их к комплексу III.
- Комплекс III (цитохром bc1) передаёт электроны с убихинона на цитохром c и перекачивает при этом 4 протона (на пару электронов).
- Цитохром c — небольшой водорастворимый белок с гемом, бегающий по поверхности внутренней мембраны со стороны межмембранного пространства и переносящий электроны по одному от комплекса III к комплексу IV.
- Комплекс IV (цитохромоксидаза) — последнее звено. В его активном центре атомы железа (в составе гемов) и меди удерживают молекулу кислорода, пока на неё не поступят четыре электрона, и превращают её в две молекулы воды. Комплекс перекачивает ещё 2 протона на пару электронов.
Итак, на каждую пару электронов от НАД·Н выкачивается 4 + 4 + 2 = 10 протонов, а от ФАД·Н2 (минуя комплекс I) — 4 + 2 = 6 протонов. Комплексы в мембране не разбросаны случайно: многие из них объединяются в «суперкомплексы», что ускоряет передачу электронов и уменьшает их «утечку».
Цитохромоксидаза решает сложнейшую химическую задачу. Кислород — сильный окислитель, и если он получит лишь один или два электрона, образуются опасные активные формы — супероксид и пероксид водорода. Цитохромоксидаза удерживает кислород, пока не передаст ему все четыре электрона сразу, и почти не выпускает промежуточных продуктов. Поэтому около 90 % кислорода, потребляемого организмом, превращается в воду именно цитохромоксидазой.
5. Как переносчики удерживают электрон
Электрон нельзя просто «положить» в белок: его должен принять атом или группа атомов, способные обратимо восстанавливаться и окисляться. В дыхательной цепи таких групп несколько типов, и почти все они содержат металлы.
- Флавины. В комплексе I электроны НАД·Н сначала принимает флавинмононуклеотид (ФМН) — производное витамина B2 (рибофлавина), в комплексе II ту же роль играет ФАД. Флавины принимают сразу два электрона, а отдавать их могут по одному, поэтому служат связующим звеном между двухэлектронным НАД·Н и одноэлектронными переносчиками.
- Железо-серные кластеры. Атомы железа, связанные с атомами серы и с остатками цистеина белка. Каждый кластер принимает и отдаёт один электрон, при этом меняется степень окисления железа (Fe3+ ⇄ Fe2+). В комплексе I электроны проходят по цепочке примерно из восьми таких кластеров.
- Гемы цитохромов. Атом железа в плоском порфириновом кольце — как в гемоглобине. Но в гемоглобине железо остаётся двухвалентным и лишь обратимо связывает кислород, а в цитохромах оно переходит из Fe3+ в Fe2+ и обратно, принимая и отдавая электрон. Именно гемы дают те полосы поглощения, которые видели Мак-Манн и Кейлин.
- Медь. В цитохромоксидазе два медных центра; один из них вместе с гемом образует участок, где связывается и восстанавливается кислород.
- Убихинон. Небольшая молекула с длинным жирорастворимым «хвостом» из десяти изопреновых звеньев (отсюда название кофермент Q10). Он принимает два электрона и два протона, превращаясь в убихинол, и переносит их в толще мембраны. Его выделили в 1957 году из митохондрий сердца быка американские биохимики под руководством Фредерика Крейна [6], а вскоре английский биохимик Ричард Мортон предложил название «убихинон» — «вездесущий хинон»: вещество нашли почти во всех клетках.
Как электрон переходит от одного центра к другому, если между ними слой белка? Он туннелирует — проходит сквозь белок по законам квантовой механики, не имея энергии, чтобы «перелезть» барьер. Американский биофизик Лесли Даттон с коллегами в 1992 году показал, что скорость такого переноса определяется прежде всего расстоянием: центры, между которыми идёт быстрый перенос, находятся не дальше примерно 1,4 нм друг от друга, и с каждой лишней десятой нанометра скорость падает в несколько раз [7]. Поэтому переносчики в комплексах расставлены цепочкой, каждый на расстоянии «шага» от следующего, а белок вокруг них служит каркасом, удерживающим эти расстояния.
6. Почему электроны текут к кислороду
Каждый переносчик характеризуется своим окислительно-восстановительным потенциалом — «стремлением» принимать электроны. У НАД·Н он отрицательный (около −0,32 В): этот переносчик легко отдаёт электроны. У кислорода — сильно положительный (около +0,82 В): он жадно их принимает. Переносчики дыхательной цепи выстроены по возрастанию потенциала, и электроны «скатываются» по этой лестнице от НАД·Н к кислороду, как вода по ступенькам плотины.
Разность потенциалов между НАД·Н и кислородом — около 1,14 В. Это соответствует энергии около 220 кДж на моль НАД·Н. Если бы НАД·Н отдал электроны кислороду сразу, вся эта энергия выделилась бы в виде теплоты. Дыхательная цепь отдаёт её небольшими порциями, и на трёх «ступеньках» (комплексах I, III и IV), где перепад потенциала велик, энергии достаточно, чтобы перекачать протоны против градиента. Так энергия окисления превращается в энергию протонного градиента, а затем в энергию АТФ.
7. Хемиосмотическая теория Митчелла
В 1950-х годах биохимики были уверены, что дыхание связано с синтезом АТФ через какое-то «макроэргическое промежуточное соединение», подобное тем, что образуются в гликолизе. Многие лаборатории годами искали это вещество — и не находили. В 1961 году Питер Митчелл предложил совершенно иное объяснение [4, 8].
- Дыхательная цепь перекачивает протоны через внутреннюю мембрану митохондрии наружу.
- Мембрана непроницаема для протонов, поэтому на ней возникает разность их концентраций (снаружи кислее) и разность электрических потенциалов (снаружи плюс, внутри минус). Вместе они создают протонодвижущую силу.
- Протоны возвращаются в матрикс только через АТФ-синтазу, и энергия их потока используется для синтеза АТФ.
Идея казалась многим странной, а сам Митчелл — чудаком: из-за болезни он оставил университет, купил полуразрушенный особняк Глинн-хаус в Корнуолле, восстановил его и устроил там собственную небольшую лабораторию. Споры вокруг его теории продолжались больше десяти лет и получили прозвище «войны окислительного фосфорилирования». Решающие доказательства принесли опыты, в которых протонный градиент создавали искусственно. Андре Ягендорф в 1966 году заставил тилакоиды хлоропластов синтезировать АТФ в темноте, перенеся их из кислого раствора в щелочной. А в 1974 году Эфраим Рэкер и Вальтер Штёкениус собрали из «деталей» искусственную систему: в мембранные пузырьки — липосомы — встроили АТФ-синтазу из митохондрий быка и светочувствительный протонный насос бактериородопсин из галофильных архей. На свету бактериородопсин накачивал протоны, и АТФ-синтаза синтезировала АТФ [9]. Никакого «промежуточного вещества» там быть не могло — только протонный градиент. В 1978 году Митчелл получил Нобелевскую премию, а его теория стала основой биоэнергетики.
8. Протонодвижущая сила
Протонодвижущая сила складывается из двух частей. Первая — разность концентраций протонов: в матриксе pH около 7,8, в межмембранном пространстве — около 7, разница около 0,8 единицы. Вторая — разность электрических потенциалов: внутренняя сторона мембраны заряжена отрицательно относительно наружной на 150–180 милливольт. Суммарно протонодвижущая сила митохондрии — около 200 мВ на мембране толщиной всего около 7 нанометров. Это огромная напряжённость электрического поля — около 300 000 вольт на сантиметр, примерно в десять раз больше, чем при грозовом разряде в воздухе.
Энергия протонного градиента используется не только для синтеза АТФ. Она приводит в действие переносчики, закачивающие в матрикс фосфат и пируват и обменивающие АДФ на АТФ, а при необходимости — и разобщающий белок бурого жира, превращающий её в теплоту.
9. АТФ-синтаза: протоны вращают мотор
Протоны возвращаются в матрикс через АТФ-синтазу — вращающийся молекулярный мотор. Её мембранная часть содержит кольцо субъединиц, которое поворачивается при прохождении каждого протона; вращение передаётся через вал на головку, выступающую в матрикс, и в трёх её каталитических участках по очереди синтезируется АТФ из АДФ и фосфата. У человека кольцо состоит из 8 субъединиц, значит, за полный оборот через фермент проходят 8 протонов и синтезируются 3 молекулы АТФ (подробнее об устройстве и истории открытия АТФ-синтазы — в статье «АТФ и энергетика клетки»).
АТФ-синтаза может работать и в обратную сторону — расщеплять АТФ и перекачивать протоны. Так бывает у бактерий в бескислородных условиях: они поддерживают протонный градиент за счёт АТФ брожения. В митохондриях при нехватке кислорода обратную работу АТФ-синтазы сдерживает особый белок-ингибитор, иначе митохондрии растратили бы последние запасы АТФ клетки.
10. Как АТФ выходит из митохондрии
АТФ синтезируется в матриксе, а нужна главным образом в цитоплазме. Внутренняя мембрана митохондрии непроницаема для заряженных молекул, поэтому в ней работает особый белок-переносчик — АДФ/АТФ-транслоказа. Он обменивает одну молекулу АТФ из матрикса на одну молекулу АДФ из цитоплазмы. Это один из самых многочисленных белков внутренней мембраны: за сутки он переносит количество АТФ, сравнимое с массой тела человека. Вместе с фосфатом, который поступает в матрикс в сопровождении протона, транспорт обходится примерно в один протон на каждую АТФ — это ещё одна «плата» за синтез.
Транслоказу блокируют некоторые природные яды. Атрактилозид — вещество из корней средиземноморского чертополоха атрактилиса — останавливает обмен АТФ на АДФ, и клетки остаются без энергии, хотя митохондрии работают. Ещё опаснее бонгкрековая кислота, которую выделяют бактерии, иногда загрязняющие индонезийский ферментированный продукт из кокосового жмыха (темпе-бонгкрек): она тоже блокирует транслоказу, и такие отравления часто смертельны.
11. Сколько АТФ даёт одна молекула глюкозы
В школьном курсе принято считать, что каждая молекула НАД·Н даёт в дыхательной цепи 3 АТФ, а ФАД·Н2 — 2 АТФ. Тогда на молекулу глюкозы приходится: 10 НАД·Н × 3 + 2 ФАД·Н2 × 2 = 34 АТФ в дыхательной цепи, плюс 2 АТФ гликолиза и 2 АТФ (ГТФ) цикла Кребса — итого 38 АТФ. Эти числа используются в задачах ЕГЭ.
Современные измерения дают меньшие и дробные значения [10]. Рассуждение простое. На пару электронов от НАД·Н дыхательная цепь выкачивает 10 протонов. На синтез одной АТФ АТФ-синтаза расходует 8/3 ≈ 2,7 протона, и ещё один протон нужен для доставки фосфата и обмена АДФ на АТФ — всего около 3,7 протона. Значит, НАД·Н даёт 10 / 3,7 ≈ 2,7, а с учётом неизбежных утечек — около 2,5 АТФ; ФАД·Н2 (6 протонов) — около 1,5 АТФ.
| Источник | Школьный счёт | Современная оценка |
|---|---|---|
| Гликолиз (субстратное фосфорилирование) | 2 АТФ | 2 АТФ |
| 2 НАД·Н гликолиза | 6 АТФ | 3–5 АТФ (зависит от «челнока») |
| 2 НАД·Н окисления пирувата | 6 АТФ | 5 АТФ |
| Цикл Кребса: 2 ГТФ | 2 АТФ | 2 АТФ |
| Цикл Кребса: 6 НАД·Н | 18 АТФ | 15 АТФ |
| Цикл Кребса: 2 ФАД·Н2 | 4 АТФ | 3 АТФ |
| Итого | 38 АТФ | 30–32 АТФ |
Почему для НАД·Н гликолиза указан интервал? Сам НАД·Н не проходит через внутреннюю мембрану митохондрии, и его восстановительная сила переносится внутрь «челноками». В печени, сердце и почках работает малат-аспартатный челнок, передающий электроны на НАД+ матрикса, — тогда цитоплазматический НАД·Н даёт около 2,5 АТФ, и итог — 32 АТФ. В мышцах и мозге часто работает глицерофосфатный челнок, передающий электроны сразу на убихинон, в обход комплекса I, — тогда каждый такой НАД·Н даёт около 1,5 АТФ, и итог — 30 АТФ.
- НАД·Н3 АТФ
- ФАД·Н₂2 АТФ
- На глюкозу2 + 2 + 10 · 3 + 2 · 2 = 38 АТФ
- НАД·Н≈ 2,5 АТФ
- ФАД·Н₂≈ 1,5 АТФ
- На глюкозу30–32 АТФ (зависит от челнока)
Как потерять балл. На ЕГЭ использовать «современные» 30–32 АТФ, если в условии не сказано иное. В заданиях ЕГЭ принято: гликолиз — 2 АТФ, кислородный этап — 36 АТФ, всего 38 АТФ на молекулу глюкозы. Современные значения полезно знать для олимпиад и понимания, но расчёт ведут по условию задачи.
12. Эффективность энергетического обмена
Какую долю энергии глюкозы клетка запасает в АТФ? При полном окислении моля глюкозы выделяется около 2870 кДж. По школьному счёту в 38 АТФ запасается 38 · 40 = 1520 кДж, то есть около 53 %. По современным данным — 30–32 АТФ при энергии гидролиза в стандартных условиях около 30,5 кДж/моль — около 32–34 %; с учётом реальных условий клетки, где гидролиз одной АТФ даёт 50–60 кДж, — от 50 до 65 %. В любом случае КПД энергетического обмена очень высок: для сравнения, двигатель автомобиля превращает в полезную работу лишь 25–35 % энергии топлива, а паровоз — около 10 %.
Оставшаяся энергия выделяется в виде теплоты. Для теплокровных животных это не потеря: именно теплота энергетического обмена поддерживает постоянную температуру их тела (подробнее — в статье «АТФ и энергетика клетки»).
Эффективность разных этапов различна. Гликолиз запасает в АТФ лишь около 80 кДж из почти 200, выделяющихся при расщеплении глюкозы до пировиноградной кислоты, — около 40 %, но в пересчёте на всю энергию глюкозы это всего около 3 %. Подавляющая часть энергии освобождается на кислородном этапе.
13. Как измеряют дыхание
Мысль о том, что дыхание — это медленное горение, высказал ещё Антуан Лавуазье. В 1780-х годах вместе с математиком Пьером Симоном Лапласом он поместил морскую свинку в ледяной калориметр и сравнил, сколько льда растопило тепло животного и сколько угля нужно сжечь, чтобы выделилось столько же углекислого газа. Числа оказались близки, и Лавуазье заключил, что дыхание — горение, только медленное и идущее внутри тела. Он ошибся лишь в месте: считал, что горение идёт в лёгких. То, что окисление происходит в каждой клетке, а точнее — в её митохондриях, выяснилось только в XX веке.
В 1920-х годах Отто Варбург создал прибор, ставший для биохимиков таким же привычным, как микроскоп для цитологов, — манометрический респирометр. Срез ткани или взвесь клеток помещали в закрытый сосуд, углекислый газ поглощала щёлочь в центральном стаканчике, и по уменьшению давления определяли, сколько кислорода поглощено. Именно так Кребс открывал свой цикл, а Энгельгардт и Белицер — связь дыхания с синтезом АТФ.
Соотношение выделенного CO2 и поглощённого O2 называют дыхательным коэффициентом. Он показывает, какое вещество окисляется. При окислении глюкозы (C6H12O6 + 6O2 → 6CO2 + 6H2O) он равен 6 / 6 = 1. Жиры бедны кислородом, и на их окисление кислорода нужно больше: для трипальмитина (C51H98O6 + 72,5O2 → 51CO2 + 49H2O) коэффициент равен 51 / 72,5 ≈ 0,7. Для белков он около 0,8. Измеряя газообмен человека, врачи и спортивные физиологи узнают, что сейчас «сжигает» организм: натощак и при долгой умеренной работе коэффициент приближается к 0,7–0,8, после еды, богатой углеводами, и при интенсивной нагрузке — к 1.
В середине XX века на смену манометрам пришёл кислородный электрод: платиновый катод, на котором восстанавливается кислород, отделённый от раствора тонкой мембраной; сила тока пропорциональна концентрации O2. Такой прибор записывает дыхание митохондрий непрерывно, секунда за секундой, и позволяет увидеть, как оно ускоряется после добавления АДФ и замедляется, когда АДФ кончается. Сегодня приборы с флуоресцентными датчиками измеряют потребление кислорода живыми клетками прямо в лунках планшета — так проверяют, как лекарства и мутации влияют на работу митохондрий.
14. Преимущества аэробного пути перед анаэробным
Сравним два способа получать энергию из глюкозы — анаэробный (гликолиз и брожение) и аэробный (гликолиз и кислородный этап).
| Признак | Анаэробный путь (брожение) | Аэробный путь (дыхание) |
|---|---|---|
| АТФ на молекулу глюкозы | 2 | 38 (около 30–32 по современным данным) |
| Полнота окисления | неполное: остаются молочная кислота, этанол и др. | полное: до CO2 и H2O |
| Доля энергии глюкозы, запасённая в АТФ | около 3 % | около 50 % |
| Конечные продукты | часто ядовиты или закисляют среду | CO2 и H2O легко удаляются |
| Какие вещества можно использовать | в основном углеводы | углеводы, жиры, белки (через ацетил-КоА и цикл Кребса) |
| Скорость получения АТФ | высокая (гликолиз быстрый) | ниже, но устойчивая |
| Условия | не нужен кислород | нужны кислород и митохондрии |
Главные преимущества аэробного пути, которые требуется знать на экзамене:
- Энергетическая выгода. Из одной молекулы глюкозы образуется в 19 раз больше АТФ (38 против 2), то есть для получения того же количества энергии нужно в 19 раз меньше питательных веществ.
- Полное окисление. Органические вещества расщепляются до CO2 и H2O, в которых почти не остаётся энергии; конечные продукты не ядовиты, легко выводятся, а вода даже используется организмом.
- Универсальность. В цикл Кребса и дыхательную цепь сходятся пути расщепления углеводов, жиров и белков, и организм может использовать самые разные «виды топлива», в том числе самый ёмкий — жиры, которые без кислорода практически не расщепляются для получения энергии.
- Возможность сложной организации. Только аэробное дыхание даёт достаточно энергии для крупных подвижных многоклеточных организмов с мозгом, мышцами, постоянной температурой тела. Не случайно появление и быстрая эволюция животных совпали с ростом содержания кислорода в атмосфере.
У анаэробного пути есть свои сильные стороны: он не требует кислорода и митохондрий и даёт АТФ очень быстро. Поэтому даже у аэробов он сохранился как «аварийный» и «спринтерский» режим — в мышцах при интенсивной нагрузке, в эритроцитах, в тканях при нехватке кислорода (подробнее — в статье «Анаэробы и брожение»).
- Гдецитоплазма
- АТФ на глюкозу2
- Продуктымолочная кислота, этанол + CO₂
- Плюсыбыстро, без кислорода
- Гдецитоплазма и митохондрии
- АТФ на глюкозу38
- ПродуктыCO₂ и H₂O
- Плюсыв 19 раз больше АТФ, полное окисление, любое «топливо»
15. Как клетка регулирует дыхание
Митохондрии не сжигают питательные вещества впустую: скорость дыхания определяется потребностью клетки в АТФ. В 1955 году американские биохимики Бриттон Чанс и Рональд Уильямс, измеряя потребление кислорода изолированными митохондриями, показали: если в среде много АДФ, митохондрии дышат быстро; когда весь АДФ превращён в АТФ, дыхание резко замедляется [11]. Этот механизм назвали дыхательным контролем.
Причина проста. Когда АДФ нет, АТФ-синтаза не может работать, протоны не возвращаются в матрикс, градиент нарастает до максимума, и перекачивать протоны против такого градиента дыхательной цепи становится «не по силам» — перенос электронов замедляется. Как только клетка начинает тратить АТФ (мышца сокращается, нейрон проводит импульсы), появляется АДФ, протоны идут через АТФ-синтазу, градиент немного снижается, и дыхание ускоряется. Так скорость потребления кислорода автоматически следует за расходом энергии. При физической нагрузке потребление кислорода мышцами может вырасти в 50–100 раз.
16. Дыхание в работе: мышцы, тренировка, полёт
Лучше всего роль дыхательной цепи видна в работающих мышцах. Запаса АТФ в мышце хватает лишь на несколько секунд сокращения, а дальше клетка подключает источники энергии по очереди.
- Креатинфосфат — быстрый резерв: фермент креатинкиназа переносит с него фосфатную группу на АДФ. Его хватает примерно на 10 секунд работы максимальной мощности — на стометровку.
- Анаэробный гликолиз — главный источник АТФ при интенсивной работе продолжительностью от десятков секунд до 1–2 минут (бег на 400 м). Он быстрый, но даёт мало АТФ и приводит к накоплению лактата и закислению мышцы.
- Аэробное дыхание — основа любой длительной работы: марафона, лыжной гонки, ходьбы. Оно медленнее разгоняется, но может идти часами, используя и глюкозу, и жирные кислоты.
После интенсивной нагрузки мы ещё некоторое время часто и глубоко дышим. Повышенное потребление кислорода после работы идёт на восстановление запасов АТФ и креатинфосфата, на окисление и переработку лактата, на восполнение кислорода, связанного с миоглобином.
Мышечные волокна различаются по способу получения энергии. Красные медленные волокна богаты митохондриями, капиллярами и миоглобином — белком, запасающим кислород в мышце, — и могут долго работать без утомления. Белые быстрые волокна содержат мало митохондрий и работают в основном за счёт гликолиза — сильно, но недолго. Наглядный пример — тёмное мясо грудки дикой утки и светлое мясо куриной грудки: перелётная утка способна часами махать крыльями, а курица взлетает лишь ненадолго.
Число митохондрий можно натренировать. В 1967 году американский физиолог Джон Холлоси несколько месяцев ежедневно заставлял крыс бегать на беговой дорожке и обнаружил, что в их мышцах примерно вдвое выросли активность ферментов дыхательной цепи и способность митохондрий поглощать кислород [12]. Эта работа заложила основы спортивной биохимии: тренировка на выносливость увеличивает число и размер митохондрий, и мышца дольше работает в аэробном режиме, не накапливая лактат.
Рекордсмены по плотности митохондрий — летательные мышцы колибри: митохондрии занимают в них около трети объёма волокна, а кристы упакованы особенно плотно. В клетках сердечной мышцы человека митохондрии тоже занимают около трети объёма. Больше митохондрий в мышечное волокно не поместить: остальное место нужно сократительным белкам.
17. Разобщение: когда дыхание греет
Иногда клетке нужна не АТФ, а теплота. Тогда протоны пропускают обратно в матрикс в обход АТФ-синтазы, и энергия протонного градиента рассеивается в виде теплоты. Это называют разобщением дыхания и фосфорилирования.
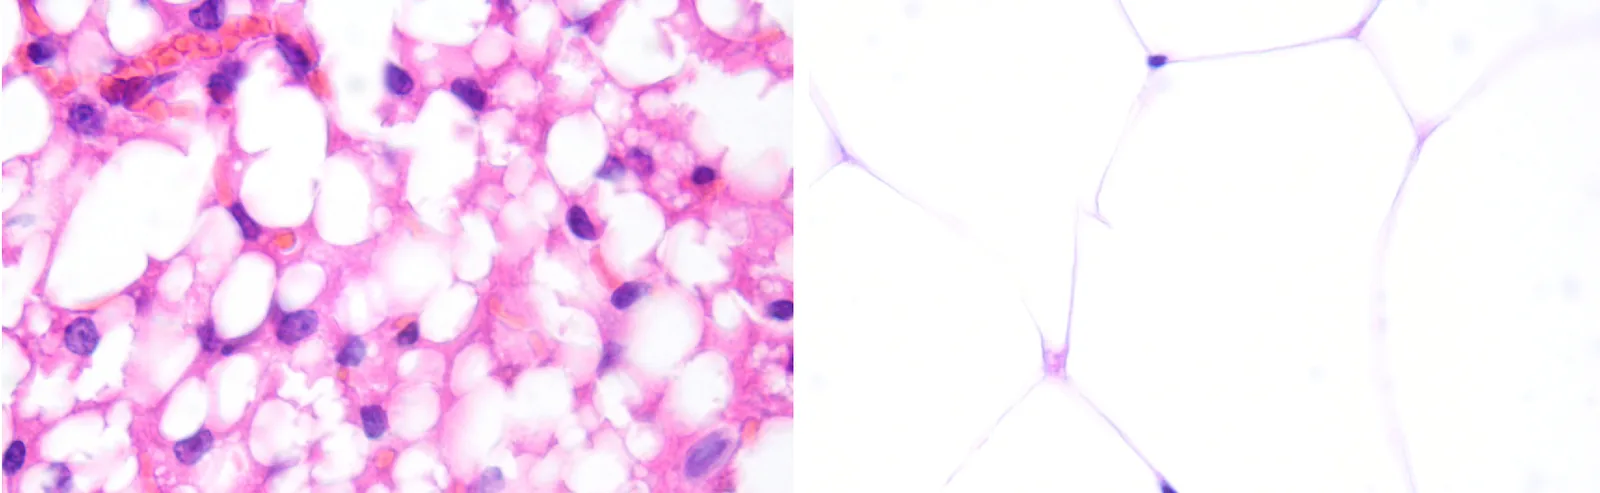
- Бурый жир млекопитающих содержит в митохондриях разобщающий белок термогенин. У новорождённых детей, у животных, впадающих в спячку и выходящих из неё, у мелких грызунов бурый жир — главный «обогреватель» [13]. Бурый цвет ткани создают многочисленные митохондрии с цитохромами.
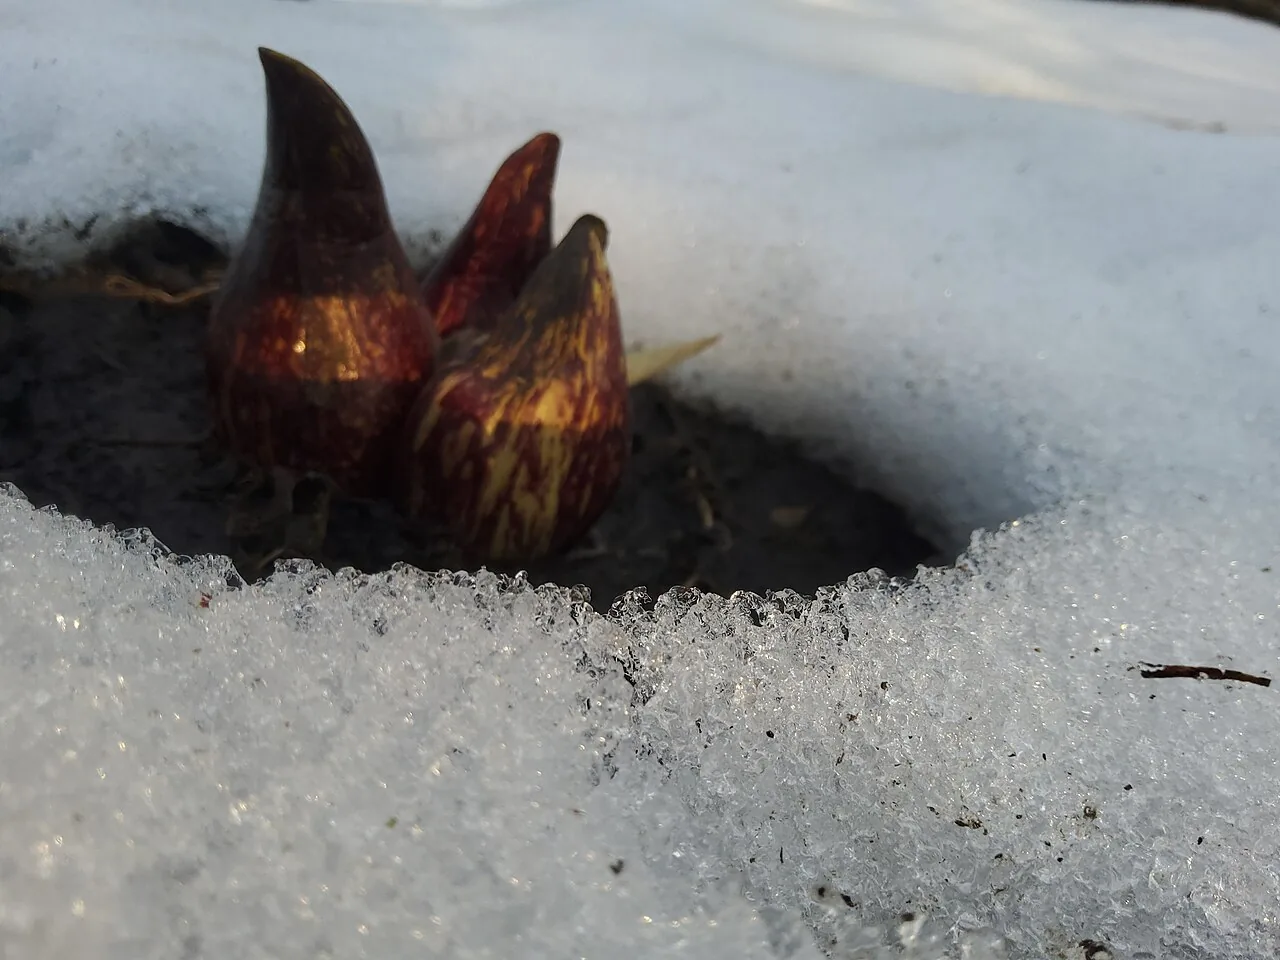
- Растения имеют «альтернативную оксидазу» — фермент, передающий электроны с убихинона прямо на кислород в обход комплексов III и IV, без перекачки протонов. Соцветия аронника и симплокарпуса за счёт такого дыхания нагреваются на 10–20 °C выше окружающего воздуха, усиливая запах, привлекающий насекомых-опылителей.
- Химические разобщители, например динитрофенол, переносят протоны через мембрану бесконтрольно. В 1930-х годах динитрофенол продавали как средство для похудения, пока не выяснилось, что он вызывает смертельный перегрев (подробнее — в статье «АТФ и энергетика клетки»).
18. Яды дыхательной цепи
Каждое звено дыхательной цепи — мишень определённых ядов, и их изучение помогло понять порядок переносчиков.
| Яд | Мишень | Где встречается |
|---|---|---|
| Ротенон | комплекс I | корни тропических бобовых; веками использовался для ловли рыбы, применяется как инсектицид |
| Антимицин А | комплекс III | антибиотик бактерий-стрептомицетов |
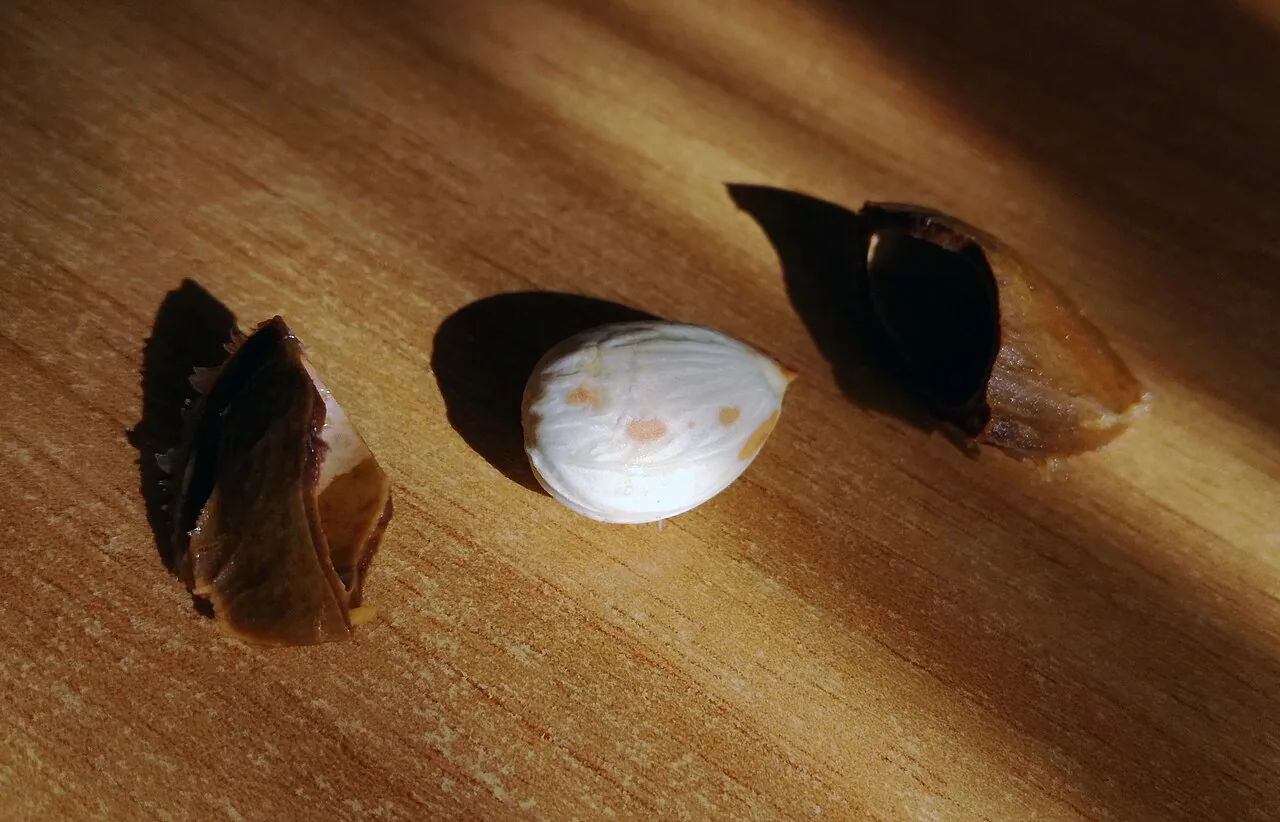
| Цианиды, сероводород, азид | комплекс IV (цитохромоксидаза) | горький миндаль, ядра абрикосов (при расщеплении амигдалина), промышленные газы |
| Угарный газ | комплекс IV и гемоглобин | продукт неполного сгорания топлива |
| Олигомицин | АТФ-синтаза | антибиотик стрептомицетов |
| Атрактилозид, бонгкрековая кислота | АДФ/АТФ-транслоказа | чертополох атрактилис, загрязнённые продукты из кокоса |
| Динитрофенол | разобщает дыхание и синтез АТФ | синтетическое вещество |
Цианид — самый известный яд дыхательной цепи. Он связывается с железом цитохромоксидазы, и электроны перестают поступать на кислород. Кровь при этом остаётся богатой кислородом (поэтому кожа отравленного бывает ярко-розовой), но клетки не могут его использовать. Нейроны и клетки сердца гибнут за минуты. Ротенон интересен другим: при длительном воздействии малыми дозами он повреждает нейроны, вырабатывающие дофамин, и вызывает у лабораторных животных симптомы, похожие на болезнь Паркинсона, — это одно из свидетельств связи митохондрий с нейродегенеративными болезнями.
19. Утечка электронов, активные формы кислорода и старение
Дыхательная цепь работает очень точно, но не идеально. Небольшая доля электронов — по разным оценкам, от десятых долей процента до 1–2 % — «утекает» с комплексов I и III и присоединяется к кислороду по одному, образуя супероксид-анион. Из него образуются пероксид водорода и гидроксильный радикал — активные формы кислорода, повреждающие липиды мембран, белки и ДНК. Митохондрии защищаются от них ферментами (супероксиддисмутазой, пероксидазами) и антиоксидантами, но часть повреждений неизбежна.
В 1956 году американский химик Денхэм Харман предположил, что накопление таких повреждений — одна из причин старения [14]. Позже он уточнил гипотезу: главный источник радикалов и главная их мишень — сами митохондрии, ведь их ДНК лежит рядом с дыхательной цепью и плохо защищена. Свободнорадикальная теория старения стала одной из самых популярных и породила моду на антиоксиданты. Но опыты показали, что всё сложнее: большие дозы антиоксидантов не продлевают жизнь, а небольшие количества активных форм кислорода служат важными сигналами, запускающими защитные механизмы клетки. Сегодня считают, что повреждение митохондрий — лишь одна из многих взаимосвязанных причин старения.
20. Митохондриальные болезни
Белки дыхательной цепи кодируются двумя геномами: большинство — ядерными генами, а 13 ключевых субъединиц — маленькой кольцевой ДНК самих митохондрий. Мутации в генах дыхательной цепи вызывают митохондриальные болезни. Сильнее всего страдают органы с наибольшей потребностью в энергии: мозг, глаза, сердце, мышцы, уши.
Первая болезнь, причина которой была найдена в митохондриальной ДНК, — наследственная оптическая нейропатия Лебера: у молодых людей внезапно и быстро слепнут оба глаза из-за гибели клеток зрительного нерва. В 1988 году группа американского генетика Дугласа Уоллеса обнаружила, что её вызывает замена одного нуклеотида в митохондриальном гене субъединицы комплекса I [15]. Митохондриальные болезни наследуются по материнской линии: митохондрии зародыш получает почти исключительно от яйцеклетки.
Чтобы женщины-носительницы таких мутаций могли родить здоровых детей, разработан метод замены митохондрий: ядро яйцеклетки (или зиготы) матери переносят в яйцеклетку донора со здоровыми митохондриями, из которой удалено собственное ядро. Ребёнок получает ядерные гены отца и матери и митохондрии донора — поэтому таких детей иногда называют «детьми трёх родителей». В Великобритании метод был разрешён законом в 2015 году, и с тех пор так родились первые дети.
21. Цитохром c: летопись эволюции и сигнал гибели клетки
Маленький белок цитохром c (у человека — 104 аминокислоты) есть у всех эукариот, дышащих кислородом. Его функция так важна, что многие участки молекулы почти не меняются в ходе эволюции, а другие меняются медленно и с примерно постоянной скоростью. В 1967 году американские учёные Уолтер Фитч и Эмануэль Марголиаш сравнили последовательности цитохрома c двадцати организмов — от дрожжей до человека — и построили по ним родословное древо [16]. Оно почти совпало с древом, которое зоологи и ботаники построили по строению и ископаемым остаткам. Это была одна из первых молекулярных филогений.
Цитохромы c человека и шимпанзе одинаковы, у человека и макаки-резуса различаются одной аминокислотой, у человека и лошади — двенадцатью, а у человека и дрожжей — более чем сорока. Чем дальше родство, тем больше различий: молекулы хранят историю эволюции не хуже окаменелостей (подробнее о таких доказательствах — в статье «Сравнительно-анатомические и молекулярные доказательства эволюции»).
В 1996 году у цитохрома c обнаружилась вторая, совершенно неожиданная роль. Американский биохимик китайского происхождения Сяодун Ван с коллегами искал, что запускает программируемую гибель клетки — апоптоз, — и выделил из клеточного экстракта необходимый для этого белок. Им оказался цитохром c [17]. Когда клетка серьёзно повреждена, наружная мембрана митохондрий становится проницаемой, цитохром c выходит из межмембранного пространства в цитоплазму, связывается с особым белком и запускает каскад ферментов-каспаз, которые упорядоченно разбирают клетку. Так митохондрии, снабжающие клетку энергией, участвуют и в решении о её гибели. Нарушения апоптоза — одна из причин злокачественного роста.
22. Энергия и сложность жизни
Почему бактерии и археи за четыре миллиарда лет так и остались мелкими и относительно простыми, а эукариоты создали огромное разнообразие сложных многоклеточных организмов? Английский биохимик Ник Лейн и немецкий биолог Уильям Мартин в 2010 году предположили, что дело в энергетике [18]. У бактерии дыхательная цепь расположена только на плазматической мембране, и с ростом клетки её поверхность растёт медленнее объёма: крупной бактерии не хватает энергии. Эукариотическая клетка содержит сотни и тысячи митохондрий — по сути, «прирученных» бактерий, каждая со своей мембраной для дыхательной цепи и своей маленькой ДНК, управляющей ключевыми белками на месте. Это позволило эукариотам располагать в расчёте на один ген в тысячи раз большей энергией и «позволить себе» большие геномы, сложные белковые машины, крупные клетки.
Так дыхательная цепь, полученная эукариотами от симбиотических бактерий около двух миллиардов лет назад, оказалась, возможно, ключом ко всей сложной жизни на Земле — от водорослей до человека (подробнее — в статье «Эндосимбиоз и симбиогенез»).
23. Дыхание у бактерий
У бактерий дыхательная цепь расположена в плазматической мембране, и протоны выкачиваются наружу. Состав их цепей гораздо разнообразнее, чем у митохондрий. Кишечная палочка, например, может переключаться между несколькими вариантами цепи в зависимости от того, много ли кислорода. Многие бактерии и археи дышат без кислорода, передавая электроны на нитраты, сульфаты, соединения железа, фумарат — это анаэробное дыхание. Бактерии-хемосинтетики используют дыхательную цепь, чтобы получать энергию от окисления неорганических веществ (подробнее — в статье «Хемосинтез»).
Энергию протонного градиента бактерии тратят не только на синтез АТФ, но и на вращение жгутиков и транспорт веществ через мембрану. Поэтому для бактерии протонный градиент — главная «энергетическая валюта» наравне с АТФ.
Особенно необычны бактерии, «дышащие» металлами. В 1987 году американский микробиолог Дерек Лавли выделил из донных отложений реки Потомак бактерию, позже названную Geobacter metallireducens. Она окисляет органические вещества, передавая электроны на нерастворимые оксиды железа(III) — то есть на твёрдые частицы вне клетки. В 2005 году группа Лавли показала, что геобактер передаёт электроны по тонким проводящим нитям длиной в несколько микрометров; их назвали микробными нанопроводами [19]. В 2019 году выяснилось, что по крайней мере часть этих нитей собрана из цитохромов, гемы которых выстроены в непрерывную цепочку [20], — по сути, это вынесенный за пределы клетки участок дыхательной цепи. Такие бактерии могут отдавать электроны и электроду: на этом основаны микробные топливные элементы, вырабатывающие электричество из органических веществ сточных вод и донного ила.
24. Итог серии: обмен веществ как система
Эта статья завершает серию об обмене веществ и энергии в клетке. Вот как связаны между собой её темы.
- «Обмен веществ клетки» — ассимиляция и диссимиляция, автотрофы и гетеротрофы, роль кислорода.
- «АТФ и энергетика клетки» — универсальная «энергетическая валюта», сопряжение реакций, переносчики.
- «Ферменты» — биологические катализаторы, без которых не идёт ни одна реакция обмена.
- «Скорость ферментативных реакций» — как условия, активаторы и ингибиторы управляют обменом.
- «Световая фаза фотосинтеза» — превращение энергии света в АТФ и НАДФ·Н.
- «Темновая фаза и продуктивность фотосинтеза» — синтез углеводов, факторы и значение фотосинтеза.
- «Хемосинтез» — первичный синтез органики без света.
- «Анаэробы и брожение» — получение энергии без кислорода.
- «Этапы энергетического обмена» — подготовительный этап, гликолиз, цикл Кребса.
- Эта статья — дыхательная цепь, окислительное фосфорилирование и эффективность энергетического обмена.
Главная мысль серии: обмен веществ — единая система, в которой энергия Солнца, уловленная фотосинтезом (или энергия химических реакций, используемая хемосинтетиками), запасается в органических веществах, а затем освобождается при брожении и дыхании и через АТФ обеспечивает всю работу живых клеток. Все эти превращения ведут ферменты, а связывают — общие вещества-узлы и одинаковые механизмы: перенос электронов, протонный градиент, АТФ-синтаза.
25. Частые ошибки
- «Кислород окисляет глюкозу в митохондриях». Кислород — конечный акцептор электронов в дыхательной цепи; он превращается в воду, а глюкоза окисляется постепенно, отдавая электроны переносчикам.
- «АТФ синтезируется дыхательной цепью». Дыхательная цепь создаёт протонный градиент; АТФ синтезирует АТФ-синтаза за счёт энергии потока протонов.
- «Протоны перекачиваются в матрикс». Протоны выкачиваются из матрикса в межмембранное пространство, а в матрикс возвращаются через АТФ-синтазу.
- «ФАД·Н2 даёт столько же АТФ, сколько НАД·Н». Меньше: его электроны поступают в цепь в обход комплекса I.
- «При окислительном фосфорилировании выделяется CO2». CO2 выделяется раньше — при декарбоксилировании пирувата и в цикле Кребса; в дыхательной цепи образуется вода.
- «Анаэробный путь хуже во всём». Он в 19 раз менее выгоден по выходу АТФ, но быстрее и не требует кислорода, поэтому сохранился у всех организмов.
- «Дыхательная цепь находится на наружной мембране митохондрии». Она во внутренней мембране, главным образом в кристах.
26. Интересные факты
- Цитохромы впервые увидел в 1884 году ирландский врач Ч. Мак-Манн, но ему не поверили; через сорок лет их заново открыл Д. Кейлин и восстановил приоритет Мак-Манна.
- Свою хемиосмотическую теорию П. Митчелл проверял в собственной лаборатории в восстановленном им старинном особняке в Корнуолле.
- Напряжённость электрического поля на внутренней мембране митохондрии — около 300 000 вольт на сантиметр.
- Около 90 % кислорода, потребляемого организмом, превращается в воду одним ферментом — цитохромоксидазой.
- При отравлении цианидом кожа может быть ярко-розовой: кровь насыщена кислородом, но клетки не могут его использовать.
- Соцветия некоторых аронниковых за счёт «альтернативного» дыхания нагреваются на 10–20 °C выше воздуха.
- Первая болезнь, вызванная мутацией митохондриальной ДНК, — наследственная оптическая нейропатия Лебера — объяснена в 1988 году.
- КПД энергетического обмена клетки (около 50 % по школьному счёту) выше, чем у автомобильного двигателя.
- Цитохромы c человека и шимпанзе не различаются ни одной аминокислотой.
- Бактерии геобактеры «дышат» ржавчиной и передают электроны по белковым нанопроводам.
- Митохондрии занимают около трети объёма клеток сердечной мышцы и летательных мышц колибри.
- Слово «митохондрия» образовано от греческих слов «нить» и «зёрнышко»: так в 1898 году назвал эти органоиды немецкий гистолог Карл Бенда, видевший их в микроскоп то в виде нитей, то в виде зёрен.
- Ротенон получают из корней тропических бобовых — дерриса и лонхокарпуса; жители Южной Америки и Юго-Восточной Азии веками глушили этими корнями рыбу.
27. Частые вопросы
Почему мы дышим кислородом, а не каким-то другим веществом?
Кислород — один из самых сильных окислителей, доступных в природе, и при этом его много в воздухе и воде, а продукт его восстановления — вода — безвреден. Чем сильнее конечный акцептор электронов, тем больше энергии выделяется при переносе на него электронов, тем больше АТФ можно получить. Анаэробное дыхание с нитратами, сульфатами или железом даёт меньше энергии.
Зачем дыхательной цепи так много звеньев?
Если бы электроны НАД·Н переходили на кислород сразу, выделялась бы большая порция энергии в виде теплоты, и её нельзя было бы запасти. Многоступенчатая цепь отдаёт энергию небольшими порциями, каждая из которых достаточна для перекачки протонов. Это похоже на то, как высокий перепад реки разбивают на несколько плотин, чтобы на каждой работала турбина.
Почему окисление НАД·Н даёт больше АТФ, чем ФАД·Н2?
Электроны НАД·Н входят в цепь через комплекс I и проходят три «насосных» комплекса (I, III, IV), выкачивая 10 протонов. Электроны ФАД·Н2 входят через комплекс II, который протонов не перекачивает, и проходят только комплексы III и IV — 6 протонов. Меньше протонов — меньше АТФ.
Можно ли «дышать» без митохондрий?
У бактерий дыхательная цепь работает на плазматической мембране, поэтому они дышат без митохондрий. Среди эукариот есть одноклеточные паразиты и обитатели бескислородных сред (лямблии, трихомонады), у которых митохондрии упростились и утратили дыхательную цепь; они получают энергию брожением.
Почему при отравлении угарным газом помогает чистый кислород?
Угарный газ связывается с гемоглобином и цитохромоксидазой прочнее кислорода, вытесняя его. Дыхание чистым кислородом (а при тяжёлом отравлении — кислородом под давлением в барокамере) увеличивает концентрацию O2 и ускоряет вытеснение CO из гемоглобина и ферментов.
Сколько митохондрий в теле человека?
Точно сосчитать невозможно, но по оценкам — порядка десяти миллионов миллиардов. Их суммарная масса составляет около десятой части массы тела, а площадь их внутренних мембран, по оценкам, — около 14 000 квадратных метров.
Почему спортсмены тренируются в горах?
В горах воздух разрежен, и в крови меньше кислорода. Организм приспосабливается: увеличивается число эритроцитов, в мышцах растут количество митохондрий и капилляров. Вернувшись на равнину, спортсмен некоторое время лучше снабжает мышцы кислородом и может дольше работать в аэробном режиме.
Где в митохондрии образуется вода?
В активном центре цитохромоксидазы (комплекса IV) на внутренней мембране, со стороны матрикса: кислород принимает четыре электрона и четыре протона из матрикса и превращается в две молекулы воды. Эта «метаболическая вода» — 300–400 мл в сутки у человека.
Чем отличается дыхание клетки от дыхания организма?
Внешнее дыхание — это газообмен: лёгкие, жабры или поверхность тела поглощают кислород и выделяют углекислый газ. Клеточное дыхание — окисление органических веществ в клетках с синтезом АТФ. Они связаны: кровь доставляет кислород к цитохромоксидазе митохондрий и уносит CO2, образовавшийся в цикле Кребса. Внешнее дыхание существует ради клеточного.
Откуда в выдыхаемом воздухе углекислый газ, если кислород превращается в воду?
CO2 образуется раньше дыхательной цепи — при окислении пировиноградной кислоты и в цикле Кребса, и его атомы кислорода происходят из глюкозы и воды, а не из вдыхаемого O2. Это показали опыты с тяжёлым изотопом кислорода 18O: метка вдыхаемого кислорода оказывается в воде, а не в углекислом газе.
Помогают ли добавки с коферментом Q10?
Убихинон синтезируется в организме сам, и у здоровых людей нет убедительных доказательств, что его приём «ускоряет обмен веществ» или прибавляет энергии. Его назначают при редких наследственных нарушениях синтеза убихинона и некоторых других болезнях — по решению врача.
Нужны ли митохондрии растениям, если у них есть хлоропласты?
Нужны. Ночью и в нефотосинтезирующих органах (корнях, клубнях, семенах) АТФ образуется только при дыхании. Да и днём АТФ хлоропластов расходуется главным образом внутри самих хлоропластов на темновую фазу, а цитоплазма клетки получает АТФ в основном от митохондрий.
Почему мы задыхаемся от избытка углекислого газа, а не от недостатка кислорода?
Дыхательный центр продолговатого мозга реагирует главным образом на рост концентрации CO2 и закисление крови, а не на снижение кислорода. Поэтому в закрытом помещении нас прежде всего мучает накопившийся углекислый газ. А вот недостаток кислорода без избытка CO2 (например, в атмосфере азота или на большой высоте) коварен: человек может не почувствовать удушья и потерять сознание внезапно, когда митохондрии нейронов уже не получают достаточно кислорода.
Почему при отравлении цианидом страдают в первую очередь мозг и сердце?
Эти органы почти целиком зависят от аэробного синтеза АТФ и почти не имеют запасов энергии. Нейронам АТФ нужна непрерывно — для работы натрий-калиевого насоса, поддерживающего мембранный потенциал; без неё они перестают проводить импульсы через несколько секунд и гибнут через несколько минут. Клетки сердечной мышцы сокращаются непрерывно и тоже не могут долго работать на гликолизе. Мышцы и печень выдерживают остановку дыхания дольше.
28. ЕГЭ
Что нужно уметь. Объяснять роль митохондрий в биологическом окислении; описывать кислородный этап (цикл Кребса в матриксе, дыхательная цепь и окислительное фосфорилирование на кристах); объяснять роль кислорода как конечного акцептора электронов; называть преимущества аэробного пути обмена веществ перед анаэробным; оценивать эффективность энергетического обмена; решать задачи на подсчёт АТФ, CO2, O2 и энергии [21].
Типичные задания: выбор характеристик кислородного этапа; соответствие «процесс — место в митохондрии»; задачи на энергетический обмен (с учётом 38 АТФ и 40 кДж на макроэргическую связь); вопросы второй части: «Почему аэробный путь энергетически выгоднее анаэробного?», «Какова роль кислорода в клеточном дыхании?», «Почему в клетках сердечной мышцы много митохондрий с густыми кристами?».
Разбор типичного задания второй части
Задание: «Назовите не менее трёх преимуществ аэробного пути энергетического обмена перед анаэробным». Полный ответ: 1) при аэробном пути из одной молекулы глюкозы образуется 38 молекул АТФ, при анаэробном — 2, то есть в 19 раз больше; 2) органические вещества окисляются полностью до CO2 и H2O, в которых почти не остаётся энергии, а при брожении образуются вещества, ещё содержащие много энергии и часто вредные (молочная кислота, этанол); 3) в аэробный путь через цикл Кребса включаются продукты расщепления углеводов, жиров и белков; 4) большой выход энергии обеспечил возможность существования крупных, подвижных, теплокровных организмов.
Разбор расчётной задачи
Задача: «В диссимиляцию вступило 7 моль глюкозы, из которых полному расщеплению подверглись только 2 моль. Определите, сколько моль молочной кислоты и CO2 образовалось, сколько моль АТФ синтезировано и сколько энергии в ней запасено». Решение: 1) гликолизу подверглись все 7 моль глюкозы: образовалось 14 моль пировиноградной кислоты и 7 · 2 = 14 моль АТФ; 2) 5 моль глюкозы не окислились полностью — из них образовалось 5 · 2 = 10 моль молочной кислоты; 3) 2 моль глюкозы окислились полностью: образовалось 2 · 6 = 12 моль CO2 и 2 · 36 = 72 моль АТФ на кислородном этапе; 4) всего АТФ: 14 + 72 = 86 моль, в ней запасено 86 · 40 = 3440 кДж.
Как потерять балл. Написать, что «при аэробном дыхании выделяется больше энергии, потому что больше кислорода». Ответ должен объяснять полноту окисления и выход АТФ: при аэробном пути глюкоза окисляется до конца, и энергия переноса электронов на кислород используется для синтеза АТФ на кристах митохондрий.
29. Для олимпиад
Энергия и протоны. Перенос пары электронов от НАД·Н на кислород: ΔG = −nFΔE = −2 · 96,5 · 1,14 ≈ −220 кДж/моль. На перенос одного протона через мембрану при протонодвижущей силе 0,2 В нужно F · 0,2 ≈ 19,3 кДж/моль. Десять протонов — около 193 кДж, то есть дыхательная цепь запасает в градиенте около 88 % энергии окисления НАД·Н.
Стоимость АТФ. В клетке синтез АТФ требует 50–60 кДж/моль. На него расходуется около 3,7 протона (8/3 через АТФ-синтазу и 1 на транспорт): 3,7 · 19,3 ≈ 71 кДж — то есть КПД самой АТФ-синтазы с транспортом около 70–85 %.
Расчёт потребления кислорода. Человек в покое синтезирует около 50 кг АТФ (около 100 моль) в сутки. При отношении P/O ≈ 2,5 (2,5 АТФ на атом кислорода) нужно 100 / 2,5 = 40 моль атомов O, то есть 20 моль O2 ≈ 450 л кислорода в сутки — близко к реальному потреблению человека в покое (300–400 л).
Из чего складывается протонодвижущая сила. Разность pH и разность потенциалов складывают, переводя pH в милливольты: при температуре тела одна единица pH эквивалентна около 60 мВ. Тогда Δp ≈ Δψ + 60 мВ · ΔpH = 160 + 60 · 0,8 ≈ 208 мВ — около 0,2 В. В митохондриях основную часть протонодвижущей силы даёт электрическая составляющая, а в тилакоидах хлоропластов, наоборот, разность pH.
Q-цикл. Почему комплекс III выделяет в межмембранное пространство 4 протона на пару электронов, если в нём, в отличие от комплексов I и IV, нет протонных каналов? В 1975 году Митчелл предложил объяснение — Q-цикл. Убихинол окисляется у наружной стороны мембраны и отдаёт два протона наружу; один его электрон идёт на цитохром c, а второй возвращается внутрь мембраны и восстанавливает другую молекулу убихинона за счёт протонов матрикса. За два таких оборота на цитохром c передаются 2 электрона, а наружу выходят 4 протона.
Дыхательный контроль. Отношение скорости дыхания митохондрий в присутствии АДФ к скорости без АДФ называют коэффициентом дыхательного контроля; у здоровых митохондрий он равен 5–10. Разобщители (динитрофенол) снижают его до 1: дыхание быстрое и без АДФ, но АТФ не синтезируется.
30. Задания с разбором
Задание 1
Выберите три верных ответа. Дыхательная цепь: 1) расположена во внутренней мембране митохондрий; 2) переносит электроны от НАД·Н и ФАД·Н2 на кислород; 3) находится в матриксе; 4) перекачивает протоны в межмембранное пространство; 5) выделяет CO2; 6) расположена на наружной мембране митохондрий.
Ответ
1, 2, 4.
Задание 2
Установите соответствие между процессами и местом их протекания в митохондрии. Процессы: А) цикл Кребса; Б) перенос электронов по цепи; В) синтез АТФ АТФ-синтазой; Г) окислительное декарбоксилирование пирувата; Д) образование воды из кислорода. Места: 1) матрикс; 2) внутренняя мембрана (кристы).
Ответ
А1, Б2, В2, Г1, Д2.
Задание 3
Найдите ошибки в тексте. (1) Кислородный этап идёт в митохондриях. (2) Кислород в дыхательной цепи превращается в углекислый газ. (3) АТФ-синтаза использует энергию потока протонов. (4) Протоны перекачиваются из межмембранного пространства в матрикс. (5) При кислородном этапе образуется 36 молекул АТФ.
Ответ
(2) Кислород превращается в воду; CO2 образуется при декарбоксилировании в цикле Кребса. (4) Протоны перекачиваются из матрикса в межмембранное пространство, а возвращаются в матрикс через АТФ-синтазу.
Задание 4
Выберите три верных ответа. Преимущества аэробного пути энергетического обмена перед анаэробным: 1) больший выход АТФ; 2) полное окисление органических веществ до CO2 и H2O; 3) не требует кислорода; 4) возможность использовать жиры и белки через цикл Кребса; 5) идёт только в цитоплазме; 6) образуется молочная кислота.
Ответ
1, 2, 4.
Задание 5
Какова роль кислорода в клеточном дыхании? Что произойдёт с синтезом АТФ, если кислород перестанет поступать в клетку?
Ответ
1) Кислород — конечный акцептор электронов дыхательной цепи; присоединяя электроны и протоны, он превращается в воду. 2) Без кислорода электроны не покидают цепь, перенос электронов и перекачка протонов прекращаются, исчезает протонный градиент, и АТФ-синтаза перестаёт синтезировать АТФ. 3) Останавливается и цикл Кребса (нет окисленных НАД+ и ФАД); клетка может получать лишь 2 АТФ на глюкозу гликолизом.
Задание 6
Установите последовательность событий при окислительном фосфорилировании: А) синтез АТФ в головке АТФ-синтазы; Б) передача электронов от НАД·Н на комплекс I; В) перекачка протонов в межмембранное пространство; Г) возвращение протонов в матрикс через АТФ-синтазу; Д) присоединение электронов к кислороду с образованием воды.
Ответ
Б, В, Д, Г, А (перекачка протонов и перенос электронов к кислороду идут одновременно; протоны возвращаются и синтезируется АТФ — следом).
Задание 7
В процессе энергетического обмена полностью окислилось 6 моль глюкозы. Сколько моль O2 было поглощено, сколько моль CO2 и H2O образовалось (по уравнению C6H12O6 + 6O2 → 6CO2 + 6H2O)? Сколько моль АТФ синтезировано и сколько энергии в ней запасено?
Ответ
1) O2: 6 · 6 = 36 моль. 2) CO2: 36 моль; H2O: 36 моль (без учёта воды, образующейся при синтезе АТФ). 3) АТФ: 6 · 38 = 228 моль. 4) Энергия, запасённая в АТФ: 228 · 40 = 9120 кДж.
Задание 8
Выберите три верных ответа. Цианиды смертельно опасны, потому что: 1) блокируют цитохромоксидазу; 2) останавливают перенос электронов на кислород; 3) прекращают синтез АТФ в митохондриях; 4) разрушают гемоглобин в эритроцитах; 5) усиливают брожение в мышцах; 6) окисляют глюкозу до CO2.
Ответ
1, 2, 3.
Задание 9
Почему в клетках сердечной мышцы много митохондрий с многочисленными плотно упакованными кристами?
Ответ
1) Сердце работает непрерывно и нуждается в огромном количестве АТФ. 2) Основная часть АТФ синтезируется на кристах митохондрий, где расположены дыхательная цепь и АТФ-синтаза. 3) Чем больше митохондрий и чем больше площадь крист, тем больше АТФ может синтезировать клетка.
Задание 10
Установите соответствие между ядами и звеньями энергетического обмена, которые они блокируют. Яды: А) цианид; Б) ротенон; В) олигомицин; Г) атрактилозид; Д) динитрофенол. Звенья: 1) комплекс I; 2) комплекс IV; 3) АТФ-синтаза; 4) АДФ/АТФ-транслоказа; 5) разобщение (перенос протонов в обход АТФ-синтазы).
Ответ
А2, Б1, В3, Г4, Д5.
Задание 11
Почему молекула ФАД·Н2 даёт меньше АТФ, чем НАД·Н?
Ответ
1) Электроны ФАД·Н2 поступают в дыхательную цепь через комплекс II (на убихинон), минуя комплекс I. 2) Комплекс II не перекачивает протоны, поэтому на пару электронов ФАД·Н2 перекачивается меньше протонов (6 вместо 10). 3) Меньший протонный градиент даёт меньше АТФ: 2 по школьному счёту (1,5 по современному) вместо 3 (2,5).
Задание 12
Выберите три верных ответа. Бурый жир: 1) содержит много митохондрий; 2) вырабатывает теплоту; 3) содержит разобщающий белок термогенин; 4) синтезирует больше АТФ, чем другие ткани; 5) содержит хлоропласты; 6) не дышит.
Ответ
1, 2, 3.
Задание 13
Сравните КПД энергетического обмена при брожении и при полном окислении глюкозы (выделяется соответственно 200 и 2870 кДж на моль глюкозы; 40 кДж на макроэргическую связь). Какой процесс эффективнее и почему?
Ответ
1) Брожение: 2 АТФ · 40 = 80 кДж из 200 — 40 % выделившейся энергии, но лишь 80 / 2870 ≈ 2,8 % энергии глюкозы. 2) Полное окисление: 38 · 40 = 1520 кДж из 2870 — около 53 %. 3) Аэробный путь эффективнее: глюкоза окисляется полностью, и почти вся её энергия освобождается и в большей части запасается в АТФ.
Задание 14
Установите соответствие между характеристиками и этапами энергетического обмена. Характеристики: А) идёт в цитоплазме; Б) идёт на кристах; В) нужен кислород; Г) образуется 2 АТФ; Д) образуется 34 АТФ; Е) образуется пировиноградная кислота. Этапы: 1) гликолиз; 2) окислительное фосфорилирование.
Ответ
А1, Б2, В2, Г1, Д2, Е1.
Задание 15
Почему митохондриальные болезни наследуются по материнской линии и сильнее всего поражают мозг, глаза и мышцы?
Ответ
1) Митохондрии с их ДНК зародыш получает практически только от яйцеклетки матери; митохондрии сперматозоида уничтожаются. 2) Мутации митохондриальной ДНК нарушают работу дыхательной цепи и синтез АТФ. 3) Сильнее всего страдают органы с наибольшей потребностью в энергии — нервная ткань, сетчатка, сердечная и скелетные мышцы.
Задание 16
Выберите три верных ответа. АТФ-синтаза: 1) встроена во внутреннюю мембрану митохондрий; 2) синтезирует АТФ за счёт потока протонов; 3) вращается при прохождении протонов; 4) переносит электроны на кислород; 5) расположена в цитоплазме; 6) расщепляет глюкозу.
Ответ
1, 2, 3.
Задание 17
Почему при интенсивной физической нагрузке потребление кислорода мышцами резко возрастает, а в покое — снижается?
Ответ
1) При нагрузке мышцы быстро расходуют АТФ, образуется много АДФ. 2) АДФ поступает в митохондрии, АТФ-синтаза работает быстрее, протоны возвращаются в матрикс, протонный градиент снижается, и дыхательная цепь ускоряется — растёт потребление кислорода (дыхательный контроль). 3) В покое АДФ мало, градиент высок, перенос электронов замедляется, и кислорода потребляется меньше.
Задание 18
Установите соответствие между учёными и открытиями. Открытия: А) цитохромы; Б) «дыхательный фермент» (цитохромоксидаза); В) хемиосмотическая теория; Г) механизм вращения АТФ-синтазы; Д) митохондриальная мутация при нейропатии Лебера. Учёные: 1) Д. Кейлин; 2) О. Варбург; 3) П. Митчелл; 4) П. Бойер; 5) Д. Уоллес.
Ответ
А1, Б2, В3, Г4, Д5.
Задание 19 (олимпиадное)
Дыхательная цепь при окислении одной молекулы НАД·Н выкачивает 10 протонов, при окислении ФАД·Н2 — 6. АТФ-синтаза человека имеет кольцо из 8 субъединиц и синтезирует 3 АТФ за оборот; на транспорт фосфата и обмен АДФ/АТФ тратится 1 протон на АТФ. Рассчитайте выход АТФ на НАД·Н и ФАД·Н2 и общий выход на глюкозу (10 НАД·Н, 2 ФАД·Н2, 4 АТФ субстратного фосфорилирования; НАД·Н гликолиза считать как митохондриальные).
Ответ
1) На одну АТФ: 8/3 + 1 ≈ 3,67 протона. 2) НАД·Н: 10 / 3,67 ≈ 2,73 АТФ; ФАД·Н2: 6 / 3,67 ≈ 1,64 АТФ. 3) Глюкоза: 10 · 2,73 + 2 · 1,64 + 4 ≈ 27,3 + 3,3 + 4 ≈ 34,6 АТФ — это теоретический максимум; с учётом утечки протонов и челноков реальный выход около 30–32.
Задание 20 (олимпиадное)
Изолированные митохондрии поместили в среду с пируватом и фосфатом. Как изменится скорость потребления кислорода: а) после добавления АДФ; б) после того как весь АДФ превратится в АТФ; в) после добавления олигомицина (ингибитора АТФ-синтазы) в присутствии АДФ; г) после добавления к ним динитрофенола? Объясните.
Ответ
а) Резко возрастёт: АТФ-синтаза пропускает протоны, градиент снижается, дыхательная цепь ускоряется. б) Снизится: без АДФ АТФ-синтаза стоит, градиент максимален, перенос электронов тормозится (дыхательный контроль). в) Снизится почти до исходного уровня, несмотря на АДФ: протоны не могут пройти через заблокированную АТФ-синтазу. г) Резко возрастёт даже в присутствии олигомицина: разобщитель переносит протоны в обход АТФ-синтазы, градиент рассеивается, электроны текут к кислороду с максимальной скоростью, но АТФ не синтезируется — энергия уходит в теплоту.
Литература
- Keilin D. On cytochrome, a respiratory pigment, common to animals, yeast, and higher plants // Proceedings of the Royal Society of London. Series B. 1925. Vol. 98. P. 312–339.
- Nelson D. L., Cox M. M. Lehninger Principles of Biochemistry. 8th ed. New York: W. H. Freeman, 2021.
- Berg J. M., Tymoczko J. L., Gatto G. J., Stryer L. Biochemistry. 9th ed. New York: W. H. Freeman, 2019.
- Mitchell P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism // Nature. 1961. Vol. 191. P. 144–148.
- Sazanov L. A. A giant molecular proton pump: structure and mechanism of respiratory complex I // Nature Reviews Molecular Cell Biology. 2015. Vol. 16. P. 375–388.
- Crane F. L., Hatefi Y., Lester R. L., Widmer C. Isolation of a quinone from beef heart mitochondria // Biochimica et Biophysica Acta. 1957. Vol. 25. P. 220–221.
- Moser C. C., Keske J. M., Warncke K., Farid R. S., Dutton P. L. Nature of biological electron transfer // Nature. 1992. Vol. 355. P. 796–802.
- Mitchell P. Chemiosmotic coupling in oxidative and photosynthetic phosphorylation // Biological Reviews. 1966. Vol. 41. P. 445–501.
- Racker E., Stoeckenius W. Reconstitution of purple membrane vesicles catalyzing light-driven proton uptake and adenosine triphosphate formation // Journal of Biological Chemistry. 1974. Vol. 249. P. 662–663.
- Hinkle P. C. P/O ratios of mitochondrial oxidative phosphorylation // Biochimica et Biophysica Acta — Bioenergetics. 2005. Vol. 1706. P. 1–11.
- Chance B., Williams G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization // Journal of Biological Chemistry. 1955. Vol. 217. P. 383–393.
- Holloszy J. O. Biochemical adaptations in muscle. Effects of exercise on mitochondrial oxygen uptake and respiratory enzyme activity in skeletal muscle // Journal of Biological Chemistry. 1967. Vol. 242. P. 2278–2282.
- Nicholls D. G., Locke R. M. Thermogenic mechanisms in brown fat // Physiological Reviews. 1984. Vol. 64. P. 1–64.
- Harman D. Aging: a theory based on free radical and radiation chemistry // Journal of Gerontology. 1956. Vol. 11. P. 298–300.
- Wallace D. C., Singh G., Lott M. T. et al. Mitochondrial DNA mutation associated with Leber’s hereditary optic neuropathy // Science. 1988. Vol. 242. P. 1427–1430.
- Fitch W. M., Margoliash E. Construction of phylogenetic trees // Science. 1967. Vol. 155. P. 279–284.
- Liu X., Kim C. N., Yang J., Jemmerson R., Wang X. Induction of apoptotic program in cell-free extracts: requirement for dATP and cytochrome c // Cell. 1996. Vol. 86. P. 147–157.
- Lane N., Martin W. The energetics of genome complexity // Nature. 2010. Vol. 467. P. 929–934.
- Reguera G., McCarthy K. D., Mehta T., Nicoll J. S., Tuominen M. T., Lovley D. R. Extracellular electron transfer via microbial nanowires // Nature. 2005. Vol. 435. P. 1098–1101.
- Wang F., Gu Y., O’Brien J. P. et al. Structure of microbial nanowires reveals stacked hemes that transport electrons over micrometers // Cell. 2019. Vol. 177. P. 361–369.
- ФИПИ. Кодификатор проверяемых требований к результатам освоения основной образовательной программы и элементов содержания для проведения ЕГЭ по биологии, 2027 г. М.: ФИПИ, 2026.
Обсуждение
Загружаем обсуждение…